本プロトコルは、 in vivo 電子常磁共鳴(分光法によるメラニンラジカルの検出・解析)を用いてゼブラフィッシュ異種グラフトにおけるメラノーマ発生を評価することを目指し、前臨床メラノーマ研究および治療評価に新たなアプローチを提供します。
この記事について
サマリー
要約
本プロトコルは、ゼブラフィッシュ(Danio rerio)メラノーマ異種移植モデルにおけるメラニン関連ラジカルダイナミクスの監視のためのXバンド(9.5 GHz)電子常磁共鳴分光法の新規のin vivo応用を提示します。この手法の目的は、胚発生中のメラニン関連レドックス変化や、生理学的に関連した脊椎動物モデルにおける腫瘍と宿主の相互作用を直接的かつラベルフリーかつ定量的に評価することを可能にすることです。
メラニンの内在的な常磁性特性を活用することで、従来の蛍光画像だけでは得られない補完的な生化学的情報を提供します。重要なのは、検出された電子常磁共鳴信号はメラニンポリマーの酸化還元活性成分を反映するため、全色素の存在比を直接測定するのではなく、酸化還元感受性の読み取りとして機能することです。
方法の性能は、色素付き野生型胚におけるメラニン関連ラジカルの選択的検出、アルビノ対照群における信号の不在、独立した生物学的複製間での正規化電子常磁性共鳴信号の統計的に有意な発生変化、および代替サンプルホルダーや凍結サンプルを用いた類似結果の検証によって検証されました。
Xバンド電子常磁共鳴分光法とゼブラフィッシュ異種移植モデルを組み合わせることで、このプロトコルは前臨床メラノーマ研究、酸化還元生物学的研究、メラノ生成調節介入の評価において、スケーラブルで倫理的に有利かつ移転可能なプラットフォームを提供します。
概要
本研究の全体的な目的は、ゼブラフィッシュ(Danio rerio)胚の異種移植モデルとXバンド(9.5 GHz)電子常磁共振分光法を組み合わせた信頼性の高いin vivo検出および定量方法の開発と検証することです。このアプローチは、メラノーマの発生過程および薬理学的介入に反応するメラニン関連の酸化還元プロセスを直接的かつ定量的に評価することを目指しています。
メラニンは、皮膚、髪、目の色素沈着に関与する不均一な生体高分子群で、幅広い生物の存在です。その形態の中で、ユーメラニンとフェオメラニンは生物学において明確な役割を果たします。ユーメラニンは抗酸化および光保護特性を示しますが、フェオメラニンは特に紫外線曝露下で活性酸素種(ROS)生成を促進することができます1,2,3。抗酸化作用と酸化促進作用の両方がメラニンラジカルの形成に関連しています。分子レベルでは、メラニンはインドリックおよびキノンを含むサブユニットからなる異均一な酸化還元活性ポリマーであり、完全に酸化されたキノン、部分還元セミキノン、完全還元ヒドロキノンの形成など複数の物理化学的状態で存在します。4,5,6。セミキノンラジカル種の相対的な存在比は動的であり、酸素の利用可能性、活性酸素種(ROS)、金属イオン相互作用、pH、重合度、メラノーム成熟率など局所的な物理化学的条件に依存します。
したがって、これらのラジカル濃度の定量的評価を可能にする手法が、メラニンの酸化還元状態の変化をよりよく理解するために必要とされています。メラノーマでは、メラノーマのメラノ形成の調節不全がメラノーマの発症と進行に寄与します。この調節障害は、局所的な微小環境条件に依存する酸化還元状態シフトに関連していることが多いです。これにより、メラニン酸化還元活性は腫瘍生物学において重要な要素となります。したがって、メラニンラジカルの直接評価を可能にする方法は、メラノーマの病因と治療反応の理解に不可欠です。
ゼブラフィッシュ胚は色素沈着とメラノーマの研究において強力な生体内モデルを示しています。受精後5日(受精後120時間、hpf)までは、指令2010/63/EUの下で保護動物として分類されず、正式な倫理承認なしに高排出実験が許可されています。迅速な開発、光学的透明性、確立されたプロトコルにより、ゼブラフィッシュは毒物学的および薬理学的研究に非常に適しています11,12。重要なのは、この魚が人間と遺伝的・生理学的に大きな類似点を持ち、メラノ形成に関与する主要な経路が保存されていることです13。野生型ゼブラフィッシュは主にユーメラニンを産生し、生理的色素沈着のモデルとして機能しますが、エウメラニンとフェオメラニンを生成するメラノーマ細胞株の移植に基づく異種移植モデルは、生理学的に関連性の高い微小環境における哺乳類腫瘍の進行や薬物反応の調査を可能にします(14,15)。
現在、蛍光ベースのイメージングがゼブラフィッシュのメラノーマ異種移植片研究で標準的に使用されています。このアプローチにより、蛍光染料(例:ジクロロジヒドロフルオレセインジアセテート(DCFDA)やトランスジェニック系統(Grx1-roGFP2、HyPer)16,17などを用いた腫瘍の成長、移動、治療反応のリアルタイム可視化が可能です。しかし、蛍光技術は主に形態学的および空間的情報を提供し、生化学的および酸化還元関連のプロセスを捉える能力には限界があります。さらに、光漂白、染料漏れ、蛍光薬剤化合物の干渉、標識による細胞生理の変化など、測定結果に影響を与える可能性があります。重要なのは、蛍光ベースの手法ではメラニンラジカルやその動的酸化還元挙動について直接的な情報が得られないことです。
電子常磁性共鳴分光法は、安定メラニン関連ラジカルを含む常磁性種の直接検出と定量を可能にするため、独自かつ強力な解析手法を提供します。ユーメラニンとフェオメラニンはどちらもセミキノン多様体を含み、特徴的な電子常磁性共鳴信号を生成しており、これらの信号の相対的な寄与は色素沈着状態およびメラノーマ進行のバイオマーカーとして探求されています18,19。重要なのは、検出信号に直接寄与するのは酸化還元活性のセミキノン分画のみであるため、電子常磁性共鳴分光法はメラニン含有量定量、チロシナーゼ活性、色素解析など従来のメラノ生成関連アッセイに補完的な情報を提供します。したがって、電子常磁性共鳴信号強度は、全色素存在量の直接的な指標ではなく、局所的な物理化学的条件に影響されるメラニン機能状態の酸化還元感受性読み取りとして解釈されるべきです。
ほとんどのin vivo電子常磁共鳴研究はLバンドシステム(低周波マイクロ波(約1〜2 GHz)を用いて常磁性物質を研究し、特により深い信号浸透が必要な大試料で一般磁性物質を研究する一種)を用いて行われてきました。20— Xバンド電子常磁性共鳴は、小容量試料に対してより高いスペクトル分解能と感度を提供します。 特にゼブラフィッシュ胚に適している。さらに、多重調波検出システムを含む最近の技術革新により、信号品質が大幅に向上し、(小規模でより水分の多い)生物学的サンプルでの信頼性の高い測定が可能になります(21,22)。Xバンド共鳴器のサイズは、数個のゼブラフィッシュ胚に適したサイズであり、Lバンドシステムよりも高い分解能と組み合わさることで、使用される動物の数を減らすことが可能です。これは特に異星移植モデルを扱う際に重要です。
これらの利点にもかかわらず、このモデルにおけるXバンド電子常磁共鳴の生存ゼブラフィッシュ胚やメラノーマ異種移植片への応用は、依然としてほとんど未だに研究されていません。 B16F10などのメラノーマ細胞株を用いたin vitro研究は、メラニンラジカル特性に関する貴重な洞察をもたらしました。しかし、彼らは生きた生物のような複雑な生理的背景を欠いています23,24。特に、ゼブラフィッシュの微小環境は、酸素勾配、細胞間相互作用、動的な代謝活動といった重要な要因をもたらし、メラニンラジカル挙動に大きな影響を与える可能性があります25,26。したがって、生理学的に関連した条件下でメラニンラジカルを直接測定できる生体内での方法論の開発と検証の明確な必要性があります。
本研究では、B16F10およびB16F1メラノーマ細胞株を含む異種移植モデルを含む、ゼブラフィッシュ胚にXバンド電子常磁共振分光法を適用するための詳細なプロトコルを提示します。この方法は、メラニンラジカル含有量の定量的評価を可能にすることで、蛍光ベースのイメージングを補完するアプローチを提供し、酸化還元ダイナミクスの洞察を提供します。蛍光技術の構造的・空間的情報と電子常磁性共鳴による生化学的知見を統合することで、この統合戦略は前臨床メラノーマ研究におけるゼブラフィッシュモデルの解析力を高めています。重要なのは、このプロトコルで検出される電子常磁共鳴信号がメラニンポリマーの酸化還元活性成分を反映していることです。したがって、信号強度は総メラニン含有量の直接的な指標ではなく、酸化還元感受性の読み取りとして解釈し、メラニン関連の酸化還元シフトの指標として総色素含有量と組み合わせて考慮すべきです。全生物測定アプローチと注入されたメラノーマ細胞の数の制限により、検出されたシグナルは主にゼブラフィッシュ胚/幼虫全体のレベルでのメラニン関連の全現象を反映しており、異種移植片からのみ発生するメラノーマ特異的シグナルではありません。この区別は特に動的な生物学的システムにおいて重要であり、メラニン酸化状態の変化は全体の色素量の変化とは独立して起こることがあります。
プロトコル
本研究では、受精後最大5日(120 hpf)までシマウマ(Danio rerio)胚を使用しました。この発達段階では、胚は指令2010/63/EUの下で保護動物とはみなされず、実験には倫理委員会による正式な承認を必要としません。それにもかかわらず、すべての作業は良好な実験室の慣行とゼブラフィッシュの管理・使用に関する機関ガイドラインに従って行われました。
1. 試薬の調製およびB16F10マウスメラノーマ細胞株の維持
- 完全な培地の調製
- 500mLのDulbecco's Modified Eagle Medium(DMEM)に胎児用牛血清(FBS)50mLとペニシリン-ストレプトマイシン溶液5.5mLを加えます。
- 使用前に培地全体を37°Cまで温めてください。
注意:セル取り扱い時の熱ストレスを最小限に抑えるために、予温された溶液を使用してください。
- 凍結細胞からの解凍と培養開始
- 凍結したバイアルを細胞とともに素早く解凍し、37°Cの水浴(~1〜2分)で解凍します。
- バイアルの外側を70%エタノールで消毒してください。その後のすべての工程は無菌条件下で行います。
- 細胞懸存液を15mLの円錐形チューブに移し、その中に9mLの予備加熱済み完全培地を含みます。マイコプラズマ検査のために、元の懸流水の少量を保持してください。
- 遠心分離機のセルは200×gの室温で5分間使用します。
- 上澄液を吸引して、凍結培地から残留するジメチルスルホキシド(DMSO)を除去します。
- 細胞ペレットを新鮮で予温された全培地10mLに再懸浮させます。
- 細胞を約9cmのペトリ皿に移し、8字のように優しく回して均等に分布させます。
- 細胞を37°C、CO₂5%、湿度≥95%で一晩培養します。
- 培養培地は16〜24時間後に新鮮な予熱済みの完全培地に交換します。
- 細胞が>80%の合流率に達するまで培養を続けます。サブカルチャーに進みます(ステップ1.3参照)。
注:ペトリ皿の代わりに、滅菌培養容器(例:Tフラスコ)が使用されることもあります。小さな皿やフラスコが好まれる場合は、細胞を比例的に分割して、相対的な培養面積を保ちます。
- 細胞のサブカルチャー
- 細胞単層から培地を取り除きます。マイコプラズマ検査のために少量のアリコートを保持してください。
- 培養皿にリン酸塩緩衝生理食塩水(PBS)を10mL加えます。
- PBSを室温の細胞上で3〜5分間放置し、血清タンパク質を完全に除去します。
- PBSを優しく吸引し、細胞を外さないように注意してください。
- 細胞解離試薬1mLを加え、37°Cで細胞が丸めて剥離するまでインキュベートします(培養時間は5分を超えません)。
- 酵素解離を止めるために、予備温めた完全培地1mLを加えます。
- 細胞懸濁液を優しく上下に数回ピペットで動かし、単一細胞懸濁液を得ます。
- 細胞を新しいペトリ皿またはTフラスコに移し、1:4から1:10の分割比率で予め温めた完全な培地を含みます。細胞を均等に分布させるために、8字の形を描くように優しく回します。
- 細胞は37°C、CO₂5%、湿度≥95%で培養します。
注意:予温された溶液(37°C)を使用し、すべての処置はクラスIIの生物学的安全キャビネット内で無菌条件下で、適切な個人用防護具を着用して行ってください。サブカルチャー細胞は2〜3日ごと、または80〜90%のコンバーシティで行われます。低通過細胞(解凍後の
- 細胞の凍結保存(バンキング)
- 健康で指数関数的に成長する細胞(~70%–80%が合流)を使いましょう。
- ステップ1.3.1–1.3.7に従って細胞を収穫し、細胞懸濁液を15mLの円錐形チューブに移します。
- 細胞を300× g で2分間遠心分離します。
- 上清液を取り出し、細胞を1〜5〜10〜106 mL×冷凍保存培地に再懸濁します。
- 標識されたクライオビアル(細胞株、パッセージ番号、日付)への細胞懸濁をアリコートします。
- バイアルは-80°Cの一晩、制御された冷凍容器を使って冷凍します。
- 代替として、入れ子状断熱法を用いましょう。バイアルを1.5/2.0 mLチューブ用の小さな発泡スチロールラックに挿入し、それを大きな発泡スチロール箱の中に設置します。
注:この二重層構成は、緩やかな冷却速度を達成するために必要な熱的緩衝を提供するよう設計されており、これは凍結保存の成功に不可欠です。
注意:低温材料は断熱手袋と顔保護具を着用して取り扱う必要があります。液体窒素および有害廃棄物の取り扱いに関する機関ガイドラインに従いましょう。
- 代替として、入れ子状断熱法を用いましょう。バイアルを1.5/2.0 mLチューブ用の小さな発泡スチロールラックに挿入し、それを大きな発泡スチロール箱の中に設置します。
- -80°Cでの一晩の培養後、バイアルを液体窒素に移して長期保存します。クライオバイアルは短期保存のために-80°Cで保存されることもあります。
- マイコプラズマ検査
- 解凍、亜培養、または低温保存の際に、培養培地または細胞懸濁液を少量採取します。
- メーカーの指示に従い、検証済みのPCRベースまたは酵素性マイコプラズマ検出キットを用いてマイコプラズマ汚染を評価してください。
- マイコプラズマ陰性培養を実験や細胞株バンクに使用してください。
- 結果を記録し、汚染された培養は除去されるまで廃棄または隔離してください。
注意:マイコプラズマ汚染の検査は定期的に行ってください。
2. ゼブラフィッシュ幼虫へのがん細胞移植
- がん細胞の移植準備
- 細胞を~80%のコンフルージョンまで培養します。
- ステップ1.3.1–1.3.7で説明されたように細胞を収穫します。
- 細胞懸存液を2mLのマイクロ遠心分離機チューブに移します。
- セルを室温で300× g で2分間遠心分離します。
- 上澄液を除去し、細胞ペレットを1mLの滅菌PBSで洗浄します。
- ステップ2.1.4–2.1.5を繰り返し、残ったPBS内の細胞を再び懸浮させます。懸浮液が密度が高いほど、沈殿は少なくなります。
- 懸濁液を上下にピペットで優しく上下に動かし、均質な単一細胞懸濁液が得られます。
注:200 μLのピペットチップを45%ポリビニルピロリドン(PVP)溶液で事前に湿らせ(プライム)して使用してください。これは注射マイクロニードル内の細胞沈着を防ぐのに役立ちます。 - 注射まで細胞懸濁液を氷に保管してください。
注意:細胞凝集が発生した場合は、細胞懸濁液を35〜40μmの細胞ストレーナーに通すか、0.01〜0.05 mg/mLのDNase Iで処理してください。
- ゼブラフィッシュの卵の生産
- 卵採取予定の前夜、成魚ゼブラフィッシュを産卵用に設置したシステム用水槽に入れます。
- タンクを一晩中完全な暗闇に置き、これにより、翌朝明かりが点灯した時にスポーンが発動されます。
- 魚は翌日の薄い出産後に産卵します。卵は水槽の水をティーストレーナーにかけて回収します。
- 卵はE3培地(5 mM NaCl、0.17 mM KCl、0.33 mM CaCl2、0.33 mM MgSO4)で十分にすすいでください。
- 受精卵を20〜25mLのE3培地を含む9cmのペトリ皿に移します。各皿に最大50個の胚を配置してください。
- 胚は28°Cで孵化し、さらに使用します。
注意:卵は常に湿った状態を保つことに注意してください。
- ゼブラフィッシュ胚の準備
- 約36 hpfで胚から絨毛細胞を手動で除去します。
- 超細かいジュエリーNo.5鉗子を2組使ってください。一対で、卵を安定させるためにコリオンをしっかりつまみます。2組目の鉗子を使って、1組目の近くの絨毛膜を掴みます。
- 鉗子を反対方向に優しく引っ張って小さな裂け目を作ります。胚が滑り出すまで慎重に開口部を広げます。
- 確立されたゼブラフィッシュプロトコルに従い、脱絨毛虫を新たに調製したトリカイン溶液で麻酔します。
注意:絨毛膜のない胚は脆く粘着性が高く、空気への曝露を避けなければなりません。ゼブラフィッシュ<3 dpfを扱う際は、ガラスピペットとアガロースコーティングされたペトリ皿を使いましょう。
- 約36 hpfで胚から絨毛細胞を手動で除去します。
- マイクロインジェクション針を準備する
- メーカーのガイドラインに従ってパラメータを設定したプラーを使ってフィラメントフリーのガラス毛細管を抜きます。
- 細かい鉗子を使って、針先を2段階で折ります。まず、針の細い先端を小さく折ります。そして、細胞が詰まったまさにその場所で2回目の破壊を行います。これにより、細胞が通過するのにちょうど良い大きさでありながら、できるだけ小さく保たれる最適な開口部が生まれます。
- 長いマイクロラダー(ガラスの微細血管を満たすための先端)を使って、細胞懸浮液を針に詰め直します。気泡の発生は避けてください。
- 懸濁液には可能な限り高いセル密度(最大濃度)を用いてください。特定のセル量はインジェクターの設定で制御されます。
- 針に小さなアリコットを頻繁に装填し、針内のサスペンションコラムの高さを最大2mmに制限します。これにより針内の細胞沈着を最小限に抑え、より均一な分布と注射時の一貫した投与が保証されます。
- 装填された針をマイクロインジェクション装置のホルダーに取り付けます。
- 注射圧力とパルス持続時間を調整し、1回の注入で希望する細胞数を供給します(注射時点のゼブラフィッシュ胚の目のサイズを超えてはなりません)。
注:ゼブラフィッシュ異種移植のマイクロインジェクション方法の詳細な例は、他の著者によって以前に記述されています。
- マイクロインジェクション手順
- 実験設計に従って細胞懸濁液を卵黄嚢または循環内に注入します。
- 解析された注射条件下で1胚あたり1000個以上の細胞を送達します。
注意:リン酸緩衝生理食塩水(PBS)注入胚を陰性対照群として含めてください。
- インジェクション後の取り扱い
- 注入した胚や幼虫は28〜32°Cに保ちます
- 解剖用スコープで幼虫の生存率と発生進行を毎日監視してください。
- 選択した実験時点における腫瘍細胞の増殖と移動を評価します。
- 3.1節に記載された電子常磁性共鳴(EPR)測定を行うか、2.7節で説明されたサンプルを保存してください
注意:注射による外傷や不適切な注射を受けた幼虫は処分してください。すべての機関のバイオセーフティおよび動物ケアガイドラインを遵守してください。トリケインおよび生物廃棄物は安全プロトコルに従って取り扱いましょう。有害物質は規則に従って処分してください。
- 凍結のためのサンプル採取
- 幼虫は冷えたトリカイン溶液に少なくとも3分間浸して安楽死させます。
- 10匹の幼虫群を1.5 mLのマイクロ遠心分離機チューブに移す。各チューブから余分な培地を取り除きます。
- 電子常磁性共鳴解析まで、サンプルは-20°Cで保管されます。
3. 電子常磁共鳴分光によるメラニンラジカル検出
- シブ内ゼブラフィッシュ幼虫におけるメラニンラジカル検出
- Xバンド電子常磁共振分光器を起動し、メーカーの指示に従ってシステムを安定させてください。
- 20〜30匹のゼブラフィッシュ幼虫(受精後3〜5日、DPF)を1.5mLのマイクロ遠心分離管に移します。
- ゼブラフィッシュ幼虫用の平らな毛細血管に100μLのE3培地を充填します。
- 毛細管の一端をプラスチックキャップで密封し、液体カラムが平らなチャンバー内に閉じ込められるようにしてください。
- 数体の幼虫と少量のE3培地を100μLのヘマトクリット毛細血管に移します。
- ヘマトクリット毛細血管から幼虫を平らな部分の上部に優しく産み出します。
注意:解の連続性を保つことに注意してください。平らな部分やその上部付近に気泡が存在してはいけません。 - 毛細管の外側の管状部分から余分な液体を除去しつつ、平らなチャンバー内で液体との接触を連続的に保ちます。
- ステップ3.1.5–3.1.7を繰り返し、20〜30匹の幼虫が平らな毛細血管に投入されます。
- 毛細血管の管状部分から残留液体を取り除きます。
- キャピラリーを電子常磁共鳴分光器に挿入し、試料を共振器の中心に位置させます。
- 分光器ソフトウェアで取得パラメータを次のように設定します:中心視野=335 mT;掃走幅=10 mT;変調振幅=500μT;マイクロ波出力=1.6 mW;スキャン回数=32;掃光時間=11秒;時間定数=0。
- 電子常磁共鳴スペクトルを取得。
- 共振器から毛細血管を除去し、幼虫を新しいE3培地にペトリ皿に入れて放出します。
注意:試料充填時に気泡を導入しないよう注意してください。液体カラム内の不連続は信号の再現性を低下させる可能性があります。多重調波検出ができない場合は、変調振幅を低減し、スペクトル歪みなく信号強度を最大化するよう取得パラメータを最適化します。
- 凍結ゼブラフィッシュ幼虫におけるメラニンラジカル検出
- 安楽死したゼブラフィッシュ幼虫10匹を含む冷凍サンプルを室温で5〜10分間解凍します。
- 解凍したサンプルに100μLのE3培地を加えます。
- 幼虫と培地を100μLのヘマトクリット毛細血管に移します。
- 毛細管から余分な液体を除去し、試料が活性共振体積(約1cm)だけを占めるまで続けます。
- 毛細管をシーリングコンパウンドで密封してください。
- キャピラリーを電子常磁共鳴分光器に挿入し、試料を共振器の中心に位置させます。
- 分光器ソフトウェアで取得パラメータを次のように設定します:中心視野=335 mT;掃走幅=10 mT;変調振幅=500μT;マイクロ波出力=1.6 mW;スキャン回数=32;掃光時間=11秒;時間定数=0。
- 電子パラマネグリゾナンススペクトルを取得し保存する。
注意:信号歪みを避けるために、試料の上端が共振器の上端より下に保つようにしてください。多重高調波検出ができない場合は、変調振幅を下げ、スペクトル歪みなく信号強度を最大化するためにマイクロ波出力を最適化します。
- 多調和解析ソフトから電子常磁共鳴データの抽出およびスペクトルの後処理
- マルチハーモニック解析ソフトウェアで記録された電子常磁性共鳴スペクトルを開きます。
- デュアルチャネル信号処理を有効にする には「2チャンネルを使います」を選択してください。
- 処理された倍音の数を30に設定してください。
- マイクロ波の位相/度パラメータを調整し、吸収成分と分散成分が対称的に得られるまで続けます。
- 変調位相/度パラメータを調整し、チャンネル1が純粋な吸収信号を示し、チャネル2が純粋な分散信号を示すまで調整します。
- 変調振幅/Gパラメータを調整し、最も狭く歪みのないスペクトル線が得られます。
- スペクトル線の形状を保ちつつ高周波ノイズを減らすために ローパス/Hz パラメータを設定してください。
- ノイズ抑制タブを選択し、「ノイズ抑制を有効にする」をクリックします。スムージング係数とナローラインの精細化パラメータを調整し、スペクトル線の可視的な歪みなしに信号対雑音比が改善されるまで調整します。
- アーティファクトタブを選択し、外れ値補正と帯域幅補正を有効にしてください。
- スペクトルはデータ解析ソフトウェアで使われる形式に保存し、さらなる分析に使います。
- 適切なデータ解析ソフトウェアで数値積分を用いて二重積分信号強度を計算します。
注:高Q共振器を扱う場合、帯域幅補正により高調波成分の再構成が向上します。多重調波再構築により、過変調した生データから歪みのないスペクトルを復元し、低強度の生物学的サンプルにおける信号対雑音比の向上に寄与します。
結果
実験ワークフローの概観は 図1に示されています。ゼブラフィッシュ胚は採取され、B16F10メラノーマ細胞で移植され、制御された条件下で培養され、Xバンド電子常磁共振解析の前に明視野顕微鏡または蛍光顕微鏡で監視されました。その後、生体胚は平らな毛細管/サンプルホルダーにロードされ、全生物の電子常磁共振測定を行い、メラニン関連ラジカル信号の非侵襲的検出が可能となりました。電子常磁性共鳴獲得後、胚は新鮮なE3培地に放出され、同じ生物標本で縦方向測定が可能となりました。
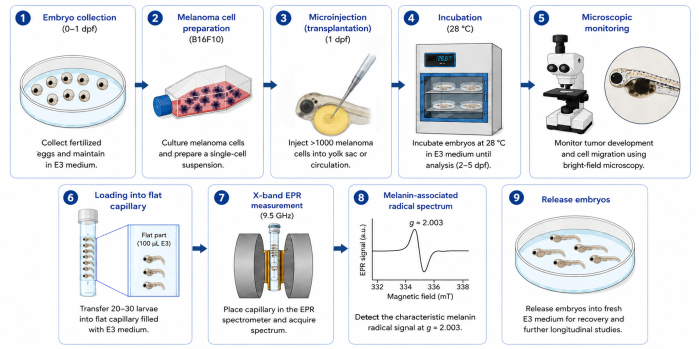
図1:Xバンド電子常磁共鳴(EPR)分光法を用いたゼブラフィッシュメラノーマ異種移植片におけるメラニン関連ラジカルの in vivo モニタリングの実験ワークフローの図解的概要。ゼブラフィッシュ胚は採取され、メラノーマ細胞と移植され、培養され、顕微鏡的にモニタリングされた後、カスタムフラット毛細血管に投入して全生物のEPR測定を行います。特徴的なメラニン関連ラジカルシグナル(g ≈ 2.003)を検出した後、幼虫は縦断的な追跡調査のために放出されます。 この図の拡大版はこちらをクリックしてご覧ください。
この方法の特異性を検証するために、野生型(WT)およびアルビノゼブラフィッシュ胚で測定が行われました。WT胚は約27 hpfで目に見える色素沈着を発達させ始めます。同様に、WT胚から取得された電子常磁性共鳴スペクトルは、g≈ 2.003を中心とした特徴的な単線信号を示し、ユーラニン由来のセミキノンラジカル(例:DHI/DHICA)と一致します。対照的に、機能的なメラニン合成を持たないアルビノ胚は、受精後5日(dpf)でも同じスペクトル領域で検出可能な電子常磁性共鳴信号を検出できません。これにより、観察されるシグナルがメラニンラジカルから特異的に由来し、選択性を検証するネガティブコントロールを示すことが確認されます(図2)。
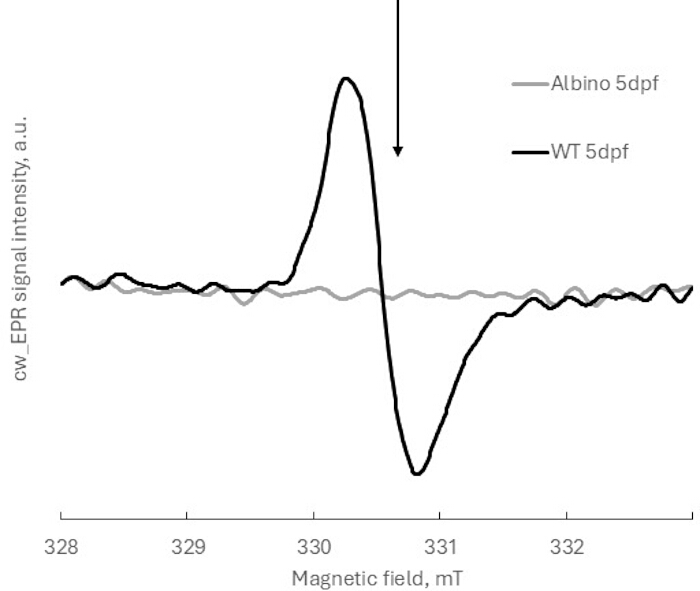
図2:野生型(WT)およびアルビノゼブラフィッシュ胚の代表的なXバンド電子常磁共鳴スペクトル(5dpf)。矢印は5dpf WTゼブラフィッシュ胚からのメラニン関連ラジカル信号の共鳴位置(g ≈ 2.003)を示しています。 この図の拡大版はこちらをクリックしてご覧ください。
この手法により、発生中のメラニンラジカル形成の定量的モニタリングが可能になります。色素沈着が進むにつれて、電子常磁性共鳴信号の強度が明確に増加することが観察されます。2 dpfから5 dpfのWT胚の比較では、胚ごと正規化された二重統合電子常磁性共鳴信号が大幅に増加していることが示されました。正規化は、二重積分を計算する前に、生の電子常磁性共鳴信号強度を試料中の胚数で割ることで行われました(図3A)。
統計解析はKruskal–Wallis検定を用いて行われ、その後Dunnの多重比較検定が行われました。6つの独立した生物学的複製(それぞれ7〜10個の胚)を解析した結果、発生段階間で正規化された電子常磁性共鳴信号に統計的に有意な差(p < 0.05)が示され、この方法の感度が確認されました。
電子常磁性共鳴スペクトルの二重積分は、未対電子スピンの数に比例します。したがって、その増加は発生過程でメラニン関連ラジカルの個体数が増加していることを示しています。重要なのは、この増加は色素蓄積単独によるものではなく、進行的なメラノ形成に関連するメラニン酸化還元平衡の変化を反映している可能性が高いことです。
プロトコルの再現性は、同じ発生段階(5 dpf)で異なる胚数(7個対10個)を含むサンプルから取得された代表的な電子常磁性共鳴スペクトルを比較することでさらに評価されました。予想通り、生スペクトルはサンプルサイズに比例した信号振幅の違いを示しました(図3B)。各スペクトルをサンプルあたりの胚数に正規化した後、スペクトルはほぼ完全に重なり(図3C)、バッチ間変動は10%未満にとどまりました。これらの結果は、胚ごとの正規化の重要性を強調し、比較研究におけるこの手法の堅牢性を裏付けています。
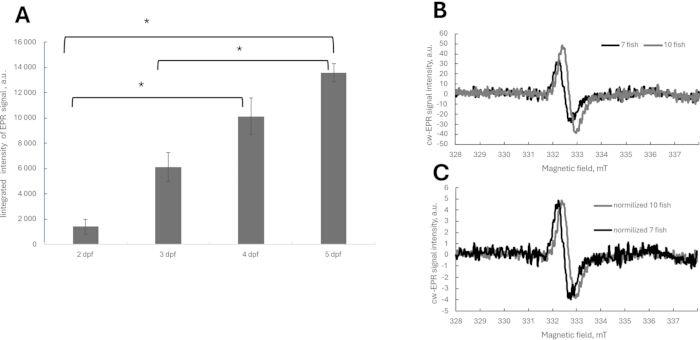
図3:発生中のメラニン関連ラジカルダイナミクスの定量的モニタリングおよび電子常磁性共鳴スペクトルの正規化。(A) 受精後2日、3日、4日、5日目に野生型(WT)ゼブラフィッシュ胚から得られる二重統合Xバンド電子常磁共鳴信号(dpf)。信号強度はサンプルあたりの胚数に正規化されました。データは6つの独立した生物学的複製体の平均標準±度差を表しており、それぞれ7〜10個の胚から成ります。統計的に有意な差 - *p < 0.05。(B) 7個および10個の胚を含むサンプルを用いて、5 dpf WT胚から取得した代表的な生電子常磁共鳴スペクトル。信号振幅はサンプル中の胚の数に比例して増加します。(C)正規化後のパネルBに示される電子常磁性共鳴スペクトル、すなわち生スペクトル強度を毛細管内の胚数で割ったもの。 この図の拡大版はこちらをクリックしてご覧ください。
プロトコルがin vivo ゼブラフィッシュ測定に用いられるカスタムフラット毛細血管に依存しているかどうかを評価するため、カスタムフラット毛細血管と市販の標準毛細血管の両方を用いてメラニン関連ラジカル検出を行い、生 体 外分析を行いました。両方のサンプルホルダーを用いて取得した代表的な電子常磁性共鳴スペクトルは、線形と共鳴位置が非常に一致していることを示し(図4A)、メラニン関連ラジカルの信頼性の高い検出がカスタムキャピラリー設計に限定されないことを示しています。胚ごとの正規化後のフラット毛細血管からの信号は、標準毛細血管から再計算された信号の2倍低かった。
サンプル取り扱いの柔軟性をさらに評価するため、ゼブラフィッシュ胚は採取直後および凍結直後に測定し、その後標準毛細血管を用いた 生体外 分析を行いました。6つの独立した生物学的複製において、新鮮と凍結サンプル間で統計的に有意な差は認められませんでした(図4B)。これらの結果は、プロトコルが一般的に入手可能な電子常磁共鳴サンプルホルダーに適応でき、遅延エクスビブ分析をサポートできることを示し、異なる電子常磁共鳴分光計を持つ実験室間でこの手法のアクセス性、柔軟性、再現性を大幅に向上させています。
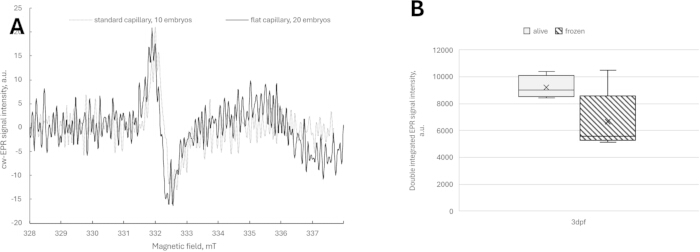
図4:プロトコルの互換性。(A) 2dpf WTゼブラフィッシュの標準毛細管および平坦毛細管で測定した生電子常磁共鳴スペクトル。(B) 同じ生物学的複製(3 dpf WT ゼブラフィッシュ)を標準毛細血管内で生きて凍結したものの比較。 この図の拡大版はこちらをクリックしてご覧ください。
検出された電子常磁性共鳴信号がメラノーマ由来のメラニンラジカルに直接起因するかどうかを明らかにするため、アルビノゼブラフィッシュ胚をメラニンフリーの背景として用い、B16F10メラノーマ細胞を注入しました。電子常磁性共鳴測定は、受精後4日(dpf)に、野生型胚で用いられる同じ取得条件下で実施されました。予想通り、注射されていないアルビノ胚はメラニン特異スペクトル領域で検出可能な電子常磁共鳴信号を検出しませんでした。重要なのは、B16F10細胞を注入したアルビノ胚では検出可能なメラニン関連電子常磁共鳴信号が検出されなかったことです(図5A)。これは明るい顕微鏡で細胞移植が確認されたにもかかわらず(図5B)、
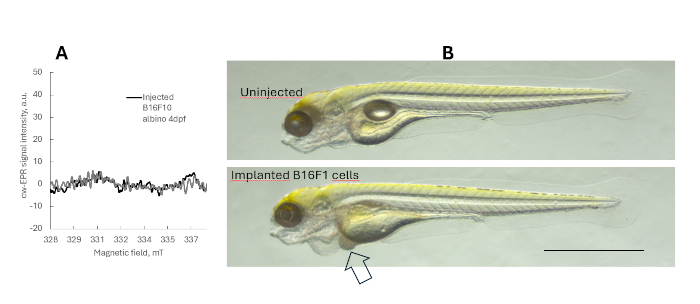
図5:アルビノゼブラフィッシュB16F10異種移植片におけるメラノーマ由来メラニン関連ラジカル検出の直接評価。(A) Xバンド電子常磁共鳴分光計で測定された4dfアルビノおよびアルビノB16F10異種移植片におけるメラニン関連電子常磁共鳴信号。それぞれ10個の胚の生物学的複製を3回使用しました。(B) がん細胞着床から3日後の4 dpf albinoおよびB16F10を用いたアルビノ異種移植片の明視野画像。この図の拡大版はこちらをクリックしてご覧ください。
これらの結果は、現在の実験条件下で注入されたメラノーマ細胞の数がXバンド電子常磁性共鳴の直接検出閾値を下回っていることを示しています。したがって、全生物測定で検出されるメラニン関連シグナルは、ゼブラフィッシュ胚/幼虫のメラニン酸化還元状態の全体的な変化を反映しており、異種移植片のみに由来するメラノーマ特異的シグナルではありません。
異種移植片実験では、メラノーマ細胞の移植および増殖の効率は注入部位に大きく依存していました。循環(血流)への注射により腫瘍の発生がより安定し、メラノーマ細胞に関連する信頼性の高い電子常磁共鳴シグナル検出が可能となりました。一方、卵黄嚢への注射は胚の発育が障害され腫瘍の成長が悪化し、信号が弱くなったり不安定になったりしました。したがって、強固で解釈可能な結果を得るためには、血流注射が推奨されます(図6)。
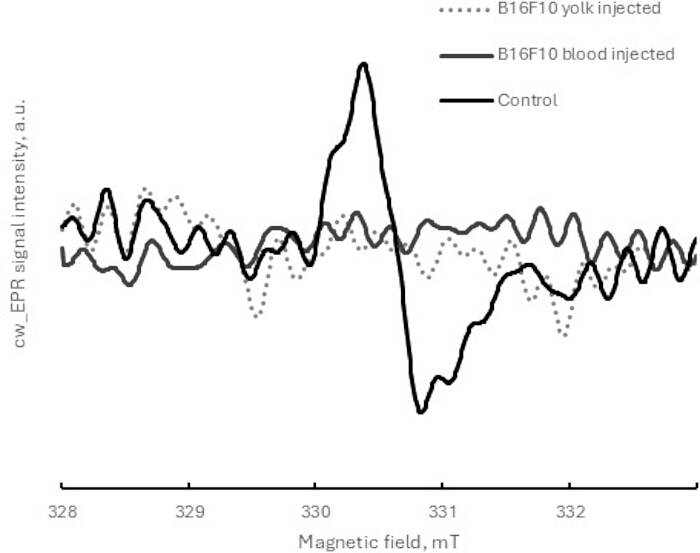
図6:Xバンド電子常磁共鳴で測定された2dpfゼブラフィッシュ胚および異種移植片の発生に対するメラノーマ細胞注入部位の影響。B16F10メラノーマ細胞を卵黄嚢または循環に注入したゼブラフィッシュ胚の代表的な電子常磁共振スペクトル。 この図の拡大版はこちらをクリックしてご覧ください。
この手法のメラノーマモデルへの適用性をさらに示すため、野生型(WT)ゼブラフィッシュ胚とB16F10メラノーマ細胞を注入したWT胚から得られる電子常磁気共鳴信号を異なる発生時点で比較しました。
WT胚では、電子常磁性共鳴信号が時間とともに徐々に増加し、発生過程でのユーメラニンの自然蓄積を反映しています。対照的に、B16F10異種移植片を持つ胚は信号動態が変化し、対応する時間点でWTと比較して電子常磁共鳴信号が修正されました(図7)。これらの違いは、メラノーマ由来のメラニンラジカル単独の直接検出ではなく、腫瘍誘発による宿主メラノ形成および全身性酸化還元状態の調節を反映している可能性が高いです。B16F10細胞は主にユーメラニンを生成するため、フェオメラニンシグナルは検出されませんでした。
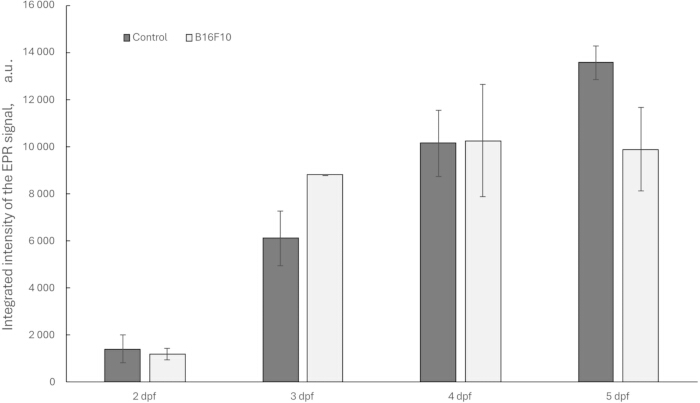
図7:対照ジェブラフィッシュ胚における全生物EPRシグナルダイナミクスの代表的な比較。受精後2日、3日、4日、5日目の胚に対して、対照野生型ゼブラフィッシュおよびWT B16F10異種移植片から得られた二重統合Xバンド電子常磁気共鳴信号(dpf)。信号強度はサンプルあたりの胚数に正規化されました。データは、6つの独立した生物学的複製(対照用)および3つのB16F10異種移植片の平均標準±SDを表しており、それぞれ7〜10個の胚から成ります。 この図の拡大版はこちらをクリックしてご覧ください。
全体として、このプロトコルの成功した実装は以下の通りです:(i) 色素付き胚でg ≈ 2で明確な単線電子常磁共鳴信号の検出、(ii) アルビノ対照群での信号の欠如、(iii) 発生段階での信号強度の増加、(iv) 正規化後の生物学的複製体間の再現性。
ディスカッション
本研究は、Xバンド電子常磁共鳴分光法を用いてゼブラフィッシュ胚におけるメラニン関連ラジカルの in vivo 検出のための堅牢かつ高感度なプロトコルを提示します。この手法により、生理的メラノ形成、メラノーマ異種移植の発生、薬理学的介入におけるメラニン関連の酸化還元変化を非侵襲的かつラベルフリーでモニタリングすることが可能になります。Xバンド電子常磁共鳴分光法の高い感度とゼブラフィッシュ異種移植プラットフォームを組み合わせることで、現在のゼブラフィッシュメラノーマモデルの解析能力を従来の形態学的イメージングを超え、酸化還元活性メラニン種の直接的な生化学的特徴付けへと拡張します。主に構造的・空間的情報を提供する蛍光ベースのイメージングとは異なり、電子常磁性共鳴分光法は安定常磁性セミキノンラジカルを直接検出し、メラニンのレドックス生物学に対する補完的な機能的洞察を提供します。
このワークフローは色素沈着やメラノーマの研究に広く応用可能です。潜在的な応用例としては、抗メラノーマ療法の評価、薬物誘発による酸化還元バランスの変化の調査、色素脱色剤や紫外線応答剤などのメラノ生成調節化合物の評価、腫瘍と宿主の生 体相互作用の分析などがあります。さらに、蛍光イメージングやその他の表現型アッセイとの統合により、空間的、形態的、生化学的情報を組み合わせたマルチモーダルプラットフォームが提供され、前臨床研究や治療開発におけるゼブラフィッシュモデルの予測価値が高まる可能性があります。
信頼できる結果を得るためには、いくつかの実験パラメータが重要です。異種移植実験では、循環への注入が卵黄嚢注入よりも一貫した着床性と再現可能な電子常磁共鳴測定を提供し、これは以前の研究と一致しています29,30。培養温度の選択が重要な役割を果たします。ゼブラフィッシュの異種移植片は通常、哺乳類細胞動態を促進するために32°Cで維持されますが、本研究で用いられたマウスB16F10メラノーマ系統は、28°Cで強力な増殖および移動能力を示すほど攻撃的であるようです。 32°Cの環境ではゼブラフィッシュの発生が大幅に加速し、受精後5日目までに独立した摂食行動が起こる可能性があるため、幼虫を28°Cに保つことで、生物は保護されていない発生段階にとどまることができます。したがって、この温度選択により、腫瘍の進行と転移を観察しつつ、幼虫が自立して摂食段階に達した後も保護する動物福祉規制を遵守できる可能性があります。もう一つの重要な点は、胚数への正確な正規化と一貫した発生段階が生物学的変動を最小限に抑えるために不可欠であるということです。弱いまたは不均一な信号は、色素沈着不足、腫瘍負荷の低さ、共鳴体内のサンプル配置が最適でないこと、または毛細血管充填の不完全なことによって引き起こされることがあります。このような場合、サンプルあたりの胚数を増やし、移植効率を最適化し、サンプルの位置を活性共振体内で検証することで、信号検出が向上します。水性生物サンプルにおける全生物測定に伴う誘電損失や充填係数の低下により、平坦毛細血管内でのin vivo測定にはより多くの胚が必要です。それでもこの方法は、通常の毛細血管を生体外で使用することも可能です。これらの発見は、プロトコルが一般的に利用可能なXバンド電子常磁共鳴分光法構成と互換性があり、遅延生前分析をサポートし、異なる機器を用いた実験室間でのアクセス性と再現性を高めていることを示しています。
利点がある一方で、この方法にはいくつかの制限があります。重要な生物学的考慮点として、検出された電子常磁性共鳴信号は、メラニンポリマーの酸化還元活性成分を反映しており、単なる色素含有量だけを反映している点です。15,21,33。したがって、電子常磁性共鳴信号強度の変化は、メラニン存在量の直接的な代替ではなく、メラニン関連のレドックス平衡の変化として解釈されるべきです。さらに、アルビノ異種移植片実験は、現在の実験条件下で注入されたメラノーマ細胞の数がXバンド電子常磁共鳴分光法の直接検出閾値を下回っていることを示しました。したがって、異種移植片保有幼虫で検出される全生物シグナルは、異種移植片のみから発生するメラノーマ特異的シグナルではなく、腫瘍と宿主の相互作用によって誘発される宿主メラニン関連の酸化還元状態の全体的な変化を主に反映しています。重要なのは、ゼブラフィッシュのマイクロ環境が動的な酸素勾配、代謝相互作用、酸化ストレス条件を導入し、さらに生体内でメラニンラジカル集団を調節する可能性があることです19,20。異種移植の応用では、信頼性の高いシグナル検出には十分なメラニン濃度が必要なため、現在は高度に色素の多いメラノーマモデルに限定されています。アメラノス性や弱色素腫瘍は検出可能な信号を生じない場合があります27。さらに、本研究で使用されたメラノーマ細胞株(B16F10)は主にユーメラニンを産生し、単一の電子常磁性共鳴線を形成します。フェオメラニン寄与が顕著なモデルでは、スペクトルの重なりが生じることがあります。そのような場合、ユーメラニン信号とフェオメラニン信号を区別するために高度なスペクトルシミュレーションとデコンボリューションが必要となります。
それにもかかわらず、提示されたワークフローはメラノーマ生物学、薬物誘導によるメラノ形成の調節、酸化ストレス、腫瘍と宿主の相互作用を生 体内で研究する広範な可能性を提供します。電子常磁共鳴分光法と蛍光イメージング、遺伝子レポーター、その他の表現型アッセイの統合は、前臨床メラノーマ研究および治療開発におけるゼブラフィッシュモデルの予測価値をさらに高める可能性があります。
開示事項
著者のミコワイ・バラノフスキは、本研究で使用される分光計(多調波解析器)の部品を製造しているノヴィレット社に勤務しています。残りの著者たちは競合する利害関係を主張しません。
謝辞
「 Danio rerio 胚モデルにおけるメラノーマ治療薬の前臨床研究に用いられる新しい毛細血管およびメラニンラジカルを決定する方法」プロジェクトは、欧州連合が欧州スマート経済基金2021–2027(FENG)のもと、欧州連合の共同資金提供を受けたポーランド科学財団のFENG POCプログラム内で実施されました。この研究は欧州連合のスマートグロースオペレーションプログラム(プロジェクト番号POIR.01.02.00-00-0077/18)の支援を受けました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1.5 mL or 0.5 mL eppendorf tubes | エッペンドルフ | 0030120086, 0030121023 | ゼブラフィッシュの幼生を毛細管に移すため |
| 3 mL 使い捨てパスツールピペット | Medlab Products | 76-1303-2 | 胚や幼生を分類し移すため |
| ベンチトップXバンドEPR分光光度計 MiniScope MS200 | Magnettech | Bruker.com | EPRスペクトルの登録 |
| 塩化カルシウム、二水和物 | Chempur | 363-118748706 | E3培地を調製するため |
| 細胞数計測用スライド(EVEまたはEVE PLUSなど) | Nanoentek Inc | NC2200445 | 細胞カウンター用 |
| CellTracker Green | Thermo Fisher | C2925 | 細胞ラベリング用蛍光細胞トラッカー染色 |
| CM-DiI | Thermo Fisher | C7000 | 細胞ラベリング用蛍光細胞トラッカー染色 |
| CO2インキュベーター ICO240med | Memmert | N/A | 細胞の維持用、37°C、5% CO2、湿度>95%に設定 |
| Countess II自動細胞カウンター | Invitrogen | AMQAX1000 | 細胞数と細胞密度を計測するため |
| 凍結保存ボックス CryoKING | Biologix | BGX-ID81 | キセノグラフトを持つゼブラフィッシュの保存用 |
| 凍結保存培地 CM-1 | Cytion | #800150 | がん細胞を凍結するため |
| Dulbecco's Modified Eagle Medium (DMEM)、高グルコース、グルタミン、無ナトリウムピルビン酸 | Gibco | #11965-092 | 細胞培養維持用 |
| E3培地 | 社内 | N/A | ゼブラフィッシュの胚/幼生を保持するため、Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449 に従って調製 |
| 卵用インキュベーター | Incubato | 10130024 | ゼブラフィッシュの胚/幼生のインキュベーション用、28–32°Cに設定 |
| eSpect+ソフトウェア | Novilet | https://novilet.eu/products/espect/ | マルチハーモニクス分析器用 |
| 胎児ウシ血清(FBS) | Gibco | A5256701 | DMEM用サプリメント |
| 細い鉗子、セラミックコーティング、Dumont #5、11 cm | Dumont SA | 11252-50 | ゼブラフィッシュの胚のデコリオネーション用 |
| ゼブラフィッシュ用フラットガラスキャピラリー(適用番号:21 736) | N/A | N/A | ゼブラフィッシュの胚のEPR測定用 |
| ガラス製キャピラリー針 | Harvard Apparatus | GB100-10 | フィラメントなし、マイクロインジェクション用 |
| ヘマトクリットキャピラリー (BRANDの使い捨てBLAUBRANDMマイクロピペット)、50および100 μLの容量 | BRAND | 41121500 | EPR測定用、またはゼブラフィッシュの幼生をフラットキャピラリーに移動するため |
| 塩化マグネシウム、六水和物 | Chempur | 363-116120500 | E3培地を調製するため |
| マイクロマニピュレーターFemtoJet付きマイクロインジェクションシステム | Eppendorf | EPE5252000021 | マイクロニードルに細胞をロードするため |
| 針用マイクロローダーチップ | Eppendorf | #5242956003 | マイクロインジェクションシステム用 |
| マウスメラノーマ細胞株B16-F1 | Cytion | CLS-400122 | キセノグラフト用 |
| マウスメラノーマ細胞株B16-F10 | Cytion | 305157 | キセノグラフト用 |
| マルチハーモニクス分析器eSpect+ | Novilet | https://novilet.eu/products/espect/ | EPR分光光度計用、感度を高めるため |
| ペニシリン-ストレプトマイシン溶液 | Sigma | P0781-50ml | DMEM用オプションサプリメント、細胞培養用 |
| ペトリ皿、55 mm | Medlab Products | 51-0056-0A-NX | ゼブラフィッシュの卵、胚、幼生のインキュベーション用 |
| リン酸緩衝生理食塩水(PBS)、カルシウムおよびマグネシウムフリー | Sigma | D8537-500ml | 細胞のすすぎ用 |
| 塩化カリウム | Chempur | 363-117397402 | E3培地を調製するため |
| ヘマトクリットキャピラリー用シーリングキット - Critoseal | Noxygen | NOX-A.3-VPC | ゼブラフィッシュの胚のEPR測定用 |
| 塩化ナトリウム | Chempur | 363-117941206 | E3培地を調製するため |
| 液体窒素用静止保管コンテナ | Biobase | YDS-47-127-FS | 細胞培養のバンキング用 |
| ステレオ顕微鏡 | Optatech | SKシリーズ | ゼブラフィッシュの胚の発育評価用 |
| 滅菌15 mLのファルコンチューブ | SPL Life Sciences | S50015 | 細胞の収穫(遠心分離)用 |
| 滅菌90 nmのペトリ皿 | Googlab Scientific | GP508 | 細胞培養用 |
| 滅菌クライオバイアル:CryoPure Tube 1.0 mL | Sarstedt | 72.377 | 細胞の凍結用 |
| 組織培養用滅菌パスツールピペット(Corning Falcon血清ピペット)、5、10、25 mLの容量 | Corning | 357543, 356551, 356535 | 細胞培養用 |
| トリカイン(MS-222) | Sigma | 886-86-2 | 新鮮に調製した4 g/L溶液、ゼブラフィッシュの麻酔と安楽死用 |
| TrypLE Express(1×)またはトリプシン-EDTA(0.05%) | Gibco | #12605-010 | パス |
参考文献
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
再版と許可
この記事は公開されました
動画は近日公開