糖尿病性腎症(DN)にはミトコンドリア機能不全が関与しています。トランスクリプトーム解析、ネットワーク薬理学、および機械学習を用いることで、Ligustri Lucidi Fructus(光葉 Privet 果実)のミトコンドリア関連バイオマーカー候補として、CAT、FABP1、MAOA、およびMAOBを同定しました。db/dbマウスにおいて、LLFはCATおよびMAOAの発現を上昇させ、さらなるメカニズム研究を支持する結果となりました。
この記事について
サマリー
要約
ミトコンドリア機能不全およびミトコンドリア内での過剰な酸化ストレスは、糖尿病性腎症(DN)における腎尿細管傷害を促進する主要な病理学的要因である。 光葉PRIVET果実(こうようプリベットかじつ) (LLF)は伝統的に糖尿病性腎症(DN)の治療に用いられているが、その関与するメカニズム、特にミトコンドリア関連遺伝子および経路に関連するものは、依然として十分に解明されていない。本研究では、GSE142025データセットの発現変動解析を用いて、DNに関連する発現変動遺伝子(DEG)を同定した。4つの機械学習モデルの出力を相互参照することにより、特徴遺伝子を選出した。両方のデータセットにおいて有意な発現変動と一貫した発現パターンを示した遺伝子について、さらに受信者動作特性(ROC)曲線解析による評価を行った。曲線下面積(AUC)が > 両方のデータセットにおいて0.7以上のものを候補バイオマーカーと定義した。機能エンリッチメント解析、免疫浸潤解析、ネットワーク構築、および分子ドッキング解析を実施した。糖尿病性腎症(DN)マウスモデルを用い、血糖値、尿中微量アルブミン、組織病理学、および候補バイオマーカーのRT-qPCRによる発現解析を行い評価した。 コンピュータ断層撮影(CAT) および MAOA 有意に上昇していた in vivo候補バイオマーカーは、リボソーム機能、バリン・ロイシン・イソロイシンの分解、サイトカイン・サイトカイン受容体相互作用、およびペルオキシソームに関連する経路に濃縮されていた。これらのバイオマーカーは、CD8+ T細胞および活性化マスト細胞と負の相関を示し、活性化NK細胞およびナイーブB細胞と正の相関を示した。タキシフォリン、β-シトステロール、およびエリオディクティオールは、候補バイオマーカーに対して-5 kcal/mol未満の結合エネルギーを示した。CATおよびMAOAは、さらなるメカニズム解析を行う価値のある有望な候補である。
概要
糖尿病性腎症(DN)は、世界的に末期腎不全の主要な原因となっており、糖尿病の最も一般的な合併症の一つです。病理学的には、糸球体および尿細管の両コンパートメントにおける過剰な細胞外マトリックスの蓄積に加え、腎内血管の肥厚と硬化を特徴とします2。DNは一般的に蛋白尿および高血圧を伴います3。その発症は、長期にわたる高血糖に起因する血管内皮細胞の損傷、炎症反応の増悪、および酸化ストレスの増大と密接に関連しています4。DNの発症率は世界的に上昇しており、特に中高年の糖尿病患者において顕著です。疾患が進行すると、末期腎不全や心血管合併症に至る可能性があり、患者の生活の質(QOL)および予後を著しく悪化させます5。DNの診断および治療アプローチは進歩しているものの、診断のための早期かつ正確な候補バイオマーカーは見つかっておらず、病理学的プロセスを逆転させる効果的な治療戦略も依然として不足しています。したがって、新規の標的抗DN薬の開発が急務となっています。
ミトコンドリアは、細胞のバイオエナジェティクス、代謝前駆体の合成、カルシウム恒常性、活性酸素種(ROS)の産生、免疫シグナリング、およびアポトーシスにおいて極めて重要であり、これらすべてが細胞および個体の安定性を維持するために不可欠です6。細胞のエネルギー工場として、ミトコンドリアは解糖系、トリカルボン酸サイクル、および酸化リン酸化などの基本的なプロセスにおいて中枢的な役割を担っています7。肥満はクレブスサイクルとミトコンドリア呼吸鎖を乱し、ミトコンドリア機能不全とROS産生の増加を引き起こします。ミトコンドリア呼吸鎖におけるROSレベルの上昇は酸化ストレスを誘発し、これが肥満に関連する炎症反応を悪化させ、アポトーシスを促進します8。近年の研究では、エネルギー代謝の乱れ、過剰なROS生成、およびアポトーシスシグナリングの亢進など、糖尿病性腎症(DN)の発症および進行におけるミトコンドリア機能不全の重要な役割が強調されています9。慢性的 なミトコンドリア機能不全は、腎疾患の進行を加速させます10。したがって、ミトコンドリア機能を改善することは、DNに対する重要な保護戦略となる可能性があります。
Ligustri Lucidi Fructus (LLF) は、肝臓と腎臓を滋養し、髪を黒くし、視力を改善する効果があることで知られる Luteaceae 科の乾燥熟果である。LLFから抽出された天然のヘテロ多糖類が同定されており、腎線維化を抑制する可能性が明らかになっている11。近年、糖尿病性腎症(DN)の治療におけるLLFの利用が注目されており、顕著な腎保護効果が実証されている1,12,13。さらに、LLFとミトコンドリアの複雑な関係についても広く研究され、検証されてきた。特筆すべき点として、LLFがAMPKシグナル伝達経路を活性化することでミトコンドリア機能を調節し、有益な効果を発揮することが研究で示されている14。このメカニズムは、酸化ストレスによって引き起こされる損傷からミトコンドリアを効果的に保護する。これらの知見は、細胞のエネルギー代謝の維持および酸化ストレスに対する細胞の回復力の向上におけるLLFの重要な役割をさらに強調するものである。しかしながら、特にミトコンドリア機能の回復に関する詳細な治療メカニズムについては、まだ十分に解明されていない。
本研究の目的は、糖尿病性腎症(DN)におけるミトコンドリア機能に対するLLFの治療効果の根底にある生物学的メカニズムを解明することでした。バイオインフォマティクスツールを用いて公共データベースを検索し、トランスクリプトームデータと有効成分情報を統合することで、LLFの腎保護作用に関連する候補バイオマーカーを特定しました。免疫浸潤、臨床的特徴との関連性、m6A RNA修飾、機能エンリッチメント、制御ネットワークの構築、および分子ドッキングを含むさらなる解析により、これらの候補バイオマーカーがDN治療中のミトコンドリア機能調節において極めて重要な役割を果たすことが示唆されました。In vivo検証により、それらの重要性がさらに確認されました。この包括的な解析は、LLFがDNを治療するメカニズムへの理解を深め、ミトコンドリア機能不全に基づく新しい治療標的の開発のための強固な基盤を提供します。
プロトコル
データ収集
DNに関連するGSE142025およびGSE96804データセットの遺伝子発現マトリックスと対応する臨床データを、Gene Expression Omnibus (GEO) データベース (https://www.ncbi.nlm.nih.gov/geo/) 15から取得した。トレーニングセット (GSE142025) には、DN患者27名とコントロール9名の腎組織サンプルが含まれており、GPL20301プラットフォームを用いてシーケンスされた。バリデーションセット (GSE96804) は、DN患者41名とコントロール20名のシーケンスデータで構成され、GPL17586プラットフォームを用いて処理された。両データセットとも腎組織に焦点を当てているが、GSE96804データセットでは特に腎臓の主要な濾過単位である糸球体を検討している (Figure 1)。GSE142025データセット(トレーニングセット)は全腎組織サンプルで構成され、DNのトランスクリプトーム景観の広範な概要を提供する。一方、GSE96804データセット(バリデーションセット)は、糸球体濾過障害の主要部位である糸球体組織に特化している。これら2つのデータセットは、プラットフォームと組織の違いにより直接統合しなかったため、バッチ効果補正は適用しなかった。代わりに、データセット間のバリデーションを独立して実施した。両データセットにおいて一貫した方向性の変化を示し、曲線下面積 (AUC) が0.7より大きい遺伝子を堅牢な候補として選出し、腎臓内の異なる区画における汎用性を裏付けた。
MitoCarta3.0データベース(https://www.broadinstitute.org/mitocarta)から、合計1,136個のミトコンドリア関連遺伝子(MRGs)を抽出した。LLFの有効成分は、経口バイオアベイラビリティ(OB)の閾値を≥30%、薬物類似性(DL)の閾値を≥0.18として、Traditional Chinese Medicine Systems Pharmacology(TCMSP)データベース(http://sm.nwsuaf.edu.cn/lsp/tcmsp.php)を用いて予測した。続いて、有効成分の潜在的なターゲット遺伝子をSwiss Target Predictionデータベース(http://www.swisstargetprediction.ch/)を用いて予測した。
発現変動解析
GSE142025(DN群 vs コントロール群)の差分的発現解析は、limmaパッケージ(v3.54.1)を用いて行い、有意性の基準を以下のように設定した。 P.adj < 0.05 および |log2FoldChange| > 0.516 ボルケーノプロットおよびヒートマップは、ggplot2 (v 3.3.6) および ComplexHeatmap (v 2.14.0) パッケージを用いて可視化した。17,18、それぞれ。 DEG、MRG、および活性成分の潜在的な標的遺伝子を共通抽出(インターセクション)し、重複した遺伝子を候補遺伝子と定義した。活性成分と候補遺伝子を結ぶネットワークは、Cytoscapeソフトウェア(v 3.9.0)を用いて構築した。19.
機能濃縮分析およびタンパク質相互作用(PPI)ネットワークの構築
候補遺伝子の生物学的機能および関連するシグナル伝達経路を探索するため、clusterProfilerパッケージ(v 4.6.2)を用いてGene Ontology(GO)およびKyoto Encyclopedia of Genes and Genomes(KEGG)の濃縮分析を行った(P.adjust < 0.05)。その後、候補遺伝子をSTRINGデータベース(https://cn.string-db.org/)に入力してPPI関係を抽出し(信頼度スコア ≥ 0.4)、Cytoscape(v 3.9.0)20を用いてPPIネットワークを構築した。
機械学習
GSE142025データセットに基づき、caretパッケージ(v6.0-93)を用いて、ランダムフォレスト(RF)、k近傍法(KNN)、部分的最小二乗法(PLS)、および放射基底関数カーネルを用いたサポートベクターマシン(SVM)の4つの機械学習アルゴリズムを実装した。前述の解析で同定された候補遺伝子を予測変数とし、疾患状態(DNまたはコントロール)をアウトカムとした。KNNモデルでは、trainControl関数を用いてtuneLength = 10で10分割交差検証を実施した。RFモデルは20本の決定木(ntree = 20)で適合させ、PLSおよびSVMモデルは元のcaretワークフローで実装された設定を用いて適合させた。
モデルの残差分布はDALEXパッケージ(v2.4.3)を用いて評価した。続いて、DALEXのvariable_importance関数を用い、損失関数に平方根平均二乗誤差(RMSE)を指定して、置換ベースの変数評価を行った。得られたdropout_lossは、該当する変数を置換した後に得られたRMSEを表している。21,22元の分析ワークフローでは、ドロップアウト損失を持つ変数が < 全モデルを通じて0.281が保持され、4つの全モデルに共通する遺伝子が、その後の検証のためのコンセンサス特徴遺伝子として定義された。
4つの機械学習モデルは、最終的な臨床分類器を構築するためではなく、主に特徴量の優先順位付けのために使用されました。それに伴い、探索データセットおよび検証データセットの両方において、ROC解析を用いて個々の遺伝子レベルで診断の識別能を評価しました。
候補バイオマーカーの同定
GSE142025およびGSE96804において、DNサンプルとコントロールサンプルの間の特徴遺伝子の発現差をWilcoxon検定を用いて評価した。有意な発現差(P < 0.05)があり、かつ2つのデータセット間で発現傾向が一致した遺伝子のみを、受信者動作特性(ROC)曲線分析に選択した。ROC曲線の作成および曲線下面積(AUC)の算出にはpROCパッケージ(v1.18.0)を使用し、両方のデータセットでAUC > 0.7を示した遺伝子を候補バイオマーカーとして分類した23。
遺伝子セット濃縮解析(GSEA)
候補バイオマーカーに関連する生物学的機能およびシグナル伝達経路をさらに探索するため、GSE142025データセットを用いてGSEAを実施した。まず、psychパッケージ(v2.2.9)を用いて、候補バイオマーカーとその他の全遺伝子とのスピアマン相関分析を行った。24相関係数を算出し、順位付け(高から低)を行った。リファレンス遺伝子セットには、Molecular Signatures Database(MSigDB, https://www.gsea-msigdb.org/gsea/msigdb/)のc2.cp.kegg.v2023.1.Hs.symbols.gmtを使用した。次に、clusterProfilerパッケージ(v4.6.2)を用いてGSEAを実施し、バックグラウンド遺伝子セットにおける順位付けされた遺伝子の濃縮度を評価した。多重検定補正を適用した。 〜経由で FDR法、および補正済み P-値(〜として表記される P(調整後)において、~の場合に有意であるとみなした。 < 0.05.
m6A修飾解析
候補バイオマーカーのRNAメチル化修飾を調査するため、SRAMPデータベース(http://www.cuilab.cn/sramp/)を利用して、候補バイオマーカー上のm6A修飾部位を予測し、その二次構造内の信頼性の高いポジションに注目した。次に、ENCORIデータベース(https://starbase.sysu.edu.cn/)を用いて、候補バイオマーカーと相互作用するm6A修飾タンパク質を同定し、|HepG2 (shRNA)| > 1 パラメータを使用して主要なタンパク質をスクリーニングした。その後、RPISeqデータベース(http://pridb.gdcb.iastate.edu/RPISeq/)を用いて、主要タンパク質と候補バイオマーカーとの相互作用の可能性を予測した。両者のRNA配列をプレーンテキスト形式でアップロードし、RFおよびSVM分類器の予測スコアを算出した。スコアが0.5を超えた場合に相互作用を有意とみなした25。SRAMP解析は、m6A部位予測の閾値を「High」に設定し、「Transcript」モードとデフォルトパラメータを用いて実施した。ENCORI解析では、「miRNA-mRNA」相互作用機能を用い、「HepG2 (shRNA)」パラメータ > 1 とした。RPISeq解析では、デフォルトパラメータのRF分類器を使用し、スコア > 0.5 を正の相互作用とした。これらは計算上の予測であり、腎組織におけるm6A修飾やRNA-タンパク質相互作用の実験的な証拠ではない。HepG2 shRNAの基準はENCORIの事前計算済みデータセットから導出されたものであり、腎臓特異的な調節を反映していない可能性がある。
免疫浸潤解析
GSE142025のコントロール群およびDNサンプルの両方について、CIBERSORTアルゴリズムを適用して2種類の免疫細胞の割合を推定し、ggplot2パッケージ(v3.3.6)26を用いて生成したヒートマップにより可視化した。CIBERSORTはLM2シグネチャーマトリックスを使用し、1,0回の置換を行い、分位正規化を無効にして(マイクロアレイデータで推奨される設定)実行した。CIBERSORTの p < 0.05 であったサンプルを以降の解析に保持した。CIBERSORTはバルクの腎組織発現から免疫細胞分画を推定するため、コンパートメント特異的な浸潤(例:糸球体 vs 尿細管間質)の分解能はなく、浸潤白血球と常在免疫細胞を区別することもできない。したがって、報告された相関は組織レベルのものであり、空間的解析手法による検証が必要である。有意に変動した免疫細胞と候補バイオマーカーとの間のSpearman相関分析は、psychパッケージを用いて実施した。
ネットワークの構築および分子ドッキング
候補バイオマーカーと相互作用するMicroRNA(miRNA)をmiRNetデータベース(https://www.mirnet.ca)を用いて予測した。続いて、同定されたmiRNAを標的とする長鎖非コードRNA(lncRNA)をTarBase(http://www.diana.pcbi.upenn.edu/tarbase)およびstarbase(http://starbase.sysu.edu.cn/)データベースを通じて予測した。両データベースに共通するlncRNAをネットワーク構築に選択した。その後、Cytoscapeソフトウェアを用いてlncRNA-miRNA-mRNA調節ネットワークを構築した。候補バイオマーカーを標的とする潜在的な有効成分を選択し、有効成分-バイオマーカーネットワークを構築した。さらに、有効成分、候補バイオマーカー、およびGSEAで同定されたパスウェイをCytoscapeに組み込み、有効成分-バイオマーカー-パスウェイネットワークを作成した。
潜在的な活性成分と候補バイオマーカーとの間の結合親和性を評価するために、分子ドッキング解析を実施した。バイオマーカータンパク質の3D構造は、Research Collaboratory for Structural Bioinformatics Protein Data Bank(RCSB PDB, https://www.rscb.org/pdb)からPDBファイル形式で取得した。潜在的な活性成分の2D構造は、PubChemデータベース(http://pubchem.ncbi.nlm.nih.gov)からSDF形式で取得した。分子ドッキングは、CB-Dockプラットフォーム(http://clab.labshare.cn/cb-dock/php/blinddock.php)を用いて行った。結合エネルギーが-5 kcal/mol未満である場合、強い結合親和性を示すと定義した27
Ligustri Lucidi Fructusの調製および同定
本研究において、Ligustri Lucidi Fructus (LLF) は Ligustrum lucidum W. T. Aiton (Oleaceae) の乾燥熟果を指す。植物材料は中国薬典に従って同定され、証拠標本(No. 20240506, 2024091, 2024103)が山西中医学大学に寄託された。
煎剤の調製には、適格なLLFスライス20 gを、室温の蒸留水1,00 mLに30分間浸漬させた。混合物を激しく沸騰させた後、60分間弱火で煮出した。ろ液を回収し、残った生薬を別の蒸留水1,0 mLでさらに60分間繰り返し煎じた。2回のろ液を合わせ、ろ過および遠心分離を行い、減圧濃縮して、最終ストック濃度を1 g of crude drug/mL(全量10 mL)とした。調製した煎剤は、短期間使用する場合は4 °Cで、長期保存する場合は−20 °Cで保存した。実験の信頼性と再現性を確保するため、LLFおよびその煎剤の品質は、中国薬典の規格に従って厳格に同定および検証した。
定性的な同定のために、薄層クロマトグラフィーを実施した。簡潔に述べると、調製した煎剤の適量を遠心分離し、その上澄み液をメタノールで抽出した。ろ過後、試料溶液とspecnuezhenide標準品溶液を同一のシリカゲルGプレート上にスポットした。展開、乾燥後、紫外線下で確認したところ、試料溶液のスポットは参照化合物と一致する色および位置を示し、LLFに特徴的な生物活性成分の存在が確認された。
定量的な品質管理のため、高速液体クロマトグラフィーによる検出を行った。分析は、移動相にメタノール–水を用い、C18カラムを使用して実施した。検出波長は24 nmに設定した。煎剤中のspecnuezhenideの含有量を標準曲線に基づいて決定した。その結果、調製した煎剤の化学組成は安定かつ均一であることが示され、動物介入実験全体を通じて一貫した薬物品質が確保された。
動物実験
SPFグレードの8〜9週齢の雄性db/dbマウス12匹と、同週齢のdb/mマウス6匹を、山西中医药大学のSPF動物施設にて飼育した。実験前に、動物を12時間明期/12時間暗期のサイクル条件下で7日間馴化させた。 自由摂取 食物および水への自由なアクセスを可能にした。本研究は、山西中医药大学倫理委員会の承認を得て実施された(承認番号:202DW167)。以下の症状を示す動物を >体重の20%減少、瀕死の状態、または食物や水へのアクセス不能が認められた場合は、予定されていた研究終了時点を待たず、人道的な観点から安楽死処置を行った。研究終了後、残りのすべてのマウスは、施設規定に従い、ペントバルビタールナトリウムの腹腔内投与およびそれに続く頚脱法によって安楽死させた。
馴化期間の後、db/dbマウスにおけるDNモデルの確立を、尾静脈血中の血糖値が16 mmol/L以上であること、および尿中微量アルブミン試験紙で陽性を示す微量アルブミン尿によって確認した。DNモデルの確立に成功した後、db/dbマウスをランダムに2群(各群n = 6)に分けた。すなわち、DNモデル群(DN)とLLF投与群(Treatment)である。さらに、db/mマウス(n = 6)を対照群(Control)として用いた。投与量は、糖尿病ラットにおけるLLFの先行薬力学研究に基づいて選択し、体表面積正規化を用いてヒト等価量に換算した28。Control群とDN群には蒸留水を投与し、投与群にはLLFを3.5 g/kgで8週間投与した。8週間の投与後、すべてのマウスを安楽死させ、その後の検査のために血清、尿、および腎組織を採取した。
血液および尿指標
血清グルコース値は、全自動血液生化学分析装置を用いて分析した。尿中微量アルブミン濃度は、キットの説明書(Supplemental File 1)に従って測定した。
マウス腎臓組織の病理学的観察
組織病理学的検査のために腎臓組織を処理した。4%パラホルムアルデヒドで固定後、組織を洗浄、脱水し、パラフィン包埋して切片を作成した。次いでヘマトキシリン・エオジン(HE)染色を行い、染色切片を光学顕微鏡下で観察して病理学的変化を評価した。
逆転写定量ポリメラーゼ連鎖反応(RT-qPCR)
マウス腎臓組織における候補バイオマーカーの発現を測定するために、RT-qPCRを用いた。メーカーの指示に従って全RNAを抽出し、その後、RNAの濃度と品質を評価した(表1)。抽出したRNAから、cDNA Synthesis Kitを用いてcDNAを合成した。増幅は、以下に記載するプライマーペアを用いて行った。 表1、~を用いて GAPDH をリファレンス遺伝子として使用した。相対的発現量は2^-ΔΔCt法を用いて算出した。−ΔΔCt値 方法13,26.
統計解析
すべての統計解析は、Rソフトウェア(バージョン4.2.2)および対応する実験手順に必要なソフトウェアを使用して実施した。特に断りのない限り、すべての統計検定は両側検定とし、P < 0.05で統計的に有意であるとみなした。トランスクリプトームの差分的発現解析は、limmaパッケージを用いて行った。補正後のP < 0.05かつlog2 fold changeの絶対値が0.5より大きい遺伝子を、差分的発現遺伝子として定義した。
独立したDNサンプルとコントロールサンプルの間での候補遺伝子の発現を比較するため、元の解析ワークフローで指定された箇所でノンパラメトリックなWilcoxon順位和検定を使用した。候補バイオマーカーと免疫細胞分画との相関は、Spearmanの順位相関係数を用いて評価した。
実験データは平均値 ± SDで示している。パラメトリック解析の前提条件を満たした場合、3つの独立した動物群間の比較には一元配置分散分析を用いた。事後比較では、分散が均一な場合は最小有意差検定を、分散が不均一な場合はDunnett's T3検定を用いた。ベースラインおよび8週目の薬力学的な測定値は個別に解析し、提示した。群と時間の相互作用に関する推論は行っていない。バイオインフォマティクスおよび機械学習解析に使用したRスクリプトとソースデータは、補完ファイル1に提供している。
結果
DNの治療におけるLLFのミトコンドリア関連の潜在的な候補バイオマーカーを体系的に調査するため、我々は4つのフェーズからなる分析ワークフローを設計した(Figure 1)。フェーズIでは、GSE142025データセット(トレーニングセット、全腎臓、n=36)およびGSE96804(検証セット、糸球体、n=61)からのトランスクリプトームデータと、MitoCarta 3.0データベースの1,136個のミトコンドリア関連遺伝子、およびTCMSPデータベースの9つの活性成分から予測された517個の標的を統合した。これら3つの遺伝子セットの重複を確認したところ、9つの候補遺伝子が得られた。フェーズIIでは、RMSE < 0.281を閾値として、4つの機械学習モデル(RF、KNN、PLS、およびSVM)を用いて特徴遺伝子の優先順位付けを行った。ROC解析(両データセットでAUC > 0.7)によるデータセット間検証により、CAT、FABP1、MAOB、およびMAOAの4つの候補バイオマーカーを同定した。フェーズIIIでは、GSEAを実行して濃縮されたKEGGパスウェイを同定し、CIBERSORTを用いた免疫浸潤解析、m6A修飾予測を行い、lncRNA-miRNA-mRNA、活性成分-バイオマーカー、および活性成分-バイオマーカー-パスウェイのネットワークを構築し、続いて分子ドッキングを行った。フェーズIVでは、DNのdb/dbマウスモデルにおいて、LLFの薬力学的効果および4つの候補バイオマーカーのmRNA発現の変化を評価した。
DNを治療するLLFの候補遺伝子のスクリーニング
GSE142025データセットにおいて、DN群と対照群の間で3,810個のDEGが同定され、そのうち1,904個が発現上昇し、1,906個が発現低下したDEGであった(Figure 2A,B)。TCMSPデータベースを用いて、LLFから13種類の活性成分が予測された。具体的には、beta-sitosterol、kaempferol、taxifolin、Lucidumoside D、Lucidumoside D_qt、(20S)-24-ene-3,20-diol-3-acetate、eriodictyol、syringaresinol diglucoside_qt、Lucidusculine、Olitoriside、Olitoriside_qt、luteolin、およびquercetinである(Table 2)。4つの活性成分(Lucidumoside D_qt、(20S)-24-ene-3,20-diol-3-acetate、syringaresinol diglucoside_qt、およびOlitoriside_qt)については潜在的な標的遺伝子が予測されなかったが、残りの9つの成分からは517個の潜在的な標的遺伝子が予測された。3,810個のDEG、1,136個のMRG、および517個の潜在的な標的遺伝子を重ね合わせることで、GPX1、BAX、CASP8、MAOA、MAOB、CAT、AKR1B10、ALDH2、およびFABP1の9つの候補遺伝子が同定された(Figure 2C)。続いて、活性成分と候補遺伝子のネットワークを構築した(Figure 2D)。これら9つの候補遺伝子は、有毒物質への反応、有機ヒドロキシ化合物の異化プロセス、および細胞解毒を含む341個のGO用語に濃縮されていた(Figure 2E)。さらに、トリプトファン代謝、神経変性経路、およびヒスチジン代謝などの52個のKEGGパスウェイに関連していた(Figure 2F)。
LLFにおけるDN治療の候補バイオマーカーのスクリーニング
PPIネットワークにより、7つのノードと8つのエッジが明らかになり、MAOA、ALDH2、MAOB、およびAKR1B10が相互作用していました(Figure 3A)。4つの機械学習モデルにおいてRMSE値が0.281未満であった遺伝子が、特徴遺伝子として同定されました:CAT、MAOB、MAOA、BAX、およびFABP1(Figure 3B-E)。発現解析の結果、CAT、FABP1、MAOB、およびMAOAはDN群と対照群の間で有意に異なっており、GSE142025およびGSE96804の両データセットで一致していました(Figure 3F,G)。さらに、ROC曲線解析におけるこれらのAUC値は両データセットで0.7を超えており、これらの遺伝子がDN検体と対照検体を効果的に区別でき、LLFにおけるDN治療の候補バイオマーカーとして機能することが示されました(Figure 4A-H).
炎症および免疫関連パスウェイにおける候補バイオマーカーの有意な濃縮
GSEAにより、ケモカインシグナリングパスウェイおよびサイトカイン-サイトカイン受容体相互作用において顕著に濃縮された4つの候補バイオマーカーが特定された(Figure 5A-D)。これらのうち、ペルオキシダーゼシグナリングパスウェイは、CAT、MAOA、およびMAOBと有意な関連を示した。
候補バイオマーカーと免疫細胞の相関
DNサンプルとコントロールサンプルの間で、9種類の免疫細胞(ナイーブB細胞、M0マクロファージ、M1マクロファージ、M2マクロファージ、活性化マスト細胞、活性化NK細胞、静止期メモリーCD4+ T細胞、ナイーブCD4+ T細胞、およびCD8+ T細胞)の発現に顕著な差が認められた(P < 0.05)(図 6A,B)。ナイーブB細胞と活性化NK細胞の間には有意な正の相関(cor = 0.6)が認められ、一方でナイーブB細胞と活性化マスト細胞の間には有意な負の相関(cor = -0.69)が検出された(図 6C)。すべての候補バイオマーカーは、CD8+ T細胞および活性化マスト細胞と強い負の相関を示し、活性化NK細胞およびナイーブB細胞と正の相関を示した(図 6D)。
主要な修飾m6Aタンパク質と候補バイオマーカーとの相互作用
m6A RNAメチル化修飾は、RNAの合成および代謝に深刻な影響を及ぼし、さまざまな疾患の病態に関与している29。候補バイオマーカーにおけるm6A修飾部位の位置および二次構造における信頼性の高い位置を図7A-Hに示す。さらなる解析により、CATと相互作用する主要なm6A修飾タンパク質にAQRおよびRBM22が含まれ、FABP1はSF3A3とAQRの両方と相互作用することが明らかになった。また、MAOAはIGF2BP3およびIGF2BP2と相互作用し、MAOBはTIA1と相互作用することが判明した(表3)。
DN治療におけるLLF中のタキシフォリン、β-シトステロール、およびエリオジクチオールの良好なin silico結合予測
miRNetにおいて、CATは24種類のmiRNAと相互作用し、FABP1は5種類のmiRNAに関連していることが予測された。さらに、MAOBおよびMAOAは、それぞれ29種類および26種類のmiRNAと関連していた。これらのうち、TarBaseおよびStarbaseの両データベースで23種類のlncRNAが特定された。次に、4つの候補バイオマーカー、74種類のmiRNA、および23種類のlncRNAを組み込んだlncRNA-miRNA-mRNA調節ネットワークを構築した(Figure 8A)。候補バイオマーカーを標的とする潜在的な有効成分には、ルテオリン、β-シトステロール、エリオジクチオール、ケンフェロール、クエルセチン、およびタキシフォリンが含まれていた(Figure 8B)。さらに、有効成分、候補バイオマーカー、およびGSEAで特定された上位5つのパスウェイに基づき、有効成分-バイオマーカー-パスウェイネットワークを構築した(Figure 8C)。例えば、タキシフォリンはペルキシソームパスウェイにおいてCATを標的としていた。CATとタキシフォリン(-8.8 kcal/mol)、FABP1とβ-シトステロール(-8.1 kcal/mol)、およびMAOBとエリオジクチオール(-9.8 kcal/mol)の結合エネルギーはいずれも-5 kcal/molを下回っており、これらの候補バイオマーカーとそれぞれの有効成分との間に強い親和性があることが示唆された27。タキシフォリン、β-シトステロール、およびエリオジクチオールは、DNを治療するLLFにおいて良好なin silico結合予測を示す潜在的な有効成分として特定された(Figure 8D-F)。ただし、これらはデータベースにより予測された成分であり、観察されたin vivo効果の確認済み生物活性中間体として提示されたものではない。
DNマウスモデルにおける候補バイオマーカーの検証
DNマウスの治療におけるLLFの薬力学的評価
投与期間中、マウスの血糖値および尿中マイクロアルブミン値をモニタリングした(Figure 9A-D)。対照群と比較して、DNモデル群では血糖値および尿中マイクロアルブミン値が有意に上昇した(P < 0.01)。また、DNモデル群と比較して、治療群のマウスでは、投与4週間後に血糖値が有意に低下し(P < 0.01)、投与8週間後に尿中マイクロアルブミン値が有意に低下した(P < 0.05)。これらの結果は、LLFがDNの治療に有益である可能性を示唆している。
DNマウスにおけるLLF治療の病理学的評価
HE染色後、対照群の腎組織では明瞭な糸球体構造が認められた。対照的に、DNモデル群では、正常群と比較して、糸球体の核濃縮および濃染に加え、糸球体周囲への炎症細胞浸潤が認められた。LLF投与により、db/dbマウスの腎臓における病理学的損傷が改善した(Figure 9E).
DNマウスにおける候補バイオマーカー発現のRT-PCR解析
DNマウスモデルの確立に成功し、LLF治療によって症状が著しく改善したことを確認した後、候補バイオマーカーの変化を解析するためにRT-qPCRを用いた。コントロール群と比較して、DN群ではCATおよびMAOAの発現が有意に減少していた(P < 0.05 または P < 0.01)。逆に、治療群ではDN群よりもCATおよびMAOAの発現が有意に高かった(P < 0.05)。しかし、MAOBおよびFABP1の発現については、群間に統計的に有意な差は認められなかった(Figure 9F-I)。
データの可用性
本研究で解析した遺伝子発現データセットは、Gene Expression Omnibus (GEO) のアクセッション番号 GSE142025 および GSE96804 として公開されています。バイオインフォマティクス解析に使用した R スクリプト、および実験のソースデータ(血糖値、尿中マイクロアルブミン、RT-qPCR データ)は、Supplemental File 1 に提供されています。本研究で使用したその他のデータベース、ソフトウェア、およびウェブリソースは、Table of Materials に記載されています。
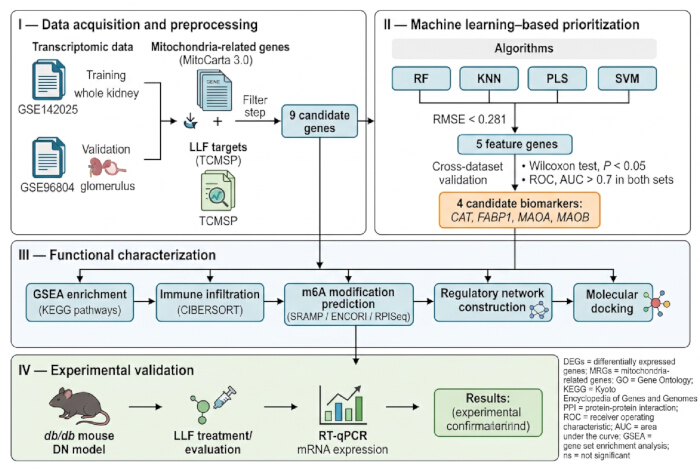
図1: 本研究のワークフロー。 トランスクリプトームデータセット、ミトコンドリア関連遺伝子、およびLigustri Lucidi Fructusの予測標的を統合して候補遺伝子を特定した。次に、4つの機械学習アルゴリズムを用いて特徴遺伝子の優先順位付けを行い、その後、データセット間での検証、機能特性解析、およびdb/dbマウスを用いた実験的検証を行った。略語:DN = 糖尿病性腎症; DEGs = 発現変動遺伝子; MRGs = ミトコンドリア関連遺伝子; LLF = Ligustri Lucidi Fructus; RF = ランダムフォレスト; KNN = k近傍法; PLS = 部分最小二乗法; SVM = サポートベクターマシン; RMSE = 平方根平均二乗誤差; GSEA = 遺伝子セット濃縮解析; RT-qPCR = 逆転写定量PCR。こちらのリンクをクリックして、この図の拡大版を表示してください。
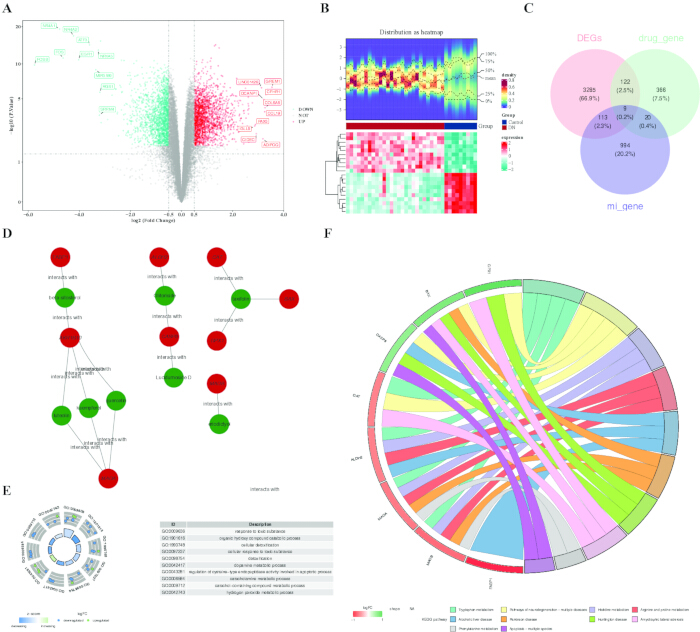
図2: DNのLLF治療における候補遺伝子のスクリーニングおよび機能的特性解析。 (A>) GSE142025におけるDNサンプルとコントロールサンプルの間の変動的に発現している遺伝子を示すボルケーノプロット。 (B>) |log2FC|でランク付けされた、発現上昇上位10遺伝子および発現低下上位10遺伝子のヒートマップ。 (C>) DEGs、MRGs、および予測されたLLF標的遺伝子の共通部分を示すベン図。 (D>) 有効成分と候補遺伝子のネットワーク。 (E>) 候補遺伝子のGene Ontology濃縮解析。バーの高さは濃縮の有意性を表し、z-scoreは機能調節の予測方向を示す。 (F>) 候補遺伝子のKyoto Encyclopedia of Genes and Genomesパスウェイ濃縮解析。略語:DN = 糖尿病性腎症;LLF = Ligustri Lucidi Fructus;DEGs = 変動的に発現している遺伝子;MRGs = ミトコンドリア関連遺伝子;GO = Gene Ontology;KEGG = Kyoto Encyclopedia of Genes and Genomes。こちらのリンクをクリックして、この図の拡大版を表示してください。
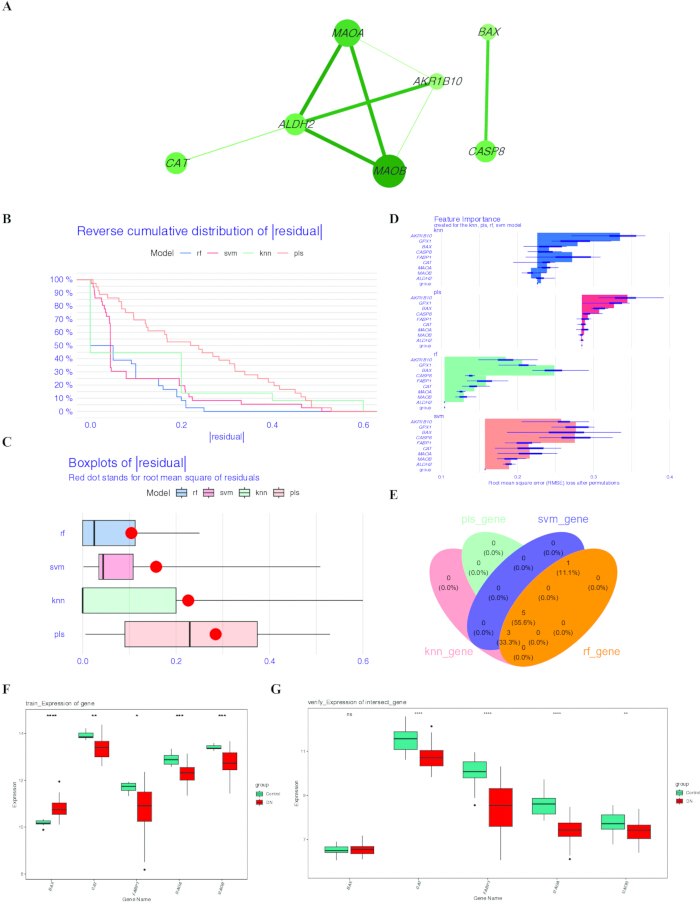
図3機械学習を用いた候補バイオマーカーの同定 (A)候補遺伝子によってコードされるタンパク質のタンパク質間相互作用ネットワーク。(B) RF、KNN、PLS、およびSVMモデルにおける残差の逆累積分布。(C) 4つのモデルの残差分布を示すボックスプロット。赤点は平均二乗誤差を示す。 (D) 4つの機械学習モデルにおける候補遺伝子のRMSEに基づく重要度。(ERMSEを満たす特徴遺伝子の共通集合 < 4つのモデルすべてにおいて0.281の基準。F, G) GSE142025およびGSE96804における、それぞれに選択された特徴遺伝子の発現。略語:RF = ランダムフォレスト、KNN = k近傍法、PLS = 部分最小二乗法、SVM = サポートベクターマシン、RMSE = 平方根平均二乗誤差。 こちらの図の拡大版を表示するには、ここをクリックしてください。
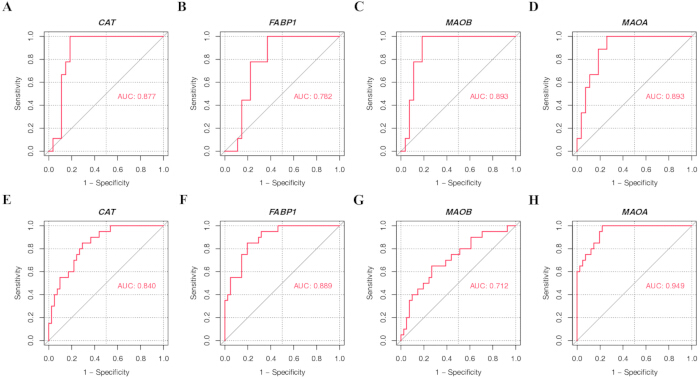
図44つの候補バイオマーカーの受信者動作特性曲線。 CAT、FABP1、MAOB、およびMAOAのROC曲線(A-D) GSE142025 トレーニングデータセットおよび (E-H) GSE96804検証データセット。AUCは受信者動作特性曲線下の面積を表す。略語:ROC = 受信者動作特性;AUC = 曲線下の面積。 この図の拡大版を表示するには、ここをクリックしてください。
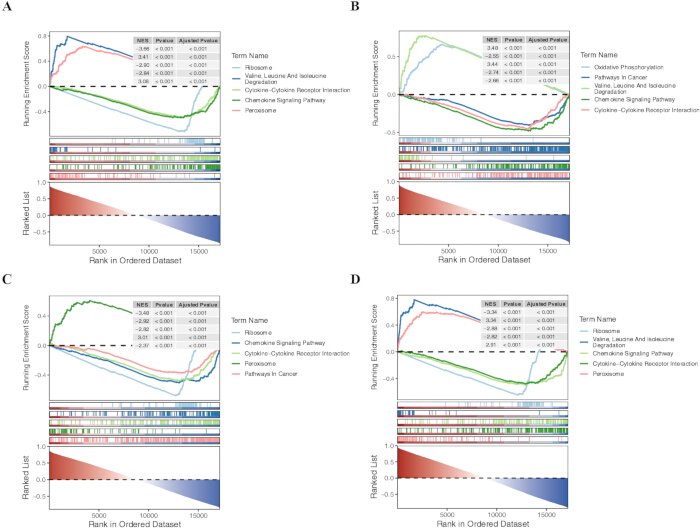
図5: 候補バイオマーカーの遺伝子セット濃縮解析。GSE142025データセットにおける(A) CAT、(B) FABP1、(C) MAOA、および(D) MAOBに関連して有意に濃縮されたKEGGパスウェイを示すGSEA。略語:GSEA = 遺伝子セット濃縮解析、KEGG = 京都遺伝子・ゲノム百科事典。この図の拡大版を表示するには、ここをクリックしてください。
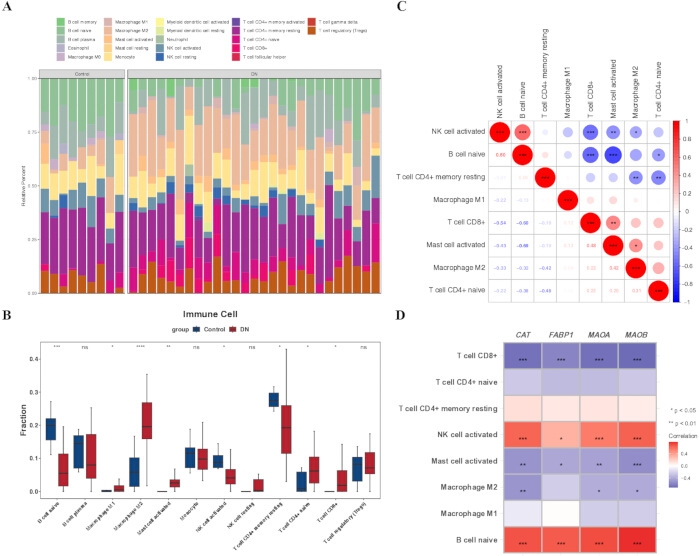
図6: DNにおける免疫細胞浸潤と候補バイオマーカーとの関連。 (A) DN群および対照群のサンプルにおいてCIBERSORTにより推定された2種類の免疫細胞の相対的な割合。 (B) DN群と対照群の間で有意に異なる免疫細胞分画の比較。 (C) 有意に変動した免疫細胞タイプ間の相関行列。 (D) CAT、FABP1、MAOA、MAOBの発現量と、有意に変動した免疫細胞タイプとのスピアマン相関。略称:DN = 糖尿病性腎症。 この図の拡大版を表示するには、ここをクリックしてください。
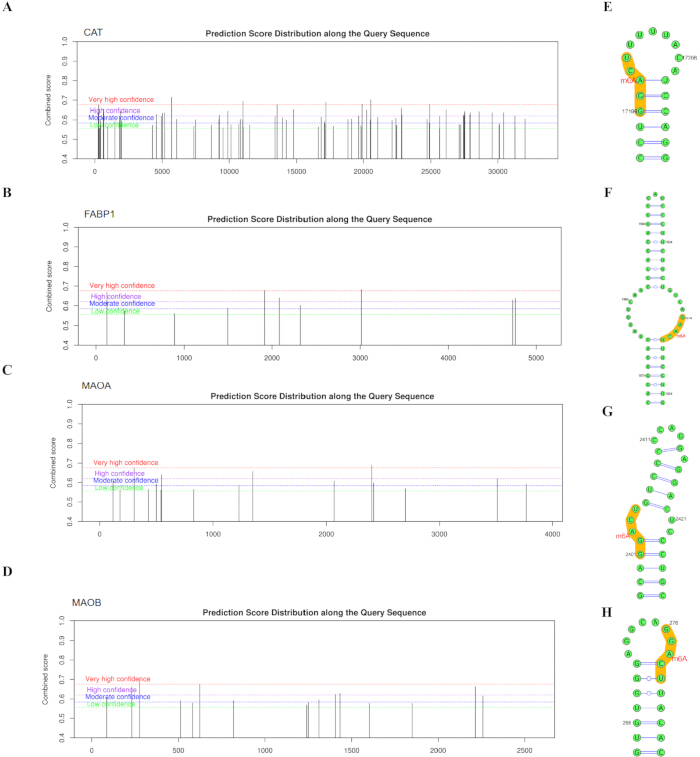
図 7: 候補バイオマーカー転写物の予測m6A修飾部位およびRNA二次構造。 (A) CAT、(B) FABP1、(C) MAOA、および(D) MAOBにおける予測m6A修飾部位。 (E) CAT、(F) FABP1、(G) MAOA、および(H) MAOBの、信頼度の高いm6A関連領域を示す予測RNA二次構造。黄色でハイライトされた領域は、m6A修飾部位を含む予測配列領域を示す。略語:m6A = N6-methyladenosine。 こちらのリンクをクリックして、この図の拡大版を表示してください。
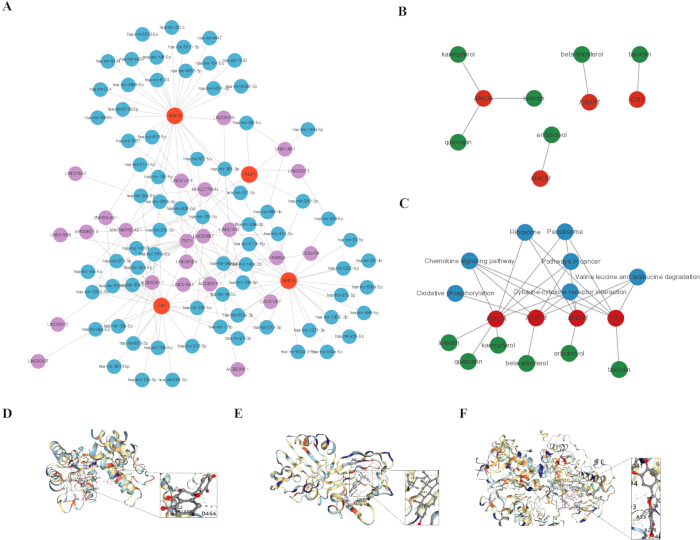
図 8: LLFの潜在的な活性成分の調節ネットワークおよび分子ドッキング。 (A) 候補バイオマーカーが関与する予測lncRNA–miRNA–mRNA調節ネットワーク。(B) LLFの潜在的な活性成分と候補バイオマーカーのネットワーク。(C) GSEAの結果に基づく活性成分–バイオマーカー–パスウェイネットワーク。(D-F) 予測される分子ドッキング構造:(D) CATとタキシフォリン、(E) FABP1とβ-シトステロール、および(F) MAOBとエリオジクチオール。略称: LLF = Ligustri Lucidi Fructus; lncRNA = 長鎖非翻訳RNA; miRNA = マイクロRNA; GSEA = 遺伝子セット濃縮解析。 こちらのリンクをクリックして、この図の拡大版を表示してください。
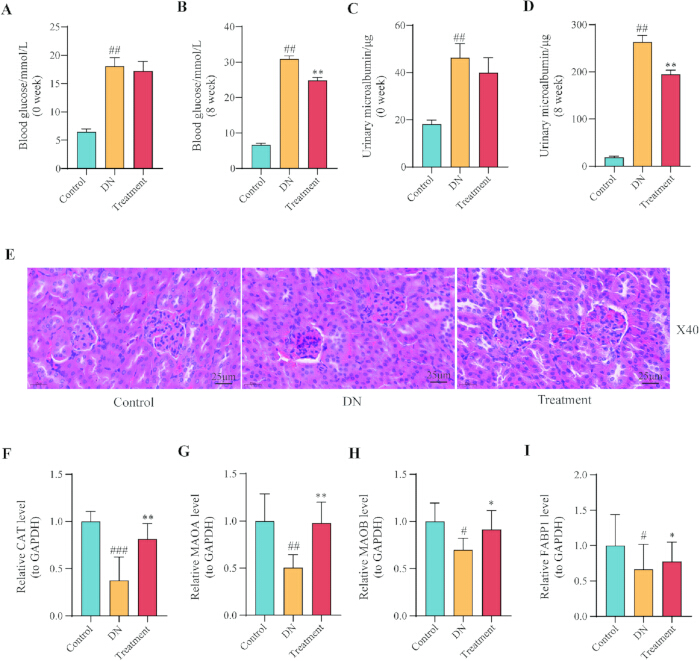
図 9: db/dbマウスにおける生化学的指標、腎組織病理、および候補バイオマーカー発現に対するLLF処理の影響。 (A,B) それぞれベースラインおよび8週目における血糖値。 (C,D) それぞれベースラインおよび8週目における尿中ミクロアルブミン値。 (E) コントロール群、DN群、および治療群の代表的なヘマトキシリン・エオシン染色腎切片(倍率 ×40、スケールバー = 25 µm)。 (F-I) RT-qPCRで測定した、それぞれCat、Maoa、Maob、およびFabp1の相対的な腎mRNA発現レベル。 #P < 0.05, ##P < 0.01, ###P < 0.01(コントロール群との比較)、*P < 0.05, **P < 0.01, ***P < 0.01(DN群との比較)。略語:LLF = Ligustri Lucidi Fructus、DN = 糖尿病性腎症、RT-qPCR = 逆転写定量PCR。 こちらのリンクをクリックして、この図の拡大版を表示してください。
| プライマー | 配列 |
| CAT F | TCACTGACGAGATGGCAC |
| CAT R | ATCGAACGGCAATAGGGGTC |
| FABP1 F | CAATAGGTCTGCCCGAGGAC |
| FABP1 R | GTCATGGTCTCCAGTTCGCA |
| MAOB F | GCACTGAAACAGCCTCAC |
| MAOB R | TCGTGCAGGGACATCCAAAG |
| MAOA F | ACTTACCCATTCCGTGGTGC |
| MAOA R | ACCACAGGGCAGATACCTCA |
| M-GAPDH F | CCTTCCGTGTTCCTACCCC |
| M-GAPDH R | GCCCAAGATGCCCTTCAGT |
表1:マウス腎臓組織のRT-qPCR解析に使用したプライマー配列。 略語:F = フォワードプライマー、R = リバースプライマー、RT-qPCR = 逆転写定量PCR。
| 分子ID | 分子名 | OB (%) | 深層学習 | 標的数 |
| MOL00358 | β-シトステロール | 36.91 | 0.75 | 100 |
| MOL0042 | ケンフェロール | 41.88 | 0.24 | 103 |
| MOL04576 | タキシフォリン | 57.84 | 0.27 | 92 |
| MOL05146 | ルシドゥモサイドD | 48.87 | 0.71 | 104 |
| MOL05147 | ルシデュモサイドD_qt | 54.41 | 0.47 | 0 |
| MOL05169 | (20S)-24-エン-3,20-ジオール-3-アセテート | 40.23 | 0.82 | 0 |
| MOL05190 | エリオジクティオール | 71.79 | 0.24 | 101 |
| MOL05195 | シリンガレシノールジグルコシド | 83.12 | 0.8 | 0 |
| MOL05209 | ルシドゥスクリン | 30.11 | 0.75 | 105 |
| MOL0521 | オリトリサイド | 65.45 | 0.23 | 100 |
| MOL05212 | オリトリサイド_qt | 103.23 | 0.78 | 0 |
| MOL006 | ルテオリン | 36.16 | 0.25 | 102 |
| MOL0098 | ケルセチン | 46.43 | 0.28 | 103 |
表2:TCMSPデータベースを用いて同定されたLigustri Lucidi Fructusの13種類の活性成分。 略語:OB = 経口バイオアベイラビリティ、DL = 薬物らしさ。
| メッセンジャーRNA | タンパク質 | 無線周波数 | サポートベクターマシン |
| CAT | AQR | 0.7 | 0.98 |
| コンピュータ断層撮影(CAT) | RBM2 | 0.8 | 0.97 |
| FABP1 | AQR | 0.65 | 0.94 |
| FABP1 | SF3A3 | 0.7 | 0.8 |
| モノアミン酸化酵素A | IGF2BP2 | 0.75 | 0.97 |
| MAOA | IGF2BP3 | 0.75 | 0.97 |
| MAO-B | TIA1 | 0.85 | 0.89 |
表3:4つのミトコンドリアバイオマーカーmRNAとm6A関連RNA結合タンパク質との間の予測される相互作用。 CAT、FABP1、MAOA、およびMAOBはヒトのバイオマーカーmRNAを示し、AQR、RBM2、SF3A3、IGF2BP2、IGF2BP3、およびTIA1はRNA結合タンパク質を示す。RFおよびSVMスコア > 0.5は予測されたRNA-タンパク質相互作用を示す。略語:RF = ランダムフォレスト、SVM = サポートベクターマシン。
補足ファイル 1. バイオインフォマティクススクリプトおよび実験ソースデータ。 このアーカイブには、データ処理、差分的発現解析、機能濃縮解析、機械学習、受信者動作特性(ROC)解析、遺伝子セット濃縮解析(GSEA)、Spearman相関解析、およびCIBERSORT免疫細胞浸潤解析に使用したRスクリプトと、血糖値、尿中微量アルブミン、およびRT-qPCR実験のソースデータが含まれています。 こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
LLFは、主に肝臓と腎臓を滋養し、糖尿病およびその合併症を治療するために用いられる一般的な中薬です。現在、糖尿病性腎症(DN)に対する特異的な薬剤や治療法はなく、その管理は主に血糖降下、脂質降下、および血圧降下治療に依存しています30,31,32。しかし、これらの治療によって腎損傷の進行を遅らせることができる患者はごく一部に過ぎません3。LLFは、糖および脂質代謝異常の改善および酸化ストレスの軽減を通じて、DNラットモデルにおいて腎保護効果を発揮することが示されています34。特に、腎臓はミトコンドリア含量と酸素消費量が極めて高い臓器であり、腎臓における異常なミトコンドリアダイナミクスはDNの病態生理において極めて重要な役割を果たしています35。本研究では、LLFが特定の候補バイオマーカー(CAT、FABP1、MAOB、およびMAOA)を介してミトコンドリア機能に影響を及ぼし、DNを治療するという新しいメカニズムを明らかにします。
先行研究により、カタラーゼ(CAT)、脂肪酸結合タンパク質1(FABP1)、モノアミン酸化酵素B(MAOB)、およびモノアミン酸化酵素A(MAOA)が、程度の差はあるものの糖尿病性腎症(DN)に関与していることが示されている。CATは抗酸化防御系に関与し、酸化ストレスによる損傷から腎臓を保護する36。生体内の中心的な抗酸化酵素であるCATは、ミトコンドリア関連の生理学的プロセスを調節することで、DNの発症および進行の制御に関与している37。CATは特に過酸化水素(H₂O₂)を水と酸素に分解することを触媒し、ミトコンドリア由来の活性酸素種(ROS)を効果的に除去する。これにより、酸化ストレスによるミトコンドリアの構造および機能への損傷が軽減され、ミトコンドリア膜電位の安定性と酸化リン酸化効率が維持されるため、高血糖誘発性の腎細胞障害が緩和され、DNの進行が遅延する38。さらに、CATの発現が低下すると、ミトコンドリアROSの除去が不十分となり、ミトコンドリアの断片化とクリステの崩壊が悪化する。これにより、ミトコンドリアの融合が抑制される一方で分裂が促進され、ミトコンドリアダイナミクスがさらに不安定になる。その結果、メサンギウム細胞やポドサイトなどの固有細胞に代謝異常が生じ、腎組織の線維化が加速される39。
FABP1は、脂肪酸結合タンパク質ファミリーの一員として、主に長鎖脂肪酸の輸送、代謝、および細胞内シグナル伝達に関与しています。その異常発現は、さまざまな代謝性疾患や腎障害と密接に関連していることが示されており、糖尿病性腎症(DN)の発症と進行において重要な調節的な役割を果たしています40。研究によれば、FABP1は脂質代謝を乱すことでDNの進行を調節しています。糖尿病においては、FABP1の異常発現により脂肪酸の輸送と代謝が阻害されます。過剰な遊離脂肪酸とその代謝産物が腎組織に蓄積し、糸球体内皮細胞および尿細管上皮細胞に直接的な損傷を与え、それによって腎炎症と線維化を悪化させます41。同時に、FABP1は酸化ストレスおよび低酸素誘発性損傷を媒介することで、腎組織の損傷を悪化させます。その尿中排泄量は尿中アルブミン値の異常に先立って増加する可能性があり、DNの早期スクリーニングおよび診断のための新たな標的となります41,42。さらに、FABP1はミトコンドリアの脂肪酸代謝において中心的な調節的役割を担っています43。研究では、FABP1のアップレギュレーションがミトコンドリアへの脂肪酸輸送効率を著しく高め、ミトコンドリアのβ酸化活性およびトリカルボン酸サイクル酵素活性を増加させ、それによって細胞のエネルギー代謝を改善することが示されています4。しかし、FABP1がミトコンドリア関連プロセスへの関与を通じてDNの病態に影響を及ぼすメカニズムはまだ解明されていません。他のDN関連疾患において、神経伝達物質代謝に関与する酵素であるMAOBおよびMAOAは、組織の還元状態の不均衡に寄与し、DNの進行に関連しているとされています。本研究は、これら4つの候補バイオマーカーがDNにおいて極めて重要な役割を果たすことをさらに裏付けており、DN群ではそれらの発現レベルが低下していました。これらの候補バイオマーカーの発現を調節することで、DNにおける炎症と酸化ストレスを軽減できるという仮説を立てています。
GSEA濃縮解析に基づき、4つの候補バイオマーカーであるCAT、FABP1、MAOB、およびMAOAが、ケモカインシグナル伝達経路、サイトカイン-サイトカイン受容体相互作用、およびペルキシソーム経路を含む複数の経路で濃縮されていることが示されました。ケモカインは免疫応答の主要な構成要素であり、炎症を促進します。ペルオキシダーゼ(POD)経路は酸化ストレスに関連しています45。バイカリ ンは、酸化ストレスと炎症を軽減することで糖尿病性腎症(DN)を緩和することが報告されており、そのメカニズムにはNrF2介在性抗酸化シグナル伝達経路の活性化およびMAPK介在性炎症経路の抑制が関与している可能性があります45。さらに、脂質代謝におけるFABP1 の調節不全は、DNにおける糸球体硬化および間質性線維化に寄与している可能性があります9。これらの知見は、候補バイオマーカーがDNにおける炎症および酸化ストレスプロセスにおいて重要な役割を果たしていることを示唆しています。これらの候補バイオマーカーを標的として、それらが影響を及ぼす経路を調節することで、DNに関連する炎症と酸化ストレスを軽減し、その進行を緩和できる可能性があります。
バイオインフォマティクス解析により、DN腎組織におけるCD8+ T細胞などの免疫サブセットの浸潤レベルが有意に変化し、CD8+ T細胞の増加が4つのミトコンドリア関連候補バイオマーカー(CAT, FABP1, MAOB, MAOA)の発現と有意な負の相関を示すことが明らかになった。これらの計算予測は、動物実験の病理学的観察結果と一致している。DNモデル群のマウス腎臓のHE染色切片では、糸球体周囲に明らかな炎症細胞浸潤が認められたが、LLF介入後、治療群における腎炎症細胞の浸潤は有意に減少し、病理学的損傷が改善した。このことは、炎症細胞浸潤の増加がDN腎損傷の主要な特徴であり、LLFが免疫浸潤を調節することで保護的な役割を果たす可能性があることを示唆している。この知見は、CD8+ T細胞の浸潤がDNの進行に関連しており、その反応を抑制することで疾患を軽減できるという先行研究46や、アドリアマイシン腎症において腎損傷を悪化させるという報告47と一致している。さらに、B細胞、M1/M2マクロファージ、NK細胞などの多様な免疫細胞がDNの病理において変化することが知られている48。バイオマーカーであるCATはDNにおける免疫細胞の機能に影響を与える可能性があり49、MAOAもマクロファージの分極を調節することで免疫微小環境に影響を与える可能性がある。これらの結果は、LLFの腎保護効果が、CD8+ T細胞を含む異常な免疫浸潤の調節に密接に関連しており、それによって炎症性損傷を軽減させることを示している。4つの候補バイオマーカーとCD8+ T細胞および活性化マスト細胞との負の相関は、これらの遺伝子が腎免疫微小環境を調節している可能性を示唆している。CATの発現は、代謝組織におけるマクロファージの分極およびT細胞活性と関連している。しかし、我々のCIBERSORTによる推定はバルク腎組織のトランスクリプトームから得られたものであり、糸球体区画に浸潤した免疫細胞サブタイプと尿細管間質区画に浸潤したものを区別することはできない。観察された相関関係は、因果的な免疫調節の証拠としてではなく、仮説生成的な関連性として解釈されるべきである。これらの免疫バイオマーカー相互作用を局在化させるには、マルチプレックス免疫組織化学染色やシングルセルRNA-seqを用いた今後の研究が必要である。
先行研究では、OPA1、MFN2、DRP1、PGC-1α、SOD2などのDNにおけるミトコンドリア関連バイオマーカーが報告されています。我々のCATおよびMAOAに関する知見は、DNのミトコンドリアという文脈においてこれまであまり注目されていなかったペルオキシソームおよびモノアミン酸化酵素経路を強調することで、既存の文献を補完するものです。特に、SOD2とGPX1は古典的なROS除去酵素ですが、CATは特異的にペルオキシソームのH2O2を標的としており、酸化ストレス調節における異なる細胞内コンパートメントの存在が示唆されます。
天然のフラボノイドであるタキシフォリン(TA)は、糖尿病ラットにおいて血糖値、尿酸値、クレアチニン値、および血清インスリンレベルを有意に低下させると同時に、これらの動物における腎臓の病理学的変化を軽減することが示されています50。β-シトステロールは、脂質バランスの調節や抗炎症作用を及ぼすことで、間接的に糖尿病性腎症(DN)を改善させる可能性があります。黄耆葛根湯(HGD)に含まれるβ-シトステロール成分は、血管内皮増殖因子A(VEGFA)やインターロイキン-6(IL-6)などの分子を標的として、DN関連経路に関与します。これらの作用には、抗炎症、抗アポトーシス、抗酸化、およびオートファジー作用が含まれ、これらが腎線維化と腎皮質損傷を軽減し、腎機能を改善することで、最終的にDNの進行を遅らせます51。もう一つの天然フラボノイドであるエリオディクティオールは、酸化ストレスと炎症のバランスを整えることで、虚血性脳卒中(IS)を保護することが示されています52。DNにおけるエリオディクトールの研究は限られていますが、この疾患が炎症や酸化ストレスと関連していることを踏まえると、同様のメカニズムを通じてDNを緩和させるのではないかと仮説を立てています。本研究における薬剤予測においても、タキシフォリン、β-シトステロール、およびエリオディクティオールがDNに対して潜在的な治療効果を持つことが示唆されました。分子ドッキングは、起こり得る結合形態と親和性を予測するものですが、in vivoでの標的結合、生物学的利用能、または薬理活性を確定させるものではありません。これらの結果は、確定的なものではなく、仮説を生成するものとして解釈されるべきです。
糖尿病性腎症(DN)に関するこれまでのネットワーク薬理学研究は、主に個別のシグナル伝達経路(例:AGE-RAGE、PI3K-AKT、MAPK)に焦点を当てており、ミトコンドリア機能不全の考慮や、バイオマーカーを優先順位付けするためのマルチモデル機械学習の導入はなされていませんでした。本研究では、3つの手法および生物学的な進展を導入します。(1) トランスクリプトーム全体の変動遺伝子(DEGs)とミトコンドリア遺伝子セットおよび薬物標的予測の統合、(2) 堅牢な候補を優先順位付けするための、データセット間検証を伴う4つの異なる機械学習モデルの適用、(3) DNのミトコンドリア研究においてこれまであまり検討されていなかったペルキシソーム(CAT)およびモノアミン酸化酵素(MAOA/MAOB)経路を、治療候補軸として同定することです。
マウス腎臓におけるMaoBおよびFabp1の発現に統計的に有意な変化が見られなかったのは、いくつかの要因による可能性がある。第一に、候補遺伝子の優先順位付けに使用した2つのGene Expression Omnibus (GEO) データセットはヒト腎臓サンプル(それぞれ全腎および糸球体)に由来していたが、本動物実験ではマウス腎組織を使用した。遺伝子調節における種特異的な違いが、基底発現レベルや薬剤反応性に影響を及ぼした可能性がある。第二に、サンプルサイズが比較的小さかったため(1群あたりn = 6)、中程度の効果量を検出するための統計的検出力が制限されていた可能性がある。第三に、組織回収を投与から8週間後に行ったが、MaoBおよびFabp1はmRNAレベルではなくタンパク質レベルまたは活性レベルで調節されている可能性があり、トランスクリプトーム変化を検出するための最適なタイミングを逃していた可能性がある。第四に、全腎と特定のコンパートメントとの間の組織の不均一性が、不一致の一因となっている可能性がある。これらの可能性について、さらなる調査が必要である。
本研究では、統合的なバイオインフォマティクスと機械学習の手法を用いて、DNにおけるLLFの潜在的なミトコンドリア候補遺伝子としてCAT、FABP1、MAOA、およびMAOBを特定しました。In vivo実験により、LLFが腎組織においてCATおよびMAOAを有意にアップレギュレートすることが確認され、これらの遺伝子が今後のメカニズム解明および治療研究における有望なターゲットであることが示唆されました。対照的に、MAOBとFABP1は同方向の非有意な傾向を示しており、計算上の予測に優先順位を付ける際の実験的検証の重要性が強調されました。これらの知見は、DNにおけるミトコンドリア関連の治療戦略を探索する今後の研究の根拠となります。
開示事項
著者らに申告すべき利益相反はありません。
謝辞
本研究を通じて支援および協力いただいたすべての個人および団体に深く感謝いたします。本研究は、中国国家自然科学基金(No.81973486および82173974)、山西省中医学管理局研究プロジェクト(No.2024ZYYA021)、山西中医学大学学科学プロジェクト(No.2026XK24)、および山東中医学大学科学研究基金プロジェクト(No. KYZK2024Q13)の助成を受けたものです。また、植物材料の同定を行っていただいた山西中医学大学のQinqing Li准教授に感謝いたします。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 4%パラホルムアルデヒド組織固定液 | Saiyin Biotechnology Co., Ltd. | 71033600 | |
| 無水エタノール | Sinopharm Chemical Reagent Co., Ltd. | 10009218 | |
| 血糖値測定器 | Sinocare Inc. | GA-3 | |
| 血中尿素窒素 (BUN) 測定キット | 南京建威生物工程研究所 | C03-2-1 | |
| C57BLKS/J db/dbマウス | 常州 Cavens 実験動物有限公司 | SCXK (Su) 2021-0013 | |
| C57BLKS/J db/mマウス | 常州カベン実験動物有限公司 | SCXK (Su) 2021-013 | |
| 遠心分離機 | 湖南 Xiangyi Laboratory Instrument Development Co., Ltd. | HI650 | |
| 抱水クロラール | Shanghai Aladdin Biochemical Technology Co., Ltd. | 302-17-0 | |
| Cytoscape (v3.9.0) | https://cytoscape.org | ||
| mのためのデータベース6修飾予測 | http://www.cuilab.cn/sramp/ | ||
| 中医学伝統薬有効成分データベース | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| ENCORI / Starbase | https://starbase.sysu.edu.cn/ | ||
| Gene Expression Omnibus (GEO) | https://www.ncbi.nlm.nih.gov/geo/ | ||
| ヘマトキシリン・エオジン(HE)染色キット | Servicebio | C0105S | |
| 高速遠心機 | Labnet, USA | C2500-R-230V | |
| 免疫浸潤解析ツール | https://cibersort.stanford.edu/ | ||
| 光葉PRIVET果実(コウヨウイボタノキ) | Sichuan Quanyirun Biotechnology Co., Ltd. | 20240506 | |
| マグネティックスターラー | 江蘇省鎮江市金壇中天儀器廠 | T8-1 | |
| 顕微鏡 | Olympus | BX53 | |
| ミクロトーム | ライカ(ドイツ) | RM 2016 | |
| マイクロボリューム分光光度計 | Hangzhou Aosheng Instrument Co., Ltd. | Nano-300 | |
| miRNet | https://www.mirnet.ca | ||
| MitoCarta 3.0 | https://www.broadinstitute.org/mitocarta | ||
| モデル解釈Rパッケージ | https://cran.r-project.org/package=DALEX | ||
| 分子ドッキングプラットフォーム | http://clab.labshare.cn/cb-dock/ | ||
| マウス微量アルブミン尿ELISAキット | 精密試験 | EM0632 | |
| マウス用微量アルブミン尿試験紙 | 广州市花都高尔宝生物科技有限公司 | 20211203 | |
| マウス血清クレアチニンELISAキット | Abmart | AB590A | |
| MSigDB | https://www.gsea-msigdb.org/gsea/msigdb/ | ||
| PCRサーマルサイクラー | Roche | Roche LightCycler 480 | |
| Rソフトウェア (v4.2.2) + Rパッケージ | https://www.r-project.org / CRAN/Bioconductor | ||
| RCSB PDB | https://www.rcsb.org | ||
| RNA抽出キット | 北京聚美生物科技有限公司 | MF-036-01 | |
| RPISeq | http://pridb.gdcb.iastate.edu/RPISeq/ | ||
| RT-qPCRキット | Beijing Jumei Biotech Co., Ltd. | MF949-T | |
| サリドロサイド | Sichuan Quanyirun Biotechnology Co., Ltd. | 20211009 | |
| 血清クレアチニン測定キット | 南京建威生物工程研究所 | C01-2-1 | |
| SPF動物施設 | 山西中医学大学 | ||
| SRAMP | http://www.cuilab.cn/sramp/ | ||
| 申し訳ございませんが、翻訳対象となるソーステキスト(STRING)が入力されていません。翻訳が必要な英文をご提示ください。 | https://cn.string-db.org/ | ||
| SwissTargetPrediction | http://www.swisstargetprediction.ch/ | ||
| TCMSP | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| テジ・ピガン | Sichuan Quanyirun Biotechnology Co., Ltd. | 20210602 | |
| 組織浮上槽 | 武漢君傑 | JK-6 |
参考文献
- Thipsawat S. Early detection of diabetic nephropathy in patient with type 2 diabetes mellitus: a review of the literature. Diabetes Vasc Dis Res. 2021;18(6):14791641211058856.
- Kanwar YS, Sun L, Xie P, Liu FY, Chen S. A glimpse of various pathogenetic mechanisms of diabetic nephropathy. Annu Rev Pathol. 2011;6:395-423.
- Santulli G, et al. Prediabetes increases the risk of frailty in prefrail older adults with hypertension: beneficial effects of metformin. Hypertension. 2024;81(7):1637-43.
- Jin Q, et al. Oxidative stress and inflammation in diabetic nephropathy: role of polyphenols. Front Immunol. 2023;14:1185317.
- Alicic RZ, Rooney MT, Tuttle KR. Diabetic kidney disease: challenges, progress, and possibilities. Clin J Am Soc Nephrol. 2017;12(12):2032-45.
- Harrington JS, et al. Mitochondria in health, disease, and aging. Physiol Rev. 2023;103(4):2349-422.
- Peña FJ, et al. An integrated overview on the regulation of sperm metabolism (glycolysis-Krebs cycle-oxidative phosphorylation). Anim Reprod Sci. 2022;246:106805.
- de Mello AH, Costa AB, Engel JDG, Rezin GT. Mitochondrial dysfunction in obesity. Life Sci. 2018;192:26-32.
- Shen Y, et al. Notoginsenoside Fc, a novel renoprotective agent, ameliorates glomerular endothelial cells pyroptosis and mitochondrial dysfunction in diabetic nephropathy through regulating HMGCS2 pathway. Phytomedicine. 2024;126:155445.
- Zhang PN, et al. Mitochondrial dysfunction and diabetic nephropathy: nontraditional therapeutic opportunities. J Diabetes Res. 2021;2021:1010268.
- Zhang JL, et al. Structural characterization and protective effect against renal fibrosis of polysaccharide from Ligustrum lucidum Ait. J Ethnopharmacol. 2023;302(Pt A):115898.
- Luan R, et al. The protective effect of ethyl acetate and n-butanol fractions of wine-steamed Ligustri Lucidi Fructus on diabetic nephropathy in rats. Evid Based Complement Alternat Med. 2021;2021:6512242.
- Luan R, et al. Pharmacodynamics, pharmacokinetics, and kidney distribution of raw and wine-steamed Ligustri Lucidi Fructus extracts in diabetic nephropathy rats. Molecules. 2023;28(2):791.
- Seo HL, et al. Liqustri lucidi Fructus inhibits hepatic injury and functions as an antioxidant by activation of AMP-activated protein kinase in vivo and in vitro. Chem Biol Interact. 2017;262:57-68.
- Yan M, et al. Identification of pyroptosis-related genes and potential drugs in diabetic nephropathy. J Transl Med. 2023;21(1):490.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Gustavsson EK, et al. ggtranscript: an R package for the visualization and interpretation of transcript isoforms using ggplot2. Bioinformatics. 2022;38(15):3844-6.
- Gu Z, Eils R, Schlesner M. Complex heatmaps reveal patterns and correlations in multidimensional genomic data. Bioinformatics. 2016;32(18):2847-9.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-504.
- Wu T, et al. clusterProfiler 4.0: a universal enrichment tool for interpreting omics data. Innovation (Camb). 2021;2(3):100141.
- Dong H, et al. Identification through machine learning of potential immune-related gene biomarkers associated with immune cell infiltration in myocardial infarction. BMC Cardiovasc Disord. 2023;23(1):163.
- Pei B, et al. The development of prediction model for cuffed tracheal tube size from the middle finger in pediatrics: a concise and feasible approach. Transl Pediatr. 2023;12(12):2222-31.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77.
- Robles-Jimenez LE, et al. Worldwide traceability of antibiotic residues from livestock in wastewater and soil: a systematic review. Animals (Basel). 2021;12(1):60.
- Wang Y, et al. Bioinformatics analysis combined with clinical sample screening reveals that leptin may be a biomarker of preeclampsia. Front Physiol. 2022;13:1031950.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2^−ΔΔCT method. Methods. 2001;25(4):402-8.
- Klejborowska G, et al. Synthesis, anticancer activity and molecular docking studies of N-deacetylthiocolchicine and 4-iodo-N-deacetylthiocolchicine derivatives. Bioorg Med Chem. 2021;32:116014.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659-61.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Mazzieri A, Porcellati F, Timio F, Reboldi G. Molecular targets of novel therapeutics for diabetic kidney disease: a new era of nephroprotection. Int J Mol Sci. 2024;25(7):3969.
- Breyer MD, Susztak K. The next generation of therapeutics for chronic kidney disease. Nat Rev Drug Discov. 2016;15(8):568-88.
- Leoncini G, et al. Blood pressure reduction and RAAS inhibition in diabetic kidney disease: therapeutic potentials and limitations. J Nephrol. 2020;33(5):949-63.
- Pofi R, et al. Diabetic nephropathy: focus on current and future therapeutic strategies. Curr Drug Metab. 2016;17(5):497-502.
- Arellano Buendía AS, et al. Immunomodulatory effects of the nutraceutical garlic derivative allicin in the progression of diabetic nephropathy. Int J Mol Sci. 2018;19(10):3107.
- Zhang X, Agborbesong E, Li X. The role of mitochondria in acute kidney injury and chronic kidney disease and its therapeutic potential. Int J Mol Sci. 2021;22(20):11253.
- Liu Y, et al. DsbA-L interacting with catalase in peroxisome improves tubular oxidative damage in diabetic nephropathy. Redox Biol. 2023;66:102855.
- Zhong Y, et al. Jujuboside A ameliorates high fat diet and streptozotocin induced diabetic nephropathy via suppressing oxidative stress, apoptosis, and enhancing autophagy. Food Chem Toxicol. 2022;159:112697.
- Zhong Y, et al. Dioscin relieves diabetic nephropathy via suppressing oxidative stress and apoptosis, and improving mitochondrial quality and quantity control. Food Funct. 2022;13(6):3660-73.
- Issac PK, et al. Protective effect of morin by targeting mitochondrial reactive oxygen species induced by hydrogen peroxide demonstrated at a molecular level in MDCK epithelial cells. Mol Biol Rep. 2022;49(6):4269-79.
- Abo El-Asrar M, Ismail EAR, Elnhrawy AM, Thabet RA. Fatty acid binding protein 1 (FABP1) and fatty acid binding protein 2 (FABP2) as a link between diabetic nephropathy and subclinical atherosclerosis in children and adolescents with type 1 diabetes. J Diabetes Complications. 2023;37(3):108414.
- Gholaminejad A, Fathalipour M, Roointan A. Comprehensive analysis of diabetic nephropathy expression profile based on weighted gene co-expression network analysis algorithm. BMC Nephrol. 2021;22(1):245.
- Tanaka M, et al. Urinary fatty acid-binding protein 4 is a promising biomarker for glomerular damage in patients with diabetes mellitus. J Diabetes Investig. 2025;16(4):670-9.
- Liu Y, et al. Gastric cancer adapts high lipid microenvironment via suppressing PPARG-FABP1 axis after arriving in the lymph node. Redox Biol. 2025;85:103759.
- Borús DL, et al. Fatty acid binding protein 1 (FABP1) depletion promotes an oxidative metabolic shift in Caco-2 colorectal cancer cells. Biochim Biophys Acta Mol Cell Biol Lipids. 2025;1870(7):159661.
- Chu Y, et al. Glutathione peroxidase-1 overexpression reduces oxidative stress, and improves pathology and proteome remodeling in the kidneys of old mice. Aging Cell. 2020;19(6):e13154.
- Zhang F, et al. Mesenchymal stem cells alleviate rat diabetic nephropathy by suppressing CD103+ DCs-mediated CD8+ T cell responses. J Cell Mol Med. 2020;24(10):5817-31.
- Cao Q, et al. Renal F4/80+ CD11c+ mononuclear phagocytes display phenotypic and functional characteristics of macrophages in health and in adriamycin nephropathy. J Am Soc Nephrol. 2015;26(2):349-63.
- Zhou W, et al. The landscape of immune cell infiltration in the glomerulus of diabetic nephropathy: evidence based on bioinformatics. BMC Nephrol. 2022;23(1):303.
- Bloch K, Shichman E, Vorobeychik M, Bloch D, Vardi P. Catalase expression in pancreatic alpha cells of diabetic and non-diabetic mice. Histochem Cell Biol. 2007;127(2):227-32.
- Zhao Y, et al. Taxifolin attenuates diabetic nephropathy in streptozotocin-induced diabetic rats. Am J Transl Res. 2018;10(4):1205-10.
- Ding S, Wang W, Song X, Ma H. Based on network pharmacology and molecular docking to explore the underlying mechanism of Huangqi Gegen Decoction for treating diabetic nephropathy. Evid Based Complement Alternat Med. 2021;2021:9928282.
- Guo S, et al. Correction: Eriodictyol: a review of its pharmacological activities and molecular mechanisms related to ischemic stroke. Food Funct. 2023;14(10):4949.