このプロトコルは、低温電子顕微鏡(クライオEM)用のNi-NTA脂質単分子層親和性グリッドのベンチ準備を記述しています。この透過電子顕微鏡(TEM)グリッド表面修飾は、可溶性ポリヒスチジン標識タンパク質複合体を選択的に捕捉し、希薄サンプルを濃縮し、粒子を空気と水の界面から離してテザーリングすることで構造決定を向上させます。
この記事について
サマリー
要約
クライオ試料の調製は、タンパク質複合体の高分解能構造決定において依然として大きな技術的課題です。空気と水の界面での相互作用はタンパク質の変性や好ましい配向を誘発し、達成可能な解像度を制限します。さらに、希釈されたサンプルや低存在比のターゲットは粒子密度が不足しやすく、効率的なデータ収集を妨げます。脂質ベースの親和性グリッドはこれらの制限に対処する効果的な戦略を提供します。本記事では、可溶性ポリヒスチジンタグ付きタンパク質複合体の構造解析のためのNi-NTA脂質単一層親和グリッドの段階的なプロトコルを提示します。プロトコルの主な段階には、脂質混合物の準備、リザーバーバッファー表面への鋳造、得られた脂質単分子層をTEMグリッドに移すこと、脂質グリッドを最大1週間乾燥・保存すること、そしてサンプルとともに脂質グリッドをクライオプランジすることが含まれます。このプロトコルの成功裏の実装により、脂質単一層を使わずに作成されたグリッドに比べて粒子密度が向上した、よく分散した単一層の粒子を含むクライオグリッドが実現します。この手順は、クライオプランジャー、化学煙幕フード、そして一般的に使用される標準的なクライオ試料準備ツールを備えた実験室で数時間以内に完了できます。詳細な書面による説明とビデオデモンストレーションを組み合わせることで、本研究はNi-NTA脂質単一層親和グリッドの利用性、再現性、そしてクライオEMコミュニティ内での普及向上を目指しています。
概要
X線結晶学、核磁気共鳴(NMR)、低温電子顕微鏡(クライオEM)などのタンパク質構造決定の実験技術はすべて、慎重な試料準備に依存しています。単一粒子分析(SPA)クライオEMでは、試料の品質が最終再構築の解像度を制限する主な要因となることが多いです。クライオ透過電子顕微鏡(クライオ-TEM)や直接電子検出器の技術革新により、データ収集の効率と達成可能な解像度が向上し続ける中、高解像度クライオEMにおける主な課題は画像取得から試料準備および品質1,2,3,4,5,6,7へとますます移行しています。
従来のクライオグリッド製備は、透過電子顕微鏡(TEM)グリッドの表面に数マイクロリットルの試料を塗布し、フィルターペーパーでグリッドを塗り、液体エタンまたはプロパン・エタン混合物のクライオジェンに素早く浸すという手法です。理想的には、その結果生まれるクライオグリッドには、単一分散粒子を持つ薄いガラス質氷が含まれます。実際には、この結果を達成することはしばしば困難であり、高解像度構造決定に適したグリッドを生成するために複数回の最適化が必要となることがあります。一般的な問題には、空気-水界面(AWI)8,9でのタンパク質変性、好ましい配向10、氷層内の低い粒子密度11,12が含まれます。後者の課題は、非常に動的で寿命が短く、微小モル濃度で分離が困難なタンパク質複合体にとって特に重要です。これらの制限に対処するために、グラフェン酸化物13連続超薄型炭素14やストレプタビジン被覆ナノビーズなど、ビオチニル化標的15を捕捉するためのいくつかの戦略が開発されています。
別のアプローチとしては、ターゲット分子を選択的に結合させる親和面をTEMグリッドに修飾する方法があります。これらのアフィニティグリッドは、粒子をグリッド表面に集中させつつ、AWIへの曝露を減らすことで、粒子分布を改善し構造的な完全性を保つことができます。さらに、濃縮効果は希薄または不均一な試料から低存在比の高分子複合体を濃縮させることもあります。
過去10年間で、SPAクライオEM向けにいくつかのアフィニティグリッド戦略が開発されました。これらの手法は、TEMグリッド表面の修飾と対応する機能化戦略によって分類できます。一般的に使われる表面には、超薄型の非晶質炭素14、グラフェンまたはグラフェン酸化物、脂質単分子層13,16、脂質単分子層または脂質ナノチューブ17,18、脂質単分子層上で成長する二次元ストレプタビジン結晶19,20があります。これらの手法の中で、二次元ストレプタビジン親和性グリッドは特に高解像度のタンパク質構造決定に成功しています 21,22,23,24,25,26,27,28,29.関連する方法には、脂質単一層に結合した単一粒子ストレプタビジンの利用があり、これは最近二本鎖DNA(dsDNA)に結合したミニ染色体維持複合体の構造決定に応用されました30。
これらの進歩にもかかわらず、親和性グリッドの準備方法が利用可能で再現性が高いのは依然として限られています。各技術には選択的標的結合のための独自のサンプル要件があり、市販されていないため、専門的な製造プロトコルや化学的修飾が必要です。これらの追加ステップは、SPAクライオEMワークフローの技術的複雑さを大幅に高める可能性があります。したがって、本記事では、ここで説明するアフィニティグリッド技術の準備を円滑にするための詳細なステップバイステップのプロトコルを提示します。Ni-NTA脂質単層親和グリッドプロトコルは、過去17 年に日常的に実装されており、可溶性ポリヒスチジンタグ付きタンパク質複合体のクライオEM構造研究に容易に採用されており、分子量範囲(97–470 kDa)にまたがっています(図1)。この方法は、洗剤フリーバッファーのタンパク質濃度0.05から0.2 mg/mLの範囲に対応しています。
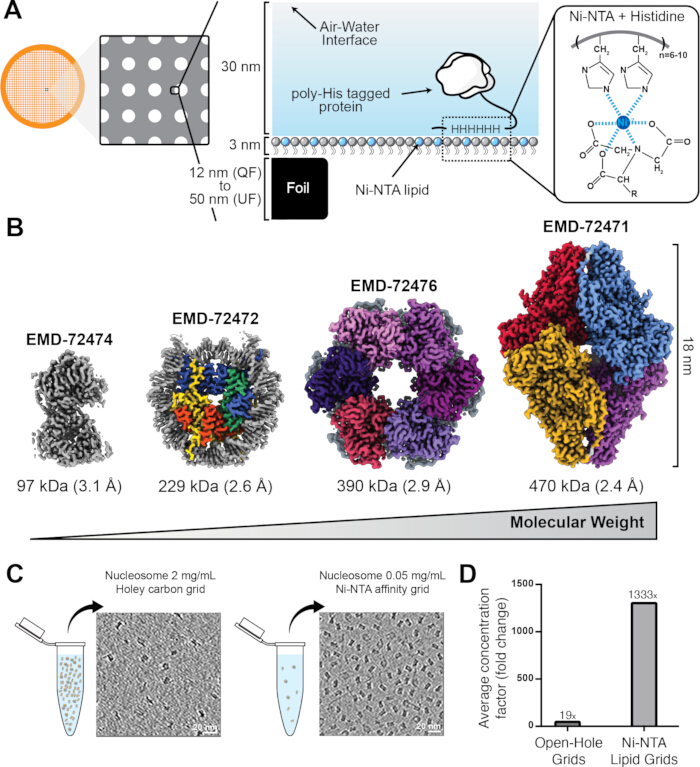
図1:Ni-NTA脂質親和グリッド設計の概要。 (A) 20%Ni-NTA脂質クライオグリッドの回路図。左側にはクライオグリッドが示されており、脂質単層の断面図が炭素膜、脂質単層、ガラス氷、付着粒子の寸法を示しています(中央)。右図には、ヒスチジン側鎖とNi-NTA脂質との相互作用が示されています。(B) 脂質親和グリッドを用いて解かれたポリヒスチジンタグ付きタンパク質の例。地図は互いにスケールで描かれ、分子量、サイズ、解像度、EMDB登録番号が示されます。(C) 非脂質クライオグリッド(右)およびNi-NTA脂質親和性クライオグリッド(左)で0.05 mg/mLで調製したポリヒスチジンタグ付きヌクレオソームの代表的な断層撮影スライス。(D) 非脂質クライオグリッドの平均濃度係数とNi-NTA脂質親和性クライオグリッドの比較。脂質膜がポリヒスチジンタグ付きタンパク質を空気-水界面(AWI)から遠ざける能力を示す。この図の一部は、Skrajnaら17 の図1A、Bおよび2A、Bからエルゼビアの許可を得て取り入れられています。 この図の拡大版はこちらをクリックしてご覧ください。
プロトコル
この研究には人間参加者、臨床データ、生きた動物は含まれていません。試薬および使用機器は 材料表に記載されています。
注: DOCCは18:1(Δ9-シス)PCを指します。Ni-NTA脂質は18:1のDGS-NTA(Ni)を指します。低塩緩衝剤とは、10 mM HEPES(pH 7.4)で50 mM NaClを含みます。希釈バッファーとは、20 mM HEPES(pH 7.4)で150 mM NaClを含みます。
1. 再利用可能なガラス器具の洗浄(~30分)
- 小さなペトリ皿を2つ、小さなペトリ皿の蓋を2つ、栓付きの25mLのボリュームフラスコ1つ、栓付きの1mLのボリュームフラスコを1つ用意してください。品物はシンクの近くに置いてください。
- 陰イオン界面活性剤粉末を11.4Lのプラスチック容器の温かい水道水に溶かします。
- ガラス器具を界面活性剤溶液に優しく浸します。
- ニトリル手袋を着用しながら、ラボ用ブラシでアクセス可能なガラス製品の表面をすべてこすり落としてください。超純水でしっかりすすぐ。
- 残った水は、キッチンペーパーで優しく叩いて拭き取ります。
- ヘアドライヤーでガラス器具を乾燥させ、目に見える湿気が残らなくなるまで拭きましょう。
注意:洗浄したガラス製品は清潔でほこりのない環境で保管してください。
2. 脂質を室温に平衡させる(1〜4時間)
注: 脂質ストックが以前に準備されていた場合は、このセクションは飛ばしてください。
- 25mgのDOC粉末の密封アンプル1個と、Ni-NTA脂質粉末1個の密封アンプルを化学煙幕に入れます。
- 脂質を室温に少なくとも1時間平衡させます。
3. 溶剤洗浄ステーションの設置(~10分)
注意:クロロホルムは中枢神経系抑制剤および皮膚、目、呼吸器の刺激物質として作用する危険で揮発性のある液体です。化学煙幕の中で100μL以上のクロロホルムを使用するすべての手順を、手袋、白衣、眼を保護するための適切な個人用防護具(PPE)を着用しながら実施してください。汚染されたニトリル手袋は、曝露から1分以内に外して廃棄してください。クロロホルムはニトリルに急速に浸透します。クロロホルム廃棄物を他の化学廃棄物と混同しないでください。
- 99.8%クロロホルム、蓋付きクロロホルム廃棄ボトル1本、99.5%エタノール、蓋付きエタノール廃棄ボトル1本、シャープス容器1個、小さなペトリ皿2個、小さなペトリ皿カバー2個、グレード1のろ紙を入れた大きなペトリ皿1つ、1〜2cm以上の 自己封入フィルム3枚以上、そしてペーパータオルを集めます。すべての材料を化学煙フード内に配置します(図2)。
- ペトリ皿を20〜30mLのクロロホルムですすぎます。すすぎは適切な廃棄物ボトルに捨ててください。エタノールで繰り返します。食器を自然乾燥させてください。
- 小さなペトリ皿の一つにクロロホルムを、もう一つにエタノールを入れます。蒸発を最小限に抑えるために両方の皿を蓋をしてください。
- 実験中は特にクロロホルムが汚染物質で目に見えて濁った場合は、ペトリ皿を補充してください。
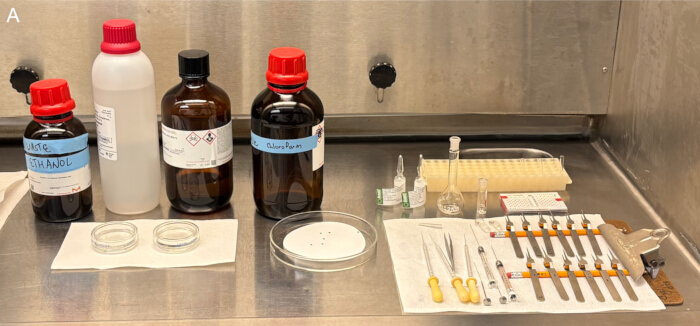
図2:脂質混合物の調製用ツールや試薬を収めた化学煙幕。 溶剤洗浄ステーションと洗浄済み工具、ガラス製品、TEMグリッドの画像。ボトルは左から右へ:エタノール廃棄物、エタノール、クロロホルム、クロロホルム廃棄物。ペトリ皿は左から右へ:エタノール、クロロホルム、TEMグリッドをフィルターペーパーに貼っています。その他のアイテムは、左から右、上から下へと、チューブラック内の培養チューブ、脂質アンプル、ストッパー付きのボリュームフラスコ、保存TEMグリッド、バルブ付きのガラスピペット、細かいピンセット、ガラス注射器、スペーサー(鉛筆のスタブ)を挿入したアンチカピラリーピンセットなどがあります。 この図の拡大版はこちらをクリックしてご覧ください。
4. 洗浄工具、ガラス製品、溶剤を含むTEMグリッド(~20分)
- 細かいピンセット1組、自己閉じ式の抗毛細血管ピンセット12組、ガラスピペット3本、25μLガラス注射器1本、2.5μLガラス注射器1本、ガラス培養チューブ3本(チューブラック)、25mLのストッパー付きボリュームフラスコ1つ、ストッパー付き1mLボリュームフラスコ1個、フェノールキャップ付き3.7mLねじガラスバイアル20〜25個、 そして12基の金メッシュ穴付き炭素TEMグリッドがあります。材料は化学用煙フード内の溶剤洗浄ステーションの近くに置いてください。
注意:使用しないときは、ペンシルスタブのようなスペーサーを各ペアに挿入し、先端の変形やずれを防ぎましょう。曲がったピンセットは捨てる。 - ピンセットの先端をクロロホルムに何度も浸して洗浄してください。エタノールで繰り返します。自然乾燥。
- ガラスピペットは、クロロホルムを何度も吸引して投与して洗浄してください。エタノールで繰り返します。自然乾燥。
- 注射器を吸引してクロロホルムを投与して洗浄し、プランジャーがスムーズに動くまで続けてください。エタノールで繰り返します。プランジャーを注射器のバレルから外して自然乾燥させます。
- 培養チューブはガラスピペットでクロロホルムを何度も追加・除去して洗浄してください。エタノールで繰り返します。チューブを逆さまにしてペーパータオルで軽く叩いて残留液を取り除きます。自然乾燥。
- 液体フラスコはガラスピペットでクロロホルムを加え、栓を塞いで内側を優しくかき混ぜて洗い流します。溶剤を廃棄物ボトルに捨てます。エタノールで繰り返します。フラスコは栓を外して自然乾燥させてください。
- ガラスピペットでクロロホルムを加え、キャップを閉めて内側を優しくすすぐためにバイアルを洗浄します。溶剤は捨ててください。エタノールで繰り返します。バイアルはキャップを開けずに自然乾燥させてください。
- 強化された外縁を細かいピンセットで掴み、カーボンフィルムの損傷を防ぎながらTEMグリッドを清掃してください。グリッドをクロロホルムに垂直に3回浸し、次にエタノールに3回浸します。
- TEMグリッドをカーボン面を上にしてフィルター紙に置き、自然乾燥させます。
5. キャストバッファーの冷却(>20分)
- 氷の上に少なくとも50mLの低塩緩衝液を置きます。
- バッファーを少なくとも20分間冷やしてください。
6. DOPCおよびNi-NTA脂質の別個1 mg/mLクロロホルムストック溶液の製備(~20分)
注:脂質ストックが事前に準備されている場合は、 セクション8「80% DOPC/20% Ni-NTA脂質混合物の準備」に飛ばしてください。
- DOPCおよびNi-NTA脂質粉末が室温に平衡されていることを確認してください。
注意: カミソリや割れたガラスは鋭い危険です。カミソリの使用やガラスアンプルを割る際は注意してください。 - DOTCパウダーの視認性を高めるために、アンプルのラベルをカミソリで切り取り剥がして剥がします。Ni-NTA脂質アンプルについても同じことを繰り返します。
- 両手でシャープス容器を扱いながら、慎重に25mgのDOTC入りアンプルを割って開けます。アンプルのネックはシャープス容器に入れて捨てます。アンプル本体をクロロホルム皿の近くに置きます。1mgのNi-NTA脂質アンプルも同じように繰り返します。
- 手袋や作業台のガラス片を慎重にシャープス容器に刷り込みます。損傷した手袋はすぐに交換してください。
- クロロホルム用にガラスピペットを1つ、DOPC(DOPC)用に1つ、Ni-NTA脂質用に1つラベルを付けます。
- 溶剤で洗浄した小さなペトリ皿にクロロホルムを入れます。
- DOPCピペットを使って2〜5 mLのクロロホルムをDOTCアンプルに移します。液体を吸引し、底と側面の脂質が完全に溶けるまで滴出します。
- DOTC溶液をDOTCピペットを使って25 mLのボリュームフラスコに移します。クロロホルムピペットを使ってフラスコを最終体積25mLまで下げます。
- DOTCアンプルはシャープス容器に入れて捨てろ。
- クロロホルムピペットを使って1 mLの体積フラスコに1 mL未満のクロロホルムを移します。
- Ni-NTA脂質ピペットを使って、1mLの体積フラスコからNi-NTA脂質アンプルにクロロホルムを移します。液体を吸引し、底と側面の脂質が完全に溶けるまで滴出します。
- Ni-NTA脂質溶液をNi-NTA脂質ピペットを使って1 mLの体積フラスコに移します。クロロホルムピペットを使ってフラスコを最終体積1mLにし、クロロホルムを塗ります。
- Ni-NTA脂質アンプルはシャープス容器に入れて捨てます。
7. 長期保存用の小さな脂質アリコートの準備(~15分)
- DOTCピペットを使って、1〜2mLのDOTCストックを複数のガラスバイアルに分けます。瓶にキャップとラベルを貼る。
- Ni-NTA脂質ピペットを使って、Ni-NTA脂質ストックを0.2〜0.5 mLを複数のガラスバイアルに分けて抽出します。瓶にキャップとラベルを貼る。
注意: 液体窒素(LN2)は、最初は短時間のライデンフロスト効果を引き起こすクライオジェンであり、その後激しい痛み、しびれ、水ぶくれ、凍傷を引き起こすことがあります。損傷の重症度は曝露時間が長くなるほど増加し、1度熱傷から4度熱傷に1分以内に進行することがあります。LN2で冷却された物体も同様の損傷を引き起こすことがあります。LN2でクライオ試料を扱う際は熱伝導に注意してください。飛び散りを防ぐためにフェイスシールドを着用しましょう。クライオ保護手袋を着用していても、手をLN2に浸すことは避けてください。閉じ込められたLN2は皮膚に残る可能性があるためです。凝縮した大気中の水蒸気をLN2蒸気と混同しないでください。LN2は目に見えない無臭の気体窒息剤に移行すると約700×の体積が膨張します。すべてのLN2タンクとデュワーは適切に排気され、圧力の蓄積を防ぎましょう。LN2は換気の良い場所でのみ使用し、未使用のLN2は化学煙幕で蒸発させます。 - 小さなクライオジェンデュワーにLN2を入れます。
- 1つのアリコートバイアルのキャップを外し、窒素蒸気をバイアルに注ぎ込み、キャップを再度してセルフシールフィルムで密封します。すべての別状バイアルについてこれを繰り返します。
注意:脂質アリクォート在庫は−20°Cの温度で最大3か月間保存してください。
8. 80% DOPC/20% Ni-NTA 脂質混合物の準備(~15分)
- DOPCおよびNi-NTA脂質ストックのアリクォートが室温に平衡されていることを確認してください。
- DOPC用に1本、Ni-NTA脂質用に1本、脂質混合物用に1本のガラス培養チューブをラベル付けします。
- DOTCピペットを使って50〜100μL(2〜3滴)のDOTCストックをDOTC培養チューブに移します。チューブを自己封閉フィルムで密封してください。
- Ni-NTA脂質ピペットを使い、20〜50μL(1〜2滴)のNi-NTA脂質ストックをNi-NTA脂質培養チューブに移します。チューブを自己封閉フィルムで密封してください。
- 25μLの注射器を使って、20μLのDOCアリコートを注射器のバレルに吸い込みます。樽に気泡がないか確認し、必要に応じてサンプルを再度採取してください。アリコートを脂質混合物のチューブに注入します。これを1回繰り返し、合計40μLの容量になります。
- 注射器をクロロホルムで洗浄し、その後エタノールを塗ります。
- 注射器を使って10μLのNi-NTA脂質アリコートを抽出します。樽に気泡がないか確認し、必要に応じてサンプルを再度採取してください。アリコートを脂質混合物チューブに分散し、最終的な総体積を50μLにします。
- 脂質を何度も吸引して混ぜて調剤します。チューブを自己封閉フィルムで密封してください。
- 注射器をクロロホルムで洗浄し、その後エタノールを塗ります。自然乾燥。
9. 脂質単一層のキャストとTEMグリッドへの転移(~10分)
- 低塩バッファーが冷やされていることを確認してください。
- 小さなLEDランプ1つ、冷えた低塩バッファー、蓋付きのバッファー廃棄ボトル1つ、試薬エタノール、エタノール廃棄ボトル1つ、スポイト付きのひまし油1本、脂質混合物、小さなペトリ皿1個、2.5μL注射器1本、12対の抗毛細血管ピンセット、12個のTEMグリッド、そして低糸くず組織を集めます。材料をよく照らされた黒い作業台に並べます(図3)。
- 各アンチキャピラリーピンセットの平らなアームをTEMグリッドのカーボン側に向けます。グリッドを補強された外縁に沿ってクランプで固定します。これをすべてのグリッドで繰り返します。
- 小さなペトリ皿を冷やした低塩分バッファーでいっぱいにします(図4A)。バッファー面の中心にひまし油を1滴置きます(図4B、 4C)。
注意:脂質単分子層が時間とともにキャスターオイルの中心から徐々に離れ、移動効率が低下するため、以下の工程を迅速に進めてください。温度の変動や振動がこの過程を加速させます。 - 2.5 μLの注射器を使って1 μLの脂質混合物を抽出します。注射器の針先をひまし油の中心に下ろします。脂質混合物を表面のすぐ上、針の斜面から垂らす液滴として分散させ、その滴をキャスター油に優しく触れさせます(図4D)。
- LEDランプを使って、直径2〜3cmの平らな脂質円が形成され、その周囲にひまし油の輪が形成されていることを確認します(図4E)。この形態が見られない場合は、バッファーを廃棄し、試薬エタノールで皿をすいで、低繊維組織で乾燥させ、低塩分バッファー、キャスター油、脂質混合物を再塗布して鋳造皿をリセットします。
注意:過剰なキャスターオイルは脂質単層の形成を妨げますが、不足すると単層を保持できません。脂質流動性は温度に依存します。バッファーが冷すぎると脂質は単一層に広がりません。バッファーが温かすぎると、脂質とキャスター油が皿の縁に向かって移動して崩壊します。最適な脂質拡散を実現するために、冷えたバッファーを室温のペトリ皿に注ぎます。グリッド転送のたびにキャスティングディッシュを必要に応じてリセットしてください。新しいバッファーを加える前に、キャスティング皿に油が完全に付いていないことを確認してください。 - 脂質単分子層をTEMグリッドに移すには、クランプされたTEMグリッドを脂質の鋳造物の中心に下げ、炭素側を下に向けて配置します。グリッドを浸したり解放したりせずに、脂質単分子層に炭素全体を優しく触れます(図4F)。
- 脂質グリッドを検査し、液体が完全に覆われ、ひマシ油が混ざっているか確認してください(図5)。油分の多いグリッドは捨てましょう。
- すべてのTEMグリッドでこの転送手順を繰り返します。
注意:クランプされた脂質グリッドは5〜10分以内に乾燥することがあります。脂質グリッドは再水潤の前に一晩ベンチトップにクランプされたままになることがあります。あるいは、乾燥した脂質グリッドをグリッドボックスに入れ、室温の乾燥器で最大1週間保存した後、再照射と再水和を行うこともあります。
重要な点: 2時間以内に急凍が起こる場合のみ進行してください。そうでなければ、残りのステップを遅らせてください。
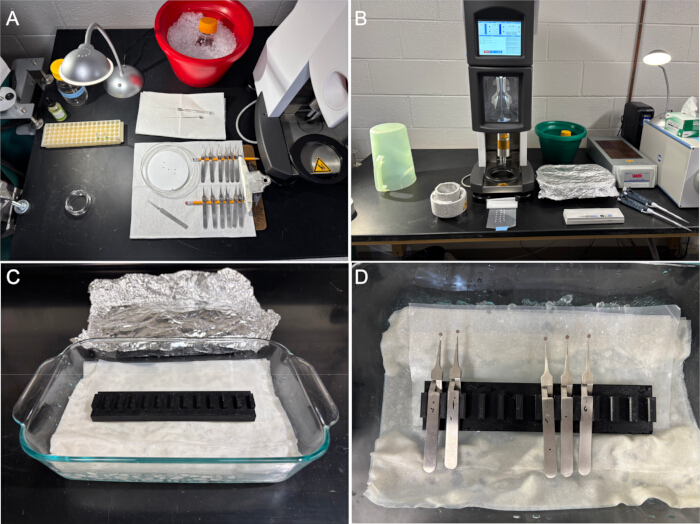
図3:脂質単分子層の鋳造およびプランジ冷凍のためのベンチセットアップ。 (A)左から右、上から下へ示されているアイテムには、キャスターオイルのスポイドボトル、バッファー廃棄物ボトル、LEDランプ、氷に冷えた低塩バッファー、脂質アリコートと脂質混合物を収めたチューブラック、2.5μLのガラス注射器、空のペトリ皿、フィルターペーパーにTEMグリッドを入れたペトリ皿、細かいピンセット、スペッサーを挿入したアンチキャピラリーピンセットが含まれます。(B)展示品には、冷却された加湿されたクライオプランジャー、組み立てられたクライオプランジャーポット、希釈バッファーとサンプルを入ったアイスバケツ、ホイルで覆われた作業台上の湿度チャンバー、希釈バッファー滴のラインが入った密閉セルフシールフィルム、クライオプランジャーピンセット、マイクロピペットが含まれます。(C)氷、濡れたペーパータオル、セルフシールフィルム、ベンチトップ版ピンセットホルダーを収納したベンチトップ湿度チャンバー。(D) ベンチトップの湿度チャンバー内で抗毛細血管ピンセットで固定された脂質グリッド。 この図の拡大版はこちらをクリックしてご覧ください。
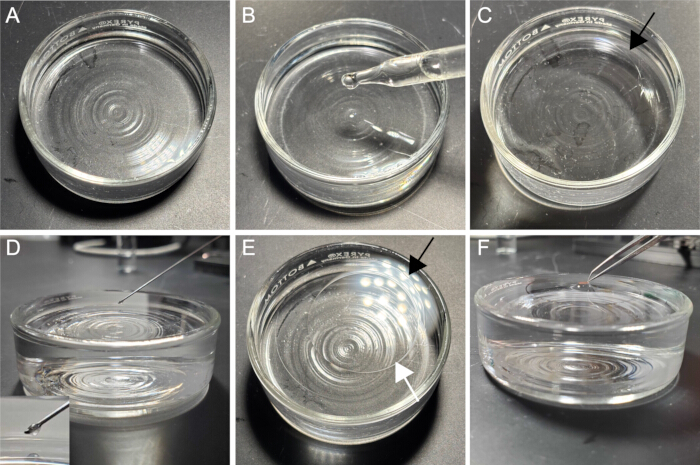
図4:脂質単分子層を鋳造し、それをTEMグリッドに転移させる過程。 (A) 低塩緩衝材を詰めたキャスティング皿。(B)キャスターオイル1滴を鋳造皿に投与すること。(C) 緩衝面に浮かぶひまし油の円;黒い矢印はひまし油の境界を示しています。(D)シリンジ針はキャスターオイルの中心を中心に置き、ベベルは下向き;針先から1μLの脂質混合物の滴を懸垂させました。(E) ひまし油の輪内に塗布された脂質混合物;黒い矢印はひまし油境界を示し、白い矢印は脂質単一層境界を示しています。(F)脂質単分子層がTEMグリッドの炭素側に移移すること。 この図の拡大版はこちらをクリックしてご覧ください。
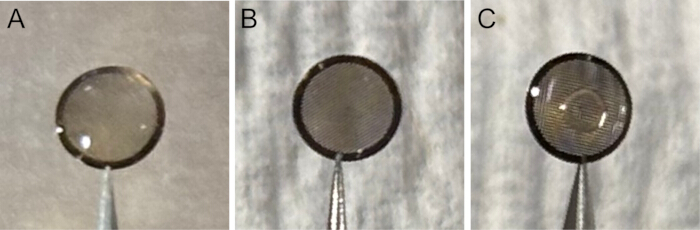
図5:脂質単分子層移動後のTEMグリッドの例。 (A) グリッド表面全体にバッファーが分散した形質の成功した脂質移動。(B)1時間の自然乾燥後の脂質移動が成功。(C)キャスター油に汚染された脂質移動がグリッド中央に確認。 この図の拡大版はこちらをクリックしてご覧ください。
10. 4°C、湿度100%(>1時間)でクライオプランジャーでブロットペーパーを培養
- クライオプランジャーの湿度チャンバーを4°C、湿度100%に設定します。
- 吸い取りパッドにブロットペーパーを貼り付けます。ブロットペーパーは高湿度で少なくとも1時間孵化してください。
11. 希釈バッファーの冷却(~20分)
- 氷の上に少なくとも20mLの希釈バッファーを置きます。
- バッファーを少なくとも20分間冷やしてください。
12. 脂質グリッド上の希釈バッファーの培養(>15分)
- ベーキング皿1つ、3Dプリントされたピンセットホルダーのバージョン1つ(補足ファイル1–3)、幅10cmの自己封入フィルム25〜35cm、幅30.4cmのアルミホイル35〜45cm、氷、ペーパータオルを集めます。材料をクライオプランジャーの近くに置きます(図3)。
- ベーキング皿をクライオプランジャーの隣に縦方向に配置します。皿の半分まで氷を入れ、その後ペーパータオルで覆います。ペーパータオルを水道水で軽く湿らせます。
- 自己封入フィルムの帯を、ベーキング皿の反対側の端に縦方向に置き、濡れたペーパータオルの上に直接置きます。
- 3Dプリントされたピンセットホルダーをベーキング皿の中央に縦方向に配置し、濡れたペーパータオルとセルフシールフィルムに直接当てます。
- ベーキング皿をアルミホイルで覆います(図3)。
- 実験中は溶けた氷を交換してください。
- クランプされた脂質グリッドを自己封閉フィルムの上に置き、脂質面は上向きにします(図3)。
注: 作業台上の湿度チャンバーを動かしたり、ピペットチップで脂質グリッドに触れたりすると、グリッドが外れる恐れがあるため避けてください。グリッドが損傷していなければ、自己封閉フィルムに落ちたグリッドを回収してください。 - 各脂質面に2μLの希釈バッファーを塗布します。蒸発を最小限に抑えるためにチャンバーをホイルで覆います。
- グリッド上に1μL未満の液体が残っている場合は、さらに2μLの希釈バッファーを塗布して各脂質グリッドの水和を維持します。
- 冷却された台上湿度チャンバーで、水和した脂質グリッドを少なくとも15分間均等に保ちます。
13. サンプルを脂質グリッド上で培養(>15分)
- 脂質グリッドが希釈バッファーで少なくとも15分間連続的に水和されていることを確認してください。
- ストックの希釈バッファーが完全に冷却されていることを確認してください。
- 各水和脂質グリッドに3μLのポリヒスチジンタグ付きサンプルを塗布します。蒸発を最小限に抑えるためにチャンバーをホイルで覆います。
- グリッド上の液体が2μL未満の時点で、さらに2μLの希釈バッファーを散布して各脂質グリッドの水和を維持します。
- グリッドを少なくとも15分間孵化させてください。
14. クライオプランジャーポットの準備(>15分)
- 真鍮カップの間接冷却用スピンドルを含むクライオプランジャーポットを組み立てます。
- クライオグリッドボックスにラベルを貼り、クライオプランジャーのポットに入れてください。
- クライオプランジャーのポットにLN2を入れます。氷の汚染を最小限に抑えるために鍋を覆いましょう。
- LN2レベルをクライオグリッドボックスより上に保つために、定期的に追加のLN2を加えます。
- 金属部品とクライオグリッドボックスをLN2温度まで少なくとも10分間冷やしてください。
注意:液体プロパンとエタンは非常に可燃性の高い低温物質で、LN2に似た損傷を引き起こしますが、目立ったライデンフロスト効果はありません。その結果、接触は即座に持続的な怪我を引き起こす可能性があります。取り扱い中の水しぶきは避けてください。プロパンエタンがLN2を汚染した場合は、液体プロパンやエタンと同様に高度な注意をもって取り扱ってください。使用後は、クライオプランジャーポットを化学煙幕フードに入れて、クライオジェンが安全に蒸発できるようにします。 - 真鍮のカップに60:40の液体プロパン・エタン混合液を入れます。
- プロパン-エタン混合物をLN2温度に少なくとも5分間平衡させます。
15. 脂質グリッドの急降下凍結(~1時間)
- ブロットペーパーが4°C、湿度100%で少なくとも1時間平衡状態にあることを確認してください。
- 脂質グリッドはポリヒスチジン標識サンプルと少なくとも15分間培養されていることを確認してください。
- プロパン・エタン温度が−190°C未満であることを確認し、スピンドルを取り外します。
- 50μLの希釈バッファーを3滴、10cm2の自己封閉フィルムに一線に注ぎます(図3)。
- クランプされた脂質グリッドを洗浄するには、希釈バッファー滴ごとに脂質面に順番に触れ、最後の滴でグリッドを解放します。
- クライオプランジャーピンセットを使って浮遊する脂質グリッドを拾い上げてください。グリッドをクライオプランジャーに取り付けろ。
- 使用済みのバッファードロップを綿毛のない組織で吸収し、捨てます。
- プロパン・エタン混合物に凍結する前に、脂質グリッドに以下のクライオプランジャー設定を適用します:待機時間0秒;総染み1;ブロット力は−10;ブロットタイム、4S;排水時間は0秒です。
- プロパン・エタンカップからクライオグリッドをクライオグリッドボックス内の空いているスロットに移します。
- すべての脂質グリッドに対して同じプランジ凍結手順を繰り返します。
結果
このプロトコルの期待される結果を示すために、一連の実験が実施されました。20%のNi-NTA脂質モノレイヤーを含むホーリーカーボンR1.2/1.3 TEMグリッドを試料とともにプランジ冷凍し、200 keVのクライオTEMで画像化しました。各条件に対して、3〜9個のグリッドマスが画像化されました。氷の厚さは個々のグリッドやグリッドの正方形ごとに異なり、最適な領域には薄いガラス質氷とよく埋め込まれた粒子が含まれており、これは高速フーリエ変換(FFT)31における特徴的なトン環によって検証されました。
最初の実験では、精製されたポリヒスチジン標識ブ ドウ球菌 グルタミン酸合成酵素(saGS)を用いて、20% Ni-NTA脂質単層親和グリッドの最適な調製と期待される性能を示しました(図6)。脂質単分子層は金メッシュのTEMグリッドに転移されました。脂質グリッドは乾燥させられ、1週間乾燥器で保存されてから水分補給されました。完全な再水和後、0.1 mg/mLのsaGSをグリッド上で15〜30分間インキュベートし、粒子結合を可能にしました。saGS粒子は、1枚の顕微鏡写真あたり平均274粒子(N=7)で、脂質単分子層全体に均等に分布し、重なりはほとんどまたは全くありませんでした。
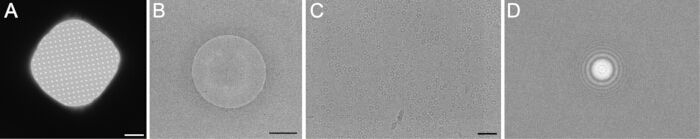
図6:20%Ni-NTA脂質親和グリッドの代表的なクライオTEM画像。 脂質単分子層はプロトコルに記載された通り1週間乾燥させ、低塩バッファーで再水和されました。代表的な画像は低倍率(A)、中間倍率(B)、高倍率(C)で収集され、対応するFFTは(D)に示されました。粒子は1マイクログラムあたり平均274個(N=7)で、薄いガラス質氷の層内でグリッド表面に均等に分散しています。スケールバー:10μm、500nm、50nm。 この図の拡大版はこちらをクリックしてご覧ください。
2つ目の実験では、粒子スタッキングを示すsaGSサンプルを用いて脂質グリッドがタンパク質凝集に与える影響を示しました(図7)。4つのクライオグリッド状態が検証されました:脂質なし銅メッシュグリッド上で1.0 mg/mLのsaGS、脂質なしの銅メッシュグリッドで0.1 mg/mLのsaGS、未乾燥脂質を含む金メッシュグリッドでの0.1 mg/mLのsaGS、そして脂質を1週間乾燥させてから再水和した金メッシュグリッドでの0.1 mg/mLのsaGSです。脂質グリッドは粒子密度が高く、同じタンパク質濃度で作成した非脂質グリッド(N=12)と比べて、1枚の顕微鏡写真あたり平均40または46個(N=12)でした。これらの発見は、未改変TEMグリッドに対して明確な濃度効果を示し、20%のNi-NTA脂質単分子層が保持されたことを裏付けました。粒子の積み重ねは依然として観察されていましたが、脂質グリッド上の粒子は重なりが最小限で、類似した焦点面内に留まりました。対照的に、非脂質グリッド上の粒子は焦点深度が大きく異なり、凝集した粒子は1 mg/mLという高い濃度で観察されました。
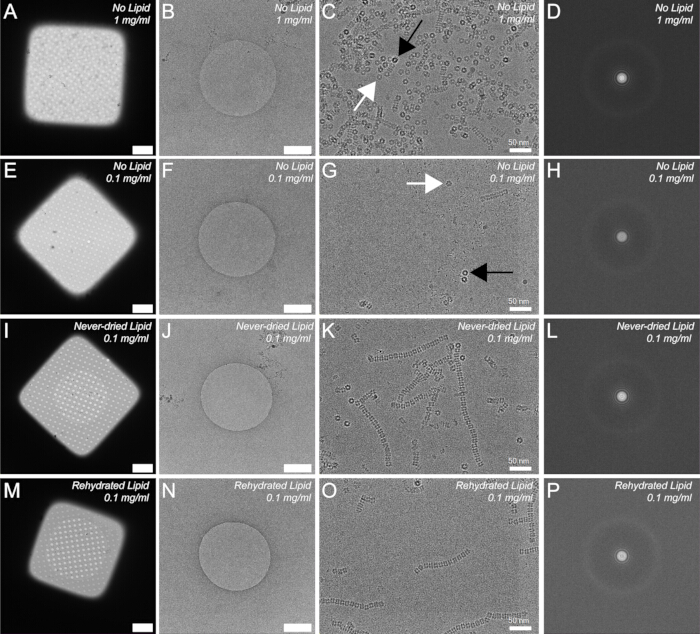
図7:20% Ni-NTA脂質および非脂質グリッド上のポリヒスチジン標識saGSのCryo-TEM画像。 (A–D)非脂質グリッドはsaGSで1.0 mg/mLで調製され、低倍率(A)、中間倍率(B)、高倍率(C)で示され、対応するFFT(D)が示されています。(E–H)非脂質グリッドをsaGSで0.1 mg/mLで調製。(I–L)乾燥しない脂質グリッドをsaGSで0.1 mg/mLで調製。
(男性–男性)saGSで0.1 mg/mLの再水和脂質グリッドを準備。非脂質グリッド上の粒子密度は対応する脂質親和性グリッドよりも低く、1枚の顕微鏡写真あたり平均2粒、46粒と47粒(N=12)でした。黒い矢印は、粒子が大きくピントを失っていることを示します。白い矢印は粒子がピントに近いことを示します。スケールバー:10μm、500nm、50nm。 この図の拡大版はこちらをクリックしてご覧ください。
3回目の実験では、脂質グリッドに N-ドデシル-β-D-マルトシド(DDM)曝露しました。サンプルとしては0.1 mg/mLの精製saGSを使用しました。洗剤は脂質単一層を破壊しました。バッファー内の0.05%DDMを含む脂質クライオグリッド(図8)では、脂質単分子層の隙間、グリッド表面の脂質ミセル、制御条件下に比べて粒子密度の低下が見られました。
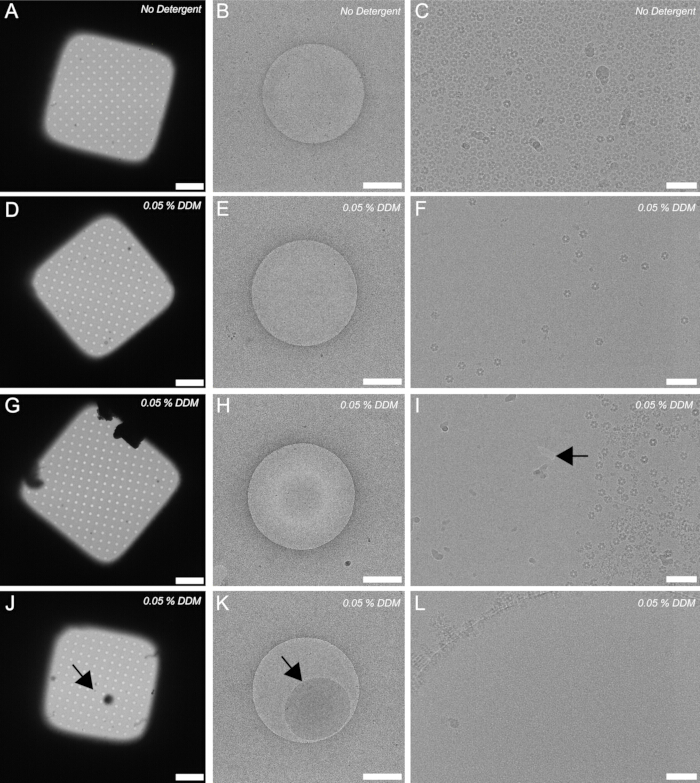
図8:0.05% N-ドデシル-β-D-マルトシド(DDM)に曝露された20%Ni-NTA脂質グリッドの代表画像。 クライオグリッドは低倍率、中倍率、高倍率で撮影されました。(A–C)サンプル希釈バッファーで再水和された20% Ni-NTA脂質親和グリッドの画像。(民主党–自由党)20% Ni-NTA脂質親和グリッドを、0.05% DDMを含む希釈バッファーで再水和した画像。saGSの粒子密度は、洗剤処理済みTEMグリッドでは低くなっていました。パネルIの矢印は脂質単層に穴があることを示しています。パネルJとKの矢印は同じ脂質ミセルを示しています。スケールバー:10μm、500nm、50nm。 この図の拡大版はこちらをクリックしてご覧ください。
氷の厚さはグリッド間でも個々のグリッド内でも異なっていました。場合によっては、氷が薄すぎたり、グリッドマスの一部に欠けていたり(図9A)、分布が不均一だったり(図9B)、または画像撮影に過度に厚かった(図9C)こともありました。一部の地域では、氷の厚さがタンパク質複合体の直径よりも小さいこともありました。乾燥した地域や非常に薄い氷(粒子径より薄いと定義される)を含む領域は、データ収集時に避けるべきです。なぜなら、これらの領域のタンパク質が変性している可能性が高いからです。このプロトコルの使用経験に基づき、約25%〜50%のクライオグリッドには、複数のグリッドスクエアにわたるSPAデータ収集に適した十分に薄い氷が含まれていると予想されています。氷の厚さは、ブロッティング時間を調整したり、急凍前にグリッド上の最終バッファー容積を修正することで最適化できます。
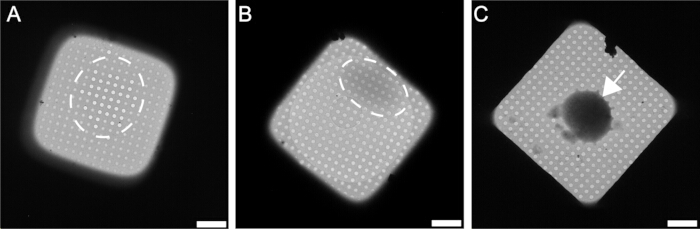
図9:最適でないNi-NTA親和グリッドの例。 20%Ni-NTA親和性の低いクライオグリッドの代表的なクライオTEM顕微鏡写真。(A) グリッドの中央に脂質膜が存在せず、空洞を囲む白い破線の円で示される。(B) 不均一な氷を含むグリッドマスで、白い破線の円で示される領域の近くの氷が厚い。(C) 画像化には厚すぎる氷を含むグリッドマス(矢印で示されています)。スケールバー:10μm。 この図の拡大版はこちらをクリックしてください。
正しく調製されれば、親和グリッドは主に単層の粒子が薄膜に吸着された脂質単分子層を含みます。粒子密度は、同様の試料濃度で調製された非脂質グリッドで観察されるものを超えると予想されます。脂質単分子層をTEMグリッドに移すことが失敗すると、空洞(図10A)や脂質膜を欠き粒子をほとんどまたは全く含まないガラス質氷を含むクライオグリッドが生成されます(図10B、C)。
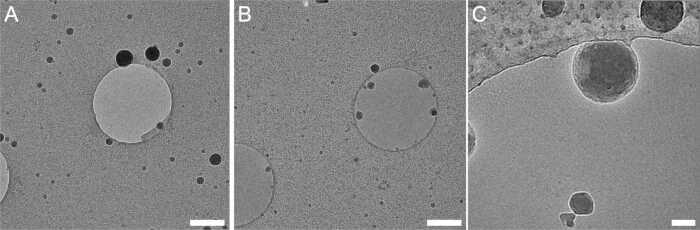
図10:脂質単一層を欠くTEMグリッドの例。 脂質単分子層がTEMグリッド表面に失敗した移動を示すクライオTEM画像。ポリヒスチジンタグ付きのヒトヌクレオソームがカーボンフィルムに吸着されます。(A) 空洞を含むグリッド正方形の領域。(B) 同じグリッド内の異なる領域で、ガラス質の氷で満たされた穴があるが、可視粒子や脂質膜は存在しない。(C) 脂質膜を持たないが硝子状の氷を含む穴の高倍率画像;粒子は厚い炭素支持フィルムに見えます。 スケールバー:1μmおよび50nm。この図の拡大版はこちらをクリックしてご覧ください。
補足ファイル1:ピンセットホルダーの3Dプリント手順。 この補足ファイルには、脂質グリッドの水和およびサンプル培養中に使用するカスタムピンセットホルダーの3Dプリントに関する詳細な説明が含まれています。このファイルをダウンロードするには、こちらをクリックしてください。
補足ファイル2:3Dプリントのベンチトップピンセットホルダー用STLファイル。 この補足ファイルには、作業台上の湿度チャンバーで水和脂質グリッドを培養するのに使われるピンセットホルダーバージョンを3Dプリントするために必要なステレオリソグラフィー(STL)ファイルが含まれています(図3C、3D)。 このファイルをダウンロードするには、こちらをクリックしてください。
補足ファイル3:3Dプリントのクライオプランジャーピンセットホルダー用STLファイル。 この補足ファイルには、クライオプランジャー湿度チャンバーで水和脂質グリッドを培養するためのピンセットホルダーバージョンを3Dプリントするために必要なステレオリソグラフィー(STL)ファイルが含まれています。 このファイルをダウンロードするには、こちらをクリックしてください。
ディスカッション
本研究は、Ni-NTA脂質単核層親和グリッドの調製に関する詳細なステップバイステッププロトコルを示し、可溶性ポリヒスチジンタグ付きタンパク質複合体の通常のクライオEM構造決定におけるこのアプローチの重要な実用的考慮点と利点を強調します。プロトコルのいくつかのステップは技術的に難しく、特に初めてのユーザーにとってユーザーのミスが起こりやすいです。
脂質単分子層の修飾は約2時間以内に完了し、得られた脂質グリッドは乾燥して保存して後で使用できます。さらに2時間の時間とクライオプランジャーへのアクセスがあれば、その後クライオグリッドを準備できます。したがって、この方法は多利用施設や低温EM実験室に適しています。この手法を用いて、97〜470 kDaの範囲の可溶性タンパク質複合体の構造を、3 Å未満の分解能17で決定しました。Ni-NTA脂質単分子層への効率的な結合には、柔軟なリンカーを含むポリヒスチジンタグ成分が必要です。ヌクレオソームやグルタミン酸合成酵素など特定のサンプルで単一層に対するある程度の好ましい配向が観察されましたが、これらの配向は解像度を制限したり、最終的な再構築に伸縮アーティファクトをもたらしたりすることはありませんでした。Ni-NTA脂質単分子層とポリヒスチジン標識タンパク質との相互作用により、TEMグリッド表面での効率的な粒子捕獲が促進されます。したがって、比較的希薄な試料やRELIONやcryoSPARCなどの標準的なクライオEM処理パイプラインを用いて、追加の試料準備工程を経ずに構造解析を行うことができます。
再現性の高い結果を得るためには、TEMグリッドの慎重な取り扱いと脂質混合物の準備が不可欠です。脂質単分子層は、残留洗剤、油分、粉塵などの汚染物質に非常に敏感です。したがって、すべてのガラス製品の徹底的な洗浄が極めて重要です。使用直前にクロロホルムとエタノールで洗浄する前に、陰イオン界面活性剤で洗浄し、超純水で徹底的にすすぎ、徹底的に自然乾燥させることが強く推奨されます。
このプロトコルは、幅広い試料およびバッファ環境に対して反応性がないため、金メッシュのTEMグリッドを使用しています。異なるサンプルに対応するため、脂質鋳造、脂質グリッド再水和、サンプル培養、洗浄後のバッファーは必要に応じて変更可能です。グリセロールやその他の添加物を含むサンプルバッファーは、ガラス化前の洗浄工程で除去されることがあります。ジチオスレイトール(DTT)を含むバッファーは避けるべきです。なぜならDTTはニッケル32 を還元し、ポリヒスチジンタグタンパク質とNi-NTA脂質単分子層間の結合を妨げるからです。また、0.05%の N-ドデシル-β-D-マルトシド(DDM)が脂質単一層を破壊するため、洗剤の使用は推奨されません。また、膜-タンパク質構造研究に一般的に用いられる他の洗剤も同様の効果をもたらすと予想されています(図8D–L)。低濃度洗剤や低臨界ミセル濃度の洗剤が同様に単分子層の完全性を破壊するかは、まだ判明されていません。
プロトコルで最も技術的に難しい部分は、脂質単分子層をTEMグリッドに鋳造・移送することです。この工程は温度、振動、取り扱い技術に非常に敏感です。最適な結果は、室温(~22°C)で予冷バッファーを用いて脂質膜を鋳造することで得られました。振動は単分子層を不安定にするため、機械的な乱れは最小限に抑えるべきです。したがって、ペトリ皿は脂質鋳造後は固定されたままにしておくべきです。移動中、ひまし油と脂質単一層が緩衝面を徐々に移動し、脂質単一層ではなくひマシ油を移動させる可能性が高まります(図5C)。ペトリ皿の適切な充填とグリッドの向きの慎重な制御が、完全かつ均一な単分子層の移動を確保するために必要です。脂質膜をTEMグリッド表面に移さないと、疎水性グリッド面ができ、バッファーが炭素表面にビーディングします。
本研究では、両面ブロッティングを用いたクライオプランジャーのみが評価されました。しかし、手作業や片側ブロッティングなどの他のブロッティング法でも、脂質膜が損傷しなければ同等の結果が得られると期待されています。このプロトコルを適応させる際、脂質グリッドは標準的なTEMグリッドと同様に扱うべきであり、いくつかの重要な考慮点があります。血漿洗浄は避け、試料を塗布する前少なくとも15分間は脂質グリッドを継続的に水分補給した状態に保たれるべきです。サンプルは表面吸着を可能にするために脂質グリッド上で最低15分間キュベートし、グリッド表面の最終バッファー容積を正規化する前に少なくとも1滴の希釈バッファーで接触してください。サンプル培養期間中、Ni-NTA脂質単分子層の水和を維持することは極めて重要であり、蒸発は局所的な塩濃度を増加させ、タンパク質構造や複合体の組み立てを変化させる可能性があります。より長い潜伏時間(>30分)はグリッド上の粒子密度を増加させる可能性がありますが、長時間の潜伏は試料劣化の可能性とバランスを取るべきです。このプロトコルで記載されている60:40液体プロパン-エタン混合物は推奨されますが、必須ではありません。また、エタンカップ加熱システムを備えたクライオプランジャーと組み合わせて、実験全体を通じてクライオジェンを液体状態に保つために、代替のプロパン-エタン比率や純エタンの使用も可能です。最後に、粒子の分布は氷の厚さによって影響を受けます。場合によっては、特にグリッドの中心付近の薄い氷を含む領域から粒子が除外されることもあります。したがって、各ガラス化装置ごとにブロッティング条件を最適化する必要がある場合があります。全体として、Ni-NTA脂質単一層親和グリッドは、可溶性ポリヒスチジンタグ付きタンパク質複合体の構造決定において、堅牢で入手しやすい戦略を提供します。ここで説明するステップバイステップ手順を慎重に実装すれば、この手法は標準的なクライオEMワークフローに容易に統合できます。
謝辞
著者らは、これらの実験に使用されたバッファーを提供してくれたノースカロライナ大学チャペルヒル校のケイレブ・フィッシャー、ロブ・マッギンティ、ニコラス・ライト、ブレイク・フォーディス、ブライアン・ロスに感謝しています。UNCチャペルヒル冷凍EMコア施設およびUNCコア施設提言委員会は、技術的および財政的支援に感謝しています。カリフォルニア大学サンタクルーズ校化学・生化学科(RRID: SCR_021755)の生体分子クライオ電子顕微鏡施設は、技術支援の対象として認められています。この研究は国立衛生研究所の国立がん研究所の助成金番号P30CA016086およびリチャード・W・ベイカー氏に授与された国立衛生研究所助成金R35GM150960支援を受けました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1 mL volumetric flask with stopper | Avantor | 10124-382 | VWR Volumetric Flask, clear glass, Class A, serialized, with penny-head glass stopper, 1 mL |
| 2.5 µL glass syringe | Hamilton | 7632-01 | 2.5 Microliter Syringe, removable needle (RN), no needle included |
| 3.7 mL threaded glass vial with phenolic cap | Fisher Scientific | 03338A | Fisherbrand Class B clear glass threaded vial with attached closure, 3.7 mL |
| 4-slot cryo-grid box | MiTeGen | 71166-10 | Cryo Grid Box Round With Lid |
| 11.4 L plastic tub | Sterilite 12 qt dishpan, multi-purpose plastic wash tub | ||
| 25 µL glass syringe | Hamilton | 80430 | 25 Microliter Syringe, removable needle (RN), includes 22s gauge, 52 mm curved beveled needle |
| 25 mL volumetric flask with stopper | Avantor | 10123-994 | VWR Volumetric Flask, clear glass, Class A, serialized, with penny-head glass stopper, 25 mL |
| 99.5% pure ethanol | Thermo Fisher Scientific | 615090040 | Ethanol, 99.5%, ACS reagent, absolute, 200 proof |
| 99.8% pure chloroform | Fisher Scientific | AA32614K2 | Chloroform, ACS, 99.8+% |
| Aluminum foil | Walmart | Aluminum foil, 30.4 cm width | |
| Anionic surfactant powder | Fisher Scientific | 50-997-492 | Electron Microscopy Sciences Alconox anionic powder detergent, 4 lb |
| Baking dish | Walmart | Pyrex 232-D 3-quart deep glass baking dish | |
| Blot paper | Ted Pella | 47000-100 | Standard Vitrobot filter paper, Ø55/20 mm, Grade 595 |
| Bottle of castor oil with dropper | Walmart | Organic castor oil with dropper, 1 fl oz | |
| Cryo-plunger | Thermo Fisher Scientific | 1151972 | FEI Vitrobot Mark IV |
| DOPC | Avanti Polar Lipids | 850375P-25mg | 18:1 (Δ9-Cis) PC (DOPC), 1,2-dioleoyl-sn-glycero-3-phosphocholine powder, 25 mg |
| Fine-tip tweezers | Ted Pella | 505 | DUMONT Biology Grade Tweezers, style 5, polished stainless steel |
| Glass culture tube | Fisher Scientific | 14958A | Fisherbrand disposable flint glass tube with plain end, 1 mL |
| Glass pipet | Fisher Scientific | 13-678-20A | Fisherbrand disposable borosilicate glass Pasteur pipet, 14.6 cm |
| Gold-mesh holey-carbon TEM grid | Quantifoil | N1-C14nAu30-01 | QUANTIFOIL R 1.2/1.3 Au 300 mesh |
| Grade 1 filter paper | Sigma-Aldrich | WHA1001150 | Whatman qualitative filter paper, Grade 1, 150 mm diameter |
| Large petri dish with cover | Fisher Scientific | 08747E | Corning PYREX reusable petri dish with cover, 150 mm diameter, 15 mm height |
| Low-lint tissues | Fisher Scientific | 06-666 | Kimtech Science Kimwipes delicate task wipers, 1-ply |
| Ni-NTA lipid | Avanti Polar Lipids | 790404P-5mg | 18:1 DGS-NTA(Ni), 1,2-dioleoyl-sn-glycero-3-[(N-(5-amino-1-carboxypentyl)iminodiacetic acid)succinyl] (nickel salt) |
| Pipet bulb | Fisher Scientific | S32325 | Fisherbrand rubber bulb, natural, 2 mL |
| Reagent ethanol | Sigma-Aldrich | 362808-1L | Reagent alcohol ≥89% (GC), contains 5% isopropyl alcohol and 5% methyl alcohol |
| Self-closing anti-capillary tweezers | Ted Pella | 510-5 | DUMONT anti-capillary reverse tweezers, Biology Grade, style 5ACN, stainless steel |
| Self-sealing film | Fisher Scientific | S47529 | Parafilm M wrapping film, 10 cm |
| Small petri dish with cover | Fisher Scientific | 08747A | Corning PYREX reusable petri dish with cover, 60 mm diameter, 15 mm height |
| Syringe needle | Hamilton | 7803-01 | 27 gauge small-hub removable needle (RN), beveled, 75 mm length, 45° angle |
参考文献
- Chan, L. M., et al. High-resolution single-particle imaging at 100–200 keV with the Gatan Alpine direct electron detector. J Struct Biol. 216 (3), 108108(2024).
- Efremov, R. G., Stroobants, A. Coma-corrected rapid single-particle cryo-EM data collection on the CRYO ARM 300. Acta Crystallogr D Struct Biol. 77 (Pt 5), 555-564 (2021).
- Frechin, L., et al. High-resolution cryo-EM performance comparison of two latest-generation cryo electron microscopes on the human ribosome. J Struct Biol. 215 (1), 107905(2023).
- Herzik, M. A. Jr, Wu, M., Lander, G. C. High-resolution structure determination of sub-100 kDa complexes using conventional cryo-EM. Nat Commun. 10 (1), 1032(2019).
- Karia, D., et al. Sub-3 Å resolution protein structure determination by single-particle cryo-EM at 100 keV. Structure. 33 (10), 1717-1727.e4 (2025).
- McMullan, G., et al. Structure determination by cryoEM at 100 keV. Proc Natl Acad Sci U S A. 120 (49), e2312905120(2023).
- Peng, R., et al. Characterizing the resolution and throughput of the Apollo direct electron detector. J Struct Biol X. 7, 100080(2023).
- D’Imprima, E., et al. Protein denaturation at the air-water interface and how to prevent it. eLife. 8, (2019).
- Noble, A. J., et al. Routine single-particle cryoEM sample and grid characterization by tomography. eLife. 7, (2018).
- Tan, Y. Z., et al. Addressing preferred specimen orientation in single-particle cryo-EM through tilting. Nat Methods. 14 (8), 793-796 (2017).
- Snijder, J., et al. Vitrification after multiple rounds of sample application and blotting improves particle density on cryo-electron microscopy grids. J Struct Biol. 198 (1), 38-42 (2017).
- Cianfrocco, M. A., Kellogg, E. H. What could go wrong? A practical guide to single-particle cryo-EM: From biochemistry to atomic models. J Chem Inf Model. 60 (5), 2458-2469 (2020).
- Cheng, H., et al. Dual-affinity graphene sheets for high-resolution cryo-electron microscopy. J Am Chem Soc. 145 (14), 8073-8081 (2023).
- Yu, G., Li, K., Jiang, W. Antibody-based affinity cryo-EM grid. Methods. 100, 16-24 (2016).
- Arimura, Y., Konishi, H. A., Funabiki, H. MagIC-Cryo-EM, structural determination on magnetic beads for scarce macromolecules in heterogeneous samples. eLife. 13, (2025).
- Zhao, Q., et al. An immobilized antibody-based affinity grid strategy for on-grid purification of target proteins enables high-resolution cryo-EM. Commun Biol. 7 (1), 715(2024).
- Skrajna, A., et al. Nickel-NTA lipid-monolayer affinity grids allow for high-resolution structure determination by cryo-EM. J Struct Biol. 217 (4), 108253(2025).
- Esfahani, B. G., et al. SPOT-RASTR—A cryo-EM specimen preparation technique that overcomes problems with preferred orientation and the air/water interface. PNAS Nexus. 3 (8), pgae284(2024).
- Cookis, T., et al. Streptavidin-affinity grid fabrication for cryo-electron microscopy sample preparation. J Vis Exp. (202), e66197(2023).
- Han, B. G., et al. Long shelf-life streptavidin support-films suitable for electron microscopy of biological macromolecules. J Struct Biol. 195 (2), 238-244 (2016).
- Song, J., et al. Structural basis for inactivation of PRC2 by G-quadruplex RNA. Science. 381 (6664), 1331-1337 (2023).
- Cookis, T., et al. Structural basis for the inhibition of PRC2 by active transcription histone posttranslational modifications. Nat Struct Mol Biol. 32 (2), 393-404 (2025).
- Gillies, J. P., et al. Structural basis for cytoplasmic dynein-1 regulation by Lis1. eLife. 11, (2022).
- Sauer, P. V., et al. Structural and quantum chemical basis for OCP-mediated quenching of phycobilisomes. Sci Adv. 10 (14), eadk7535(2024).
- Sauer, P. V., et al. Activation of automethylated PRC2 by dimerization on chromatin. Mol Cell. 84 (20), 3885-3898.e8 (2024).
- Ciapponi, M., et al. Structural basis of the histone ubiquitination read-write mechanism of RYBP-PRC1. Nat Struct Mol Biol. 31 (7), 1023-1027 (2024).
- Dominguez-Martin, M. A., et al. Structures of a phycobilisome in light-harvesting and photoprotected states. Nature. 609 (7928), 835-845 (2022).
- Marechal, N., Serrano, B. P., Zhang, X., Weitz, C. J. Formation of thyroid hormone revealed by a cryo-EM structure of native bovine thyroglobulin. Nat Commun. 13 (1), 2380(2022).
- Kasinath, V., et al. JARID2 and AEBP2 regulate PRC2 in the presence of H2AK119ub1 and other histone modifications. Science. 371 (6527), (2021).
- Ma, J., et al. Open architecture of archaea MCM and dsDNA complexes resolved using monodispersed streptavidin affinity CryoEM. Nat Commun. 15 (1), 10304(2024).
- Kim, L. Y., et al. Benchmarking cryo-EM single-particle analysis workflow. Front Mol Biosci. 5, 50(2018).
- Zhou, Z., Jin, J., Deng, X., Jia, Z. Protein purification via consecutive histidine-polyphosphate interaction. Protein Sci. 33 (6), e5021(2024).
再版と許可
この記事は公開されました
動画は近日公開