LC3免疫ブロット法は、オートファジーをモニタリングするために広く用いられている手法ですが、慎重な最適化が必要です。本プロトコルでは、KPC由来の膵癌細胞におけるLC3-IIの検出と定量を目的とした堅牢なアプローチについて、主要な技術的検討事項およびFijiを用いた密度解析の標準化されたワークフローを含めて説明します。
方法論記事
マウス由来膵癌細胞におけるオートファゴソーム動態をモニタリングするための、Microtubule-Associated Protein Light Chain 3のウェスタンブロット解析
この記事について
サマリー
要約
オートファジーは膵管腺癌(PDAC)において複雑な役割を担っており、腫瘍の進展、ストレス適応、および治療耐性に寄与しています。したがって、オートファゴソームのダイナミクスを正確に評価することは、癌生物学の研究において不可欠です。利用可能な手法の中で、微小管結合タンパク質軽鎖3(LC3)の免疫ブロット法は、細胞質形態(LC3-I)と脂質化されオートファゴソームに結合した形態(LC3-II)を区別することで、オートファゴソームのダイナミクスをモニタリングする方法として広く用いられています。しかし、LC3の分子量が低いことと、これら2つのアイソフォーム間の電気泳動移動度の差がわずかであることは、慎重な最適化を必要とする技術的な課題となります。本稿では、KPC由来のマウス膵癌細胞におけるLC3-IIレベルの半定量的なウェスタンブロット解析のための再現性のあるプロトコルを提示します。本手法では、LC3アイソフォームの確実な分離と検出を保証するために、細胞溶解、電気泳動、タンパク質転写、および抗体による検出の最適化された条件を組み込んでいます。さらに、Fiji (ImageJ) を用いたLC3-IIバンドのデンシトメトリー解析のための標準化されたワークフローを提供します。本手法の感度は、オートファジー誘導条件下(ゲムシタビン処理)およびオートファジーフラックス阻害条件下(VMP1ノックダウン)におけるLC3-IIレベルの上昇の検出を通じて実証されています。また、溶解バッファーの組成や抗体の特異性など、データの解釈に影響を与える重要な技術的パラメータとともに、一般的な実験上の落とし穴についても検討します。LC3の免疫ブロット単独ではオートファジーフラックスを完全に定義するには不十分ですが、補完的なアッセイと組み合わせることで、オートファジー活性をモニタリングするための堅牢で簡便なアプローチとなります。本プロトコルは他の実験的コンテキストにも適応可能であり、癌モデルにおけるオートファジーのメカニズム研究を促進します。
概要
マクロオートファジー(以下、オートファジーと呼ぶ)は、タンパク質や機能不全に陥ったオルガネラを含む細胞質物質を分解する、制御された分解経路である。オートファジーの特徴は、オートファゴソームとして知られる二重膜構造の形成であり、これにより細胞内の貨物が隔離され、その後、分解のためにリソソームへと運ばれる1,2,3。正常な細胞において、オートファジーはタンパク質やオルガネラの制御されたターンオーバーに寄与し、それによって酸化ストレスを制限し、腫瘍発生のリスクを低減させている。しかし、がん細胞において、このプロセスは高い代謝需要、栄養飢餓、および低酸素状態の下で生存を維持するために利用されることがある。過酷な微小環境への適応を促進することで、オートファジーは、治療によって誘発される細胞損傷を軽減することなどを通じて、化学療法耐性にも寄与している4,5。
膵臓がんは、米国におけるがん関連死亡原因の第3位にランクされています。膵臓がんの約90%は、膵管腺がん(PDAC)に分類されます。早期発見や治療法の進歩により患者の生存率が向上している他の多くのがんとは異なり、PDACは80%以上の症例で進行した段階で診断されます。この診断の遅れに、攻撃的な腫瘍生物学および顕著な治療抵抗性が加わることで、5年生存率は約11%6という結果になっています。
KPCマウスモデルは、膵臓特異的なオンコジェニックKrasの活性化と、CreリコンビナーゼによるTrp53の条件付き欠損に基づいた、膵管腺癌において最も広く利用されている遺伝子改変モデルの一つである。これらのマウスでは、膵上皮内腫瘍新生(PanIN)から浸潤癌へと進行し、ヒトの疾患に酷似した腫瘍が自然発症する。重要なことに、このモデルは密な脱プラスティック間質や免疫抑制的な腫瘍微小環境など、膵癌の主要な特徴を再現している。KPCマウスから単離された腫瘍細胞(KPC由来細胞)は、元の腫瘍の遺伝的および表現型的な特徴の多くを保持した相補的なin vitroシステムを提供し、機序研究や治療反応の制御された評価を可能にする7,8.
VMP1は、Beclin-1との相互作用およびPI3KC3複合体のリクルートを通じてオートファジーを開始させる不可欠なオートファジー関連タンパク質である9,10。開始段階に留まらず、VMP1はオートファゴソームの形成10、閉鎖11、およびミトコンドリアファジー12やジモファジー13などの選択的プロセスを含む、オートファジーの複数の段階に関与している。VMP1はオートファジーフラックス全体にわたって関与し続け、ホスホリパーゼスクランブラーとしてさらなる機能を果たす可能性がある14。膵臓において、VMP1の発現は通常低いが、膵炎や腫瘍形成などのストレス条件下では強力に誘導され、そこでは変異型KRASシグナルの下流でオートファジーを促進する15,16。VMP1は膵癌において過剰発現しており17、マウスの実験モデルにおいて、VMP1依存的なオートファジーがKRASと協調して腫瘍の開始およびPanIN形成を促進することが示されている18。さらに、ゲムシタビン19などの薬剤によるVMP1の上方制御がオートファジーを刺激し19、腫瘍細胞の生存を支持するため17、VMP1は化学療法耐性に寄与しており、その親腫瘍的な役割を浮き彫りにしている15。
オートファゴソームは、オートファジー関連タンパク質であるmicrotubule-associated protein light chain 3 (LC3)20の存在によって特徴付けられます。基底状態において、LC3は主に可溶性形態(LC3-I)として細胞質および核に分布しています。オートファジーが活性化されると、LC3はホスファチジルエタノールアミンとの抱合により脂質化され、膜結合型であるLC3-IIが生成されます1,21。この修飾により、LC3-IIはLC3-Iよりも分子量が高くなりますが、疎水性の増加により、SDS-PAGEではより速く移動します。したがって、LC3-IからLC3-IIへの変換は、タンパク質分解による処理ではなく脂質化を反映しており、通常、LC3-Iは約16 kDa、LC3-IIは約14 kDaで検出されます。LC3-IIのレベルはオートファゴソームの数と相関するため、LC3のイムノブロッティングはオートファジー活性をモニターする方法として広く利用されています22。それゆえ、オートファジーに関連する実験結果を解釈するには、LC3のダイナミクスを正確に評価することが不可欠です。
本研究では、KPC由来の膵がん細胞株における古典的なLC3免疫ブロットプロトコルの標準化および技術的最適化について詳細に述べる。LC3は低分子量タンパク質であり、LC3-I型とLC3-II型の電気泳動移動度の差がわずか~2 kDaであること、またLC3-IIが脂質修飾された種であることから、最適化は特に重要である21,22。その結果、手順のわずかな変動がLC3の検出を損ない、不十分な結果を招く可能性がある。加えて、最適な免疫反応性を得るためには、サンプルの種起源が重要な検討事項となる。最適化されたプロトコルは、化学療法剤であるgemcitabineによる処理後、およびVMP1ノックダウン後(それぞれオートファジーを刺激し、オートファジーfluxを阻害することが知られている条件)におけるLC3-IIレベルの上昇を検出するのに十分な感度を有している。最後に、データ品質と結果の解釈に与える影響を示すため、2つの潜在的な技術的ピットフォールを強調して示す。この実験ワークフローの概要を図1に示す。
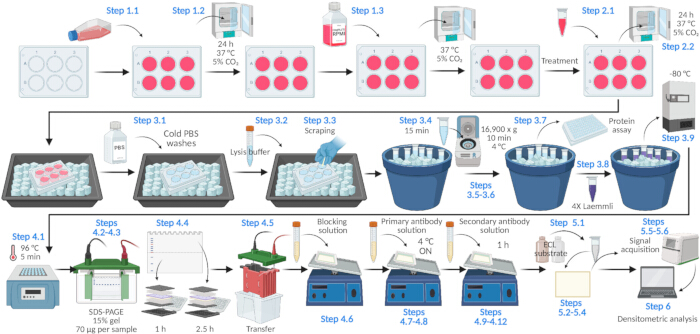
図1: KPC由来細胞におけるLC3免疫ブロットプロトコルの概略図。免疫ブロット法を用いてLC3-IIレベルを検出および定量するために使用されるプロトコルの概略的な概要。KPC由来の膵癌細胞を培養して実験的処置を施した後、細胞溶解、タンパク質定量、SDS-PAGE、膜への転写、抗体によるLC3の検出、化学発光シグナルの取得、およびローディングコントロールで標準化したLC3-IIバンドのデンシトメトリー解析を行う。このワークフローは、LC3ダイナミクスの信頼性の高い評価に必要な主要な手順上のステップと重要な段階を示している。BioRender.comを用いて作成。 こちらのリンクをクリックして、この図の拡大版を表示してください。
プロトコル
動物を用いるすべての手順は、機関のガイドラインに従って実施され、マサチューセッツ総合病院の機関動物ケアおよび使用委員会(IACUC)によってプロトコル#2019N000111に基づき承認されました。本研究で使用したKPC由来の膵がん細胞株は、この承認済みプロトコルの下で、以前にMostoslavsky研究室において樹立されたものです。試薬、化学物質、および機器の情報の一覧は、材料表に記載されています。
1. 細胞の調製
- 低継代のKrasG12D; Trp53f/+; p48-Cre(以下、KPCと表記)由来の膵臓腫瘍細胞を、10%胎児牛血清、100 U/mLペニシリン、および100 µg/mLストレプトマイシンを含むRoswell Park Memorial Institute培地(RPMI 1640)を用いて6ウェルプレートに播種する。溶解当日に70%〜90%のコンフルエンスになるように播種密度を調整する。
注意: 1ウェルあたり3.5 × 10⁵ cellsの播種密度では、72時間後に約80%のコンフルエンスとなった。研究室やKPCモデルによって増殖速度が異なる場合があるため、実験前に最適な播種密度を経験的に決定すること。
注意: 安定的なVMP1ノックダウン細胞株を構築するには、ポリエチレンイミン(PEI)を用いて、パッケージングプラスミドおよび対応するレンチウイルスベクターをHEK293T細胞に共導入し、レンチウイルス粒子を産生する。導入から72時間後にレンチウイルス含有上清を回収し、4 °Cで300 × gで10分間遠心分離して細胞残 debris を除去し、0.45 µmシリンジフィルターでろ過する。回収したウイルス上清を用いて、KPC細胞に1回のトランスダクションを行う。2.5 µg/mLピューロマイシン(10 mg/mLストック溶液を1:4,000で希釈)で72時間処理し、安定的に導入された細胞を選択する。 - 細胞を、5%二酸化炭素(CO₂)含有の加湿インキュベーター内、37 °Cで培養する。
- 培地を新鮮な培地と交換し、同一条件下で培養を継続する。
2. 20 µM ゲムシタビンによる処理
- 溶解の前日に、RPMI培地を用いて10 mMのgemcitabine溶液を調製する。各ウェルにこの10 mM溶液を4 µL添加し、最終濃度を20 µMにする。
- 5%二酸化炭素(CO₂)濃度の加湿インキュベーター内にて、37 °Cで24時間、細胞をインキュベートする。
3. 細胞溶解物
- プレートを氷上に置き、冷PBS(リン酸緩衝生理食塩水;137 mM NaCl, 2.7 mM KCl, 8 mM Na₂HPO₄, 2 mM KH₂PO₄)で3回洗浄する。
- プロテアーゼ阻害剤を添加したライシスバッファー(50 mM Tris-HCl, pH 8.0, 150 mM NaCl, 1% Triton X-100, 0.1% SDS)を80 µL加える。
注意: ウェル間でコンフルエンスレベルに差がある場合は、タンパク質濃度が同等になるようにライシスバッファーの量を調整する。目安として、コンフルエンス10%あたり約10 µLのライシスバッファーを使用する(例:コンフルエンス70%で70 µL、90%で90 µL)。 - P200ピペットチップの幅広な(近位)端を用いて、各ウェルの表面全体を十分に掻き出し、ライシスバッファー中で細胞を剥離・回収する。
- ライセートをマイクロ遠心チューブに回収し、氷上で15分間保持する。
- サンプルを4 °C、16,900 × gで10分間遠心分離する。
- 上清を新しいマイクロ遠心チューブに移す。
- タンパク質定量用に分注し、分析まで氷上で保持する。
注意: タンパク質定量には、2.5 µLのライセートを7.5 µLのライシスバッファーで希釈し、200 µLのBCA試薬(bicinchoninic acid reagent)と混合する。代替のタンパク質定量法を使用することも可能である。 - 4× Laemmliサンプルバッファー(250 mM Tris-HCl, pH 6.8, 8% SDS, 40% glycerol, 0.04% bromophenol blue, 20% β-mercaptoethanol)をライセートに加え、十分に混合する。77.5 µLのライセートに対し、25.8 µLのLaemmliサンプルバッファーを加える。
- サンプルを−80 °Cで保存する。
注意: このステップでプロトコルを一時中断できる。サンプルはSDS-PAGEを行うまで、−80 °Cで最大2週間保存可能である。
4. SDS–PAGEおよびウェスタンブロッティング
- サンプルを96 °Cで5分間加熱する。
- 各サンプル70 µgを15% SDS–PAGEゲル(厚さ1.5 mm)にロードし、色素前線が分離ゲルに入るまで90 Vで電気泳動を行う。15% アクリルアミド/ビス-アクリルアミド、375 mM Tris-HCl (pH 8.8)、および0.1% SDSを含む自作の15% ポリアクリルアミド分離ゲルを使用する。
- 電圧を120 Vに上げ、色素前線がゲルの底部に到達するか、底部を抜けるまで電気泳動を継続する。分子量マーカーの10 kDaバンドがゲルから流出する前に泳動を停止させる。
- ゲルを約25 kDaの位置で切断し、上部と下部に分ける。
- 転写バッファー(25 mM Tris base、192 mM glycine、および20% [v/v] メタノール)を用いてメタノールで事前活性化した0.2 µm PVDFメンブレンに、200 mAでタンパク質を転写する。転写時間は、ゲルの下部(<25 kDa)で1時間、上部(>25 kDa)で2.5時間とする。
- ブロッキングバッファー中で、緩やかに攪拌しながら1時間メンブレンをブロッキングする。
- 0.1% Tween-20を含むブロッキングバッファーで、anti-LC3一次抗体を1:1,000に希釈して調製する。
注意:anti-LC3一次抗体は1:1,000の希釈率で、ローディングコントロール用のanti-actin抗体は1:4,000の希釈率で使用した。 - anti-LC3一次抗体とともに、緩やかに攪拌しながら4 °Cで一晩メンブレンをインキュベートする。
- TBS-T(TBS中の0.1% Tween-20;20 mM Tris-HCl, pH 7.6, および150 mM NaCl)で、5分間、計4回メンブレンを洗浄する。
- ブロッキングバッファーで、西洋わさびペルオキシダーゼ(HRP)標識抗ウサギ二次抗体を1:2,000に希釈して調製する。
- 二次抗体とともに、緩やかに攪拌しながら室温で1時間メンブレンをインキュベートする。
- TBS-Tで5分間、計4回メンブレンを洗浄する。
- TBSで2回メンブレンを洗浄する。
5. 化学発光検出
- 使用直前に、試薬A(ルミノール/エンハンサー溶液)と試薬B(過酸化水素溶液)を等量ずつ混合し、2液性の化学発光増強基質を調製する。
- ラボワイプを用いて、メンブレン上の余分な液体を静かに吸い取る。
- メンブレンを遮光ボックスに入れる。
- 化学発光増強溶液をメンブレンに加え、ボックスを閉じて5分間インキュベートする。
- メンブレンから余剰な溶液を切り出し、信号検出のためにメンブレンをイメージングシステムに設置する。
- イメージングシステムの製造元の指示に従って画像を撮影する。
6. Fijiを用いたデンシトメトリー分析
- 画像ファイルをFijiウィンドウにドラッグ&ドロップして開きます。
- 画像を8ビットグレースケールに変換します(Image → Type → 8-bit)。
- 必要に応じて、画像を回転させてバンドを水平に合わせます(Image → Transform → Rotate)。
- Previewを有効にし、グリッドを適切な本数(例:20本)に設定します。
- バンドが正しく整列するまで回転角度を調整します。
- 長方形選択ツールを使用して、LC3-IIに対応するバンドのみを含むように、最初のレーンの周囲に関心領域(ROI)を定義します。
注: 選択範囲の幅は高さの2倍を超えないようにしてください。解析に含めるすべてのバンドに対して、同一のROI寸法を使用してください。 - Analyze → Gels → Select First Laneを選択します。
- 同一のROIを次のレーンに移動し、対応するバンドの周囲に配置します。
- Analyze → Gels → Select Next Laneを選択します。
- 最後のレーンが選択されるまで、ステップ6.6および6.7を繰り返します。
- インテンシティプロファイルを生成します(Analyze → Gels → Plot Lanes)。
- 直線ツールを使用して各ピークのベースラインを定義し、magic wandツールを使用してバンド強度を定量化します。
- 値をローディングコントロールで標準化します。
結果
このプロトコルでは、異なる実験条件下におけるKPC由来膵がん細胞株のLC3ダイナミクスをモニタリングするためのウェスタンブロッティングについて説明します。このプロトコルにより、LC3およびローディングコントロールの化学発光イメージを生成します。本研究では、ローディングコントロールとしてactinを使用しました。
本プロトコルの2つの代表的な応用例を示す。まず、対照群のKPC細胞とゲムシタビン処理したKPC細胞を比較した。ゲムシタビンは、膵がん細胞においてオートファジーを誘導することが previously reported されている化学療法剤である19。図2Aに、ローディングコントロールとしてアクチンを用いたLC3免疫ブロットの代表例を示す。Fijiによる密度解析から得られた定量結果を図2Bに示す。LC3-IIレベルはアクチンで標準化した。ゲムシタビン処理細胞においてLC3-IIレベルが59%有意に増加しており、これはオートファジーの誘導と一致している。
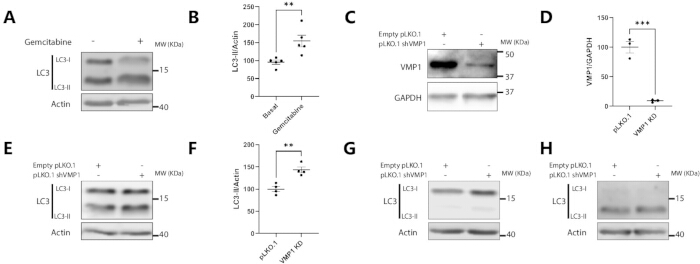
図2KPC由来膵癌細胞におけるLC3免疫ブロット分析:(A-B)ゲムシタビンの効果、(C-F)VMP1のダウンレギュレーション、(G-H)不適切な技術的条件。(A-B) 基底状態およびゲムシタビン処理条件下におけるLC3レベル。KPC由来膵癌細胞を〜で処理した。 20 µM ジェムシタビンを24時間処理するか、あるいは未処理のままとした。細胞溶解液を、LC3およびローディングコントロールとしてのアクチンについて免疫標識した。(A) LC3およびアクチンの代表的な免疫ブロット画像を示す。 (Bグラフは、アクチンで標準化したLC3-IIバンドのデンシトメトリーによる定量結果を示している。データは平均値として提示されている。 ± SEM(走査電子顕微鏡)。**p < 非ペアのStudent's t検定により0.01。n = 各群4。 (C–D) shRNAによるVMP1ノックダウンの検証。 空のpLKO.1プラスミド(pLKO.1)またはマウスVMP1配列を標的とするshRNAをコードするpLKO.1プラスミド(VMP1 KD)を恒常的に発現させた細胞を溶解し、解析した。C) VMP1の代表的なウェスタンブロット画像。GAPDHをローディングコントロールとして使用。 (DVMP1の発現レベルの定量結果。VMP1 KD細胞において約90%の減少が示されている。データは平均値として提示。 ± SEM。***p < 対応のないStudentのt検定により0.001。各群n=3。 (E–F) VMP1のダウンレギュレーションがLC3-IIの蓄積に及ぼす影響。 空のpLKO.1またはshVMP1プラスミドを恒常的に発現しているKPC由来膵がん細胞を溶解し、LC3およびローディングコントロールとしてのアクチンについて免疫標識を行った。ELC3およびアクチンの代表的な免疫ブロット画像を示す。Fグラフは、アクチンで標準化したLC3-IIバンドのデンシトメトリーによる定量結果を示している。データは平均値として提示されている。 ± SEM(走査電子顕微鏡)。**p < 対応のないStudent's t-testにより0.01。各条件のn = 5。 (G-H). 最適ではない実験。 pLKO.1空ベクターまたはshVMP1プラスミドを恒常的に発現しているKPC由来の膵癌細胞を溶解し、LC3およびローディングコントロールとしてのアクチンに対して免疫標識を行った。G) 低濃度界面活性剤含有溶解バッファーを用いて調製した溶解物から得られた、LC3およびアクチンの代表的な免疫ブロット画像。(HLC3およびアクチンの代表的な免疫ブロット像。LC3は、マウスへの反応性が保証されていない一次抗体を用いて検出した。 この図の拡大版を表示するには、ここをクリックしてください。
空のpLKO.1プラスミド(pLKO.1)またはマウスVMP1配列を標的とするshRNAをコードするpLKO.1プラスミド(VMP1 KD)を構成的に発現させたKPC由来膵癌細胞を用いて、2つ目の実験を行った。まず、VMP1のノックダウンが成功したことを確認した。図 2Cに、ローディングコントロールとしてGAPDHを用いた代表的なVMP1の免疫ブロットを示す。また、図 2Dでは、VMP1 KD細胞においてVMP1の発現が90%減少したことを定量化している。次に、これらの細胞においてLC3-IIレベルを評価した。VMP1はオートファゴソームの形成に必要であるため、LC3-IIの蓄積が増加することが予想された。VMP1のダウンレギュレーションはLC3-IからLC3-IIへの変換を妨げないが、オートファゴソームの形成およびその後のカーゴ分解を阻害するため、結果としてLC3-IIが蓄積する11,15。代表的なLC3およびアクチンの免疫ブロットを図 2Eに示し、LC3-II/アクチン比の定量結果を図 2Fに提示する。pLKO.1コントロールと比較して、VMP1 KD細胞ではLC3-IIレベルが43%という有意な増加を示した。
これらの結果は、本プロトコルによってKPC由来の膵癌細胞モデルにおいてLC3-IIレベルの信頼性の高い検出および定量が可能であることを示しています。しかしながら、プロトコルからわずかに逸脱するだけで、最適ではない結果を招く可能性があります。
LC3-IIはLC3の脂質修飾形態であるため、効率的な抽出には十分な濃度の界面活性剤を含む溶解バッファーが必要です。図 2Gは、図 2E–Fで述べた同一の実験モデル(pLKO.1 versus VMP1 KD)から、低濃度の界面活性剤を含む溶解バッファー(50 mM Tris-HCl, pH 7.4, 250 mM NaCl, 25 mM NaF, 2 mM EDTA, および 0.1% Triton X-100)を用いて得られた代表的なLC3およびアクチンの免疫ブロットを示しています。アクチンのシグナルは許容範囲内でしたが、LC3のシグナルは不十分でした。LC3-Iのバンドのみが鮮明に確認でき、LC3-IIのバンドはかろうじて検出できる程度であり、LC3-Iに比べて著しく減少していました。
LC3イムノブロッティングにおけるもう一つの重要な変数は、一次抗体の選択です。以下のイムノブロットに示されているように、 図2A, 2B, 2E, 2F, および 2G 本実験系において強力なLC3検出能を示した一次抗体を用いて作成した。対照的に、 図2H 異なる一次抗体を用いて作成したLC3免疫ブロットの結果を示しており、不十分な結果となった。これらの条件下では、LC3-Iはほとんど検出されず、LC3-IIのシグナルは前述の実験で使用した抗体で得られたものよりも大幅に弱かった。
ディスカッション
本記事では、KPC由来の膵癌細胞における古典的なLC3免疫ブロット法プロトコルの技術的最適化および標準化について説明します。膵癌の発症および進行におけるオートファジーおよびオートファジー関連タンパク質の役割がますます認識されていることを踏まえ23、この標準化されたワークフローは、LC3ダイナミクスをモニタリングするための信頼性の高いアプローチを提供します。本プロトコルは、化学療法、酸化ストレス、低酸素、小胞体ストレス、および遺伝子過剰発現、ノックダウン、ノックアウト、変異などの遺伝子操作を含む、さまざまな実験条件下でオートファゴソームプールを評価するために適用できます。また、LC3ダイナミクスの評価に加えて、本プロトコルを適応させることで、LC3と目的タンパク質との直接的または間接的な相互作用を調査することも可能です。例えば、本ワークフローを用いて、標的タンパク質の免疫共沈降後、溶出液中のLC3検出を行うことができます。さらに、LC3免疫ブロット法は、膵管腺癌において重要性が高まっている新興分野である分泌オートファジーの文脈における細胞外小胞の解析にも適用できます24,25。
図2G–Hに示されているように、わずかな誤差が不十分な結果を招く可能性があるため、いくつかの重要なステップを慎重に制御する必要があります。最も重要な検討事項の一つは、溶解バッファーの組成です。LC3-IIを効率的に抽出するには、RIPAバッファーや同様の処方など、界面活性剤濃度が比較的高いバッファーが必要です。タンパク質間の相互作用を維持するために免疫沈降プロトコルで一般的に使用される界面活性剤含有量の低いバッファーでは、LC3-IIを十分に可溶化できない場合があります。このような条件下では、LC3-Iは検出可能にありながら、LC3-IIの検出が困難または不可能になり、データの解釈を損なう恐れがあります。
もう一つの重要な要因は、研究対象の実験系で検証済みの一次抗体を選択することです。ここで提示した技術的評価は、同一メーカーの2つの抗体の比較に限定されており、複数のクローンやサプライヤーにわたる包括的な検証を行うものではありません。それでもなお、得られた知見は、抗体の性能が実験系によって大幅に異なる可能性があることを示しています。この限定的な比較から種特異性に関する決定的な結論を導き出すことはできませんが、本モデルで評価した代替抗体の性能が不十分であったことは、予測される交差反応性に依存するのではなく、実証的な検証を行うことの重要性を強調しています。メーカーのデータシートによれば、この抗体はヒトサンプルで検証済みですが、マウスへの反応性は配列相同性に基づいて予測されたものです。マウス細胞では弱いLC3検出が認められましたが(図 2H)、同一の抗体を用いてラット膵臓組織およびラット由来AR42J細胞で試験した際は、検出可能なシグナルが得られませんでした(データは示さず)。これらの観察結果は、調査している特定の生物学的モデル内で抗体性能を検証することの重要性を裏付けています。
最適化が必要なその他のパラメータには、ゲルの組成と電気泳動条件が含まれます。電気泳動を、染料フロントがゲルの底部に達した時点から10 kDaの分子量マーカーがゲル外に流出するまでの間に停止させた場合、15%の分離ゲルでLC3-IとLC3-IIを十分に分離できます。対照的に、7%ゲルなどの低濃度のゲルでは十分な解像度が得られません。LC3は低分子量タンパク質であるため、転写条件も同様に重要です。転写時間や電流が不十分な場合は転写効率が低下し、逆に転写時間や電流が過剰な場合は、タンパク質がメンブレンを通り抜けて損失する可能性があります。孔径の大きいメンブレンを使用すると、このリスクがさらに高まる可能性があります。
プロトコルのいくつかの変更が許容される場合があります。細胞回収時、P200ピペットチップの代わりに市販のセルスクレーパーを使用しても構いません。溶解後、サンプルを氷上で保持している限り、凍結させずに直ちに処理することが可能です。また、4–20% グラジエントゲルを含む市販のポリアクリルアミドゲルも使用できます。ブロッキング溶液としては、ここで説明した溶液の代わりに、ラボグレードのミルクや1% BSA含有TBS-Tなどの代替ブロッキング剤を使用できます。同様に、代替の抗体インキュベーションバッファーも使用可能ですが、アジ化ナトリウムはペルオキシダーゼ活性を阻害するため、ホースラディッシュペルオキシダーゼ標識二次抗体を含む溶液からは除外してください。
本プロトコルは、異なる組織由来の細胞株や組織溶解液を含む他の実験系にも適応させることができます。ただし、ワークフローは主にKPC由来の膵がん細胞で最適化されているため、より広範な適用については慎重に検討する必要があります。細胞種、基礎的なオートファジーレベル、タンパク質発現プロファイル、およびサンプルの組成の違いが、LC3の検出に大きな影響を与える可能性があります。したがって、別の系に適応させる場合は追加の最適化が必要となる可能性が高く、また、調査対象の種に対する抗体の適合性を常に確認する必要があります。
LC3免疫ブロット法の根本的な限界についても強調しておく必要があります。LC3-IIの蓄積だけでは、オートファジーの状態を確定的に判断したり、オートファジー誘導の亢進とオートファゴソームのクリアランス不全を区別したりすることは不十分です。LC3-IIはオートファジー誘導時に生成されますが、オートファジープロセスの過程でリソソーム内で分解されます。その結果、オートファジーの亢進と、LC3抱合の下流におけるオートファジーフラックスの不全の両方が、LC3-IIの蓄積を引き起こす可能性があります26。
この制限は、生物学的に異なる条件下でLC3-IIレベルの上昇が観察された図2A, Bおよび図2E, Fに示される実験によって説明されます。ゲムシタビン処理細胞において、LC3-IIの蓄積は、VMP1発現の増加およびLC3-IからLC3-IIへの変換促進に伴うオートファジーの能動的な誘導を反映しています11,19。対照的に、VMP1のノックダウンはオートファゴソームの成熟とクリアランスを阻害します。これらの条件下では、LC3のリピデーションは維持されますが、オートファジーフラックスの欠損によりLC3-IIの分解が損なわれるため、オートファジーの進行が阻害されているにもかかわらずLC3-IIが蓄積します22。これらの異なる生物学的状態はLC3のイムノブロッティングのみでは区別できないため、オートファジーフラックスを厳密に評価するには、SQSTM1/p62解析やリソソーム阻害アッセイなどの相補的なアプローチが必要です26。
これらの補完的なアプローチと組み合わせることで、LC3免疫ブロッティングは、オートファジーをモニタリングするための最も簡便で有益な手法の一つであり続けています。代替技術にも制限はあります。免疫蛍光法によるLC3 punctaの定量化27では、オートファジーの亢進とフラックスの障害を確実に区別できず、標準化や自動化が困難な場合があります。しかし、免疫蛍光法は必要とする生体試料が少ないため、ヒト生検試料のような限定的な臨床検体において有利な場合があります。さらに、LC3免疫ブロッティングはトランスフェクションベースのレポーターシステムを必要としないため、タンパク質の過剰発現に伴うアーティファクトを回避できます。最後に、従来のフローサイトメトリーはLC3-IとLC3-IIを区別するのに十分な解像度を欠いており、オートファジー活性の評価における有用性は限られています。
開示事項
著者は、利益相反がないことを宣言します。
謝辞
本研究は、国立科学技術研究会議(CONICET)[PIP 2021–2023 GI-11220200101549CO]、国家研究推進・技術開発・革新庁(Agencia I+D+i)[PICT-2021-I-A-00328]、ブエノスアイレス大学(Universidad de Buenos Aires)[UBACyT 2023–2025, 20020220300232BA]、およびブエノスアイレス市ノルベルト・キルノ財団(Fundación Norberto Quirno, Ciudad de Buenos Aires)からの助成金によって支援された。
著者らは、『ディスアース・モデルズ&メカニズムズ』誌が授与するトラベリング・フェローシップを通じて、バイオロジスト社から提供された財政的支援に対して深く感謝する。この支援は、資金提供された訪問から生じた研究に貢献した。この慈善団体に関するさらなる情報は、https://www.biologists.com/ で利用可能である。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| C-DiGit Blot Scanner | LI-COR BioScience | 3600 | ステップ5.6の化学発光検出に使用 |
| 10x リン酸緩衝生理食塩水 (PBS) | Corning | 46-013-CM | ステップ1.1の細胞継代前の洗浄用1x PBSの調製に使用 |
| 2-メルカプトエタノール (β-メルカプトエタノール) | Sigma-Aldrich (Merck) | M3148 | ステップ3.8のSDS-PAGEサンプル調製用4× Laemmliサンプルバッファーの調製に使用 |
| 3Dシェーカー | DLAB | SK-D1807-E | ブロッキング、一次抗体、二次抗体溶液でのメンブレンのインキュベーションおよび洗浄ステップ(ステップ4.6、4.8、4.9、4.11、4.12、4.13)に使用 |
| 6ウェル細胞培養プレート | SORFA | SCP-11-006 | ステップ1.1の細胞播種に使用 |
| アクリルアミド | Sigma-Aldrich (Merck) | A8887 | ステップ4.2–4.5に必要な15% SDS-PAGEゲルの調製に使用 |
| 抗Glyceraldehyde-3-Phosphate Dehydrogenase抗体、マウスモノクローナル、クローン 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 反応性: ヒト、ネコ、ブタ、マウス、ウサギ、魚、イヌ、ラット。ノックダウン効率を評価するためのローディングコントロールとして使用(図2Cおよび2D) |
| 抗マウスIgG抗体、HRP標識 | Cell Signaling Technology | 7076 | RRID: AB_330924。ステップ4.10の二次抗体溶液の調製に使用 |
| 抗ウサギIgG抗体、HRP標識 | Cell Signaling Technology | 7074 | RRID: AB_2099233。ステップ4.10の二次抗体溶液の調製に使用 |
| 抗β-Actin (ACTB)抗体、マウスモノクローナル、AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 反応性: ヒツジ、コイ、ネコ、ニワトリ、ラット、マウス、ヒル (Hirudo medicinalis)、ウサギ、イヌ、ブタ、ヒト、ウシ、モルモット。図2A、2B、2E、2F、2G、2Hのローディングコントロールとして使用 |
| ブロモフェノールブルー | Sigma-Aldrich (Merck) | B0126 | ステップ3.8のSDS-PAGEサンプル調製用4× Laemmliサンプルバッファーの調製に使用 |
| エチレンジアミン四酢酸 (EDTA) | Sigma-Aldrich (Merck) | E9884 | 低界面活性剤溶解バッファーの調製に使用(図2Gおよび2H) |
| ウシ胎児血清 | NATOCOR | Lintc-634 | 細胞培養用完全培地の調製に使用(ステップ1および2) |
| Fiji | オープンソースソフトウェア | N/A | 画像解析ソフトウェア |
| グリセロール | Sigma-Aldrich (Merck) | G5516 | ステップ3.8のSDS-PAGEサンプル調製用4× Laemmliサンプルバッファーの調製に使用 |
| グリシン | Sigma-Aldrich (Merck) | G7126 | ステップ4.5の転写バッファーの調製に使用 |
| Immun-Blot PVDFメンブレン、ロール、0.2 µm、26 cm x 3.3 m | Bio-Rad | 1620177 | ステップ4.5の転写に使用 |
| Intercept (TBS) ブロッキングバッファー | LI-COR BioScience | 927-60001 | ステップ4.6のブロッキング、およびステップ4.7と4.10の一次および二次抗体溶液の調製に使用 |
| LC3 A/B (D3U4C) ウサギモノクローナル抗体 | Cell Signaling Technology | 12741 | RRID: AB_2617131 反応性: ヒト、マウス、ウサギ。ステップ4.7の一次抗体溶液の調製に使用 |
| LC3B (D11) ウサギモノクローナル抗体 | Cell Signaling Technology | 3868S | RRID: AB_2137707 反応性: ヒト。図2HのLC3一次抗体として使用 |
| メタノール | Anedra | 6197 | PVDFメンブレンの活性化およびステップ4.5の転写バッファーの調製に使用 |
| Millex-HV シリンジフィルターユニット、0.45 μm PVDF | Merck Millipore | SLHV033RS | レンチウイルス含有培地のろ過に使用(ステップ1.1) |
| ミニデジタルドライバス | Labnet International, Inc. | D 5060075 | ステップ4.1のサンプル加熱に使用 |
| Mini-PROTEAN Tetra 電気泳動システム | Bio-Rad | 1658025FC | ステップ4.2、4.3、および4.5のSDS-PAGEおよび転写に使用 |
| マウスVmp1標的MISSION shRNA (TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | 安定VMP1ノックダウン細胞株の作製に使用(ステップ1.1) |
| N,N'-メチレンビスアクリルアミド (Bis-acrylamide) | Sigma-Aldrich (Merck) | M7279 | ステップ4.2–4.5に必要な15% SDS-PAGEゲルの調製に使用 |
| Nabigem 1g ゲムシタビン | Microsules Argentina | M3060584-3 | ステップ2のゲムシタビン処理に使用 |
| Pen-Strep溶液 | Sartorius | 03-031-1B | 細胞培養用完全培地の調製に使用(ステップ1および2) |
| Pierce BCAプロテインアッセイキット | Thermo Fisher Scientific | 23227 | タンパク質定量に使用(ステップ3.7) |
| Pierce プロテアーゼインヒビタータブレット | Thermo Fisher Scientific | A32953 | ステップ3.2の溶解バッファーの調製に使用 |
| Polyethylenimine HCl MAX, Linear (PEI MAX), MW 40,000 | Polysciences | 24765-1 | レンチウイルスプラスミドを用いたトランスフェクションに使用(ステップ1.1) |
| 塩化カリウム (KCl) | Sigma-Aldrich (Merck) | P9333 | ステップ3.1のPBS調製に使用 |
| リン酸一カリウム (KH2PO4) | Sigma-Aldrich (Merck) | P5655 | ステップ3.1のPBS調製に使用 |
| PowerPac Basic 電源装置 | Bio-Rad | 1645050 | ステップ4.2、4.3、および4.5のSDS-PAGEおよび転写に使用 |
| プレステインタンパク質ラダー | Genbiotech | PM201 | ステップ4.2 - 4.4のSDS-PAGEに使用 |
| ピューロマイシン (10 mg/mL溶液) | InvivoGen | ant-pr-1 | 安定導入細胞の選抜に使用(ステップ1.1) |
| RPMI 1640 | Genbiotech | MC2012L | 細胞培養用完全培地の調製に使用(ステップ1および2) |
| 塩化ナトリウム (NaCl) | Sigma-Aldrich (Merck) | S9888 | ステップ3.1のPBS、ステップ3.2の溶解バッファー、およびステップ4.9のTBSの調製に使用 |
| ドデシル硫酸ナトリウム (SDS) | Sigma-Aldrich (Merck) | L3771 | ステップ3.2の溶解バッファーおよびステップ4.2–4.5に必要な15% SDS-PAGEゲルの調製に使用 |
| フッ化ナトリウム (NaF) | Sigma-Aldrich (Merck) | S7920 | 低界面活性剤溶解バッファーの調製に使用(図2Gおよび2H) |
| リン酸二ナトリウム (Na2HPO4) | Sigma-Aldrich (Merck) | S9763 | ステップ3.1のPBS調製に使用 |
| Sorval ST 16R 遠心機 | Thermo Fisher Scientific | 75004380 | ステップ1.1の細胞およびステップ3.5の溶解物の遠心分離に使用 |
| 化学発光基質 SuperSignal West Pico PLUS | Thermo Fisher Scientific | 34577 | ステップ5.1の化学発光検出に使用 |
| Thermo Scientific 1300 Series A2 Class II, Type A2 バイオセーフティキャビネット | Thermo Fisher Scientific | 1386 | ステップ1.1、1.3、および2.1の無菌的な細胞培養操作に使用 |
| Thermo Scientific BB 150 CO2 インキュベーター | Thermo Fisher Scientific | BB150-2TCS-L | ステップ1.2および2.2の細胞培養に使用 |
| TMEM49/VMP1 (D1Y3E) ウサギモノクローナル抗体 | Cell Signaling Technology | 12929 | RRID: AB_2714018 反応性: ヒト、マウス、ラット。図2Cおよび2DのVMP1ノックダウン効率を検証するための一次抗体として使用 |
| Trisベース | Sigma-Aldrich (Merck) | T1503 | ステップ4.5の転写バッファーの調製に使用 |
| Tris塩酸塩 (Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | ステップ3.2の溶解バッファー、ステップ3.8の4× Laemmliサンプルバッファー、ステップ4.2–4.5に必要な15% SDS-PAGEゲル、およびステップ4.9のTBSの調製に使用 |
| Triton X-100 | Sigma-Aldrich (Merck) | T8787 | ステップ3.2の溶解バッファーの調製に使用 |
| Trypsin EDTA | Gibco | 11570626 | ステップ1.1の細胞継代に使用 |
参考文献
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
再版と許可
この記事は公開されました
動画は近日公開