生体外移植モデルを用いて、赤身マウスの内臓白色脂肪組織の前縁部の小片を7〜10日間培養し、高脂肪食摂食中の脂肪組織炎症の誘導と研究を可能にします。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
このプロトコルは、生体内での食事介入なしに、高脂肪食(HFD)摂食後に内臓脂肪組織(VAT)で観察された選択された細胞および炎症的特徴を再現する生外マウスモデルを記述します。赤身マウスから少量のVATエクスプラントを7〜10日間培養すると、HFD栄養動物のVATに非常に似た炎症性表現型が自然発生します。重要なのは、このモデルが脂肪組織(AT)の構造を保存していることで、生理学的に関連性の高い文脈で炎症過程の調査を可能にすることです。培養過程で、肥満関連炎症の主な特徴が現れます。例えば、冠状構造(CLS)の形成、代謝活性化マクロファージ(MMes)の蓄積、炎症性サイトカイン産生の増加などです。脂肪細胞の死にもかかわらず、飽和脂肪酸、脂質取り分の変化、グルコース過剰、酸化ストレス、低酸素、アディポキンの不均衡、副分泌脂肪酸-免疫細胞シグナル伝達などの肥満関連炎症の他の要因はモデル内で部分的に表現できます。このシステムは、ライブイメージング、フローサイトメトリー、定量PCR、ELISA、免疫染色、バルクまたは単細胞RNAシーケンスなど、幅広い下流アプリケーションをサポートしています。さらに、薬理学的およびサイトカインベースの治療法は、シグナル伝達経路や細胞型特異的応答の調査にも応用可能です。この簡単にカスタマイズ可能なモデルは、3Rの原則に沿い、生体内での食事研究における動物使用を削減しています。このモデルは再現性が高く、コスト効率が高く、実装も容易であり、脂肪細胞死、免疫細胞動態、AT炎症における治療戦略の研究に多彩なプラットフォームを提供します。
概要
脂肪組織(AT)は、約20%が脂肪細胞で構成され、免疫細胞、線維芽細胞、前駆細胞、血管細胞が混在する異質な混合物からなる代謝活性器官です。ATは単位置白脂肪組織(WAT)、多所褐色脂肪組織(BAT)、中間ベージュ脂肪組織に分類され、組成、機能、解剖学的位置に異質性が反映されています。WATは皮下(SCAT)、内臓(VAT)、血管周囲、骨髄脂肪の各部位に分布しており、発生起源、遺伝子発現プロファイル、代謝機能が異なります。脂質貯蔵の役割に加え、ATはサイトカイン、ホルモン、アディポキンを分泌することで内分泌器官としても機能します。SCATと比較して、VATは代謝活性が高く炎症細胞で豊かであるため、AT炎症や2型糖尿病などの代謝疾患の研究に特に重要です。
ATは代謝の健康を調節する重要な因子であり、肥満の中心的な役割を果たします。肥満は多くの併存疾患と関連しています。肥満は脂肪細胞肥大、過形成、増殖を促進します。一方、ATの拡大と炎症は高血糖、高インスリン血症、高トリグリセリド血症、そしてグルコース耐性障害と強く相関しています。AT増殖は脂肪細胞死の増加を伴うと考えられており、年間約10%の細胞入れ替わりが起こり、組織クリアランスやリモデリングに不可欠なマクロファージの募集を引き起こします。脂肪細胞はマクロファージよりもはるかに大きい(100–200μm)ため、これら約5倍の小さな細胞による効率的な食細胞作用は困難であり、その結果組織の恒常性が損なわれ、慢性AT炎症9が促進されます。脂肪組織マクロファージ(ATM)は、過剰に大きな死にかけた脂肪細胞の除去を媒介します。これは多核巨大細胞(MGC)への融合や、死んだ脂肪細胞の周囲に冠状構造(CLS)を形成し、リソソームエキソサイトーシスによって分解することで行われます 10,11,12。CLSの存在量は肥満関連炎症と相関しています11,13。
健康なATでは、ATMは主に抗炎症作用を持つM2様マクロファージである一方、肥満は炎症促進型M1様表現型へのシフトを促す(14,15)。代謝活性化マクロファージ(MMes)や脂質関連マクロファージ(LAM)など、さらに機構的に異なるサブセットが現れ、これらはリソソームエキソサイトーシスを通じて死んだ脂肪細胞の除去に重要な役割を果たします 16,17,18。
生理学的に関連性の高い多細胞環境におけるAT炎症を調査するため、このプロトコルは、赤身マウス由来のVATの有機型エクスプラント培養に基づく生外マウスモデルを確立しました。7〜10日間培養されたVATエクスプラントは、CLS形成、マクロファージ表現型、炎症性サイトカイン産生に関して、少なくとも12週間の高脂肪食(HFD)摂食後に観察された炎症性表現型と同等のものを発症します9,19。重要なのは、このアプローチが動物の使用を減らし、食事介入の承認を不要にし、長期的な食事介入研究への依存を減らすことで3R原則に貢献していることです。従来の二次元(2D)細胞培養システム(単細胞培養モデル、例:3T3-L1細胞や一次脂肪細胞培養)と比較して、この方法は組織の複雑さと細胞多様性を保持し、免疫細胞と脂肪細胞間の生理的細胞間相互作用の調査を可能にします。
培養ATエクスプラントは幅広い分析手法と互換性があります。ライブ共焦点イメージングにより、ATM蓄積、CLS形成、MGC形成のモニタリングが可能です9,19。コラーゲン酵素消化により、間質血管画率(SVF)の分離が可能となり、フローサイトメトリー解析や増殖アッセイやM1様、M2様、またはMMe表現型の決定が行われます12。定量PCR(qPCR)やRNAシーケンシングを含む遺伝子発現解析は、全エクスプラント、SVF細胞、または選別されたマクロファージに対して実施可能です。タンパク質の発現および酵素活性はウェスタンブロッティングまたはELISA12,20,21で評価でき、組織構造やマーカーの発現は全マウント染色および免疫蛍光法9,22で可視化されます。さらに、ATM枯渇やサイトカイン治療を含む薬理学的および遺伝的介入も容易に実施可能です 21,23,24。
まとめると、このHFD様AT炎症の エクスビブ マウスモデルは、脂肪細胞死の調査、細胞行動の直接 的な現場 観察、AT免疫学に関連する薬理学的または遺伝的操作を可能にします(図1)。
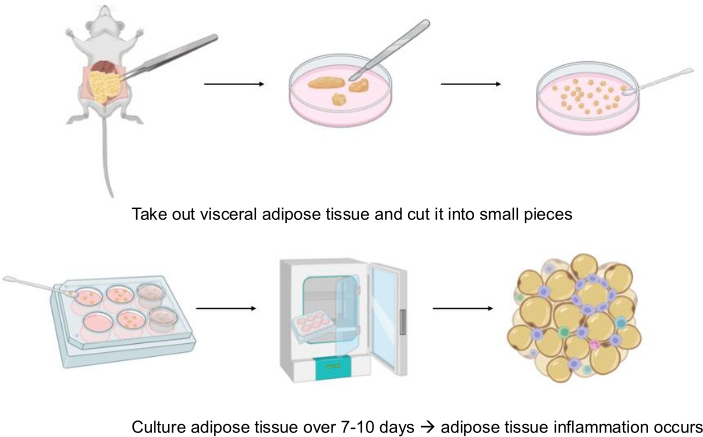
図1:ワークフローのグラフィカルな要約。 マウスから内臓脂肪組織(AT)を分離し、小さなエクスプラントに切り分けて7〜10日間培養します。培養期間中、エクスプラントは炎症性表現型を発達させ、コントロールされた 生外 条件下での脂肪組織の炎症の研究を可能にします。 この図の拡大版はこちらをクリックしてご覧ください。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
動物実験は機関および国家のガイドラインに従って実施され、適切な規制当局によって承認されました。Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdトマトマウス(「MacFat」、RRID: Csf1r-eGFP: RRID:IMSR_JAX:018549、Adipoq-iCreERT2: RRID:IMSR_JAX:025124、CAG-tdトマト: RRID:IMSR_JAX:007914)27,28が代表的な顕微鏡実験に用いられました。このレポーターラインはGFP発現によるマクロファージの可視化やtdトマト発現による脂肪細胞の可視化を可能にします。tdトマトの発現は脂肪細胞死後に失われるため、培養中に脂肪細胞の生存率を監視できます。Csf1r-eGFPレポーターマウス(「MacGreen」、RRID:IMSR_JAX:018549)28はマクロファージの可視化およびフローサイトメトリー解析に用いられました。C57BL/6Jマウス(RRID:IMSR_JAX:000664)は、scRNA-seqおよびqPCR解析を含む非画像実験に使用されました。すべてのトランスジェニック系統はC57BL/6J背景上でヘテロ接合マウスとして維持されました。
動物実験は『実験動物ケアの原則』(NIH出版物番号85e23、1985年改訂)および特定の国内法に従い、ザクセン州の地方自治体であるドイツ・ライプツィヒのLandesdirektion(動物実験用途:TV11-21-MEZ)によって承認されました。地方自治体によると、記載された実験は動物実験には該当しません。なぜなら、「脊椎動物がその臓器や組織を科学的目的で利用する目的のみで殺された場合、これは動物福祉法(TierSchG)第7条第2項に基づく動物実験とはみなされず、動物福祉法(TierSchG)第4条第3項に基づく殺害」と定められているからです。動物の殺害は「動物報告書」として報告されなければなりません。この報告書は動物実験申請書に含まれています。ライプツィヒ大学医学部の倫理委員会も研究プロジェクトを承認しています。動物実験用アプリケーションTV11-21-MEZのガイドラインに従い、マウスは吸入麻酔薬イソフルランの過剰投与により安楽死されます。有効濃度(O₂キャリアガス中の5%)はイソフルラン蒸発器 によって 供給されます。安楽死の手続きは、最終的な循環停止(呼吸の欠如[羽根検査]および心拍[触診]の欠如)が確認されたときに完了します。
マウスはライプツィヒ大学の温度管理(22±2°C)で特定の病原体のない施設に、3〜5匹の兄弟グループで12時間の明暗サイクルで飼育されました。動物たちは自由に水と標準的なチャウダイエット(9%カロリー脂肪、Sniff GmbH(ドイツ))。代表的な実験はオスとメスのマウスを用いて行われました。プロトコルで使用される試薬、化学物質、キットは 材料表に記載されています。
1. 準備
- 試薬と機器を準備する
- 培養培地は無菌状態で、RPMI-1640に10%の胎児牛血清(FBS)と1%の抗生物質溶液を補足して準備します。
- 培養培地と無菌PBSを37°Cに温めます。
- 組織培養フード内のすべての機器と作業エリアを70%エタノールで清掃してください。
- 動物の準備をする
- 制度のガイドラインに従ってネズミを生贄に捧げてください。必要に応じて動物の体重を測ることもできます。
- 動物を70%エタノール入りのガラスビーカーに入れます。
- ガラスビーカーの外側をエタノールで拭き、組織培養フードに移します。
2. 脂肪組織の分離(図2)
- マウスの準備をしてください
- 鈍い鉗子を使ってマウスをガラス皿の中で仰向けに置くか、解剖板に固定します。
- ペトリ皿にあらかじめ温めておいたPBSを薄く加えます。
- 新しい手袋に替えましょう。
- 鉗子で下腹部の皮膚を持ち上げ、ハサミで小さな水平切開をして腹腔を開けます。
- 最初の切開から垂直切開(尾から前端へ~2cm)を開け、内臓を露出させます。
- 脂肪パッドを隔離してください
- 小さく鋭いハサミと尖った鉗子を使い、白い脂肪組織を見つけて切除します。汚染を防ぐために別の器具を使いましょう。
- オスのマウス:性腺脂肪は精巣上体と精巣にのみ付着しています。脂肪パッドを慎重に持ち上げて精巣上を切るか、精巣上腺脂肪と一緒に精巣上腺と精巣を切除し、その後取り除いてください。
- メスのマウス:性腺脂肪は子宮の角と卵巣に付着しており、オスよりも目立つ。脂肪パッドと切除部位を子宮の角と卵巣に沿って慎重に持ち上げます。
- 分離した脂肪パッドをPBS入りのペトリ皿に入れます。
- カミソリの刃を使って残留した精巣上体、精巣、卵巣、血管を除去します。
- 洗浄した脂肪パッドを、温めたPBSを入れたもう一皿のペトリ皿に移します。脂肪パッドの重さを量ることも可能です。
注: 培養前に脂肪パッドの重さを測ることで、実験条件間で組織質量の正規化が可能になります。
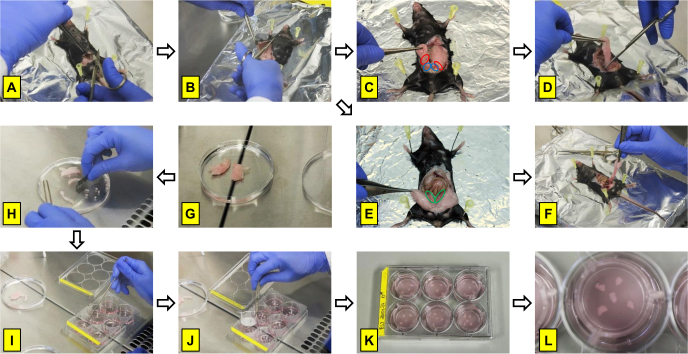
図2: 内臓脂肪組織の分離および培養。 (A,B) 腹腔を開けて内臓脂肪組織を露出させる。 (C, D) 雄マウスから精巣上体脂肪組織を分離し、脂肪は上体(赤い円)と精巣(青い円)に付着します。(E、F)雌マウスから性腺脂肪組織を分離し、脂肪は子宮角(緑色の円)や卵巣に付着しています。(G、H)脂肪組織エクスプラントの準備とトリミング。(I, J)エクスプラントを培養ウェルに移し、細胞培養挿入を設置します。(K, L)6ウェルプレートでの培養中のエクスプラントの代表画像。この図の拡大版はこちらをクリックしてご覧ください。
3. 植株の準備と培養
- エクスプラントの準備
注意: カミソリの刃は鋭利で怪我を引き起こす可能性があります。刃物は注意深く取り扱い、施設の安全手順に従って処分してください。- 脂肪パッドを細切れに切り、カミソリの刃で約10 mm3 (1枚あたり約10 mg)のキューブにします。
- エクスプラント培養の確立
- 6ウェルプレートの各ウェルに1〜1.5mLの培地を加えます。
注: 正規化には、培地1mLあたり約50mgの脂肪組織を使用します。 - 滅菌スプーンまたはヘラを使って、各井戸に5つのエクスプラントを移します。
- エクスプラントを円形に均等に配置します。
- 細胞培養用のインサートで無菌鉗子を使ってエクスプラントを覆います。
注: インサートの位置取り時に気泡を発生させないようにし、エクスプラントがその中心に位置するようにしてください。 - エクスプラントは37°C、5%のCO₂、21%のO₂で7〜10日間孵化します。
注: 事前に加熱されたPBSと培地を用いて組織の生存率を高めます。脂肪パッドがインキュベーターの外に留まる時間をできるだけ短くするために、迅速に作業しましょう。ネズミの毛による汚染を避けましょう。髪が組織に付着している場合は、取り除いて温かいPBSで組織を洗い流してください。
- 6ウェルプレートの各ウェルに1〜1.5mLの培地を加えます。
4. 下流解析
- 7〜10日間の培養期間終了後、エクスプラント、間質血管画分細胞、または培養上清液を採取し、顕微鏡、フローサイトメトリー、qPCR、ELISA、RNAシーケンスなどの実験エンドポイントに必要な下流解析を行います。
5. 統計分析
- GraphPad Prism 10.2を用いて統計解析を行います。ROUT検定(Q=1%)で外れ値データセットをスクリーニングし、Shapiro–Wilk検定(α=0.05)で正規性を評価します。
- 適切な場合、ペアズチューデントt検定またはウィルコクソンマッチペア検定を用いて2つのグループを比較します。複数のグループを一方向ANOVAを用いて比較し、その後ダネットの事後検定を行います。p < 0.05で統計的に有意な差を考えます。
- データをSEM±平均として提示します。特に明示がない限り、nを生物学的複製数(個別マウス)として定義します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
培養期間を通じて組織の一般的な生存率が維持され、いくつかの補完的なアプローチでモニタリングされました。組織の生存可能性は、カルセイン25などの生存性着色料を用いた共焦点顕微鏡、ペリリピンに対する抗体染色による脂肪細胞膜の完全性評価(17,26)、または脂肪細胞におけるトランスジェニック・レポータータンパク質発現を用いて評価できます。組織の活力と完全性は培養中で最大14日間保持されましたが、現在はより長い培養期間の評価が進められています。
適切なトランスジェニックレポーターモデルは、Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdTomatoマウス系統(「MacFat」)27,28です。このレポーター系統は、GFP発現に...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
代謝疾患や糖尿病の世界的な有病率が高まっている中で、脂肪組織(AT)炎症のメカニズムを理解することは重要な研究目標です。このニーズに対応するため、制御された実験条件下でAT炎症の誘導および解析を可能にする 体外 エクスプラント培養システムが開発されました。
この方法の重要な要件は、培養期間を通じて組織の生存性を維持することです。複数の補完的アプローチを用いることで、ATの完全性が培養中最大14日間維持されることが示されました。比較すると、既に発表されているAT移植法は通常、24時間から3日間までのかなり短い組織生存率を示しています。細胞培養挿入物の使用は、組織の水分補給を維持しつつ効率的なガス交換を可能にすることで組織の生存性を支援します。さらに、無菌条件下での迅速な組織取り扱い、予温された培地や溶液の使用、鋭利な切断器具の使用は、機械的損傷や培養によるストレスを最小限に抑えるため...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者たちは競合する利害関係を一切認めていない。
謝辞
著者たちは、優れた技術支援をいただいたコンスタンス・ホブッシュ氏とフロリアン・カームゼ氏に感謝しています。フローサイトメトリー解析は、ライプツィヒ大学のコアユニット蛍光技術で行われ、Kathrin JägerとPia Glöcknerの技術サポートを受けました。この研究はドイツ研究財団(DFG)のプロジェクト番号209933838 – SFB 1052(プロジェクトB09)の支援を受けました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
```html
```
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| BD OptEIA Mouse TNF ELISA Kit | BD Biosciences | 560478 | |
| Bodipy 558/568 C12 | フローサイトメトリー: 1:10000; 染色: 1:2000 | Invitrogen | D3835 |
| Bovine Serum Albumin | 3% | Sigma | A9647 |
| CD107a (LAMP1) – AF647 | 染色: 1:100; フローサイトメトリー: 1:200 | BioLegend | 121610 |
| CD11c – BV605 | フローサイトメトリー: 1:100 | BioLegend | 117334 |
| CD16/32 | フローサイトメトリー: 1:100 | Invitrogen | 14-0161-82 |
| CD301 – AF647 | フローサイトメトリー: 1:50 | Bio-Rad | MCA2392A647 |
| CD36 – PE | フローサイトメトリー: 1:400 | BioLegend | 102606 |
| CD45 – PE | フローサイトメトリー: 1:100 | BD Pharmingen | 555483 |
| Click-iT Plus EdU Alexa Fluor 350 Flow Cytometry Assay Kit | EdU: 5 µM | Invitrogen | C10632 |
| Clodronate Liposomes | 500 µg/ml clodronate | Liposoma | |
| Collagenase Type 2 | 1 mg/ml, 315 U/mg | Worthington | LS004176 |
| CyQUANT LDH Cytotoxicity Assay Kit | Invitrogen | C20301 | |
| DAPI | フローサイトメトリー: 0.2 µg/ml | Thermo Fisher | 62248 |
| Ethanol | 70% | Carl Roth | T913.1 |
| F4/80 – AF647 | フローサイトメトリー: 1:100 | Invitrogen | MF48021 |
| F4/80 – PE-Cy7 | フローサイトメトリー: 1:200 | Invitrogen | 25-4801-82 |
| Fetal Calf Serum | 1.10 | Gibco | 10270106 |
| Fetal Calf Serum | 1.20 | Gibco | 10270106 |
| HBSS (-Mg, -Ca) | Gibco | 14170138 | |
| HEPES | 13 mM | Roth | HN77.2 |
| Hoechst 33342 | 1:10,000 | Life Technologies | H3570 |
| LysoTracker – AF647 | フローサイトメトリー: 1:20000; 染色: 1:10000 | Invitrogen | H34477 |
| MAC-2 | 染色: 1:1000 | Cedarlane | CL8942AP |
| Millicell Cell Culture Insert, 30 mm, hydrophilic PTFE, 0.4 µm | Merck Millipore | PICM0RG50 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| Penicillin/Streptomycin (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Penicillin/Streptomycin (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Perilipin | 2 µg/ml | Abcam | ab3526 |
| Plexxicon 5622 | 40 µM | Plexxicon Inc. | HY-114153 |
| RPMI-Media 1640 | with 11 mM glucose | Sigma Aldrich | R8758 |
| RPMI-Media 1640 | Sigma | R8758 | |
| TC-Insert for 6-well plates | Sarstedt | 83.3930.040 | |
| TPP tissue culture test plate 6 | TPP | 92006 | |
| Triton X-100 | 1% | Carl Roth | 3051.2 |
| Zinc chloride | 0.8 mM | Sigma | Z0152 |
| Zinc formaline | Polyscience | 21516-3.75 |
参考文献
- Massier L, et al. An integrated single cell and spatial transcriptomic map of human white adipose tissue. Nat Commun. 2023;14(1):1438. doi:10.1038/s41467-023-36983-2.
- Rosen ED, Spiegelman BM. What We Talk About When We Talk About Fat. Cell. 2014;156(1-2):20-44. doi:10.1016/j.cell.2013.12.012.
- Ibrahim MM. Subcutaneous and visceral adipose tissue: structural and functional differences. Obes Rev. 2010;11(1):11-18. doi:10.1111/j.1467-789X.2009.00623.x.
- Bruun JM, Lihn AS, Pedersen SB, Richelsen B. Monocyte chemoattractant protein-1 release is higher in visceral than subcutaneous human adipose tissue: implication of macrophages resident in adipose tissue. J Clin Endocrinol Metab. 2005;90(4):2282-2289. doi:10.1210/jc.2004-1696.
- Curat CA, et al. Macrophages in human visceral adipose tissue: increased accumulation in obesity and a source of resistin and visfatin. Diabetologia. 2006;49(4):744-747. doi:10.1007/s00125-006-0173-z.
- Wang QA, Tao C, Gupta RK, Scherer PE. Tracking adipogenesis during white adipose tissue development, expansion and regeneration. Nat Med. 2013;19(10):1338-1344. doi:10.1038/nm.3324.
- Spalding KL, et al. Dynamics of fat cell turnover in humans. Nature. 2008;453(7196):783-787. doi:10.1038/nature06902.
- Weisberg SP, McCann D, Desai M, Rosenbaum M, Leibel RL, Ferrante AW. Obesity is associated with macrophage accumulation in adipose tissue. J Clin Invest. 2003;112(12):1796-1808. doi:10.1172/JCI200319246.
- Lindhorst A, et al. Adipocyte death triggers a pro-inflammatory response and induces metabolic activation of resident macrophages. Cell Death Dis. 2021;12(6):579. doi:10.1038/s41419-021-03872-9.
- Braune J, et al. Multinucleated giant cells in adipose tissue are specialized in adipocyte degradation. Diabetes. 2021;70(2):538-548. doi:10.2337/db20-0293.
- Cinti S, et al. Adipocyte death defines macrophage localization and function in adipose tissue of obese mice and humans. J Lipid Res. 2005;46(11):2347-2355. doi:10.1194/jlr.M500294-JLR200.
- Wehr R, Lindhorst A, Arndt L, Krueger M, Raulien N, Gericke M. Lysosomal exocytosis by macrophages as a druggable mechanism for anti-inflammatory clearance of dead adipocytes in adipose tissue. Cell Death Dis. 2025. doi:10.1038/s41419-025-08334-0.
- Altintas MM, et al. Apoptosis, mastocytosis, and diminished adipocytokine gene expression accompany reduced epididymal fat mass in long-standing diet-induced obese mice. Lipids Health Dis. 2011;10(1):198. doi:10.1186/1476-511X-10-198.
- Lumeng CN, Bodzin JL, Saltiel AR. Obesity induces a phenotypic switch in adipose tissue macrophage polarization. J Clin Invest. 2007;117(1):175-184. doi:10.1172/JCI29881.
- Lumeng CN, DelProposto JB, Westcott DJ, Saltiel AR. Phenotypic switching of adipose tissue macrophages with obesity is generated by spatiotemporal differences in macrophage subtypes. Diabetes. 2008;57(12):3239-3246. doi:10.2337/db08-0872.
- Haka AS, et al. Exocytosis of macrophage lysosomes leads to digestion of apoptotic adipocytes and foam cell formation. J Lipid Res. 2016;57(6):980-992. doi:10.1194/jlr.M064089.
- Strissel KJ, et al. Adipocyte death, adipose tissue remodeling, and obesity complications. Diabetes. 2007;56(12):2910-2918. doi:10.2337/db07-0767.
- Xu R, et al. Lipid-associated macrophages between aggravation and alleviation of metabolic diseases. Trends Endocrinol Metab. 2024. doi:10.1016/j.tem.2024.04.009.
- Gericke M, Weyer U, Braune J, Bechmann I, Eilers J. A method for long-term live imaging of tissue macrophages in adipose tissue explants. Am J Physiol Endocrinol Metab. 2015;308(11). doi:10.1152/ajpendo.00075.2015.
- Gericke MT, et al. Receptors for NPY and PACAP differ in expression and activity during adipogenesis in the murine 3T3-L1 fibroblast cell line. Br J Pharmacol. 2009;157(4):620-632. doi:10.1111/j.1476-5381.2009.00164.x.
- Arndt L, et al. The role of IL-13 and IL-4 in adipose tissue fibrosis. Int J Mol Sci. 2023;24(6):5672. doi:10.3390/ijms24065672.
- Haase J, et al. Local proliferation of macrophages in adipose tissue during obesity-induced inflammation. Diabetologia. 2014;57(3):562-571. doi:10.1007/s00125-013-3139-y.
- Braune J, et al. IL-6 regulates M2 polarization and local proliferation of adipose tissue macrophages in obesity. J Immunol. 2017;198(7):2927-2934. doi:10.4049/jimmunol.1600476.
- Neugebauer J, et al. The Impact of Resident Adipose Tissue Macrophages on Adipocyte Homeostasis and Dedifferentiation. Int J Mol Sci. 2024;25(23):13019. doi:10.3390/ijms252313019.
- Schopow N, et al. Examination of ex vivo viability of human adipose tissue slice culture. PLoS One. 2020;15(5). doi:10.1371/journal.pone.0233152.
- Braune J, et al. Hedgehog signalling in myeloid cells impacts on body weight, adipose tissue inflammation and glucose metabolism. Diabetologia. 2017;60(5):889-899. doi:10.1007/s00125-017-4223-5.
- Van Rooijen N, Van Nieuwmegen R. Elimination of phagocytic cells in the spleen after intravenous injection of liposome-encapsulated dichloromethylene diphosphonate: an enzyme-histochemical study. Cell Tissue Res. 1984;238(2):355-358. doi:10.1007/BF00217308.
- Sasmono RT, et al. A macrophage colony-stimulating factor receptor-green fluorescent protein transgene is expressed throughout the mononuclear phagocyte system of the mouse. Blood. 2003;101(3):1155-1163. doi:10.1182/blood-2002-02-0569.
- Blüher M. Adipose tissue dysfunction in obesity. Exp Clin Endocrinol Diabetes. 2009;117(6):241-250. doi:10.1055/s-0029-1192044.
- Hotamisligil GS, Shargill NS, Spiegelman BM. Adipose expression of tumor necrosis factor-alpha: direct role in obesity-linked insulin resistance. Science. 1993;259(5091):87-91. doi:10.1126/science.7678183.
- Cohen M, et al. Adipose tissue explant culture using PDMS flow chambers: an alternative to static explant culture. Adipocyte. 2025;14(1):2578286. doi:10.1080/21623945.2025.2578286.
- Du ZY, et al. Depot-dependent effects of adipose tissue explants on co-cultured hepatocytes. PLoS One. 2011;6(6). doi:10.1371/journal.pone.0020917.
- Murano I, et al. Dead adipocytes, detected as crown-like structures, are prevalent in visceral fat depots of genetically obese mice. J Lipid Res. 2008;49(7):1562-1568. doi:10.1194/jlr.M800019-JLR200.
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
