本プロトコルでは、ヒト免疫不全ウイルス1型(HIV-1)感染の有無にかかわらず、迅速剖検後の死後脳組織から、高純度のヒト骨髄系細胞/ミクログリアを単離、精製、および培養する方法について説明します。これにより、骨髄系細胞/ミクログリアの生物学、脳内HIVリザーバー、神経炎症、およびHIV治療戦略を研究するための堅牢なex vivoプラットフォームが提供されます。
方法論記事
ヒト免疫不全ウイルス1型の持続性を研究するための脳ミクログリアの単離
* These authors contributed equally
この記事について
サマリー
要約
我々は、HIV-1(HIV)感染の有無にかかわらず、迅速剖検により得られた死後脳組織から、ヒト一次脳骨髄系細胞(BrMCs)を単離、培養し、解析するための堅牢なプロトコルを確立し、最適化した。本プロトコルにおいて、 >BrMCの97.3%は脳ミクログリア(MG)です。したがって、細胞集団をより正確に表現するため、これらの単離されたBrMCをMGまたはBrMCs/MGと呼びます。本手法により、包括的な ex vivo 脳内におけるHIVリザーバーの維持、神経炎症の媒介、および神経損傷への寄与を含むミクログリアの生物学的研究、ならびにHIV治療戦略の評価。
細胞の生存率およびRNA/タンパク質の完全性を維持するため、迅速な研究用剖検後、死後6時間以内に脳組織を採取した。前頭葉、頂葉、後頭葉の皮質、海馬、および基底核を含む複数の領域を、酵素消化と制御された機械的解離を用いて処理し、次いで密度 勾配遠心分離を行うことで、髄鞘デブリを効率的に除去し、赤血球を溶血させた生存可能な単一細胞懸濁液を作製した。その後、純度と特異性を確保するため、CD3⁺ T細胞の除去に続くCD1b⁺磁気ビーズ濃縮からなる2段階の単離手法を用いて、BrMCs/MGを精製した。
精製した骨髄系細胞を、長期間のex vivo培養中の生存能と機能的完全性を維持するため、M-CSFを添加した規定条件下で培養しました。この最適化されたプラットフォームは、脳内HIVリザーバーおよびBrMCs/MGにおける関連メカニズムの下流の分子学的、免疫学的、およびウイルス学的解析のための、信頼性と拡張性を備えた基盤を提供します。
概要
脳骨髄細胞(BrMCs)/ミクログリアは、中枢神経系(CNS)における主要な自然免疫細胞である1,2,3。健康な状態では、これらの細胞は絶えず脳内を監視し、シナプス刈り込み、デブリの除去、ニューロンのサポートなどのタスクを担っている4,5,6。疾患が存在する場合、ミクログリアは免疫学的に活性化され、神経炎症を引き起こし、これが多様なCNS疾患における神経変性において不可欠な役割を果たす7,8,9。HIV-1(HIV)感染において、BrMCs/ミクログリアは、CNS T細胞およびおそらくアストロサイトと共に、脳内における主要なHIVリザーバーとなるが、後者のCNSリザーバーにおける役割は小さいと考えられる。ミクログリアは、効果的な抗レトロウイルス療法(ART)下であっても、潜伏感染し統合されたプロウイルスHIV DNAを保持し、低レベルのHIV RNA発現を維持している10,1,12。BrMCs/ミクログリアにおける持続的なHIV感染は慢性炎症を誘発し、現代のART下であってもHIV関連神経認知障害(HAND)に関連しており、これはHIV陽性者(PWH)の最大50%に認知、行動、運動症状が現れていることで証明されている13,14,15,16。したがって、持続的にHIV感染したミクログリアの機能を理解することは、HIV感染と潜伏の分子メカニズム、ミクログリアとアストロサイトおよび他のCNS細胞とのクロストーク、ニューロン損傷、およびHANDの疾患プロセスを解明するための鍵の一つであり、神経HIVに対する治療標的を特定する上で極めて重要である1,12,17。
しかしながら、ヒトの死後脳組織を用いてミクログリアを研究することには技術的な課題があります。特に白質においてミエリン含有量が高いため、細胞が捕捉されたりフィルターが詰まったりすることがあり、免疫磁気選択の前にミエリンを除去しない限り、細胞回収率が低下します18,19。PWHの死後、TMEM119やP2RY12などの細胞表面マーカーが分解される可能性があり、そのためミクログリアを正確に同定することが困難になります20,21。さらに、HIV感染脳における骨髄系細胞には、ミクログリアといくつかの共通マーカーを共有する末梢性単球や組織常在性マクロファージが存在するため、BrMCs、特にミクログリアの純粋な集団を濃縮させるには追加の手順が必要となります22,23。
ヒトミクログリアを単離するための現在の手法は、HIV感染後の死後組織に対しては十分に機能しません。蛍光活性化セルソーティング(FACS)は包括的な結果が得られますが、高価な装置を必要とし、時間がかかり、また貴重な少量のヒト脳組織からの細胞回収率が低いという課題があります24,25。イムノパニングは特異的ですが、多くの脳領域からのサンプルを同時に処理することができず、インキュベーション時間が長くかかるため、一晩の輸送後に迅速な組織処理を要する死後組織には適していません26,27。また、これらの手法のいずれも、同一のサンプルからTリンパ球と骨髄系細胞の両方を回収することはできず、HIV感染CNS細胞の完全な免疫プロファイリングを行うためには、この両方の回収が必要です17,28。
本プロトコルは、HIV感染後のヒト脳死後組織からミクログリアおよびその他の中枢神経系(CNS)免疫細胞を単離および濃縮するための、再現性と信頼性が高く、効率的な手法を提供する。制御された機械的解離と軽度の酵素消化(例:TrypLE ExpressおよびDNase I)を組み合わせることで、表面抗原を大幅に保持し、細胞凝集を最小限に抑えることができる29,30。ミエリンはPercoll密度勾配遠心法によって除去され、続いてCD3⁺ T細胞およびCD1b⁺ 骨髄系細胞の免疫磁気分離を行う31,32。重要な点として、軽度の酵素条件を用いることで、CD1bやCD68を含む主要な骨髄系マーカー、およびTMEM19やP2RY12などのミクログリア特異的バイオマーカーが保持され、CNS細胞の正確な特性評価および下流のシグナリング経路解析が可能になる33。また、この2段階の選択アプローチにより、ウイルス学的および免疫学的研究に適した高純度のCD3⁺ T細胞分画が得られる。これは、CNSにおけるウイルスのリザーバーとしてのT細胞の役割や、T細胞の脳内浸潤後のHIV関連神経損傷を考慮すると、NeuroHIVにおいて特に重要である34,35。
全体として、このCD3の初回除去から始まる2段階の逐次的なアプローチは、⁺ T細胞、それに続くCD1bの濃縮⁺ CD3陰性画分からの骨髄系細胞の回収は、細胞の純度と中枢神経系(CNS)細胞の回収率の両方を向上させると同時に、希少で限られた貴重な組織サンプルの利用を最大化します。単離された細胞は、バルクおよびシングルセルRNAシーケンシング、フローサイトメトリー、機能解析、およびHIV DNA/RNA定量やCNS常在免疫細胞内の複製能を有するウイルスリザーバーを決定するためのウイルス増殖アッセイを含むウイルス学的解析など、幅広いダウンストリームアプリケーションに適しています。17,36,37.
多くのPWHはARTによる抑制下にあるか、終末期に短期間のART中断があったのみであるため、本プロトコルはBSL-2+条件下で死後脳組織処理が可能な設備を備えた研究室に適しています。また、分離後のBrMCs/ミクログリアの特異性を検証するには、標準的な免疫磁気分離およびフローサイトメトリープラットフォームのみが必要です。わずかな変更を加えることで、アルツハイマー病、多発性硬化症、long COVID19、および外傷性脳損傷38,39,40などのCNS疾患の研究にも適応させることができます。本プロトコルは、SIVmac251またはSIVmac239に感染した非ヒト霊長類(NHPs)12,41、およびHIV感染または潜伏状態のヒト化マウスモデルからの脳細胞分離に対しても最適化されており、脳におけるHIV感染の生理学的に関連したモデルを提供します。ヒトの脳とは異なり、これらの動物モデルはより容易にアクセス可能であり、HIV感染、HIV潜伏、および関連するneuroHIVのメカニズム研究やトランスレーショナル研究にとって貴重な補完的リソースとなります。
プロトコル
注:ヒトおよび非ヒト霊長類(NHP)の組織はすべてBSL-2条件下で取り扱うこと。Percoll処理、ACKバッファー、およびDMSOの使用時には、ガウン、手袋、マスク、フェイスシールドを含む適切な個人用保護具を着用すること。化学廃棄物および生物学的廃棄物は、施設内のガイドラインに従って廃棄すること。メス、ピペット、ペトリ皿など、組織解離に使用したすべての使い捨て器具は、バイオハザードバッグに廃棄する前に10%漂白剤で洗浄すること。ピンセットや鋏などの再利用可能な器具は、洗浄およびオートクレーブ処理を行う前に10% SDSで洗浄すること。
1. 脳組織の採取
- ヒト試料
注:本研究で使用したヒト組織は、カリフォルニア大学サンディエゴ校(UCSD)の制度審査委員会(IRB)によって承認されたプロトコル(IRB No. 160563)に基づいて収集された。12ヒトドナーは、抗レトロウイルス療法(ART)を受けているHIV陽性の個人とした。年齢、性別、死後経過時間(PMI)、およびARTの状態を含む主要なドナー特性についてここに簡潔にまとめるが、これらのドナー特性の詳細については、既報の論文において丁寧に記述されている。12.- 死亡後6時間以内に組織を採取する 細胞生存率およびRNAの完全性を維持するため、24時間以内に処理ラボへ送付してください。
- 非ヒト霊長類サンプル
注:アカゲザル(*Macaca mulatta*)は、エモリー国立霊長類研究センター(ENPRC, PROTO20170286)またはカリフォルニア国立霊長類研究センター(CNPRC, UCD IACUC #22832)で飼育された。動物のケアおよび実験手順は、それぞれの施設動物ケアおよび使用委員会(IACUC)の規定に従って実施され、施設および連邦政府のガイドラインを遵守した。すべての動物飼育施設は、米国農務省および国際実験動物ケア評価認定協会(AAALAC)の認定を受けている。- 剖検後直ちに組織を採取する12.
- 組織採取
注意:すべての操作は、氷上に置いたあらかじめ冷却したウェイボート内で行ってください。- 組織の利用可能性に応じて、脳領域(例:前頭前野、頂葉、後頭葉皮質、海馬、基底核)あたり2~20 gを採取する。
- 組織を、ART(ネビラピン 10 nM、ラルテグラビル 200 nM、ダルナビル 25 nM)を添加した氷冷DMEM/F12に置く。組織を以下の状態で保持する。 4 °C.
- 輸送条件
- サンプルを密閉チューブに入れ、以下で保存してください。 4 °C 氷上で。
- 認定された人員が、以下の条件でチューブを輸送するようにしてください。 UN373 カテゴリーB規定12氷上に載せて、翌日配送で処理室へ輸送する。
2. 組織の調製
- 組織を50 mLチューブに移す。DNase(10 U/mL)を含む冷HBSS 20–40 mLを用いて、チューブを穏やかに転倒混和させながら、上清が透明になるまで組織を10–15回洗浄する。
注:これにより血液、デブリ、および不純物が除去されるため、洗浄中に組織片が自由に動くのに十分な液量であることを確認すること。 - 滅菌ピンセットを用いて、髄膜および太い血管を除去し、廃棄する。
- 組織を新しいペトリ皿に移し、脳領域ごとに組織重量(容器を除く)を記録する。
- HBSS + DNase I (10 U/mL) 約10 mL中で、滅菌ピンセットを用いて組織を約1–2 mmの断片に引き裂く。
注:メスを用いてペトリ皿内で細切することも可能である。
3. 酵素消化
- 1x 組換え細胞解離酵素 10 mL と DNase I(最終濃度 10 U/mL)を混合し、消化液を調製する。
- ロータリーシェーカーを~まで予熱します。 37 °C およびDNase I(最終濃度10U/mL)を含む組換え細胞解離酵素を、 37 °C インキュベーター
- ステップ3.1の消化液に入った組織をフラスコ(液量に応じてT150)に移します。 > 50 mL。より小さいフラスコを使用する場合は <(50 mL)とし、以下の条件で回転振盪培養機を用いてインキュベートする。 37 °C、150 rpmで30分間。
- 10 mLおよび5 mLのピペットを用いて、緩やかにピペッティングを行い、十分に混和させる。
注意:激しいピぺッティングは避けてください。 - 組織を安定させるため、室温で5分間インキュベートする。
- 細胞の回収
- 上清を50 mLチューブに回収します。これが コレクション #1回収した上清に10% FBSを加え、酵素活性を停止させる。
- 残りの組織をHBSS + DNase I (10U/mL) + 10% FBS (組織1gあたり10mL) に再懸濁する。穏やかにピペッティングし、70μmのフィルターでろ過する。100 µm ストレーナー
注:酵素消化が適切に行われていれば、すべての組織がストレーナーを通過します。 - 50で遠心分離する × g、室温で10分間;これは コレクション #2.
注:回収率を最大にするため、懸濁液を静置させて沈殿させ、上清のみを新しいチューブに移してください。
- 最終処理
- 回収液(C1およびC2)を500で遠心分離します。 × g 10分間。
- 上清を捨てる。C1とC2の細胞ペレットを1本のチューブにまとめて回収する。
4. ミエリンデブリの除去(Percoll密度勾配遠心法)
- Percollを9部、10倍濃縮HBSSを1部の割合で混合し、等張Percoll(SIP)を調製する。組織1gあたり約2.5 mLとなる十分な量を調製すること。
- 3.5 mLのSIPと5.5 mLの1x HBSSを混合し、35% Percoll作業溶液を調製します。組織1gあたり約4.5 mLとなる十分な量を調製してください。
- 密度勾配分離
- ステップ3.7.2で得られた細胞ペレットを35% Percollで再懸濁する。35% Percollの使用量は、元の組織重量(すなわち、解離前に測定した組織重量)1gあたり約4.5mlとする。
- 注:50 mLチューブを用いて、細胞を35% Percollで再懸濁する(1本あたり最大30 mLまで)。組織が大きい場合は、細胞を複数の50 mLチューブに分けて分注すること。
- 各チューブに1x HBSSを10 mLずつ注意深く重層する。氷上または~で5分間インキュベートする。 4 °C.
- 80 x gで遠心分離する × g、45分、 4 °C (減速時のブレーキなし)。
- 層の回収
- 下層のインターフェースを乱さないように注意して、上清と髄鞘層を慎重に除去してください。
- デブリの混入を避けるため、ペレットおよびインターフェース(混合脳細胞を含む髄鞘層とPercoll画分の下層)を新しい50 mLコニカルチューブに回収する。
- 希釈および洗浄
- HBSSを3:1の比率で加え(例:回収した懸濁液10 mLに対してHBSS 30 mL)、Percollを希釈する(約3倍希釈)。
- 1,0 rpm(または g)で遠心分離する × g、10分間(〜で) 4 °C (フルブレーキおよびフル加速を使用してください)。
- 上清を完全に除去する。
- 赤血球溶血および細胞計数
- ステップ4.5.3で得られたセルプレートをACKバッファーで処理します(5 mL、10分間)。 37 °C).
- トリパンブルーを用いて生存細胞数を計測する。
- 注:期待収量:~0.1–1 × 10⁶ 組織の状態により、組織1gあたりのCNS細胞数。
- ACK溶血バッファーを不活性化させるため、PBSを10 mL加える。500 rpmで遠心分離を行う。 × g 5分間。
注:任意の停止点: 細胞は、ソーティング前に0.5–1×10^6 cells/mLの密度で一晩培養してもよい。 × 106 培地(DMEM/F-12、ピルビン酸ナトリウム含有グルタミンサプリメント (50 mL)、10%熱不活化FBS、1x HEPES緩衝液、1x 抗生物質・抗真菌剤 (10xストック溶液 5.5 mL)、10 ng/mL MCSF (1,0xストック溶液))あたりの細胞数(cells/mL)
上述の組織解離、赤血球溶血、細胞計数、および任意で実施する一晩の培養ステップの完了後、CD3+ およびCD1b+ 市販の細胞分離キットを用い、製造元のプロトコルに従って細胞集団を分離した。キット、試薬、および詳細な分離手順に関する情報は、以下の項目に記載されている。 材料表、分離ワークフローの簡潔な概要を以下に示す。
5. CD3⁺ T細胞の単離(ポジティブセレクション)
注:まず、CD3用の放出形式免疫磁気ポジティブセレクションキット(材料表を参照)を用いて、調製した単一細胞懸濁液からCD3+を分離します。この工程で得られたCD3+およびCD3-の両分画を保持してください。CD3-分画はステップ6で必要となります。
- リリースバッファーを調製する。
- 使用当日に40xリリースバッファー濃縮液を細胞分離バッファーで希釈して1xリリースバッファーを調製し、4–6 °Cまたは氷上で保持する。
注意:処理するサンプル1つにつき、1xリリースバッファーを2.5 mL調製すること。
- 使用当日に40xリリースバッファー濃縮液を細胞分離バッファーで希釈して1xリリースバッファーを調製し、4–6 °Cまたは氷上で保持する。
- 細胞サンプルを調製し、セレクションカクテルでラベル化する。
- ステップ4.6.3で得られた細胞ペレットを、5 mLの丸底ポリスチレンチューブ内で細胞分離バッファーを用いて1 × 10⁸ cells/mLに再懸濁する。
- サンプル1 mLあたり10 µLのCD3セレクションカクテルをサンプルに加える。サンプルを穏やかに混ぜ、室温で3分間インキュベートする。
- 磁性粒子でサンプルをラベル化する。
- 使用直前に磁性粒子を30秒間ボルテックスする。サンプル1 mLあたり10 µLの磁性粒子をサンプルに加える。サンプルを穏やかに混ぜ、室温で3分間インキュベートする。
- 細胞分離バッファーを用いてサンプルの全量を2 mLにし、ピペッティングで懸濁液を2〜3回穏やかに上下に混ぜる。
- 磁気分離によりCD3+画分を単離する。
- キャップを外したサンプルチューブを磁気細胞分離装置にセットし、室温で5分間インキュベートする。
- 注意:磁性粒子に結合した細胞がCD3+画分となり、磁場内のチューブ壁に付着したままとなる。結合していない上清がCD3-画分となる。
- チューブを磁気分離装置から取り出さずに、上清をCD3-画分用として指定した、ラベル付きの清潔な15 mLコニカルチューブにピペットで移す。
- チューブを磁気分離装置から取り出し、保持された細胞を2 mLの細胞分離バッファーで穏やかに再懸濁する。
- ステップ5.4.1から5.4.3までを繰り返し、計3回の5分間の磁気分離を行い、すべての上清を同一のCD3-画分用チューブに回収する。
- 磁性粒子からCD3+画分を遊離させる。
- 保持された細胞に1xリリースバッファー(ステップ5.1.2で調製)を2.5 mL加え、ピペッティングで懸濁液を2〜3回穏やかに上下に混ぜる。懸濁液を室温で3分間インキュベートする。
- キャップを外したチューブを磁気細胞分離装置にセットし、室温で5分間インキュベートする。
- チューブを磁気分離装置から取り出さずに、上清をCD3+画分用として指定した、ラベル付きの清潔な15 mLコニカルチューブにピペットで移す。
注意:リリースバッファーによってラベル化された細胞から磁性粒子が離脱する。得られた上清が精製されたCD3+画分であり、残留した磁性粒子は磁場の中でチューブ壁に結合したままとなるため、廃棄する。
- 細胞計数および凍結保存
- 細胞数を計測する。残りの細胞を凍結保存液(90% FBS + 10% DMSO)中で、イソプロパノールベースの凍結媒体を用いて24時間かけて凍結させた後、サンプルを液体窒素に移し、CD3+分注液を-80 °Cで急凍結して保存する。
6. CD11b⁺骨髄系細胞の分離(CD3⁻画分より)
注:ステップ 5.4.4 で回収した CD3- 分画に対し、anti-CD1b 磁気マイクロビーズとカラム形式の磁気分離装置(材料表を参照)を用いて、CD1b+ 骨髄系細胞を単離するための2回目の免疫磁気陽性選択処理を行いました。
- 分離バッファーの調製および細胞数の測定
- 20x濃縮液を等張洗浄液で希釈して1x BSAベース分離バッファーを調製し、使用直前まで冷所で(4–8 °C)保存する。
- ヘモサイトメーターまたは自動細胞カウンターを用いて、CD3画分中の総細胞数を測定する。
- anti-CD1b磁気マイクロビーズによる細胞のラベル化
- 細胞懸濁液を30 × gで10分間遠心分離し、上清を完全に吸引除去する。
- 総細胞数1 × 10⁷個あたり80 µLの1x BSAベース分離バッファーで細胞ペレットを再懸濁する。
- 総細胞数1 × 10⁷個あたり20 µLのanti-CD11b磁気マイクロビーズを加え、十分に混ぜた後、4–8 °Cで15分間インキュベートする。
- 注意:冷蔵庫ではなく濡れた氷上でインキュベートする場合、より長いインキュベーション時間が必要になることがある。推奨時間を超えてインキュベートしたり、より高い温度でインキュベートしたりすると、非特異的な細胞ラベル化のリスクが高まる可能性がある。
- 総細胞数1 × 10⁷個あたり1 mLの1x分離バッファーを加え、30 × gで10分間遠心分離し、上清を完全に吸引除去することでラベル化細胞を洗浄する。
- 最大1 × 10⁸個の総細胞を50 µLの分離バッファーに再懸濁する。
- カラムを用いた磁気分離の実施
- 磁気分離カラムを磁気セパレーターにセットし、小容量カラムの場合は50 µL、大容量カラムの場合は1 mLの1x分離バッファーで洗浄して平衡化し、洗浄液を廃棄する。
注意:サンプル中の総細胞数が少ない場合は小容量カラムを使用する。脾臓由来または混合免疫調製物など、総細胞数が多いサンプルには大容量カラムを使用する。 - 平衡化したカラムの下に清潔な5 mLラウンドボトムポリスチレンチューブを配置し、50 µL(小容量カラム)または1 mL(大容量カラム)のラベル化細胞懸濁液をカラム上部に添加する。
- サンプルが完全にカラムに入った後、小容量カラムの場合は1回あたり50 µL、大容量カラムの場合は1回あたり1 mLの1x分離バッファーを加え、カラムを3回洗浄する。次回の洗浄液は、カラムのリザーバーが空になった後に添加すること。
注意:ステップ6.3.2および6.3.3で回収した回収液の合計が、非ラベル化のCD1b-画分となる。 - カラムを磁気セパレーターから取り外し、CD11b+画分用に指定した清潔でラベル付きの5 mLポリスチレンチューブの上に配置する。
- 1 mL(小容量カラム)または2 mL(大容量カラム)の1x分離バッファーをカラム上部にピペッティングし、カラム付属のプランジャーを強く押し下げて、ラベル化細胞を直ちに回収チューブへフラッシュさせる。
- 磁気分離カラムを磁気セパレーターにセットし、小容量カラムの場合は50 µL、大容量カラムの場合は1 mLの1x分離バッファーで洗浄して平衡化し、洗浄液を廃棄する。
- CD1b+画分の定量および後続処理
- 両画分(CD1b+およびCD1b-)の細胞数をカウントする。CD1b-分画は、残りの細胞を凍結保存液(90% FBS + 10% DMSO)に混和し、イソプロパノールベースの凍結媒体中で-80 °Cで24時間かけて緩慢凍結させた後、液体窒素に保存する。
- CD1b+ 細胞を後続の実験に使用する。
結果
本プロトコルで説明する最適化されたワークフローにより、死後HIV感染ヒト脳組織から、生存しており高度に濃縮されたT細胞およびBrMCs/ミクログリアを再現性高く単離することが可能になります。プロトコルの正常な実行は、細胞生存率の評価、回収量の定量化、および主要段階における免疫表現型解析を含む一連の品質チェックポイントを通じて確認されます。以下に、実験が成功した際の代表的な結果を記載します。
組織の解離および細胞の回収
図1Aに概説されているように、機械的解離および密度勾配遠心分離の後、適切に処理されたサンプルでは、Percoll遠心分離後に残留した髄鞘デブリが最小限に抑えられ、視覚的に透明なペレットが得られるはずである。PWHから得られた迅速剖検脳組織を用いた代表的な実験において、免疫磁気選択前の全細胞回収量は、通常、脳組織1gあたり8.0 × 10⁴から1.0 × 10⁶ cellsであり、これは脾臓組織からの回収量(~5 × 10⁷ cells/g)よりも大幅に少なく(表1)、これらの組織間の固有の生物学的相違を反映している。
収量の低下や生存率の減少は、死後経過時間の延長(>24 h)、不適切な組織保存条件、またはホモジナイズ時の過剰な機械的負荷に関連することが多い。このような場合、Percoll遠心分離後の髄鞘層はより厚く拡散して見え、中枢神経系(CNS)細胞を含む界面の境界が不明瞭になる。髄鞘層の除去(プロトコルステップ4.4)が不十分な場合、髄鞘の残渣による混入が生じ、トリパンブルー排除法による計数時に死細胞として誤認される可能性がある。また、この混入は後続の抗体ラベル化を妨げ、磁気分離の効率を低下させる恐れがある。髄鞘の持ち込みが疑われる場合は、免疫磁気選択の前に、追加のPercoll密度勾配遠心分離ステップを行うことが推奨される。
CD3+ T細胞画分
CD3⁺ T細胞のポジティブセレクションステップには2つの目的があります。1つは、並行して行うCNS細胞解析のためにT細胞画分を濃縮することであり、もう1つは、骨髄系細胞濃縮画分から浸潤Tリンパ球を除去し、単離した骨髄系細胞への潜在的なT細胞混入を排除することです。代表的な実験において、CD3⁺画分は全単離細胞の約2~8%(組織1gあたり約1 × 10⁴個の細胞)を占めており(表1)、これはHIV感染CNS組織におけるT細胞の浸潤が限定的かつ低レベルであるという先行報告と一致しています。
CD1b⁺ BrMCの濃縮、特性解析およびex vivo培養
CD3⁺除去後、CD3⁻画分に対して磁性マイクロビーズを用いたCD1b⁺選択を行った。既報(12)の通り、この手順により、選択前の画分では28.4%であったCD1b⁺ BrMCを95.2%まで濃縮することができた。T細胞マーカーであるCD3Eに対する高感度RT-qPCR(BrMC 10万個中1個のT細胞を検出可能)の結果、単離したBrMCs/ミクログリアにおいてT細胞は検出されず(12)、高い純度が確認され、T細胞の混入がないことが証明された。
精製したCD1b⁺ BrMCをミクログリア細胞培地で最大2週間培養し、細胞の回復と接着を促して細胞増殖を開始させた。図1Bに示すように、単離したヒトBrMCは単離後5日目という早い段階で単層を形成し、双極性の形態を示した。これらの細胞は、ex vivoでの測定、特性解析、および後続の機能解析に使用可能な状態となる。非ヒト霊長類(NHP)脳から単離したCD1b⁺画分の代表的なフローサイトメトリーによる純度解析を図2Aに示す。ここでは、細胞の97.3%がCD1bとTMEM19を共発現していることが示されている。ヒトおよび他のNHP BrMC調製物の純度は、以前に報告されている12。それらの解析において、CD11b⁺画分は28.4%から95.5%まで濃縮され、ヒトサンプルから単離された集団のうちTMEM19⁺細胞は最大95.9%を占めていた。少数が他の脳 resident myeloid cell集団である可能性があるが、本研究ではこれらの細胞をミクログリアと呼ぶ。
同様の手順を適用して、脾臓CD3細胞を単離することも可能です。⁺ T細胞およびCD1b⁺ 骨髄系細胞 (SMCs) (表1). 純度評価により、CD3陽性細胞が約98.9%であることが示された。+ 細胞および9.3%のCD1b+ 細胞 (図2B,C)これらの生存細胞集団(図2E,F)を培養状態で維持することができ、これにより単離した中枢神経系(CNS)細胞とのペア比較解析が可能になる(図2D).
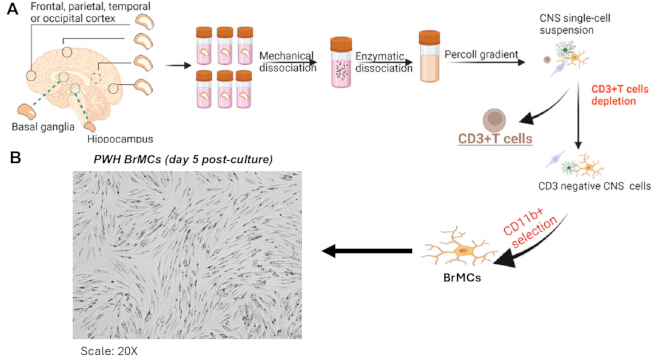
図1。BrMCsを精製するための2段階の連続分離手順。(A) CD1b⁺ BrMCsを精製するための2段階のCNS細胞分離手順の概略図。(B) 培養5日後のBrMCsの形態(10倍拡大)は、MGがディッシュに正常に接着したことを示している。略語:BrMCs = 脳骨髄細胞、CNS = 中枢神経系、MG = ミクログリア。こちらのリンクをクリックして、この図の拡大版を表示してください。
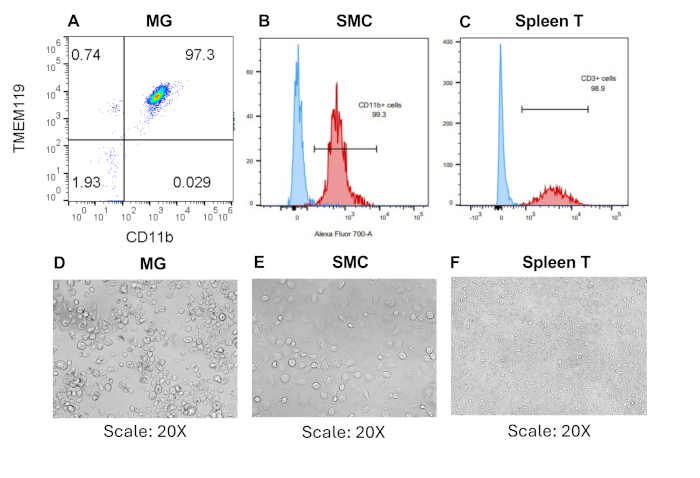
図 2脾臓T細胞および骨髄系細胞の分離成功。 (A-C) CD3のフローサイトメトリー解析⁺ およびCD1b⁺ 指示された抗体を用いて分画し、(D-F代表的な画像(下)は、ミクログリアおよびCD3を示している。⁺ 脳および脾臓から単離後7日間の培養後のT細胞および脾臓骨髄系細胞(倍率:20倍)。略称:SMCs = 脾臓骨髄系細胞、MG = ミクログリア。 こちらの図の拡大版を表示するには、ここをクリックしてください。
| 領域 | 組織重量 (g) | 分離前処理 | CD3+ T細胞 | CD1b+ 脳微小血管細胞/平滑筋細胞 | |||
| HIV陽性者 | 生細胞 | 細胞数/組織g | 生細胞 | 細胞数/g組織 | 生細胞 | 細胞数/組織g | |
| 流動細胞プラットフォーム | 18.25 | 8.82E+06 | 4.83E+05 | 7.30E+05 | 1.3E+04 | 2.82E+06 | 1.5E+05 |
| プロカルシトニン | 4.1 | 3.53E+05 | 8.61E+04 | 1.20E+05 | 2.93E+04 | ||
| TCX | 16 | 4.15E+06 | 2.59E+05 | 2.79E+06 | 1.74E+05 | ||
| 経口避妊薬 | 4.24 | 1.75E+06 | 4.13E+05 | 4.50E+05 | 1.06E+05 | ||
| CRB | 11.4 | 4.15E+06 | 3.64E+05 | 2.64E+06 | 2.32E+05 | ||
| H | 1 | 1.23E+06 | 1.23E+06 | 6.0E+04 | 6.0E+04 | ||
| SPL | 5.25 | 2.82E+08 | 5.37E+07 | 2.98E+07 | 5.68E+06 | 9.60E+06 | 1.83E+06 |
表1: CNS細胞の2段階分離後の各細胞型の収量。
ディスカッション
本プロトコルを用いて再現性のあるデータを収集するには、各ステップを慎重に実施することが重要です。一部の手順を省略したり、急いで行ったりすると、細胞の回収量、生存率、および純度が低下する可能性があります。解析前の最も重要な要因は、死後いかに迅速に組織を処理するかです42。ヒト脳組織は、可能な限り速やかに、理想的には6–12 h以内に処理する必要があります。時間を置くと、TMEM19やP2RY12などのミクログリア表面抗原が分解され、細胞生存率が低下します20。これを避けるため、組織を速やかに搬送し、DNase Iを含むHBSSを用いて直ちに4 °Cで保存することが不可欠です。
機械的な解離は慎重に調整する必要があります43。過剰なホモジナイズは細胞を破壊しDNAを放出させ、それが凝集の原因となって収量とカラム効率の両方を低下させます44。組織のホモジナイズが不十分な場合、生細胞が組織片の中に閉じ込められたままになります。解離培地にDNase Iを添加すると、凝集の防止に役立ちます45。通常、洗浄を挟みながら3〜4回の研磨サイクルを行うことで良好な結果が得られます。Percoll密度勾配遠心分離では、遠心分離機の設定を正確に守り、ブレーキを使用しないことが重要です。ブレーキを使用すると層が混ざり合い、細胞の分離が損なわれるためです45。Percoll懸濁液にHBSSを添加する際は、層を分けたままにするため、HBSSをチューブの壁面に沿ってゆっくりと注いでください。不慣れな場合は、貴重な組織を使用する前に、着色した溶液を用いて練習することをお勧めします。CD1b+磁気カラム分離の間、細胞およびすべてのバッファーは4–8 °Cに保持する必要があります。マイクロビーズのインキュベーション中に温度がこれを超えると、非特異的ラベル化、抗体キャッピング、およびビーズの取り込みが引き起こされる可能性があり、これらすべてが純度と選択効率を著しく低下させます3。
本プロトコールは、異なる組織タイプやラボの設備に合わせて調整可能です。心臓灌流が不完全な場合など、組織に赤血球が多く含まれている場合は、Percoll密度勾配遠心分離の前にACK溶血ステップを追加して赤血球を除去し、分離能を向上させることができます46。ACKによるインキュベーションを長時間行うと、白血球の生存率が低下する可能性があるため注意してください47。回収率が低いままである場合は、ストレーナー上に残った残渣を解剖顕微鏡で確認してください。生存組織が多く残っている場合は、研磨サイクル回数を増やすか、ストレーナー1枚あたりの組織片を0.5 g未満に細かく切断してください。Percoll勾配から回収する際は、界面を失うリスクを避けるため、ペレットの上に少量のPercollを残しておくのが理想的です。MACS分離中にカラムが詰まった場合は、通常、ロードした細胞数が多すぎるか、懸濁液中に残渣が残っていることを示しています。
本プロトコルはHIV感染したヒト脳組織向けに設計されていますが、結果を解釈する際にはいくつかの重要な限界を考慮する必要があります。機械的な解離は常に細胞ストレスを誘発し、それが一時的にミクログリアの遺伝子発現を変化させ、炎症経路を活性化させる可能性があります3,48。もう一つの限界は、主要な選択マーカーとしてCD1bを使用している点です。CD1bはミクログリアだけでなく、多くの中枢神経系(CNS)骨髄系細胞に認められるほか、神経炎症によりHIV感染組織でより一般的に見られる浸潤単球やマクロファージにも発現しています49。常在性ミクログリアと浸潤細胞を区別するには、TMEM19、P2RY12、SALL1などのミクログリア特異的マーカーを用いたさらなる解析が必要です20,50。3つ目の限界は、組織の入手可能性とドナー間の差異です。死後ヒト脳検体は代替不能であるため、同一ドナーからのテクニカルレプリケートを用いてプロトコルを最適化することは極めて困難です。また、組織間で回収率、生存率、およびミクログリアの活性化状態にばらつきがあり、特にPWHにおいては、神経認知状態、ARTの治療歴、およびその他の健康上の問題が大きく異なります。これらの差異は、実験において慎重に記録し、制御する必要があります。
CD1b、CD45、TMEM119、またはP2RY12に対する抗体を用いたFACSベースの単離は、他の方法と比較して高い純度を達成できますが、高価な装置を必要とし、時間がかかり、細胞ストレスを増大させます3,51。また、磁気ビーズを用いた方法よりも細胞回収率が低くなります52。免疫パンニングは非常に特異的ですが、同様に時間を要し、特殊な基質の調製が必要であり、複数の領域からの組織処理においてスケールアップが困難です53。市販の酵素解離キットは、単一細胞の収量を向上させ、機械的ストレスを軽減できますが、コストが高く、プロテアーゼ活性によって細胞表面マーカーが改変される可能性があり、その結果、後続の免疫磁気分離やフローサイトメトリーにおける標識効率が低下することがあります54,5。したがって、本プロトコルでは、表面抗原を維持するために主要な解離ステップで穏やかな酵素消化を含めており、これはCD1b、CD68、TMEM19などの感受性の高いマーカーにとって特に重要です。ここで用いる、CD3+ T細胞の除去に続いてCD1b+陽性選択を行う段階的な免疫磁気除去・濃縮アプローチは、単一ステップのプロトコルに対して実用的なワークフロー上の利点を提供します。これにより、骨髄系画分の純度を最大化しつつ、並行して免疫学的研究を行うためのT細胞の回収が可能になります。この二重の回収は、CNSにおけるT細胞と骨髄系細胞の両方を研究することが重要なHIVリザーバー研究において特に有用です。
単離されたCD1b+細胞は、さまざまな研究用途に使用できます。ウイルスリザーバーの研究においては、この画分はHIV p24抗原の測定、ドロップレットデジタルPCRによるHIV DNA/RNAコピー数の測定、およびex vivoウイルス再増殖アッセイ56,57に適しています。これらすべてには生存した濃縮骨髄系細胞が必要であり、ART投与下でも持続するCNSリザーバーを理解する上で重要です58。トランスクリプトーム研究に関しては、本プロトコルで調製した細胞はバルクおよびシングルセルRNAシーケンシングの両方に適しています59,60。これにより、研究者はマイクログリアの活性化、疾患関連マイクログリアのシグネチャー、およびHIV感染に対するマイクログリアの応答をシングルセルレベルで研究することが可能になります61。異なる選択キットの使用やグラジエント容量の調整などのわずかな変更を加えることで、このワークフローは、死後組織のマイクログリア解析が必要とされるアルツハイマー病、多発性硬化症、long COVID19、外傷性脳損傷を含む他の神経疾患にも適用できます49,62。
要約すると、本プロトコルは、ヒトおよび動物の脳組織から骨髄系細胞およびミクログリアを分離するための、信頼性が高く、スケーラブルで柔軟、かつ再現性のある手法を提供するものである。本手法は多くのダウンストリームプラットフォームに対応しており、単一の組織サンプルから複数の免疫細胞タイプを回収できるため、神経免疫学、ウイルス学、および神経病理学の研究者にとって有用なツールとなる。
開示事項
著者らに申告すべき利益相反はありません。
謝辞
We thank Dr. Sara Gianella from the “Last Gift” cohort at UC San Diego for collecting human tissues. We also thank Dr. Ann Chahroudi at the Emory National Primate Research Center, Dr. Afam Okoye at Oregon Health & Science University, and Dr. Satya Dandekar at the University of California, Davis, for providing rhesus macaque tissues. This work was supported by R21MH128034, R01MH136852, R21AI167709, R01MH139446, and R01AI186609. The funders had no role in study design, data collection and analysis, decision to publish, or preparation of the manuscript.
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 10 mLシリンジ | VWR | Cat# 76837-040 | |
| 25 mL セロジカルピペット | VWR | カタログ番号 76201-710 | |
| ACK溶解バッファー | Thermo Fisher Scientific | Cat# A1049201 | |
| 抗生物質・抗真菌剤 (10倍濃縮液) | Thermo Fisher Scientific | カタログ番号 1524012 | |
| autoMACS洗浄液 | Miltenyi Biotec | カタログ番号 130-091-2 | |
| バイオセーフティキャビネット (BSL-2) | |||
| CD1bマイクロビーズ、ヒトおよびマウス – 凍結乾燥された | Miltenyi Biotec | カタログ番号 130-097-142 | |
| CD1bマイクロビーズ、非ヒト霊長類用 | Miltenyi Biotec | Cat# 130-091-10 | |
| CD3 MicroBead Kit、非ヒト霊長類用 | Miltenyi Biotec | カタログ番号 130-092-012 | |
| 細胞計数用スライド | Thermo Fisher Countess | カタログ番号 C10312 | 代替品 VWR、Cat# 1028-050 |
| Clorox 殺菌漂白剤 | Essendant | カタログ番号 5037150 | |
| Corning 未処理培養ディッシュ | Thermo Fisher Scientific | Cat# 08-72-32 | |
| カニクイザルM-CSF | Kingfisher Biotech | カタログ番号 RP1612Y-10 | |
| ルアーロックチップ付き使い捨てシリンジ | BD | Cat# 14-829-45 | |
| DMEM/F-12 | Thermo Fisher Scientific | カタログ番号 1320082 | |
| リコンビナントDNase I、RNaseフリー | Roche | Cat# 471672801 | |
| EasySepバッファー | STEMCELL Technologies | カタログ番号 2014 | |
| EasySep FITC ポジティブセレクションキット II | STEMCELL Technologies | カタログ番号 17682 | |
| EasySep Release ヒトCD3ポジティブ選択キット | STEMCELL Technologies | カタログ番号 1751 | |
| Falconセルストレーナー 70 µm および 100 µm | Corning | Cat# 2108-950 | |
| ウシ胎児血清 (FBS) | VWR | Cat#97068-091 | |
| 微細湾曲ピンセット | VWR | カタログ番号 82027-410 | |
| ゲンタマイシン | Thermo Fisher Scientific | カタログ番号 15750060 | |
| Gibco RPMI 1640 | Thermo Fisher Scientific | カタログ番号 11875-19 | |
| HBSS、1倍、カルシウム、マグネシウム、フェノールレッド不含 | Thermo Fisher Scientific | カタログ番号 14175103 | |
| HBSS, 10倍濃度(カルシウム、マグネシウム、フェノールレッド含有) | Thermo Fisher Scientific | カタログ番号 14060040 | |
| 血球計数器または自動細胞カウンター | |||
| ヒトM-CSF | PeproTech | Cat# 30-25 | 代替製品 Cat# 78057 |
| 磁気分離用等張リンス・希釈溶液 | Miltenyi Biotec | 130-091-222 | |
| L-グルタミン (20 mM) | Thermo Fisher Scientific | カタログ番号 25030-061 | |
| MACS BSAストック溶液 (20x) | Miltenyi Biotec | Cat# 130-091-376 | |
| 磁気分離システム | EasySepまたはMACS | ||
| MSカラム | Miltenyi Biotec | カタログ番号 130-042-201 | |
| ペニシリン-ストレプトマイシン | Thermo Fisher Scientific | カタログ番号 1514012 | |
| Percoll | Cytiva/GE Healthcare | Cat# GE17-0891-01 | |
| 防護ガウン | Kappler ProVent | Cat# 17-988-497B | |
| 冷却遠心機 | |||
| ピルビン酸ナトリウム (10 mM) | Thermo Fisher Scientific | カタログ番号 11360070 | |
| 検体鉗子 | VWR | カタログ番号 82027-40 | 代替カタログ番号 82027-438 |
| 滅菌使い捨てメス | Cardinal Health | カタログ番号 11213-237 | VWR代替品 Cat# 89140-80 |
| TrypLE Express Enzyme (1x)、フェノールレッド含有 | ThermoFisher | カタログ番号 1250510 |
参考文献
- Prinz M, Masuda T, Wheeler MA, Quintana FJ. Microglia and central nervous system-associated macrophages: from origin to disease modulation. Annu Rev Immunol. 2021;39:251-77.
- Labzin LI, Heneka MT, Latz E. Innate immunity and neurodegeneration. Annu Rev Med. 2018;69:437-49.
- Thompson KK, Tsirka SE. The diverse roles of microglia in the neurodegenerative aspects of central nervous system (CNS) autoimmunity. Int J Mol Sci. 2017;18(3):504.
- Cornell J, Salinas S, Huang HY, Zhou M. Microglia regulation of synaptic plasticity and learning and memory. Neural Regen Res. 2022;17(4):705-16.
- Konishi H, Kiyama H, Ueno M. Dual functions of microglia in the formation and refinement of neural circuits during development. Int J Dev Neurosci. 2019;77:18-25.
- Fujita Y, Yamashita T. Neuroprotective function of microglia in the developing brain. Neuronal Signal. 2021;5(1):NS20200024.
- Gao C, Jiang J, Tan Y, Chen S. Microglia in neurodegenerative diseases: mechanism and potential therapeutic targets. Signal Transduct Target Ther. 2023;8(1):359.
- Leng F, Edison P. Neuroinflammation and microglial activation in Alzheimer disease: where do we go from here? Nat Rev Neurol. 2021;17(3):157-72.
- Hickman S, et al. Microglia in neurodegeneration. Nat Neurosci. 2018;21(10):1359-69.
- Donoso M, et al. Identification, quantification, and characterization of HIV-1 reservoirs in the human brain. Cells. 2022;11(15):2379.
- Asahchop EL, et al. Reduced antiretroviral drug efficacy and concentration in HIV-infected microglia contributes to viral persistence in brain. Retrovirology. 2017;14(1):47.
- Tang Y, et al. Brain microglia serve as a persistent HIV reservoir despite durable antiretroviral therapy. J Clin Invest. 2023;133(12):e167417.
- Thompson LJP, et al. HIV-associated neurocognitive disorder: a look into cellular and molecular pathology. Int J Mol Sci. 2024;25(9):4697.
- Olivier IS, Cacabelos R, Naidoo V. Risk factors and pathogenesis of HIV-associated neurocognitive disorder: the role of host genetics. Int J Mol Sci. 2018;19(11):3594.
- Eggers C, et al. HIV-1-associated neurocognitive disorder: epidemiology, pathogenesis, diagnosis, and treatment. J Neurol. 2017;264(8):1715-27.
- Prates GS, et al. HIV expression persists in the cerebrospinal fluid of HIV-associated neurocognitive disorders despite effective ART. Emerg Microbes Infect. 2026;15(1):2616945.
- Ash MK, Al-Harthi L, Schneider JR. HIV in the brain: identifying viral reservoirs and addressing the challenges of an HIV cure. Vaccines (Basel). 2021;9(8):867.
- Andersen ND, Srinivas S, Piñero G, Monje PV. A rapid and versatile method for the isolation, purification and cryogenic storage of Schwann cells from adult rodent nerves. Sci Rep. 2016;6(1):31781.
- Flores-Obando RE, Freidin MM, Abrams CK. Rapid and specific immunomagnetic isolation of mouse primary oligodendrocytes. J Vis Exp. 2018;(135):e57543.
- Van Wageningen TA, et al. Regulation of microglial TMEM119 and P2RY12 immunoreactivity in multiple sclerosis white and grey matter lesions is dependent on their inflammatory environment. Acta Neuropathol Commun. 2019;7(1):206.
- Honarpisheh P, et al. Potential caveats of putative microglia-specific markers for assessment of age-related cerebrovascular neuroinflammation. J Neuroinflammation. 2020;17(1):366.
- Rai MA, et al. Comparative analysis of human microglial models for studies of HIV replication and pathogenesis. Retrovirology. 2020;17(1):35.
- Gumbs SB, et al. Human microglial models to study HIV infection and neuropathogenesis: a literature overview and comparative analyses. J Neurovirol. 2022;28(1):64-91.
- Ma Z, Zhou Y, Collins DJ, Ai Y. Fluorescence activated cell sorting via a focused traveling surface acoustic beam. Lab Chip. 2017;17(18):3176-85.
- Sutermaster BA, Darling EM. Considerations for high-yield, high-throughput cell enrichment: fluorescence versus magnetic sorting. Sci Rep. 2019;9(1):227.
- Simon M, et al. Loss of perivascular aquaporin-4 localization impairs glymphatic exchange and promotes amyloid β plaque formation in mice. Alzheimers Res Ther. 2022;14(1):59.
- Olah M, et al. A transcriptomic atlas of aged human microglia. Nat Commun. 2018;9(1):539.
- Nühn MM, et al. Shock and kill within the CNS: a promising HIV eradication approach? J Leukoc Biol. 2022;112(5):1297-315.
- Donlin LT, et al. Methods for high-dimensional analysis of cells dissociated from cryopreserved synovial tissue. Arthritis Res Ther. 2018;20(1):139.
- Montanari M, et al. Automated-mechanical procedure compared to gentle enzymatic tissue dissociation in cell function studies. Biomolecules. 2022;12(5):701.
- Galatro TF, et al. Isolation of microglia and immune infiltrates from mouse and primate central nervous system. In: Clausen BE, Laman JD, editors. Inflammation: Methods and Protocols. New York: Humana Press; 2017. p. 333-42.
- Grabert K, McColl BW. Isolation and phenotyping of adult mouse microglial cells. In: Rousselet G, editor. Macrophages: Methods and Protocols. New York: Humana Press; 2018. p. 77-86.
- Ocañas SR, et al. Minimizing the ex vivo confounds of cell-isolation techniques on transcriptomic and translatomic profiles of purified microglia. eNeuro. 2022;9(2):ENEURO.0348-21.2022.
- Subra C, Trautmann L. Role of T lymphocytes in HIV neuropathogenesis. Curr HIV/AIDS Rep. 2019;16(3):236-43.
- Farhadian SF, et al. HIV viral transcription and immune perturbations in the CNS of people with HIV despite ART. JCI Insight. 2022;7(13):e160267.
- Marsh SE, et al. Dissection of artifactual and confounding glial signatures by single-cell sequencing of mouse and human brain. Nat Neurosci. 2022;25(3):306-16.
- Jolly S, et al. Single-cell quantification of mRNA expression in the human brain. Sci Rep. 2019;9(1):12353.
- Schroeter CB, et al. One brain-all cells: a comprehensive protocol to isolate all principal CNS-resident cell types from brain and spinal cord of adult healthy and EAE mice. Cells. 2021;10(3):651.
- Swartzlander DB, et al. Concurrent cell type-specific isolation and profiling of mouse brains in inflammation and Alzheimer's disease. JCI Insight. 2018;3(13):e121109.
- Zhao J, et al. Single-cell RNA sequencing reveals the heterogeneity of liver-resident immune cells in human. Cell Discov. 2020;6(1):22.
- Li X, et al. Histone decrotonylation plays a distinct role in HIV latency. Sci Adv. 2026;12(15):eaec0149.
- Heng Y, et al. The effects of postmortem delay on mouse and human microglia gene expression. Glia. 2021;69(4):1053-60.
- Trujillo M, et al. Combined mechanical and enzymatic dissociation of mouse brain hippocampal tissue. J Vis Exp. 2021;(176):e63007.
- Herron S, Delpech JC, Madore C, Ikezu T. Using mechanical homogenization to isolate microglia from mouse brain tissue to preserve transcriptomic integrity. STAR Protoc. 2022;3(4):101670.
- STEMCELL Technologies. How to prepare a single cell suspension from a frozen cell sample. protocols.io. 2019. doi:10.17504/protocols.io.4umgwu6.
- Volovitz I, et al. A non-aggressive, highly efficient, enzymatic method for dissociation of human brain tumors and brain tissues to viable single cells. BMC Neurosci. 2016;17(1):30.
- Manglani M, Gossa S, McGavern DB. Leukocyte isolation from brain, spinal cord, and meninges for flow cytometric analysis. Curr Protoc Immunol. 2018;121(1):e44.
- Bakina O, et al. In situ Patch-seq analysis of microglia reveals a lack of stress genes as found in FACS-isolated microglia. PLoS One. 2024;19(7):e0302376.
- Narasipura SD, et al. Inflammatory responses revealed through HIV infection of microglia-containing cerebral organoids. J Neuroinflammation. 2025;22(1):36.
- Haage V, et al. Comprehensive gene expression meta-analysis identifies signature genes that distinguish microglia from peripheral monocytes/macrophages in health and glioma. Acta Neuropathol Commun. 2019;7(1):20.
- Pan J, Wan J. Methodological comparison of FACS and MACS isolation of enriched microglia and astrocytes from mouse brain. J Immunol Methods. 2020;486:112834.
- Bordt EA, et al. Isolation of microglia from mouse or human tissue. STAR Protoc. 2020;1(1):100035.
- Bohlen CJ, Bennett FC, Bennett ML. Isolation and culture of microglia. Curr Protoc Immunol. 2019;125(1):e70.
- MacMullan MA, et al. An enzyme-free, cold-process acoustic method for gentle and effective tissue dissociation. bioRxiv. 2023:2023.10.03.560704. doi:10.1101/2023.10.03.560704.
- Mattei D, et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. Int J Mol Sci. 2020;21(21):7944.
- Kuzmichev YV, et al. Application of ultrasensitive digital ELISA for p24 enables improved evaluation of HIV-1 reservoir diversity and growth kinetics in viral outgrowth assays. Sci Rep. 2023;13(1):10958.
- Ferreira EA, Clements JE, Veenhuis RT. HIV-1 myeloid reservoirs: contributors to viral persistence and pathogenesis. Curr HIV/AIDS Rep. 2024;21(2):62-74.
- León-Rivera R, et al. Central nervous system viral seeding by mature monocytes and potential therapies to reduce CNS viral reservoirs in the cART era. mBio. 2021;12(2):e03633-20.
- Alyaqoobi Z, He Y, Wang X. Single-cell and bulk transcriptome analysis reveals the impact of inflammatory microglia on prognosis and immunotherapy response in primary glioblastoma. Clin Transl Oncol. 2026;28(6):2314-34.
- Farhadian SF, et al. Single-cell RNA sequencing reveals microglia-like cells in cerebrospinal fluid during virologically suppressed HIV. JCI Insight. 2018;3(18):e121718.
- Spurgat MS, Tang SJ. Single-cell RNA-sequencing: astrocyte and microglial heterogeneity in health and disease. Cells. 2022;11(13):2021.
- Marsh SE, et al. Multi-modal analysis and modeling of human neurodegenerative disease to reveal disease mechanisms and biomarkers. Alzheimers Dement. 2022;18:e061905.