マメ科植物と土壌の共生関係 細菌であり、根粒を形成して、その中で細菌が大気中の窒素を固定し、植物が利用できるようにします。マイクロCT(MicroCT)を用いることで、根粒という不透明で硬い組織における組織構成、バクテロイド帯、および維管束の非破壊的な3次元イメージングが可能となり、根粒の切片作成を必要とする従来のイメージング技術よりも優れた利点が得られます。
方法論記事
Medicago sativa根粒の3D MicroCTイメージング
* These authors contributed equally
この記事について
サマリー
要約
マメ科植物 Medicago sativa と土壌細菌 Sinorhizobium meliloti の共生関係により、窒素固定を行う根粒が形成されます。細菌が根粒内にどのように分布しているかを可視化するために、パラフィン切片作成、ビブラトームによる切断、凍結切片作成などの従来の破壊的な手法が用いられてきましたが、これらの方法では信頼性の高い三次元情報を得ることが非常に困難でした。また、これらのアプローチは蛍光標識や染色と併用されることが多く、植物の成長や根粒形成に影響を及ぼす追加的なストレスを与える可能性があります。MicroCTは、植物の組織学的特徴を非破壊的に三次元(3D)で可視化できる、比較的迅速かつ簡便で堅牢な植物生物学ツールとして登場しました。これにより、サンプル調製時の破壊的なアーティファクトを回避し、高精度な3D再構成が可能となります。MicroCTはマメ科植物の根粒に適用されてはいますが、植物の採取およびサンプル調製から、スキャニング、ソフトウェアによる可視化までの一連のプロセスを詳細に記した確立されたプロトコルは不足しています。
本研究では、Medicago sativaをモデルとして、microCTのステップバイステップのワークフローを提示します。プロトコルには、根からの根粒の摘出、固定、コントラスト増強、マウンティング、スキャン、および3次元再構成が含まれます。画質、組織の保存状態、コントラストなどの要素に影響を与える重要なパラメータについて詳しく説明します。この手法を用いることで、根粒を物理的に切断することなく、組織全体の構成、バクテロイド感染細胞、および維管束を3次元的に可視化することが可能です。本稿で述べるパイプラインは、天然の根粒を非破壊的かつ高解像度で撮像するための再現可能な手法を提供し、他のマメ科植物への適用も期待できるため、根粒の構造および根粒内の細菌組織を3Dで研究するための実用的なツールとなります。
概要
Medicago sativa(アルファルファ)などのマメ科(LeguminosaeまたはFabaceae)の植物は、Sinorhizobium melilotiのような根粒菌科(Rhizobiaceae)の窒素固定土壌細菌と共生関係を築き、その結果として根粒が形成されます。窒素制限条件下において、植物はフラボノイドを放出して細菌を誘引します。これにより共生細菌内のNod因子の発現が活性化され、根毛の巻き付きと、それに続く細菌を囲む感染室の形成が誘発されます1,2,3,4。感染室の壁の弱った部分から感染管が形成され、根毛細胞を通じて細菌を運ぶ伸長管が作られます5。感染管が内皮に達すると、一連の細胞分裂によって根粒と呼ばれる特殊な根器官の形成が始まります1,2,5。その後、細菌は根粒細胞に感染し、細胞内のシンビオソーム膜に囲まれて細胞内に居住します。ここで植物は細菌に炭素やその他の栄養素を提供します。その見返りとして、細菌は植物のために窒素を固定し、利用不可能な大気中の窒素を植物が利用可能な形態であるアンモニアに変換します2,3,4。このように、根粒は窒素固定のための重要な生物学的工場として機能し、合成窒素肥料がない状況でも植物の成長を維持させます。この生物学的窒素固定のプロセスは、合成肥料なしでマメ科植物の成長を可能にするため、経済的および環境的に重要です6。さらに、一部のマメ科植物は不定型根粒を形成し、そこでは細菌が分化してより効率的に窒素を固定する明確なゾーンが形成されます4。したがって、生物学的窒素固定を詳細に研究するためには、根粒の外側と、細菌が根粒内の植物細胞を物理的に占有している内部の両方を可視化することが重要です。しかし、根粒は赤色の植物タンパク質であるレグヘモグロビンで満たされた不透明な器官であるため、従来のイメージング手法では困難です。
これまで用いられてきたイメージング技術は破壊的なものでした。組織切片を作成するためにパラフィン切片作成、ビブラトーム切片作成、および凍結切片作成が用いられてきましたが、これらは組織の天然状態を損ない、三次元(3D)再構築を困難にするアーティファクトを導入します6,7,8,9,10。パラフィン包埋した根粒組織切片からの再構築は成功していますが、脱水サンプルを使用し、200枚以上の個別の切片を必要とします8。個々の切片では、維管束系の一部を確認することはできますが、維管束がどのように分岐し、根粒を包み込んでいるかまでは分かりません。共焦点顕微鏡観察の前に、組織切片に対してさまざまな蛍光標識や染色技術が行われてきましたが、これらには次のような問題がある傾向にあります8,9,10:(i) 植物の根粒組織は自家蛍光が非常に強い、(ii) 多くの手法でイメージング前に組織透明化が必要である、(iii) 蛍光染色は根粒組織を損傷させる可能性がある、(iv) 緑色蛍光タンパク質(GFP)標識細菌を植物に接種すると、植物の成長と根粒形成の両方に影響を与えるストレスが生じる、(v) 天然の根粒はサイズが大きすぎるため、サンプル全体を容易に切片化できない5,11。
医療現場で一般的に用いられているコンピュータ断層撮影(CT)イメージングは、診断および治療の両方の目的で使用されています12,13。その小型版であるX線マイクロトモグラフィー(MicroCT)は、小さな被写体を非破壊的に三次元(3D)可視化できるイメージング技術です。CTでは装置を大きな被写体の周囲で回転させますが、microCTでは小さな被写体をX線源の近くで回転させます。これにより、はるかに高い解像度が可能になります。MicroCTは動物の発生生物学に応用されてきましたが、植物生物学においても有望なツールとして登場しています6,10,14,15,16,17,18,19。重要な点として、microCTとシンクロトロン放射光X線トモグラフィーは、植物生理学において道管塞栓症の調査や、イメージングに基づく推定値と従来の水力学的流動測定値との相互検証に広く利用されてきました20,21,22。microCTは、物理的な切断を行うことなく、無傷の器官をスケールに合わせてイメージングするため、根粒全体の空間的関係を保持できます。適切な造影剤を用いることで、維管束や感染帯などの組織レベルの構造を分解でき、光散乱が制限となる従来の光学的手法の限界を超えて浸透させることが可能です。これは、不透明で自家蛍光を持つ根粒にとって特に価値があります。また、サンプルを再スキャンしたり、光学顕微鏡や電子顕微鏡のサンプル処理後のダウンストリーム相関ワークフローに組み込んだり、将来の分析のためにアーカイブしたりすることも可能です。ダイズの根粒を調査するためにmicroCTやシンクロトロン放射光X線CTを用いた研究はいくつかありますが、根粒の採取と染色からイメージングと再構成に至る全工程を詳細に記録したものはなく、特にアルファルファのような小さな根粒については不十分です6,14。X線のコントラストは組織密度に依存しますが、ほとんどの植物組織は低密度であり、X線減衰能が低いです。造影剤がない場合、一般的なベンチトップ型microCTでは根粒を背景から区別できません。そこで我々は、タンパク質やその他のバイオ分子に結合し、植物組織において高いコントラストを生み出すことが示されている非特異的染色剤であるホスホタングステン酸(PTA)を使用しました14。
本研究では、X線顕微鏡(XRM)やシンクロトロンベースのプラットフォームよりも利用しやすい、一般的なラボベースのシステムを用いた、アルファルファをモデルとするマメ科植物の根粒のmicroCTイメージングに関する詳細なステップバイステップのプロトコルを提供します6,14。このワークフローには、根からの根粒の採取、固定、染色、コントラスト強調、マウント、スキャニング、3D再構築、および解析に関する具体的な手順が含まれています(図1)。これらの手順の間には、安定したマウント、保湿、および良好なコントラストを確保するための詳細なパラメータを提示しています。最終的に、このmicroCTパイプラインは、組織全体の構成、植物細胞内における細菌の占有状態、明確な窒素固定ゾーン、およびアルファルファ根粒全体の維管束など、本来の状態における3D組織学的特徴を、非破壊かつ高解像度で可視化できる再現性の高い手法となります。このプロトコルは他のマメ科植物にも適用可能であり、この非常に重要な根器官の3D構造と組織を可視化するための実用的で完全な手法を研究者に提供できると考えています。
プロトコル
1. 結節の採取と固定
- メス(材料表を参照)を使用して、目的の根粒の両側で根を直線的に切断し、根粒を根に付けたままにする(図2)。
- 8個から12個の根粒を、10 mLの70% (v/v) エタノール(材料表を参照)が入った20 mLガラスバイアルに移す。
2. 結節の染色
- 200 mLの広口スクエアボトルに70%エタノール200 mLを入れ、そこにPTA粉末2 gを加えて1% (w/v) PTA溶液を調製する(材料表を参照)。完全に溶解するまで振盪し、4 °Cで保存する。染色は使用日の1日前に行う。
- 固定に使用した70%エタノールを除去し、1% PTA溶液10 mLに置換する(材料表を参照)。
- ガラスバイアルを室温のオービタルシェーカーに設置し、80 rpmで4週間振盪する。染色の溶液を毎週10 mLの新鮮な1% PTA溶液に交換する(材料表、図2を参照)。
3. 結節の封入
- 100 mLの開放ガラスビーカーに入れ、ホットプレートを用いて100 °Cでパラフィンを融解させる(Materials Tableを参照)。
- サンプル埋込用の200 µLピペットチップを選択する。チップの先端(狭い端)を、融解したパラフィンに浅く(1–2 mm)浸して封止する(Materials Tableを参照)。
- 35 mmマイクロウェルディッシュ内で、2 mLの70%エタノールを用いてサンプルを5分間すすぐ(Materials Tableを参照)。
- 25 mL三角フラスコに0.2 gの低融点アガロースを加え、20 mLの脱塩水と混ぜ合わせて1% (w/v) 低融点アガロース溶液を調製する。ホットプレートで50 °Cに加熱し、完全に溶解するまで数回振とうする。その後、フラスコを40 °Cに設定したウォーターバスに入れる(Materials Tableを参照)。
- 逆さまにして封止したピペットチップに、1%低融点アガロースを約25 µL分注入し、冷却のために1分間待機する(Materials Tableを参照)。
- 微細ピンセットを用いて根粒を1つ取り出し、1%低融点アガロース内で固定させるためにピペットチップへ移す。ゲルロードチップを使用し、根粒を損傷させないように、ピペットチップのパラフィン封止側にできるだけ近づけて配置する(Materials Tableを参照)。
- 根粒が入ったチップをラックに立て、低融点アガロースを凝固させる。凝固後、水分の保持のため、ピペットチップの開口側をParafilmで封止する(Materials Tableを参照)。サンプルを4 °Cの冷蔵庫で保存し、1週間以内に埋込サンプルのスキャンを行う。
4. マイクロCTイメージング
- X線源に可能な限り近づけて正確にサンプルをセンタリングできるよう、適切なサイズのサンプルホルダーにピペットチップを逆さまに取り付けます(材料表を参照)。
- CTソフトウェアを起動します。サンプルを装着したホルダーを、microCTの回転ステージにしっかりとねじ込みます(材料表、図3、付録図1を参照)。
- カメラビューとX線源をオンにし、X線連続ビュー画面を表示します(付録図1)。
- サンプルの高さを垂直方向に調整し、関心領域がX線連続画面の中心に来るようにします。この高さは後のステップ4.10で使用するため、記録しておいてください(付録図1)。
- ビニングを512 × 512に設定し、X線連続ビューの視野の大部分をサンプルが満たし、かつ両側にわずかな空白があるようにピクセルサイズを調整します(付録表1、付録図1を参照)。
- 45°ごとに回転させながら中心への調整を行い、連続X線ビュー画面でサンプルをセンタリングします(付録図1)。
- ビニングを2048 × 2048に変更します(付録表1、付録図1を参照)。
- スキャンモードメニューで、フィルターを「なし」に設定し、電圧を50 kV、電流を40 µAに設定します(付録表1、付録図1を参照)。
- サンプルを68 mmまで下げて、連続X線ビュー画面の視野に入らないようにし、フラットフィールド補正を行います。フラットフィールド補正をオフにし、平均X線透過率が55%になるように露光時間を設定します。その後、フラットフィールド補正をオンにします(付録表1、付録図1を参照)。
- サンプルをステップ4.4で決定した高さに戻します(付録図1)。
- スキャンオプションで、ファイル名と保存先フォルダを設定します(付録図1)。
- 回転ステップを0.200°に設定します。フレーム平均を3に、ランダムムーブメントを30に設定します。スキャン範囲は360°を選択します(付録表1、付録図1を参照)。
- 必要に応じて、部分幅を調整して過剰な空白を除外し、データサイズを削減します(付録図1)。
- スキャンをクリックして、スキャンを開始します(付録図1)。
5. 画像再構成
- 画像再構成ソフトウェアを開き、スキャンしたすべての2D投影画像をロードします(材料表、図 4を参照)。
- Preview(プレビュー)をクリックし、緑色の線の位置における再構成結果を可視化します(付録図 2)。
- Output(出力)タブでヒストグラムを調整します。右側の平坦な領域をカットし、左側の値は0または0よりわずかに小さい値に保持します(付録図 2)。
- Start(開始)タブで、後アライメント(post-alignment)のためにFine Tuning(微調整)をクリックします。Parameter(パラメータ)ステップを1に、試行回数(Number of trials)を5に設定して開始します。Start(スタート)とOKをクリックします。結果がOutput(出力)タブに表示されたら、prvウィンドウをクリックし、結果を矢印で切り替えて最適なアライメントを選択します。最も良好な画像を表示させたままにします(付録図 2)。
- Output(出力)タブの「Use ROI」の横にあるボックスをクリックして、ROIを有効にします。ROIの形状としてcircle(円)を選択します。Start(開始)タブに戻り、緑色の線を移動させて異なる位置をプレビューしながら、データボリューム全体におけるサンプルサイズに合わせてROIの大きさを調整します。サンプルの周囲にいくらかの空きスペースを残してください(付録図 2)。
- 再びStart(開始)タブをクリックします。上端と下端にある赤色の線を移動させ、再構成データに不要な領域をカットします。緑色の線を赤色の線に近づけてOutput(出力)タブで再構成をプレビューし、重要なデータが除外されていないかを確認します(付録図 2)。
- Output(出力)タブで、再構成結果を指定の場所にTIFF(16ビット)画像として保存します(付録図 2)。
- Start(開始)タブに戻り、Startをクリックします(付録図 2)。
6. 3D可視化
- Dragonflyソフトウェアを開きます(参照 材料一覧).
注:Dragonflyおよびその機能に関する詳細については、https://dragonfly.comet.tech/ を参照してください。 - 再構築されたTIFF画像をインポートします。
- すべての画像を選択し、画像の間隔が〜と同じであることを確認してください。 スケール調整後画像ピクセルサイズ スキャンテキストファイル内の(補足図3).
- コントラストの良い3D像を得るために、ウィンドウレベルを調整します(付随図 3).
- さまざまな2Dスライス平面(XY:横断像、XZ:冠状断像、YZ:矢状断像)をスクロールします(補足図3).
- 画像を右クリックし、ビューのスクリーンショットをエクスポートして、必要に応じてスライスビューを保存します(図4).
結果
3株のM. sativaから、それぞれ2つの根粒を採取した。2つの根粒は染色時間の比較に用い、残りの4つはコントラストを強調するため、70%エタノール中1% PTAで28日間完全に染色した後にイメージングを行った。ピペットチップ内の封入剤として1%低融点アガロースを使用することで、試料周囲にX線密度の低い封入環境を実現した。染色液によって植物組織のコントラストが良好に向上した(Figure 5A,B, Supplementary Figure 4)。データヒストグラムを用いることで、試料からの信号を背景およびピペットチップから容易に分離でき、根粒全体の外部および内部構造を妨げなく3D可視化することが可能となった(Figure 5A,B)。
外層の表皮を確認できるが、他の組織に比べてコントラストが低い(図 5C–E)。一方で、維管束は明瞭であり、試料の底部から頂部まで良好に連結している(図5A,B)。横断面では、これらの束の数および分岐を明確に確認することができます(図5C)。さらに、内部組織に良好なコントラストが得られており、皮層および植物液胞の識別が可能です(図5C–E)。また、コントラストが高いため、感染細胞と非感染細胞の判別が容易になります(図5C–E)。冠状面および矢状面の断面により、分裂組織帯、感染帯、および分化帯の分布が明らかになります(図 5D). 補足ビデオ 1 ~を示している 360° 3D再構築された結節の像。
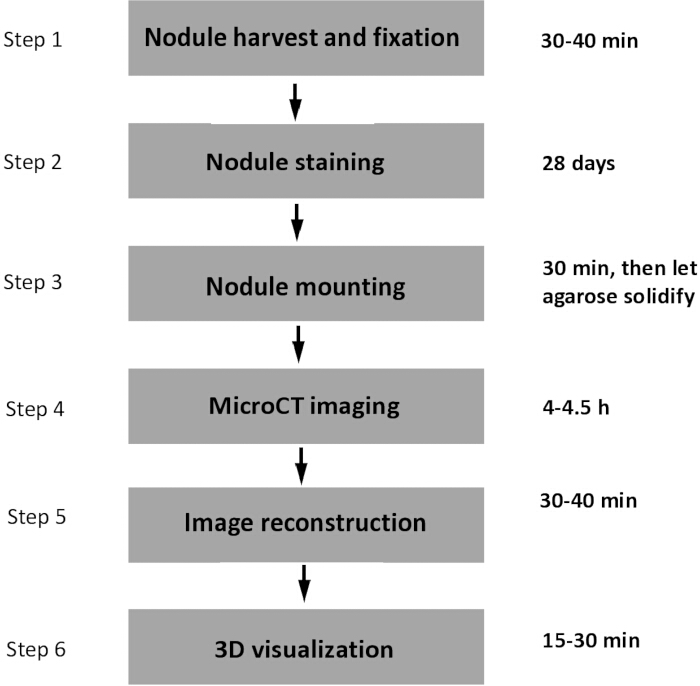
図 1: プロトコルのワークフロー。マメ科植物の根粒をマイクロCTで撮像するためのワークフローの概要と、各ステップに必要な所要時間。こちらをクリックして、この図の拡大版を表示してください。
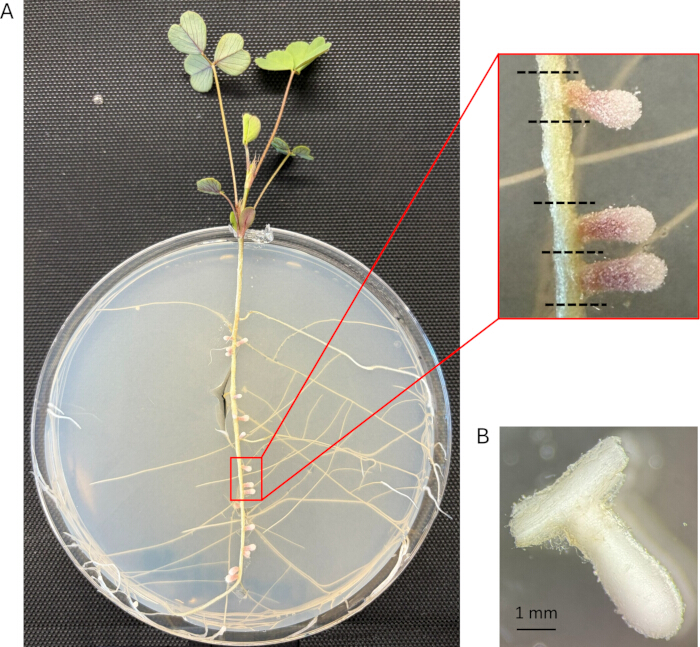
図 2: 本プロトコルで用いるM. sativaの根粒。 (A) S. meliloti細菌を接種して28日後(28 dpi)のM. sativa個体。黒い点線は、図示された根粒を切り出すための推奨切断線を示す。3個体から各2個ずつ根粒を切り出し、計4つのサンプルをスキャンした。(B) PTA染色後4週間が経過した28 dpiのM. sativa根粒。ここをクリックして、この図の拡大版を表示してください。
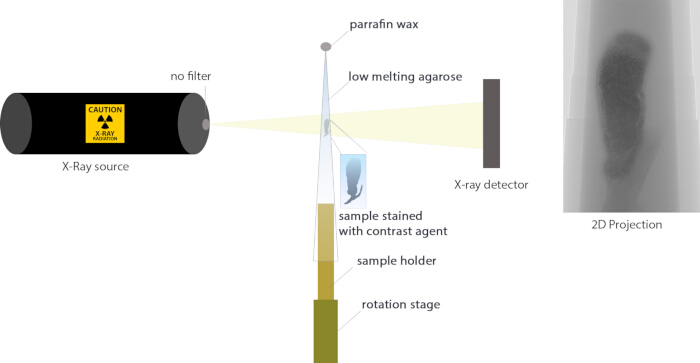
図3microCTサンプルのセットアップの概要。 コントラスト剤で染色した根粒を、マイクロピペットチップ内の低融点アガロースで固定する。マイクロピペットチップの一端をパラフィンワックスで封止し、microCT装置内の回転ステージに固定する。X線源(フィルターなし)は装置の片側に配置され、X線が試料を透過して反対側のX線検出器に到達する。スキャンにより、組織密度に基づいた2次元投影画像が得られる。 この図の拡大版を表示するには、ここをクリックしてください。
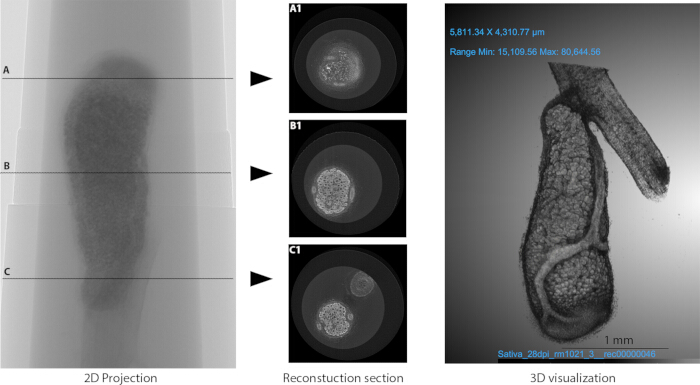
図4画像再構成および3D可視化の例。 (左)2D投影図。(中央) 再構成セクション. A1、B1、C1は、microCTの2D投影画像から得られた、位置A、B、Cにおける再構築横断切片を示す。(右)再構築画像から作成された根粒の3D可視化像。 この図の拡大版を表示するには、ここをクリックしてください。
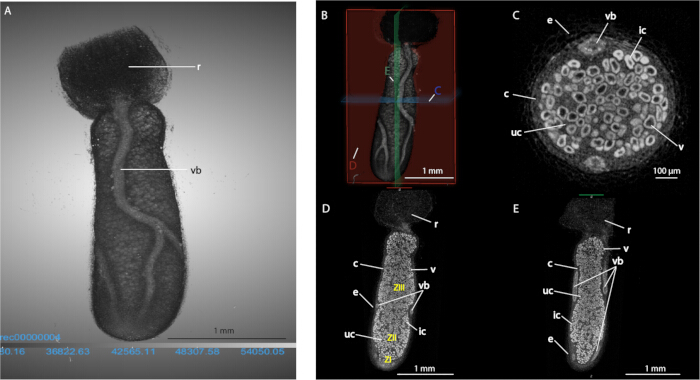
図5: 注釈付きの代表画像。(A) M. sativa根粒の注釈付き 3D可視化画像。(B) 3D画像上の赤、青、緑の輪郭線は、それぞれ横断面(C)、冠状面(D)、矢状面(E)を示す。注釈付きのM. sativa根粒の横断面(C)、冠状面(D)、および矢状面(E)の切片。略語:c – 皮層; e – 表皮; ic – 感染細胞; r – 根; uc – 非感染細胞; v – 液胞; vb – 維管束; ZI – 第I帯(分裂組織帯); ZII – 第II帯(感染帯); ZIII – 第III帯(分化帯)。こちらをクリックして、この図の拡大版を表示してください。
付録図1. microCTイメージング用ソフトウェアのスクリーンショット。(A1) ステージドアの開閉。 (A2) カメラビューのオン。 (A3) X線源のオン。 (A4) 連続X線ビューのオン。 (A5) サンプル高さの調整。 (A6) ピクセルサイズの調整。 (A7) サンプルの回転。 (A8) ビニングの変更。 (A9) フィルターの変更。 (A10) スキャンモードへのアクセスオプション。 (A11) X線源の電圧および電流の設定。 (A12) ダブルクリックしてフラットフィールド補正をオフにする。 (A13) スキャンオプション。 (B1) フラットフィールド補正オフ。 (B2) スキャンモードへのアクセスオプション。 (B3) 平均X線透過率。 (B4) 露光時間の調整。 (B5) フラットフィールドの更新。 (C1) ファイル名の指定およびデータの保存先の選択。 (C2) 回転ステップ、フレーム平均化、ランダムムーブメント、および360 degスキャンの設定。 (C3) 部分幅の調整。 (C4) スキャンの開始。こちらをクリックしてファイルをダウンロードしてください。
補足図2. 画像再構成用ソフトウェアのスクリーンショット。(A1) サンプルのプレビュー場所を選択する。(A2) サンプルのプレビュー。(A3) パラメータの微調整。(A4) ポストアライメントの試行回数とパラメータステップを設定する。(A5-6) 再構成領域の上端と下端。(A7) 再構成を開始する。(B1) コントラストを調整する。(B2) ポストアライメントの結果を確認し、クリックして進む。(B3) 円形のROIを作成する。(B4) ファイル形式とデータの保存場所を選択する。こちらのリンクからファイルをダウンロードしてください。
補足図 3. 3D可視化用ソフトウェアのスクリーンショット。(A) 画像の間隔情報。(B) 選択、回転、ズームツール(上)。コントラスト調整のためのウィンドウレベリング(下)。(C) 表示スケールバー(上)。背景色の変更(下)。こちらのリンクからファイルをダウンロードしてください。
付録図4. PTA染色後14日、17日、および28日のMicroCT再構成像。(A) PTA染色後14日の再構成したM. sativa切片では、外層にノイズが見られる(n = 1)。(B) PTA染色後17日の再構成したM. sativa切片では、(A)と比較して外層のコントラストが高くなっているが、内部の鮮明度は低下している(n = 1)。(C) PTA染色後28日の再構成したM. sativa切片では、(A)および(B)と比較して、外層と内層の両方でより高いコントラストを示している(n = 4)。こちらのリンクからファイルをダウンロードしてください。
補足表1:microCTイメージングのパラメータ。こちらをクリックしてファイルをダウンロードしてください。
補足ビデオ 1:結節の3Dビデオ。こちらのリンクからファイルをダウンロードしてください。
ディスカッション
以下に、試料調製および染色の推奨事項をいくつか示します。microCTイメージングのための試料調製では、構造的な完全性を維持するために、根粒を慎重に切り出すことが不可欠です。空間的なコンテキストを維持し、組織へのダメージを最小限に抑えるため、根粒の付着点の両側に根の小さなセグメントを残しておくことを推奨します。X線の減衰を強化し、内部の解剖学的特徴を可視化するためには、造影剤の使用が極めて重要です14。PTA染色を用いた先行研究では、異なる植物種や組織型において十分なコントラストを得るには最低14日間の染色期間が必要であり、過剰染色の証拠は見られないことが示されています14。その研究では、Bradyrhizobiumによって誘導されたダイズ根粒(接種後14日で固定)を35日間染色しました14。この範囲(14~35日)を参考にして、独自の根粒試料を用いていくつかの時点(14日、17日、および28日)で予備染色試験を行い、得られた画像のコントラストを比較しました。より短い期間に比べて、コントラストが向上し、細胞境界が明確になり、染色の均一性が高まったため、本プロトコルでは28日間の染色期間を選択しました(Supplementary Figure 4)。なお、14日および17日の再構成画像は、系統的な反復研究ではなく単一の根粒から得られたものであるのに対し、28日条件ではスキャンした4つすべての根粒が含まれており、染色の期間は研究に必要な解像度に基づいて調整されるべきであることに留意してください。また、28日間の染色期間は短期間ではありません。先行研究で示唆されているように、マイクロ波を用いた染色支援により、PTAの浸透を促進し、必要な染色期間を短縮できる可能性があります14。ルゴール液などのヨウ素ベースの薬剤も、植物組織のコントラストを強化するために使用されています23,24。本研究の主な目的は、単一の再現可能なプロトコルを確立することであったため、根粒組織で実証済みの性能に基づきPTAを選択し、染色剤の比較は行いませんでした14。今後の研究では、異なる植物種や組織型において他の染色剤を検討すべきです。
適切な埋め込みも同様に重要です。脱水を防ぎ、自然な形態を維持するために、サンプルは低融点アガロースで完全に覆われている必要があります。埋め込み後、スキャン中の安定性を確保するためにアガロースを凝固させるため、サンプルを4 °Cで一晩保存します。データ取得中のドリフトや振動によるアーチファクトを防ぐため、マウントしたサンプルはスキャンステージにしっかりと固定する必要があります。
MicroCTを用いることで、光学的および電子的顕微鏡よりも粗い解像度ではあるが、結節組織全体の非破壊的な3次元視覚化が可能になります。XRMおよびシンクロトロン放射光CTは、一般的に従来のmicroCTよりも高品質で高解像度な画像を提供します。また、シンクロトロン放射光CTでは、高い光子束とビームのコヒーレンスにより、造影剤を用いずに迅速なデータ取得と十分なコントラストが得られるため、新鮮で未染色のサンプルを直接スキャンすることが可能です6。Duncanら(2022)14およびNakhforooshら(2024)6との直接比較は、研究デザインの違い(種:ダイズ vs Medicago sativa、結節のタイプ:限定型 vs 非限定型、イメージング手法:XRMおよびシンクロトロン放射光CT vs 従来のmicroCT)により制限されます。それにもかかわらず、本研究の結節再構成の公称ピクセルサイズは約1.75 µmであり、Duncanら(2022)14の結節スキャン(2.2 µm、Figure 4A)よりも微細ですが、彼らの再構成画像の方が本研究よりも鮮明です。これは、実効解像度が公称ピクセルサイズ以外の要因に依存していることを反映していると考えられます。すなわち、XRMの対物レンズの光学倍率、検出器の感度、光源の安定性、カメラの品質、および再構成手法のすべてが寄与します。ここで示されているように、液胞のような大きく密度の低い構造は容易に区別できますが、個々の細胞内でのバクテロイドの占有状態や、より小さく密度の低いオルガネラは区別できず、動的な生物学的プロセスをリアルタイムで捉えることもできません。PTAおよびヨウ素ベースの造影剤は非特異的であり、分子の同一性を報告することはできません。細胞内レベルの解析には、依然として蛍光顕微鏡または電子顕微鏡が必要です。これらのイメージング手法は相補的であり、microCTは器官全体の形態や3D組織構造の把握に適しており、より微細な構造的・分子的な詳細を扱う光学的および電子的顕微鏡解析にコンテキストを提供する役割を果たします。
我々は、他のS. meliloti株を接種したM. sativa、および数種類の異なるS. meliloti株を接種したM. truncatulaおよびTrigonella foenum-graecumにおいて、同様の時点および発育段階の根粒を用いて、このワークフローの再現に成功しています(未発表データ)。我々の目的は、成熟した窒素固定根粒の特性評価および再現可能なプロトコルの提供であったため、異なる発育段階の根粒については検証していません。それでも、より重要な制限事項は根粒のサイズであるため、このワークフローはさまざまな発育段階の根粒に適用可能であるはずです。我々がスキャンした根粒の長さは約2.5 mmでした(Supplementary Table 1)。本研究で使用したmicroCTにおいて、推奨される最小サイズは長さ1 mmです。イメージング可能なサイズは、倍率が異なるため、使用する装置によって影響を受けます。
最近の知見により、根粒内の占有率は窒素固定効率と直接的に相関する重要なパラメータであることが示唆されています。感染細胞の割合が高い根粒は、細菌に占有されている細胞が少ない根粒よりも窒素固定能力が高いことが示されています25。さらに、根粒の健全性は維管束の広がりに依存しており、維管束の分断や制限は、根粒の欠陥および植物の健全性の低下を意味します26。占有率と維管束構造を可視化できる可能性から、microCTは窒素固定の分野における重要な空白を埋めるものです。このワークフローにより、根粒の内部および外部構造の非破壊的な可視化が日常的に可能となり、これらの構造は、作物への共生窒素供給を促進する固定効率の直接的な決定要因となります。
開示事項
著者は開示すべき事項がないことを報告します。
謝辞
植物の準備にご協力いただいたStephanie Sage氏に感謝いたします。サンプルの包埋にご協力いただいたXia Zhao氏に感謝いたします。プロジェクトの初期段階で議論にご協力いただいたMadi Mitchell氏に感謝いたします。データ解釈について助言をいただいたTom Kleist氏とKexi Yi氏に感謝いたします。また、プロトコルについて助言をいただいたKeith Duncan氏(Donald Danforth Plant Science Center)に感謝いたします。本プロジェクトは、Stowers Institute for Medical Researchの資金援助を受けています。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 20 mL ガラスバイアル | Sigma-Aldrich | Z190527 | 固定および染色のための結節の保持に使用します。 |
| 200 µL ピペットチップ | Fisherbrand | 02-717-144 | 結節を保持し、イメージングに使用される。 |
| 35 mm マイクロウェルディッシュ | Fisher Scientific | 507532924 | 染色の後、結節を洗浄するために使用する。 |
| Dragonfly ソフトウェア | Comet Technologies Canada Inc. | V2022.2 | 3Dビューで2D再構成画像を可視化および操作するために使用されます。 |
| エタノール | Decon Labs | V1001 | 結節の固定および洗浄に使用される。 |
| 精密ピンセット | デュモン | AA-Inox-E | ピペットチップ内のノジュールの調整に使用します。 |
| ゲルロードチップ | Corning (Costar) | 4853 | ピペットチップ内のアガロースの中にある結節を操作するために使用します。 |
| ホットプレート | Mirak | SP72725 | パラフィンを融解し、低融点アガロースを溶解させるために使用します。 |
| 低融点アガロース | GeneMate | 490001-602 | 根粒の包埋に使用し、方向性と水分を維持します。 |
| マイクロCT | Bruker | Bruker SkyScan 1272 | 結節のスキャニングに使用。 |
| NReconソフトウェア | Bruker | V2.2.0.6 | 2D投影図の再構成に使用。 |
| オービタルシェーカー | VWR | 77591-858 | 染色浸透を促進させるために、根粒を振るために使用する。 |
| パラフィン | McCormick Scientific | 39503002 | ピペットチップの狭い先端部を封止するために使用する。 |
| パラフィルム | Alkali Scientific | PM996 | サンプルの乾燥を防ぐため、ピペットチップを密封するために使用します。 |
| ホスフォトングステク酸 | 電子顕微鏡科学 (EMS) | 19500 | 結節の染色のために使用。 |
| サンプルホルダー - 長さ 3.4 cm 直径 0.63 mm | Bruker | 装置付属のBruker製セット | イメージング中にピペットチップとサンプルを保持するために使用する。 |
| メス | Fisher Scientific | S07890 | 根粒の回収に使用。 |
| Skyscan ソフトウェア | Bruker | v1.5.1.0 | MicroCTの操作に使用します。 |
| 恒温槽 | ブーケル助成金 | 640013001 | 結節の埋め込み中にアガロースを液状に保つために使用する。 |
参考文献
- Oldroyd GED, Murray JD, Poole PS, Downie JA. The rules of engagement in the legume-rhizobial symbiosis. Annu Rev Genet. 2011;45:119-44.
- Gibson KE, Kobayashi H, Walker GC. Molecular determinants of a symbiotic chronic infection. Annu Rev Genet. 2008;42:413-41.
- Porter SS, et al. Host-imposed control mechanisms in legume-rhizobia symbiosis. Nat Microbiol. 2024;9:1929-39.
- Guerra-García FJ, Sankari S. NCR peptides in plant-bacterial symbiosis: applications and importance. Trends Microbiol. 2025;33(2):147-50.
- Rae AE, Rolland V, White RG, Mathesius U. New methods for confocal imaging of infection threads in crop and model legumes. Plant Methods. 2021;17:24.
- Nakhforoosh A, et al. Visualization and quantitative evaluation of functional structures of soybean root nodules via synchrotron X-ray imaging. Plant Phenomics. 2024;6.
- Nierenberger M, Rémond Y, Ahzi S, Choquet P. Assessing the three-dimensional collagen network in soft tissues using contrast agents and high resolution micro-CT: Application to porcine iliac veins. C R Biol. 2015;338(7):425-33.
- Livingston D, Tuong T, Nogueira M, Sinclair T. Three-dimensional reconstruction of soybean nodules provides an update on vascular structure. Am J Bot. 2019;106(3):507-13.
- Warner CA, et al. An optical clearing technique for plant tissues, allowing deep imaging and compatible with fluorescence microscopy. Plant Physiol. 2014;166(4):1684-7.
- Indore NS, Karunakaran C, Jayas DS. Synchrotron tomography applications in agriculture and food sciences research: a review. Plant Methods. 2022;18:101.
- Novák K. Determination of symbiotic nodule occupancy in the model Vicia tetrasperma using a fluorescence scanner. Ann Bot. 2011;107(4):709-15.
- Martin L, et al. Cancer cachexia in the age of obesity: Skeletal muscle depletion is a powerful prognostic factor, independent of body mass index. J Clin Oncol. 2013;31(12):1539-47.
- Liguori C, et al. Emerging clinical applications of computed tomography. Med Devices (Auckl). 2015;8:265-78.
- Duncan KE, et al. X-ray microscopy enables multiscale high-resolution 3D imaging of plant cells, tissues, and organs. Plant Physiol. 2022;188(2):831-45.
- Wang J, et al. A deep learning-based micro-CT image analysis pipeline for nondestructive quantification of the maize kernel internal structure. Plant Phenomics. 2025;7(1).
- Brackin R, Atkinson BS, Sturrock CJ, Rasmussen A. Roots-eye view: Using microdialysis and microCT to non-destructively map root nutrient depletion and accumulation zones. Plant Cell Environ. 2017;40(12):3135-42.
- Brodersen CR, Roddy AB. New frontiers in the three-dimensional visualization of plant structure and function. Am J Bot. 2016;103(2):184-8.
- Schoborg TA, et al. Micro-computed tomography as a platform for exploring Drosophila development. Development. 2019;146(23).
- Wang M, et al. Nanoplastics causes extensive congenital malformations during embryonic development by passively targeting neural crest cells. Environ Int. 2023;173.
- Brodersen CR, et al. The dynamics of embolism repair in xylem: In vivo visualizations using high-resolution computed tomography. Plant Physiol. 2010;154(3):1088-95.
- Brodersen CR, et al. In vivo visualizations of drought-induced embolism spread in Vitis vinifera. Plant Physiol. 2013;161(4):1820-9.
- Nolf M, et al. Visualization of xylem embolism by X-ray microtomography: a direct test against hydraulic measurements. New Phytol. 2017;214(2):890-8.
- Karahara I, Yamauchi D, Uesugi K, Mineyuki Y. Three-dimensional visualization of plant tissues and organs by X-ray micro-computed tomography. Microscopy (Oxf). 2023;72(4):310-25.
- Staedler YM, Masson D, Schönenberger J. Plant tissues in 3D via X-ray tomography: simple contrasting methods allow high resolution imaging. PLoS One. 2013;8(9).
- Sánchez-Cañizares C, et al. Developmental fates and N2-fixing efficiency of terminally-differentiated versus undifferentiated bacteroids from legume nodules. Plant Physiol. 2026;200(3).
- Pepper AN, Morse AP, Guinel FC. Abnormal root and nodule vasculature in R50 (sym16), a pea nodulation mutant which accumulates cytokinins. Ann Bot. 2007;99(4):765-76.
再版と許可
この記事は公開されました
動画は近日公開