このプロトコルでは、熱ストレス、酸化ストレス、小胞体(ER)ストレス、およびミトコンドリアストレスに対する個体レベルでの耐性を評価するための段階的な手順について説明します。また、ストレス耐性においてニューロンが役割を果たしているかどうかを評価する方法についても提供します。
この記事について
サマリー
要約
生物は生涯を通じて、さまざまな環境的および細胞的なストレスにさらされています。さまざまなストレスに耐える能力は、生物の健康寿命および寿命と密接に相関しています。Caenorhabditis elegans (C. elegans) は、ストレス耐性の根底にある保存された分子メカニズムの研究を促進するための、ストレス耐性測定に理想的なモデル生物です。C. elegans は、ストレス耐性の神経学的基礎を理解する上で不可欠な、簡略化された神経系も備えています。ここでは、4つの異なるストレス条件(熱ストレス、小胞体(ER)ストレス、ミトコンドリアストレス、および酸化ストレス)における C. elegans のストレス耐性を測定する方法を提示します。虫のコホートを固形アガープレート上に配置し、熱ストレスの場合は過酷な温度に、ER、ミトコンドリア、または酸化ストレスを誘導する化合物を異なる用量で含むアガーにさらします。例として、野生型株と比較してRICニューロン除去株におけるストレス耐性の差を決定するために、各ストレスの用量を段階的に増加させ、最適用量を滴定しました。ストレス条件下で C. elegans の生存率を1時間ごとまたは1日ごとにモニタリングし、生存曲線をプロットして比較することで、異なる C. elegans 株におけるストレス耐性能力の差を特定します。これにより、野生型、変異体、またはニューロン操作株の C. elegans において、さまざまな用量と時間スケールで複数のストレス因子に対する耐性を評価するための再現性のあるアプローチが提供され、また、複数のストレス因子の根底にある分子および神経メカニズムの解明に役立ちます。
概要
生物は生涯を通じて、さまざまな環境ストレスにさらされます。熱、低酸素、放射線、酸化ストレス、浸透圧ストレス、病原性ストレスを含むほとんどのストレッサーは、細胞機能不全とホメオスタシスの不均衡を引き起こし、それが細胞内ストレス応答を誘発します。生物は、動的な環境の変化やストレッサーに対処するために、高度に保存されたストレス応答経路を発達させてきました。これらの保存されたストレス応答経路には、熱ショック応答(HSR)1、小胞体(ER)およびミトコンドリアにおける小胞体ストレス応答(UPR)2、および酸化ストレス応答3が含まれます。通常は転写因子である異なるストレス応答経路のマスターレギュレーターは、応答遺伝子の発現を誘導し、プロテオスタシスを回復させて細胞の生存を促進します4。これらの応答には、ミスフォールドしたタンパク質を再折り畳みするシャペロンの合成や、タンパク質分解による損傷タンパク質の除去が含まれます4。ストレス応答の活性化に失敗すると、細胞質やオルガネラに損傷タンパク質が蓄積し、細胞および組織の機能不全につながります。不均衡な細胞ストレス応答は、神経変性からメタボリックシンドロームに至るまで、さまざまな慢性疾患に関連しています5,6。対照的に、ストレス応答経路が適切に活性化されると、健康寿命の向上と大幅な寿命延長がもたらされます7。したがって、健康改善のために保護的なストレス応答を利用するには、ストレス耐性の分子メカニズムを調査することが重要です。そのため、生体動物におけるストレス耐性を正確に定量化するための、再現性のある手法と技術を確立する必要があります。
過去15年間の研究により、複数の種においてストレス耐性の向上に神経シグナル伝達が関与していることが明らかになりました8。初期の知見では、ニューロンにおけるHSRおよびER UPRが非ニューロン組織のストレス応答を活性化させるのに十分であることが示され、ストレス耐性の細胞非自律的制御という概念が確立されました8,9,10。この発見以来、環境的な手がかりに反応し、神経シグナル伝達を介してストレス耐性を促進する複数のストレス耐性経路が存在することが、多くの証拠によって示されています。具体的には、HSR10,11、ER UPR12,13、ミトコンドリア未折りたたみタンパク質応答(UPRmt)14,15、および酸化ストレス応答3のそれぞれが、ニューロンを介して細胞非自律的にストレス耐性を促進します。ストレス耐性の細胞非自律的制御のメカニズムは、ショウジョウバエ D. melanogaster16,17,18,19やマウス20,21を含む生物の間で保存されています。
複数のストレッサー下におけるストレス耐性におけるニューロンの役割を研究することを容易にするため、本稿では、ニューロンによって制御される4つのストレッサー(熱ストレス、小胞体(ER)ストレス、ミトコンドリアストレス、および酸化ストレス)下での耐性を評価するための体系的なプロトコルを提示します。扱いやすいモデル生物であるC. elegansを用いて、これら4つのストレッサーに対するストレス耐性を測定しました。C. elegansをストレス耐性アッセイに使用することで、細胞レベルだけでなく、個体レベルでのストレス応答の活性化を研究することが可能になります。
熱ストレス、小胞体(ER)ストレス、ミトコンドリアストレス、および酸化ストレスによって活性化されるストレス応答経路は、ヒトを含む生物種間で保存されており、機能的に重要です22,23,24,25。熱ストレスはタンパク質のミスフォールディングと凝集を引き起こし、タンパク質恒常性の維持に不可欠なヒートショック応答を活性化させます26。C. elegansの生理的な環境温度は20 °Cであり、25 °C以上の高温はC. elegansに熱ストレスを誘発します27。本研究では、30 °C、35 °C、および37 °Cという3つの高い負荷温度条件下で熱ストレスを誘発します。
小胞体は、タンパク質の合成と折り畳みの主要な部位である。28ER腔内における未折り畳みまたはミスフォールドタンパク質の蓄積は、プロテオスタシスを回復させるために、小胞体ストレス応答を活性化させます。29ERストレスは、N結合型糖鎖付加を阻害する化学物質であるツニカマイシンによって誘導することができます。 そして、小胞体(ER)腔内への誤折畳みタンパク質の蓄積を引き起こします。30小胞体(ER)腔内におけるタンパク質折り畳み不全ストレスに対する耐性の向上は、生存率の増加を示す。12異なる用量のツニカマイシン(25~200 µg/mL)および、生存率を測定することで、それらの感受性を評価する。
ミトコンドリアは細胞の代謝中心であり、細胞の「発電所」としての役割を担っています。ミトコンドリア内の活性酸素種(ROS)や未折畳みタンパク質は、ミトコンドリア未折畳みタンパク質応答を惹起し、ミトコンドリアストレスを誘導します31。ミトコンドリアストレスは、電子伝達を阻害してROS産生を引き起こすミトコンドリア複合体III阻害剤であるアンチマイシンAによって誘導することが可能です32。本研究では、ミトコンドリアストレス耐性アッセイの最適濃度を決定するために、異なる用量のアンチマイシンA(5–80 µg/mL)を用いて検討を行いました。
酸化ストレスは、通常、環境毒素や代謝によって生成される細胞内の遊離ラジカルによって誘発されます。酸化ストレスは、あらゆる生物においてタンパク質、脂質、およびDNAに損傷を引き起こします33。除草剤の一種であり、酸素に電子を伝達して過剰なスーパーオキシドラジカルを生成するパラコートは、強力な酸化ストレス誘発剤です34。本手法では、パラコートを4段階の漸増濃度(2.5–20 mM)で投与し、 C. elegansにおける最大生存期間が3日から12日の範囲に及ぶことを示します。
これら4つのストレス条件下では、C. elegansのストレス耐性において非常に再現性の高い結果を容易に得ることができます。ストレス耐性の測定方法は、以前に報告されています35,36,37,38,39,40。さまざまなストレス要因と生存分析をまとめた既報のレビュー35と比較して、本記事では再現性と一貫性のあるストレスアッセイを実施するための、詳細で実行可能なステップバイステップのプロトコルを確立しました。既報のプロトコルの多くは、熱ショック36や酸化ストレス38など、特定の1つのストレスアッセイに焦点を当てていましたが、本プロトコルでは、熱ストレス、小胞体(ER)ストレス、ミトコンドリアストレス、および酸化ストレスという4つの異なるストレスアッセイすべてを実演します。また、既報のストレスアッセイプロトコルでは、ER、ミトコンドリア、酸化ストレスに対する経路特異的な蛍光転写レポーター40や、熱ショック応答39などの蛍光レポーターを用いた異なるエンドポイントアッセイが提示されていましたが、本プロトコルでは生存アッセイを用いてC. elegansの全体的な健康状態を効果的に測定します。重要な点として、本プロトコルでは、ストレスアッセイに選択可能な有効投与量の範囲をリファレンスとして提供するために、4つのアッセイすべてについて用量滴定を提示しました。また、本プロトコルでは、異なるストレスアッセイにおける時間スケール(数時間から数日)を最適化しました。さらに、ニューロンがストレス耐性を調節しているかを確認するための例として、複数のストレス応答を調節するニューロンの新たな役割を提示しました。
ストレス耐性アッセイを構築するには、適切なストレス要因と信頼性の高い評価指標を選択する必要があります。C. elegansの生存アッセイは、寿命、ストレス耐性、病原性感染などの生理学的プロセスを測定するための強力なツールとなってきました。生存アッセイにC. elegansを用いる主な利点は、自殖、産子数の多さ、そして卵から若成虫まで3日間という短い発生サイクルにより、同年齢の同期化した虫を容易に調製してアッセイできることです。培養されたC. elegansの天然集団において雄は稀であるため、本プロトコルを含む生存アッセイには一般的に使用されず、主に遺伝的な交配に使用されます35。他のエンドポイント評価法(例:蛍光レポーター、タンパク質や脂質の蓄積)と比較して、生存アッセイはC. elegansの全体的な健康状態を測定するのに有効であり、完了までにかかる時間も、ストレス要因の用量に応じて数時間から数週間と比較的短期間で済みます。我々は、異なるC. elegans系統間でのストレス耐性の主要な指標として生存率を利用しています。生存は、運動性と緩やかな機械的刺激に対する反応によって判定されます。刺激に対する反応がないことを、C. elegansのストレスアッセイにおける死亡と定義します。C. elegansの生存アッセイは、細菌餌を含む固体培地または液体培地のいずれかで行うことができます35。しかし、液体培地は虫の自然な生息環境ではなく、液体培養中で絶えず激しく動かざるを得ないため、生存曲線が短くなる傾向があります41。本研究では、野生型およびニューロン除去変異虫の生存に対する異なるストレス要因濃度の影響を評価するために、固体培地を使用します。これらの濃度滴定データは、同様のストレス耐性アッセイを行う他の研究者の指針となる可能性があります。
プロトコル
C. elegansを用いた実験は、米国カンザス州マンハッタンのカンザス州立大学にて、機関のバイオセーフティおよび実験室ガイドラインに従って実施されました。C. elegansは無脊椎動物のモデル生物であるため、本研究において脊椎動物倫理委員会の承認は不要でした。使用したすべての試薬、機器、ソフトウェア、および系統の詳細は、材料表に記載されています。
1. NGM (線虫成長培地) プレートの作製および Escherichia coli OP50 の調製
- NGMプレートの作製
- NaCl 3 g、アガー(粉末)17 g、ペプトン 2.5 gを量り取り、超純水(ddH2O)900 mLを加える。2Oを加え、最終容量を1 Lとして滅菌(オートクレーブ)する。培地を約まで冷却する。 60 °C 〜において 60 °C 恒温水槽
- 1 M CaCl2を1 mL添加します。2 (ddH2Oで調製)2(エタノールで調製しフィルター滅菌したもの)5 mg/mL コレステロール 1 mL、1 M MgSO4(ddH2Oで調製しフィルター滅菌したもの)1 mL2(フィルター滅菌済み)、および1 M KPバッファー25 mL。
KP緩衝液を調製するには、1 M K2血球計数法(HPO)4 1 M KHの溶液 870 mLを用いて2PO4 ddH2Oで調製した2O. 十分に混合した後、pHを6.0に調整する。調製後の測定pHは通常6.0に近く、追加の調整は不要である。KP緩衝液の許容pH範囲は5.8〜6.2であり、目標pHは6.0とする。使用前に、最終pHが約6.0であることを確認する。必要に応じて、1 M Kを用いてpH 6.0に調整する。2高倍率視野4 または 1 M KH2PO4. - 十分に混合し、培地(NGM)をプレート(シャーレ)に分注します。60 mmプレートの場合、1枚あたり10 mLのNGM培地を分注してください。 35 mmプレートの場合、1枚あたり3 mLのNGM培地を分注します。NGM寒天プレートを室温(22–25 °C細菌の培地を播種する前に、少なくとも24時間、平坦なベンチの上に置いてください。
注意:溶融したNGM寒天培地の調製および分注を行う際は、火傷や高温の液体への接触を防ぐため、耐熱手袋および適切な研究室用個人用保護具(PPE)を着用してください。
- 準備 Escherichia coli 用OP50細菌培地 Caenorhabditis elegans
- 画線塗布 Escherichia coli OP50細菌をLuria-Bertani (LB) 寒天培地に塗布し、以下で培養する 37 °C 一晩(LB寒天平板培地:100 mLのddH₂Oに、NaCl 1 g、トリプトペプトン 1 g、酵母エキス 0.5 g、および寒天粉末 1.5~2.0 gを加える)2Oをオートクレーブで20分間滅菌し、50℃まで冷却する。60 °C 培地をプレートに注ぎます(清潔で平らなベンチに置き、乾燥させてください)。
- 単一のコロニーを100 mLの液体LB培地に接種する(LB培地:100 mLのddH2OにNaCl 1 g、トリプトペプトン 1 g、酵母エキス 0.5 gを加える)。2Oをオートクレーブで20分間滅菌する。その後、~以下まで冷却する。 37 °C (接種前)。
- 細菌を~で培養する 37 °C 細菌懸濁液を10倍希釈した際の600 nmにおける吸光度(OD600)が約0.3に達するまで、振盪インキュベーターで培養し、100 µL 細菌懸濁液の混合による 900 µL LB培地)。細菌懸濁液を回収し、以下で保存する。 4 °C細菌培地は、NGMプレートに播種するまで最大1週間保存することが可能です。40.
- リピートピペッターを使用して、NGMプレートにOP50細菌を播種する。 200 µL 60 mmアガープレート用および 100 µL 35 mmアガールプレート用。播種したNGMプレートを室温(約22~25 °C使用する前に、平らなベンチ上で少なくとも24時間静置します。プレートを室温に48時間以上放置しないでください。播種したプレートを清潔なプラスチック製ボックスに並べ、以下で保存します。 4 °C.
注:通気孔のないプレートを使用する場合、播種したOP50の乾燥に時間を要することがあります。
注意:取り扱い 大腸菌 適切な微生物学的操作を用いてOP50培養を行い、白衣、手袋、および保護眼鏡を着用してください。作業台を消毒し、施設のバイオセーフティ手順に従って細菌廃棄物を処理してください。
2. C. elegansの維持および同期化
本セクションのワークフローは図1Aにまとめられています。
- 線虫を~で維持する 20 °C OP50を塗布したNGMプレートを用い、線虫の飢餓を避けるため、週に2回、成虫を新しいOP50塗布NGMプレートに継代します。プラチナワイヤーピックを用いて、20~40匹の抱卵成虫を新鮮なOP50塗布NGMプレートに移し、元のプレートから抱卵成虫と共に移動した幼虫および卵はすべて取り除きます。抱卵虫の数を把握しておくことで、正確な記録管理が可能となり、後の工程(セクション1.2)で成虫を完全に除去することを確認できます。
注:野生型系統(N2)の状態に基づくと、2時間で80~120個の卵を産ませるには、計20~40匹の抱卵虫で十分です。抱卵成虫が成虫1日目(day 1)であるとき、産卵は最適なウィンドウにあります。産卵数がより少ない、あるいはより多い系統の場合は、それに応じて抱卵虫の数を調整してください。このステップの目的は、後続のストレスアッセイのために、同期した虫へと成長する十分な数の卵を得ることです。 - 約2時間後、プレートから懐妊個体を回収する。この段階で回収した懐妊個体の数を数え、プレートに配置した20〜40匹の懐妊個体がすべて回収されたことを確認する。
- 卵を含むプレートを、以下の条件でインキュベートする。 20 °C ストレスアッセイのために、線虫がL4期後半に達するまで育成する。成虫の年齢や生殖状態の違いによるばらつきを最小限に抑えるため、線虫をL4期に同期させる。12,35,37,38,40,42,43. At 20 °C、線虫が均一に同期したL4期後半に達します。 野生型株を固体アガールプレート上で産卵させた約54~58時間後(我々の観察および 36,40).
注:発育遅延株については、個々の発育速度に応じて、同期させるタイミングをL4期後半に調整してください。
注意:取り扱いについて C. elegans 適切な微生物学的慣行に従い、生物学的物質への曝露を最小限に抑え、汚染を防止するために、白衣と手袋を着用してください。
3. ストレス条件およびデータ収集
- 熱ストレスアッセイ
本セクションのワークフローは、以下にまとめられています。 図1B.- 線虫をL4後期ステージまで同期させ(セクション2)、以下の条件で維持します。 20 °C同期させたL4ステージの虫体を、OP50を播種した35 mm NGMプレート(セクション1)に移す。1群あたり4枚のプレートをテクニカルレプリケートとして使用し、1枚あたり30~35匹の虫体を配置する。バイオロジカルレプリケートの設定については、セクション4を参照すること。
- L4後期段階の線虫が入ったプレートを、30、35、または 37 °C インキュベーター。検定済みの線虫が入ったプレートを中に入れる前に、インキュベーターが設定温度に達していることを確認してください。30℃、35℃、または...における野生型線虫の平均生存率は、 37 °C 約4時間から3日の範囲であり(図2B–D)に対し、生理学的ストレスのない状態での平均生存期間は約20日であった(図2A).
重要な手順:すべてのアッセイプレートを、寒天面を下にして1層に重ねて、〜の中に配置してください。 35 °C 迅速かつ均一に温度平衡に達するためのインキュベーター。
注:30、35、または 37 °Cほとんどの虫は卵を産みません。卵が産まれるまれなケースにおいても、卵が孵化することは観察されません。したがって、虫を新しいプレートに移し替える必要はありません。 - 各テクニカルレプリケートプレートについて、各タイムポイントにおける死滅した線虫の数をカウントし、スコアリングデータシートに記録する。線虫の生存率は、以下の条件下で1時間ごとにスコアリングされる。 35 °C または 37 °C 熱ストレスおよび1日1回の投与下での 30 °C 熱ストレス。スコアリングは、室温下で解剖顕微鏡を用いて行う。スコアリングの間は、検査対象のプレートのみをインキュベーターから取り出し、他のすべてのプレートは、熱ストレスへの曝露の中断を最小限に抑えるため、指定の熱ストレス温度に維持すること。この手順により、すべてのサンプルにおいて一貫した実験条件を維持することができる。
重要ステップ:熱ストレス曝露の中断を最小限にするため、各スコアリングセッション中、各プレートをインキュベーターから出している時間は3分以内にしてください。ストレスアッセイ中の異なる時点における線虫の生存率に応じて、室温での1プレートあたりのスコアリングには通常、約30秒から3分かかります。手動スコアリングに要する時間を考慮すると、スコアリングの順序が重要となります。すべての条件においてすべてのテクニカルリプリケート(技術的反復)が完了するまで、各条件から1つのテクニカルリプリケートずつスコアリングすることを推奨します。例えば、3つの条件/群(A、B、C)があり、それぞれに4枚のテクニカルリプリケートプレートがある場合は、スコアリングの順序を A1, B1, C1 としてください。 → A2, B2, C2 → A3, B3, C3 → A4, B4, C4。 - 以下の基準に基づき、線虫の生存率を評価する。 緩やかな物理的刺激に対して運動反応が見られるかを確認する。活発に動いている個体は生存していると判定し、物理的刺激は不要である。自発的な運動が見られない個体については、白金線ピックを用いて体の後端部を2回軽く突いて刺激を与える。運動反応がない場合は死亡と記録し、記録後、その個体をプレートから取り除く。各刺激後、約2秒間の観察で運動反応の有無を判断すれば十分である。計数中の生存数および死亡数を記録し、計数ミスを減らすために、手動タリーカウンターの使用を推奨する。すべての個体を重複なく一度だけ計数するため、プレートの下に格子状の透明プラスチックシートを敷くか、プレートの底面に格子線を描き、プレートを計数用のセクションに分割して行う。
注意:スコアリング後、速やかにプレートを熱処理インキュベーターに戻してください。 - すべての個体が死亡するか、あらかじめ定義された基準に従って打ち切りとなるまで、定期的に虫の生存率をモニターする。記録した生存データをまとめ、それを用いて後の解析のための生存曲線を作成する。
- 小胞体ストレスアッセイ
このセクションのワークフローは、〜にまとめられています。 図 1C.- ERストレスアッセイ用培地プレートを作製する。チュニカマイシンストック溶液(10 mg/mL、ジメチルスルホキシド(DMSO)に溶解、– で保存)を添加する。20 °C)を液体NGM培地(セクション1.1.2参照)に加え、最終濃度を25、50、100、または 200 µg/mL例えば、1 LのERストレスアッセイ培地に対し、最終濃度が25、50、100、または20 $\mu$g/mLとなるように、チュニカマイシンストック溶液(DMSO中10 mg/mL)を2.5、5、10、または20 mL添加します。 200 µg/mL 培地プレートにツニカマイシンを加える。未処理のコントロールをアッセイに含める場合は、対応するコントロール培地に同量のDMSO(2.5、5、10、または20 mL)を添加する。
重要ステップ:オートクレーブ滅菌したNGM培地を約まで冷却する 55 °C 撹拌しながら、チュニカマイシンを目的の最終濃度まで添加する。十分に混合した後、チュニカマイシンを含むNGM培地を各35mmプレートに3mLずつ分注する。各35mmアガープレートに以下を播種する。 100 µL OP50細菌(セクション1.2)。ツニカマイシンを含むOP50播種済みNGMプレートは、以下で保存できる。 4 °C 使用するまで最大1週間保存可能。
注意:チュニカマイシンは有害であるため、実験衣、手袋、および保護メガネを着用し、化学薬品用ドラフトチャンバー内で取り扱わなければなりません。吸入ならびに皮膚や目への接触を避けてください。 - 線虫をL4期後半まで同期させ(セクション2)、以下の条件で維持する。 20 °C同期させたL4期の虫体を、ツニカマイシンを含むOP50播種済み35 mm NGMプレートに転移させる。1群につき4枚のプレートをテクニカルレプリケートとして使用し、1枚あたり30~35匹の虫体を配置する。バイオロジカルレプリケートの設定については、セクション4を参照すること。
- すべてのプレートを以下の条件でインキュベートします。 20 °C死滅した線虫の数を毎日記録する。25、50、100、または~の条件下における野生型線虫の平均生存率は 200 µg/mL チュニカマイシンの範囲は約8日から11日である(図2E,F) 生理的にストレスのない状態での平均生存期間である約20日と比較して(図2A).
注:チュニカマイシン誘発ERストレスアッセイでは、卵は産み付けられますが、チュニカマイシン含有アガープレート上では孵化しません。したがって、線虫を新しいプレートに titers 移す必要はありません。 - 毎日、各テクニカルレプリケートプレート上の死滅した線虫の数をスコアし、スコアリングデータシートに記録します。スコアリングは、室温のベンチ上で解剖顕微鏡を用いて手動で行います。活発に動いている線虫は生存と判定し、物理的な刺激は不要です。自発的な動きが見られない線虫については、プラチナワイヤーピックを用いて後端部を2回軽く刺激してください。反応がない場合は死滅したと記録し、記録後にその線虫をプレートから除去します。正確なカウントを行うために、手動タリーカウンターの使用を推奨します。すべての線虫を重複なく一度だけカウントするために、プレートの下に格子状の透明プラスチックシートを敷くか、プレートの底に格子線を書き込み、プレートを区画に分けてカウントしてください。
注:スコアリング後、直ちにプレートをインキュベーターに戻してください。次回のスコアリングまで、線虫を約24時間インキュベーター内で保持してください。 - すべての個体が死亡するか、定義済みの基準に従って打ち切りとなるまで、毎日虫の生存状況をモニタリングします。記録した生存データをまとめ、それを用いて後続の解析のための生存曲線を作成します。
- ERストレスアッセイ用培地プレートを作製する。チュニカマイシンストック溶液(10 mg/mL、ジメチルスルホキシド(DMSO)に溶解、– で保存)を添加する。20 °C)を液体NGM培地(セクション1.1.2参照)に加え、最終濃度を25、50、100、または 200 µg/mL例えば、1 LのERストレスアッセイ培地に対し、最終濃度が25、50、100、または20 $\mu$g/mLとなるように、チュニカマイシンストック溶液(DMSO中10 mg/mL)を2.5、5、10、または20 mL添加します。 200 µg/mL 培地プレートにツニカマイシンを加える。未処理のコントロールをアッセイに含める場合は、対応するコントロール培地に同量のDMSO(2.5、5、10、または20 mL)を添加する。
- ミトコンドリアストレスアッセイ
本セクションのワークフローは、以下にまとめられています。 図1D.- ミトコンドリアストレスアッセイ用培地プレートを作製します。アンチマイシンAストック溶液(DMSOを用いて5 mg/mLに調製し、–で保存)を添加します。20 °C)を液体NGM培地(セクション1.1.2参照)に添加し、最終濃度を5、10、20、40、または 80 µg/mL例えば、1 Lのミトコンドリアストレスアッセイ培地に対し、1、2、4、8、または16 mLのアンチマイシンAストック溶液(5 mg/mL DMSO溶液)を添加します。 最終濃度が5、10、20、40、または 80 µg/mL 培地プレートにアンチマイシンAを添加します。アッセイに未処理コントロールを含める場合は、対応するコントロール培地に同量のDMSO(1、2、4、8、または16 mL)を添加してください。
重要なステップ:オートクレーブ滅菌したNGM培地を約まで冷却します。 55 °C 攪拌しながら、最終濃度が所望の値になるようにアンチマイシンAを添加する。十分に混合した後、アンチマイシンAを含むNGM培地を各35 mmプレートに3 mLずつ分注する。各35 mmアガープレートに以下を播種する。 100 µL OP50細菌(セクション1.2)。アンチマイシンAを含むOP50播種済みNGMプレートは、以下で保存できる。 4 °C 使用の最大1週間前まで。
注意:Antimycin Aは有害であるため、白衣、適切な手袋、および保護メガネを着用し、化学用ドラフトチャンバー内で取り扱わなければなりません。吸入ならびに皮膚や目への接触を避けてください。 - 線虫をL4ステージ後半まで同期させ(セクション2)、以下で維持する。 20 °C同期化したL4期の虫体を、アンチマイシンAを含むOP50播種済み35 mm NGMプレートに転移させる。1群あたり4枚のプレートをテクニカルレプリケートとして使用し、1枚につき30~35匹の虫体を配置する。バイオロジカルレプリケートの設定については、セクション4を参照すること。
- すべてのプレートを以下でインキュベートします。 20 °C死滅した虫の数を毎日記録する。
重要なステップ:卵の孵化および幼虫の発達に関する問題があるため、最初の10日間は2日ごとに線虫を新しいプレートに継代してください。プレート上に新しい幼虫や卵が観察されなくなった時点で、継代を停止します。すべてのテクニカルレプリケートにおいて、継代回数を同一にする必要があります。例えば、1枚のプレートのみに継代が必要な場合でも、そのバイオロジカルレプリケートに含まれるすべてのプレートを同時に継代してください。5、10、20、40、または 80 µg/mL アンチマイシンAの範囲は約1.5日から5日(図2G,H)に対し、生理的ストレスのない状態での平均生存期間は約20日(図2A).
注:アンチマイシンA誘発ミトコンドリアストレスアッセイでは、最初の10日間、2日ごとに線虫を新しいプレートに継代する必要があります。継代は、過密状態や飢餓を防ぎ、実験個体とその子孫を区別するために行われます。 - 毎日、各テクニカルレプリケートプレート上の死滅した線虫の数をカウントし、スコアリングデータシートに記録します。スコアリングは、室温のベンチ上の解剖顕微鏡下で手動で行います。活発に動いている線虫は生存していると判定し、物理的な刺激は不要です。自発的な運動が見られない線虫については、白金線ピックで体後端を2回軽く触れて刺激を与えてください。反応がない場合は死滅したものとして記録し、記録後にその線虫をプレートから除去します。正確なカウントを行うため、手動タリーカウンターの使用を推奨します。すべての線虫を重複なく1回ずつカウントすることを確実にするため、プレートの下に格子状の透明プラスチックシートを置くか、格子線を引いてください。 計数のためにプレートをグリッド状のセクションに分けるため、プレートの底面に線を引きます。
注:スコアリング後、速やかに線虫をインキュベーターに戻してください。次回のスコアリングまで、約24時間インキュベーター内で保持してください。 - すべての個体が死亡するか、あらかじめ定義された基準に従って打ち切りとなるまで、蠕虫の生存状況を毎日モニタリングしてください。記録した生存データをまとめ、それを用いて後の解析のための生存曲線を作成してください。
- ミトコンドリアストレスアッセイ用培地プレートを作製します。アンチマイシンAストック溶液(DMSOを用いて5 mg/mLに調製し、–で保存)を添加します。20 °C)を液体NGM培地(セクション1.1.2参照)に添加し、最終濃度を5、10、20、40、または 80 µg/mL例えば、1 Lのミトコンドリアストレスアッセイ培地に対し、1、2、4、8、または16 mLのアンチマイシンAストック溶液(5 mg/mL DMSO溶液)を添加します。 最終濃度が5、10、20、40、または 80 µg/mL 培地プレートにアンチマイシンAを添加します。アッセイに未処理コントロールを含める場合は、対応するコントロール培地に同量のDMSO(1、2、4、8、または16 mL)を添加してください。
- 酸化ストレスアッセイ
本セクションのワークフローは、以下にまとめられています。 図1E.- 酸化ストレスアッセイ用培地プレートを作製する。パラクアットストック溶液(0.5 M ddH2O)を添加する。2O、–に保存20 °C)を液体NGM培地(セクション1.1.2参照)に添加し、最終濃度を2.5、5、10、または20 mMとする。
重要工程:オートクレーブ滅菌済みのNGM培地を約まで冷却します。 55 °C 攪拌しながら、パラクワットを目的の最終濃度になるまで加える。十分に混合した後、パラクワットを含むNGM培地を3 mLずつ35 mmプレートに分注する。各35 mmアガープレートに以下を播種する。 100 µL OP50細菌(セクション1.2)。OP50細菌は、アッセイの2〜3日前に播種することができる。パラコートを含むOP50播種済みNGMプレートは、以下で保存できる。 4 °C 使用まで最大1週間保存可能です。
注意:パラコートは極めて毒性が高く、適切な手袋、白衣、および保護メガネを着用し、化学薬品用ドラフトチャンバー内で取り扱わなければなりません。吸入、飲み込み、および皮膚や目への接触を避けてください。 - 線虫をL4期後半まで同期させ(セクション2)、以下の条件下で維持する。 20 °C同期させたL4期のワームを、パラクアットを含むOP50播種済み35 mm NGMプレートに転移させる。各群につき4枚のプレートをテクニカルレプリケートとして用い、1枚あたり30~35匹のワームを配置する。バイオロジカルレプリケートの設定については、セクション4を参照すること。
- すべてのプレートを〜でインキュベートします。 20 °C死滅した線虫の数を毎日記録する。2.5、5、10、または20 mMのパラコート条件下における野生型線虫の平均生存期間は約2.5日から5日の範囲である(図2I,J)、生理学的ストレスのない状態での平均生存期間である約20日と比較して(図2A).
注:パラコート誘導性酸化ストレスアッセイでは、虫を新しいプレートに転写する必要はありません。パラコートプレート上には少数の幼虫が存在しますが、これらはアッセイ期間中、L2段階またはそれ以前の発生段階で停止しています。したがって、これらが同期させたコホートの同定を妨げたり、飢餓状態を引き起こしたりすることはありません。虫の転写によって導入される可能性のある物理的ストレスを考慮し、アッセイ中の転写は推奨されません。 - 毎日、各テクニカルリプリケートプレート上の死滅した線虫の数をカウントし、スコアリングデータシートに記録する。スコアリングは、室温のベンチ上で解剖顕微鏡を用いて手動で行う。活発に動いている線虫は生存と判定し、物理的な刺激は不要である。自発的な動きが見られない線虫については、白金線ピックで体の後端部を2回軽く触れて刺激を与える。反応がない場合は死滅と記録し、記録後にその線虫をプレートから除去する。正確な計数を行うために、手動タリーカウンターの使用を推奨する。すべての線虫を重複なく一度だけカウントするために、プレートの下に格子状の透明プラスチックシートを置くか、あるいはプレートの底面に格子線を描き、プレートを区画に分けてカウントすること。
注:スコアリング後、速やかに虫をインキュベーターに戻してください。次回のスコアリングまで、約24時間インキュベーター内で保持してください。 - すべての個体が死亡するか、または事前定義された基準に従って打ち切りとなるまで、蠕虫の生存率を毎日モニタリングする。記録された生存データをまとめ、それらを用いて後の解析のための生存曲線を作成する。
- 酸化ストレスアッセイ用培地プレートを作製する。パラクアットストック溶液(0.5 M ddH2O)を添加する。2O、–に保存20 °C)を液体NGM培地(セクション1.1.2参照)に添加し、最終濃度を2.5、5、10、または20 mMとする。
4. データ解析
- 各タイムポイントにおいて、各テクニカルレプリケートプレート上の死滅した線虫の数を記録する。死亡率データは、タイムポイント(ストレス条件下に置かれた後の時間または日数)、実験群(異なる系統または異なる処理条件)、およびテクニカルレプリケート(プレート1、2、3、または4)ごとに整理されたスコアリングシートに記録する。各スコアリング間隔(アッセイに応じて1時間ごとまたは1日ごと)で、プレートごとに死滅した線虫の数を個別に記録し、アッセイが完了するまで累積死亡率を追跡する。
- 各スコアリング時点の生存率データをOASIS 2 (online application for survival analysis 2) に入力してください。44 カプラン・マイヤー生存曲線の作成およびログランク統計解析に使用します。あるいは、個々の時点における死亡した線虫の割合として死亡率を算出し、非ペアの両側Student's t検定を用いて群間比較を行うことも可能です。 t検定 (2群の場合)または、Tukeyの多重比較検定を伴う一元配置分散分析(3群以上の場合)。
注:全体的な生存率を反映させるため、破裂または親個体内で孵化(バギング)した個体は、観察時に死亡としてカウントする。以下の代表的な結果に示される生存曲線には、破裂した個体およびバギングした個体が含まれている。異なる条件下で打ち切りとなった個体数は、以下に記録した。 付録表1 アッセイプレートから脱出した個体、プレートの壁面で乾燥した個体、またはスコアリング時に欠損していた個体は、打ち切りデータとして扱い、その後の生存分析から除外する。運動機能に障害が見られるものの、軽い刺激に対して反応を示す個体は「生存」としてスコア判定する。アッセイ開始前に産卵不全を示した個体は、生存分析から除外する。 - すべてのストレスアッセイは、異なる日に実施された少なくとも3回の独立した生物学的反復で実行すること。各生物学的反復は、線虫を含む4枚のテクニカルリプリケートプレートで構成される。1回の生物学的反復内におけるテクニカルリプリケートからのデータはプールされ、単一の生存曲線として生成される。独立した生物学的反復は個別に解析され、プールせず個別のデータセットとして提示する。各生物学的反復は、独立して調製した培地および新たに調製したストレス誘発化合物のバッチを用いて実施する。上述のプロトコルは、各ストレスアッセイにおける1回の生物学的反復を生成するための手順である。本プロトコルでは、雄は除外し、雌雄同体のみを対象に含めて解析を行う。
注:本プロトコルにおけるインキュベーターの湿度は制御されていませんが、インキュベーターの温度は実験温度に厳密に制御されています。ここに報告する実験は盲検条件下では行われておらず、スコアリング中に実験者は遺伝子型および処理条件を認識していました。潜在的なスコアリングバイアスを最小限に抑えるため、可能な場合は遺伝子型および処理条件の盲検化が推奨されます。
結果
上述のプロトコルを用いて、まず野生型(WT)のN2線虫を使用し、4種類すべてのストレス因子(熱ストレス、小胞体(ER)ストレス、ミトコンドリアストレス、酸化ストレス)の投与量を段階的に増やして、線虫の生存率を調べました。次に、ニューロンアブレーション系統を用いて、WT線虫と比較したストレス耐性における介在ニューロンRICの役割を検証しました。
RICアブレーション系統における熱ストレス投与量の滴定および熱ストレス耐性の比較
生理的温度の下で 20 °C, WT虫の平均寿命は20.67日である(図2A)。セクション3.1に示す熱ストレスアッセイの手順に従い、30℃、35℃、および 37 °C 熱ストレスの用量を増加させたところ、データにより、野生型(WT)の線虫の平均寿命は、〜において3.11日であることが示された。 30 °C (図 2B);また、野生型(WT)虫の平均生存時間は、〜において5.36時間であった。 35 °C および4.89時間で 37 °C (図2C)。これらの結果は、高温下で生存率が有意に低下したことを示した。統計解析および P 詳細な値は〜に示されている 付随表2 および図説。これらのデータは、研究者が熱ストレスアッセイを設計する際に、最適なストレス温度と時間スケールを選択するための信頼できる情報となります。研究者は、 30 °C ~を使用して、数日間にわたる線虫の生存率を検討するため 35 °C または 37 °C 数時間以内に、線虫の生存率をより迅速に評価するために。
次に、RICニューロンの除去が生存率に及ぼす影響をWT個体と比較して評価するため、熱ストレス条件として35 °Cを用いました。この温度は中程度の熱ストレスレベルであり、37 °Cのような極端な深刻さを避けつつ、30 °Cよりも堅牢な反応を誘導し、約12 h以内に生存率アッセイを完了させることができます。
RICニューロンは、C. elegansの頭部領域に位置する一対のオクトパミン作動性介在ニューロンである9,10。RICニューロン除去株は、tbh-1遺伝子プロモーターによって駆動されるcaspase-3遺伝子を発現させることで作製され、以前に使用された45。簡潔に述べると、mec-18プロモーターを置換するため、tbh-1プロモーターをmec-18p::caspase-3 (p12)::nzおよびmec-18p cz::caspase-3 (p17)ドナープラスミドに組み込んだ。RIC遺伝的除去株を作製するため、3つのコンストラクトであるtbh-1p::caspase-3(p12)::nz (20 ng/µL)、tbh-1p::cz::caspase-3(p17) (20 ng/µL)、およびtbh-1p::GFP (20 ng/µL、RICニューロンが除去されたかを示すRICニューロンのマーカーとして使用)を、蛍光共注入マーカーであるmyo-3p::GFP (5 ng/µL)と共に野生型N2株に共注入した。独立して注入された3つの系統をRICニューロン除去株として維持した。形質転換系統は、蛍光myo-3p::GFPマーカーを持つ個体を選択することで維持した。各ストレスアッセイの結果は、2または3つの独立した系統によって検証した。RICニューロンの除去が成功したことは、RICニューロン除去株においてtbh-1p::GFP蛍光が消失していることで確認され、一方でtbh-1p::GFPリポーター対照株のRICニューロンではGFP発現が観察された(Supplementary Figure 1)。
セクション3.1に提示した熱ストレスアッセイの手順を用いて、35 °Cの熱ストレス下におけるWTおよびRICニューロン除去系統の両方の生存率を検討した (図2D)。セクション4.1〜4.3に提示したデータ解析の手順を用いた結果、35 °Cの熱ストレス下において、RICニューロン除去系統と野生型N2コントロール群との間に有意な差は認められなかった(図2D)。
熱ストレスアッセイのすべての代表的な結果は、異なる日に実施された3回の独立した生物学的反復を用いて得られたものである(補足図 2)。寄与した動物数(n値は図の説明に記載) 代表的な結果および補足図に示されている生存曲線は、単一の生物学的レプリケートにおける4つのテクニカルレプリケートを統合した数に基づいています。
RICアブレーション株におけるERストレス投与量の滴定およびERストレス耐性の比較
セクション3.2で提示したERストレスアッセイの手順を用いて、25、50、100、または200 µg/mLのチュニカマイシンによるERストレスの用量依存的な影響に対するWTの生存率を測定した(Figure 2E)。生理的にストレスのない状態での平均生存期間は約20日であったのに対し(Figure 2A)、野生型ワームの平均生存期間は、25 µg/mLで10.74日、50 µg/mLで9.13日、100 µg/mLで9.3日、200 µg/mLのチュニカマイシンで8.93日であった(Figure 2E)。チュニカマイシンの投与量を増やしても、これらの用量範囲内では生存率に有意な変化は見られなかった。統計解析およびP 値の詳細は、Supplementary Table 2および図の説明に記載している。これらのデータは、研究者がERストレスアッセイにおいて最適なチュニカマイシン用量を選択するための信頼できる情報となる。
次に、テストした用量の中間量である 50 µg/mL のツニカマイシンを小胞体(ER)ストレス条件として用い、RICニューロンの除去がWT個体と比較して生存率に及ぼす影響を評価しました。セクション3.2で提示したERストレスアッセイの手順に従い、50 µg/mL のツニカマイシンにより誘発されたERストレス下におけるWT株およびRICニューロン除去株の両方の生存率を調べました(Figure 2F)。セクション4.1–4.3に提示したデータ解析の手順を用いた結果、RICニューロン除去株の生存曲線はWT N2対照群に対して有意な右方シフトを示し、ERストレス下での生存期間が延長していることが示されました。この結果は、RICニューロンの除去がERストレス耐性を向上させることを示唆しています(Figure 2F)。
ERストレスアッセイのすべての代表的な結果は、異なる日に実施された3回の独立した生物学的反復を用いて得られたものである(付録図3)寄与した動物数(n値は図の説明に記載) 代表的な結果および補足図に示されている生存曲線は、単一の生物学的レプリケートにおける4つのテクニカルレプリケートの合算数である。
RICアブレーション株におけるミトコンドリアストレス用量の滴定およびミトコンドリアストレス耐性の比較
セクション3.3で提示したミトコンドリアストレスアッセイの手順を用い、ミトコンドリアストレスの増量として5、10、20、40、または80 µg/mLのantimycin A条件下におけるWTの生存率を測定した(Figure 2G)。WT線虫の生存曲線は、用量依存的に有意な変化を示した。生理的にストレスのない状態での平均生存期間は約20日であったが(Figure 2A)、野生型線虫の平均生存期間は、antimycin Aが5 µg/mLで4.96日、10 µg/mLで3.77日、20 µg/mLで2.68日、40 µg/mLで1.65日、80 µg/mLで1.4日であった(Figure 2G)。統計解析およびP 値の詳細は、Supplementary Table 2および図の説明に記載している。これらのデータは、研究者がミトコンドリアストレスアッセイを設計する際に、最適なantimycin Aの用量と時間スケールを選択するための信頼できる情報となる。研究者は、約10日間にわたる線虫の生存率を評価するために5 µg/mLを選択するか、あるいは数日以内に生存結果を得るために、より高濃度のantimycin Aを使用することができる。高濃度では死亡が加速し、低濃度では生存率の低下がより緩やかになるため、系統間のわずかな差異をより容易に区別できる点に留意されたい。
次に、~を用いました。 5 µg/mL より強力な(効果を)もたらしたアンチマイシンA 試験した用量に伴い生存率が緩やかに低下しており、これはWT個体と比較してRICニューロンの除去が生存に及ぼす影響を評価するためのミトコンドリアストレス条件下での結果である。セクション3.3に示したミトコンドリアストレスアッセイの手順を用い、WTおよびRIC除去系統の両方における生存率を以下の条件下で検討した。 5 µg/mL アンチマイシンA誘発性ミトコンドリアストレス(図2H)。セクション4.1~4.3で提示したデータ解析の手順を用いて解析した結果、RICニューロンをアブレーションした系統の生存曲線は、野生型(WT)のN2コントロールと比較して有意な右方シフトを示し、ミトコンドリアストレス下での生存期間が延長していることが明らかになった。この結果は、RICニューロンのアブレーションがミトコンドリアストレス耐性を向上させることを示唆している(図 2H).
ミトコンドリアストレスアッセイのすべての代表的な結果は、異なる日に実施した3回の独立した生物学的反復によって得られたものである(補足図4)。図の説明に記載された動物数(n値)が寄与して 代表的な結果および補足図に示されている生存曲線は、単一の生物学的レプリケートにおける4つのテクニカルレプリケートからのプールされた数値である。
RICアブレーション株における酸化ストレス投与量の滴定および酸化ストレス耐性の比較
セクション3.4に提示した酸化ストレスアッセイの手順を用い、酸化ストレスの増量として2.5、5、10、または20 mMのパラコート条件下におけるWTの生存率を測定した(図2I)。WT虫の生存曲線は、用量依存的に有意な変化を示しました。生理的にストレスのない状態での平均生存期間である約20日と比較して(図2A)、野生型虫の平均生存期間は、パラコート濃度2.5 mMで4.92日、5 mMで3.81日、10 mMで2.93日、20 mMで2.81日であった(図2I)。統計解析および P 値の詳細については、~に記載されています。 補足表2 および図説。これらのデータは、酸化ストレスアッセイを設計する研究者が、パラコートの最適な投与量とタイムスケールを選択するための信頼できる情報となります。研究者は、約10日間にわたる線虫の生存率を評価する場合は2.5 mMを選択し、数日以内に生存結果を得たい場合はより高濃度のパラコートを使用することが可能です。高濃度(10 mMおよび20 mM)では死亡が加速し、中濃度および低濃度(2.5 mMおよび5 mM)では生存率がより緩やかに低下するため、系統間のわずかな差異をより容易に区別できる点に注意してください。
次に、試験した用量の中間量である5 mMのパラコートを酸化ストレス条件下として用い、RICニューロンの除去がWT個体と比較して生存率に及ぼす影響を評価しました。セクション3.4に示した酸化ストレスアッセイの手順に従い、5 mMパラコート誘導酸化ストレス下におけるWTおよびRICニューロン除去株の両方の生存率を検討しました(Figure 2J)。セクション4.1〜4.3に示したデータ解析の手順を用いた結果、5 mMパラコート誘導酸化ストレス下において、RICニューロン除去株と野生型N2コントロール群との間に有意な差は認められませんでした(Figure 2J)。
酸化ストレスアッセイにおけるすべての代表的な結果は、異なる日に実施した3回の独立した生物学的反復を用いて得られたものである(補足図 5)。図の凡例に示される動物数(n値)が寄与している 代表的な結果および補足図に示されている生存曲線は、単一の生物学的反復における4つの技術的反復の合算数に基づいています。
トラブルシューティング
パラコート誘導性酸化ストレスアッセイで繰り返し発生する問題として、線虫がアガロプレートから脱出することによる個体の喪失と、解析に利用可能な線虫数の減少が挙げられます。この脱出行動を部分的に抑制するために、アッセイプレートにパルミチン酸 バリアやその他の「フェンス」を追加することができます46,47が、その改善効果は限定的であり、問題を完全に解消するものではありません。パルミチン酸処理後のC. elegansの健康状態および寿命に有意な差は見られませんでした48。パルミチン酸バリアはNGMプレート上での忌避的な「フェンス」として機能し、ストレス、飢餓、または病原体によるC. elegansの逃避を防ぎます。線虫の脱出を最小限に抑えるには、10 mg/mLのパルミチン酸 エタノール溶液(パルミチン酸0.5 gを100% EtOH 50 mLに溶解)を30 µL、35 mmアッセイプレートの端に塗布し、プレートを静かに回して連続したリング状にします。エタノールが蒸発すると、パルミチン酸 リングが物理的および化学的バリアとして機能し、線虫の脱出を減少させます。パルミチン酸リングに接触して死亡した線虫は打ち切りとして扱い、生存分析から除外します。
注意:パルミチン酸およびその溶液を取り扱う際は、手袋、白衣、保護眼鏡などの適切な個人用保護具(PPE)を着用し、皮膚や目への接触を避けるよう十分注意してください。
データの利用可能性
図2および補足図の根拠となる生存データ(すべての生物学的レプリケートのデータおよび統計結果を含む)は、補足図1–5、補足表1–2、および補足ファイル1に記載されています。
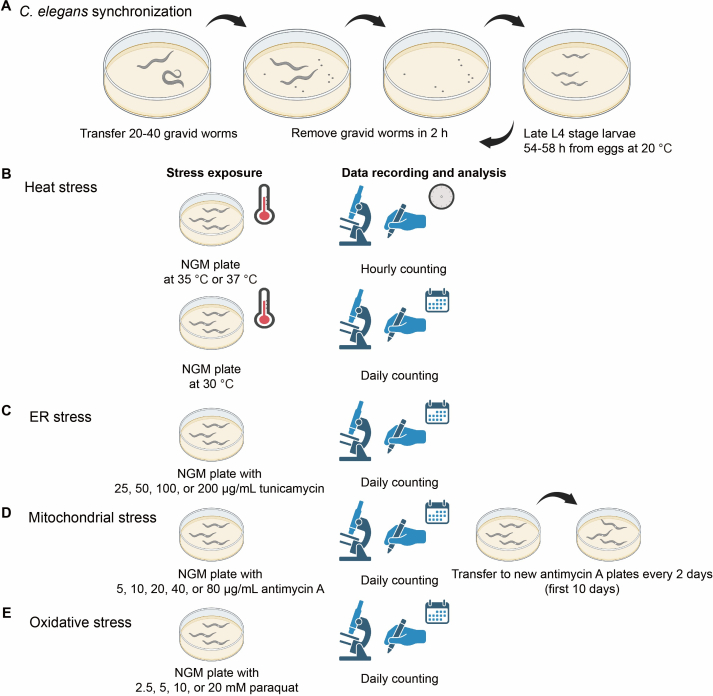
図1: ストレスアッセイのワークフロー (A) 妊娠した虫から2時間以内に産下された卵を回収することにより、同期化した虫を得る。同期化した虫をすべてのストレスアッセイに使用し、20 °Cで卵から54-58時間発育させたL4期後半に、ストレスプレートまたはストレス条件下に移す 。(B) 熱ストレスアッセイでは、同期化した虫を35 °Cまたは37 °Cのインキュベーター内のNGMプレートに移し、死滅した虫を1時間ごとにカウントする。30 °Cのインキュベーターでの熱ストレスアッセイでは、死滅した虫を毎日カウントする。(C) 小胞体(ER)ストレスアッセイでは、同期化した虫を25、50、100、または200 µg/mLのツニカマイシンを含むNGMプレートに移す。死滅した虫を毎日カウントする。(D) ミトコンドリアストレスアッセイでは、同期化した虫を5、10、20、40、または80 µg/mLのアンチマイシンAを含むNGMプレートに移し、生存率を毎日カウントして評価する。子孫による干渉を防ぐため、アッセイの最初の10日間は2日ごとに新しいアンチマイシンA含有プレートに虫を移す。(E) 酸化ストレスアッセイでは、同期化した虫を 2.5、5、10、または20 mMのパラコートを含むNGMプレートに移し、生存率を毎日カウントして評価する。ストレス耐性は、各アッセイから作成されたカプラン=マイヤー生存曲線を用いて評価する。ここをクリックして、この図の拡大版を表示してください。
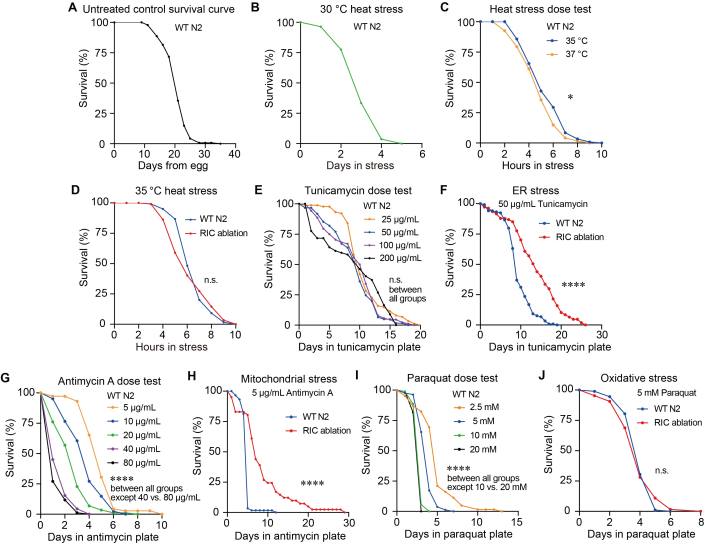
図2熱ストレス、小胞体(ER)ストレス、ミトコンドリアストレス、および酸化ストレスの投与量を滴定し、RICニューロン除去個体におけるストレス耐性を比較する 菌株 (A) 非ストレス条件下におけるWT N2系統の代表的なカプラン・マイヤー生存曲線(n = 141、平均生存期間 = 20.67日)。(B代表的な WT N2系統の~におけるカプラン=マイヤー生存曲線 30 °C 熱ストレス(n = 111、平均生存期間 = 3.11日)。(C)WT N2系統の代表的なカプラン=マイヤー生存曲線(〜条件下) 35 °C および 37 °C 熱ストレス (n = 119, 121)、ログランク検定 P = 0.0244、*は〜を示す P < 0.05. (D) WT N2およびRICニューロン除去系統の代表的なカプラン・マイヤー生存曲線 35 °C 熱ストレス (n = 117, 120); ログランク検定、 P = 0.4972、n.s. は有意差がないことを示す。コントロールとして WT N2 を使用した。(E) チューニカマイシン処理濃度の増加に伴うWT N2系統の用量反応生存曲線(n = 88, 61, 88, 67);ログランク検定 P = 0.6472 (25 µg/mL 対 100 µg/mL), P = 0.1473 (25 µg/mL 対比 50 µg/mL), P = 0.6581 (50 µg/mL 対照的な 200 µg/mL), P = 1 (25 µg/mL 対 200 µg/mL; 50 µg/mL 対比 100 µg/mL; 100 µg/mL 対 200 µg/mL)、n.s.は有意差なしを示す。(FWT N2およびRICの代表的なカプラン-マイヤー生存曲線 ニューロン除去系統下の 50 µg/mL ツニカマイシン誘発小胞体ストレス (n = 119, 107); ログランク検定、****は以下を示す P < 0.0001. (G) アンチマイシンAの濃度を段階的に上げて投与した野生型N2系統の代表的なカプラン・マイヤー生存曲線(n = 72, 81, 88, 91, 85);ログランク検定。 P = 0.000038 (5 µg/mL 対 10 µg/mL), P = 0.00002 (10 µg/mL 対 20 µg/mL), P = 1.60 × 10⁻8 (20 µg/mL 対 40 µg/mL), P < 0.0001 (5 µg/mL 対 20 µg/mL; 5 µg/mL 対 40 µg/mL; 5 µg/mL 対 80 µg/mL; 10 µg/mL 対 40 µg/mL; 10 µg/mL 対 80 µg/mLまたは 20 µg/mL 対 80 µg/mL), P = 0.189 (40 µg/mL 対 80 µg/mL)、****は~を示す P < 0.0001. (HWT N2およびRICニューロン除去系統の代表的なカプラン・マイヤー生存曲線 5 µg/mL アンチマイシンA誘発ミトコンドリアストレス(n = 59, 41);ログランク検定、P = 3.2 × 10⁻9, ****は~を示す P < 0.0001. (I) 異なる濃度のパラクワート条件下におけるWT N2系統の代表的なカプラン・マイヤー生存曲線(n = 62, 81, 88, 93);ログランク検定、 P = 1.80 × 10⁻7 (2.5 mM 対 5 mM)、 P < 0.0001 (2.5 mM 対 10 mM; 2.5 mM 対 20 mM; 5 mM 対 10 mM; 5 mM 対 20 mM), P = 0.1445 (10 mM対20 mM)、****は〜を示す P < 0.0001. (J) 5 mM パラクアット誘導性酸化ストレス下における WT N2 および RIC ニューロン除去株の代表的なカプラン=マイヤー生存曲線 (n = 92, 64); ログランク検定 P = 0.9817、n.s.は有意差がないことを示す。すべての実験は3つの独立した生物学的繰り返しを用いて行われた。本図には、1つの生物学的繰り返しからの代表的な結果を示す。 各生物学的レプリケートは、線虫を含む4枚のテクニカルレプリケートプレートで構成される。寄与した個体数(n) 本図の生存曲線は、単一の生物学的反復における4つの技術的反復の統合数に基づいています。独立した生物学的反復は統合せず個別に解析し、付録図2~5に個別のデータセットとして提示しました。有意性は、生存分布を比較するログランク検定を用いて評価しました。詳細な統計的 P テクニカルレプリケート間の数値、平均生存率、および標準誤差(S. E.)を補足表2に記載している。 この図の拡大版を表示するには、ここをクリックしてください。
補足図1:~の欠如 tbh-1pRICニューロン除去系統におけるGFP蛍光、一方でGFPの発現はRICニューロンにおいて観察された。 tbh-1p::GFPリポーターコントロール株 (ARICニューロンを除去した個体の蛍光画像 菌株 tbh-1pカスパーゼ-3(p12) tbh-1p::cz::カスパーゼ-3(p17); tbh-1p緑色蛍光タンパク質(GFP) myo-3p::GFPおよびa tbh-1p::GFPレポーターコントロール株 OH16150 tbh-1p緑色蛍光タンパク質(GFP) tdc-1p::mCherry。L4期後半の線虫を、GFPチャンネルは励起波長488 nm、露光時間800 ms、明視野チャンネルは露光時間176 msで撮影した。黄色の矢印頭は、コントロールにおけるRICニューロンの位置を示す。 tbh-1p::GFPレポーター系統、またはRICニューロン除去系統では欠損しているRICニューロンの予想される位置。 tbh-1pRICニューロン除去系統では、RICニューロンの位置にGFPシグナルは検出されなかったが、 tbh-1pGFPシグナルが、~のRICニューロンで観察されました。 tbh-1p::GFPリポーターコントロール株OH16150。RICニューロンを除去した株における体壁筋の蛍光は、 myo-3p::GFP(共注入マーカー)。(A) OH16150ではn = 14、RICニューロン除去系統ではn = 20。 (B, C) 他の2つの生物学的レプリケートからの代表的な結果。L4後期段階の線虫を、488 nmの励起光および1007 msの(B) または 1998 ms (C) GFPチャンネルの露光時間および176 msの(B および C) 明視野チャンネルの露光時間 (B) OH16150ではn = 8、RICニューロン除去系統ではn = 17。 (C) OH16150では n = 14、RICでは n = 13 神経細胞除去系統。 こちらをクリックしてファイルをダウンロードしてください。
補足図2:非ストレス条件下または熱ストレス条件下における生存曲線の生物学的反復。 (A, B) 非ストレス条件下における2回の独立した生物学的反復から得られたカプラン=マイヤー生存曲線。 (A) n = 123, 平均生存期間 = 20.52 days; (B) n = 130, 平均生存期間 = 22.74 days. (C, D) 30 °Cの熱ストレス条件下におけるWT N2株のカプラン=マイヤー生存曲線。データは2回の独立した生物学的反復によるものである。 (C) n = 130, 平均生存期間 = 3.72 days. (D) n = 98, 平均生存期間 = 3.77 days. (E, F) 35 °Cまたは37 °Cの熱ストレス条件下におけるカプラン=マイヤー生存曲線。データは2回の独立した生物学的反復によるものである。 (E) n = 118, 121; ログランク検定, P = 0.0409, *は P < 0.05を示す, (F) n = 122, 120; ログランク検定, P = 0.0251, *は P < 0.05を示す。 (G, H) 35 °Cの熱ストレス条件下におけるWT N2およびRICニューロン除去株のカプラン=マイヤー生存曲線。データは2回の独立した生物学的反復によるものである。 (G) n = 79, 76; ログランク検定, P = 0.2217, n.s.は有意差なしを示す。 (H) n = 77, 81; ログランク検定, P = 0.1881, n.s.は有意差なしを示す。有意性は生存分布を比較するログランク検定を用いて評価した。テクニカル反復間の詳細な統計的 P値、平均生存期間、およびS. E.は補足表2に含まれている。 ここをクリックしてファイルをダウンロードしてください。
補完図3:ERストレス条件下における生存曲線の生物学的レプリケート。 (A, B) 異なる濃度のツニカマイシン処理下におけるWT N2株のカプラン・マイヤー生存曲線。データは2つの独立した生物学的レプリケートによる。 (A) n = 110, 102, 100, 96; (B) n = 88, 77, 75, 69。異なる群間 (A および B) の統計的 P値は、補完表2に示されている。 (C, D) 50 µg/mLのツニカマイシン誘発ERストレス条件下におけるWT N2株およびRICニューロン除去株のカプラン・マイヤー生存曲線。データは2つの独立した生物学的レプリケートによる。 (C) n = 104, 55; ログランク検定, P = 0.012, * は P < 0.05 を示す, (D) n = 85, 109; ログランク検定, P = 0.0001, *** は P < 0.001 を示す。生存分布を比較するログランク検定を用いて有意性を評価した。テクニカルレプリケート間の詳細な統計的 P値、平均生存期間、および標準誤差(S. E.)は、補完表2に含まれている。 こちらのリンクからファイルをダウンロードしてください。
補足図4:ミトコンドリアストレス条件下における生存曲線の生物学的反復。 (A, B) 異なる濃度のantimycin A処理下におけるWT N2系統のKaplan-Meier生存曲線。データは2回の独立した生物学的反復によるものである。 (A) n = 71, 80, 81, 88, 90. (B) n=71, 85, 83, 88, 87. 各群間(AおよびB)の統計的 P値は補足表2に示されている。 (C, D) antimycin A誘導ミトコンドリアストレス下におけるWT N2系統およびRICニューロン除去系統のKaplan-Meier生存曲線。データは2回の独立した生物学的反復によるものである。 (C) n = 105, 78; log-rank検定, P = 0.000004, ****はP < 0.0001を示す。 (D) n = 89, 73; log-rank検定, ****はP < 0.0001を示す。有意性は、生存分布を比較するlog-rank検定を用いて評価した。テクニカルレプリケート間の詳細な統計的 P値、平均生存期間、およびS. E.は補足表2に含まれている。 こちらをクリックしてファイルをダウンロードしてください。
補足図5:酸化ストレス条件下における生存曲線の生物学的反復。 (A, B) 異なる濃度のパラクアット処理下におけるWT N2系統のKaplan-Meier生存曲線。データは2回の独立した生物学的反復によるものである。 (A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. 各群間(AおよびB)の統計的 P値は補足表2に記載している。 (C, D) 5 mMパラクアット誘発酸化ストレス条件下におけるWT N2およびRICニューロン除去系統のKaplan-Meier生存曲線。データは2回の独立した生物学的反復によるものである。 (C) n = 87, 82; ログランク検定, P = 0.2629, n.s.は有意差なしを示す。 (D) n = 116, 118; ログランク検定, P = 0.1184, n.s.は有意差なしを示す。生存分布を比較するログランク検定を用いて有意性を評価した。テクニカルレプリケート間の詳細な統計的 P値、平均生存期間、およびS. E.は補足表2に含まれている。こちらをクリックしてファイルをダウンロードしてください。
補足表1:すべての生存曲線に含まれる線虫数の要約。本表は、初期線虫数、および破裂、バッグ詰め、および検閲された線虫数をまとめたものである。こちらのリンクからファイルをダウンロードしてください。
付随表 2: 以下を含む、すべての生存曲線の詳細な統計解析 P 値、平均生存期間、および標準誤差(S. E.) こちらをクリックして、このファイルをダウンロードしてください。
補足ファイル1:本研究の知見を裏付けるデータ.
RICニューロンのアブレーションが成功したことの検証、およびメインフィギュアに提示されたデータの根拠となるすべての生物学的レプリケートの結果が含まれています。こちらのリンクをクリックしてファイルをダウンロードしてください。
ディスカッション
ここでは、標準化された手順について説明します。 熱ストレス、小胞体(ER)ストレス、ミトコンドリアストレス、および酸化ストレス下における再現性のあるストレスアッセイのために C. elegans (図1)。我々は、4種類すべてのストレス因子の用量を段階的に増加させ、野生型(WT)線虫の生存率への影響を検討した(図2)。また、ニューロン除去系統を用いて、4つのストレス因子すべてに対するストレス耐性におけるインターニューロンの役割を調査する例を示しました(図2).
本稿で提示するストレスアッセイプロトコルを適切に運用するためには、プロセスにおいていくつかの重要な検討事項に留意する必要があります。アガロース粉末、培地、周囲温度、湿度などの違いによるラボ間のばらつきがあるため、「プロトコル」および「結果」のセクションに記載された滴定手順に従い、各ストレスまたはストレス誘発化合物の濃度を滴定することを推奨します。適切なストレス条件とは、野生型コントロールの虫において再現性のある中程度の生存反応を示し、ストレス耐性の増加と減少の両方を検出するために十分なダイナミックレンジを確保できる条件であるべきです。ほぼ完全に生存するか、あるいはほぼ完全に死滅するような条件は避けてください。次に、すべての生物学的および技術的レプリケートにおいて、虫が同一の発達段階に同期していることを確認することが不可欠です。虫の同期は、セクション2.1~2.3に記載された手順を用いて行うことができます。L4後期段階での同期を推奨します。L4段階でストレスアッセイを開始することは、C. elegansのストレス応答研究分野において確立された手法であり、酸化ストレス42、熱ストレス40,43、およびその他のストレス耐性アッセイ35において、同期させたL4個体が数多くの研究で用いられています。L4段階から開始することで、発達上の同期を確保しつつ、成虫の齢や、産卵の開始および胚の保持といった生殖状態の違いによって導入されるばらつきを最小限に抑えることができます。これらはいずれもストレス耐性の測定に影響を与える可能性があります12,37,38,40。本研究におけるすべての実験群は同期されており、同一の処理がなされているため、このアプローチはストレス耐性を比較するための一定かつ適切な基礎となります。最後に、アッセイ開始前に虫が飢餓状態やストレス状態にあった場合は、ストレスアッセイ用の同期個体を得るための親虫(gravid worms)として使用する前に、餌を与えられた非ストレス条件下で数世代にわたって後代を回復させる必要があります。
独立した生物学的反復群間における実験間変動は、プレートの調製および保存における差異(4 °Cでのストレス誘発化合物含有プレートの保存期間や、OP50細菌の播種タイミングなど)に起因して発生する可能性があります。異なる日に実施される実験における再現性を向上させるため、プレート調製の重要なステップは、セクション1.1のNGMプレート、セクション3.2.1のツニカマイシン誘発小胞体(ER)ストレスプレート、セクション3.3.1のアンチマイシンA誘発ミトコンドリアストレスプレート、およびセクション3.4.1のパラコート誘発酸化ストレスプレートの作製について記載されたプロトコルに従って標準化する必要があります。具体的には、アガールプレートを注いだ後、室温で約24時間乾燥させ、アガールが完全に凝固した後にOP50を播種してください。OP50を播種したNGMプレートは、4 °Cで保存する前に、さらに24時間室温で乾燥させてください。最適な乾燥時間は、通気孔付きプレートまたは通気孔なしプレートの使用状況や、温度、湿度などの局所的な環境条件によって異なる場合があります。したがって、各研究室は自らの条件に合わせてこのステップを最適化し、再現性を確保するために、すべての独立した生物学的反復群において一貫した乾燥時間を維持してください。ストレスアッセイプレートは、ストレス誘発化合物の分解および細菌の過剰増殖の両方がアッセイの整合性に影響を及ぼす可能性があるため、調製後1週間以内に使用してください。
本プロトコルでは、ニューロン除去系統を用いて、4種類すべてのストレッサーに対するストレス応答における介在ニューロンの役割を調査する例も示しました(Figure 2)。特定のニューロンで特異的に発現する遺伝子のプロモーターを使用してcaspase-3の発現を誘導し、標的ニューロンを除去することが可能です。ここでは、RICニューロンで特異的に遺伝子発現を誘導するtbh-1プロモーターを用いて、RICニューロンの除去を行いました。tbh-1プロモーターは、RICを標的とした遺伝子操作において広く検証されており、細胞特異的な発現、レスキュー、カルシウムイメージング、およびニューロンサイレンシングに日常的に使用されています45,49,50。報告されているtbh-1の特性と一致して、tbh-1p::GFPの発現はRICニューロンに限定されており、他の組織に蛍光は検出されませんでした(Supplementary Figure 1)。RICニューロン除去系統において、産卵数や生殖細胞系の形態を特異的に検討はしませんでしたが、明らかな生理学的欠損は観察されませんでした。tbh-1レポーターは、生殖系の体細胞である体細胞性生殖腺鞘細胞において追加的な発現を示すことが報告されています51,52。RICニューロン以外での低レベルの発現の可能性を完全に排除することはできませんが、RIC以外の部位でのtbh-1の発現が、RICニューロン除去個体で観察されたストレス耐性の向上に寄与している可能性は低いと考えています。この手法は十分に確立されていますが49,50、標的ニューロン以外の細胞で発現する可能性があるという制限があります。ニューロンの役割を確認するには、例えばストレッサーに応答したニューロン活性のモニタリングや、ストレスアッセイにおける当該ニューロンから放出される神経伝達物質の役割の評価など、他の手法が必要となります。
C. elegans 生存解析(サバイバルアッセイ)は、ストレス耐性を測定するための強力なツールとなります。その理由は、 線虫の比較的短い寿命(約20〜30日、 図2)および、通常数時間から数日かけて起こる、複数のストレス要因によって誘発される急速な死亡率(図2)。しかし、生存率測定法の限界は、生存か死亡かというバイナリのエンドポイントを用いるため、ストレス曝露中に起こる漸進的な生理学的機能低下を捉えられない点にある。スラッシング測定法や、複数の時点で行う自動運動能(速度)測定などの補完的なアッセイを用いることで、ストレス中の神経筋肉機能の漸次的な喪失に関する追加情報を得ることができる。もう一つの限界は、死亡の判定を穏やかな物理的刺激に対する反応の有無で行うため、運動能が著しく損なわれた個体において生存率を過小評価する可能性がある点である。さらに、手動によるスコアリングは、観察者に依存する変動や潜在的なバイアスをもたらす。これらの影響を最小限に抑えるため、独立した生物学的反復内でのすべてのスコアリングは、遺伝子型および実験条件をブラインド化した同一の研究者が行うべきである。プレート間および実験間の変動を減らすためには、各時点において同一の顕微鏡倍率および照明設定を使用するなど、スコアリング条件を一定にすることも重要である。代表的な結果として、RICニューロン除去株が野生型虫と比較して、小胞体(ER)ストレスおよびミトコンドリアストレスに対してはストレス耐性の増加を示したが、熱ストレスおよび酸化ストレスに対しては示さなかった例を提示した(図24つのストレス因子のうち2つにおいて生存率に差が見られたとしても、それだけでそのニューロンが経路特異的な役割を担っていることが立証されるわけではありません。本稿における生物学的な結論は、メカニズム的な主張としてではなく、本手法の提示および観察結果として述べられたものです。
ここで述べたストレス生存アッセイ以外にも、C. elegansの生存率を測定するための自動化プラットフォームがいくつか開発されています。自動スコアリングはスループットを大幅に向上させ、連続的または高頻度のモニタリングを可能にし、手動スコアリングに伴う観察者のバイアスや労力を軽減します53,54,55。これらのシステムは、大規模な遺伝学的または化学的スクリーニングにおいて特に有利です。しかし、ほとんどの自動化手法は動きの停止から死を判定するため、使用するイメージングアルゴリズムや検出閾値によっては、ストレス下で静止状態にある個体や運動能が著しく低下した個体を誤判定する可能性があります。また、自動検出は温度、結露、真菌や細菌の混入、培養条件の変動などの環境要因の影響を受けることがあり、これらすべてが個体の検出を妨げ、生存率の測定に影響を及ぼす可能性があります。対照的に、手動スコアリングでは、バギング(bagging)や体内孵化、個体の破裂など、特定の判定基準や除外基準を必要とする異常な表現型を実験者が識別することが可能です。手動スコアリングはより労力がかかり、観察者によるばらつきが生じやすいものの、ブラインド判定や標準化された判定基準の導入、および同一の研究者による一貫したスコアリングによって、これらの制限を最小限に抑えることができます。したがって、手動および自動の生存アッセイにはそれぞれ明確な利点と限界があり、手法の選択は実験目的、必要なスループット、およびストレスパラダイムの性質に基づいて決定されるべきです。
以上の方法を総合すると、熱ストレス、ミトコンドリアストレス、小胞体(ER)ストレス、および酸化ストレスを含む複数の環境ストレス因子に対するC. elegansの応答を評価するための、標準化され再現性のある枠組みが提供されます。多様なストレス因子への耐性を評価することは不可欠です。なぜなら、遺伝的または生理学的な摂動によって、ある種のストレスへの耐性が向上する一方で、別のストレスへの感受性が高まる可能性があり、それによってストレス因子特異的な適応メカニズムと共通の適応メカニズムの両方を明らかにできるためです。これらのアッセイにより、異なる遺伝子型や実験条件下でのストレス耐性の定量的な比較が可能となり、ストレス耐性と生理学的恒常性の維持における遺伝子、ニューロン、および代謝経路の役割を調査することに容易に適用できます。より広義には、これらの手法は、不利な環境条件下で個体の健康と生存を促進するメカニズムを特定するための強固なプラットフォームを提供します。
開示事項
著者らに開示すべき利益相反はありません。
謝辞
本出版物で報告された研究は、Kansas Idea Network of Biomedical Research Excellence (K-INBRE, P20 GM103418)、Center of Biomedical Research Excellence (COBRE, P20 GM113109)、およびカンザス州立大学のJohnson Cancer Research Center (Cancer Research Expansion Award) から S.H. への資金提供によって支援されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| ツニカマイシン | Sigma-Aldrich | T7765 | 小胞体ストレス誘発剤 |
| アンチマイシンA | Sigma-Aldrich | A8674 | ミトコンドリアストレス誘導剤 |
| メチルビオロゲン二塩化物水和物(パラコート) | Sigma-Aldrich | 856177 | 酸化ストレス誘発剤 |
| パルミチン酸 | MP Biomedicals, LLC | 100905 | 抑制 C. elegans 脱出 行動 |
| コレステロール | MP Biomedicals, LLC | 101382 | NGM用 |
| 塩化カルシウム | Thermo Fisher Scientific Inc. | C79-500 | NGM用 |
| 無水硫酸マグネシウム | Mallinckrodt Pharmaceuticals plc | 6070 | NGM用 |
| アガー | Apex Chemicals Co., Ltd | 20-273 | NGM用 |
| ペプトン | Apex Chemicals Co., Ltd | 20-260 | NGM用 |
| リン酸一カリウム | Thermo Fisher Scientific Inc. | P285-3 | NGM用 |
| 塩化ナトリウム | Thermo Fisher Scientific Inc. | S640-3 | NGM用 |
| リン酸二カリウム | Allied Chemical社、総合化学部門 | コード 2131 | NGM用 |
| シャーレ(35 mm) | Genesee Scientific, LLC | 32-103 | ストレスアッセイプレート |
| シャーレ(60 mm) | Genesee Scientific, LLC | 32-105 | 維持する C. elegans |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| New Brunswick Scientific (Eppendorf) C24KC 冷却インキュベーターシェーカー | Eppendorf / New Brunswick Scientific | C24KC | 37 °C インキュベーター |
| DigiTherm® 38リットル加熱・冷却インキュベーター | Tritech Research Inc. | DT2-MP-47L | 35 °C インキュベーター |
| Fisher Scientific Isotemp 低温インキュベーター | Fisher Scientific | 146E | 30 °C インキュベーター |
| SHELab SRI20P 冷却インキュベーター | Sheldon Manufacturing Inc. | SRI20P | 20 °C インキュベーター |
| Leica M165 FC リサーチステレオ顕微鏡 | Leica Microsystems | M165 FC | イメージング用顕微鏡 |
| ACCU-SCOPE 3075-DIA ズーム実体顕微鏡 | ACCU-SCOPE Inc. | 3075-DIA | 線虫の操作およびスコアリング用顕微鏡 |
| Microsoft Excel 2019 | Microsoft Corporation | 生データのプロッティング | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | データの視覚化 | |
| OASIS 2 | 浦山工科大学(POSTECH)、PMID: 27528229 | 統計解析 | |
| BioRender | Science Suite Inc. | 概略図 | |
| ImageJ | 米国国立衛生研究所 (NIH) | 画像処理 | |
| Adobe Illustrator 2021 | Adobe Inc. | 図の組み立て レイアウト | |
| 野生型 | Caenorhabditis Genetics Center, CGC | 窒素 | |
| tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | 自家製 | RICアブレーション | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. RICニューロンはGFPとmCherryの両方で標識されている。 | Caenorhabditis Genetics Center, CGC | OH16150 |
参考文献
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
再版と許可
この記事は公開されました
動画は近日公開