本稿では、研究を始めたばかりの方に向けて、線虫の初期発生をイメージングするための、技術的に導入しやすくコスト効率の高いプロトコルについて解説します。
方法論記事
線虫の初期発生のイメージング:新人研究者のための実践マニュアル
* These authors contributed equally
この記事について
サマリー
要約
2025年の第25回国際線虫会議で発表されたCaenorhabditis Genetics Center (CGC) の系統分布記録によると、世界80か国の約8,000の研究室がこれらの動物を研究に使用しています。特に経験やリソースが限られている研究室において、線虫の行動に関する一次データを生成するためには、持続可能な培養および維持プラットフォームを確立することが不可欠です。本稿では、Caenorhabditis elegansを例に、新規研究者が線虫の基本的なハンドリングおよびイメージングのワークフローを確立するための実用的なプロトコルを提示します。次に、顕微鏡イメージングのために、選択した初期発生段階における正常および摂動を受けたC. elegansサンプルの回収手順について説明します。イメージングの対象には、生殖細胞の発達(有糸分裂および減数分裂)、受精前の卵母細胞、卵母細胞と精子の前核の移動と融合、偽卵割、および個体を形成する胚発生(有糸分裂)が含まれます。胚および個体全体のイメージングは比較的単純ですが、生殖系および胚の精密な解剖、迅速なサンプル回収、マウンティング、タイムラプスイメージング、および基本的な画像解析を容易にするための高度なガイドラインと技術的なヒントを提供します。
概要
線虫は、極めて再現性の高い発生プログラムを有し、遺伝子摂動3,4,5,6および近縁種7,8,9,10を通じて多様性が明らかになっているため、生物医学研究において最も強力なモデル生物の一つである1,2。1960年代にシドニー・ブレナーによって導入されて以来、Caenorhabditis elegans (C. elegans) は、その小型であること、光学的な透明性、3日間という短いライフサイクル、完全に解明された細胞系譜、配列決定およびアノテーション済みのゲノム、そして遺伝子機能を制御するための高度な遺伝学的ツールキットを備えた代表的なモデルとして台頭した11,12,13,14,15,16。これらの研究の中核となるのは、顕微鏡を用いてダイナミックな生物学的イベントを可視化する能力であり、特に減数分裂および有糸分裂から完全な個体の形成に至る発生の連続体である生殖細胞系および胚において重要である17。このプロセス全体を通じて、急速な減数分裂と連続的な有糸分裂、および多細胞の再編成が、驚くべき時空間的な精度で進行する17。
通常in vitroで観察される胚と比較して、生体内の生殖線(in vivo germline)は、単一の組織内で減数分裂と有糸分裂の両方を研究するのに理想的な系です。特に新規の研究者にとって、空間的に分離した減数分裂領域と有糸分裂領域があるため、これら異なる細胞分裂様式を同時に観察することが可能です(図 1)18。合胞体として構成されているC. elegansの生殖線では、生殖細胞が共通の細胞質コアであるラキス(rachis)を通じて相互に連結しています18 (図 1)。生殖細胞の増殖は、原基生殖細胞(PGC)の不完全かつ非対称な分裂による有糸分裂を通じて、生殖腺腕の遠位部で起こります。幼虫4期(L4期)の後半になると、合胞体状のパキテン期精母細胞が徐々にラキスから離脱し、生殖腺腕の近位部で減数分裂に入ります19。これは、固定または麻酔した個体を用いたin vivoでの直接的なイメージング、あるいは解離させた一次精母細胞を用いたin vitroでのイメージングによって観察できます20,21
生殖細胞系列および胚における生物学的現象は極めて多彩であり、多様な科学研究分野において広く関連しています。減数分裂による成熟後、生殖細胞由来の卵細胞は受精嚢に入り、精子によって受精することで胚発生が始まります22,23。その優れた発生上の堅牢性から、C. elegansの胚は、細胞極性、細胞分裂、細胞周期、および細胞移動の分子メカニズムを探索するための優れたモデルとなっています24,25。若成体の虫を解剖して受精したばかりの胚を取り出し、卵細胞と精子の前核の移動および融合、擬似分裂、非対称細胞分裂、 原腸形成、器官形成などの主要な発生段階のタイムラプスイメージングのために選択することが可能です。
生殖系列や胚の全体および部分構造への光学的なアクセスは、原理的には常に可能ですが、出版レベルの高品質な顕微鏡写真を撮影することは、初心者にとって非常に困難であることで知られています。文献にある「標準的な」記載プロトコルでは、複雑な手順が簡潔で曖昧な説明に凝縮されていることが多く、技術的な微妙な「感覚」を捉えきれていません。例えば、麻酔薬の正確な量、解剖中に生殖腺を損傷させないために必要な丁寧な取り扱い、顕微鏡観察における正確な焦点面の選択などが挙げられます。その結果、経験の浅い研究者は、一貫して満足のいく画像を得るまでに、数ヶ月に及ぶ不満を伴う試行錯誤を日常的に経験し、度重なる指導や練習セッション、広範なトラブルシューティングを必要とすることになります。このような非効率な知識伝達は研究の進展を遅らせ、研究室間でのデータ解釈を損なう可能性のある、好ましくない技術的ばらつきを導入することになります。
例えば、生殖細胞系において、生殖腺の解剖学的な複雑さや他の組織(例:腸)による遮蔽があるため、in vivoで細胞形態や分裂ダイナミクスを観察することは困難です。さらに、生殖細胞系は繊細な管状構造を持ち、封入圧に対して極めて敏感であるため、さらなる課題があります。したがって、一般的な生殖細胞系や胚の観察だけでなく、詳細な細胞分解能での観察においても、in vitroイメージングが好まれます。例えば、生殖腺から解離させた単一の近位一次精母細胞は、2回の連続した減数分裂を経て4つの半数体精細胞になりますが、組織構造による影がないため、より高品質な画像を容易に撮影できます。これらの観察手法は、他の組織や個体全体にも応用可能です26,27,28,29,30,31,32。また、各操作を1 hで完了できるため、タイムラプスイメージングが容易に行えます。
本編では、生殖細胞の発達から胚発生に至るまで、選択した発生段階にわたる実用的なステップバイステップのタイムラプスイメージングプロトコルを提示します。これにはイメージングの手順だけでなく、線虫イメージングに不慣れな研究者のための技術的ハードルを下げるための準備段階(例:線虫の解剖)も含まれています33。本プロトコルでは、生殖系列と胚の両方における顕微鏡イメージングをリアルタイムの視覚的なデモンストレーションで解説します。具体的には、数時間に及ぶ記録の間も生存能を維持する最適化されたマウント手順から、S/N比の向上と光毒性・光退色の最小化を両立させる顕微鏡パラメータの設定、そして基本的な画像取得までを網羅しています。
プロトコル
注:C. elegans個体群の長期的な維持に成功することは、その後の実験作業の基盤となります。そのためには、高品質なネマトーダ増殖培地(NGM)の安定した作製、細菌餌源の確実な増殖、系統の成長と繁殖に適した環境条件、および汚染による培養損失を防ぐための効果的な戦略が必要です。
1. 線虫の培養および維持
注:ここでは概略的なアドバイスのみを提供しています。詳細な手順はWormbook34を参照してください。計量および調製の手順を簡略化するために、NGMプレミックス粉末を使用してください。
- 餌を播種したNGM寒天培地で、すべての個体を培養する。 E. coli OP50(大腸菌株)の 20 °C 野生型(WT)および 16 °C または 25 °C 温度感受性変異体(ts変異体)用。
注意:新入生は、CGC変異株の受領時に培養温度を確認してください。
注:野生型(WT)動物は高温下でより速く成長し、温度感受性(ts)変異体は胚を産生することが可能です。 16 °C (許容温度)ではあるが、〜ではない 25 °C (特定の遺伝子またはタンパク質において機能喪失効果を示す制限温度)35,36,37,38菌株および飼料は、CGC [https://cgc.umn.edu] から購入するか、近隣の研究室から分譲してもらうことができる。 - 飢餓状態にする前に、動物を新しいプレートに移す(個体数を大幅に減らして) 大腸菌 (*Escherichia coli*) (大腸菌(E. coli) (顕微鏡下でOP50を確認し)以降の実験(約2〜3日間)に向けて、健康な状態を維持する。
- 動物を凍結緩衝液(最終濃度15%までグリセロールを添加したS緩衝液)に入れ、-80 °C 一晩おき、長期保存のためにフリージングボックスまたは液体窒素に移してください。34.
注意:凍結させる前に、すべてのクライオバイアルに油性で耐水性の永久マーカーを用いてラベルを貼ってください。水性インクは超低温保存に適していません。
2. アガロースパッドの調製
- 3 gのアガロースを量り取り、250 mLの三角フラスコに移します。100 mLのM9緩衝液を加え、よく混ぜて、アガロースが完全に溶解するまで電子レンジで2–3分間加熱します(以下、アガロース緩衝液と呼びます)。
注:緩衝液の蒸発を防ぎ、浸透圧濃度の誤差を最小限にするため、フラスコの開口部をパラフィン紙で覆ってください。全量は実験の要件に応じて調整可能です。 - よく混合したアガロース緩衝液を1.5 mL遠心チューブに移します。これは室温で最大1か月間保存可能です。保存したアガロースを90–100 °Cに設定したヒーターブロックで融解させます(新しく調製したアガロースを使用する場合は、この手順を省略してください)。
- 200 µLピペットチップの先端をカットして開口部を広げ、凝固による詰まりを防ぎます。融解したアガロース緩衝液を1滴、ガラススライド(サイズ:75 x 25 mm、厚さ:0.9–1.10 mm、材質:ソーダライムガラス)上に置きます。
- 直ちに別のスライドでその滴を覆います。カバーガラス(サイズ:22 x 22 mm、厚さ:0.25 mm)の周囲にさらにアガロース緩衝液を塗布し、気泡が入らないように注意しながら、各カバーガラスを完全に囲む薄い円形になるまでアガロースを軽く押し広げます。
注:これにより、動物を固定し脱水を防ぐための密閉されたマイクロチャンバーが形成されます。ハイスループット実験のために、複数のスライドを並行して処理することが可能です。 - 使用前に、アガロースが完全に凝固するまで、少なくとも3分間冷却させます。
注:動物がストレスを受けないよう、アガロースパッドが凝固したらすぐにイメージングに使用してください。凝固したアガロースは中心部から水分を吸収するため、最終的に動物が死に至る可能性があります。
3. 雌雄同体またはオス線虫における精子形成のin vivo観察 (図1 および 付随ビデオ S1)
- セクション2で述べた方法で、アガロースパッドを準備する。
- 10–20匹のNMY-2::GFP標識個体20(L4後期)を、カバーガラス上のM9バッファーで希釈した0.5%テトラミソール塩酸塩5–10 µLの中に迅速に移す。
注:個体の移動や脱水を防ぐため、バッファーを入れすぎたり、少なすぎたりしないように注意すること。イメージングの妨げとなるため、線虫と共にE. coliが意図せず移るのを避けるべく、細菌のローン境界(顕微鏡下で、ぼやけた半透明の領域を伴うE. coliの塊として観察される)から離れた、または境界外に這い出した線虫を選択すること。 - 個体が完全に麻酔されるまで、1分間インキュベートする。
- 上のスライドをそっと取り除き、下のスライドにアガロースパッドを残す。
- アガロースパッドが付いたスライドを反転させる。気泡の形成を避けるため、パッドをバッファー中の線虫にそっと接触させ、下ろす。カバーガラスが上になるようにスライドをひっくり返す。
注:線虫の体に損傷を与える可能性があるため、カバーガラスを急激に動かさないこと。 - 200 µLのピペットチップを使用し、加熱した液体状のワセリン(固形アガロースと共に予熱したもの)を塗布し、カバーガラスの境界に沿ってピペットチップを素早く動かす。ワセリンを冷却させ、カバーガラスをスライドに固定する。
- 生殖細胞の発達をイメージングするため、スライドを顕微鏡ステージに設置する。
- 単一画像の撮影では、蛍光信号を最適化するためにレーザー出力と露光時間を増やす(異なる系統における蛍光発現強度に応じて調整)。より良好な蛍光可視化のために、必要に応じて出力を上げることができる 。
- タイムラプス撮影やZスタック撮影では、光毒性および光退色を最小限に抑えるため、より低い励起出力とより短い露光時間を使用する。
注:目的は、線虫の成長への悪影響を最小限に抑えつつ、空間的および時間的なイメージングデータを取得することである 。
4. In vivoでのPGC分裂の観察 (図1および補足ビデオS1)
- セクション2で述べた方法でアガロースパッドを準備する。
- NMY-2::GFP標識個体39,40(L1後期から若成体段階)を10匹、カバーガラス上のM9バッファーで希釈した0.5%塩酸テトラミゾール 5–10 µLの中へ移す。
- 個体が完全に不動化するまで1分間インキュベートする。
- 上のスライドを取り除き、下のスライドにアガロースパッドを残す。
- アガロースパッドが付いたスライドを反転させる。気泡が入らないよう、バッファー中の虫がいるパッドにそっと触れる。カバーガラスが上になるようにスライドを元に戻す。
- ステップ3.6で述べたように、200 µLピペットチップを用いて、カバーガラスの境界をワセリンで密封する。
- イメージングのため、スライドを顕微鏡ステージへ移す。
5. 雄の精子形成をin vitroで観察するための生殖細胞系の解剖 (補足図 S1および補足ビデオ S2)
注:シリンジのサイズは個人の好みに合わせて調整可能です。オスは1つの生殖腺を含む完全で単一の生殖系を持ちますが、雌雄同体は2つの生殖腺を持ちます(どちらもL4後半から若成体期まで精子を産生し、その後は卵母細胞を産生します)41。
- 新鮮な状態で調製する in vitro 培養バッファー(15% FBS含有 Leibovitz’s L-15 Medium)。
注意:バッファーは以下の条件で保存してください。 4 °C 1週間以内に冷蔵保存してください。血清は、-80°Cでの長期保存のために、複数のチューブに分注することが可能です。20 °C. - 約10匹のN2または蛍光標識(NMY-2::GFP; mCherry::Histone)をした雄の個体(L4後期)を、以下のものを入れた1.5 mL遠心チューブに入れる。 500 µL 培養バッファーの。
- チューブを1,000 rpmで遠心分離します。 × g 2分間。上層を静かに除去し、 400 µL 緩衝液の
- 追加 400 µL 培養バッファーで洗浄し、ステップ5.2~5.3を繰り返す。
- 残りの緩衝液(動物を含む)をカバーガラス上に移します。ニコチン性アセチルコリン受容体作動作用により線虫を固定するため、適切な量のテトラミゾール塩酸塩(最終濃度0.1%)またはレバミゾール(最終濃度0.1 mM)を添加します。41 および局所麻酔活性42線虫が動かなくなるまで、カバーガラスをゆっくりと回します。
注意:コストを削減するため、デブリを除去するための最初の洗浄にはM9バッファーを使用することができます。 E. coli最終洗浄時またはスライド標本作製の直前にのみ、培養バッファーを添加してください。特別な要件がある場合や、バッファーが十分に清浄な場合は、工程を迅速化するためにステップ5.2~5.3を省略しても構いません。 - 28Gの針を2本のシリンジに取り付け、両手に1本ずつ持ちます。カバーガラスを実体顕微鏡の下に置き、針を30~45° 虫の上に角度をつける。近位の生殖腺腕の近くを切開し、生殖腺組織を遊離させる。すべての個体に対して同様の操作を繰り返す。
注:これにより、体内の組織片が放出されます。初心者は、より多くの練習を行うことが推奨されます。麻痺緩衝液中での完全な解剖に要する最大時間は、最長で以下までとなる可能性があります。 <5分間。実験目的に応じて時間を調整すること。 - カバーガラスを旋回させ、デブリを回収する。ピペットを用いて大きなデブリを静かに吸引し、小型の一次精母細胞がカバーガラス上に留まるようにしながら、バッファーをできるだけ少なく残す。
注意:カバーガラスにバッファーを残しすぎないでください。過剰にあると、封入中に移動の原因となります。 - 清潔なスライドグラスを用意し、解剖した一次精母細胞でカバーガラスを静かに覆います。ステップ3.6と同様に、加熱した液体パラフィンを用いてカバーガラスの境界を密封します。
注:精細胞の物理的な破壊を防ぐため、封印する前にカバーガラスの四隅に少量の液体ペトロラタムジェリーを塗布してください。 - 顕微鏡へ移し、イメージングを行う。
注:アガロースパッドの使用は避けてください。液体培地を使用することで背景の透明度が高まり、一次精母細胞を識別するための光学的な明瞭度が向上します。
6. 虫体の解剖および、蛍光(補足図 S2、補足図 S3、補足ビデオ S3、および 補足ビデオ S4)と明視野(図 2 および 補足ビデオ S5)下での受精と胚発生のin vitro観察)
注:初期胚は、28Gの針2本を、針先の開口部が互いに逆方向を向くように交差させることで回収した。 受精嚢付近。液体の蒸発を防ぐためにチャンバーを密封し、直ちに顕微鏡へと移送した。
- カバースリップおよびアガロースパッドが胚に及ぼす圧力の影響を排除するため、ドリルを用いて35mmペトリ皿の中央に直径10mmの穴をあける。底面を22mmの顕微鏡用カバーガラスで密封し、倒立共焦点顕微鏡用の再利用可能なチャンバーを作成する。
- 約~を添加する 30 µL チャンバーにM9バッファーを注入します。
注:この容量で、1ラウンドにつき4時間のタイムラプスイメージングが可能です。このバッファー量により、以下の期間の連続イメージングが可能になります。 卵細胞と精子の前核の移動および融合から、孵化前の胚の筋肉の収縮まで。 - 雌雄同体を選択する。約20匹の若年成体を、イメージングチャンバー内のM9バッファーに移す。
注:雄は精子のみを産生し、胚は産生しません。 - シリンジ針を用いて、より多くの初期胚を放出させるために受精嚢を2回横切るように切断します。まつげ用ピンセットを用いて、個体を回収します。
注:実際には、白金製ピッカーでは液体中の体腔内のデブリを除去することが困難です。フォークのようにデブリを除去できる、つけまつげ用ピッカー(多端タイプ)の使用を推奨します。これは標準的な本まつげ用ピッカーよりも効果的に機能します。 - 液体の蒸発を防ぐため、ペトリ皿に蓋をします。
7. 顕微鏡下でのタイムラプスイメージング
- スライドまたはチャンバーを顕微鏡(例:60倍のレンズを備えた倒立式スピニングディスク共焦点顕微鏡)に設置します。×1.4 NA対物レンズおよびEMCCDカメラ)を用い、最低倍率(10×)フィールドで、目的のステージにある動物、一次精母細胞、または受精直後の胚を検索します。
- 非蛍光個体の線虫については、細胞核の位置、融合状態、および開裂溝の形態に基づいて、初期胚の発育段階を判定する。 (図2 および 補足ビデオ S5).
- ~のために in vitro 解剖した一次精母細胞において、軸から離脱し、バッファー中に円形に分散して存在する、分裂準備中の細胞を確認する。 (補足図 S1 および 補完ビデオ S2).
- 蛍光標識された線虫について、タンパク質の分布と細胞形態に基づきステージを同定します。
注:蛍光検出には、GFPには488 nmの励起ラインと525–550 nmの放出フィルターを、RFP/mCherryには561 nmの励起ラインと607–636 nmの放出フィルターを使用した。
- これらの細胞または胚を特定し、より高倍率(63倍)に切り替えます。× または100×).
注:細胞および胚の調製とイメージングの原理は同一であるため、視覚化された実験チュートリアルでは、明視野および蛍光チャネルの両方を用いた解剖済み胚の事例を用いて解説します。 - Zスタック撮影を開始する(通常は≤1 µm 顕微鏡撮影ソフトウェアを用いて、(一定の間隔で)ビデオ録画または静止画キャプチャを行います。スキャン間隔は、Z層の数および研究上の要求に応じて、最短で1秒まで設定可能です。
注意:光退色または光毒性の影響を受けやすい蛍光株を用いる場合は、長期イメージング中の光退色および光毒性を軽減するため、レーザー出力を下げ、露光時間を短縮してください。 - 画像出力用にすべての画像を.tiff形式で保存し、元のイメージング情報を保持してください。
8. 画像解析
注:個々の.tiff画像またはタイムラプススタックは、顕微鏡専用ソフトウェア、または生物学的画像解析のためのオープンソースプラットフォームであるFiji/ImageJ [https://imagej.net/software/fiji] 43などの汎用解析ソフトウェアを使用して、回転、クロッピング、ラベル付け、測定、および処理を行うことができます。
- 取得した画像をFiji/ImageJで開きます。個々の蛍光点または構造の蛍光信号強度および分布を確認します。選択してください。 画像 | 調整 | 明るさ/コントラスト および 画像 | ハイパースタック | スタックからハイパースタックへ 単一のTIFF画像から、チャンネル、Zレイヤー、およびタイムポイントを分離します。選択してください。 画像 | 色 | チャンネルツール 展示用にカラーバランスを最適化するため。
- 使用 画像 | 変形 | 回転 各画像を回転させ、虫が水平に配置され、頭部が左を向くようにします。使用してください。 画像 | 切り抜き 必要に応じて、不要な空白領域を除去します。
- 使用 画像 | スタック | Z投影 十分な信号強度を持つ代表的なフレームからZ投影画像を生成するため。
注:最適な視覚化のためには、高コントラストのフレームを合わせて投影することが推奨されます。ただし、異なるグループ間で同一の特定の組織またはオルガネラ内における相対的な差を比較する場合は、たとえ信号が弱くても、完全な情報を含む複数のフレームを合わせて投影することが可能です。 - 使用 ファイル | 名前を付けて保存 | Tiff 投影画像を保存し、後で解析できるようにします。
- 使用する共焦点顕微鏡に応じて、ピクセルをマイクロメートルに変換できるよう画像スケールを校正します(µm)。校正後、使用してください。 解析 | ツール | スケールバー スケールバーを追加する。
注:上記の画像処理は可視化および図の作成に限定されています。バッチ処理や自動測定が必要な場合は、Fiji/ImageJやCellProfilerなどの他のオープンソースツールを使用してください。44 およびPythonベースの解析パイプライン45.
結果
表現型解析のためにC. elegansを細胞レベルで可視化するには、従来、光学機器に多額の投資が必要でしたが、現代のコンシューマー向け電子機器と革新的なアダプターシステムにより、極めて低コストで十分なイメージング能力が得られるようになりました。共焦点顕微鏡やその他の入手しやすい機器を用いて、雌雄同体の生殖腺構造をin vivoでイメージングするため、我々は2つの蛍光ラベルを導入した系統を使用しています20。NMY-2::GFPはU字型の生殖腺全体の構造、および一次精母細胞のラキス(中心軸)と皮質領域を標識し、mCherry::Histoneは核の形態と発達段階を示します(図 1 および Supplemental Video S1)。これら2つのタンパク質は、さまざまな研究で広く利用されています46,47,48。3次元構造情報の大部分を捉えるため、虫の生殖腺の底部から上部まで 1 µm 間隔でZスタック全体を取得しました。凝縮した染色質塊と、赤道領域におけるNMY-2の弱い蓄積に基づき、最も近位の一次精母細胞はカリオソーム期にあり、これらの細胞が第一次分裂を開始していることが示されました(図 1 および Supplemental Video S1)。さらに、生殖細胞(PGC)の有糸分裂は生殖腺の遠位領域で起こり、本プロトコルで捉えることが可能です。
精子形成のin vitro観察のため、まず培養バッファーを調製します。虫体を解剖し、生殖細胞系の精母細胞をバッファー中に放出させます。核形態(核膜崩壊の開始)または細胞全体の形態によって特定される、第1分裂の準備段階にある一次精母細胞を迅速に見つけ出すことが重要です。蛍光系統を用いることで、適切な発生段階の特定が容易になります。光毒性および光退色と撮影効率のバランスを維持するため、30 s間隔で画像をキャプチャします。(付録図 S1 および付録ビデオ S2).
初期胚発生に関するより詳細な情報を得るため、まず明視野チャンネルで受精直後の胚を特定します。ここでは、父方核と母方核が胚の長軸に沿って反対側の端に位置しており、融合に向けて互いに移動しています。標準スライドを用いて胚の観察を行う際は、 GFP::ヒストンを発現する株を使用した。49 およびmCherry::PH50 それぞれ、細胞核と細胞膜のダイナミクスを標識するために使用します。これらの画像は、細胞分裂の全過程を示すために、異なるZ層で撮影されます(補足図 S2 および 補完ビデオS3)。胚を正確な段階で識別できる能力が不可欠であることに留意してください。我々は初期段階の胚を選択し、物理的な摂動を伴わずに完全な発生過程を捉えるため、連続記録法を採用しました。この手法により、 >受精から筋肉の痙攣に至るまでの全過程を網羅する500分間のタイムラプス記録(図2 および 補完ビデオ S5)。野生型に加えて、比較イメージング研究用に変異体も利用可能です。例えば、HUM-2はヒトのミオシンVのホモログであり、オルガネラ、小胞、およびmRNAの分布において重要な役割を果たしており、動物の生理機能や細胞機能にとって重要です。51例として、このプロトコールを用いて、以下のにおける溝のダイナミクスを捉えました。 hum-2 (申し訳ございませんが、翻訳対象となるソーステキストが提供されておりません。翻訳すべき英文の内容を入力してください。視覚的比較用の変異体(付随図 S3 および 補足ビデオ S4最後に、.tiff画像をImageJ/Fijiで処理およびクロップし、画像編集ソフトで整列させて直接的な視覚的比較を行います。52.
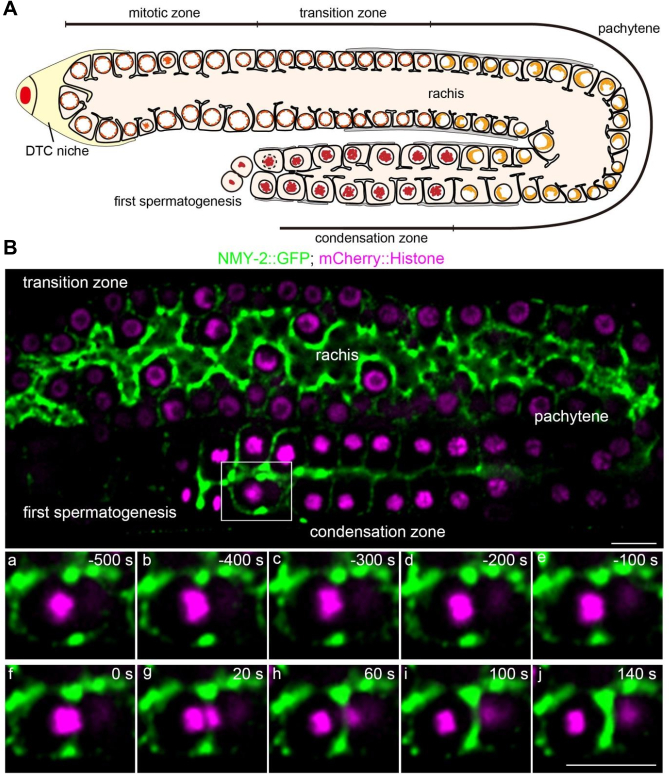
図1L4後期段階の線虫における生殖腺領域の分布を示す模式図および蛍光画像。 (A) 後期L4段階の線虫の生殖腺構造の概略図。DTC = 遠位端細胞。 (B) 近位精原細胞のラキスおよび皮質領域を標識するNMY-2::GFPと、異なる発達段階における核形態を標識するmCherry::Histoneを示す蛍光画像。スケールバー = 10 µm. この図の拡大版を表示するには、ここをクリックしてください。
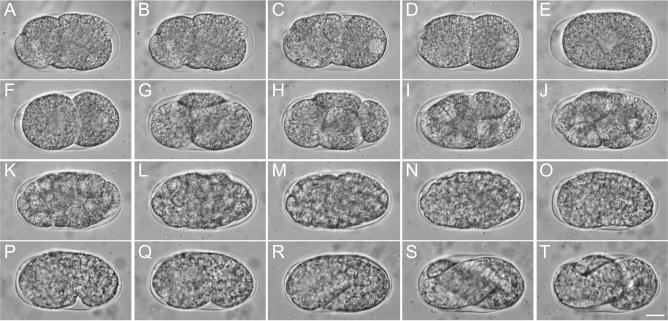
図 2: C. elegansの胚発生。 (A-E) 融合期から1細胞期。卵細胞と精子の前核の移動と融合、偽分裂、および1細胞期の確立を含む。 (F-J) 2細胞期から多細胞期。 (K-O) 原腸形成期。 (P-T) コンマ期から筋肉の痙攣まで。スケールバー = 10 µm。 こちらのリンクをクリックして、この図の拡大版を表示してください。
付随図 S1:完全な精子形成のイメージングの代表的な実演。(A) 核膜崩壊の開始。(B) 第I減数分裂の前中期。(C) 収縮環の形成と収縮の開始;(D) 第I減数分裂の完了;(E) 第II減数分裂の開始。(F) 2つの二次精母細胞の溝の収縮。(G) 第II減数分裂の終期。(H) 第II減数分裂の完了と、4つの精細胞および1つの中心に位置する残存体の形成。スケールバー = 10 µm。こちらのリンクからファイルをダウンロードしてください。
補足図 S2:初期胚発生のイメージングにおける代表的な実演。GFP::Histoneで細胞核を、mCherry::PHで細胞膜を標識している。(A) 仮卵割。(B) 卵割溝が正常な状態に戻る退行過程。(C) 初回細胞分裂の中期。(D) 初回細胞分裂の後期。(E) 2細胞期。(F) AB細胞分裂の後期およびP1細胞分裂の前期。(G) P1細胞分裂の後期。(H) 4細胞期。スケールバー = 10 µm。 こちらをクリックしてファイルをダウンロードしてください。
補足図 S3:N2とhum-2(ok596)変異体の初期胚における分裂溝の代表的な比較。拡大パネルは、視覚的に比較するための分裂溝の経時的なダイナミクスを示している。数値は、染色体分離によって定義される後期開始後の時間を示す。スケールバー = 2 µm。 こちらのリンクからファイルをダウンロードしてください。
補足ビデオ S1. NMY-2::GFPおよびmCherry::Histoneを用いた L4期後半の生殖腺の代表的な蛍光タイムラプスイメージング。1フレームあたり30秒。 こちらをクリックしてファイルをダウンロードしてください。
補足ビデオ S2。 him-5 (e1490) における完全な精子形成の代表的な明視野タイムラプスイメージング。1フレームあたり30秒。 こちらのリンクからファイルをダウンロードしてください。
付随ビデオ S3. GFP::HistoneおよびmCherry::PHを用いた初期胚発生の代表的な蛍光タイムラプスイメージング(1フレームあたり30秒)。 こちらのリンクからファイルをダウンロードしてください。
補完ビデオ S4. N2およびhum-2(ok596)変異体の初期胚における分裂溝の代表的な蛍光タイムラプスイメージング。1フレームあたり15秒。 こちらのリンクをクリックしてファイルをダウンロードしてください。
補足ビデオ S5. 卵母細胞と精子の前核融合から、個体を形成する有糸分裂までを捉えたN2 C. elegans胚発生の代表的な明視野タイムラプスイメージング。 このファイルをダウンロードするには、ここをクリックしてください。
ディスカッション
線虫の調製およびイメージングのため、チャンバーを用いる方法とスライドを用いる方法に基づいた2つのワークフローを効率化しました。チャンバーを用いる手法は、以下に使用されてきました。 光毒性および光退色を抑え、発生プロセスの長期観察を可能にする高解像度ライブイメージング53スライドベースのアプローチは、ニューロンの活動や細胞内構造の短期的観察に一般的に用いられる、標準的なアガロースパッド固定法を適応させたものである。54選択した個体群における長期観察のため、両方のプロトコル(セクション3、4、5、および6)を適用しました。 C. elegans 初期発生段階。~に関して in vivo 生殖腺構造、始原生殖細胞(PGC)の分裂、または精子形成の観察において、我々は既報の手法の主要な手順に従い、新しい研究者が迅速かつ容易に実施できるよう一部を修正した。55について in vitro 精子形成の観察において、核膜が崩壊し、前期から中期への移行段階に入る細胞を迅速に認識することを重視します。56アガロースパッドは、胚や線虫を緩衝し、部分的に安定させることができるが、 in vivo イメージングにおいて、アガロースパッドは一次精母細胞とスライドガラスの間のコントラストを低下させるため、推奨されません。 in vitro 解剖した精母細胞の観察には、液体培地が好ましい。同様に、目的とする特定の分化段階を迅速に認識することが重視される。 in vitro 胚発生の観察
上述の手法を組み合わせることで、生殖細胞から胚に至るまで、選択した発生過程のイベントをイメージングすることが可能です。これらの手法は、ライブセルイメージング用の高速温度シフトシステムなどの温度制御装置と組み合わせることもでき、温度感受性変異体を用いた実験の利便性を向上させることができます57。同様に、冷却による固定化を行うことで、培養プレート上で直接C. elegans集団の高スループットかつサブミクロン解像度のイメージングが可能となり、生理的な生存能を維持しつつ、化学麻酔や個々の虫の操作の必要性を減らすことができます58。さらに、RNA干渉14やレーザーアブレーション59,60,61,62,63,64,65などの人工的な摂動を顕微鏡観察と組み合わせることで、発生応答およびその根底にある生物学的または物理的メカニズムを調査できます。将来的には、ハードウェア、ソフトウェア、およびユーザー固有の操作を最適化することで、顕微鏡のワークフローをさらに改善できる可能性があります33,66。具体的な操作上の詳細は調整が必要ですが、本プロトコルの選択的な原理は、ショウジョウバエやゼブラフィッシュの稚魚など、他の小型の遊泳・運動性動物モデルにも適応可能であると考えられ、特に固定化を必要とするin vivo観察や、解剖を必要とするin vitro観察において有用です67,68。
この種のプロトコルで取得した画像データセットは、十分なサンプル数と標準化された取得設定を用いれば、下流の計算的または定量的な解析をサポートすることも可能です69,70。例えば、C. elegansの胚発生は、どちらも時空間イメージングデータに依存する細胞系譜追跡71,72や細胞形態のセグメンテーション73,74,75の研究に利用されてきました。メカニズム的な観点からは、核、膜、極性関連タンパク質76,77,78、および細胞骨格関連タンパク質79,80,81のイメージングにより、細胞分裂や形態形成の解析が可能です。定量的なシステム生物学を用いることで、これらの種類のイメージングデータを分子、細胞、個体レベルにわたって統合することができます82,83,84,85。本プロトコルにおいて、これらのより広範な応用は、代表的な結果によって直接的に示される成果ではなく、潜在的な拡張として捉えられるべきです。
開示事項
著者らに開示すべき利益相反はありません。
謝辞
ノースイースタン大学のSamuel H. Chung教授、Erin J. Cram教授、Javier Apfeld教授、Noa William Franklin Grooms博士、および北京師範大学のChuanfu Dong教授に、技術的なサポートをいただいたことに感謝いたします。本研究は、Pei Zhang博士に対する国家自然科学基金青年基金プロジェクト(助成金 22407016)および国家自然科学基金プロジェクト(助成金 22477010)による資金援助を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 28ゲージ U-100 インスリン注射器 | EasyTouch | B08589MG8D | 線虫の解剖 |
| 35 mm ペトリ皿 | Celltreat | 229638 | イメージングチャンバー |
| 60 mmペトリ皿 | Fisherbrand | AS4050 | 線虫の培養 |
| アガロース | Bio-Rad | 1613100 | アガロースパッドの調製 |
| C. elegans RNAiフィーディングライブラリ(Ahringer) | Source BioScience Ltd. | 翻訳するソーステキストが提供されていません。翻訳対象のテキストを入力してください。 | RNAi実験 |
| C. elegans 株:GFP::histone; mCherry::PH | Caenorhabditis Genetics Center | YC0154 | 本研究で使用した菌株 |
| C. elegans 系統:GFP::HUM-2 | Sunybiotech | YC0381 | 本研究で使用した菌株 |
| C. elegans 菌株: him-5 (e1490) | Caenorhabditis Genetics Center | CB4088 | 本研究で使用した菌株 |
| C. elegans 系統:N2、野生型 | Caenorhabditis Genetics Center | N2 (ブリストル) | 本研究で使用した菌株 |
| C. elegans 系統:NMY-2::GFP; mCherry::histone | Caenorhabditis Genetics Center | YC0032 | 本研究で使用した菌株 |
| C. elegans 菌株:PH::GFP; mCherry::histone | Caenorhabditis Genetics Center | YC0029 | 本研究で使用した菌株 |
| 微分干渉(DIC)顕微鏡 | Olympus | BX53 | 線虫イメージング |
| 実体顕微鏡 | Nikon | SMZ745 | 線虫の観察 |
| E. coli OP50 | Caenorhabditis Genetics Center | OP50 | 細菌の餌となる栄養源 |
| ウシ胎児血清 (FBS) | 翻訳すべきソーステキストが提供されていません。翻訳対象のテキストを入力してください。 | 翻訳対象のテキストが提供されていません。翻訳するソーステキストを入力してください。 | 培養バッファー |
| 凍結緩衝液(S緩衝液/グリセロール) | 該当なし | 翻訳するテキストが提供されていません。翻訳が必要なソーステキストを入力してください。 | 長期保存 |
| ハイブリダイゼーション用カバーガラス | Invitrogen (Thermo Fisher Scientific) | H18200 | アガロースパッド/チャンバーの調製 |
| イソプロピル β-D-1-チオガラクトピラノシド (IPTG) | Invitrogen (Thermo Fisher Scientific) | 15529019 | 線虫の培養 |
| ライボビッツ L-15培地 | 翻訳対象のテキストが提供されていません。翻訳が必要なソーステキストをご提示ください。 | 翻訳するテキストが提供されていません。翻訳するソーステキストを入力してください。 | 培養バッファー |
| 塩酸レバミゾール | 翻訳する原文が提供されていません。翻訳対象のテキストをご提示ください。 | 翻訳するテキストが提供されていません。翻訳が必要なソーステキストを入力してください。 | 線虫の固定化 |
| M9緩衝液 | 該当なし | 翻訳するソーステキストが提供されていません。翻訳が必要なテキストを入力してください。 | 線虫の培養およびマウント |
| 顕微鏡カバーガラス | Fisherbrand | 12541016 | イメージングスライド |
| 小型デジタルインキュベーター | Benchmark Scientific | BMS-H2200-HC-E | 線虫の培養 |
| NGM調製済み粉末 | 該当なし | 該当なし | 線虫の培養 |
| ニコン Eclipse Ti2-E 倒立顕微鏡 | ニコン | Ti2-E | 線虫イメージング |
| プレーン顕微鏡スライド | Fisherbrand | 12550A3 | イメージングスライド |
| プレーン顕微鏡スライドグラス | Corning | 2947-75X25 | アガロースパッドの作製 |
| スピニングディスク共焦点顕微鏡 | Olympus | SpinSR10 | 線虫イメージング |
| スピニングディスク共焦点ユニット | 横河 | CSU-X1 | タイムラプスイメージング |
| テトラミソール | Sigma-Aldrich | L9756 | 線虫の麻酔法 |
| ワセリン | Sangon Biotech | この番号は識別子またはコードであるため、翻訳せずそのまま保持します。 A510146-0500 | イメージングスライド |
参考文献
- Corsi AK, Wightman B, Chalfie M. A transparent window into biology: a primer on Caenorhabditis elegans. Genetics. 2015;200(2):387-407.
- Ambros VR, et al. From nematode to Nobel: how community-shared resources fueled the rise of Caenorhabditis elegans as a research organism. Proc Natl Acad Sci U S A. 2025;122(48):e2522808122.
- Du Z, et al. De novo inference of systems-level mechanistic models of development from live-imaging-based phenotype analysis. Cell. 2014;156(1):359-72.
- Xiao L, et al. Defect-buffering cellular plasticity increases robustness of metazoan embryogenesis. Cell Syst. 2022;13(8):615-30.e9.
- Green RA, et al. Automated profiling of gene function during embryonic development. Cell. 2024;187(12):3141-60.e23.
- Yang M, Bai Y, Wang Z, Du Z. Intracellular buffering enables developmental robustness after genome doubling in C. elegans embryos. Cell Rep. 2026;45(3):117005.
- Laugsch M, Schierenberg E. Differences in maternal supply and early development of closely related nematode species. Int J Dev Biol. 2004;48(7):655-62.
- Guan G, Luo C, Tang HL, Tang C. Modulating cell proliferation by asymmetric division: a conserved pattern in the early embryogenesis of nematode species. MicroPubl Biol. 2024;10.17912/micropub.biology.001006.
- Large CRL, et al. Lineage-resolved analysis of embryonic gene expression evolution in C. elegans and C. briggsae. Science. 2025;388(6753):eadu8249.
- Zhang P, et al. Biosynthesis of modular signaling molecules requires functional diversification of carboxylesterases in Pristionchus pacificus. Commun Biol. 2025;8(1):1213.
- Brenner S. The genetics of Caenorhabditis elegans. Genetics. 1974;77(1):71-94.
- Sulston JE, Schierenberg E, White JG, Thomson JN. The embryonic cell lineage of the nematode Caenorhabditis elegans. Dev Biol. 1983;100(1):64-119.
- C. elegans Sequencing Consortium. Genome sequence of the nematode C. elegans: a platform for investigating biology. Science. 1998;282(5396):2012-8.
- Chung SH, et al. Femtosecond laser ablation reveals antagonistic sensory and neuroendocrine signaling that underlie C. elegans behavior and development. Cell Rep. 2013;4(2):316-26.
- Zhang H, Abraham N, Khan LA, Gobel V. RNAi-based biosynthetic pathway screens to identify in vivo functions of non-nucleic acid-based metabolites such as lipids. Nat Protoc. 2015;10(5):681-700.
- Huang X, et al. PIWI-interacting RNA expression regulates pathogenesis in a Caenorhabditis elegans model of Lewy body disease. Nat Commun. 2023;14(1):6137.
- Schnabel R, Hutter H, Moerman D, Schnabel H. Assessing normal embryogenesis in Caenorhabditis elegans using a 4D microscope: variability of development and regional specification. Dev Biol. 1997;184(2):234-65.
- Wang X, Hu B, Zhao Z, Tse YC. From primordial germ cells to spermatids in Caenorhabditis elegans. Semin Cell Dev Biol. 2022;127:110-20.
- L’Hernault SW. Spermatogenesis. In: Riddle DL, Blumenthal T, Meyer BJ, Priess JR, editors. C. elegans II. 2nd edition. Cold Spring Harbor Laboratory Press, Cold Spring Harbor, NY; 1997.
- Wang X, et al. Cortical recruitment of centralspindlin and RhoA effectors during meiosis I of Caenorhabditis elegans primary spermatocytes. J Cell Sci. 2021;134(3):jcs238543.
- Hu J, et al. Distinct roles of two myosins in C. elegans spermatid differentiation. PLoS Biol. 2019;17(4):e3000211.
- Kovacevic I, Orozco JM, Cram EJ. Filamin and phospholipase C-ε are required for calcium signaling in the Caenorhabditis elegans spermatheca. PLoS Genet. 2013;9(5):e1003510.
- Sadeghian F, Grooms NWF, Chung SH, Cram EJ. Tensions on the actin cytoskeleton and apical cell junctions in the C. elegans spermatheca are influenced by spermathecal anatomy, ovulation state and activation of myosin. Front Cell Dev Biol. 2024;12:1490803.
- Hoege C, Hyman AA. Principles of PAR polarity in Caenorhabditis elegans embryos. Nat Rev Mol Cell Biol. 2013;14(5):315-22.
- Simske JS, Hardin J. Getting into shape: epidermal morphogenesis in Caenorhabditis elegans embryos. Bioessays. 2001;23(1):12-23.
- Zhang H, Emmons SW. Regulation of the Caenorhabditis elegans posterior hox gene egl-5 by microRNA and the polycomb-like gene sop-2. Dev Dyn. 2009;238(3):595-603.
- Zhang N, et al. The C. elegans intestine as a model for intercellular lumen morphogenesis and in vivo polarized membrane biogenesis at the single-cell level: labeling by antibody staining, RNAi loss-of-function analysis and imaging. J Vis Exp. 2017;(128):e56100.
- Zhang N, et al. The C. elegans excretory canal as a model for intracellular lumen morphogenesis and in vivo polarized membrane biogenesis in a single cell: labeling by GFP-fusions, RNAi interaction screen and imaging. J Vis Exp. 2017;(128):e56101.
- Cui M, et al. A model of hereditary sensory and autonomic neuropathy type 1 reveals a role of glycosphingolipids in neuronal polarity. J Neurosci. 2019;39(29):5816-34.
- Li Z, et al. A collection of toolkit strains reveals distinct localization and dynamics of membrane-associated transcripts in epithelia. Cell Rep. 2021;35(5):109072.
- Cheng X, et al. Proteotoxic stress disrupts epithelial integrity by inducing MTOR sequestration and autophagy overactivation. Autophagy. 2022;19(1):241-55.
- Zhang P, et al. The centralspindlin complex regulates cytokinesis and morphogenesis in the C. elegans spermatheca. Development. 2023;150(2):dev200840.
- Wang YL, Grooms NWF, Civale SC, Chung SH. Confocal imaging capacity on a widefield microscope using a spatial light modulator. PLoS One. 2021;16(2):e0244034.
- Stiernagle T. Maintenance of C. elegans. WormBook. 2006;1-11.
- Hirsh D, Vanderslice R. Temperature-sensitive developmental mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):220-35.
- Davies T, et al. Using fast-acting temperature-sensitive mutants to study cell division in Caenorhabditis elegans. Methods Cell Biol. 2017;137:283-306.
- Ward S, Miwa J. Characterization of temperature-sensitive, fertilization-defective mutants of the nematode Caenorhabditis elegans. Genetics. 1978;88(2):285-303.
- Vanderslice R, Hirsh D. Temperature-sensitive zygote defective mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):236-49.
- Fujita M, Onami S. Cell-to-cell heterogeneity in cortical tension specifies curvature of contact surfaces in Caenorhabditis elegans embryos. PLoS One. 2012;7(1):e30224.
- Nishikawa M, Naganathan SR, Jülicher F, Grill SW. Controlling contractile instabilities in the actomyosin cortex. eLife. 2017;6:e19595.
- Kimble J, Hirsh D. The postembryonic cell lineages of the hermaphrodite and male gonads in Caenorhabditis elegans. Dev Biol. 1979;70(2):396-417.
- Onuaguluchi G, Igbo IN. Comparative local anaesthetic and antiarrhythmic actions of levamisole hydrochloride and lignocaine hydrochloride. Arch Int Pharmacodyn Ther. 1987;289(2):278-89.
- Schindelin J, et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Weisbart E, et al. CellProfiler plugins - an easy image analysis platform integration for containers and Python tools. J Microsc. 2024;296(3):227-34.
- Rueckl M, et al. SamuROI, a Python-based software tool for visualization and analysis of dynamic time series imaging at multiple spatial scales. Front Neuroinform. 2017;11:44.
- Kachur TM, Audhya A, Pilgrim DB. UNC-45 is required for NMY-2 contractile function in early embryonic polarity establishment and germline cellularization in C. elegans. Dev Biol. 2008;314(2):287-99.
- Schmutz C, Stevens J, Spang A. Functions of the novel RhoGAP proteins RGA-3 and RGA-4 in the germ line and in the early embryo of C. elegans. Development. 2007;134(19):3495-505.
- Chartier NT, et al. PAR-4/LKB1 mobilizes nonmuscle myosin through anillin to regulate C. elegans embryonic polarization and cytokinesis. Curr Biol. 2011;21(4):259-69.
- Knight AJ, Johnson NM, Behm CA. VHA-19 is essential in Caenorhabditis elegans oocytes for embryogenesis and is involved in trafficking in oocytes. PLoS One. 2012;7(7):e40317.
- Murata D, et al. GPI-anchor synthesis is indispensable for the germline development of the nematode Caenorhabditis elegans. Mol Biol Cell. 2012;23(6):982-95.
- Wong S, Weisman LS. Roles and regulation of myosin V interaction with cargo. Adv Biol Regul. 2021;79:100787.
- McLean D. Adobe Photoshop and Illustrator techniques. J Audiov Media Med. 2002;25(2):79-81.
- Gabel CV, et al. Neural circuits mediate electrosensory behavior in Caenorhabditis elegans. J Neurosci. 2007;27(28):7586-96.
- Chung SH, Sun L, Gabel CV. In vivo neuronal calcium imaging in C. elegans. J Vis Exp. 2013;(74):50357.
- McCarter J, Bartlett B, Dang T, Schedl T. On the control of oocyte meiotic maturation and ovulation in Caenorhabditis elegans. Dev Biol. 1999;205(1):111-28.
- L’Hernault SW. Spermatogenesis. WormBook. 2006;1-14.
- Pitayu-Nugroho L, et al. Kinetochore component function in C. elegans oocytes revealed by 4D tracking of holocentric chromosomes. Nat Commun. 2023;14(1):4032.
- Wang YL, et al. High-throughput submicron-resolution microscopy of Caenorhabditis elegans populations under strong immobilization by cooling cultivation plates. iScience. 2023;26(2):105999.
- Chung SH, et al. The role of the AFD neuron in C. elegans thermotaxis analyzed using femtosecond laser ablation. BMC Neurosci. 2006;7(1):30.
- Chung S, Maxwell I, Mazur E. Subcellular surgery and nanoneurosurgery [conference paper]. Presented at: Conference on Lasers and Electro-Optics; Baltimore, MD; 2007. p. 1-2.
- Chung SH, Mazur E. Femtosecond laser ablation of neurons in C. elegans for behavioral studies. Appl Phys A Mater Sci Process. 2009;96(2):335-41.
- Chung SH, Mazur E. Surgical applications of femtosecond lasers. J Biophotonics. 2009;2(10):557-72.
- Cai H, et al. Wedge prism approach for simultaneous multichannel microscopy. Sci Rep. 2019;9(1):17795.
- Chung SH, et al. Novel DLK-independent neuronal regeneration in Caenorhabditis elegans shares links with activity-dependent ectopic outgrowth. Proc Natl Acad Sci U S A. 2016;113(20):E2852-60.
- Grooms NWF, et al. Expression of thioredoxin-1 in the ASJ neuron corresponds with and enhances intrinsic regenerative capacity under lesion conditioning in C. elegans. FEBS Lett. 2023;597(14):1880-93.
- Wang YL, et al. Widefield targeted illumination microscopy enables optically-sectioned, motion-resilient imaging of neuronal fibers and their dynamics. Laser Photon Rev. 2025;19(24):e01980.
- Ghaemi R, Rezai P, Nejad FR, Selvaganapathy PR. Characterization of microfluidic clamps for immobilizing and imaging of Drosophila melanogaster larva’s central nervous system. Biomicrofluidics. 2017;11(3):034113.
- Bauer B, Mally A, Liedtke D. Zebrafish embryos and larvae as alternative animal models for toxicity testing. Int J Mol Sci. 2021;22(24):13417.
- Ho VWS, et al. Systems-level quantification of division timing reveals a common genetic architecture controlling asynchrony and fate asymmetry. Mol Syst Biol. 2015;11(6):MSB145857.
- Packer JS, et al. A lineage-resolved molecular atlas of C. elegans embryogenesis at single-cell resolution. Science. 2019;365(6459):eaax1971.
- Bao Z, et al. Automated cell lineage tracing in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 2006;103(8):2707-12.
- Katzman B, Tang D, Santella A, Bao Z. AceTree: a major update and case study in the long term maintenance of open-source scientific software. BMC Bioinform. 2018;19(1):121.
- Cao J, et al. Establishment of a morphological atlas of the Caenorhabditis elegans embryo using deep-learning-based 4D segmentation. Nat Commun. 2020;11(1):6254.
- Guan G, et al. Cell lineage-resolved embryonic morphological map reveals signaling associated with cell fate and size asymmetry. Nat Commun. 2025;16(1):3700.
- Guan G, et al. EmbSAM: cell boundary localization and Segment Anything Model for fast images of developing embryos. Commun Biol. 2026;9(1):8.
- Goehring NW, et al. Polarization of PAR proteins by advective triggering of a pattern-forming system. Science. 2011;334(6059):1137-41.
- Zhang H, et al. Vesicular sorting controls the polarity of expanding membranes in the C. elegans intestine. Worm. 2013;2(1):e23702.
- Zhang H, et al. Clathrin and AP-1 regulate apical polarity and lumen formation during C. elegans tubulogenesis. Development. 2012;139(11):2071-83.
- Kajita A, Yamamura M, Kohara Y. Computer simulation of the cellular arrangement using physical model in early cleavage of the nematode Caenorhabditis elegans. Bioinformatics. 2003;19(6):704-16.
- Zhang H, et al. Apicobasal domain identities of expanding tubular membranes depend on glycosphingolipid biosynthesis. Nat Cell Biol. 2011;13(10):1189-201.
- Pimpale LG, Middelkoop TC, Mietke A, Grill SW. Cell lineage-dependent chiral actomyosin flows drive cellular rearrangements in early Caenorhabditis elegans development. eLife. 2020;9:e54930.
- Hench J, Henriksson J, Lüppert M, Bürglin TR. Spatio-temporal reference model of Caenorhabditis elegans embryogenesis with cell contact maps. Dev Biol. 2009;333(1):1-13.
- Richards JL, et al. A quantitative model of normal Caenorhabditis elegans embryogenesis and its disruption after stress. Dev Biol. 2013;374(1):12-23.
- Moore JL, Du Z, Bao Z. Systematic quantification of developmental phenotypes at single-cell resolution during embryogenesis. Development. 2013;140(15):3266-74.
- Wong MK, et al. Timing of tissue-specific cell division requires a differential onset of zygotic transcription during metazoan embryogenesis. J Biol Chem. 2016;291(24):12501-13.
再版と許可
この記事は公開されました
動画は近日公開