種間相互作用における真菌の形態学的応答を定性的および定量的に評価するための、2つの非接触共培養アプローチについて記述します。本プロトコルでは、Candidaの種間アッセイを例に、内因性因子が菌糸の成長にどのように影響するかを実演します。これらの手法は、多様な生物における微生物の種間コミュニケーションを調査するために容易に適応させることが可能です。
この記事について
サマリー
要約
微生物コミュニティにおいて、細胞の挙動や形態は通常、さまざまな細胞内および細胞外因子によって影響を受けます。微生物間のコミュニケーションを研究するための既存のさまざまなアプローチは、煩雑であるか、あるいは特殊な設備や専門知識を必要とする場合があります。 ここでは、相補的な2つの非接触共培養アプローチである、メンブレンインサートウェルプレート共培養アッセイと、無細胞上清(CFS)ベースのアッセイについて説明します。これらは、形態変化を測定可能な応答として利用し、特定の種間相互作用におけるさまざまな因子の役割を調査する手法です。メンブレンインサートウェルプレートシステムは、細胞外分子の拡散を許容しつつ、物理的に分離された種の間でリアルタイムの相互作用を可能にします。対照的に、CFSベースのアッセイは、コンディショニング培地に対する応答を評価するための、簡略化されスケールアップ可能なアプローチを提供します。本プロトコルには、培養準備、コンディショニング上清の作製、アッセイのセットアップ、顕微鏡観察、画像取得、Fijiを用いた定量的形態計測分析、および統計評価のための標準化された手順が含まれています。本手法は、内在的および外在的因子に対する真菌の形態応答の例を用いて実証されています。ここで提示する手法は、コミュニティにおける新しい微生物相互作用を研究するための、アクセシビリティが高く適応可能な代替ツールを提供し、コミュニティにおける多種共存の根底にあるメカニズムを調査するために容易に拡張できる可能性があります。
概要
自然環境や臨床における生態系において、微生物は通常、種内および 種間 コミュニケーションの複雑なネットワークによって制御された、構造的な多種微生物共同体の中に生息しています1。これらのコンソーシアムは、クオラムセンシング分子、揮発性有機化合物、分泌ペプチドやタンパク質を含む多様な化学信号を利用して、個体群レベルの行動を調整しています2。協調的、競争的、あるいは捕食的なニッチ相互作用は、微生物の代謝、空間的構造、およびストレス適応を著しく変化させるため、これらのコミュニケーションダイナミクスを明らかにすることは極めて重要です3。臨床的には、これらの多種微生物ネットワーク(細菌と真菌の2種混合、あるいは真菌同士の種間コンソーシアムなど)は、単一培養と比較して、相乗的な毒性、組織への定着の加速、および薬剤耐性の向上を示すことが頻繁にあります4,5。したがって、微生物間コミュニケーションの分子決定要因を解明することは、従来のモデルを超越し、コミュニティの安定性を崩す革新的な抗感染戦略を開発するために不可欠です6。
微生物間のクロストークの異なる様式を解析するために、研究者は主に哺乳類細胞生物学、免疫学、および腫瘍学で使用される多様な実験構成を利用しています7,8,9。例えば、直接接触共培養モデルは、 ジャクスタクリン シグナル伝達および物理的な細胞間相互作用を調査するための標準的な手法として機能します10。同様の設定に修正を加えたものは、微生物間の物理的相互作用の研究や、微生物間の抑制または薬剤反応の理解にも使用されます9,11,12。しかし、接触依存性シグナルと拡散性シグナルの両方が観察される反応に寄与するため、根本的なメカニズムを区別することは困難です。従来の接触ベースのアッセイは空間的な知見を提供できますが、労力がかかり、かつ/または個別の菌株ラベル付けが必要であり、非モデル生物の場合、これは煩雑な作業となる可能性があります。対照的に、主に哺乳類の研究において、接触依存性シグナルと拡散性シグナルの寄与を区別するためにTranswell(メンブレンインサートウェルプレート)アッセイが使用されています13,14,15,16。この手法は、細胞間コミュニケーションが分泌分子によって媒介される場合に特に有用であり、細胞集団間のシグナル伝達ダイナミクスのリアルタイム分析を可能にします17。さらに、非接触アッセイは膜分離という利点があり、計算モデルを用いた実験と統合することで、従来の手法では見逃されていた微生物の動的な追跡を行うことも可能です18。このアプローチは、異なる細菌種の発育キネティクスを同時に研究するために時折使用されます19。
メンブレンインサートウェルプレートアッセイに代わる、より安価でハイスループットな手法が、無細胞上清(CFS)ベースまたは条件培地ベースのアッセイです。この手法は、幹細胞による組織修復や腫瘍誘発性血管新生を理解するために必要なセクレトームを単離する目的で、再生医療や血管生物学において用いられていることが知られています20。同様に、微生物研究においても、CFSの枠組みは多種微生物間の競合を解明するのに有用です。例えば、細菌濾液( Pseudomonas aeruginosa のアシルホモセリンラクトンや、 Lactobacillus の代謝産物など)が、真菌バイオフィルムの成熟を調節するために使用されてきました21,22。 より最近では、マイクロ流体プラットフォームにより、オルガンオンアチップ技術を通じて高精度な生理学的バイオミミクリーが可能になりました23,24。マイクロ流体システムは、微生物コミュニティのセクレトームに対する応答を同時に検出するために導入されていますが、専用の機器と専門知識が必要であり、あらゆる環境で容易に導入できるわけではありません25,26,27。したがって、多くの場合において、メンブレンインサートウェルプレートアッセイとCFSベースのアッセイが最適な手法になると期待されます。これら2つのアッセイの選択は、分泌分子の性質によって異なります。分泌分子が不安定である(すなわち、半減期が短い)場合や、リアルタイムの活性を測定する必要がある場合は、メンブレンインサートウェルプレートアッセイがより適しています。一方で、分泌分子が安定しており、実験が大規模である場合は、CFSベースのアッセイの方が経済的です。
本プロトコルの主な目的は、メンブレンインサートウェルプレートおよびCFSプラットフォームを用い、形態学的特性を評価するための定性的および定量的な追跡手法をステップバイステップで提示することである(図 1)。ここでは、例としてCandida albicansとCandida glabrataの間の分泌因子によるコミュニケーションを用いて実証している。さらに、これらのツールを用いて、分泌シグナル分子にさらされた際の C. albicans フィラメントの絶対的な幾何学的発達(長さ、体積、直径)を変化させる内在的な遺伝的変数(倍数性と接合遺伝子座の状態)の影響を定量化することも可能である。確立された本プロトコルは、種間シグナル伝達ダイナミクスの研究に適した、簡便で安価な非接触プラットフォームを提供する。
プロトコル
C. albicansおよびC. glabrataは、いずれもバイオセーフティレベル2(BSL-2)のヒト日和見感染菌に分類されています。すべての実験工程は、良き微生物学的実務(GMP)および施設の封じ込め手順を厳守し、認証済みのバイオセーフティキャビネット内で行わなければなりません。白衣、二重手袋、保護メガネを含む個人用保護具(PPE)を常時着用してください。汚染されたすべての消耗品、プラスチック器具、および液体培養物は、最終処分の前に、バリデーション済みのオートクレーブ滅菌(121 °C, 15 psi, 20分間)または、調製直後の10%次亜塩素酸ナトリウム溶液による化学的消毒を行う必要があります(推奨:米国国立衛生研究所(NIH)廃棄物処理ガイド 2022)。本手法で使用されるすべての標準試薬、分析グレードの化学薬品、および装置は、材料表に記載されています。真菌株の特性および背景遺伝子型については、表1に詳しく記載されています。本研究で使用した培地のリストおよびその組成は、補足ファイル1に提供されています。
1. 無細胞上清(CFS)の調製
- 培養の開始およびインキュベーション
- 滅菌済みのプラスチックループを用いて、単一の独立したコロニーをピックアップし、 *C. glabrata* 新しく培養したCBS138を、 グルコース最小培地(GMM)寒天プレート28コロニーを、10 mLの標準的なYPD(酵母ペプトンデキストロース)ブロス(1% w/v 酵母エキス、2% w/v ペプトン、2% w/v D-グルコース)を含む滅菌済みガラスチューブに接種する。29.
- チューブをオービタルシェイキングインキュベーター内に固定する。培養物を以下の一定温度でインキュベートする。 37 °C 200 rpmで18時間、連続的に攪拌しながら。
- 光学密度(OD)を確認し、培養液が均一に定常増殖期の後期に入っていることを検証します。600)が12.0から14.0の安定した範囲内にあることを確認します。顕微鏡下で細胞を観察し、細胞が酵母形態であり、コンタミネーションがないことを確認してください。安定した細胞外セクレトーム成分を最適に蓄積させるには、この発育ウィンドウが必要です。
- 細胞分離およびろ過
- 18時間培養したものを無菌的に移します。 *C. glabrata* 滅菌済みの15 mLコニカルポリプロピレン遠心チューブに液体培養物を分注する。
- チューブの重量を合わせ、培養液を5,000 x gで遠心分離します。 g 室温(〇〇℃)で正確に5分間 25 °C バイオマスを圧縮して密なペレットにする。
- 生の液体上清を、清潔で滅菌済みの20 mLプラスチックシリンジにデカンテーションにより移します。シリンジを滅菌済みの 0.22 µm 低タンパク結合ポリエーテルスルホン(PES)膜フィルター。
- 一定の機械的圧力を加え、液体をPESフィルターを通して滅菌済みの15 mL回収チューブにろ過し、作業用の無細胞上清(CFS)を作成します。ろ過中に抵抗が感じられた場合は、メンブレンの破損につながる恐れがあるため、過度な圧力を加えないでください。そのような場合は、新しいメンブレンフィルターを使用してください。
注意:回収直後のCFSを、急速な凍結融解サイクルや、以下の保存温度以下にさらさないでください。 4 °C 低温沈殿によって低存在量のタンパク質因子が不安定化する可能性があるため、アッセイのセットアップ前に行う。 - コンパニオンメンブレンインサートウェルプレート共培養実験(ステップ4)に直接進む場合は、回収した標的圧縮細胞ペレットを最初の回収チューブ内に保持してください。
2. 菌糸誘導アッセイ用Candida albicans接種源の調製
- 接種源の調製および維持
- 標的となるC. albicans株(遺伝子型についてはTable 1を参照)を、-80 °Cで保存されている長期マスターグリセロールストックから直接回収する。細胞を固形GMMプレート(0.67% w/v アミノ酸不含酵母窒素ベース、2% w/v D-glucose、2% w/v agar)にストリークし、ワーキングコロニーを形成させる。
- 二倍体株(SC5314, RBY1132, RBY1133)の場合:単一コロニーを5 mLの液体GMMに接種する。チューブを37 °Cで、200 rpmの一定速度で振盪しながら12時間インキュベートする。
注:二倍体細胞の一晩調製に最小培地(GMM)を使用することは、栄養豊富な培地で頻繁に起こる自発的な自己フィラメント形成を抑制するために極めて重要である。 - 一倍体株(GZY896, GZY803)の場合:単離したコロニーを、0.1 mg/mL uridineを添加した5 mLの液体YPDブロス(YPDU)に接種する。チューブを37 °Cで、200 rpmで連続的に振盪しながら12時間インキュベートする。
- 形態学的安定性を維持し一貫性を確保するため、連続的な液体サブカルチャーは最大3代までとする。開始時のコントロールプールにおいて自己フィラメント形成または偽菌糸クラスターが2%を超える場合は、その株を廃棄し、マスター凍結ストックから新しい細胞を復元させる。
- 標準化
- 一晩培養した液体培養物から1 mLを滅菌キュベットに分注する。校正済みのUV-Vis分光光度計を用い、新鮮なGMMまたはYPDUブロスをブランクコントロールとして、600 nmにおける正確な吸光度(OD600)を測定する。
注:一晩培養した液体培養物、特にYPDUで増殖させたもののOD600(細胞密度)は、分光光度計の感度範囲を超えることがある。そのような場合は、測定前に培養液を適切に(10〜20倍)希釈すること。 - 標準化された標的懸濁液を作成するために必要な高密度培養液の量を算出する。滅菌チューブ内で、あらかじめ加温した(37 °C)液体GMMを用いて細胞を希釈し、最終的な絶対OD600 = 0.1に調整した1 mLのワーキング接種液を調製する。
- 一晩培養した液体培養物から1 mLを滅菌キュベットに分注する。校正済みのUV-Vis分光光度計を用い、新鮮なGMMまたはYPDUブロスをブランクコントロールとして、600 nmにおける正確な吸光度(OD600)を測定する。
3. CFSを用いた菌糸誘導アッセイ(96ウェルプレート形式)
- アッセイのセットアップ
- 滅菌済みの光学的に透明な平底96ウェルポリスチレンマイクロタイタープレートを用意する。
- 試験ウェルの構成:分注した直後のろ過済みC. glabrata CFS(ステップ1.2.4より)45 µLを指定の試験ウェルに直接分注する。滅菌済みGMMブロス(または半数体標的株を評価する場合はYPDUブロス)45 µLを加える。
- 培地陰性コントロール:コントロールウェルにGMMブロス90 µLを加える。さらに、別のウェルで滅菌済みGMMブロス45 µLと未接種のブランクYPDブロス45 µLを混合し、ベースラインとなる培地成分の背景をモニターする。
- 陽性誘導コントロール:GMMブロス80 µLと胎児牛血清(FBS;最終濃度10% v/v)10 µLを混合して加える。
- 接種:OD600 = 0.1に標準化したC. albicans作動接種液(ステップ2.2.2より)10 µLを、すべての実験ウェルおよびコントロールウェルの適切な培地90 µLに正確に分注する。
- インキュベーションおよびデータ収集
- 蒸発を最小限に抑えるため、96ウェルプレートを適合するプラスチック製の蓋で覆う。プレートを37 °Cに維持された静置インキュベーターに正確に3時間置く。安定したフィラメント形成を可能にするため、この時間帯にプレートを移動させたり攪拌したりすることを避ける。
- インキュベーション後、マルチウェルプレートを、明視野光学系とデジタルCCDカメラモジュールを搭載した倒立光顕微鏡のステージ上に直立させて置く。
- 1ウェルあたり少なくとも5つの異なる視野にわたって、自動または手動で体系的に画像をキャプチャする。
- このアッセイ構成を、条件ごとに明確なテクニカルデュプリケートを用いて、別々の日に調製した少なくとも3つの完全に独立した生物学的レプリケートで実施する。
4. メンブレンインサートウェルプレートを用いた共培養アッセイ
- アブルミナル(下層)コンパートメントのセットアップ
- 滅菌済みの24ウェル組織培養キャリアプレートを用意する。
- 正規化したOD600 = 0.1のC. albicans細胞懸濁液(ステップ2.2.2より)を、下層のアブルミナルチャンバーに正確に1.0 mLずつ分注する。
- ルミナル(上層)コンパートメントのセットアップ
- ステップ1.2.5で取り分けておいたC. glabrata細胞ペレットを回収する。ペレットを1 mLの滅菌済みGMMブロスで再懸濁し、5000 x gで3分間遠心分離した後、上清を捨てる。残留した栄養成分や古い培地成分を除去するため、この洗浄ステップを2回繰り返す。
- 最終的に洗浄したペレットを新鮮なGMMブロスで再懸濁し、最終的な吸光度をOD600 = 5.0の高濃度に調整する。
- 滅菌済みピンセットを用いて、孔径0.4 µmのトラックエッチポリカーボネート膜を備えた滅菌済みメンブレンウェルインサートをピックアップする。インサート本体を、細胞が入った24ウェルプレートのチャンバー内にスムーズに挿入し、上部のフランジを中央のノッチ位置に固定する。
- OD600 = 5.0に調整した濃縮C. glabrata培養液を、上層のルミナルインサートチャンバーに正確に750 µL分注する。
注:膜バリアを挟んで細胞比を約1:50(C. albicans対C. glabrata)に維持することで、局所的なフィードバックアーティファクトを防ぎつつ、シグナル伝達リガンドを十分に蓄積させることができる。
- インキュベーションおよびイメージング
- 構築したメンブレンインサートウェルプレートアセンブリに蓋をし、37 °Cで正確に3時間、静置 または緩やかな振盪(30 rpm)条件下でインキュベートする。
- インキュベーション後、滅菌済みピンセットを用いて、各ウェルから上層のルミナルインサートを慎重に持ち上げて取り出す。インサートはバイオハザード廃棄物として廃棄する。
注:高解像度顕微鏡スクリーニング中の屈折シャドウ、光散乱パターン、および背景のグリッドアーティファクトを排除するため、イメージング前に上層インサート膜を完全に除去する必要がある。 - 形態評価のため、24ウェルプレートを倒立顕微鏡のステージに設置する。本研究では、DICフィルターセットを備えた、10x/0.30NA、20x/0.50NA、または超長作動距離の40x/0.60NA対物レンズを搭載した倒立顕微鏡を使用した。
5. 高解像度顕微鏡観察およびデジタル画像解析
- デジタル画像取得
- 低倍率の10倍対物レンズを用いてウェルの底面をスキャンし、細胞が均一に分布していることを確認するとともに、局所的なトラッキングエラーや異常な細胞凝集がないかを確認してください。
- 校正済みの20倍対物レンズを用いて、少なくとも10箇所の異なる視野を撮影する。これらの画像は、標準的なフィラメント数および個体群分布を追跡するためのコアデータセットとなる。
- 詳細な表現型解析および細胞境界の精密な測定を行うため、40倍の超長作動距離対物レンズ構成で顕微鏡写真を撮影してください。すべての未処理の画像ファイルを保存してください。
- 定量表現型解析パイプライン(Fiji)
- ~を起動してください。 Fiji (バージョン1.54p以降) の処理ソフトウェアを使用します。次のように操作して、対象の顕微鏡写真を開きます。 ファイル > 開く または、ファイルを直接〜にドラッグします。 Fiji コントロールパネル
- 菌糸長の追跡 (L):メイン画面上の線選択アイコンを右クリックします。 Fiji ツールバーから[ ]を選択し、 セグメント線ツール ドロップダウンメニューから選択します。移動するフィラメントが母細胞の細胞壁境界から出現する正確な接点にカーソルを合わせます。
- 菌糸の中央縦軸に沿ってトレースするように左クリックを繰り返し、曲線や屈曲に合わせてアンカーポイントを配置し、最先端端で線を終了させます。次に、〜をクリックして 測定 長さをマイクロメートル(μm)で記録する(µm)。押してください。 Ctrl+M (Windows) または Cmd+M (Mac OS) で全長 (L) をマイクロメートル (µm) 単位で記録します。µm)が結果ウィンドウ内に表示されます。
- 同一のフィラメントを重複して測定することを防ぐため、組み込みの「ブラシツール(Brush Tool)」を使用して、完了した各細胞をハイライトしてください。
- 母細胞のプロファイリング:以前に追跡した菌糸フィラメントに対応する、付着した酵母母細胞の細胞体を特定します。以下の手順を使用してください。 セグメント線ツール 細胞体の最大長軸に沿って直線をDRAWし、その最大長軸(長軸、変数「a」と定義)を測定し、以下を実行する。 測定 コマンド
- 細胞体の最も幅の広い横断方向に、長軸に厳密に垂直な補助線を線引きし、対応する垂直方向の短軸(変数「b」として定義される短軸)を測定して、以下を実行する。 測定 コマンド
- 親酵母細胞の全容積(CV、立方マイクロメートルで表記)を算出してください。 µm3) 「a」および「b」の対数変数を用いて長球体の標準的な幾何学的モデルを適用することにより:CV = 4/3 π ab2.
- 菌糸構造の厚さ (d): 以下の項目を選択してください。 セグメント線ツール外壁間の距離を測定する。 すなわち、長さ方向の軸に対して垂直に線を引きます。フィラメントの自然な構造的変動を考慮するため、フィラメントの長さに沿って等間隔に3か所の異なる地点でこれらの測定を行い、それぞれの測定値を記録します。 〜経由で その 測定 コマンド
- これら3つの異なるデータポイントの算術平均を算出し、正確な平均厚さの値(d)を決定します。この算出された平均直径値を2で除し、構造変数である半径(r = d/2)を決定します。
- 菌糸フィラメントの全容積(HV、単位は µm3)フィラメントを分枝のない正円柱として扱い、追跡したフィラメント長(L)および導出された構造半径(r)を以下の計算モデルに適用します:HV = π 翻訳するソーステキストを提供してください。2 L.
6. 統計設計
- 生物学的反復
- 個別に準備した新鮮なスタートアップ培養物を用い、少なくとも3回の独立した生物学的ランにわたって、すべての個別のテストレイアウトを実施する。
- ウェルの端で生じる局所的な影響やピペッティングの誤差を考慮し、各生物学的ランにおいて、1条件あたり最低2つの同一なテクニカルウェルを割り当てる。
- 実験単位の定義:統計的妥当性を確保しアーティファクトを避けるため、各実験につき最低3回のテクニカルリピートを含める。単一のウェル内で測定された個々の細胞はテクニカルサブサンプルとなり、同様に、そのような3つのウェルが3つのテクニカルリプリケートに相当する。同様に、各サンプルについて3つの生物学的反復(独立した実験)が推奨される(N = 3)。
- 生物学的ラン内の各異なる条件について、複数の視野にわたって50から100個の個々の細胞をランダムに測定する。各生物学的反復について、これらの細胞測定値の平均値または中央値を算出する。以降のすべての比較統計テストには、生物学的反復から得られたこれらの平均値または中央値を使用する。
- 分布プロファイリングおよび仮説検定
- パラメトリック手法(平均値の比較など)を適用する前に、Shapiro-Wilk検定またはD’Agostino-Pearson検定を用いて、生物学的反復データセットの正規性を評価する。
- 2群間比較:単一のテスト群を単一のコントロール背景と直接比較する場合(例:純粋培地での野生型C. albicansの増殖と、単離されたC. glabrata CFS中での増殖の比較)、データセットが正規分布に従っていることを条件として、非対応の2標本t検定(Student's t-test)を適用する。
- データが正規分布から著しく逸脱している場合は、順位付けされたデータの中央値を比較し、データの絶対値に依存しないMann-Whitney U検定(ウィルコクソン順位和検定)などのノンパラメトリックな代替手法に切り替える。ノンパラメトリック検定は、外れ値の影響を受けにくいことでも知られている。
- 多群評価:3つ以上の遺伝子系統または処理組み合わせを同時に評価する場合(例:MATa/a、MATα/α、およびMATa/α株における形態学的変化の追跡)、標準的な一元配置分散分析(One-Way ANOVA)を行い、続いて多重比較のためのTukeyのポストホック検定を実施する。正規性の検定に合格しなかった場合は、パラメトリックな枠組みをノンパラメトリックなKruskal-Wallis検定に置き換え、続いてDunnのポストホック多重比較分析を行う。
- グラフ表現およびデータの可視化:すべての統計解析およびグラフ作成は、統計・グラフ作成ソフトウェアを用いて行う。
注:統計解析の実施およびグラフの作成には、同等のソフトウェアを使用できる。メンブレンインサートウェルプレートおよびCFSアッセイのデータは、カラム散布図、ジッターバイオリンプロット、またはジッターボックスプロットを用いて表現でき、これらは中央値(中心線)と95% CI(本研究で使用)、または中央値(中心線)と第1および第3四分位数(それぞれ上端および下端の線)を示す。 - 正式な統計的有意性の閾値をアルファレベル p < 0.05 に設定する。作成されるすべてのデータ図および表において、慣習的な表記構成を維持する。例:ns: p > 0.05; *: p < 0.05; **: p < 0.01; ***: p < 0.001; ****: p < 0.0001。
結果
種間相互作用を探索するための非接触共培養アッセイ
水溶性で低濃度の細胞外シグナル伝達分子は、混合微生物の共生における重要なコミュニケーションイベントを媒介することがよくあります。このようなダイナミクスを評価するため、C. albicansとC. glabrataの間の相互作用パターンを分析しつつ、細胞同士の直接的な物理的接触を防ぐように設計された、2つの非接触型細胞ベースのセットアップを用いました。最初の構成では、統合メンブレンインサートウェルプレート培養システムを使用し、2つの個体群を不活性な0.4 µmの多孔性ポリカーボネートメンブレンで物理的に分離させることで、バリアを介した分泌分子の妨げのない双方向拡散を可能にしました。2番目のセットアップでは、定常期のC. glabrata培養液から回収した細胞不含上清(CgCFS)を含むマイクロタイタープレート中で直接培養したC. albicans酵母細胞の増殖をモニタリングしました。
以前のスクリーニング30と同様に、野生型ヘテロ接合二倍体C. albicans細胞(SC5314)は、メンブレンインサート障壁で分離されたC. glabrata細胞またはろ過済みCgCFSのいずれかに反応して、容易に真菌糸を形成した。一方、純粋な陰性対照培地(GMMまたはYPD)で維持された細胞は、主に出芽酵母および仮菌糸形態のままであった(Figure 2A)。比較分析により、2つのアッセイ設定間の整合性が示された。両アッセイにおいて、菌糸の長さ、体積、太さを含むすべての構造的指標で同等の値が得られた(Figure 2)。形態学的パラメータの差は、適切な統計検定およびそれに続く多重比較の後、p値が0.05の基準を満たした場合に有意であるとみなした。これらの観察結果から、メンブレンインサートウェルプレート設定内のC. glabrata細胞によって誘導された真菌糸の長さ(39.66 µm ± 6.81 µm)と、ろ過済みCgCFSに曝露させた場合の長さ(37.13 µm ± 6.50 µm)との間には、C. albicans細胞において有意な差がないことが示された(Figure 2B)。同様に、メンブレンインサートウェルプレートシステムで誘導されたこれらの菌糸の体積(112.10 µm3± 22.59 µm3)も、CgCFS条件付き培地における体積(109.78 µm3± 34.69 µm3)と有意な差はなかった(Figure 2C)。さらに、菌糸径の測定により、平均的な菌糸の太さは2つの設定間で一貫しており、メンブレンインサートウェルプレート構成で1.89 ± 0.10 µm、CgCFS処理で1.92 µm ± 0.23 µmであったことが確認された(Figure 2D)。
倍数性と接合型構成がin vitroでの形態学的寸法を変化させる
倍数性レベルと接合遺伝子座の構造が二形態転換の方向付けに果たす役割は、さまざまな真菌モデルシステムで確立されています。本研究では、解析トラッキングパイプラインを適用し、一倍体(MATa または MATα)および二倍体(MATa/a、MATα/α、または MATa/α)の C. albicans 株のパネルにおいて、菌糸形成指標、具体的には菌糸長、構造体体積、厚さ、および対応する母酵母細胞体積を定量化しました。
構造プロファイリングにより、誘導性のCgCFSセクレトームまたは陽性血清コントロールに曝露させた際、ホモ接合型二倍体α株(MATα/α)は、ホモ接合型二倍体MATa/a株と比較して、有意に長い軸(45.56 µm ± 9.24 µm および 46.62 µm ± 9.07 µm)と大きな体積(125.24 µm3 ± 39.94 µm3 および 119.45 µm3 ± 37.32 µm3)を持つフィラメントを形成することが明らかになりました(Figure 3A,C)。C. albicansの標準的な臨床分離株は主にヘテロ接合型二倍体として存在していますが、リファレンスMATa/α株は、誘導後(特に血清による誘導後)、MATa/a株に比べてより長いフィラメントと大きな体積を示しました。しかし、それらはホモ接合型MATα/α株よりも有意に小さい値でした(Figure 3B,D)。
同時に、半数体株では逆のパターンが示され、いずれの誘導条件下においても、半数体MATa株は半数体MATα株と比較して菌糸長が有意に増加した(CgCFS:22.06 µm ± 5.41 µm 対 17.58 µm ± 4.12 µm、Serum:23.71 µm ± 6.59 µm 対 21.00 µm ± 5.29 µm;Figure 4A)。興味深いことに、半数体背景におけるこの長さの増加は、CgCFSに対する応答においてのみ、菌糸体積の増加(38.84 µm3 ± 19.58 µm3 対 34.25 µm3 ± 19.62 µm3)として現れた(Figure 4B)。これらの初期のin vitro測定結果は、倍数性と接合型遺伝子座の構成との間に複雑な相互作用があることを示唆しており、MATaおよびMATα遺伝子座が菌糸形成のダイナミクスに異なる寄与をしている可能性が示唆される。
統合データセット全体におけるこれらの構造的指標間の統計的関係を調べるため、テストしたすべての倍数性と接合型バリアントを対象として、スピアマンの順位相関(ρ)およびピアソンの線形回帰(R2)分析を実施した。分析したすべてのペアにおいて正の相関が観察された。具体的には、菌糸長と菌糸体積、菌糸長と菌糸太さ、菌糸長と母細胞体積、および総菌糸体積と母酵母細胞体積の間で正の相関が認められた(図 5、付録表 1および 付録表 2)。
菌糸の長さと算出された菌糸体積との間に最も強い相関が観察されました(ρ = 0.91; 図 5A)。逆に、親酵母細胞の初期体積と出現した菌糸体積との相関が最も弱くなっていました(ρ = 0.63; 図 5C)。さらに、菌糸の太さは、菌糸体積ほど菌糸の長さと強く相関しませんでした(図 5A,D)。親細胞の体積、菌糸の長さ、および菌糸の太さの相関における統計的に有意な差は認められませんでした(図 5B,D)。これらの幾何学的分布は、親酵母細胞の初期体積が大きいからといって、必ずしも菌糸が長くなったり体積が増加したりするわけではないことを示唆しています。
要約すると、これらの結果は、物理的な接触を伴わずにC. albicansの形態形成の変動を可視化および定量化する上で、メンブレンインサートウェルプレートとCFSベースのアッセイの両方が有用であることを示しています。本プロトコルによって得られたデータは、異なる倍数性背景および接合型構成において、異なる形態学的特性があることを明らかにしています。これらの非接触アッセイ系は、多様な微生物の組み合わせにおける種間シグナリング動態の調査に適応可能な、柔軟で拡張性のある手法を提供します。
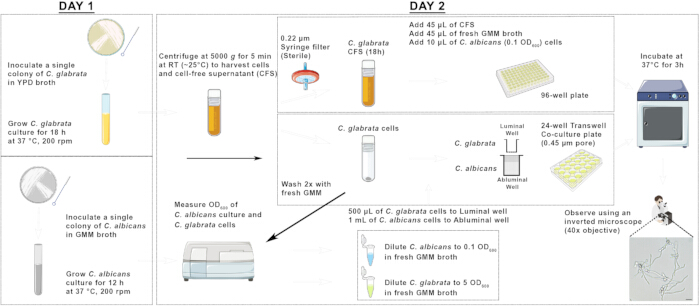
図1: メンブレンインサートウェルプレートを用いた共培養およびCFSベースの菌糸誘導アッセイの模式図 カンジダ 種 この図の拡大版を表示するには、ここをクリックしてください。
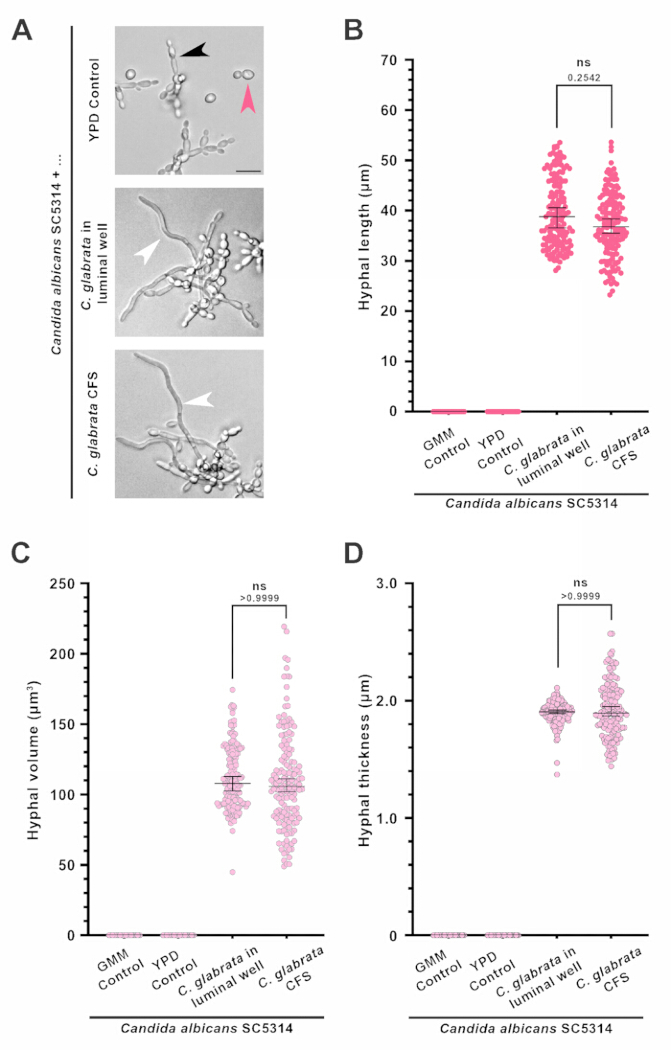
Figure 2: メンブレンインサートウェルプレートおよびCFSベースの非接触アッセイ間で観察された菌糸形態の比較。 (A) YPD(コントロール)、メンブレンインサートウェルプレート内での C. glabrata、または C. glabrata 無細胞上清(CFS)調製培地に対する C. albicans の形態的応答を示す代表的な明視野顕微鏡写真。ピンク、黒、白の矢印は、それぞれ酵母形、仮菌糸、真菌糸を示す。スケールバー、10 µm。メンブレンインサートウェルプレート内での C. glabrata 細胞または C. glabrata CFSへの応答で観察された、ヘテロ接合体二倍体 C. albicans 株(SC5314)の菌糸長 (B)、菌糸体積 (C)、および菌糸太さ (D)。データは3回の独立した生物学的実験からの中央値 ± 95%信頼区間を示し、n = 50 cells である。ns, 有意差なし: p > 0.05. この図の拡大版を表示するには、ここをクリックしてください。
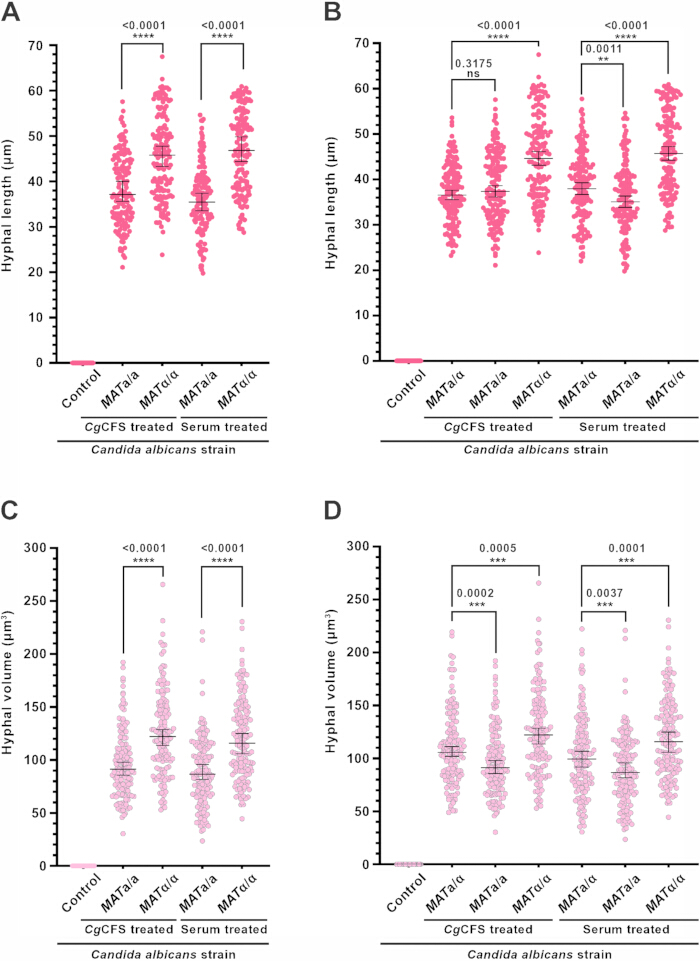
図 3: 二倍体C. albicansにおいて、接合型と接合性が菌糸形態に有意な影響を及ぼす。 指示された誘導分子に対する応答における、C. albicansのホモ接合体二倍体間(A)およびヘテロ接合体とホモ接合体二倍体間(B)の菌糸長の比較を示すプロット。同様に、上述の誘導分子に対する応答における、ホモ接合体二倍体間(C)およびヘテロ接合体とホモ接合体二倍体間(D)の菌糸体積の比較を示す。対照:非菌糸誘導培地対照であるYPD。データは、n = 50 cellsとした3回の独立した生物学的実験からの中央値 ± 95%信頼区間を示す。プロット上部の数値は、ウィルコクソン順位和検定による比較で決定されたp値である。**: p < 0.01, ***: p < 0.001, ****: p < 0.0001は統計的に有意、nsは有意ではない(p > 0.05)。 この図の拡大版を表示するには、ここをクリックしてください。
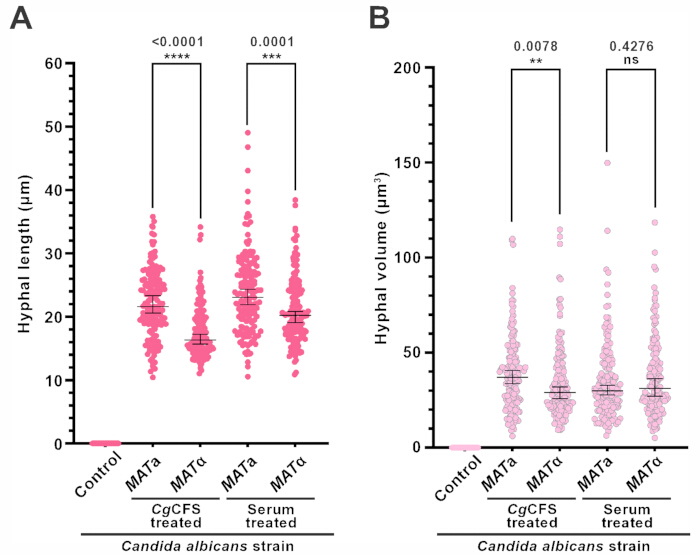
図 4: 異なる分子誘導剤に対する半数体 C. albicans の菌糸特性。 プロットは、指定された誘導剤に応答した半数体 C. albicans 株における菌糸の長さ(A)および菌糸の体積(B)を示している。Control:非菌糸誘導培地コントロールであるYPD。データは、n = 50 細胞、3回の独立した生物学的実験から得られた中央値 ± 95% 信頼区間を表す。表示されている数値は、Wilcoxon順位和検定によって決定された p 値を示す。**: p < 0.01, ***: p < 0.001, ****: p < 0.0001 は統計的に有意であり、nsは有意ではない(p > 0.05)ことを示す。この図の拡大版を表示するには、ここをクリックしてください。
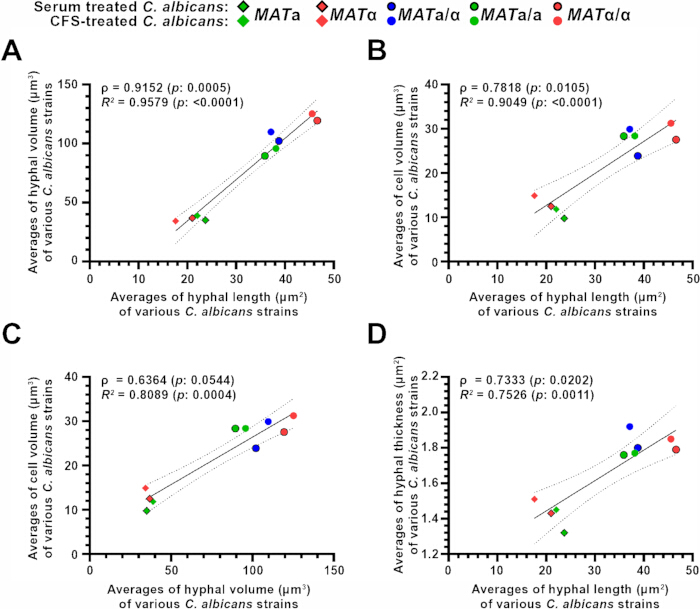
図 5: C. albicansの倍数性に相関する形態学的パラメータ間の相関。 プロットは、本研究で用いた形態学的パラメータ間のスピアマン相関および線形回帰を示す。すなわち、菌糸体積と菌糸長 (A)、細胞体積と菌糸長 (B)、細胞体積と菌糸体積 (C)、および菌糸の太さと菌糸長 (D) である。ρ: スピアマン相関係数;R2: 線形回帰分析による決定係数;p: p値。こちらのリンクをクリックして、この図の拡大版を表示してください。
| 菌株 | 種 | 倍数性 | 遺伝子型 | 翻訳するソーステキストが提供されていません。翻訳したいテキストを入力してください。 |
| CBS138 | Candida glabrata | 半数体 (1n) | MATα | ATCC 2001 |
| SC5314 | カンジダ・アルビカンス | 二倍体 (2n) | ヘテロ接合型 (MATa/α) | ATCC MYA-2876 |
| RBY1132 | カンジダ・アルビカンス | 二倍体 (2n) | ホモ接合型 (MATa/a); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. Barrier Activity in Candida albicans Mediates Pheromone Degradation and Promotes Mating. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | 二倍体 (2n) | ホモ接合型 (MATα/α); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | カンジダ・アルビカンス | 半数体 (1n) | ホモ接合体 (MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. 「絶対的二倍体」であるCandida albicansは、接合能を持つ半数体を形成する。Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | カンジダ・アルビカンス | 半数体 (1n) | ホモ接合体(MATα); his4 ura3Δ::HIS4 |
表1:本研究で使用したCandida albicansおよびCandida glabrataの菌株。 本表は、非接触型メンブレンインサートウェルプレート共培養および無細胞上清(CFS)ベースのアッセイで評価した真菌株の名称、詳細な遺伝子型、倍数性、および接合型接合性をまとめたものである。
補足表 1: さまざまな C. albicans 形態学的パラメータに対して実施された統計解析のデータ。こちらのリンクからファイルをダウンロードしてください。
補足表2: 本研究で評価したC. albicansの各種形態学的パラメータにおけるすべての生物学的レプリケートの生データ。こちらをクリックしてファイルをダウンロードしてください。
補足ファイル 1: 本研究で使用した培地の一覧およびその組成。こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
メンブレンインサートウェルプレートとCFSを用いたアッセイによる以前の報告では、C. albicansがC. glabrata細胞またはそのCFSに反応して菌糸を形成することが示されました。しかし、この反応はSaccharomyces cerevisiaeやCandida dubliniensisなどの他の酵母では誘導されませんでした30。さらに、この菌糸形成反応はC. albicansの研究用標準株であるSC5314のみに限定されず、臨床分離株WUM5Aを含む他のゲノム背景においても認められました30。本プロトコルでは、これらの知見に基づき、菌糸長、菌糸体積、および菌糸幅という3つの形態学的指標を定量化するための標準化されたワークフローを構築しました。さらに、これらの形態学的因子を用いて、倍数性の変動および接合型遺伝子座の状態が、分泌された誘導分子に反応するC. albicansの形態学的特性にどのように影響するかを評価しました。
ここで説明した非接触型の手法は、種を越えた可溶性シグナリング因子の形態計測的な結果を可視化および分析するためのシンプルな実験的枠組みを提供します。メンブレンインサートウェルプレートは、活性化した培養物間の双方向拡散を可能にする一方で、CFSベースのアッセイは、必要な誘導成分をダウンストリームの標的培養物とは独立して回収できるため、スケールアップ可能な形式となります。アッセイの整合性を維持するには、メンブレンインサートウェルプレートの設定において、約1:50(C. albicans対C. glabrata)の比率を維持する必要があります。この濃度勾配により、可溶性誘導分子がメンブレンバリアを越えて十分に流入することが保証されると同時に、ファルネソールなどの内因性クオラムセンシング阻害剤の蓄積閾値を下回ることができ、これによりC. albicansのフィラメント形成キネティクスの抑制を防ぐことができます31,32。同様に、CFSベースのアッセイにおける重要なステップは、C. glabrataのソース培養物が均一に定常成長期の後期に達するために必要な18時間の培養期間です。C. glabrata培養物の培養期間が12時間未満または24時間より長い場合、回収されたCFSに本研究で検討した特定の誘導分子が最適濃度で含まれている可能性が低くなり、菌糸誘導が不十分になります。CFSを回収するための適切な成長段階や培養物の比率は、新しい実験目的や新しい微生物種の組み合わせに合わせて標準化する必要があります。
異なる実験室環境においてアッセイの再現性を最大化するために、以下の主要な手順の改善を推奨します。すべての二倍体C. albicans株の overnight 培養には、グルコース最小培地 (GMM) の使用を推奨します。GMMの使用により、栄養豊富な YPD 培地で頻繁に見られるバックグラウンドの自動フィラメント形成が抑制されます。このような自動フィラメント形成は他の研究でも観察されていますが、その根本的なメカニズムはまだ解明されていません33。また、高倍率の明視野顕微鏡観察時に妨げとなる光散乱や光学収差を排除するため、画像取得前にポリカーボネート製メンブレンインサートを完全に物理的に除去することを推奨します。
これらの非接触構成は、可溶性シグナル伝達成分の役割を分離するのに役立ちますが、特有の実験上の課題があります。例えば、非接触アッセイでは、不適切な取り扱いによるメンブレンの破裂といった軽微なリスクが発生しやすく、その結果、微生物のクロスオーバーが起こる可能性があります。したがって、サンプリング時にピペットチップを配置する際は、チップがメンブレンではなくインサートのチャンバー壁に触れるよう注意を払う必要があります。さらに、不適切に(大きすぎる)孔径を選択すると、コンパートメント間で物理的な相互汚染が発生することがありますが、これは適切なメンブレン孔径を持つインサートを使用することで容易に解決できます。また、真菌の過剰増殖や広範なバイオフィルムの堆積により、多孔質メンブレンが覆われることがあります。これについては、初期接種量を OD600 = 0.1 に制限し、12 h を超えて培養しないことで対処します。加えて、微生物がデバイスのウェル内で均一に分布せず、メンブレン付近に凝集または付着することがあり、これが光学密度測定における予期せぬバイアスにつながる可能性があります。さらに、これらのシステムは2つの個体群を物理的に分離しているため、細胞同士の直接的な物理的接触に依存する相互作用を再現または評価することはできません。例えば、混合種のバイオフィルム成熟、機械的な共凝集、あるいは細胞壁に固定されたアドヘシンによるシグナル伝達などが挙げられます。これらのプレートベースのアッセイは、初期のフィラメント形成キネティクス(3 h 時点)のエンドポイント・スナップショットを効果的に提供しますが、長期的な増殖ダイナミクスや空間的挙動を捉えることはできません。長期間にわたる連続的なリアルタイム追跡を必要とする研究者には、特殊なマイクロ流体灌流チャネルや自動ライブセルイメージングチャンバーが、より適切な代替手段となる可能性があります。
細胞の幾何学的形状は代謝効率と根本的に結びついており、表面積対体積(SA/V)比が栄養獲得および細胞内輸送の主要な駆動要因となっています。二形性菌および糸状菌において、伸長した菌糸形態への移行は、最適化されたSA/V比を維持するための構造的適応として機能します。これにより、菌糸先端に向けられた代謝プロセスを維持しつつ、伸長した菌糸壁に沿って分散的に栄養を吸収することが可能になります34,35,36,37。しかし、本研究では、形態計測学的スケーリングが異なる倍数性状態や接合型遺伝子座の構成において一様に比例するわけではないことを示しています。
生成された形態計測データセット 〜経由で このトラッキングプロトコルにより、倍数性に相関した明確な構造的なスケーリング傾向が明らかになり、半数体系統は、すべての幾何学的指標において、対応する二倍体株よりも一貫して絶対値が小さいことが示された(図5)。二倍体背景において、ホモ接合体の MATα/α この構成は、~と比較して、フィラメント形成の速度論(長さおよび体積)の向上を示した。 MATa/a または MATa/α これらの条件下での菌株 in vitro 条件。フィラメント形成の亢進はしばしば浸透能の向上に関連しているが、臨床分離株においてなぜ C. albicans 主にヘテロ接合型の二倍体として単離される(MAT(マトリックス)a/α)。免疫能を持つ宿主においては、ヘテロ接合状態にあることが、長期的な共生定着におけるより広範な適応度上の優位性をもたらしている可能性があります。言い換えれば、~の構造的特性が MATa/α 形態型は、宿主の免疫監視に対する生存能が最適化されている。したがって、今後の研究では、これらの標準化された共培養系を活用し、さまざまな選択圧の下で異なる交配型ホモ接合体の相対的な適応度を系統的に評価すべきである。
先行研究により、液胞の形態、分裂・融合のダイナミクス、および構造的拡張が、伸長する真菌フィラメントの内部体積と膨圧の管理において重要な役割を果たすことが報告されています。例えば、いもち病菌Magnaporthe oryzaeでは、細長い栄養菌糸から球状の侵入構造への明確な移行が、液胞組織の変化と密接に連携しています38,39,40。しかし、本プロトコルではC. albicansのフィラメント形成における液胞ダイナミクスを直接的にモニタリングしていないため、これらの細胞内オルガネラの変化を全構造体積に関連付けて追跡することは、今後の研究における有益なアプローチとなります。さらに、真菌由来の特定のセクレトーム成分が、血清などの宿主由来の化学的誘導剤とは異なる形態学的スケーリングキネティクスを誘導する理由を解明するためのさらなる研究が求められます。
本プロトコルで詳述する非接触共培養法は、日和見細菌集団と二形性真菌との間のシグナル伝達ダイナミクスなど、種間およびドメイン間の相互作用を調査するために応用可能です。さらに、これらの96ウェルおよび24ウェル形式はスケールアップが可能であるため、この定量プラットフォームを化合物スクリーニングに利用できます。その例としては、基礎的な細胞生存率に直接影響を与えることなく、セクレトームによって刺激される菌糸形成経路を選択的に阻害する低分子阻害剤や新規抗真菌化合物の同定などが挙げられます。
開示事項
著者は、競合または相反する利益がないことを宣言します。
謝辞
本研究は、RNPに授与されたDBT-Wellcome Trust India Alliance Intermediate Fellowship (IA/I/19/1/504294) の支援を受けて実施されました。KBSSは、Ahmedabad University Special Research Grant (AU/SRG/SAS/20-21/07_KS_03.25) および SERB-Core Research Grant (URBSASE23A6/SERB/23-24/KS_02.27) の支援を受けました。図1で使用されているアイコンは、CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/) ライセンスの下で提供されているServier Medical Art (https://smart.servier.com/)、およびBioArt Source, NIAID, NIHから適応して作成されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.22 μm PES シリンジフィルター | Millipore (Merck) | SLGPR33RS | |
| 寒天(Agar agar) | HiMedia | GRM666 | |
| グルコース | HiMedia | GRM016 | |
| Nunc 24ウェル キャリアプレート(セルカルチャーインサート付、0.4 μm) | Thermo Scientific | 141002 | |
| Nunc BioLite 96ウェル マルチディッシュ(細胞培養処理済み、フラットボトム) | Thermo Scientific | 130188 | |
| プロテオーゼペプトン | HiMedia | RM005 | |
| ウリジン | Sigma | U6381 | |
| 酵母エキス | HiMedia | RM027 | |
| 酵母窒素基(硫酸アンモニウム含有、アミノ酸不含) | HiMedia | M878 |
参考文献
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
再版と許可
