メタボローム、トランスクリプトーム、シングルセル、および機能解析を統合した解析により、SHMT2が肺腺癌におけるSGOCの代謝リプログラミング、侵襲的挙動、および予測される免疫療法の反応性低下のバイオマーカーであることが特定された。
研究記事
SHMT2:侵襲性肺腺がんにおける代謝および免疫バイオマーカー
* These authors contributed equally
この記事について
サマリー
要約
セリン/グリシン一炭素(SGOC)代謝は肺腺癌(LUAD)において頻繁に変化しますが、腫瘍の挙動および予測される免疫療法の反応性との関係はまだ完全には解明されていません。内部抽出エレクトロスプレーイオン化質量分析法を用いて、23組のペアとなるLUAD組織および隣接する正常肺組織のメタボロミクスプロファイリングを実施しました。The Cancer Genome Atlas LUADコホート(TCGA-LUAD)のトランスクリプトームデータおよび臨床データを解析し、SHMT2の発現、予後、変動的に発現する遺伝子、および免疫関連の特徴を評価しました。免疫チェックポイント阻害剤への予測反応性は、Tumor Immune Dysfunction and Exclusion(TIDE)およびThe Cancer Immunome Atlas(TCIA)を用いて評価し、薬剤感受性はoncoPredictを用いて推論しました。SHMT2の細胞分布を調べるために、シングルセルRNA-seqデータを使用しました。実験的検証には、定量逆転写PCR(RT-qPCR)、ウェスタンブロッティング、Human Protein Atlas(HPA)免疫組織化学染色、およびショートヘアピンRNA(shRNA)介在性のSHMT2ノックダウンに続く増殖試験、創傷治癒アッセイ、コロニー形成アッセイが含まれます。メタボローム解析により、LUADにおいてグリシン、セリン、およびトレオニン代謝が顕著に変化したパスウェイであることが特定されました。SHMT2はLUADにおいて発現が上昇しており、全生存期間の悪化および不良な臨床病理学的特徴と関連していました。SHMT2高発現の腫瘍では、細胞周期およびSGOC関連の転写プログラムの濃縮、免疫スコアおよびストローマスコアの低下、そして免疫療法への予測反応性の低下が認められました。シングルセル解析では、B細胞集団においてSHMT2発現の相対的な濃縮が示されました。In vitroにおいて、SHMT2はLUAD細胞で過剰発現しており、そのノックダウンにより増殖、遊走、およびコロニー形成能が抑制されました。総括すると、SHMT2はLUADにおけるSGOC代謝リプログラミング、攻撃的な腫瘍表現型、および免疫的に不利な状態に関連しており、バイオマーカーとしての潜在的な有用性が支持されます。治療標的としての活用には、さらなる薬理学的およびin vivoでの検証が必要です。
概要
肺腺がん(LUAD)は、顕著な分子的な不均一性、早期に転移しやすい傾向、および現在の治療戦略の持続的な効果が限定的であることから、世界的にがん関連死亡の主要な原因となっています1,2。免疫チェックポイント阻害剤(ICI)によってLUADの治療体系は大きく変わりましたが、持続的な臨床的利益を得られるのは一部の患者に限られており、一次耐性と後天性耐性の双方が頻繁に観察されます3,4。このような顕著な患者間の個体差は、腫瘍免疫微小環境を形成し免疫療法の反応性を左右する生物学的決定要因を定義するとともに、患者の層別化と治療成績の向上に活用できる標的となる脆弱性を特定することが急務であることを強調しています。
代謝の再プログラミングは、悪性進行の中心的特徴である5。代謝プログラムの中でも、SGOC代謝は糖分解系からの入力とアミノ酸代謝およびヌクレオチド合成を連結させ、プリン・ピリミジンの産生やメチル基供与体の生成に必要な1炭素ユニットを供給している6。バイオマスの産生以外にも、SGOC代謝はレドックス恒常性に寄与し、メチオニンサイクルと相互作用してDNA、RNA、およびヒストンのメチル化に影響を与えるため、増殖とエピジェネティック制御の接点に位置している7,8。セリンヒドロキシメチルトランスフェラーゼのミトコンドリア型アイソフォームであるSerine hydroxymethyltransferase 2 (SHMT2) は、セリンをグリシンに変換すると同時に 5,10-methylene-tetrahydrofolate を生成し、SGOCネットワークにおけるミトコンドリア1炭素供給の主要なエントリーポイントを構成している9。SHMT2は多くの悪性腫瘍において異常に上昇しており、増殖、浸潤、治療抵抗性、および酸化ストレス適応の亢進に関連している10,11,12,13。また、SHMT2はBRISC複合体を介して炎症性シグナル伝達と交差するが、LUADにおけるSHMT2駆動の直接的な免疫メカニズムはまだ確立されていない14,15。したがって、SHMT2がLUADにおいて臨床的に意義のある代謝表現型を標識するかどうか、またそれが免疫微小環境の特徴や予測される免疫療法への反応とどのように関連しているかについて、統合的な評価が必要である。
腫瘍代謝と抗腫瘍免疫の間の双方向的な相互作用は、現代の癌生物学の中核をなしている16。腫瘍細胞は、栄養素の競合的枯渇、免疫調節代謝物の蓄積、および免疫細胞の分化とエフェクタープログラムを再編する代謝・エピジェネティックな共役を通じて、免疫能を損なわせる可能性がある7,16,17。亢進した一炭素代謝は、T細胞におけるメチル化依存的なプログラムや代謝適応能に影響を及ぼす可能性があるが、これらの影響の方向性と大きさは細胞型や栄養状態に依存する17。適応免疫調節はT細胞以外にも及び、B細胞、抗体応答、抗原提示、および三次リンパ構造(TLS)が免疫療法の有効性に関連していることが示されている18。これらの知見から、プラットフォーム間の整合性のみで因果関係を証明できると仮定せず、バルク腫瘍、シングルセル、および機能的なコンテキストの中で代謝候補を評価できる多層的な解析が求められている。
代謝物の細胞内ソースや表現型への関連性を特定せずに変動した代謝物を同定するメタボロミクス単独の設計や、代謝物の変動を直接的に観察せずにパスウェイの活性を推論するバルクトランスクリプトミクス単独の設計とは異なり、本ワークフローでは、ペア組織のメタボロミクス、バルクおよびシングルセル・トランスクリプトミクス、そしてin vitro機能アッセイを統合しています。これらの階層間での一致性は、候補因子の優先順位付けを裏付け、単一の分析プラットフォームへの依存度を下げます。ただし、得られたエビデンスは、免疫共培養またはin vivoシステムで検証されない限り、免疫調節に関しては相関関係にとどまります。
LUADおよび隣接する正常肺のペア組織メタボロミクスを用いて、まずグリシンに関連する代謝変動を特定しました。次に、TCGAのトランスクリプトームおよび臨床データを統合し、パスウェイの関連性、腫瘍での発現上昇、予後との相関、および実験的な操作可能性に基づき、ミトコンドリアSGOC酵素であるSHMT2を評価しました。続いて、免疫微小環境のプロファイリング、シングルセルマッピング、およびin vitroでの機能検証を行い、代謝変化、酵素の調節不全、細胞分布、および腫瘍細胞の表現型にわたる多層的な仮説生成フレームワークを構築しました。実用的な観点から、このワークフローには新鮮凍結のペア組織が必要です。質量分析による代謝物の同定は半定量的なため、候補となる代謝物は独立して検証する必要があります。免疫療法の予測(TIDE/TCIA)および薬剤感受性の推論(oncoPredict)はトランスクリプトームに基づく計算上の推定値であり、実際のICI治療を受けたコホートにおける臨床的検証に代わるものではなく、仮説を生成するものとして解釈されるべきです。
プロトコル
本研究は、南昌大学第二附属病院の施設審査委員会(IRB)によって承認されました(CDEFYYLK 3-05)。ヘルシンキ宣言に従い、サンプル収集前にすべての患者から書面によるインフォームドコンセントを得ました。生データは、材料表に記載されているソフトウェアおよびウェブのリソースを使用してエクスポートおよび解析されました。
臨床組織の採取
2024年1月から6月の間に外科的切除術を受け、浸潤性肺腺癌と病理学的に診断された患者から、ペアとなる腫瘍組織および対応する遠隔正常肺組織を採取した。検体は執刀医によって切出され、切除後5分以内に処理され、直ちに液体窒素で急凍結し、分析まで保存した。匿名化された臨床病理学的特性は付録表1に記載している。
LUADと正常肺組織を識別するための内部抽出エレクトロスプレーイオン化質量分析法 (iEESI-MS)
組織検体 (1 mm3)は、ハイブリッド線形イオントラップ・静電軌道トラップ質量分析計を用い、正イオンモードのiEESI-MSにより分析した。メタノール抽出溶媒(100%)を以下の速度で供給した。 3.0 µL/min +5 kVのバイアスを印加した。iEESI-MSは1 スキャン範囲はm/z 50~2,000とした。iEESI-MS2 衝突誘起解離を用い、正規化衝突エネルギーを25~35%、分離ウィンドウをm/z 2.0、ダイナミックエクスclusion時間を30秒に設定した。機器の標準手順に従い、毎日外部キャリブレーションを行うことで、質量誤差を維持した。 <5 ppm。中央値正規化後、対数変換を行う。₂ 変換およびオートスケーリングの後、200回の置換テストを用いてOPLS-DAを行った。代謝物はHMDBを用いてアノテーションを行い、パスウェイ解析はKEGGアノテーションを用いて実施した。
質量分析データの処理および代謝物の同定
未加工のMSデータは、メディアン正規化を行った後、対数変換により正規化された。₂ 変換およびオートスケーリング(平均中心化および各変数の標準偏差による除算)を行った。判別可能なm/z特徴量を特定するために、直交部分最小二乗判別分析(OPLS-DA)を用いた。VIPが[以下、数値または条件]の場合、その特徴量は有意な差があるとみなした。 > 1.0, |log₂(FC)| > 0.58、および p < 0.05。特異的な特徴量をMSに供した。2 Human Metabolome Databaseを用いて分析およびアノテーションを行った。その後、KEGGベースのパスウェイ解析(パスウェイ・エンリッチメント解析)を用いて、変動したパスウェイを特定し、パスウェイに関連する酵素の優先順位を決定した。アノテーション済みの変動代謝物を以下に提示する。 付録表2.
TCGAに基づくSHMT2の発現、生存率、および臨床病理学的関連性の解析
TCGA-LUADのRNA-seq発現プロファイルおよび対応する臨床アノテーションを、2025年12月18日にGenomic Data Commonsからダウンロードした。腫瘍サンプル(n = 542)および正常サンプル(n = 59)を対象とした。Fragments per kilobase of transcript per million mapped reads (FPKM) 値は、log2(FPKM + 1) として変換した。予後解析には、生存情報が完全なサンプルのみを含めた。腫瘍および正常組織におけるSHMT2の発現値は、Wilcoxon順位和検定を用いて比較した。患者を、発現値の中央値に基づいてSHMT2高発現群とSHMT2低発現群に分けた。全生存期間は、Kaplan-Meier法およびログランク検定により評価した。腫瘍-リンパ節-転移(TNM)ステージ、年齢、および性別との関連性は、適宜、カイ二乗検定またはWilcoxon検定を用いて評価した。1年、3年、および5年の生存率について、時間依存性受信者動作特性(ROC)曲線を 作成した。すべての統計学的検定は両側検定とした。
発現変動解析および機能濃縮解析(GO/KEGG)
SHMT2高発現群とSHMT2低発現群の間で差がある発現遺伝子(DEGs)を、偽発見率(FDR)< 0.05および |log₂(FC)| ≥ 1を用いて同定しました。結果をボルケーノプロットとして可視化し、上位40個のDEGについて行方向のzスコア正規化を行ったヒートマップを作成しました。Gene Ontology(GO)およびKEGGエンリッチメント解析では、補正後p < 0.05を用いました。ヒト遺伝子の注釈情報は、2025年12月にEnsemblから取得しました。
免疫浸潤、免疫療法の反応予測、および薬剤感受性の推定
ImmuneScore、StromalScore、およびESTIMATEScoreを含む腫瘍微小環境スコアは、ESTIMATEを用いて算出した。免疫細胞組成は、LM22リファレンスセット(2025年12月5日にダウンロード)を用い、1,000回のパーミュテーションを行い、デコンボリューションの p < 0.05であるサンプルを保持することで、CIBERSORTを用いて推定した。SHMT2高発現腫瘍とSHMT2低発現腫瘍の間で群間比較を行った。SHMT2と免疫チェックポイント関連遺伝子とのSpearman相関は、相関行列として可視化した。ImmunophenoscoresはTCIAから取得し、免疫療法の反応性の補完的な予測にはTIDEを用いた。薬剤感受性は、IC50値を推定するために、2023年12月リリースのGDSCでトレーニングされたoncoPredictを用いて推定した。群間差にはWilcoxon検定を用い、連続変数の関連性にはSpearman相関を用いた。
LUADのシングルセルRNA-seq解析
単一細胞トランスクリプトームデータ19 2025年12月20日にGene Expression Omnibusからダウンロードされ、解析された。200~6,000個の特徴量が検出された細胞および < ミトコンドリア転写産物を10%保持した。カウントはスケールファクター10,000のLogNormalizeを用いて正規化した。変動性の高い上位2,000個の遺伝子を選別し、全遺伝子のスケーリングを行った。主成分分析には上位20個の主成分を用い、UMAPには次元1〜20を使用し、クラスタリングの解像度は0.5とした。細胞型の注釈付けにはHuman Primary Cell Atlasのリファレンスを用いた。腫瘍サンプルと正常サンプルの間で細胞型の割合を比較し、スピアマン相関行列を作成した。注釈付けされた各細胞型におけるSHMT2の分布を検討した。細胞周期の状態はcycloneを用いて推論し、リッジプロットで可視化した。
細胞培養
BEAS-2B、H1299、およびA549細胞を、以下の条件で培養した。 37 °C 5% CO₂に設定された加湿インキュベーター内で2 および相対湿度約95%の条件下で、指定された培地およびサプリメントを用いて 材料リスト.
定量リアルタイム逆転写PCR (RT-qPCR)
フェノール系RNA抽出試薬を用いて全RNAを抽出した。抽出したRNAを逆転写マスターミックスを用いてcDNAに逆転写した。逆転写は、次の条件下で実施した。 20 µL ゲノムDNA除去システム 42 °C 2分間、以下の温度で逆転写反応を行う。 50 °C 15分間反応させ、~で停止させる。 85 °C 5秒間。定量PCRは、DNA結合染料ベースのqPCRマスターミックスを用い、リアルタイムPCRシステムで実施した。 95 °C 3分間行い、続いて40サイクルの 95 °C 10秒間、そして 60 °C 30秒間、および以下の融解曲線ステップを 95 °C 15秒間、 60 °C 60秒間、そして 95 °C 15秒間。すべての反応は3連で実施した。相対発現量は、2^-ΔΔCt法を用いて算出した。−ΔΔCt値 GAPDHをハウスキーピング遺伝子とした手法。プライマーのストック溶液は、以下のように調製した。 10 µM 2回蒸留水に溶解し、-度で保存した20 °C 暗所で。プライマー配列は~に記載されている。 付録表3.
ウェスタンブロッティング
全細胞タンパク質をラジオ免疫沈降アッセイバッファーを用いて氷上で30分間抽出し、4 °Cで12,000 x gにて15分間遠心分離した。タンパク質を12% SDS-PAGE(ドデシル硫酸ナトリウム-ポリアクリルアミドゲル電気泳動)で分離し、0.22 µm PVDF(ポリビニリデンフルオリド)膜に転写した。膜を0.1% Tween 20含有Tris緩衝生理食塩水(TBST)に溶解した5% (w/v) 脱脂粉乳で室温にて2時間ブロッキングし、5% 脱脂粉乳-TBSTで希釈したanti-SHMT2 (1:1,000)およびanti-GAPDH (1:2,000)一次抗体とともに4 °Cで一晩インキュベートした。TBST (20 mM Tris-HCl, 150 mM NaCl, 0.1% Tween-20) で8分間の洗浄を3回行った後、膜を西洋わさびペルオキシダーゼ(HRP)標識二次抗体 (1:5,000)とともに室温で1時間インキュベートした。溶液AとBを等量混合して調製した化学発光増強基質を用いてシグナルを検出するため、暗所で室温にて2分間インキュベートし、化学発光イメージングシステムでキャプチャした。
HPA免疫組織化学染色のバリデーション
正常肺組織およびLUADにおけるSHMT2タンパク質の発現パターンを、HPAを用いて評価しました。HPAで「SHMT2」を検索し、代表的な免疫組織化学(IHC)画像と関連する病理学的注釈をダウンロードして比較を行いました。抗体の特異性によるバイアスを最小限に抑えるため、HPAにおいて検証レベルの高い抗体を優先的に使用しました。利用可能な場合は、複数の抗体によるIHC結果を相互参照しました(HPA020543およびHPA020549)。
LUAD細胞におけるSHMT2のノックダウン
LUADにおけるSHMT2の腫瘍細胞内在的な役割を調べるため、shRNAを用いてH1299細胞およびA549細胞でSHMT2のノックダウンを行った。shRNAは、H1プロモーター駆動でピューロマイシン選択可能なレンチウイルスベクターにより運ばれ、ウイルス作製時にパッケージングプラスミドを共導入した。sh-SHMT2はヒトSHMT2のコード領域を標的とし、sh-NCはスクランブル配列を用いたネガティブコントロールとした。調製したウイルスストックのタイターは1 x 10⁸ transducing units/mL以上であり、-80 °Cで保存した。材料表に記載の調製済みsh-SHMT2またはsh-NCレンチウイルス粒子を細胞に感染させた。48時間後、RT-qPCRおよびウェスタンブロッティングによりノックダウン効率を評価した。SHMT2のサイレンシングが確認された細胞のみを、増殖、遊走、およびコロニー形成アッセイに使用した。
細胞増殖アッセイ
細胞増殖はCCK-8アッセイを用いて評価した。トランスフェクションしたH1299細胞およびA549細胞を、1ウェルあたり5 x 10³個の密度で96ウェルプレートに6連で播種した。1、2、3、4、5日目に、各ウェルに10 µLのCCK-8試薬(培地量の10%)を添加し、37 °Cで2時間インキュベートした。450 nmにおける吸光度を測定し、これを細胞生存率の指標とした。
創傷治癒アッセイ
細胞遊走能を評価するために、創傷治癒アッセイ(ウウンドヒーリングアッセイ)を実施した。形質導入したH1299細胞およびA549細胞を6ウェルプレートに播種し、90–95%のコンフルエンスまで培養した。滅菌済みの200 µLピペットチップを用いて直線的な創傷を作成し、剥離した細胞をリン酸緩衝生理食塩水で緩やかに洗浄して除去した。その後、細胞を無血清または低血清培地で維持し、倒立顕微鏡下で0 hおよび24 hに創傷領域を撮影した。創傷の閉鎖率は、材料表に記載の画像解析ソフトウェアを用いて定量化し、初期の創傷面積に対する減少率(%)として算出した。
コロニー形成アッセイ
コロニー形成能分析のため、トランスフェクションしたH1299およびA549細胞を6ウェルプレートに1ウェルあたり800個の密度で播種し、培養中に顕微鏡での観察を行いながら、可視的なコロニーが形成されるまで約10〜14日間培養した。コロニーを4%パラホルムアルデヒドで室温にて30分間固定し、0.1%クリスタルバイオレットで室温にて15分間染色した。50個以上の細胞を含むコロニーを光学顕微鏡下でカウントした。
in vitro実験の統計解析
すべてのin vitro実験は、独立して少なくとも3回行われた。データは平均値 ± 標準偏差として提示している。2群間の比較にはStudentのt検定を用い、p < 0.05を統計的に有意とみなした。
結果
組織メタボロミクスにより、LUADにおいて広範な代謝リモデル化が起こり、特にグリシン関連経路が顕著に濃縮されていることが明らかになった
LUAD患者23名の腫瘍組織および隣接する正常肺組織のペアをdirect iEESI-MSでプロファイリングしました。患者特性および代謝物の差分的アノテーションは、Supplementary Table 1およびSupplementary Table 2に記載されています。log2標準化後、OPLS-DAにより腫瘍と正常組織の代謝プロファイルに明確な分離が認められました(R2X = 0.824, R2Y = 0.968, Q2 = 0.757)(Figure 1A)。モデルの信頼性は、200回の置換テストによってさらに裏付けられ、切片はR2 = 0.789およびQ2 = −0.451でした(Figure 1B)。事前に設定した基準(variable importance in projection (VIP) > 1、|log2(FC)| > 0.58、およびp < 0.05)を用いて、45個の差分的m/z特徴量を同定しました(Figure 1C)。MS/MSデータの取得とHMDBアノテーションにより、グリシン、セリン、ブタノンを含む6つの変動した内因性代謝物が得られました(Supplementary Table 2)。KEGGエンリッチメント解析により11のパスウェイが同定され、その中でもグリシン、セリン、およびスレオニン代謝が最も顕著であり(Figure 1D)、LUADにおけるグリシン関連の代謝リマデリングが示唆されました。
TCGA-LUADにより、腫瘍におけるSHMT2の上昇および高発現と予後不良との関連が確認された
SHMT2は、SGOC代謝のミトコンドリア進入点に直接位置していること、TCGA-LUADにおいて腫瘍関連の有意な発現上昇が認められること、全生存期間との関連があること、および実験的な摂動への適合性という4つの基準が一致したことから優先的に選定された。TCGA-LUADのRNA-seqデータでは、正常肺組織よりも腫瘍においてSHMT2のlog2(FPKM + 1)発現が有意に高いことが示された(図2A). 中央値を用いたカットオフによるカプラン・マイヤー解析の結果、SHMT2の高発現は全生存期間の悪化と相関していた(図2B)。さらに、探索的な臨床病理学的解析により、腫瘍ステージおよびリンパ節の状態との関連性が示唆された(図2C)、一方、時間依存性ROC解析によりAUC値が得られた > 1年、3年、および5年時点で0.70(図 2D).
SHMT2高発現腫瘍は、細胞周期進行およびSGOC代謝軸が濃縮された転写プログラムを示す
SHMT2に関連する生物学的プログラムを明らかにするため、差分的発現解析の前に、TCGA-LUAD腫瘍をSHMT2発現量の中央値でSHMT2高発現群とSHMT2低発現群に分けた(図 3A)。上位40個の差分的発現遺伝子のヒートマップでは、群ごとに明確な発現パターンが示された(図 3B)。GOエンリッチメント解析により、細胞周期の進行、染色体分離、および有糸分裂(図 3C)が特定され、SHMT2高発現の増殖性転写表現型を記述するための解析的根拠が得られた。また、KEGGエンリッチメント解析では、グリシン、セリン、およびトレオニン代謝(図 3D)が強調されており、これはSHMT2単独の変化ではなく、協調的なSGOC関連の転写が起こっていることを示唆している。
SHMT2の高発現は、免疫的に不利な微小環境、予測される免疫療法のベネフィットの低下、および特異的な薬剤感受性パターンと関連している
ESTIMATEを用いた腫瘍微小環境プロファイリングにより、SHMT2高発現群においてImmuneScoreおよびStromalScoreの値が低いことが明らかになりました(p < 0.001)(図 4A)。CIBERSORTによるデコンボリューションでは、メモリーB細胞、静止期メモリーCD4 T細胞、単球、および静止期マスト細胞の割合が低く、一方で活性化メモリーCD4 T細胞および濾胞性ヘルパーT細胞の割合が高いことが示唆されました(図 4B)。相関分析の結果、SHMT2はBTLA、TNFSF15、およびCD28と正の相関を示し、CD160およびTNFSF14とは負の相関を示すことが特定されました(図 4C)。TIDEおよびTCIA由来のimmunophenoscoreを用いた補完的なトランスクリプトームベースの予測では、SHMT2高発現の腫瘍において免疫療法の予測ベネフィットが低いことが示されました(p < 0.05)(図 4D)。これらの推定値は、実際に臨床治療を受けたLUADコホートから得られたものではなく、したがって実際の治療耐性を証明するものではありません。
薬剤感受性は実験的に測定したのではなく、計算によって推論した。SHMT2高発現の腫瘍では、グリコーゲン合成酵素キナーゼ-3阻害剤およびセルメチニブに対して予測IC50値が低かったが、タラゾパリブおよびPLK1阻害剤に対する予測感受性は低かった(図4E–H)。シタラビン、イリノテカン、パルボシクリブを含むさらに9種類の薬剤に対する予測感受性の低下は、付録図1A–Iに示されている。これらの知見は候補となる仮説であり、臨床的または薬理学的な有効性を確立するものではない。
単一細胞解析により、LUADにおける明確な細胞組成が明らかになり、B細胞がSHMT2を発現する主要な細胞集団であることが特定された
腫瘍微小環境内におけるSHMT2の細胞分布を調べるため、LUADのシングルセルRNA-seqデータを解析した。UMAPクラスタリングにより、B細胞、血管内皮細胞、上皮細胞、T細胞、およびその他の主要なコンパートメントが特定された(図5A)。細胞型の割合は、腫瘍組織と隣接する正常組織の間で異なっており(図5B–C)、B細胞とT細胞の割合には正の相関が認められた(p < 0.001)(図5D)。SHMT2の発現はB細胞コンパートメントで比較的濃縮されていたが、上皮細胞においても検出された(図5E)。転写物の検出のみでは細胞機能や悪性状態を確定できないため、これらの結果は局在に関する仮説として解釈される。SHMT2の腫瘍細胞自律的な役割については、LUAD細胞株を用いて別途検討した。
単一細胞レベルでの細胞周期解析は、細胞型間で正規化したG1期、S期、およびG2/M期のスコアを算出することで行った。G1スコアは0付近に集中していたが、SスコアおよびG2/Mスコアはより広範な分布を示した(付随図2) および顕著な細胞型の不均一性(図 5F)。これらの知見は、LUADの微小環境内に増殖状態の不均一性が存在することを示しており、バルクGO/KEGG解析で同定された細胞周期および有糸分裂のシグネチャーと一致している。
実験的検証によりSHMT2の過剰発現が確認され、SHMT2のノックダウンがLUAD細胞における悪性表現型を抑制することが示された
バイオインフォマティクスによる知見を検証し、SHMT2の腫瘍細胞内固有の役割を評価するため、まず正常気管支上皮細胞(BEAS-2B)およびLUAD細胞株(H1299およびA549)において発現を検討した。これは、バルクTCGAデータおよびシングルセル解析における上皮細胞での検出結果と一致している(Figure 5E)。RT-qPCRの結果、H1299およびA549細胞におけるSHMT2 mRNAレベルは、BEAS-2B細胞よりも高いことが示され(Figure 6A)、ウェスタンブロッティングにより、より高いタンパク質発現が確認された(Figure 6B–C)。また、代表的なHPA免疫組織化学染色像においても、正常肺組織と比較してLUADでより強いSHMT2染色が認められた(Figure 6D)。LUADにおけるSHMT2の生物学的機能をさらに調査するため、shRNAを用いてH1299およびA549細胞におけるSHMT2をサイレンシングした。RT-qPCR解析により、両細胞株において、sh-NC群と比較してsh-SHMT2群でSHMT2 mRNA発現が著しく減少していることが確認された(Figure 6E)。同様に、ウェスタンブロッティングにより、ノックダウン後にSHMT2タンパク質発現が効果的に抑制されていることが示された(Figure 6F–G)。
機能アッセイの結果、SHMT2のノックダウンによりLUAD細胞の悪性表現型が著しく損なわれることが示された。CCK-8アッセイにより、SHMT2のサイレンシングはH1299およびA549細胞の両方において増殖能を著しく抑制し、その差は時間の経過とともに顕著になることが明らかになった(図6H)。また、創傷治癒アッセイにより、SHMT2の枯渇はコントロール細胞と比較して、両方のLUAD細胞株の遊走能を有意に低下させることが示された(図6I)。同様に、コロニー形成アッセイでは、SHMT2のノックダウンがH1299およびA549細胞のコロニー形成能を有意に低下させることが実証された(図6J)。以上の結果を総合すると、SHMT2はLUAD細胞の増殖、遊走、およびコロニー形成能を促進しており、LUADにおける腫瘍形成促進的な役割を裏付けている。
データの利用可能性:
図の根拠となるデータを含む、本研究の結果を裏付けるすべての生データは、Zenodo(https://doi.org/10.5281/zenodo.20676134)で公開されています。
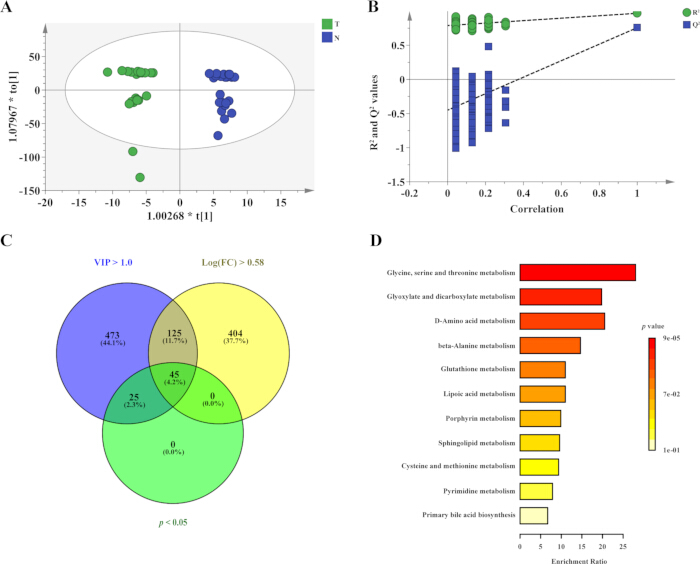
図1: 組織メタボロミクスにより、LUADにおけるグリシン関連の代謝リプログラミングが明らかになった。(A) LUAD組織(T、緑)と対照となる隣接正常組織(N、青)の分離を示すOPLS-DAスコアプロット。(B) R2およびQ2値に基づいてOPLS-DAモデルの安定性と予測能を評価した置換検定。(C) VIPスコア > 1.0、|log2(FC)| > 0.58、および p < 0.05によって抽出された差分的特徴量の重複を示すベン図。45の特徴量が保持された。(D) 差分代謝物のKEGGベースの代謝物セット濃縮解析。棒の長さは濃縮比を示し、色の強さは p 値を表す。略称:VIP = variable importance in projection; FC = fold change。 この図の拡大版を表示するには、こちらをクリックしてください。
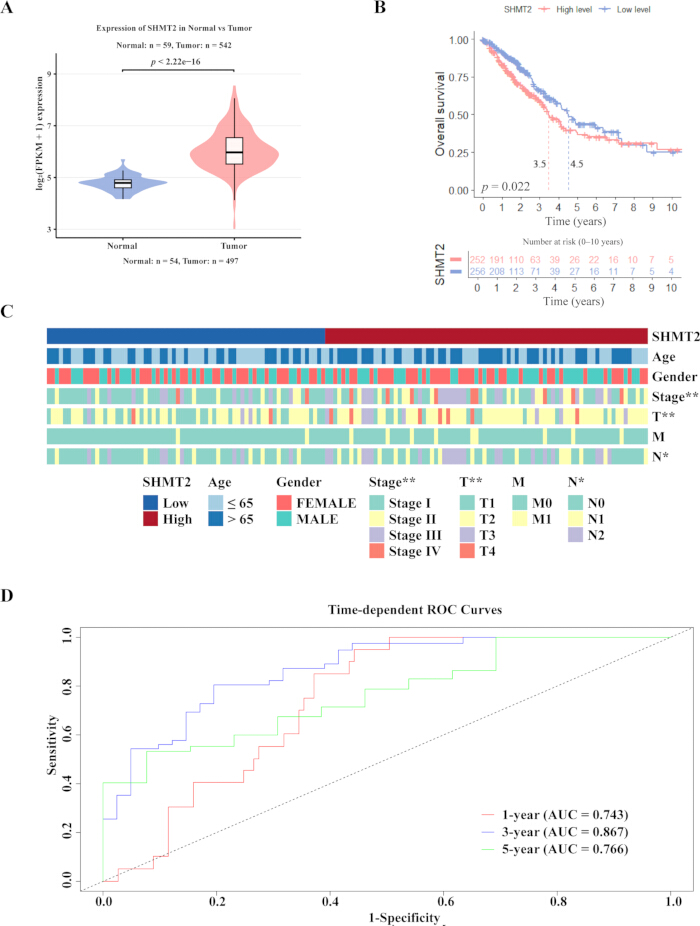
図2SHMT2はLUADで発現が上昇しており、TCGA-LUADにおいて不良な予後を予測する。 (A) TCGA-LUADのRNA-seqデータを用い、正常肺組織(n = 59)とLUAD腫瘍(n = 542)におけるSHMT2の発現を比較したバイオリンプロット。(B) SHMT2発現量の中央値で分けた患者のカプラン・マイヤー全生存曲線。SHMT2高発現群をピンク、SHMT2低発現群を青で示す。(C) SHMT2発現と、年齢、性別、総合病期(ステージI–IV)、原発腫瘍病期(T1–T4)、区域リンパ節病期(N0–N2)、遠隔転移病期(M0–M1)を含む clinicopathological characteristics(臨床病理学的特性)との関連を示すヒートマップ。*は、SHMT2高発現群とSHMT2低発現群との間の統計的に有意な差を示す(*p < 0.05; **p < 0.01; カイ二乗検定)。(D) LUAD患者における1年、3年、および5年の全生存期間を予測するためのSHMT2発現の予後予測能を評価した時間依存性ROC曲線。対応するAUCをパネル内に示す。略称:SHMT2 = セリンヒドロキシメチルトランスフェラーゼ2、FPKM = 100万回マッピングリードあたりの転写物キロベースあたりの断片数、ROC = 受信者動作特性、AUC = 曲線下面積。 この図の拡大版を表示するには、ここをクリックしてください。
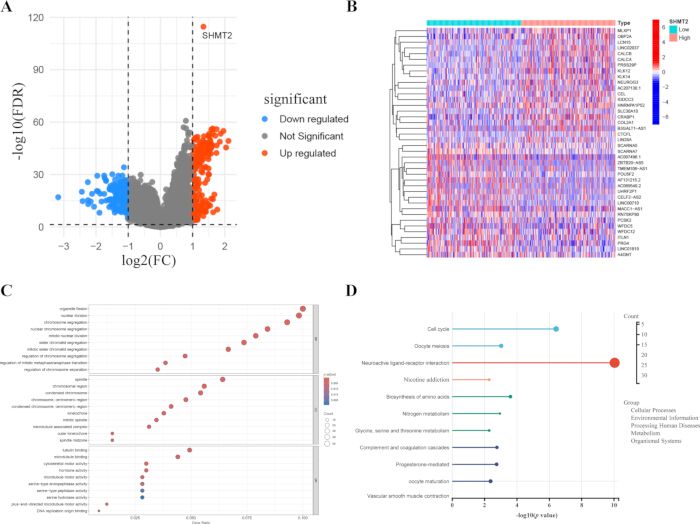
図3SHMT2高発現腫瘍とSHMT2低発現腫瘍のトランスクリプトームプロファイリングにより、SGOC/一炭素代謝および増殖プログラムが浮き彫りになった。 (A) SHMT2高発現およびSHMT2低発現のLUAD腫瘍間における変動遺伝子を示すボルケーノプロット。発現上昇遺伝子を赤色で、発現低下遺伝子を青色で、有意差のない遺伝子を灰色で示している。(B) 非階層的クラスタリングを用いた代表的な変動遺伝子(DEG)のヒートマップ。 (C) 発現変動遺伝子のジーンオントロジー(Gene Ontology)濃縮分析。バブルの大きさは遺伝子数を示し、色は補正済みp値を表す。 p 値を示し、x軸は遺伝子比率を示している。 (D) 発現変動遺伝子のKEGGパスウェイ濃縮分析。ドットの大きさは遺伝子数を示し、x軸は−log₁₀(p 値)。略語:SHMT2 = セリンヒドロキシメチルトランスフェラーゼ2、FDR = 偽発見率、FC = フォールドチェンジ。 こちらの図の拡大版を表示するには、ここをクリックしてください。
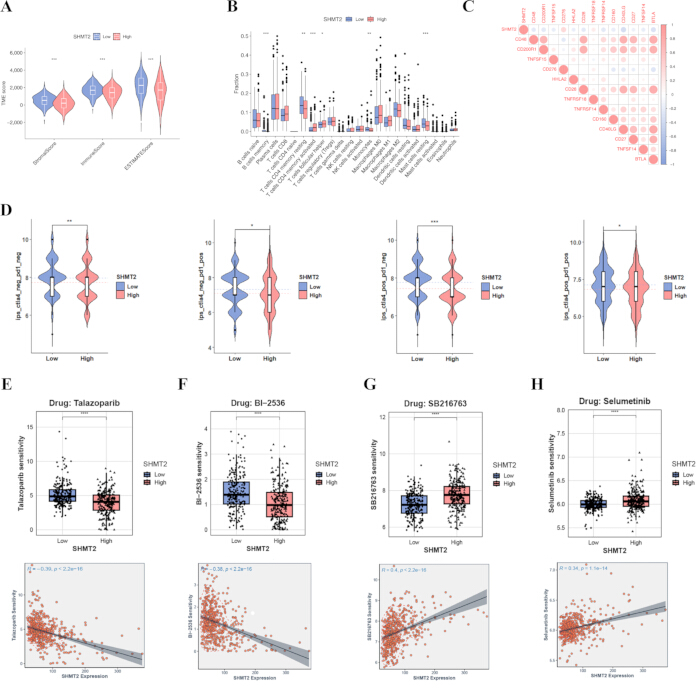
図4SHMT2の発現は、腫瘍の免疫コンテクスチャー、予測される免疫療法の奏効率、および薬剤感受性と関連している。 (A) SHMT2高発現群とSHMT2低発現群におけるTMEスコア、ESTIMATEスコア、ストローマスコア、免疫スコア、および腫瘍純度の比較。 (B) CIBERSORTにより推定された、SHMT2低発現腫瘍とSHMT2高発現腫瘍における免疫細胞浸潤の比較。(C) SHMT2と免疫チェックポイント関連遺伝子のスピアマン相関行列。円の大きさは相関の強さを反映し、色はスピアマンのρ(正から負まで)を表している。(D) 4つの免疫チェックポイント阻害剤の設定(CTLA4-/PD-1-、CTLA4-/PD-1+、CTLA4+/PD-1-、CTLA4+/PD-1+)における免疫フェノスコアの比較。SHMT2高発現腫瘍において予測される有益性が低下していることを示している。 (E) SHMT2高発現群およびSHMT2低発現群におけるTalazoparibへの予測感受性を、推定IC₅₀値(上)およびSHMT2発現量と予測薬剤感受性との相関(下)として示す。(F) SHMT2高発現群およびSHMT2低発現群におけるBI-2536に対する予測感受性。上段に推定IC₅₀値、下段にSHMT2発現量と予測薬剤感受性との相関を示す。(G) SHMT2高発現群およびSHMT2低発現群におけるS63845への予測感受性を、推定IC₅₀値(上)およびSHMT2発現量と予測薬剤感受性との相関(下)として示した。 (H) SHMT2高発現群およびSHMT2低発現群におけるSelumetinibへの予測感受性。推定IC₅₀値(上)およびSHMT2発現量と予測薬物感受性との相関(下)を示す。略語:SHMT2 = セリンヒドロキシメチルトランスフェラーゼ2、TME = 腫瘍微小環境、ESTIMATE = 発現データを用いた悪性腫瘍組織における基質細胞および免疫細胞の推定、IC₅₀ = 50%阻害濃度。 こちらの図の拡大版を表示するには、ここをクリックしてください。
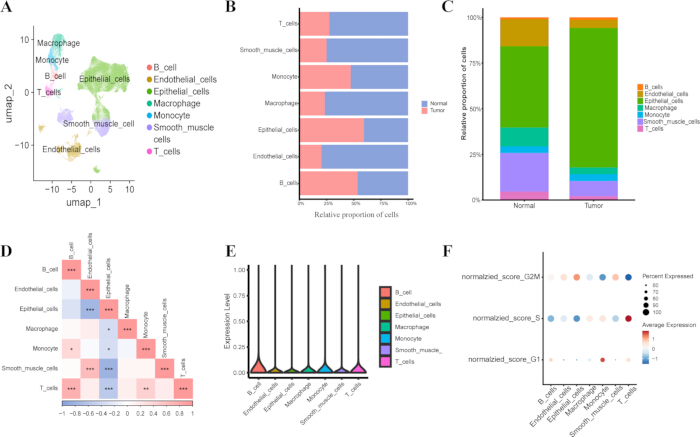
図 5: シングルセル解析により、LUADにおける細胞組成の変化、SHMT2発現の偏り、および細胞周期の不均一性が明らかになった。(A) LUADおよび隣接する正常肺組織から得られた公開シングルセルトランスクリプトームのUMAP可視化。アノテーションされた細胞型で色分けしている。(B) 正常サンプルおよび腫瘍サンプルにおける細胞型の相対的比率を横方向の積み上げ棒グラフで示す。(C) 全体的な細胞組成を縦方向の積み上げ棒グラフで示す。(D) 細胞型比率のSpearman相関ヒートマップ。赤色は正の相関、青色は負の相関を示す(*p < 0.05, **p < 0.01, ***p < 0.001)。(E) 主要な細胞型におけるSHMT2発現のバイオリンプロット。(F) 同定された細胞型におけるG1期、S期、およびG2/M期の細胞周期スコアを示すドットプロット。ドットの大きさは細胞の割合を、色は平均細胞周期スコアを示す。略語:UMAP = Uniform Manifold Approximation and Projection。 この図の拡大版を表示するには、ここをクリックしてください。
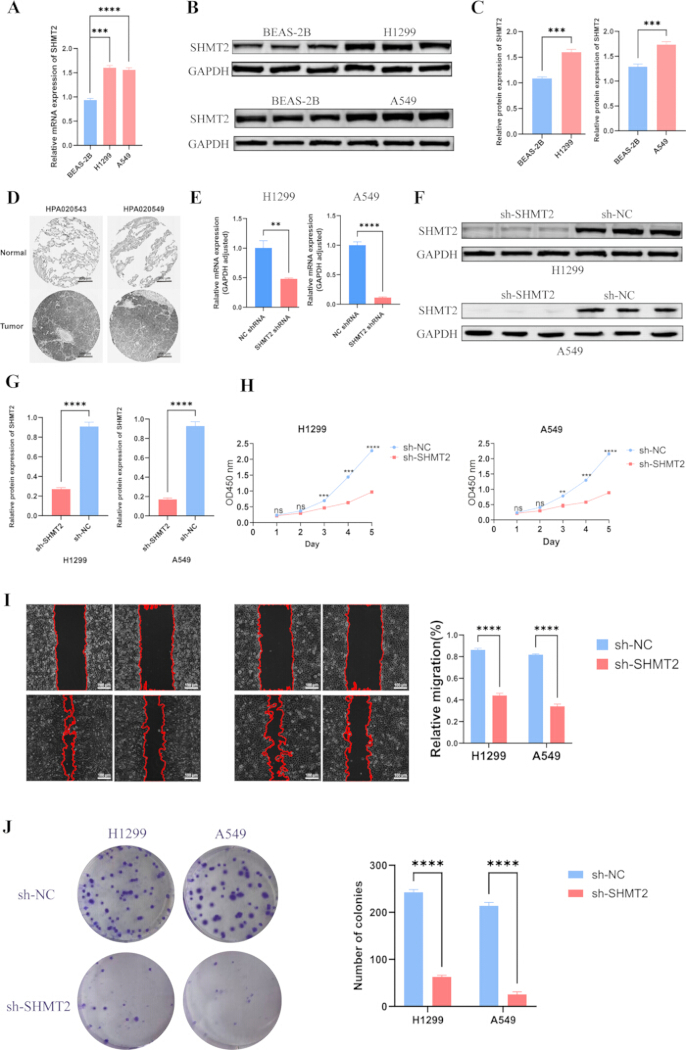
図 6: LUAD細胞におけるSHMT2発現の実験的および組織学的検証、ならびにSHMT2ノックダウンの機能的影響。(A) 正常気管支上皮細胞(BEAS-2B)およびLUAD細胞株(H1299およびA549)におけるSHMT2 mRNA発現のRT-qPCR解析。(B) BEAS-2B、H1299、およびA549細胞におけるSHMT2タンパク質発現のウェスタンブロット解析(ローディングコントロールとしてGAPDHを使用)。(C) H1299およびA549細胞におけるGAPDHで標準化したSHMT2タンパク質発現量の、BEAS-2Bに対する相対的なデンシトメトリー定量。(D) 抗体HPA020543およびHPA020549を用いた、HPA由来の正常肺およびLUAD組織におけるSHMT2の代表的な免疫組織化学(IHC、x20)画像。(E) sh-SHMT2またはsh-NCを導入したH1299およびA549細胞におけるSHMT2ノックダウン効率のRT-qPCR検証。(F) H1299およびA549細胞におけるSHMT2ノックダウン後のSHMT2タンパク質発現のウェスタンブロット解析。(G) SHMT2ノックダウン後における、GAPDHで標準化したSHMT2タンパク質レベルのデンシトメトリー定量。(H) H1299およびA549細胞の細胞増殖に対するSHMT2ノックダウンの影響を示すCell Counting Kit-8(CCK-8)アッセイ。(I) H1299およびA549細胞におけるSHMT2ノックダウン後の遊走能低下を示す創傷治癒アッセイ(x200);右パネルは相対的遊走の定量を示す。(J) H1299およびA549細胞におけるSHMT2ノックダウン後のコロニー形成能低下を示すコロニー形成アッセイ;右パネルはコロニー数の定量を示す。データは少なくとも3回の独立した実験から得られた平均値 ± SDで示されている。*p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001。略語:sh-NC = ショートヘアピンRNAネガティブコントロール;sh-SHMT2 = SHMT2を標的とするショートヘアピンRNA。こちらのリンクをクリックして、この図の拡大版を表示してください。
補足図1:TCGA-LUADにおいて、SHMT2の発現は予測薬剤感受性と逆相関している。 TCGA-LUADサンプルについて薬剤応答性を予測し、中央値で定義したSHMT2低発現群およびSHMT2高発現群の腫瘍間で比較した。各化合物について、上段のパネルは、IC50における群間差を示している。50 (半数最大抑制濃度)に基づく反応スコア(値が低いほど予測感受性が高いことを示す)。下パネルは、SHMT2の連続的な発現量と予測感受性との関連を、適合させた線形回帰直線および95%信頼区間とともに示している。群間比較には両側ウィルコクソン順位和検定を用い、相関はSpearmanのrおよび対応する p 値 (* p < 0.05, ** p < 0.01, *** p < 0.001). (A) シタラビン (B) GDC0810. (C) P22077. (D) イリノテカン (E) AZD4547. (FパルボシクリブG) VE821. (HI-BRD9Iオキサリプラチンこちらのファイルをダウンロードするには、ここをクリックしてください。
補足図2:シングルセル解像度における細胞型別の細胞周期相スコア分布のリッジプロット可視化。リッジプロットは、B細胞、T細胞、上皮細胞、マクロファージ、単球、内皮細胞、平滑筋細胞を含む主要な細胞型における正規化された細胞周期スコアの分布を示している。(A)G1期スコア。(B)S期スコア。(C)G2/M期スコア。分布の形状とピーク位置の違いは、LUAD微小環境内の細胞集団間における増殖状態の不均一性を示している。ここをクリックしてファイルをダウンロードしてください。
補足表1:ペア組織メタボロミクスに組み込まれたLUAD患者23名の匿名化された臨床病理学的特性。 変数は、患者番号、性別、年齢、原発腫瘍ステージ(T)、区域リンパ節ステージ(N)、および総合病理ステージである。 こちらのリンクをクリックしてファイルをダウンロードしてください。
補足表2:LUADとペアとなる隣接正常組織間で同定された変動代謝物。 本表には、各変動代謝物のHMDBアクセッション番号、代謝物名、分子式、VIPスコア、log₂(FC)、およびp値が記載されている。略語:HMDB = Human Metabolome Database、VIP = variable importance in projection、FC = fold change。こちらをクリックしてファイルをダウンロードしてください。
補足表3:定量逆転写PCR(RT-qPCR)に使用したプライマー配列。この表には、遺伝子発現解析に使用した標的遺伝子、プライマーの方向(フォワードまたはリバース)、およびプライマー配列(5′–3′)が記載されています。こちらのリンクからファイルをダウンロードしてください。
ディスカッション
本研究では、メタボロミクスによる探索、酵素の優先順位付け、トランスクリプトームによる解釈、免疫コンテキストの評価、シングルセルレベルでの局在化、および腫瘍細胞の機能検証からなる逐次的なフレームワークを用いました。解析の結果、LUADにおいてグリシン関連およびSGOCの代謝リモデルリングが特定され、SHMT2が予後の悪化および計算予測による免疫療法の便益の低下と関連していることが明らかになりました。この優先順位付けの手法は、単一のオミクスレイヤーに依存する場合よりも強力ですが、免疫介在性の因果メカニズムを確立するものではありません。
SHMT2は、セリンからグリシンへの変換および一炭素単位の生成における主要なミトコンドリアの進入点となります。TCGA-LUADの解析では、腫瘍に関連したSHMT2のアップレギュレーションが示されており、高発現が生存率の低下および不利な臨床病理学的特徴と関連していることが明らかになりました。これらの知見は、SHMT2をがん細胞の生存、増殖、浸潤、および治療抵抗性と結びつける研究と一致しています20,21,22,23。さらなる研究により、SHMT2がエピジェネティックな制御に関連していることが判明し、選択的な一炭素酵素阻害剤の開発が促進されました24,25。発現変動および濃縮解析により、SHMT2は単独の遺伝子レベルの変化ではなく、協調的なSGOCおよび細胞周期プログラムの中に位置づけられることがさらに示されました。したがって、代謝経路の濃縮とSHMT2に関連する転写との間の一致は、オミクス層全体で相関関係に留まるものの、候補の優先順位付けを強化するものです。
SHMT2高発現腫瘍と免疫不全的な状況との関連性は、互いに排他的ではない3つの経路で説明できます。第一に、腫瘍細胞によるセリン、グリシン、葉酸結合ワンカーボンユニット、およびメチオニンサイクル基質の需要増加が、栄養分配を変化させ、隣接するリンパ球の代謝適応能を低下させる可能性があります。第二に、SHMT2によって維持されるNADPH、グルタチオン、およびヌクレオチドの産生が、酸化ストレスや栄養ストレス下での腫瘍細胞の生存能を向上させ、その結果、微小環境に放出されるストレス関連シグナルを変化させる可能性があります。第三に、ワンカーボンフラックスとS-アデノシルメチオニンの利用能が、悪性細胞および免疫細胞の両方におけるメチル化依存的なプログラムに影響を与える可能性があります26,27,28,29。これらのメカニズムは生物学的に妥当ですが、本研究のバルク解析およびシングルセル解析では、局所的な代謝物、サイトカイン分泌、または免疫細胞機能を直接的に測定していません。したがって、SHMT2高発現腫瘍においてTIDE/TCIAが予測した治療利益が低いことは、SGOC活性と免疫不全を結びつける仮説として解釈されるべきであり、SHMT2が臨床的な免疫療法の耐性を引き起こすという証明として捉えるべきではありません。
単一細胞解析により、さらなる構造的な解像度が得られました。公開されているsingle-cell RNA-seqデータの解析から、正常な肺組織と比較して腫瘍組織では細胞組成が変化しており、B細胞とT細胞の割合に正の相関があることが示されました。これは、協調的な獲得免疫と一致する結果です30。SHMT2の発現はB細胞で比較的濃縮されていましたが、上皮細胞でも検出可能でした。B細胞および三次リンパ構造は、抗原提示、局所的な抗体応答、および免疫チェックポイント阻害剤への反応をサポートし得るため、この観察結果は重要です18,31,32,33。しかしながら、これにより責任を担うB細胞サブタイプが特定されたわけではなく、またB細胞におけるSHMT2が有益であるか有害であるかが確立されたわけでもありません。バルク解析と単一細胞解析の結果は、ともに細胞周期活性に収束しました。SHMT2高発現の腫瘍では、有糸分裂および染色体分離に関する用語が濃縮されており、S期およびG2/M期のスコアは細胞型によって異なっていました。ミトコンドリアの一炭素代謝はヌクレオチド前駆体を供給するため、これらの知見は、SHMT2に関連するSGOC活性と増殖要求との間の妥当な関連性を支持しています。
Xiらは、マクロファージのエフェロサイトーシスを亢進させ、M2様極性を促進し、食道がんを免疫抑制へと再構築するTP63-RAC2プログラムを同定し34、腫瘍とマクロファージの相互作用の直接的な例を示した。Jiangらは、膵がんにおけるSATB2が腫瘍細胞の増殖および遊走、さらにはT細胞の細胞毒性の変化に関連していることを明らかにし35、腫瘍内因性の効果と免疫学的効果が同時に生じることを示した。対照的に、Liuらは、TRIM29がNEFLの分解とPI3K/AKTの活性化を通じて膠芽腫を駆動することを明らかにした36。この主に腫瘍内因的なメカニズムは、あらゆる有害な免疫関連性をサイトカインシグナルに帰属させることへの警鐘となっている。Zhaiらは、肝細胞がんにおけるWDR54を介したNF-κBシグナルの増幅を同定し37、悪性挙動を微小環境シグナルに結びつけることができるサイトカイン応答性炎症ノードを強調した。Yinらは、共培養およびin vivo実験を用いて、頭頸部がんにおいてPLAUが神経成長因子に関連する神経周囲相互作用と協調することをしめし38、可溶性因子および細胞外因子が非免疫性のストローマクロックを組織化できることを実証した。最後に、Liuらは、サイトカイン駆動のJAK/STATシグナルの文脈依存的な二面的な役割をまとめた。持続的なIL-6/STAT3およびIFN関連シグナルは、PD-L1の発現、抑制性骨髄系状態、およびT細胞の疲弊を促進しうる一方で、適切にタイミングを合わせたシグナルは抗原提示および抗腫瘍免疫にも必要である39。総括すると、これらの研究は、SGOCの再プログラミングがサイトカイン、マクロファージ、ストローマ、またはリンパ球の状態を修飾するかどうかを検証するための生物学的根拠を与えるが、LUADにおけるSHMT2特異的なサイトカイン回路を確立したものはない。したがって、本研究のTIDE/TCIAによる知見は、メカニズム解明に向けた検証可能な方向性を定義するものである。
酸化還元調節は、特に重要なメカニズム的な背景を提供します。DeNicolaらは、非小細胞肺癌において、NRF2がATF4を介してPHGDH、PSAT1、およびSHMT2を調節し、グルタチオンおよびヌクレオチドの産生をサポートすることで、このプログラムを予後不良に結びつけていることを実証しました40。より最近では、Zhangらが、HER2阻害を生き延びた食道腺癌細胞にNRF2が蓄積することを示しました。NRF2のノックダウンはラパチニブの細胞毒性を増強させた一方で、NRF2の持続的な発現は感受性を低下させ、NRF2依存性を生じさせました41。後者の研究ではSHMT2阻害を直接的に検証していませんが、これらの知見を総合すると、SHMT2はNRF2がサポートする酸化還元および生合成プログラムの一部として機能している可能性が示唆されます。LUADにおいて、この仮説はKEAP1/NFE2L2の状態によって層別化し、SHMT2の摂動が活性酸素種を選択的に増加させるか、あるいはNRF2活性モデルにおいて治療感受性を回復させるかを検討することで検証されるべきです。
メタボロミクスのみ、またはトランスクリプトミクスのみの解析と比較して、統合ワークフローでは、組織レベルのメタボライトシグナルを、パスウェイに関連する遺伝子発現、細胞型の分布、および摂動フェノタイプに結びつけることができる。この設計により候補の優先順位付けが改善され、公開されているトランスクリプトームまたはシングルセルのコホートを代替に用いることでスケールアップが可能となるが、各レイヤーにおいて異なる変動要因が導入される。摘出後の遅延は低分子化合物の量を変える可能性があるため、迅速で均一な組織凍結が不可欠である。質量分析のドリフト、不安定な全イオンシグナル、または不十分なパーミュテーション性能が認められた場合は、メタボライトの解釈を行う前に、再校正、シグナル品質の確認、および再解析を行う必要がある。バルク解析にはあらかじめ指定したグルーピングおよびフィルタリング閾値が必要であり、シングルセルの結論については、妥当な品質管理およびクラスタリング解像度の設定にわたって検証されるべきである。In vitro 検証では、フェノタイプアッセイの前に、適合する細胞継数、同等のコンフルエンス、均一な創傷幅、および SHMT2 ノックダウンの確認が必要である。これらのチェックポイントにより再現性は向上するが、コホート、プラットフォーム、またはモデル特有の影響を完全に排除することはできない。
いくつかの制限事項が解釈を制約している。組織メタボロミクスのコホート規模が限定的であり、同定された代謝物については標的定量的な検証が必要である。免疫療法の有効性および薬剤感受性は、ICI治療を受けたコホートや薬理学的実験で測定したものではなく、トランスクリプトームに基づくモデルから推定されたものである。シングルセルデータセットはB細胞に偏ったSHMT2発現を示唆しているが、B細胞のサブタイプ、空間的組織化、またはSHMT2依存的な免疫機能までは解明していない。in vitro実験により、遺伝子ノックダウン後の腫瘍細胞の増殖および遊走表現型は確立されたが、サイトカインを介した免疫メカニズムや治療上の安全性は確立されていない。今後の研究では、腫瘍をKEAP1/NFE2L2の状態によって層別化し、SGOCフラックスとサイトカイン分泌を定量化し、SHMT2の摂動を免疫共培養、空間的プロファイリング、薬理学的選択性試験、およびin vivo検証と組み合わせて行うべきである。
要約すると、LUADにおいてSHMT2はSGOCの代謝リマデリング、不良な予後、増殖性転写プログラム、免疫的に不利な腫瘍環境、および計算予測による低い免疫療法の反応性と関連している。シングルセル解析により、B細胞集団においてSHMT2発現が相対的に濃縮されていることが示唆された一方、in vitroでのノックダウンにより、LUAD細胞の増殖、遊走、およびコロニー形成能が低下した。これらの知見は、SHMT2がさらなる検証に値する候補バイオマーカーであることを支持し、代謝と免疫の相互作用を研究するための検証可能な枠組みを提供するものである。
開示事項
著者らは、競合する利害関係がないことを宣言します。
謝辞
著者らは、本研究にご協力いただいた患者様とそのご家族に感謝いたします。また、データを公開しているTCGA、GEO、およびHPAデータベースの寄稿者に謝意を表します。本研究は、江西省重点研究開発計画(助成番号:20223BBG71009)および中国国家自然科学基金(助成番号:81860379および82160410)の助成を受けて実施されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| A549細胞 | CCL-185 | ATCC | |
| anti-GAPDH抗体 | M1310-2 | Huaan Biotechnology | |
| anti-SHMT2抗体 | D197021 | Sangon Biotech | |
| BEAS-2B細胞 | CRL-9609 | ATCC | |
| Cell Counting Kit-8 (CCK-8) | K1018 | APExBIO | |
| データベース: TCGA / GDC | 2025-12-18 アクセス | National Cancer Institute (NCI) | |
| データベース: GEO | 2025-12-20 アクセス | NCBI | |
| データベース: HMDB | 2025-12-12 アクセス | Human Metabolome Database | |
| データベース: KEGG | 2025-12-11 アクセス | Kanehisa Laboratories | |
| データベース: Human Protein Atlas | Protein Atlas | ||
| データベース: GDSC | 2023-12 リリース | Sanger Institute | |
| データベース: Ensembl | 2025-12 | EMBL-EBI | |
| データベース: TCIA | 2025-12-10 アクセス | The Cancer Immunome Atlas | |
| H1299細胞 (NCI-H1299) | CRL-5803 | ATCC | |
| HRP標識二次抗体 | D110087 | Sangon Biotech | |
| HiScript II Q Select RT SuperMix | KR116 | Tiangen Biotech | |
| LightCycler 480 System | 5015278001 | Roche | |
| 脱脂粉乳 | 一般的な実験室用試薬 | BD (または使用したもの) | |
| PVDFメンブレン, 0.22 µm | GVHP00010 (または一般的な実験室用試薬) | MilliporeSigma (または使用したもの) | |
| Rパッケージ: pRoloc | 1.40.0 | Bioconductor | |
| Rパッケージ: TCGAbiolinks | 2.26.0 | Bioconductor | |
| Rパッケージ: survival | 3.4-0 | CRAN | |
| Rパッケージ: survminer | 0.4.9 | CRAN | |
| Rパッケージ: timeROC | 1.0.4 | CRAN | |
| Rパッケージ: DESeq2 | 1.38.1 | Bioconductor | |
| Rパッケージ: ggplot2 | 3.4.4 | CRAN | |
| Rパッケージ: pheatmap | 1.0.12 | CRAN | |
| Rパッケージ: clusterProfiler | 4.6.2 | Bioconductor | |
| Rパッケージ: org.Hs.eg.db | 3.16.0 | Bioconductor | |
| Rパッケージ: estimate | 1.0.13 | Bioconductor / GitHub | |
| Rパッケージ: CIBERSORT | 1 | (単独のRスクリプト) | |
| Rパッケージ: corrplot | 0.92 | CRAN | |
| Rパッケージ: TIDE | 0.3.0 | Rパッケージ | |
| Rパッケージ: oncoPredict | 1.1.1 | CRAN / GitHub | |
| Rパッケージ: GEOquery | 2.66.0 | Bioconductor | |
| Rパッケージ: Seurat | 4.3.0 | CRAN | |
| Rパッケージ: SingleR | 1.10.0 | Bioconductor | |
| Rパッケージ: scran | 1.26.0 | Bioconductor | |
| SYBR Green qPCR Master Mix (Universal) | HY-K0501A | MedChemExpress (MCE) | |
| TRIzol Universal Reagent | DP424 | Tiangen Biotech |
参考文献
- Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75(1):10-45.
- Lim ZF, Ma PC. Emerging insights of tumor heterogeneity and drug resistance mechanisms in lung cancer targeted therapy. J Hematol Oncol. 2019;12(1):134.
- Wang M, Herbst RS, Boshoff C. Toward personalized treatment approaches for non-small-cell lung cancer. Nat Med. 2021;27:1331-1340.
- Passaro A, et al. Managing resistance to immune checkpoint inhibitors in lung cancer: treatment and novel strategies. J Clin Oncol. 2022;40:598-609.
- Faubert B, Solmonson A, DeBerardinis RJ. Metabolic reprogramming and cancer progression. Science. 2020;368:eaaw5473.
- Wei S, et al. Targeting serine-glycine-one-carbon metabolism as a vulnerability in cancers. Biomark Res. 2023;11:48.
- Kao KC, Vilbois S, Tsai CH, Ho PC. Metabolic communication in the tumour-immune microenvironment. Nat Cell Biol. 2022;24(11):1574-1583.
- Wong C, Qian Y, Yu J. Interplay between epigenetics and metabolism in oncogenesis: mechanisms and therapeutic approaches. Oncogene. 2017;36:3359-3374.
- Xu M, Pei DS. Serine hydroxymethyltransferase 2: a novel target for human cancer therapy. Invest New Drugs. 2021;39:1671-1681.
- Zeng Y, et al. Roles of mitochondrial serine hydroxymethyltransferase 2 (SHMT2) in human carcinogenesis. J Cancer. 2021;12(19):5888-5894.
- Liberati FR, et al. RNA-mediated inhibition of mitochondrial SHMT2 impairs cancer cell proliferation. Cell Death Discov. 2025;11:369.
- Fu R, et al. SHMT proteins: an emerging set of serine hydroxymethyltransferase in cancer. Cell Signal. 2025;135:111977.
- Zhang Y, et al. SHMT2 promotes cell viability and inhibits ROS-dependent, mitochondrial-mediated apoptosis via the intrinsic signaling pathway in bladder cancer cells. Cancer Gene Ther. 2022;29(10):1514-1527.
- Wens M, et al. Metabolic control of BRISC-SHMT2 assembly regulates immune signalling. Nature. 2019;570:460-464.
- Ivashkiv LB. IFNγ: signalling, epigenetics and roles in immunity, metabolism, disease and cancer immunotherapy. Nat Rev Immunol. 2018;18:545-558.
- De Martino M, Rathmell JC, Galluzzi L, Vanpouille-Box C. Cancer cell metabolism and antitumour immunity. Nat Rev Immunol. 2024;24:654-669.
- Qi Y, et al. One-carbon metabolism shapes T cell immunity in cancer. Trends Endocrinol Metab. 2024;35:961-974.
- Huang D, et al. The single-cell immunogenomic landscape of B and plasma cells in early-stage lung adenocarcinoma. Cancer Discov. 2022;12:2545-2563.
- Dolgalev I, et al. Inflammation in the tumor-adjacent lung as a predictor of clinical outcome in lung adenocarcinoma. Nat Commun. 2023;14:6479.
- Han T, et al. Phosphorylated SHMT2 regulates oncogenesis through m6A modification in lung adenocarcinoma. Adv Sci (Weinh). 2024;11:e2307834.
- Lee GY, et al. Comparative oncogenomics identifies PSMB4 and SHMT2 as potential cancer driver genes. Cancer Res. 2014;74:3114-3126.
- Bernhardt S, et al. Proteomic profiling of breast cancer metabolism identifies SHMT2 and ASCT2 as prognostic factors. Breast Cancer Res. 2017;19:112.
- Yang G, Tan J, Guo J, Wu Z, Zhan Q. Exosome-mediated transfer of circ_0063526 enhances cisplatin resistance in gastric cancer cells via regulating the miR-449a/SHMT2 axis. Anticancer Drugs. 2022;33(10):1047-1057.
- Parsa S, et al. The serine hydroxymethyltransferase-2 (SHMT2) initiates lymphoma development through epigenetic tumor suppressor silencing. Nat Cancer. 2020;1:653-664.
- Cuthbertson CR, et al. A review of small-molecule inhibitors of one-carbon enzymes: SHMT2 and MTHFD2 in the spotlight. ACS Pharmacol Transl Sci. 2021;4:624-646.
- Reina-Campos M, Scharping NE, Goldrath AW. CD8+ T cell metabolism in infection and cancer. Nat Rev Immunol. 2021;21:718-738.
- Bacigalupa ZA, Landis MD, Rathmell JC. Nutrient inputs and social metabolic control of T cell fate. Cell Metab. 2024;36:10-20.
- Li S, et al. Metabolic regulation of immunity in the tumor microenvironment. Cell Rep. 2025;44(11):116463.
- Ouyang Y, et al. S-adenosylmethionine: a metabolite critical to the regulation of autophagy. Cell Prolif. 2020;53(11):e12891.
- Wang R, et al. The interaction of innate immune and adaptive immune system. MedComm. 2024;5(10):e714.
- Teillaud JL, et al. Tertiary lymphoid structures in anticancer immunity. Nat Rev Cancer. 2024;24:629-646.
- Fridman WH, et al. B cells and tertiary lymphoid structures as determinants of tumour immune contexture and clinical outcome. Nat Rev Clin Oncol. 2022;19:441-457.
- Lauss M, Donia M, Svane IM, Jönsson G. B cells and tertiary lymphoid structures: friends or foes in cancer immunotherapy? Clin Cancer Res. 2022;28(9):1751-1758.
- Xi Y, et al. Macrophage efferocytosis mediated by the TP63-RAC2 pathway promotes immunosuppressive remodeling in esophageal cancer. Cell Rep Med. 2026;7(1):102529.
- Jiang G, et al. SATB2 plays a critical role in pancreatic cancer cell proliferation, migration and T cell cytotoxicity. Cancer Genet. 2025;296-297:53-64.
- Liu Y, et al. TRIM29 promotes glioblastoma progression via ubiquitinating NEFL and activating the PI3K/AKT signaling pathway. Cancer Genet. 2025;296-297:88-99.
- Zhai H, et al. WDR54 enhances NF-κB signaling to promote progression of hepatocellular carcinoma. Cancer Genet. 2025;298-299:302-314.
- Yin H, et al. PLAU serves as a prognostic biomarker correlated with perineural invasion in HNSCC. Cancer Genet. 2025;294-295:145-155.
- Liu Z, et al. JAK inhibition in PD-1 immunotherapy and tumor microenvironment. Front Immunol. 2026;17:1790936.
- DeNicola GM, et al. NRF2 regulates serine biosynthesis in non-small cell lung cancer. Nat Genet. 2015;47(12):1475-1481.
- Zhang W, et al. NRF2-mediated persistent adaptation of oesophageal adenocarcinoma cells to HER2 inhibition. Oncogene. 2025;44(33):2929-2941.