本研究では、ネットワーク薬理学と分子動力学シミュレーションを用い、前立腺がん治療におけるプルンバギンの分子メカニズムおよびパスウェイを調査した。その結果、プルンバギンはAKT1、ESR1、BCL2、EGFR、TNF、MAPK3、HSP90AA1、SRC、およびPPARGに安定して結合することが示された。
研究記事
ネットワーク薬理学および分子動力学シミュレーションを用いた前立腺癌におけるプルンバギンの計算解析
29 回視聴
⸱
2026年9月11日
* These authors contributed equally
この記事について
サマリー
要約
前立腺がんは、男性におけるがん関連死亡の主要な要因となっている。多くの患者が局所進行または転移ステージに進行した後に診断されるため、根治的な治療が不可能である場合が多い。本研究では、ネットワーク薬理学、分子ドッキング、および分子動力学シミュレーションを組み合わせた統合的な計算アプローチを適用し、前立腺がんにおけるプルンバギンの治療効果の根底にある潜在的な分子メカニズムを探索した。統合的なデータベース解析を通じて潜在的な治療ターゲットを特定し、次にタンパク質間相互作用ネットワークの構築、機能濃縮解析、分子ドッキング、および分子動力学シミュレーションを行い、タンパク質-リガンド相互作用の安定性を評価した。計算解析の結果、プルンバギンはAKTセリン/スレオニンキナーゼ1(AKT1)やエストロゲン受容体1を含む複数のハブターゲットと安定した相互作用を形成する可能性が明らかになった。 (ESR1)、BCL2アポトーシス調節因子 (BCL2)、上皮成長因子受容体 (EGFR)、腫瘍壊死因子 (TNF)、ミトゲン活性化プロテインキナーゼ3 (MAPK3)、熱衝撃タンパク質90αファミリークラスAメンバー1 (HSP90AA1)、SRC原がん遺伝子, 非受容体型チロシンキナーゼ (SRC)、およびペルキシソーム増殖剤活性化受容体ガンマ (PPARG), 前立腺がんの進行に関与する主要な経路を調節する可能性が示唆されています。これらの イン・シリコ これらの知見は、プラムバギンの考えられる分子メカニズムに関する新たな洞察を提供し、今後の実験的検証に向けた根拠を提示するものである。しかしながら、さらなる in vitro および in vivo その機能的活性および治療有効性を確認するための研究が必要である。
概要
前立腺がんは不均一な疾患であり、その臨床的徴候は、進行することのない無症状の検診発見病変から侵襲性の高い悪性腫瘍まで多岐にわたります。また、世界的に罹患率および死亡率の主要な原因となっています1,2。世界的に、前立腺がんの新規症例数は2020年の140万件から2040年には290万件へと倍増すると予測されており、年間の死亡者数は2020年の37万5,0人から2040年には約70万人に増加すると予想されています3。当初はアンドロゲン依存性悪性腫瘍として診断され、前立腺がんはアンドロゲン除去療法で治療可能です。しかしながら、初期反応は良好であるものの、疾患は不可避的にアンドロゲン非依存性の形態へと進行します。ホルモン耐性前立腺がんの患者は、骨転移を発症するリスクが著しく高く、臨床的に重要な骨病変に至ります4,5,6,7。さらに、早期の前立腺がんは手術や放射線療法で根治可能ですが、多くの患者は診断時にすでに局所進行または転移性の状態で現れ、それらに対する根治的な治療法は現在のところ存在しません8,9。したがって、前立腺がん転移の予防および/または治療のための、効果的で選択性の高い薬剤を開発することが急務となっています。
リコピン、大豆製品、緑茶、ザクロフェノール類、アピゲニン、ならびにビタミンDおよびEなどの様々な天然抽出物が、前立腺がんの発症を効果的に予防することが示されている10,1,12,13。天然に広く存在するナフトキノン化合物であり、Plumbago zeylanicaの主要成分であるプランバギン(PLB)は、抗感染14、抗炎症15、抗動脈硬化16、および抗腫瘍17,18特性を有する。PLBは、乳がん、非小細胞肺がん、肝がん、膵がん、大腸がん、卵巣がん、前立腺がん、神経膠腫、および網膜芽細胞腫を含む様々ながん細胞型において抗腫瘍効果を発揮することが研究で示されている19,20,21。In vitro実験により、PLBが前立腺がん細胞の増殖を抑制することが示された2,23。また、PLBはマイクロプロテインの発現を調節し、それが前立腺がん細胞における細胞周期制御、アポトーシス、オートファジー、および上皮間葉転換を含む複数の細胞挙動に影響を与える24,25。さらに、PLBは皮下異種移植マウスモデルにおいて、アンドロゲン非依存性がん細胞の増殖を遅延させる2,26。
PLBが前立腺がん細胞の増殖および浸潤を抑制することは多くの研究で示されていますが、PLBがこれらの細胞に作用するターゲットおよび経路に関する系統的な調査は現在のところ行われていません。本研究では、ネットワーク薬理学、分子ドッキング、および分子動力学シミュレーションを用いて、前立腺がんにおけるPLBの治療効果の根底にある潜在的なターゲットと経路を明らかにすることを目的としました。
プロトコル
PLBの潜在的ターゲットの予測およびスクリーニング
PLBの化学構造情報はPubChemデータベース(https://pubchem.ncbi.nlm.nih.gov/)から取得した。PLBの分子標的は、SwissTarget(https://swisstargetprediction.ch/index.php)、SEA(https://sea.bkslab.org/)、TargetNet(http://targetnet.scbdd.com/calcnet/index/)、PharmMapper(https://www.lilab-ecust.cn/pharmmapper/index.html)、Comparative Toxicogenomics Database(CTD, https://ctdbase.org/)、Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform(TCMSP, https://www.tcmsp-e.com/index.php)、およびHERB(http://herb.ac.cn/)データベースを用い、リガンドベースの2次元および3次元類似性に基づいて予測した。データの信頼性と再現性を確保するため、データベース固有のフィルタリング閾値を次のように適用した。TCMSPでは、経口生物学的利用能(OB)≥ 30%かつ薬物らしさ(DL)≥ 0.18の標的を保持した。SwissTargetPredictionでは、予測確率 ≥ 0.5のエントリーを保持した。PharmMapperでは、正規化フィットスコア ≥ 4.0の標的を選択した。SEAでは、E-value < 0.001の標的のみを有意に濃縮されたものとして含めた。TargetNetでは、予測確率 > 0.5の標的を保持した。CTDでは、キュレートされた根拠(化学物質-遺伝子相互作用から推論)があり、かつ相互作用スコア > 0.3の標的のみを含めた。HERBでは、文献根拠スコア ≥ 0.4の標的を保持した。上記のデータベースから取得したすべてのタンパク質識別子は、UniProtデータベース(https://www.uniprot.org/)を用いて、種をHomo sapiensに限定して公式のヒトHGNC遺伝子シンボルに標準化した。すべてのソースにわたる重複エントリーを削除した後、後続の解析のために計50個の固有なPLB関連標的を得た。
前立腺癌関連遺伝子の抽出
前立腺癌に関する疾患関連遺伝子は、GeneCards (https://www.GeneCardss.org/)、DrugBank (https://go.drugbank.com/)、CTD、およびHERBから取得した。データの信頼性を確保するため、データベース固有の組み入れ基準を適用した。GeneCardsでは、疾患クエリとの関連を示す中程度から強力なエビデンスを持つ遺伝子を抽出するため、関連性スコアが0.5以上の遺伝子を保持した。DrugBankでは、実験的根拠(例:FDA承認薬または前立腺癌の治験薬)があるエントリーのみを含め、計算的に予測された相互作用や理論的な相互作用は除外した。CTDでは、キュレーションされた化学物質-遺伝子-疾患相互作用に基づき、エビデンスレベルが「marker」または「mechanism」に分類されるレコードのみを保持した。HERBでは、十分な実験的根拠またはテキストマイニング根拠を確保するため、文献に基づいた信頼性スコアが0.4以上のターゲットを含めた。すべての遺伝子シンボルはUniProtデータベース (https://www.uniprot.org/) を介してHGNC命名法に統一し、種をHomo sapiensに限定して重複を削除した結果、その後の解析に向けて1,19個の一意な前立腺癌関連ターゲットを得た。
重複するターゲットの同定およびコンフリクト注釈の補正
50個のPLBターゲットと1,19個の前立腺がんターゲットを、Venny 2.1 (https://bioinfogp.cnb.csic.es/tools/venny/index.html)を用いて標準化されたHGNCシンボルで共通抽出した結果、151個の重複する候補ターゲットが得られました。データベース間のアノテーションの不一致を解消するため、以下の3段階の補正パイプラインを実施しました:(i) UniProt IDマッピングツールを用いて遺伝子エイリアスの不整合を統一した。(ii) CD-HITを用い、配列類似性の閾値を> 0.4としてパラログの冗長遺伝子を除外した。(iii) 相 contradictoryな機能アノテーションについては、少なくとも2つの独立したデータベースで支持されている場合のみ保持し、単一のソースによる固有の相反する記述は破棄した。
ネットワーク構築およびハブの同定
重複するターゲットをSTRINGデータベース(version 12.0, https://cn.string-db.org/)に登録し、検索対象をHomo sapiensに限定してタンパク質相互作用(PPI)ネットワークを構築した。高い信頼性を確保するため、統合信頼度スコアが0.70以上の相互作用のみを保持し、接続を持たないすべてのノードをネットワークから除外した。構築したPPIネットワークをCytoscape(version 3.10.2)で視覚化し、トポロジカル解析を行った。その後、cytoHubbaプラグインを用い、主要なランキングアルゴリズムとしてMCC(Maximal Clique Centrality)を、補助的なクロスバリデーション指標としてDegreeを採用してハブ遺伝子を決定した。
機能濃縮解析
発現変動遺伝子に対するGene Ontology (GO) 機能アノテーションおよびKyoto Encyclopedia of Genes and Genomes (KEGG) パスウェイ濃縮解析は、Bioinformatics Online Analysis Platform (https://www.bioinformatics.com.cn、最終アクセス日:2026年5月4日) を用いて実施した。同プラットフォームでは、フィッシャーの正確確率検定を用いて未補正のP値を算出し、多重検定補正による偽発見率 (FDR) の制御にはBenjamini-Hochberg (BH) 法を用いた。FDR < 0.05 のGO用語(生物学的プロセス、細胞成分、分子機能)およびKEGGパスウェイを、有意に濃縮されていると見なした。
分子ドッキング
活性コンフォメーションを示す選択された標的タンパク質の結晶構造を、RCSB Protein Data Bank (https://www.rcsb.org/) から取得した。タンパク質の調製は Discovery Studio を用いて行い、水分子とヘテロ原子の除去、冗長な鎖の削除、欠損残基の修復、pH 7.4 での水素原子の付加、Gasteiger 電荷の割り当て、およびエネルギー最小化を実施した。結合ポケットは、共結晶化したリガンドの座標に基づき、すべての重要な基質結合残基を包含するグリッドを使用して定義した。PLB の分子ドッキングは、SwissDock ウェブサーバー (http://www.swissdock.ch/) の Attracting Cavities モジュールを用いて実施した。親和性を評価するために結合自由エネルギーを算出し、各標的に対して最もエネルギーが低いコンフォメーションを最終的なドッキングポーズとして選択した。分子ドッキングシミュレーションの結果を可視化し、その妥当性を検証した。
分子動力学シミュレーション
分子動力学(MD)シミュレーションはGROMACS 202.2を用いて実施した。タンパク質の記述にはAmber14SB力場を用い、システムはTIP3P水で溶媒和させた。Plumbaginのパラメータ(AM1-BCC部分電荷およびGAFF2原子型を含む)はAntechamberを用いて生成し、続いてACPYPEによるトポロジー変換とJoung-Cheathamイオンパラメータの割り当てを行った。各タンパク質-リガンド複合体を、タンパク質からボックス端までの最短距離が1.2 nmとなる切断正十二面体シミュレーションボックスに配置し、TIP3P水分子で溶媒和させ、0.15 M Na⁺/Cl⁻を添加して中和した。最急降下法によるエネルギー最小化(Fmax < 1,00 kJ·mol⁻1·nm⁻1)の後、システムを298 KでNVTおよびNPT平衡化にそれぞれ20 psずつ順次かけた。その後、Verletカットオフスキームを用い、積分タイムステップ2 fsのNPT条件下で200 nsのプロダクションシミュレーションを行った。長距離静電相互作用はparticle mesh Ewald(PME)法で計算し、静電相互作用およびvan der Waals相互作用の両方に1.2 nmのカットオフ距離を採用した。水素を含む結合の拘束にはLINCSアルゴリズムを用いた。温度はNosé-Hooverサーモスタットを用いて298 Kに、圧力はParrinello-Rahmanバロスタットを用いて1 barに維持した。後の解析のため、座標を10 psごとに保存した。トラジェトリ解析および可視化にはGROMACSユーティリティ、VMD、およびPyMOLを使用し、適宜gmx_MMPBSAを用いてMM-PBSA結合自由エネルギー計算を行った。
分子動力学トラジェトリの平衡化評価およびMM-PBSA自由エネルギーサンプリングプロトコル
各タンパク質–plumbagin複合体について、GROMACSを用いて20 nsの全原子プロダクション分子動力学シミュレーションを実施した。10 nsの時点を平衡化の境界として設定し、0–10 nsのセグメントをコンフォメーション緩和相と定義した。この期間中、タンパク質の主鎖およびリガンド結合ポケットは継続的なコンフォメーション調整を受けた。一方、100–20 nsのセグメントは、RMSD、回転半径(Rg)、残基ごとのRMSF、リガンドの埋没SASA、分子間水素結合、およびリガンド–受容体相互作用エネルギーにおいて一方向的なドリフトが見られず、わずかな定常状態の変動のみが確認されたため、熱力学的に安定したプラトーであると特定した。すべての定量的キネティックパラメータおよびMM/PBSA結合自由エネルギーは、10–20 nsの平衡相のみから算出した。この平衡相から10 psごとにフレームを均等に抽出し、gmx_MMPBSAの入力用として1システムあたり1,00個の平衡スナップショットを得た。自由エネルギー計算におけるコンフォメーションドリフトによる干渉を排除するため、最初の10 nsの緩和トラジェクトリは破棄した。
前立腺がんにおける標的遺伝子の予後解析
予後解析は、The Cancer Genome Atlas (TCGA) の前立腺がんデータセットを用いて行われた。RNAシーケンシング (STAR-counts) データおよび対応する臨床情報は、Genomic Data Commons ポータル (https://portal.gdc.cancer.gov) から取得した。遺伝子発現カウントを transcripts per million (TPM) に変換し、log2(TPM + 1) を用いて正規化した。臨床情報が不完全なサンプルを除外した後、498例を解析対象とした。各遺伝子の発現レベルの中央値を用いて、患者を高発現群と低発現群に分けた。SRCについては全生存期間 (OS)、MAPK3については無増悪生存期間 (PFS) を評価するため、ログランク検定を用いたカプランマイヤー生存分析および単変量Cox比例ハザード回帰を行い、ハザード比 (HRs) および 95%信頼区間 (CIs) を算出した。さらに、1年、3年、5年時点での時間依存性受信者動作特性 (ROC) 曲線を生成し、予測性能を評価した。統計解析は R version 4.0.3 で実施し、P < 0.05 を統計的に有意とみなした。
結果
PLBと前立腺がん標的の予測結果
PLBのPubChem CIDは10205であり、IUPAC名は5-hydroxy-2-methylnaphthalene-1,4-dione、SMILESはCC1=CC(=O)C2=C(C1=O)C=CC=C2O、InChIKeyはVCMMXZQDRFWYSE-UHFFFAOYSA-N、InChIはInChI=1S/C11H8O3/c1-6-5-9(13)10-7(11(6)14)3-2-4-8(10)12/h2-5,12H,1H3、分子量は188.18、分子式はC11H8O3、CAS番号は481-42-5である。重複を除去した後、本研究ではSwissTarget、SEA、TargetNet、PharmMapper、CTD、TCMSP、およびHERBデータベースを用いて、500個の潜在的なPLB標的を予測した(付録表 S1)。重複を除去した後、GeneCards、DrugBank、TCMSP、CTD、およびHERBデータベースを用いて、前立腺がんの潜在的なターゲットを1,199個予測した(付随表 S2).
ネットワーク薬理学により予測された前立腺癌におけるPLBの作用機序
ターゲットの重複を分析するためにベン図を作成したところ、151個の重複するターゲットが明らかになった(図 1)。続いて、これらの重複遺伝子についてタンパク質相互作用(PPI)ネットワークを構築し(図 2)、ノード次数によって可視化した。濃い赤色でノードサイズが大きいほど、次数が高いことを示している(図 3)。Cytoscapeソフトウェアを用いて重複遺伝子の中からコアターゲット遺伝子(上位20個)を分析した結果、TP53が最高の次数112を示し、次いでAKT1が次数111であった(図 4)。
続いて、共通する遺伝子をDAVIDデータベースにアップロードし、ジーンオントロジー(GO)およびKEGGパスウェイの濃縮分析を行った。GO分析の結果、4,156の生物学的プロセス(補足表 S3)、292の細胞成分(補足表 S4)、および562の分子機能(補足表 S5)が得られた。各カテゴリーにおいて最も有意に濃縮された上位10項目の用語を可視化した(図 5A-C)。KEGG分析では、187のパスウェイが有意に濃縮されており(補足表 S6)、特に関連性の高い上位10項目を図 5Dに示す。これらには、前立腺がん、B型肝炎、がんにおけるプロテオグリカン、EGFRチロシンキナーゼ阻害剤への耐性、脂質代謝および動脈硬化、ヒトサイトメガロウイルス感染、大腸がん、内分泌耐性、糖尿病合併症におけるAGE-RAGEパスウェイ、およびPI3K-Aktシグナリングパスウェイに関連するパスウェイが含まれていた。
前立腺癌治療におけるPLBの主要標的
ネットワーク薬理学解析により、PLBと前立腺癌の間で151個の共通遺伝子が同定されました。PPIネットワークに基づき、接続性の最も高い上位20個の潜在的なコアターゲット遺伝子をスクリーニングした結果、tumor protein p53 (TP53)、AKT serine/threonine kinase 1 (AKT1)、signal transducer and activator of transcription 3 (STAT3)、estrogen receptor 1 (ESR1)、BCL2 apoptosis regulator (BCL2)、interleukin 6 (IL6)、epidermal growth factor receptor (EGFR)、catenin beta 1 (CTNNB1)、tumor necrosis factor (TNF)、phosphatase and tensin homolog (PTEN)、caspase 3 (CASP3)、mitogen-activated protein kinase 3 (MAPK3)、heat shock protein 90 alpha family class A member 1 (HSP90AA1)、SRC proto-oncogene, non-receptor tyrosine kinase (SRC)、peroxisome proliferator activated receptor gamma (PPARG)、mechanistic target of rapamycin kinase (MTOR))、heat shock protein 90 alpha family class B member 1 (HSP90AB1)、glycogen synthase kinase 3 beta (GSK3B)、prostaglandin-endoperoxide synthase 2 (PTGS2)、およびmatrix metallopeptidase 9 (MMP9) が抽出されました。TP53が最も高い接続性を示し、次いでAKT1であったことから、これらが主要なターゲットである可能性が示唆されました。
ドッキングおよび分子動力学シミュレーションの最終的なターゲットを選択するため、結晶構造と明確な結合ポケットが既知である、プロオンコジェニック(原がん性)タンパク質をコードする遺伝子を優先的に選定した。これには、AKT1, STAT3, ESR1, BCL2, IL6, EGFR, TNF, MAPK3, HSP90AA1, SRC, PPARG, MTOR, HSP90AB1, GSK3B, PTGS2, および MMP9が含まれる。対照的に、TP53などのがん抑制遺伝子は、ターゲット阻害という治療戦略に合致しないため除外した。
したがって、さらなる分子ドッキング研究を実施した。その結果、PLBはTRP80、SER205、LEU210、LEU264、およびLYS268を介してAKT1と相互作用し、結合エネルギー(BE)は-7.764 kcal/molであった27。また、PLBはGLU612、SER613、ARG609、およびPRO639を介してSTAT3と相互作用し、BEは-5.149 kcal/molであった28。PLBはLEU346、PHE404、ALA350、LEU387、およびLEU391を介してESR1と相互作用し、BEは-7.165 kcal/molであった29。PLBはLYS53、PHE54、およびHIS50を介してBCL2と相互作用し、BEは-5.564 kcal/molであった30。PLBはGLN28、LYS27、およびARG24を介してIL6と相互作用し、BEは-4.462 kcal/molであった31。PLBはLEU778、LEU707、およびLEU789を介してEGFRと相互作用し、BEは-6.255 kcal/molであった32。PLBはTYR59、GLY121、およびLEU120を介してTNFと相互作用し、BEは-6.570 kcal/molであった33。PLBはALA69、VAL56、ILE48、LEU124、MET125、およびLEU173を介してMAPK3と相互作用し、BEは-7.369 kcal/molであった34。PLBはLEU107、PHE138、TYR139、およびTRP162を介してHSP90AA1と相互作用し、BEは-8.947 kcal/molであった35。PLBはLEU276、TYR343、MET344、ALA296、LEU396、およびVAL284を介してSRCと相互作用し、BEは-7.469 kcal/molであった36。PLBはLEU330、ARG288、ILE326、MET329、およびALA292を介してPPARGと相互作用し、BEは-6.538 kcal/molであった37。PLBはALA2073、SER2069、およびHIS2024を介してMTORと相互作用し、BEは-4.672 kcal/molであった38。PLBはTYR134、PHE133、TRP157、およびLEU102を介してHSP90AB1と相互作用し、BEは-6.928 kcal/molであった39。PLBはVAL70、VAL135、およびALA83を介してGSK3Bと相互作用し、BEは-6.799 kcal/molであった40。PLBはVAL315、THR561、ARG311、およびILE558を介してPTGS2と相互作用し、BEは-5.081 kcal/molであった41。PLBはLEU187、ALA189、MET247、TYR248、LEU188、HIS226、およびVAL223を介してMMP9と相互作用し、BEは-7.101 kcal/molであった42。IL6とMTORを除き、PLBと他のタンパク質との結合エネルギーは-5 kcal/mol未満であり、PLBがこれらのタンパク質に安定的に結合し得ることが示された(表1)。
その後、PLBとこれらの標的タンパク質との相互作用をさらに解析し、結合安定性を検証するために、分子動力学シミュレーションを実施した。いくつかの化合物はドッキングスコアで高い順位にあったが、予備的な分子動力学シミュレーションにおいて、いくつかの系で早期のリガンドドリフトまたは深刻な構造歪みが認められた。そのため、これらの不安定な複合体を除外した。初期緩和後に安定した結合ポーズを維持したもののみを保持し、長時間分子動力学シミュレーションの候補として進めた。最終的に保持した標的は、AKT1 (Supplementary File 1—Supplementary Figure S1)、ESR1 (Supplementary File 1—Supplementary Figure S2)、BCL2 (Supplementary File 1—Supplementary Figure S3)、EGFR (Supplementary File 1—Supplementary Figure S4)、TNF (Supplementary File 1—Supplementary Figure S5)、MAPK3 (Supplementary File 1—Supplementary Figure S6)、HSP90AA1 (Supplementary File 1—Supplementary Figure S7)、SRC (Supplementary File 1—Supplementary Figure S8)、および PPARG (Supplementary File 1—Supplementary Figure S9) であった。200 nsのシミュレーション後、PLBとAKT1、ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC, PPARGの複合体構造のRMSDは、シミュレーションの過程で徐々に安定化した(Supplementary File 1—Supplementary Figure S1-S9、パネルAを参照)。同時に、Rg(Supplementary File 1—Supplementary Figure S1-S9、パネルBを参照)、二乗平均平方根ゆらぎ(RMSF)(Supplementary File 1—Supplementary Figure S1-S9、パネルCを参照)、タンパク質とリガンド結合部位間の距離(Dock site-ligand)(Supplementary File 1—Supplementary Figure S1-S9、パネルDを参照)、埋没溶媒接触表面積(Buried SASA)(Supplementary File 1—Supplementary Figure S1-S9、パネルEを参照)、および結合コンフォーメーションの重ね合わせ(Supplementary File 1—Supplementary Figure S1-S9、パネル Fを参照)といった指標も、シミュレーションの進行に伴い徐々に安定化した。これらの結果は、タンパク質-リガンド複合体がシミュレーション全体を通して構造的な安定性を維持していたことを示唆している。RMSD、Rg、RMSF、タンパク質-リガンド距離、および埋没SASAが徐々に安定値に達したことは、原子レベルのゆらぎが制限され、結合ポケット内でリガンドの占有が持続したコンパクトな複合体であることを示している。さらに、plumbaginとタンパク質との接触面積は、時間経過とともに比較的一定であった。ファンデルワールス相互作用、疎水性相互作用、および静電相互作用も、シミュレーション全体を通じて安定したプロファイルを示し、タンパク質-plumbagin複合体の全体的な安定性がさらに裏付けられた(Supplementary File 1—Supplementary Figure S1-S9、パネルGを参照)。
溶媒和エネルギーを考慮し、RMSD、Rg、距離、埋没SASA、および相互作用エネルギーを総合的に評価して、安定状態の複合体トラジェクトリを選択し、MM-PBSA(分子力学-ポアソン・ボルツマン表面積)法を用いて結合エネルギー(BE)に関連する項を算出した。報告した親和性のランキングに信頼性を持たせるため、すべての結合自由エネルギーは、平衡化したMDトラジェクトリから抽出したスナップショットから算出された平均値±標準誤差(SEM)として報告する(表2)。これらのうち、AKT1が最も低い(負の)結合自由エネルギーを示し、次いでESR1、HSP90AA1、SRC、PPARGの順となった。このことは、PLBがこれらの標的タンパク質に安定的に結合する可能性を示唆している。
さらに、本研究ではPLBと標的タンパク質の間の相互作用残基を分析し(詳細は表3に記載)、PLBが主に水素結合(補足ファイル1—補足図S1-S9、パネルIを参照)、疎水性相互作用、およびファンデルワールス力によって標的タンパク質に安定的に結合することを突き止めた。アミノ酸結合エネルギーの寄与(補足ファイル1—補足図S1-S9、パネルHを参照)およびタンパク質-PLB相互作用を分析した結果、以下のことが明らかになった。AKT1において、PLB結合の鍵となるアミノ酸はTRP80およびLEU264であり、ファンデルワールス力が主要な役割を果たし、静電的相互作用および疎水性相互作用は補助的な役割であった。ESR1においては、鍵となるアミノ酸はLEU346およびLEU525であり、ファンデルワールス力が主要な役割、疎水性相互作用が二次的な役割、静電的相互作用が補完的な役割を果たしていた。BCL2においては、鍵となるアミノ酸はTYR108およびPHE104であり、ファンデルワールス力が主要な役割を果たし、静電的相互作用および疎水性相互作用は補助的な役割であった。EGFRにおいては、鍵となるアミノ酸はMET1002およびTYR998であり、ファンデルワールス力が主要な役割を果たし、静電的相互作用および疎水性相互作用は補助的な役割であった。TNF-αにおいては、鍵となるアミノ酸はTYR59およびHIE15であり、ファンデルワールス力が主要な役割を果たし、静電的相互作用および疎水性相互作用は補助的な役割であった。MAPK3においては、鍵となるアミノ酸はTYR53およびLEU173であり、ファンデルワールス力が主要な役割を果たし、静電的相互作用および疎水性相互作用は補助的な役割であった。HSP90AA1においては、鍵となるアミノ酸はPHE138およびLEU107であり、ファンデルワールス力が主要な役割を果たし、静電的相互作用および疎水性相互作用は補助的な役割であった。SRCにおいては、鍵となるアミノ酸はLEU276およびLEU396であり、ファンデルワールス力が主要な役割を果たし、静電的相互作用および疎水性相互作用は補助的な役割であった。PPARGにおいては、鍵となるアミノ酸はLEU330およびILE326であり、ファンデルワールス力が主要な役割を果たし、静電的相互作用および疎水性相互作用は補助的な役割であった。
BCL2を除き、本研究で使用したすべてのタンパク質結晶構造は、既知の阻害剤とともに共結晶化されたものである。我々のドッキングアプローチの信頼性とPLBの結合能をさらに検証するため、元の阻害剤結合部位に基づいて活性結合ポケットを定義した。PLBおよびそれぞれの天然阻害剤を同一のポケットにドッキングさせ、その結合自由エネルギーを算出して比較した。各ターゲットについて、結晶学的結合コンホメーションを忠実に再現した天然阻害剤のドッキングポーズのみをエネルギー比較の対象とした。表4に示すように、8つのターゲットすべてにおいて、PLBのドッキング結合自由エネルギーはそれぞれの天然阻害剤と同等であり、PLBがこれらの検証済み活性化合物と同様のポケット結合親和性を有していることが示唆された。この知見は、新規スキャフォールド分子であるPLBが、これらのオンコジェニックハブを標的とする新しい前立腺癌治療剤の開発に向けた、有望な化学テンプレートとなり得ることを示している。
前立腺がんにおける標的遺伝子の予後診断的価値
代表的なターゲットとして、TCGAデータセットを用いて前立腺癌におけるSRCおよびMAPK3の予後的意義を評価した。SRCについて、勾配分布分析の結果、SRCの発現量が高いほど死亡率の上昇および追跡生存期間の有意な短縮に関連していることが示された(図 6A)。カプランマイヤー生存分析(図 6B)により、高発現群は低発現群よりも全生存期間が著しく不良であることが確認された(Log-rank P = 0.0317, HR = 9.708, 95% CI: 1.22–77.234)。累積ハザード曲線は、高発現コホートにおいて任意の時点での死亡確率が高いことを示しており、SRCが不良予後のリスク因子であることが特定された。時間依存性ROC曲線(図 6C)では、1年、3年、5年時点のAUC値がそれぞれ0.99、0.878、0.829であり、すべて0.7を超えていたことから、短期および長期生存の両方において優れた予測能を有することが示された。以上の結果を総合すると、高レベルのSRC発現は、前立腺癌における不良予後の独立した分子マーカーとなり得ることが示唆される。
MAPK3について、勾配分布から、発現の上昇が腫瘍の進行の促進および無増悪生存期間の短縮と関連していることが明らかになり、予備的にMAPK3が潜在的なリスク遺伝子であることが示唆された(図 7A)。カプランマイヤー無増悪生存期間解析(図 7B)では、高発現群は低発現群よりも無増悪生存期間が有意に短く(Log-rank P = 0.0298, HR = 1.581, 95% CI: 1.046–2.391)、高発現群の無増悪生存期間の中央値はわずか 5.8 年であった。累積ハザード曲線により、任意の時点において進行の確率が高いことがさらに検証された。しかし、時間依存性ROC曲線(図 7C)では、1年、3年、5年時点でのAUC値はそれぞれ 0.568、0.563、0.574 に留まり、すべて 0.7 を大きく下回っていた。これは、MAPK3単独では前立腺癌の進行リスクに対する独立した予測能が限定的であることを示している。全体として、前立腺癌においてMAPK3の高発現は無増悪生存期間の悪化と相関するものの、単独の予後指標としての有用性は、予測精度の低さによって制限される。
データ可用性宣言
本研究で提示された独創的な寄与は、論文本文または補足資料に含まれています。
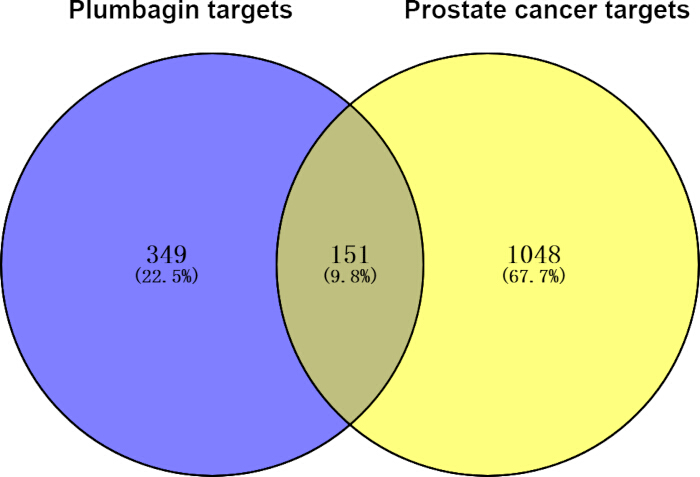
図1: plumbaginと前立腺がん標的の共通項。青色はplumbagin標的の数を、黄色は前立腺がん標的の数を示している。
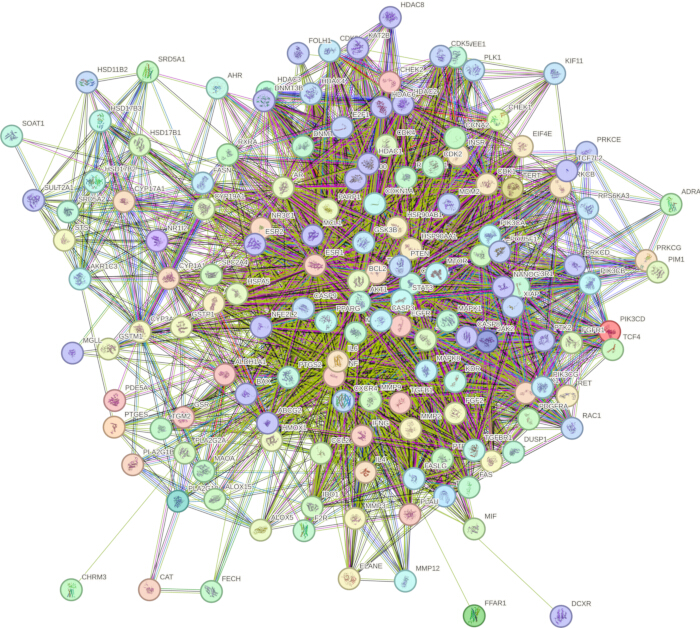
図2: 151個の共通ターゲットのタンパク質間相互作用ネットワーク。 この図の拡大版を表示するには、ここをクリックしてください。
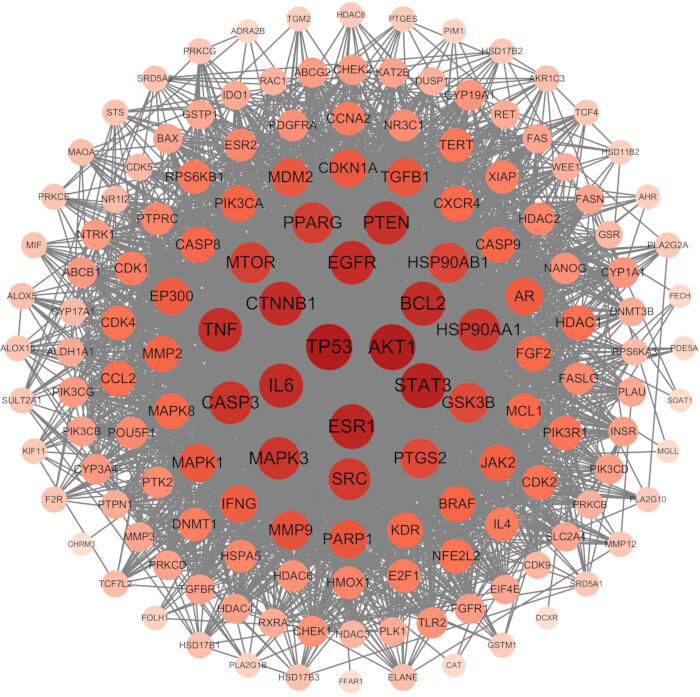
図 3: タンパク質相互作用ネットワークにおけるノード次数に基づいた151個のコアターゲットの可視化。円のサイズが大きく、色が濃いほど、ネットワークにおける次数値が高いことを表しています。こちらのリンクをクリックして、この図の拡大版を表示してください。
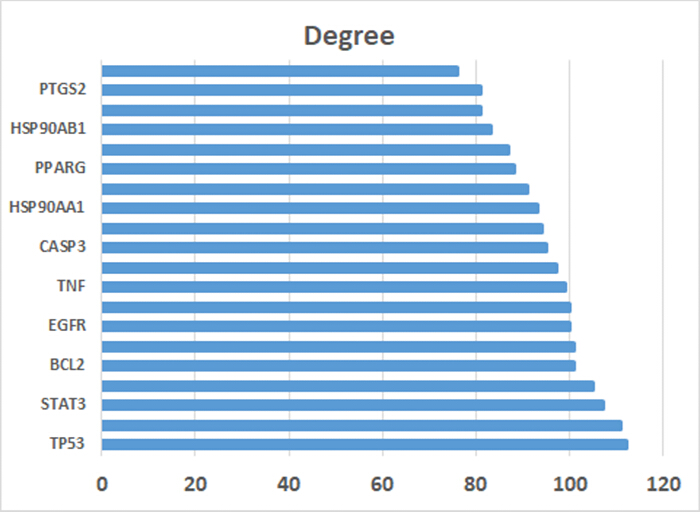
図 4: 上位20個のコアターゲットの次数値。 こちらのリンクをクリックして、この図の拡大版を表示してください。
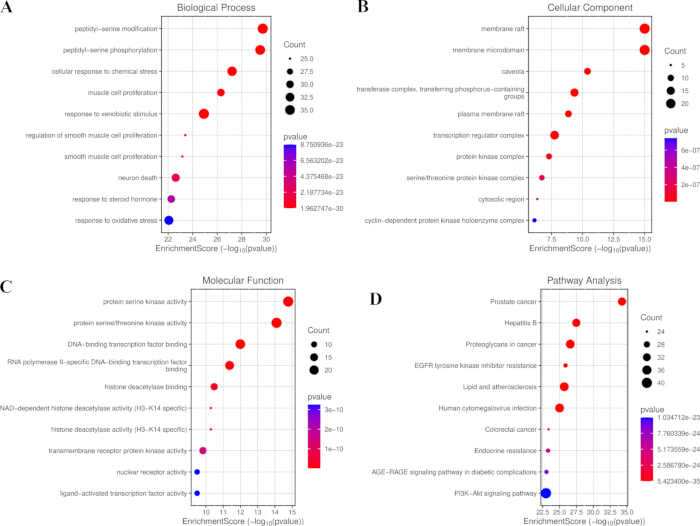
図5: 151個のコアターゲットの濃縮分析。 (A) GO解析の生物学的プロセス(Biological Process)カテゴリーにおける上位10項目(B) GO解析の細胞成分(cellular component)カテゴリーにおける上位10項目、および(C) GO解析の分子機能カテゴリーにおける上位10項目。 (D) 151個のコアターゲットにおけるKEGG濃縮パスウェイの上位10項目。略語:GO = Gene Ontology、KEGG = Kyoto Encyclopedia of Genes and Genomes。 こちらの図の拡大版を表示するには、ここをクリックしてください。
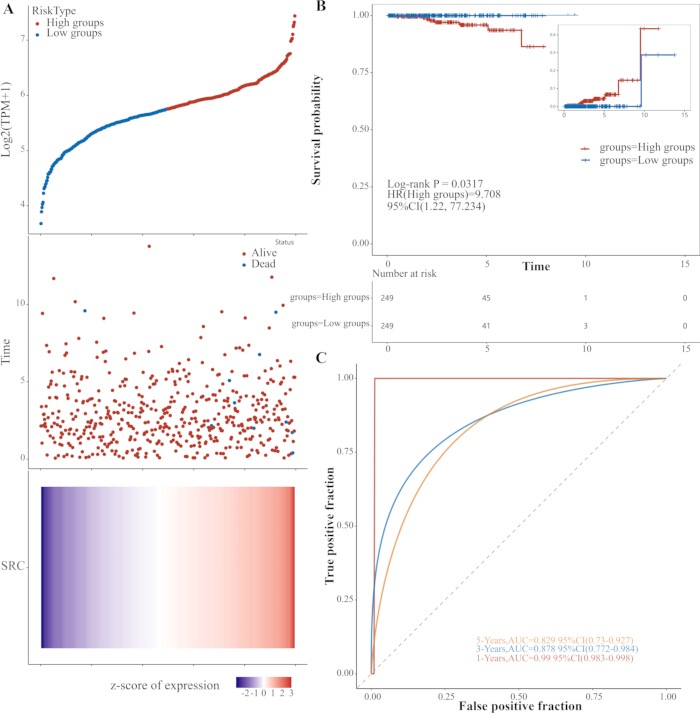
図6: 前立腺癌におけるSRCの予後解析 (TCGA)。(A) 生存ステータスおよび追跡期間によるSRC発現の勾配分布。(B) SRC高発現群と低発現群のKaplan–Meier全生存期間曲線 (Log-rank P = 0.0317, HR = 9.708, 95% CI: 1.22–77.234)。(C) 1年、3年、5年時点の時間依存性ROC曲線 (AUC = 0.990, 0.878, および 0.829)。略語:TCGA = The Cancer Genome Atlas、HR = ハザード比、CI = 信頼区間、ROC = 受信者動作特性、AUC = 曲線下面積。こちらのリンクから、この図の拡大版をご覧いただけます。
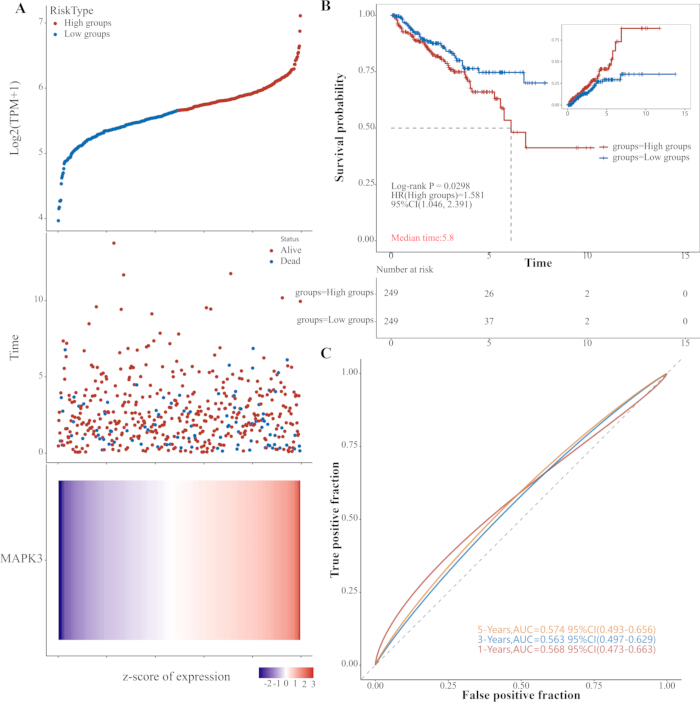
図7: 〜の予後解析 MAPK3 前立腺がん(TCGA)において。 (A) の勾配分布 MAPK3 進行状況および無増悪期間による発現。B) ~のカプラン=マイヤー無増悪生存曲線 MAPK3 高発現群および低発現群(Log-rank P = 0.0298, HR = 1.581, 95% CI: 1.046-2.391)。(C) 1年、3年、および5年における時間依存性ROC曲線(AUC = 0.568, 0.563, および 0.574)。略語:TCGA = The Cancer Genome Atlas、HR = ハザード比、CI = 信頼区間、ROC = 受信者動作特性、AUC = 曲線下面積。 この図の拡大版を表示するには、ここをクリックしてください。
表 1:主要な標的分子を用いた分子ドッキングにおけるプルンバギンの結合エネルギーおよび相互作用残基。 引用文献は生物学的な検証研究ではなく、PDB構造エントリ(結晶構造によるリガンド結合ポケットの割り当て)に対応しており、対応するPDB IDが明記されている。こちらのリンクをクリックして、本表をダウンロードしてください。
表 2:定常状態におけるプルバギン-標的複合体の結合エネルギーおよびその構成要素 (kJ/mol)。各複合体につき、単一のランダム速度シードを用いて200 nsのトラジェトリを1回のみ実行し、並列レプリカは作成していない。すべてのコンフォメーションサンプリングは、各トラジェトリの100–200 nsにわたる平衡状態のプラトー領域から抽出した。ΔEeleは低分子とタンパク質間の静電相互作用、ΔEvdwはファンデルワールス相互作用、ΔEpolは極性溶媒和エネルギー(静電ポテンシャルエネルギーに相当)、ΔEnonpolは非極性溶媒和エネルギー(疎水性相互作用に相当)を表す。ΔEMMPBSA = ΔEele + ΔEvdw + ΔEpol + ΔEnonpol である。ギブス結合自由エネルギーは、ΔGbind = ΔEMMPBSA + -TΔS と定義される。こちらのリンクから本表をダウンロードしてください。
表3: プルンバジンと標的タンパク質の分子動力学シミュレーションにおける相互作用残基の概略図。 こちらのリンクからこの表をダウンロードしてください。
表4: D9つの標的タンパク質に対するプルンバギンおよび天然の共結晶化阻害剤のドッキング結合自由エネルギー。 こちらの表をダウンロードするには、ここをクリックしてください。
補足ファイル1:plumbaginとAKT1、ESR1、BCL2、EGFR、TNF-α、MAPK3、HSP90AA1、SRC、およびPPARGの複合体に関する分子動力学シミュレーション解析こちらのリンクからファイルをダウンロードしてください。
補足表 S1:SwissTarget、SEA、TargetNet、PharmMapper、CTD、TCMSP、および HERB データベースによって予測された PLB の潜在的ターゲット。こちらをクリックしてファイルをダウンロードしてください。
付録表 S2: GeneCards、DrugBank、TCMSP、CTD、および HERB データベースによって予測された前立腺がんの潜在的ターゲット。こちらのリンクからファイルをダウンロードしてください。
補足表 S3:PLBと前立腺がんの151個の重複ターゲットで濃縮されたGO生物学的プロセス。こちらをクリックしてファイルをダウンロードしてください。
補足表S4:PLBおよび前立腺癌に共通する151個の標的について濃縮されたGO細胞成分。こちらのリンクからファイルをダウンロードしてください。
補足表 S5: PLBおよび前立腺癌において重複する151個のターゲットで濃縮されたGO分子機能。こちらのリンクからファイルをダウンロードしてください。
補足表 S6:PLBと前立腺がんの重複する151個のターゲットにおいて有意に濃縮されたKEGGパスウェイ。こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
AKT1、ESR1、BCL2、EGFR、TNF、MAPK3、HSP90AA1、SRC、およびPPARGが、がんの進行を促進させる多様な役割を担っていることが研究で示されています。ホスファチジルイノシトール3-キナーゼ(PI3K)/セリン/スレオニンプロテインキナーゼ(AKT)/メカニスティックターゲットオブラパマイシン(mTOR)シグナル伝達経路は、細胞の成長、増殖、アポトーシス、血管新生、炎症反応、および走化性を含む様々な病態生理学的プロセスを調節する重要な細胞内信号伝達経路です43。AKTはPI3Kの重要な下流標的キナーゼであり、p-AKTはこのシグナル伝達経路に不可欠です。p-AKTは、抗アポトーシス蛋白Bcl-2を活性化し、前アポトーシス蛋白Baxの活性化を抑制することで、抗アポトーシス効果を発揮します4。GSK3βは主要な細胞内セリン/スレオニンファミリーキナーゼであり、AKTの重要な下流標的分子として、複数のシグナル伝達経路に関与することで、細胞周期、アポトーシス、細胞浸潤/転移、および血管新生を調節します45。mTORは高度に保存されたセリン/スレオニンプロテインキナーゼであり、PI3K/AKTシグナル伝達経路の下流標的です。AKTがmTORをリン酸化してp-mTORを形成し活性化させることで、その後、mRNAの翻訳が促進され、細胞代謝、成長、増殖、生存などの生理活性が調節されます46。
EGFRおよびそのリガンドであるEGFとTGFαは、前立腺の良性細胞と悪性細胞の両方に存在します。リガンドであるEGF/TGFαとEGFRの相互作用は、前立腺の成長および発達だけでなく、前立腺がんの発症および進行においても重要な役割を果たしています47。Visacorpiら48は、EGFRの高発現が高悪性度の前立腺がんおよび予後不良と密接に関連していることを明らかにしました。Ibrahimら49は、正常または良性前立腺肥大組織におけるEGFRの発現が、前立腺がん組織よりも高いことを報告しています。Daviesら50は、前立腺がん検体において、アンドロゲン受容体の発現とEGFRへのEGF結合親和性の間に負の相関があることを見出しており、これはEGF/EGFRシグナル伝達系の活性化がアンドロゲン非依存性前立腺がんの発達および進行に関与していることを間接的に示唆しています。
ミトゲン活性化プロテインキナーゼ(MAPK)経路は、RAS/RAF/MEK/ERKカスケードとしても知られ、細胞の成長、増殖、および生存に関与する重要なシグナル伝達経路である。RAS、RAF、MEK、およびERKを含むそのコア成分の変異は、さまざまな癌で頻繁に観察され、腫瘍の発生と進行に大きな影響を与える51。MAPKシグナル伝達はERKによって媒介される。ERKはセリン/スレオニンプロテインキナーゼであり、成長因子、ホルモン、神経伝達物質、およびその他の細胞外刺激からの信号伝達を調節する主要な信号伝達分子として機能する52。この経路の構成成分の過剰活性化、特に変異や異常なシグナル伝達によるものは、数多くの癌種に関与している。上流のキナーゼであるMEK1/2は、経路の末端でERK1/2を直接活性化する。活性化されたERK1/2は、その後、転写因子や調節分子を含む一連の核内および細胞質基質をリン酸化し、それによって細胞増殖を制御する早期応答遺伝子の発現を迅速に誘導する53,54。最終的に、これらの活性化タンパク質は下流のエフェクター分子の発現を促進し、腫瘍形成または制御不能な細胞増殖を誘発および調節する。これらの中で、MAPK/ERKシグナル伝達経路において密接に関連するキナーゼであるERK1 (MAPK3) は、細胞の信号伝達において重要な役割を果たしており、前立腺癌を含む癌における細胞増殖、分化、および生存などのプロセスの調節に不可欠である5。
熱ショックタンパク質(HSPs)は、クライアントタンパク質の分解を防ぐ分子シャペロンである。ヒトの癌において、HSPsはしば発現が上昇しており、腫瘍の進行と密接に関連し、腫瘍形成、血管新生、アポトーシス耐性、および転移に寄与している56,57。アンドロゲン受容体(AR)、エストロゲン受容体(ER)、およびMYCを含むクライアントタンパク質の安定性を維持することで、HSPsはPI3K/Akt、JAK/STAT3、PKL1、およびMAPKなどの重要なシグナル伝達経路を調節し、最終的に制御不能な細胞増殖、持続的な血管新生、アポトーシスの回避、腫瘍浸潤、および転移を促進する58,59,60。このファミリーの主要メンバーであるHSP90は、前立腺癌における潜在的な治療標的として同定されている59,61,62。前立腺癌細胞において、HSP90はAR-FLとAR-V7の両方と相互作用して安定化させ、それらのリガンド結合能を維持しており、HSP90の発現は疾患の進行およびAR-FL/AR-V7レベルと正の相関がある63。HSP90を薬理学的に阻害すると、AR-FLおよびAR-V7のプロテアソームによる分解が促進され、これにより去勢抵抗性前立腺癌細胞における腫瘍の増殖と転移が抑制される63。HSP90AA1はAR活性化時にシャペロンとして機能し、その阻害はAKT/mTORおよびPLK1経路を抑制する。さらに、HSP90AA1の発現低下は、前立腺癌細胞の遊走、浸潤、および増殖を有意に減少させる64。
ESR1 ヒト前立腺における二重エストロゲン受容体システムの一つの構成要素です。 ESR1 高悪性度前立腺上皮内腫瘍(HGPIN)において発現が上昇しており、エストラジオールの発癌作用を媒介している可能性が高く、前立腺癌の発生および腫瘍の進展に関与している。ESR1アンタゴニストであるトレミフェンを用いた予備的な臨床研究により、ESR1が前立腺癌予防の有望な標的であることが特定された。ESR1アンタゴニストの使用は、前立腺癌の予防および疾患の進展遅延において大きな可能性を秘めている。65.
核内受容体スーパーファミリーの一員であるPPARGは、炎症プロセスの主要な調節因子です6。リガンド誘導性のレチノイドX受容体とのヘテロ二量体化により、PPARGはDNA中のPPAR応答要素に結合し、さまざまな遺伝子の転写を調節します。PPARGの活性化はNF-κBおよびMAPKシグナリングを抑制し、TNF-αおよびIL-6の産生を減少させることで、炎症反応を軽減します67。先行研究では、PPARGを標的とすることが前立腺がんの治療に利用できることが示されています68。PTGS2タンパク質は核周囲領域に局在し、核膜および小胞体膜に関連しています。このタンパク質は、特定の刺激を受けると選択的な細胞で迅速に発現し、炎症反応の媒介に関与します69。
PLBは、前立腺癌、肺癌、乳癌、メラノーマ、卵巣癌を含む様々な癌種に対する主要な抗癌剤の一つである19。PLBは、複数の標的と相互作用し、AMPK、NFκB、PI3K/AKT/mTOR、およびSTAT3/PLK1/AKTを含む主要なシグナル伝達経路に影響を及ぼすことで抗癌効果を発揮し、それによってアポトーシスの誘導、細胞周期の停止、ならびに転移および血管新生の抑制を引き起こす19,70。また、PLBはミトコンドリア膜電位の低下、ROSレベルの上昇、およびBcl-2タンパク質発現のダウンレギュレーションを通じて、アポトーシスを誘導し、腫瘍細胞の増殖および遊走を抑制することができる71,72。これらの結果は、PLBが細胞周期、アポトーシス、活性酸素種の生成、オートファジー、およびPI3K/Akt/mTOR経路を含む複数の細胞プロセスを調節している可能性を示唆している。前立腺癌細胞および組織の増殖におけるPI3K/Akt/mTORシグナル伝達経路の肯定的な役割を考慮すると、この経路を標的とすることは明白な選択肢となっている。さらに、Hafeezらは、前立腺癌のPTENノックアウトマウスモデルにおけるPLB治療が、前立腺癌の進行に不可欠な上皮間葉転換、STAT3、およびAKT経路を抑制したことを報告している73。
PLBのトランスレーショナルな可能性は、その薬物動態学的特性およびバイオアベイラビリティに影響されます。高度に親油性であるナフトキノンであるPLBは、水溶性が低く、消失半減期が短い(35.89 ± 7.95 min)ため速やかにクリアランスされ、これが臨床応用の制限となっています74。しかし、これらの制限を克服するために、さまざまな薬物送達システムが開発されてきました。PEG化リポソームは、遊離PLBと比較して半減期を36.38倍(1,305.76 ± 278.16 min)、AUCを3.13倍延長させ、同時に、有意な毒性を示すことなく、メラノーマ担がんマウスにおいて優れた抗腫瘍効果と生存期間中央値の延長を示しました74。キトサンマイクロスフェア(半減期を2.2倍延長)や温度感受性リポソーム、PLB結合金ナノ粒子およびナノエマルションを含むその他の戦略においても、同様に薬物動態プロファイルの改善と抗腫瘍活性の向上が実証されています75,76,7。重要な点として、PLBは前臨床モデルにおいて良好な安全性プロファイルを示しており、治療用量において血液学的パラメータや主要臓器に有意な毒性は認められていません74。総合すると、我々の計算科学的な知見は、PLBがAKT1、ESR1、BCL2、EGFR、TNF、MAPK3、HSP90AA1、SRC、およびPPARGと安定的に相互作用し、それらの機能的活性を調節することで、がん細胞の増殖、増殖能、アポトーシス、血管新生、炎症反応、および化学走性を含む下流のプロセスに影響を及ぼす可能性を示唆しています。これらの知見は計算科学的な性質のものであり、仮説生成として解釈されるべきですが、PLBの抗腫瘍活性に関する既存の前臨床エビデンスと高度な製剤戦略は、さらなる実験的検証のための強力な根拠となります。前立腺がんにおけるPLBの予測される相互作用と治療可能性を確認するために、今後のin vitro、in vivo、および前向きコホート研究が必要です。
本研究により、~に関与する経路を調節する可能性があることに加え、 AKT1、ESR1、BCL2、EGFR、TNF、MAPK3、HSP90AA1、SRC、およびPPARG。PLBはこれらのタンパク質とも相互作用する可能性があり、それらの機能活性に影響を及ぼし、その結果、がん細胞の成長、増殖、アポトーシス、血管新生、炎症反応、および化学走性などの下流プロセスに影響を与える可能性がある。しかし、これらの知見は計算科学的な性質のものであり、仮説生成のものとして解釈されるべきである。さらに in vitro, in vivo、また、予測された相互作用を検証し、前立腺がんにおけるPLBの治療的可能性を確認するために、前向きコホート研究が必要である。
ネットワーク薬理学と分子動力学シミュレーションによって貴重な知見が得られたものの、本研究にはいくつかの限界がある。公開データベースへの依存は、遺伝子アノテーションや文献の網羅性の不均一さにより、バイアスを導入する可能性があることを認める。この問題を最小限に抑えるためにマルチデータベースによるクロスバリデーションを適用したが、すべての計算上の予測には実験的な確認が必要である。また、複合体あたり1つのランダム速度シードを用いて、20 nsのトラジェクトリを1回のみ実行し、並行レプリカは作成しなかった点に注意が必要である。この制限はMM-PBSA自由エネルギーの統計的堅牢性に影響を及ぼす可能性があるが、シミュレーション時間を延長し、最初の10 nsを平衡化として除外することでこれを軽減した。したがって、報告された結合親和性は定性的な推定値として解釈されるべきであり、今後の検証にはレプリカシミュレーションが有用である。純粋な計算解析であるため、本研究にはin vitroまたはin vivoでの検証が欠けており、したがってPLBのAKT1、ESR1、BCL2、EGFR、TNF、MAPK3、HSP90AA1、SRC、およびPPARGへの結合予測は、生物学的システムにおける機能的な抑制を確定させるものではない。さらに、本研究では標的特異性、細胞内バイオアベイラビリティ、またはin vivo薬物動態については扱っていない。現在の知見を検証または代替するためには、直接的な結合親和性を測定するための表面プラズモン共鳴または等温滴定カロリメトリー、酵素抑制を確認するためのキナーゼ活性アッセイ、下流シグナリング(例:p-AKT、p-EGFR)を評価するためのウェスタンブロッティング、および前立腺がん細胞における増殖とアポトーシスを評価するための細胞ベースの機能アッセイ(MTTやフローサイトメトリーなど)を含む、代替的な実験的アプローチが必要である。さらに、個々の標的のCRISPR-Cas9またはsiRNAによるノックダウンと、in vivoマウス異種移植モデルを用いて、因果関係と治療上の関連性を確立することが不可欠である。計算上の予測を超えて、生物学的に意味のある結論を導き出すには、これらの実験的検証が必要である。
結論として、ネットワーク薬理学、分子ドッキング、および分子動力学シミュレーションを用いた本研究により、PLBがAKT1、ESR1、BCL2、EGFR、TNF、MAPK3、HSP90AA1、SRC、およびPPARGと相互作用し、それらの活性を調節することで、腫瘍細胞の生物学的機能に影響を与える可能性が示唆されました。しかし、これらの知見は完全に計算上のものであるため、決定的な結論ではなく、仮説を生成するものとして解釈されるべきです。総じて、本結果は前立腺がん治療におけるPLBのメカニズムに関する今後の実験的研究に向けた新たな知見と理論的根拠を提供するものですが、実際の抑制効果と治療可能性を確認するためには、in vitroおよびin vivoでの研究が不可欠です。
開示事項
著者らに開示すべき利益相反はありません。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 比較毒性ゲノミクスデータベース | 国立環境健康科学研究所、国立神経疾患・脳卒中研究所 | https://ctdbase.org/ | CTDは、環境曝露がヒトの健康にどのような影響を与えるかについての理解を深めることを目的とした、堅牢で公開されているデータベースである。 本データベースは、化学物質と遺伝子・タンパク質の相互作用、化学物質と疾患の関係、および遺伝子と疾患の関係に関する、手作業でキュレーションされた情報を提供します。これらのデータは、機能データおよびパスウェイデータと統合されており、環境要因が関与する疾患の根底にあるメカニズムに関する仮説構築に役立てられます。 |
| Cytoscape | システム生物学研究所(ISB)、Leroy Hood | https://cytoscape.org/ | もともとはバイオ分子相互作用ネットワーク専用に設計されていましたが、現在は複雑なネットワークを分析するための汎用的なプラットフォームへと進化しており、バイオインフォマティクス、システム医学、ソーシャルネットワーク、セマンティックネットワークなどの分野で幅広く活用されています。 |
| DAVIDデータベース | アメリカ国立衛生研究所 (NIH) | https://davidbioinformatics.nih.gov/list.jsp | DAVID(Database for Annotation, Visualization and Integrated Discoveryの略称)は、遺伝子セットの機能アノテーションおよび濃縮解析に用いられる、最も古典的で広く利用されている無料のオンラインプラットフォームである。 |
| DrugBank | アルバータ大学(カナダ) | https://go.drugbank.com/ | DrugBankはバイオファーマのためのインテリジェンス・オペレーティングシステムであり、創薬から患者への導入に至るまで治療法の進展を支援するため、最も包括的で構造化された生物医学的知見を提供しています。 |
| GeneCard | LifeMap Sciences | https://www.genecards.org/ | GeneCardsは、アノテーション済みおよび予測されたすべてのヒト遺伝子に関する包括的でユーザーフレンドリーな情報を提供する、検索可能な統合データベースです。このナレッジベースは、ゲノム、トランスクリプトーム、プロテオーム、遺伝学、臨床および機能に関する情報を含む193のウェブソースから、遺伝子中心のデータを自動的に統合しています。 |
| gmx_MMPBSA | メデジンコロンビア大学 | https://valdes-tresanco-ms.github.io/gmx_MMPBSA/ | Valdによって開発されたオープンソースの自由エネルギー計算ツールであるgmx_MMPBSAéMM/PBSAおよびMM/GBSA法に基づいた結合自由エネルギーを算出するため、s-Tresancoらの手法を採用した。本手法はAmberToolsのMMPBSA.pyエンジンに基づいて構築されており、手動によるフォーマット変換を行うことなく、GROMACSで生成されたトラジェトリファイルを直接処理できる。主要なアミノ酸の結合への寄与を定量化するために、残基ごとのエネルギー分解、計算によるアラニンスキャン、およびエントロピー補正を実施し、エネルギー成分の統計解析と可視化には内蔵のgmx_MMPBSA_anaモジュールを使用した。 |
| GROMACS | 王立工科大学 (KTH)、ウプサラ大学 | www.gromacs.org | GROMACSは、分子動力学、すなわち数百から数百万個の粒子からなる系のニュートン運動方程式のシミュレーションを行うための多機能なパッケージであり、コミュニティ主導のプロジェクトです。ドキュメントの改善、バグ修正のためのパッチ、フォーラムでのアドバイス、問題の再現を可能にするバグ報告、および新機能の追加など、さまざまな形態での貢献を歓迎します。 |
| ハーブ | 北京中医药大学, 北京中医药大学 | http://herb.ac.cn/ | ハイスループット実験およびリファレンスガイドに基づいた中薬データベース。 |
| PharmMapper | 華東理工大学 薬学学院 / 情報科学・工学院 | https://www.lilab-ecust.cn/pharmmapper/index.html | PharmMapperサーバーは、ファーマコフォアマッピング法を用いて、与えられたプローブ小分子(医薬品、天然物、または結合標的が未同定のその他の新規発見化合物)に対する潜在的な標的候補を同定するために設計された、自由的にアクセス可能なウェブサーバーです。非常に効率的かつ堅牢なマッピング法の恩恵により、PharmMapperは高いスループット能力を備えており、数時間以内にデータベースから潜在的な標的候補を同定することができます。 |
| PubChem | アメリカ国立衛生研究所 (NIH) | https://pubchem.ncbi.nlm.nih.gov/ | PubChemは、米国国立衛生研究所(NIH)が提供するオープンな化学データベースです。 |
| PyMOL | シュレーディンガーöディンガー | https://pymol.org | PyMOLは、当初Warren Lyford DeLanoによって開発され、現在はSchrödinger社によって維持管理されています。öPyMOL(Schrödinger, Inc.)は、構造生物学やコンピュータ支援創薬において広く採用されているクロスプラットフォームの分子可視化ツールである。RCSB PDBからダウンロードしたタンパク質-リガンド複合体構造をPyMOLにロードし、結合コンホメーション、水素結合、および主要な相互作用残基を可視化した。構造の重ね合わせ、サーフェスレンダリング、および出版品質の高解像度分子グラフィックスは、内蔵のPythonスクリプトインターフェースを介して作成した。 |
| RCSB Protein Data Bank | 構造バイオインフォマティクス研究共同利用センター | https://www.rcsb.org/ | RCSB PDB (Research Collaboratory for Structural Bioinformatics Protein Data Bank)は、1998年にHelen M. Bermanによって設立され、同氏が主導するWorldwide Protein Data Bank (wwPDB)コンソーシアムの米国データセンターとして機能している。本データベースは、X線結晶構造解析、クライオ電子顕微鏡、およびNMR分光法によって解明されたタンパク質、核酸、およびそれらの複合体の実験的に決定された三次元原子構造をアーカイブしており、さらにAlphaFoldによる数百万件のAI予測タンパク質構造モデルを統合している。そのウェブポータルは、多次元検索、リアルタイムの3D分子可視化、座標ファイルのバッチダウンロード、および構造データを遺伝子機能、疾患、低分子リガンドに結びつける相互参照アノテーションをサポートしており、ターゲット同定や分子ドッキング研究に広く利用されている。 |
| SEA | カリフォルニア大学サンフランシスコ校(UCSF)医薬品化学科 Shoichet研究室 | https://sea.bkslab.org/ | Similarity Ensemble Approach (SEA)は、リガンド間のセット単位での化学的類似性に基づき、タンパク質を関連付ける手法である。本手法は、大規模な化合物データベースの迅速な探索や、ターゲット間の相互類似性マップの構築に利用できる。 |
| STRINGデータベース | Global Biodata CoalitionおよびELIXIR。 | https://cn.string-db.org/ | STRINGは、既知および予測されるタンパク質間相互作用のデータベースである。これらの相互作用には、直接的(物理的)および間接的(機能的)な関連性が含まれ、コンピューターによる予測、生物種間の知識転移、および他の(一次)データベースから集約された相互作用に基づいている。 |
| Swiss Dockウェブサーバー | ローザンヌ大学分子モデリンググループおよびSIBスイスバイオインフォマティクス研究所 | https://www.swissdock.ch/ | SwissDockは、標的タンパク質と低分子化合物の間で起こりうる分子間相互作用を予測するウェブサービスです。 |
| SwissTarget Prediction | SIB | スイスバイオインフォマティクス研究所 分子モデリンググループ | https://swisstargetprediction.ch/index.php | このウェブサイトでは、生物活性を持つと想定される低分子化合物の、最も可能性の高い高分子標的を推定することができます。この予測は、3つの異なる種の3,00種類以上のタンパク質に対する370,0個の既知の活性物質ライブラリを用いた、2Dおよび3Dの類似性の組み合わせに基づいています。 |
| TargetNet | 計算生物学 & 創薬設計グループ | http://targetnet.scbdd.com/calcnet/index/ | TargetNetは、任意の分子に対して複数のターゲットの結合をネット化または予測するために利用可能な、オープンウェブサーバーである。 |
| 中医学システム薬理学データベースおよび解析プラットフォーム | Zhejiang Jiwei Health Co., Ltd | https://www.tcmsp-e.com/index.php | TCMSPは、薬剤、ターゲット、および疾患の間の関係性を捉えた、中薬に関する独自のシステム薬理学プラットフォームである。本データベースには、化合物、ターゲット、薬剤-ターゲットネットワーク、およびそれに関連する薬剤-ターゲット-疾患ネットワークが含まれている。また、天然化合物の薬物動態学的特性として、経口バイオアベイラビリティ、薬物らしさ(drug-likeness)、腸上皮透過性、血液脳関門などが含まれている。 水溶性などが挙げられます。この画期的な進展により、さまざまな種類の伝統的な生薬から候補薬剤を探索することへの関心が新たに高まっています。 |
| UniProtデータベース | 欧州バイオインフォマティクス研究所 (EMBL-EBI)、SIBスイスバイオインフォマティクス研究所、およびタンパク質情報リソース (PIR) | https://www.uniprot.org/ | UniProtは、世界的に[... ]’タンパク質配列および機能情報に関する、高品質で包括的、かつ自由にアクセス可能な主要リソース |
| Venny 2.1 オンラインツール | 国立バイオテクノロジーセンターía, (CNB-CSIC) | https://bioinfogp.cnb.csic.es/tools/venny/index.html | Vennyは単一の標準的なHTMLファイルで構成されています。ハードディスクに保存し、お好みのブラウザで開くだけで、インターネット接続がない環境でも、すぐに美しいベン図を作成することができます。 |
| VMD | 米国イリノイ大学アーバナ・シャンペーン校ベックマン研究所、理論・計算生物物理学研究グループ(TCBG) | VMD (Visual Molecular Dynamics) VMDは、生体分子の構造を可視化し、解析するためのプログラムです。 VMDの主な機能は、分子ダイナミクス(MD)シミュレーションの結果を可視化することですが、静的な構造の解析や、分子表面の作成、透過的な表現、分子間相互作用の解析などの機能も備えています。 VMDは、多くの異なる分子形式のファイルを読み込むことができ、また、他の解析ツールとの連携も可能です。 VMDは無料のソフトウェアであり、アカデミックおよび商用利用が可能です。 インストールについては、こちらのページをご参照ください。 | VMD (Visual Molecular Dynamics) は、イリノイ大学アーバナ・シャンペーン校の Klaus Schulten 教授率いる理論・計算生物物理学グループによって開発された、無料のクロスプラットフォーム分子可視化およびトラジェクトリ解析ソフトウェアである。本ソフトウェアは、標準的な PDB 構造および GROMACS、NAMD、Amber によって生成された MD トラジェクトリをサポートしており、多様な分子レンダリングスタイルと組み込みの Tcl スクリプトインターフェースを備えている。タンパク質とリガンドの動的な相互作用および構造ゆらぎを特性化するため、RMSD、水素結合占有率、SASA、リガンド結合ポケットの幾何学的構造などの定量解析を実施した。 |
参考文献
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Loeb S, et al. Overdiagnosis and overtreatment of prostate cancer. Eur Urol. 2014;65(6):1046-55.
- James ND, et al. The Lancet Commission on prostate cancer: planning for the surge in cases. Lancet. 2024;403(10437):1683-722.
- Bussard KM, Gay CV, Mastro AM. The bone microenvironment in metastasis: what is special about bone? Cancer Metastasis Rev. 2008;27(1):41-55.
- Keller ET, et al. New trends in the treatment of bone metastasis. J Cell Biochem. 2007;102(5):1095-102.
- Kingsley LA, Fournier PG, Chirgwin JM, Guise TA. Molecular biology of bone metastasis. Mol Cancer Ther. 2007;6(10):2609-17.
- Valdespino V, Tsagozis P, Pisa P. Current perspectives in the treatment of advanced prostate cancer. Med Oncol. 2007;24(3):273-86.
- Albertsen P. Predicting survival for men with clinically localized prostate cancer: what do we need in contemporary practice? Cancer. 2008;112(1):1-3.
- So A, Gleave M, Hurtado-Col A, Nelson C. Mechanisms of the development of androgen independence in prostate cancer. World J Urol. 2005;23(1):1-9.
- Gupta S. Prostate cancer chemoprevention: current status and future prospects. Toxicol Appl Pharmacol. 2007;224(3):369-76.
- Patel D, Shukla S, Gupta S. Apigenin and cancer chemoprevention: progress, potential, and promise. Int J Oncol. 2007;30(1):233-45.
- Kallifatidis G, Hoy JJ, Lokeshwar BL. Bioactive natural products for chemoprevention and treatment of castration-resistant prostate cancer. Semin Cancer Biol. 2016;40-41:160-9.
- Montuori E, et al. Marine natural products with activities against prostate cancer: recent discoveries. Int J Mol Sci. 2023;24(2):1435.
- de Paiva SR, Figueiredo MR, Aragão TV, Kaplan MAC. Antimicrobial activity in vitro of plumbagin isolated from Plumbago species. Mem Inst Oswaldo Cruz. 2003;98(7):959-61.
- Luo P, et al. Anti-inflammatory and analgesic effect of plumbagin through inhibition of nuclear factor-κB activation. J Pharmacol Exp Ther. 2010;335(3):735-42.
- Sharma I, Gusain D, Dixit VP. Hypolipidaemic and antiatherosclerotic effects of plumbagin in rabbits. Indian J Physiol Pharmacol. 1991;35(1):10-4.
- Awale S, et al. Targeting pancreatic cancer with novel plumbagin derivatives: design, synthesis, molecular mechanism, in vitro and in vivo evaluation. J Med Chem. 2023;66(12):8054-65.
- Zhang R, Jiang Q, Guo R, Guo K, Qiu J. Unveiling the power of plumbagin: revitalizing exhausted T cells to combat tongue cancer. Cancer Cell Int. 2025;25(1):271.
- Panichayupakaranant P, Ahmad MI. Plumbagin and its role in chronic diseases. Adv Exp Med Biol. 2016;929:229-46.
- Kuete V, et al. Cytotoxicity of plumbagin, rapanone, and 12 other naturally occurring quinones from Kenyan flora towards human carcinoma cells. BMC Pharmacol Toxicol. 2016;17(1):60.
- Gharbaran R, Shi C, Onwumere O, Redenti S. Plumbagin induces cytotoxicity via loss of mitochondrial membrane potential and caspase activation in metastatic retinoblastoma. Anticancer Res. 2021;41(10):4725-32.
- Aziz MH, Dreckschmidt NE, Verma AK. Plumbagin, a medicinal plant-derived naphthoquinone, is a novel inhibitor of the growth and invasion of hormone-refractory prostate cancer. Cancer Res. 2008;68(21):9024-32.
- Powolny AA, Singh SV. Plumbagin-induced apoptosis in human prostate cancer cells is associated with modulation of cellular redox status and generation of reactive oxygen species. Pharm Res. 2008;25(9):2171-80.
- Qiu JX, et al. Plumbagin elicits differential proteomic responses mainly involving cell cycle, apoptosis, autophagy, and epithelial-to-mesenchymal transition pathways in human prostate cancer PC-3 and DU145 cells. Drug Des Devel Ther. 2015;9:349-417.
- Wang F, et al. Plumbagin induces cell cycle arrest and autophagy and suppresses epithelial-to-mesenchymal transition involving the PI3K/Akt/mTOR-mediated pathway in human pancreatic cancer cells. Drug Des Devel Ther. 2015;9:537-60.
- Lai L, et al. Plumbagin inhibits tumour angiogenesis and tumour growth through the Ras signalling pathway following activation of the VEGF receptor-2. Br J Pharmacol. 2012;165(4b):1084-96.
- Wu WI, et al. Crystal structure of human AKT1 with an allosteric inhibitor reveals a new mode of kinase inhibition. PLoS One. 2010;5(9):e12913.
- Bai L, et al. A potent and selective small-molecule degrader of STAT3 achieves complete tumor regression in vivo. Cancer Cell. 2019;36(5):498-511.e17.
- Fanning SW, et al. The SERM/SERD bazedoxifene disrupts ESR1 helix 12 to overcome acquired hormone resistance in breast cancer cells. Elife. 2018;7:e37161.
- Suraweera CD, Caria S, Järvå M, Hinds MG, Kvansakul M. A structural investigation of NRZ-mediated apoptosis regulation in zebrafish. Cell Death Dis. 2018;9(10):967.
- Boulanger MJ, Chow DC, Brevnova EE, Garcia KC. Hexameric structure and assembly of the interleukin-6/IL-6 α-receptor/gp130 complex. Science. 2003;300(5628):2101-4.
- Jia Y, et al. Overcoming EGFR(T790M) and EGFR(C797S) resistance with mutant-selective allosteric inhibitors. Nature. 2016;534(7605):129-32.
- Dos Santos Nascimento IJ, da Silva-Júnior EF. TNF-α inhibitors from natural compounds: an overview, CADD approaches, and their exploration as anti-inflammatory agents. Comb Chem High Throughput Screen. 2022;25(14):2317-40.
- Chaikuad A, et al. A unique inhibitor binding site in ERK1/2 is associated with slow binding kinetics. Nat Chem Biol. 2014;10(10):853-60.
- Brasca MG, et al. Discovery of NMS-E973 as a novel, selective, and potent inhibitor of heat shock protein 90. Bioorg Med Chem. 2013;21(22):7047-63.
- Gurbani D, et al. Structure and characterization of a covalent inhibitor of Src kinase. Front Mol Biosci. 2020;7:81.
- Gellrich L, et al. L-thyroxin and the nonclassical thyroid hormone TETRAC are potent activators of PPARγ. J Med Chem. 2020;63(13):6727-40.
- Weng Z, Shen X, Zheng J, Liang H, Liu Y. Structural basis of DEPTOR to recognize phosphatidic acid using its tandem DEP domains. J Mol Biol. 2021;433(13):166989.
- Huck JD, et al. Structures of Hsp90α and Hsp90β bound to a purine-scaffold inhibitor reveal an exploitable residue for drug selectivity. Proteins. 2019;87(10):869-77.
- Luo G, et al. Discovery of isonicotinamides as highly selective, brain-penetrable, and orally active glycogen synthase kinase-3 inhibitors. J Med Chem. 2016;59(3):1041-51.
- Orlando BJ, Malkowski MG. Crystal structure of rofecoxib bound to human cyclooxygenase-2. Acta Crystallogr F Struct Biol Commun. 2016;72(Pt 10):772-6.
- Nuti E, et al. Development of thioaryl-based matrix metalloproteinase-12 inhibitors with alternative zinc-binding groups: synthesis, potentiometric, NMR, and crystallographic studies. J Med Chem. 2018;61(10):4421-35.
- Li Q, Li Z, Luo T, Shi H. Targeting the PI3K/AKT/mTOR and RAF/MEK/ERK pathways for cancer therapy. Mol Biomed. 2022;3(1):47.
- Wang B, et al. Propofol protects against hydrogen peroxide-induced injury in cardiac H9c2 cells via Akt activation and Bcl-2 up-regulation. Biochem Biophys Res Commun. 2009;389(1):105-11.
- Majewska E, Szeliga M. AKT/GSK3β signaling in glioblastoma. Neurochem Res. 2017;42(3):918-24.
- Yang H, et al. mTOR kinase structure, mechanism, and regulation. Nature. 2013;497(7448):217-23.
- Fong CJ, Sherwood ER, Mendelsohn J, Lee C, Kozlowski JM. Epidermal growth factor receptor monoclonal antibody inhibits constitutive receptor phosphorylation, reduces autonomous growth, and sensitizes androgen-independent prostatic carcinoma cells to tumor necrosis factor α. Cancer Res. 1992;52(21):5887-92.
- Visakorpi T, Kallioniemi OP, Koivula T, Harvey J, Isola J. Expression of epidermal growth factor receptor and ERBB2 (HER-2/Neu) oncoprotein in prostatic carcinomas. Mod Pathol. 1992;5(6):643-8.
- Ibrahim GK, et al. Differential immunoreactivity of epidermal growth factor receptor in benign, dysplastic, and malignant prostatic tissues. J Urol. 1993;149(1):170-3.
- Davies P, Eaton CL. Binding of epidermal growth factor by human normal, hypertrophic, and carcinomatous prostate. Prostate. 1989;14(2):123-32.
- Bahar ME, Kim HJ, Kim DR. Targeting the RAS/RAF/MAPK pathway for cancer therapy: from mechanism to clinical studies. Signal Transduct Target Ther. 2023;8(1):455.
- Guo YJ, et al. ERK/MAPK signalling pathway and tumorigenesis. Exp Ther Med. 2020;19(3):1997-2007.
- Ullah R, Yin Q, Snell AH, Wan L. RAF-MEK-ERK pathway in cancer evolution and treatment. Semin Cancer Biol. 2022;85:123-54.
- Chambard JC, Lefloch R, Pouysségur J, Lenormand P. ERK implication in cell cycle regulation. Biochim Biophys Acta. 2007;1773(8):1299-310.
- Gesmundo I, et al. Proton pump inhibitors promote the growth of androgen-sensitive prostate cancer cells through ErbB2, ERK1/2, PI3K/Akt, GSK-3β signaling and inhibition of cellular prostatic acid phosphatase. Cancer Lett. 2019;449:252-62.
- Schopf FH, Biebl MM, Buchner J. The HSP90 chaperone machinery. Nat Rev Mol Cell Biol. 2017;18(6):345-60.
- García-Alonso S, et al. Structure of the RAF1-HSP90-CDC37 complex reveals the basis of RAF1 regulation. Mol Cell. 2022;82(18):3438-52.e8.
- Chiosis G, Digwal CS, Trepel JB, Neckers L. Structural and functional complexity of HSP90 in cellular homeostasis and disease. Nat Rev Mol Cell Biol. 2023;24(11):797-815.
- Li J, Buchner J. Structure, function, and regulation of the Hsp90 machinery. Biomed J. 2013;36(3):106-17.
- Youssef ME, et al. Role of ganetespib, an HSP90 inhibitor, in cancer therapy: from molecular mechanisms to clinical practice. Int J Mol Sci. 2023;24(5):5014.
- Solit DB, Scher HI, Rosen N. Hsp90 as a therapeutic target in prostate cancer. Semin Oncol. 2003;30(5):709-16.
- Hoter A, Rizk S, Naim HY. The multiple roles and therapeutic potential of molecular chaperones in prostate cancer. Cancers (Basel). 2019;11(8):1194.
- Moon SJ, et al. Bruceantin targets HSP90 to overcome resistance to hormone therapy in castration-resistant prostate cancer. Theranostics. 2021;11(2):958-73.
- Li J, et al. Androgen-targeted hsa_circ_0085121 encodes a novel protein and improves the development of prostate cancer through facilitating the activity of the PI3K/Akt/mTOR pathway and enhancing AR-V7 alternative splicing. Cell Death Dis. 2024;15(11):848.
- Taneja SS, et al. Toremifene: a promising therapy for the prevention of prostate cancer and complications of androgen deprivation therapy. Expert Opin Investig Drugs. 2006;15(3):293-305.
- Yang J, et al. Protective effect of Fuzi Lizhong decoction against non-alcoholic fatty liver disease via an anti-inflammatory response through regulation of p53 and PPARG signaling. Biol Pharm Bull. 2020;43(11):1626-33.
- Sui Q, et al. Ganoderic acid A: an in-depth review of pharmacological effects and molecular docking analysis. J Ethnopharmacol. 2025;349:119868.
- Zhang T, et al. PPARG is a potential target of Tanshinone IIA in prostate cancer treatment: a combination study of molecular docking and dynamic simulation based on transcriptomic bioinformatics. Eur J Med Res. 2023;28(1):487.
- Astakhova A, et al. Inhibitors of oxidative phosphorylation modulate astrocyte inflammatory responses through AMPK-dependent Ptgs2 mRNA stabilization. Cells. 2019;8(10):1185.
- Liu Y, Cai Y, He C, Chen M, Li H. Anticancer properties and pharmaceutical applications of plumbagin: a review. Am J Chin Med. 2017;45(3):423-41.
- Ahmad I, et al. Synergistic inhibition of colon cancer cell proliferation via p53, Bax, and Bcl-2 modulation by curcumin and plumbagin combination. ACS Omega. 2025;10(18):19045-60.
- Bello IJ, Oyebode OT, Olanlokun JO, Omodara TO, Olorunsogo OO. Plumbagin induces testicular damage via mitochondrial-dependent cell death. Chem Biol Interact. 2021;347:109582.
- Hafeez BB, et al. Plumbagin inhibits prostate carcinogenesis in intact and castrated PTEN knockout mice via targeting PKCε, Stat3, and epithelial-to-mesenchymal transition markers. Cancer Prev Res (Phila). 2015;8(5):375-86.
- Kumar MR, et al. Formulation of plumbagin-loaded long-circulating pegylated liposomes: in vivo evaluation in C57BL/6J mice bearing B16F1 melanoma. Drug Deliv. 2011;18(7):511-22.
- Mandala Rayabandla SK, et al. Preparation, in vitro characterization, pharmacokinetic, and pharmacodynamic evaluation of chitosan-based plumbagin microspheres in mice bearing B16F1 melanoma. Drug Deliv. 2010;17(3):103-13.
- Tiwari SB, Pai RM, Udupa N. Temperature-sensitive liposomes of plumbagin: characterization and in vivo evaluation in mice bearing melanoma B16F1. J Drug Target. 2002;10(8):585-91.
- Onoue S, Yamada S, Chan HK. Nanodrugs: pharmacokinetics and safety. Int J Nanomedicine. 2014;9:1025-37.