マイクロプレートを用いた発光システムを用いて、ヒト誘導多能性幹細胞(iPSC)由来のミクログリアにおける細胞外タウのクリアランスを測定する、感度が高く時間分解可能な定量的プラットフォームを記述します。このアプローチにより、マイクロウェル形式でのタウ劣化速度論の感度検出が可能となり、さまざまな実験条件下での高スループットのタウ処理の問い合わせが可能になります。
この記事について
サマリー
要約
中枢神経系の常駐免疫細胞として、ミクログリアは脳の恒常性調節の中心的役割を果たし、神経変性疾患の主要な媒介者です。これらの細胞は神経環境を継続的に調査し、病的なタウのような誤折りたたまれたタンパク質を含む細胞外基質の認識、内部化、分解に重要な役割を果たします。ミクログリアがTauクリアランスに関与するという証拠が増えているにもかかわらず、既存のTau取り込み・分解測定手法は、これらの動的プロセスを十分に捉えるために必要な時間的解像度や感度を欠いています。本研究では、ヒト誘導多能性幹細胞(iPSC)由来のマイクログリアにおけるtauクリアランスを定量的に監視するための発光ベースのアッセイを開発しました。このプラットフォームはスプリットルシフェラーゼベースの補完システムを活用し、生細胞内のタウを高感度かつリアルタイムで検出し、細胞内処理の精密な追跡を可能にします。このアッセイは複数の細胞タイプに拡張可能で適応可能であり、アルツハイマー病を含む神経変性疾患における内性リソーム経路やタウ処理を支配する細胞メカニズムを検証するための多用途なツールを提供します。
概要
アルツハイマー病(AD)を含むタウオパチーは、微小管関連タンパク質タウが神経回路に集まり広がることを特徴とします1,2。グリアは、タウ病の動態、すなわち取り込み、分解、拡散の調節因子としてますます評価されています。3,4,5,6,7,8,9,10,11,12。グリアがタウオパチーにどのように寄与するかを理解することは、神経炎症やタウの転移など主要な疾患のダイナミクスを解決するための緊急の課題です。グリア集団の中で、脳の常駐食細胞であるミクログリアは、タウ除去を媒介する独特の位置にあります。
ミクログリアにおけるタウ処理のメカニズムを解明する緊急の必要性があるにもかかわらず、利用可能なアッセイの解像度とスループットは依然として限られています。タウの内部化、細胞内輸送、細胞クリアランスに関する重要な課題は未解決のままです。これらの各ステップは機構的に異なるプロセスを表しています。取り込みとは細胞外タウが細胞膜で内部化されることを指します。輸送は、内在化されたタウをエンドソーム、リソーマーム、その他の細胞内区画を通じて選別し輸送することを指します。分解とは主にリソームおよびプロテアソーム経路を介してタウのプロテオ分解を指す。これらのステップは細胞外タウ処理において連続的ですが、内部化されたタウは分解機構に到達する前に細胞内の区画を通過しなければなりません。しかし独立して調節されており、特定の実験的摂動が他の段階を変えることなく一つの段階に影響を与えることがあります。例えば、細胞内のタウ信号の減少は、取り込みの障害、劣化区画からの誤誘導、または分解の促進を反映する可能性があります。これらのプロセスを解明するには、タンパク質の存在を検出し、既存の測定と組み合わせて時間経過によるタンパク質の運命を決定できる新しいアッセイプラットフォームが必要です。
現在のtau内部化および分解解解の方法は、免疫細胞化学、フローサイトメトリー、ウェスタンブロッティング、蛍光標識法を用いて、tau種13,14,15,16,17,18の取り込み、細胞内定在、細胞内処理を定量化しています.しかし、これらのアプローチはいずれもタンパク質クリアランス動態の研究に適用する際に根本的な制約を抱えています。免疫細胞化学やウェスタンブロッティングは低存在量のタウ種を検出する感度を欠き、労力集約的です。フローサイトメトリーや蛍光ベースのアッセイは、共役タンパク質が分解された後も蛍光色体が残留し、蛍光信号と実際のタンパク質の運命が切り離されるため、タンパク質クリアランスを正確に報告できません。これらの制約が重なり、既存の方法が同時にタウクリアランスの動態を定量的に追跡するために必要な感度、時間的解像度、スケーラビリティを提供する方法が存在しません。したがって、ミクログリアにおけるタウ処理動態の理解における大きな障害は、生細胞でタウクリアランスを定量的かつ時間分解可能かつ高スループットで測定するアッセイが不足していることです。
生きたタウの動態を定量的に監視するプラットフォームが不足している問題に対処するため、細胞内のタウタンパク質動態を検出できる感度の高い発光ベースのアッセイを開発しました。このアプローチは、スプリットルシフェラーゼベースの補完系を用いており、小さなペプチドタグ(高親和性バイナリー技術、HiBiT)をタウに融合させることで、生細胞内での動態的測定を可能にします。補完的な結合パートナー(Large Binary Technology、LgBiT)と相互作用すると、タグ付けされたタンパク質は活性ルシフェラーゼ酵素を再構成し、定量的な生物発光シグナル20,21,22を生成します。この発光信号はタンパク質の存在量を直接かつ高感度に読み取り、時間経過による細胞内レベルの変化を動的に追跡することを可能にします。その結果、発光は細胞内分解の場合のようにタンパク質の存在や喪失を強固に報告する手段として利用されます。このプラットフォームは、tau処理の正確かつ時間的に分解された測定を可能にし、タンパク質ターンオーバーの研究に広く応用可能な戦略を提供します。
プロトコル
すべての細胞実験は、マサチューセッツ大学アマースト校環境健康サービスによって承認された適切なバイオセーフティレベル2の実験室で実施されました。
1. Tau-SLPタンパク質の発現、精製、エンドトキシン除去
- Tau構造体にスプリットルシフェラーゼペプチドまたはSLPタグ(VSGWRLFKKIS)を付加し、Gibsonassembly 23のような標準的なクローニング手法を用いてタグ付き構成体(Tau-SLP)を作成します。
注:分割ルシフェラーゼペプチドタグの補完は、2N4R Tau24のC末端、N末端、または内部ドメインのいずれかに配置された際に堅牢なシグナルを生成します。 - 先に記載された方法25,26を用いてTau-SLPを発現・精製し、SDS-PAGおよび免疫ブロッティングを用いて純度を確保します。
- マイクログリア細胞での使用については、Tau-SLP精製後に細菌内毒素を除去する公表プロトコルに従い、交絡反応性を制限します。
- 標準的なビシンコニン酸アッセイ(BCA)またはブラッドフォードアッセイ28,29を用いてTau-SLPタンパク質濃度を定量します。
- 希望すれば、前述のプロトコルに従ってTau-SLPを集約できます。
- 製造元の指示に従い、市販のルシフェラーゼ基質と補完試薬を用いて標準曲線を生成することで、Tau-SLPの機能的発光を検証します(材料 表参照)。
2. iPSC由来ミクログリア(iTF-ミクログリア)培養
- 適切な培地で5%CO2 のミクログ細胞を37°Cで培養します。
- 検証済みプロトコル30 (材料 表参照)を用いて、6つのドキシサイクリン誘導転写因子を持つ誘導多能性幹細胞(iPSC)系統を分化し、誘導転写因子マイクログリア様細胞(誘導転写因子マイクログリア様、iTF-ミクログリア)を産生します。
注:このアッセイはiTF-ミクログリアに限定されず、どの接着細胞株にも使用できます。他の細胞株で作業する場合、クリアランス時間の最適化が必要になる場合があります。
3. タウクリアランス分析
- 24ウェルプレートに、1 x 10⁵ セルの密度で1個ずつ3つの条件ごとに3枚ずつ、培養培地(250 μL)で培地を用いて、37°C、5%CO2 で一晩培養します(図1A)。
- 培地を取り出し、PBS(250 μL)で細胞を一度洗浄し、250 μLの培養液に交換します。
- Tau-SLPクリアランスを時間的に測定するには、すべてのウェルが同時に収穫され、クリアランス時間の違いのみを差すように、Tau-SLPに交互に曝露します。例えば、0 h、2 h、4 hのクリアランス群に対して、まず4 h群に100 nMのTau-SLP含有培地を加え、次に1時間後に2h群、最後に1時間後に0 h群に加えます(タイミングの推奨は 図1B 参照)。最終内部化期間が完了すると、すべてのウェルは同じTau-SLP曝露期間を経て、クリアランス時間のみが異なります(図1B)。
- 背景除去に対してTau-SLP処理を行わないウェルを含める(図1C)。
- 内在化期間の終わりに、Tau-SLPを含む培地を除去します。細胞をPBSで3回洗浄し、細胞外Tau-SLPを除去し、Tau-SLPフリー培養液に置き換えます。
- 指定されたクリアランス期間(図1A)に細胞を培養します。0時間クリアランスグループは、内化期間直後に収穫され、クリアランスフェーズ開始時の内化Tau-SLPの総量を表します。
- すべてのクリアランスタイムポイントの後にウェルから培地を取り出し、250μL PBSで洗浄します。
- それぞれ250μLのトリプシン-EDTA 0.25%を37°Cで5分間処理します。 この工程は表面に縛られたタウを除去し、発光が内部化されたタウ-SLPを反射するようにします。各ウェルを250μLのトリプシン阻害剤(5 mg/mL)で中和します。
- 各井戸を適切にラベル付けされた1.5 mLのマイクロ遠心分離機チューブに集め、遠心分離(500 x g、5分)でペレットを採取します。
- ルシフェラーゼ基質および補完成分を含む適切な量のリシスバッファーを準備します(材料 表参照;50μL × #ウェル+10%)。
- 各上澄液を吸引ピペットで除去し、細胞ペレットをルシフェラーゼ基質および補完成分を含む50μLの溶解バッファーに再懸浮させます。これにより分裂ルシフェラーゼ補完複合体が生成され、発光が発生します(図1D)。
- 溶解細胞を白色の半容量96ウェルプレートに移す。
- マイクロプレートリーダーで蛍光を読み取り、室温(~23°C)で10秒間軌道振動を行い、細胞ペレットの完全な溶解を保証します。
- まず、Tau-SLPに曝露されていないウェルから得られる平均発光値を差し引いて正規化されたTau-SLP存在比を求める。各値を0時クリアランス群の平均背景減算信号に正規化します。
- プロットではクリアランス時間の関数としてTau-SLP存在量を正規化しました。発光の進行的な減少は細胞内のTau-SLP存在比の減少を示し、Tau-SLPクリアランスと解釈されます。一方、発光が安定している場合はクリアランスの障害または遅延を示します。クリアランスの割合を次のように計算します:% クリアランス = [1 − (RLUt / RLUt = 0)] × 100。
結果
この高感度発光ベースのアッセイを用いることで、ヒトiPSC由来のミクログリアにおける同期取り込み期間の後、細胞内のTau-SLP存在比を時間をかけてモニタリングすることが可能となりました。Tau-SLPの洗い流し後、発光は着実に低下し、細胞内のTau-SLPクリアランスと一致します。このプラットフォームは、ミクログリアによる単量体および線維型Tau-SLP種の取り扱いの違いを検出するのに十分な感度を持っていました。単量体Tau-SLPはiTF-ミクログリアで60分以内に完全に除去され、線維性Tau-SLPは240分以上持続しました(図2A)。さらに、変異したタウ(例:N279K)を用いたクリアランス動力学の評価を行い、TauN279K-SLPはわずかなクリアランス時間点(15分)でのみ有意にクリアランス動力学が低下していることがわかりました(図2B)。これらの結果は、観察された劣化がこのアッセイの高い感度によるものである可能性を示唆しています。私たちは、L-ルイシル-L-ロイシンメチルエステル(LLOMe)を用いたTau-SLP分解実験を行い、リソソームの関与を確認しました。LLOMeはカテプシンC基質で、リソソーム膜を透過化し、リソソーム活性を破壊します。LLOMe処理により、t=0時の定常状態レベルが有意に増加し(図3A)、分解率が有意に低下し(図3B)、60分クリアランス時間後にTau-SLPが4倍に増加していることが観察されました。最後に、iPSC由来ニューロンでTau-SLPクリアランスアッセイを実施し、細胞型を超えたアッセイ適合性を確認しました。ここでは、iPSC由来ニューロンがTau-SLPの単量体型(図4A)および線維型(図4B)の両方でクリアランス速度論が低下していることがわかりました。特に注目すべきは、Tau-SLP線維レベルが240分間クリアランスで~100%で安定しているのに対し、同時期にiTF-ミクログリアではTau-SLP線維レベルが50%を下回っています。これらの結果は、我々のスプリットルシフェラーゼベースの補完プラットフォームがTau-SLPの細胞内エンドリゾソームクリアランスを堅牢かつ信頼性の高い検出に提供し、多くの他のタンパク質や細胞型にも応用可能な高度に適応性の高いアッセイ設計を示していることを示しています。
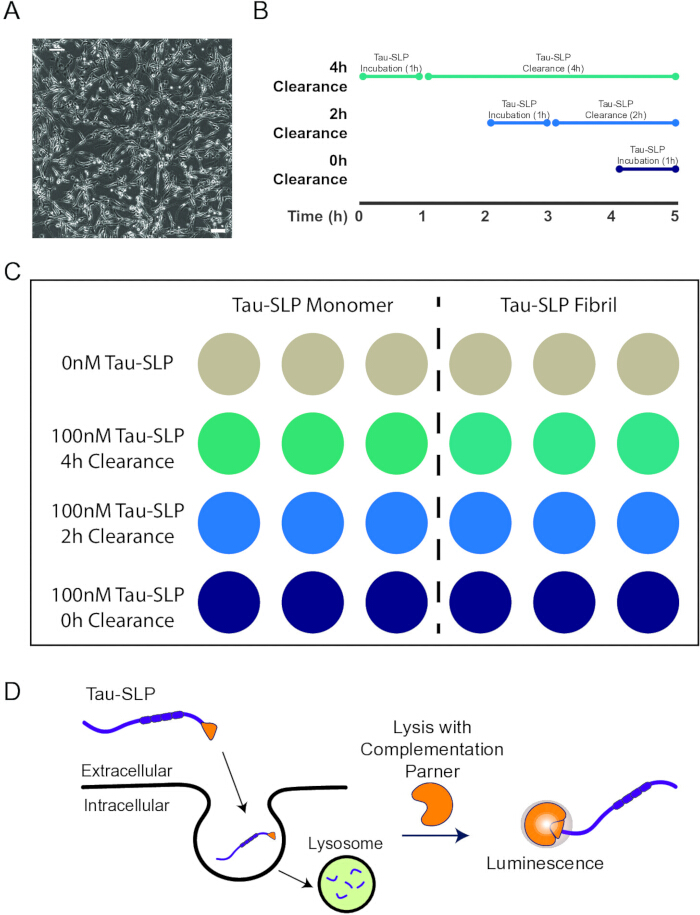
図1:Tau-SLPクリアランスアッセイの代表的な実験デザイン。 (A) 本アッセイで用いられたiTF-ミクログリアの代表的なブライトフィールド画像(スケールバー=100μm) (B) ヒトミクログリア(iTF-ミクログリア)を組換え2N4R-SLPに段階的に曝露し、堅牢な発光検出を可能にします。1時間の培養後、培地交換により細胞外タウが除去され、細胞はPBSで洗浄されます。細胞は収穫前のそれぞれのクリアランス期間(0時間、2時間、4時間)に基底培地内に保持されます。エンドポイントで細胞を溶解し、発光を測定します。(C) 単量体と線維分解の比較によるTau-SLPクリアランス測定のためのプレート設計提案。(D) Tau-SLPタンパク質は細胞内に内部化され、リソソーム分解のためにルーティングされます。LgBiTの添加により、補完および発光の生成を通じて細胞内に残るTau-SLPの量を定量的に読み取ります。この図の拡大版はこちらをクリックしてご覧ください。
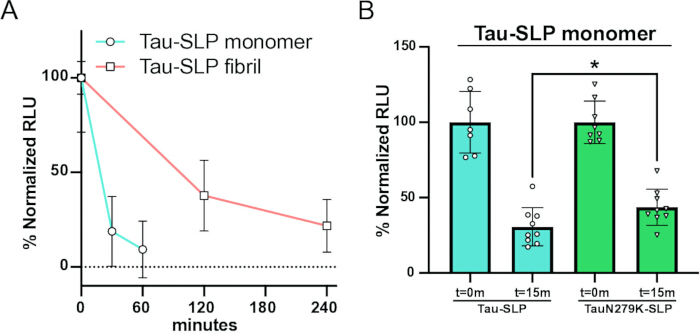
図2:iTF-ミクログリアは細胞外Tau-SLPをクリア。 (A) iTF-ミクログリアは単量体Tau-SLP(100nM)または線維状Tau-SLP(50nM)に曝露され、サンプルはそれぞれ初期取り込み(t = 0; 100%)およびTau-SLP(0%)に曝露されていない細胞に正規化されました(平均±SD1;3つの独立分化からn = 9)。(B) iTF-ミクログリアは単量体Tau-SLPまたはTauN279K-SLP(100nM)とインキュベートされ、サンプルはそれぞれ初期取り込み(t = 0; 100%)およびTau-SLPに曝露されていない細胞(平均標準差± SD;3つの独立した微分から n ≥ 7;∗ p は未ペアのウェルチt検定を用いて0.05 <データはShultzら(2025年、24頁)から転載し、クリエイティブ・コモンズ表示(CC BY 4.0)ライセンスの下で使用。 この図の拡大版はこちらをクリックしてご覧ください。
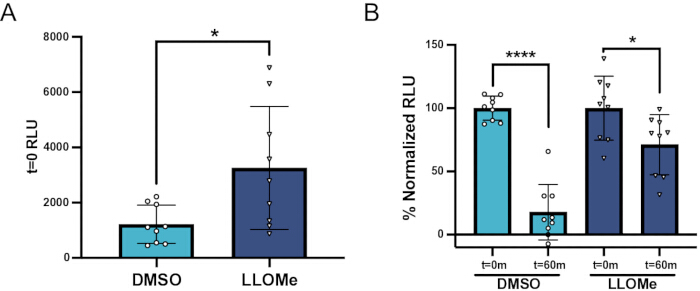
図3:リソソーム阻害がTau-SLPクリアランスを損なう。 (A) 1mMリソソーム阻害剤L-ルイシル-L-ロイシンメチルエステル(LLOMe)による24時間治療により、H4神経膠腫細胞における初期Tau-SLP取り込み(t=0)が増加しました(平均±SD平均、n=9個の独立培養、∗< p /0.05、未ペアのウェルチt検定による)。(B) LLOMe(1mM)による24時間治療では、60分クリアランス時間(t = 60分)後に、活性体(DMSO)と比較して正常化Tau-SLP RLUの割合が増加しました。発光信号はそれぞれの初期取り込みレベル(100%)およびTau-SLPに曝露されていない細胞(0%)に正規化されます(平均±SD平均;n=9個の独立培養;∗∗∗∗ p < 0.0001、∗ p <0.05、未ペアのウェルチt検定を用いて)。データはShultzら(2025年、24頁)から転載し、クリエイティブ・コモンズ表示(CC BY 4.0)ライセンスの下で使用。 この図の拡大版はこちらをクリックしてご覧ください。
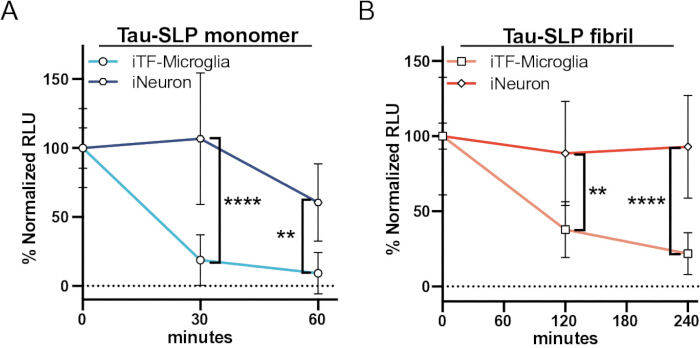
図4:iTF-ミクログリアとiニューロンはTau-SLPクリアランスに違いを示します。 (A) iTF-ミクログリアまたはiニューロンは単量体Tau-SLP(100nM)でインキュベートされ、サンプルはそれぞれ初期取り込み(t=0; 100%)およびTau-SLPに曝露されていない細胞(0%)に正規化されました(平均±標準差;2〜3回の独立分化からn、n ≥ 6;∗∗ p < 0.01、∗∗∗∗ p < 0.0001;時間: F(1, 28) = 7.489, p = 0.0107;細胞タイプ: F(1, 28) = 46.61, p < 0.0001;相互作用: F(1, 28) = 3.229, p = 0.0831;シダックの多重比較検定(図に示された p 値、t=0の値)は参考として示されていますが、統計解析から除外されています。(b) iTF-ミクログリアまたはiニューロンは線維性Tau-SLP(50nM)でインキュベートされ、サンプルはそれぞれ初期取り込み(t=0; 100%)およびTau-SLPに曝露されていない細胞(0%)に正規化されました(平均±標準差;n≥6から2回から3回の独立分化のうち;∗∗ p < 0.01、∗∗∗∗ p < 0.0001、2元ANOVAを用いて;時間: F(1, 26) = 0.3888, p = 0.5384;セルタイプ: F(1, 26) = 43.09、 p < 0.0001;相互作用: F(1, 26) = 1.209, p = 0.2816;シダックの多重比較検定(図に示された p 値、t=0の値)は参考として示されていますが、統計解析から除外されています。データはShultzら(2025年、24頁)から転載し、クリエイティブ・コモンズ表示(CC BY 4.0)ライセンスの下で使用。 この図の拡大版はこちらをクリックしてご覧ください。
ディスカッション
このアッセイは、高感度かつ時間的解像度でミクログリアによる細胞外Tau-SLPクリアランスを測定するための拡張可能かつ定量的なプラットフォームを提供します。従来のイメージング手法は、しばしば手間のかかるサンプル処理やスループットや時間的サンプリングに制限があるのに対し、この発光ベースのシステムは、マイクロプレート形式でタウの処理を直接的かつ集団レベルで定量化することを可能にします。その結果、細胞外タウ曝露後のTau-SLPクリアランスの定量的な測定が得られます。測定は複数の時間点にまたがって繰り返し取得でき、より長いインキュベーション期間で得られるため、このアッセイはタウの取り込みおよびクリアランス動態の高スループットかつ動力学的に分解された解析を可能にします。さらに、時間経過による発光の変化は細胞内のTau-SLP存在比の変化と整合しますが、補完的なアプローチなしに輸送、分解、分泌を区別することはできません。我々の伴随研究ではTau-SLPタグ付けはタウの取り込みや凝集に有意な変化を与えませんでしたが、外因性タグは他のタンパク質の挙動に影響を与える可能性があります。したがって、アッセイ結果は直交的なアプローチで補完し、可能な限りタグなしタウ製剤と比較されるべきです。さらに、このアッセイは内因性タウや患者由来の病理学的タウ集合体ではなく組換えTau-SLP種を使用している点も制限されています。組換え2N4Rタウは再現可能な実験基質を提供しますが、ヒト患者の脳から分離されたタウ種の内因性異質性(すなわち翻訳後の修飾)を完全に再現することはできません。組換えタウタンパク質のin vitroリン酸化には多くのプロトコルが存在し、このワークフローに容易に組み込めます。このプラットフォームは内因性タウの研究にも応用可能です。これには遺伝子工学を用いてTau遺伝子座にSLPタグ配列(MAPT)を組み込む必要があります。
重要なのは、シグナル還元を分解と解釈するには、トリプシン化や同等のストリッピングステップなどによる細胞外および表面結合型タウの効果的な除去に依存しているという点です。効果的な除去ができなければ偽陰性が起こる可能性があります。タウ分解の誤陽性と解釈される見かけの信号損失も考えられます。これは細胞剥離や死、Tau-SLPの分泌、またはタンパク質を分解せずにSLPをタウから分離するプロテオリタンス切断によって引き起こされることがあります。したがって、発光の減少はリソソーム分解の直接的な測定ではなく、細胞内のTau-SLP存在比の減少と解釈すべきです。シグナル変化をより明確にリソソーム分解に帰属させるためには、直交検証戦略が推奨されます。これには、バフィロマイシンA1やLLOMeによる治療(図3)などのリソソーム機能の薬理学的摂動や、取り込みと分解の動態を解明するためのパルスチェイス実験設計が含まれます。
このアッセイの柔軟性により、タウの取り込み、細胞内輸送、分解を制御するメカニズムの検証や、ヒト細胞系におけるタウ除去の薬理学的または遺伝的調節因子のスクリーニングに適しています。ここではiPSC由来のミクログリアで実証されていますが、このプラットフォームは他の細胞タイプにも容易に適応でき(図4)、アルツハイマー病やその他の一次・二次タウオパ症を含むタウ生物学や神経変性疾患のモデル全体に幅広く応用可能です。このアッセイはTau-SLPの細胞外曝露と発光ベースの検出に依存しているため、アストロサイト、オリゴデンドロサイト、または一般的に使われる細胞株に容易に適応できるはずですが、取り込み条件の最適化が必要になる場合があります。このアプローチは総合的に、プロテオスタシスに関与する細胞経路の解明と神経変性疾患プロセスのメカニズム的理解を深める強力なツールを提供します。
開示事項
著者たちは何も明かすことはありません。
謝辞
この研究は国立衛生研究所(NIH)からの助成金(AG064116年、AG077672年)によって支援されました
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Accutase | Thermo Scientific | A1110501 | |
| Conical Sterile Polypropylene Centrifuge Tubes | Fisher Scientific | 12-565-268 | |
| Corning Matrigel Growth Factor Reduced (GFR) Basement Membrane Matrix, Phenol Red-free, LDEV-free | Corning | 356231 | |
| DMEM/F-12, HEPES | Thermo Scientific | 11330057 | |
| Doxycycline | Clontech | 631311 | |
| DPBS | Thermo Scientific | 14-190-250 | |
| GlutaMAX | Thermo Scientific | 35050061 | |
| Graphing Software | GraphPad Prism (or similar) | n/a | |
| Human GM-CSF | Thermo Scientific | 300-03 | |
| KnockOut DMEM | Thermo Scientific | 10829018 | |
| Luminescent Plate Reader | SpectraMax i3x (or similar) - Molecular Devices | n/a | |
| Microcentrifuge Tubes | Fisher Scientific | 02-682-002 | |
| Microplate, 96 Well, PS, Half-area, White | Greiner | 675075 | |
| mTeSR Plus | STEMCELL Technologies | 100-0276 | |
| Nano-Glo HiBiT Lytic Detection System | Promega | N3030 | |
| Poly-L-Lysine hydrobromide | Fisher Scientific | ICN15017750 | |
| Recombinant Human IL-34 | Thermo Scientific | 200-34 | |
| Recombinant Human M-CSF | Thermo Scientific | 300-25 | |
| Recombinant Human TGF-β1 | Thermo Scientific | 100-21C | |
| Surface Treated Sterile Tissue Culture Plates | Fisher Scientific | FB012927 | |
| Tau-HiBiT protein | In house | n/a | Tau protein with a VSGWRLFKKIS peptide tag |
| Trypsin Inhibitor | Sigma Aldrich | T9128 | |
| Trypsin-EDTA | Thermo Scientific | 5-200-072 | |
| Y-27632 dihydrochloride | Bio-techne | 1254 |
参考文献
- Vogel, J. W. et al. Spread of pathological tau proteins through communicating neurons in human Alzheimer’s disease. Nat Commun 11, 2612 (2020).
- Weber, A. J. et al. Tau seeds induce neurofibrillary tangle formation across brain regions via individual-specific connectivity. Neuron S0896627326001649 doi:10.1016/j.neuron.2026.03.001 (2026).
- Luo, W. et al. Microglial internalization and degradation of pathological tau is enhanced by an anti-tau monoclonal antibody. Sci Rep 5, 11161 (2015).
- Bolós, M. et al. Direct Evidence of Internalization of Tau by Microglia In Vitro and In Vivo. JAD 50, 77-87 (2016).
- Bolós, M. et al. Absence of CX3CR1 impairs the internalization of Tau by microglia. Mol Neurodegeneration 12, 59 (2017).
- Perea, J. R. et al. Extracellular Monomeric Tau Is Internalized by Astrocytes. Front. Neurosci. 13, 442 (2019).
- Fleeman, R. M., & Proctor, E. A. Astrocytic Propagation of Tau in the Context of Alzheimer’s Disease. Front. Cell. Neurosci. 15, 645233 (2021).
- Mothes, T. et al. Astrocytic uptake of neuronal corpses promotes cell-to-cell spreading of tau pathology. acta neuropathol commun 11, 97 (2023).
- Eltom, K., Mothes, T., Libard, S., Ingelsson, M., & Erlandsson, A. Astrocytic accumulation of tau fibrils isolated from Alzheimer’s disease brains induces inflammation, cell-to-cell propagation and neuronal impairment. acta neuropathol commun. 12, 34 (2024).
- Ferrer, I. et al. Involvement of Oligodendrocytes in Tau Seeding and Spreading in Tauopathies. Front. Aging Neurosci. 11, 112 (2019).
- Hopp, S. C. et al. The role of microglia in processing and spreading of bioactive tau seeds in Alzheimer’s disease. J Neuroinflammation 15, 269 (2018).
- Asai, H. et al. Depletion of microglia and inhibition of exosome synthesis halt tau propagation. Nat Neurosci 18, 1584-1593 (2015).
- Dickson, J. R. et al. Alzheimer disease-associated tau post-translational modification mimics impact tau propagation and uptake. Journal of Neuropathology & Experimental Neurology 84, 459-470 (2025).
- Weisová, P. et al. Therapeutic antibody targeting microtubule-binding domain prevents neuronal internalization of extracellular tau via masking neuron surface proteoglycans. acta neuropathol commun 7, 129 (2019).
- Shamir, D. B., Rosenqvist, N., Rasool, S., Pedersen, J. T., & Sigurdsson, E. M. Internalization of tau antibody and pathological tau protein detected with a flow cytometry multiplexing approach. Alzheimer’s & Dementia. 12, 1098-1107 (2016).
- Evans, L. D. et al. Extracellular Monomeric and Aggregated Tau Efficiently Enter Human Neurons through Overlapping but Distinct Pathways. Cell Reports 22, 3612-3624 (2018).
- Holmes, B. B. et al. Heparan sulfate proteoglycans mediate internalization and propagation of specific proteopathic seeds. Proc. Natl. Acad. Sci. U.S.A. 110, (2013).
- Boland, B. et al. Autophagy induction and autophagosome clearance in neurons: relationship to autophagic pathology in Alzheimer’s disease. J Neurosci 28, 6926-6937 (2008).
- Mandrekar, S. et al. Microglia Mediate the Clearance of Soluble Aβ through Fluid Phase Macropinocytosis. J. Neurosci. 29, 4252-4262 (2009).
- Oh-hashi, K., Furuta, E., Fujimura, K., & Hirata, Y. Application of a novel HiBiT peptide tag for monitoring ATF4 protein expression in Neuro2a cells. Biochemistry and Biophysics Reports. 12, 40-45 (2017).
- Schwinn, M. K. et al. CRISPR-Mediated Tagging of Endogenous Proteins with a Luminescent Peptide. ACS Chem. Biol. 13, 467-474 (2018).
- Boursier, M. E. et al. The luminescent HiBiT peptide enables selective quantitation of G protein–coupled receptor ligand engagement and internalization in living cells. Journal of Biological Chemistry 295, 5124-5135 (2020).
- Gibson, D. G. et al. Enzymatic assembly of DNA molecules up to several hundred kilobases. Nat Methods 6, 343-345 (2009).
- Shultz, A. et al. Extracellular tau clearance is governed by its aggregation state and independent of microglial activation by LPS and IFN-γ. Neurobiology of Disease 215, 107058 (2025).
- Rauch, J. N. et al. LRP1 is a master regulator of tau uptake and spread. Nature 580, 381-385 (2020).
- Rauch, J. N. et al. Tau Internalization is Regulated by 6-O Sulfation on Heparan Sulfate Proteoglycans (HSPGs). Sci Rep 8, 6382 (2018).
- Shultz, A., Mena, D., Roy, J. L., Nulman, J., & Rauch, J. N. Protocol for the removal of bound endotoxin from tau protein produced in Escherichia coli. STAR Protocols. 6, 104177 (2025).
- Smith, P. K. et al. Measurement of protein using bicinchoninic acid. Analytical Biochemistry 150, 76-85 (1985).
- Bradford, M. M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding. Analytical Biochemistry. 72, 248–254 (1976).
- Dräger, N. M. et al. A CRISPRi/a platform in human iPSC-derived microglia uncovers regulators of disease states. Nat Neurosci 25, 1149-1162 (2022).
- Elias, R. D. et al. Cathepsin C–Catalyzed Ligation Generates Intralysosomal Amyloid Fibrils from Dipeptide Esters. Preprint at https://doi.org/10.64898/2025.12.23.696283 (2025).
再版と許可
