本研究では、公開データセットの統合、ペア組織による検証、細胞遊走アッセイ、標的ネットワーク予測、および免疫シグネチャー解析を行い、大腸がんにおけるmiR-192-5pを評価しました。その結果、TCGA/GDCの発現データと局所的なqRT-PCRの結果との間に不一致があることが明らかになり、診断的、予後的、機能的、および免疫関連の重要性について過剰に解釈することに注意を促しています。
研究記事
大腸がんにおけるmiR-192-5pの臨床的意義、免疫浸潤ランドスケープおよび機能ネットワーク解析
* These authors contributed equally
この記事について
サマリー
要約
大腸がん(CRC)は不均一な悪性腫瘍であり、microRNAが腫瘍の進行やバイオマーカーの発見に寄与している可能性があります。本研究では、TCGA/GDCおよびGEOのバイオインフォマティクス解析、ペア組織を用いたqRT-PCRによる検証、ターゲット予測、免疫シグネチャー解析、およびHT29細胞を用いた創傷治癒実験を統合し、CRCにおけるmiR-192-5pの臨床的意義、免疫学的関連性、および機能的ネットワークを評価しました。TCGA/GDCのmiRNA-seqデータの再解析(腫瘍サンプル616例、正常COADREADサンプル11例)では、正常サンプルよりも腫瘍サンプルにおいてデータベースレベルのhsa-mir-192シグナルが高いことが示されました(Mann-Whitney p = 9.96 x 10⁻⁸)。同様の傾向がTCGAのペア11例でも観察されましたが(腫瘍と正常の差の中央値 = 3.13 log2[RPM + 1]、Wilcoxon p = 0.0029)、臨床ペア組織を用いた局所的なqRT-PCRでは、CRC組織において成熟miR-192-5pの発現が低いことが支持されました。TCGAに基づくROC解析では、腫瘍と正常の強力な分離が示されましたが、バランス再サンプリングおよびleave-one-normal-out解析により、正常サンプルの数が限られているため、この結果は慎重に解釈すべきであることが確認されました。病理臨床解析では、TCGAコホートにおいてNステージおよび年齢との関連が示唆されましたが、要約表においてTステージおよびMステージは有意ではなく、全生存期間解析でも有意な予後関連は見られませんでした。TCGAのRNA-seqを用いた候補ハブ遺伝子解析では、探索的な発現、相関、および生存に関する根拠が得られましたが、miR-192-5pによる直接的なターゲット作用は確立されませんでした。免疫シグネチャー解析では、不均一で概ね弱い相関が示されました。機能的には、miR-192-5pミミックの導入によりHT29細胞の創傷閉鎖が抑制されました。以上の結果は、miR-192-5pがCRCに生物学的に関連していることを示していますが、その発現方向および臨床的解釈はプラットフォームに依存しており、さらなる実験的検証が必要です。
概要
大腸がん(CRC)は世界で最も一般的な悪性腫瘍の一つであり、がん関連死亡の主要な原因であり続けています1,2。大腸内視鏡検査、便免疫化学検査、SEPT9メチル化検査、血中腫瘍マーカー、および分子プロファイリングによって、CRCの検出と臨床管理は向上していますが3,4、腫瘍生物学、治療反応性、および患者の転帰には依然として大きな不均一性が存在します5,6,7。したがって、CRCの生物学的特性を明らかにすることを助けるバイオマーカーは、リスク層別化や、より個別化された治療戦略の開発に寄与する可能性があります8。
マイクロRNA(miRNA)は、長さ約19–24ヌクレオチドの小型非コードRNAであり、主に転写後メカニズムを通じて遺伝子発現を調節します9。miRNA発現の調節不全は、がん細胞の増殖、遊走、浸潤、アポトーシス、免疫相互作用、および治療反応に影響を及ぼす可能性があります10。miR-192-5pは、組織型、分子背景、および実験系に応じて、がん促進的または腫瘍抑制的な関連性を持ち、異なる疾患やがんにおいてコンテキスト依存的に作用することが報告されています11,12,13,14,15,16。大腸がん(CRC)において、先行研究では臨床検体におけるmiRNAプロファイルの変化や、結腸がん細胞における悪性表現型の機能的調節が報告されています12,14,15。しかし、公開データベースの解析では必ずしも同一の発現方向が示されるわけではなく、CRCにおけるmiR-192-5pの臨床的意義、ターゲットネットワーク、および免疫学的関連については慎重な評価が必要です。
本研究では、TCGA/GDCおよびGEOのバイオインフォマティクス解析、ペアの臨床組織を用いたqRT-PCRによる検証、in vitroでの遊走能試験、候補標的遺伝子の予測、パスウェイ濃縮解析、および免疫シグネチャー相関解析を統合し、大腸がん(CRC)におけるmiR-192-5pを評価しました。本研究は、成熟miR-192-5pがCRC組織で発現低下しており、腫瘍抑制効果を及ぼしている可能性があるという仮説に基づいています。再解析したTCGA/GDCのmiRNA-seqシグナルでは、逆の発現方向が示されたため、本結果は単一の決定的な発現パターンではなく、探索的かつプラットフォーム依存的なものであると解釈されます。
プロトコル
本研究はヘルシンキ宣言に準拠して実施されました。2021年10月21日に内モンゴル医科大学の倫理委員会により承認されました。研究に参加したすべての被験者から書面によるインフォームドコンセントを得ました。
臨床検体の採取
2017年12月から2020年2月の間に根治切除術を受けた45名の患者から、対になるCRCおよび隣接する非癌組織を採取した。術前放射線療法または化学療法を受けた患者はすべて除外されており、また、他の悪性腫瘍を有する患者も除外した。隣接する非癌組織は、腫瘍辺縁から少なくとも5 cm離れた部位から採取した。サンプルは外科的切除後速やかに凍結し、RNA抽出まで液体窒素中に保存した。コホートは男性27名、女性18名で構成され、60歳未満が13名、60歳以上が32名であった。臨床病理学的変数には、腫瘍径、TNMステージ、分化度、血管腫瘍栓、リンパ節転移、および術前のCEA値が含まれた。
公開データの取得および前処理
TCGA-COADおよびTCGA-READのオープンアクセスmiRNA-seq、RNA-seq、および臨床データは、Genomic Data Commonsポータルから取得した。原発腫瘍および正常実質組織サンプルは、GDCサンプルタイプに基づいて特定した。転移性および再発性の腫瘍サンプルは、腫瘍・正常間の差分的発現解析から除外した。TCGA miRNA-seqファイルにおいて、本解析で検出されたデータベースレベルのエントリはhsa-mir-192であり、発現値はlog2(RPM + 1)として解析した。ここでRPMは、マッピングされたmiRNAリード100万本あたりのリード数を示す。マッチしたサンプルが利用可能な場合は、非ペアおよびペアの両方の腫瘍・正常解析を実施した。候補ターゲット遺伝子のスクリーニングには、GEOデータセットGSE89076およびGSE156355を使用した。GEOの差分的発現遺伝子は、調整済みp < 0.05かつ絶対値log2 fold-change ≥ 2を用いてスクリーニングした。原稿全体を通して、データセット名の整合性を確認した。
診断、臨床病理学的および生存分析
TCGA-COAD、TCGA-READ、および統合されたCOADREADコホートにおける腫瘍と正常組織の探索的な分離を評価するために、受信者動作特性(ROC)解析を用いた。正常サンプルの数が少なかったため、5,000回の反復によるバランス調整済み腫瘍・正常リサンプリングや、leave-one-normal-out解析を含む追加の感度分析を実施した。 clinicopathological(臨床病理学的)関連分析では、TCGA miR-192発現レベルの中央値により、原発性腫瘍サンプルを高発現群と低発現群に分けた。サンプルサイズが許容する場合、統合されたCOADREADコホート、およびCOADとREADそれぞれについて解析を繰り返した。全生存期間は、ログランク検定を用いたKaplan-Meier解析および単変量Cox回帰を用いて評価した。予後に関する結論を誇張することを避けるため、診断、臨床病理学的、および生存解析は個別に報告した。
候補ターゲット遺伝子およびハブ遺伝子の解析
miRWalkによる予測結果と、GSE89076およびGSE156355における発現変動遺伝子を統合し、候補ターゲット遺伝子を特定した。これら3つのソースに共通する遺伝子を、後続の探索的解析のために抽出した。STRINGを用いてタンパク質相互作用ネットワークを構築し、CytoscapeベースのcytoHubbaおよびMCODE解析を用いて、ノード次数とモジュール連結性に基づきハブ遺伝子を選出した。抽出されたハブ遺伝子(KIF20A、TPX2、CDCA5、CCNB1、 CDK1、PLP1、NRXN1、GRIK3、およびKIF5C)について、TCGA RNA-seqデータを用いてさらに評価を行った。腫瘍組織と正常組織における発現差、TCGAにおけるmiR-192発現とのSpearman相関、および全生存期間との関連性を、補足的な探索的解析としてまとめた。これらの遺伝子はあくまで候補ターゲットとして検討されたものであり、バイオインフォマティクスデータから直接的な結合、レスキュー効果、または下流のタンパク質レベルでの制御が推論されたわけではない。
GOおよびKEGG濃縮分析
候補遺伝子セットおよび有意なネットワークモジュールに対して、Gene Ontology (GO) および Kyoto Encyclopedia of Genes and Genomes (KEGG) の濃縮分析を実施しました。GO用語は、生物学的プロセス、細胞成分、および分子機能のカテゴリに分類されました。p < 0.05 の濃縮結果を統計的に有意であると見なし、これらを実験的に検証されたメカニズムではなく、仮説を生成するためのパスウェイシグナルとして解釈しました。
RNA抽出およびqRT-PCR分析
TRIzol試薬を用い、製造元のプロトコルに従って、45組の大腸癌(CRC)および隣接非癌組織サンプルから全RNAを抽出した。分光光度計でRNAの純度と濃度を評価し、A260/A280値が1.8から2.1の範囲にあるサンプルを逆転写に用いた。qRT-PCRは、TransGen Biotech社のmiRNA逆転写システムおよびSYBR GreenベースのmiRNA qPCR試薬を用いて実施した。逆転写およびqPCR増幅は、試薬製造元の指示に従って行った。各qRT-PCR反応はテクニカルトリプリケートで実施した。内部参照としてRNU6Bを用いた。miR-192-5pプライマーは5'-GGGGCTGACCTATGAATTGA-3'(フォワード)および5'-CAGTGCAGGGTCCGAGGT-3'(リバース)とした。RNU6Bプライマーは5'-ATTGGAACGATACAGAGAAGATT-3'(フォワード)および5'-GGAACGCTTCACGAATTTG-3'(リバース)とした。qPCRプラットフォームが対応している場合は、融解曲線分析を用いて増幅特異性を評価した。相対発現量は2-ΔΔCt法を用いて算出した。ペアとなった腫瘍組織と隣接組織の結果は、ペアの臨床測定値として分析した。
細胞培養およびトランスフェクション
ヒトCRC細胞株HT29は、著者らの研究室の細胞ストックから取得し、認証済みであり、マイコプラズマ汚染がないことを確認した。HT29細胞は、10%胎児牛血清、100 U/mLペニシリン、および100 µg/mLストレプトマイシンを添加したMcCoy's 5A培地を用い、37 oC、5% CO2条件下で培養した。細胞は、コンフルエンスが約80%に達した時に継代した。miR-192-5pミミックおよびネガティブコントロールオリゴヌクレオチドcon238は、Sangon Biotech(中国、上海)から購入し、一過性トランスフェクションに使用した。HT29細胞を6ウェルプレートに播種し、細胞密度が約20–30%に達した時点で、最終オリゴヌクレオチド濃度50 nMとし、試薬メーカーの指示に従った脂質ベースのトランスフェクションプロトコルを用いてトランスフェクションを行った。正確な試薬とオリゴヌクレオチドの比率および試薬量は、著者らの研究室の記録にあるメーカー推奨のプロトコルに従った。細胞を標準的な培養条件下でトランスフェクション複合体とともにインキュベートし、実験スケジュールに従ってトランスフェクション後のイメージングおよび創傷治癒アッセイを実施した。本研究にはHT29細胞のデータのみを含めた。
創傷治癒アッセイ
トランスフェクションしたHT29細胞を6ウェルプレートに播種し、コンフルエントな単層が形成されるまで培養した。滅菌済みの200 µLピペットチップを用いて直線的なスクラッチを作成し、剥離した細胞をPBSで洗浄して除去した。その後、遊走能の評価における増殖に関連する影響を低減させるため、培地を無血清培地に置換した。創傷部位の画像を0 h、24 h、48 hで撮影した。創傷治癒アッセイは3回の独立した生物学的反復で実施し、各群および各タイムポイントについて複数の顕微鏡視野を測定した。顕微鏡画像から画像解析ソフトウェアを用いて創傷幅を定量化した。なお、元の測定で使用された正確なソフトウェアのバージョンはソースレコードに記載されていなかった。創傷治癒率は、[(0 hにおける創傷幅 - 指定したタイムポイントにおける創傷幅) / 0 hにおける創傷幅] x 100%として算出した。利用可能な原稿データに独立した増殖コントロール実験が含まれていないため、創傷治癒の結果は遊走に関連するものとして解釈したが、増殖の影響を完全に排除したものではない。
免疫シグネチャー相関分析
TCGAのmiR-192発現と免疫関連シグネチャーとの関連を、原発腫瘍のRNA-seqデータを用いて再評価しました。miRNAおよびRNA-seqのデータが揃っている計425個の腫瘍サンプルを、シグネチャースコアの相関分析に含めました。偽発見率(FDR)補正後、miR-192の発現は、Tfh細胞(rho = -0.205, FDR = 0.00049)、活性化樹状細胞(rho = -0.186, FDR = 0.00098)、Treg細胞(rho = -0.185, FDR = 0.00098)、プランクトイド樹状細胞(rho = -0.169, FDR = 0.0027)、およびマクロファージ(rho = -0.149, FDR = 0.0092)を含む複数の免疫シグネチャーと、統計的に有意ではあるものの弱い負の相関を示しました。正の相関は、主に好酸球(rho = 0.139, FDR = 0.0155)およびTh17細胞(rho = 0.121, FDR = 0.0296)のシグネチャーで観察されました。これらの結果は、一様な正の免疫浸潤パターンではなく、不均一で概して弱い免疫関連性があることを示しています。
統計解析
統計解析には、GraphPad Prism 9.0、SPSS 25.0、およびR software 3.6.3を使用した。連続変数は、適宜、平均値 ± 標準偏差または中央値(四分位範囲)としてまとめた。腫瘍組織と隣接組織のサンプルが対になっている場合は、対応のある検定を用いてペア組織の比較解析を行った。正規性の仮定が満たされない場合は、非パラメトリック検定を用いた。探索的な診断識別には、ROC曲線、バランスリサンプリング、およびleave-one-normal-out解析を用いた。カテゴリー間の臨床病理学的関連性の解析にはカイ二乗検定を、生存解析にはログランク検定およびCoxモデルを用い、免疫およびハブ遺伝子の解析にはSpearman相関を用いた。両側 p < 0.05を統計学的有意とした。なお、免疫シグネチャの相関については、偽発見率(FDR)補正を報告した。
結果
公共データセットおよびペアリングした臨床組織における発現解析
GDC由来のTCGA-COADおよびTCGA-READのmiRNA-seqデータを用いて、miR-192の発現パターンを再評価した(Figure 1)。これらのファイルでは、データベースレベルのエントリが成熟種のhsa-miR-192-5pとしてではなく、hsa-mir-192としてアノテーションされていたため、この公開データベースの結果はTCGAのmiR-192シグナルとして解釈した。統合されたCOADREADコホートにおいて、616例の原発腫瘍と11例の正常固形組織サンプルを解析した。腫瘍サンプルは、正常サンプルよりも高いmiR-192発現を示した(中央値 16.05 vs 13.46 log2[RPM + 1]、Mann-Whitney p = 9.96 x 10⁻⁸)。同様の腫瘍での高発現傾向は、COAD単独(腫瘍455例、正常8例、p = 9.89 x 10⁻⁸)およびREAD単独(腫瘍161例、正常3例、p = 1.94 x 10⁻⁵)でも観察された。ペアのTCGA解析においても、11例のマッチした症例で腫瘍の方が高い発現を示した(腫瘍と正常の差の中央値 = 3.13 log2[RPM + 1]、Wilcoxon p = 0.0029)。これらの結果は、CRC組織において成熟miR-192-5pの発現が低下していることを支持した自施設でのペアqRT-PCRの結果(Figure 2)とは、依然として矛盾していた。
診断能およびクリニックパソロジー的関連性
前述の腫瘍サンプルと正常サンプルの判別定義を用いて、TCGAベースのROC解析を再度実施した(図3)。AUCは、COADREAD統合コホートで0.968、COAD単独で0.947、READ単独で0.994であった。さらに、バランス再サンプリングを行った結果、AUCの中央値はCOADREADで0.983、COADで0.984、READで1.000であったが、COADREAD(0.868–1.000)およびCOAD(0.781–1.000)では95%信頼区間が広く、またREADには正常サンプルが3つしか含まれていなかった。一つ抜き法による正常サンプル解析においても、ROC推定値が正常群の少なさに敏感であることが示された。したがって、ROCの結果は、腫瘍と正常の分離を示す探索的根拠としてのみ保持し、臨床診断バイオマーカーとしての十分な根拠とはしなかった。TCGAにおけるmiR-192発現量の中央値に基づいた臨床病理学的相関解析では、Nステージ(p = 0.019)および年齢(p = 0.004)と有意な相関が認められたが、Tステージ(p = 0.110)およびMステージ(p = 0.932)では有意ではなかった(表1)。
生存分析
全生存期間解析では、CRCにおけるTCGA miR-192の発現と予後との間に有意な関連は認められませんでした(図3)。COADREADの統合コホートにおいて、中央値で分けたKaplan-Meier比較は有意ではなく(log-rank p = 0.857)、単変量Cox回帰分析においても有意な関連は見られませんでした(log2発現ユニットあたり HR = 0.934, p = 0.374)。同様の結論がCOAD(log-rank p = 0.889; Cox p = 0.493)およびREAD(log-rank p = 0.807; Cox p = 0.716)でも観察されました。したがって、これらのデータはCRCにおけるmiR-192の強力な予後バイオマーカーとしての主張を支持しません。
候補標的遺伝子および機能濃縮解析
miRWalkによる予測と、GEOデータセットGSE89076およびGSE156355から得られた変動発現遺伝子を統合することで、候補標的遺伝子の解析を行った。このスクリーニングにより、下流のネットワーク解析および濃縮解析のための93個の候補遺伝子が同定された(図4)。タンパク質相互作用解析により、KIF20A、TPX2, CDCA5, CCNB1, CDK1, PLP1, NRXN1, GRIK3, および KIF5C が探索的ハブ遺伝子として抽出された(図5)。TCGA RNA-seq感度分析の結果、KIF20A, TPX2, CDCA5, CCNB1, および CDK1 は正常組織よりも腫瘍組織で発現が高く、一方で PLP1, NRXN1, GRIK3, および KIF5C は腫瘍組織で発現が低かった。TCGAにおける miR-192 発現との相関分析では、CDCA5, CCNB1, および CDK1 は正の相関を示し、PLP1, NRXN1, および KIF5C は負の相関を示すという混合した結果となった。濃縮分析では、シトクロムP450による薬物代謝、シトクロムP450による外来異物代謝、レチノール代謝、グルタミン酸作動性シナプス関連用語、および前シナプス組織化に関する代表的な用語が強調された(図6)。これらの知見は、ハブ遺伝子ネットワークの生物学的妥当性を支持するものであるが、miR-192-5p による直接的な標的化を立証するものではない。
細胞遊走アッセイ
miR-192のアップレギュレーションによる機能的影響を評価するため、HT29細胞にmiR-192ミミックをトランスフェクションした。蛍光顕微鏡により、miR-192-5pミミック導入群およびネガティブコントロール導入群において、トランスフェクションが成功したことが確認された(図 7)。創傷治癒アッセイにおいて、miR-192をトランスフェクションしたHT29細胞の遊走率は、24 hおよび48 hの両時点において、未処理のHT29細胞およびネガティブコントロール導入細胞よりも低かった(図 8)。24 h時点での遊走率は、未処理群で15.69 +/- 3.47%、ネガティブコントロール群で15.45 +/- 3.92%であったのに対し、miR-192トランスフェクション群では9.75 +/- 2.43%であった(P = 0.010)。48 h時点では、2つのコントロール群でそれぞれ26.84 +/- 7.65%および27.98 +/- 6.78%であったのに対し、miR-192トランスフェクション群の遊走率は20.04 +/- 2.54%であった(P = 0.021)。これらの結果は、miR-192のアップレギュレーションがin vitroにおいてHT29細胞の遊走を抑制することを示唆している。
免疫シグネチャー相関分析
TCGAにおけるmiR-192の発現と免疫関連シグネチャーとの関連を、原発腫瘍のRNA-seqデータを用いて再評価しました(図9)。miRNAおよびRNA-seqデータが揃っている計425個の腫瘍サンプルを、シグネチャースコアの相関分析に含めました。miR-192の発現は、Tfh細胞(rho = -0.205, p = 2.15e-05)、活性化樹状細胞(rho = -0.186, p = 0.00011)、Treg細胞(rho = -0.185, p = 0.00013)、プラズマサイトイド樹状細胞(rho = -0.169, p = 0.00046)、マクロファージ(rho = -0.149, p = 0.0020)、Tcm細胞(rho = -0.136, p = 0.0050)、NK CD56bright細胞(rho = -0.132, p = 0.0065)、およびTem細胞(rho = -0.129, p = 0.0078)を含む複数の免疫細胞シグネチャーと、弱い負の相関を示しました。一方、好酸球(rho = 0.139, p = 0.0040)およびTh17細胞(rho = 0.121, p = 0.0129)のシグネチャーでは、弱い正の相関が観察されました。したがって、CRCにおけるmiR-192の免疫学的関連性は不均一であると考えられ、免疫浸潤全体にわたって一様に正であるとは記述できないと考えられます。
データの可用性
本研究で解析した公開データセットは、GDC/TCGAポータルおよびGene Expression Omnibus (GEO) データベースのアクセッション番号GSE89076およびGSE156355から入手可能です。本研究で行われたドライラボ解析および再解析の結果は、付録表1に提示しています。qRT-PCRおよび創傷治癒解析を裏付ける基礎的な実験データ(qRT-PCRの生Ct値、創傷幅の測定値、元の顕微鏡画像、および関連する実験データを含む)は、付録フォルダ1に提供しています。
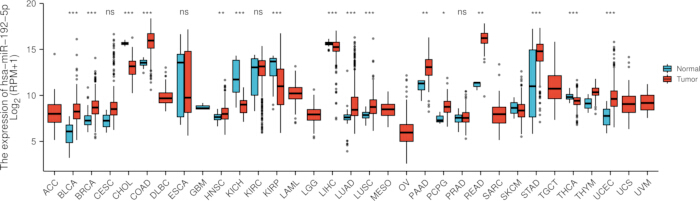
図1: TCGAにおけるmiR-192のパンキャンサー発現概観。 x軸は腫瘍の略称を、y軸はmiR-192の相対的発現量を示している。青色は正常組織を、赤色は腫瘍組織を示す。統計的有意性は次のように表記される:* = p < 0.05, ** = p < 0.01, *** = p < 0.001; NS = 有意差なし。こちらのリンクをクリックして、この図の拡大版を表示してください。
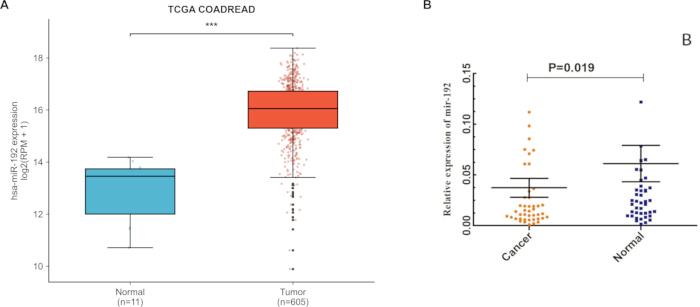
図 2: CRCデータセットおよびペア組織におけるmiR-192/miR-192-5pの発現。 (A) TCGA/GDC miRNA-seq解析により、正常サンプルよりもCRC腫瘍サンプルでデータベースレベルのhsa-mir-192シグナルが高いことが示された。 (B) ペアで採取した局所組織サンプルのqRT-PCR解析により、隣接する非癌組織よりもCRC組織で成熟miR-192-5pの発現が低いことが示された。 この図の拡大版を表示するには、ここをクリックしてください。
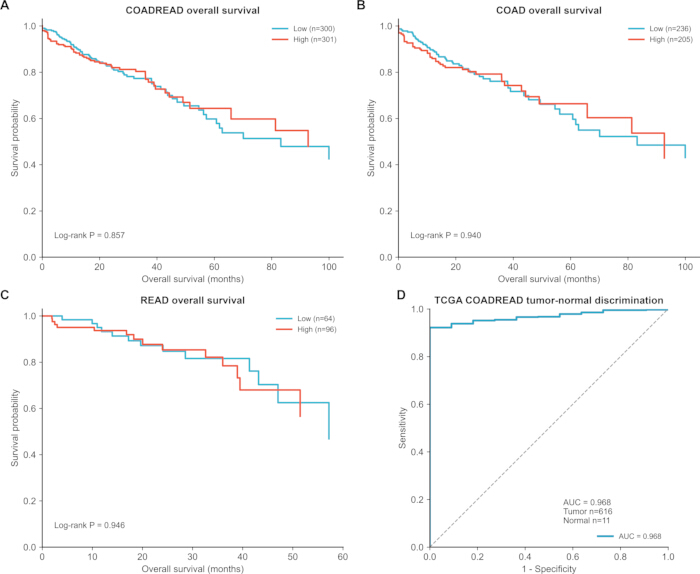
図 3TCGAにおけるhsa-mir-192発現に基づく探索的診断および生存分析 (A–C) カプラン・マイヤー生存曲線。生存分析において、有意な予後関連性は認められなかった。(D) TCGAコホートにおける腫瘍組織と正常組織の判別のROC曲線。正常サンプルの数が少ないため、AUCの解釈には注意が必要である。 この図の拡大版を表示するには、ここをクリックしてください。
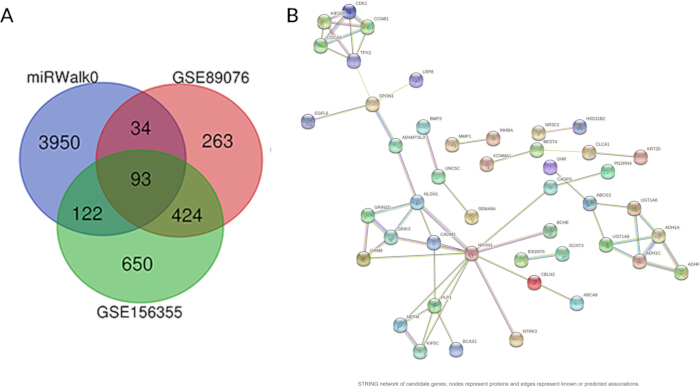
図 4: 標的遺伝子の候補スクリーニングおよびタンパク質相互作用解析。 (A) miRNA標的予測と、GSE89076およびGSE156355からの変動発現遺伝子の重複を示すベン図。 (B) 93個の候補遺伝子のタンパク質-タンパク質相互作用ネットワーク。ノードは遺伝子を、エッジは予測またはキュレートされた遺伝子間の関連を表す。 こちらをクリックして、この図の拡大版を表示してください。
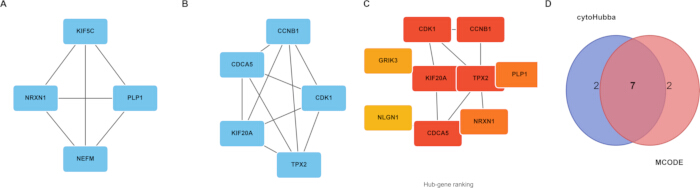
図 5: 候補ターゲットネットワークからのハブ遺伝子スクリーニング。 (A,B) モジュールスクリーニングによって同定されたネットワークモジュール。(C) ネットワーク接続性に基づくハブ遺伝子のランキング。(D) モジュールスクリーニングと次数ベースのスクリーニングを統合して抽出された、候補ハブターゲット。 ここをクリックして、この図の拡大版を表示してください。
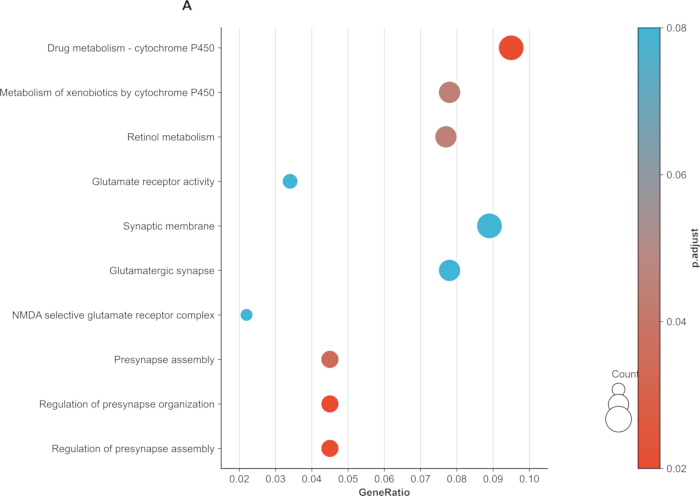
図 6: 候補遺伝子および有意なネットワークモジュールにおける選択されたGOおよびKEGG濃縮用語。 バブルプロットは、代表的な濃縮生物学的機能およびパスウェイをまとめたものである。濃縮結果は探索的なものであり、実験的な検証が必要である。こちらのリンクをクリックして、この図の拡大版を表示してください。
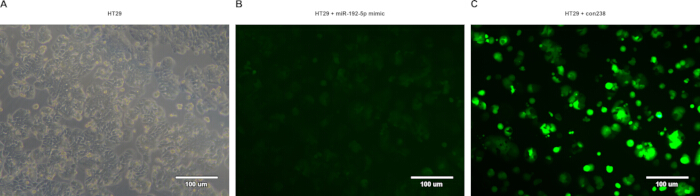
図7HT29細胞のトランスフェクション画像。 (A) 代表的なHT29細胞。 (BmiR-192-5p mimicを導入したHT29細胞の蛍光画像。C) ネガティブコントロールcon238をトランスフェクトしたHT29細胞の蛍光画像。スケールバー = 100 µm. この図の拡大版を表示するには、ここをクリックしてください。
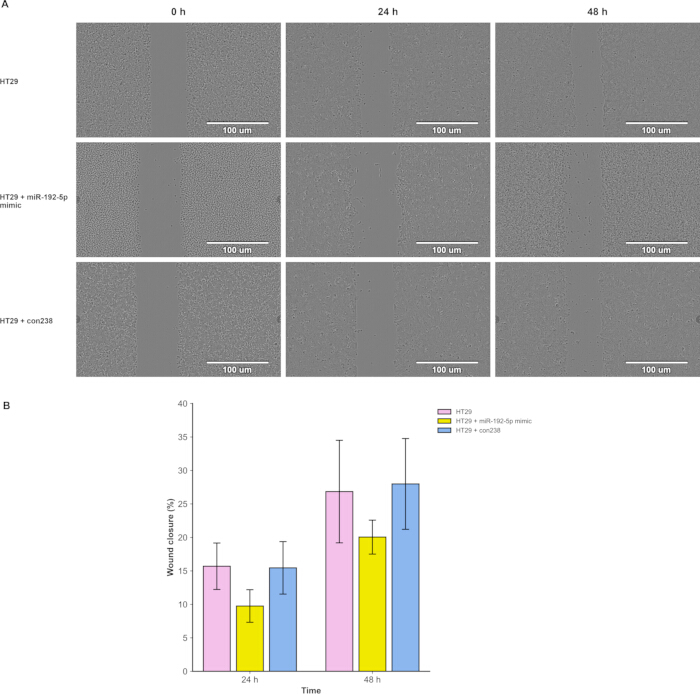
図8HT29細胞における創傷治癒アッセイ。 (A) 非導入のHT29細胞、miR-192-5p mimic導入HT29細胞、およびcon238導入HT29細胞における、0時間、24時間、48時間の代表的なスクラッチ画像。 (B) 24時間後および48時間後における創傷治癒率の定量値(パーセントで表示)。スケールバー = 100 µm. この図の拡大版を表示するには、ここをクリックしてください。
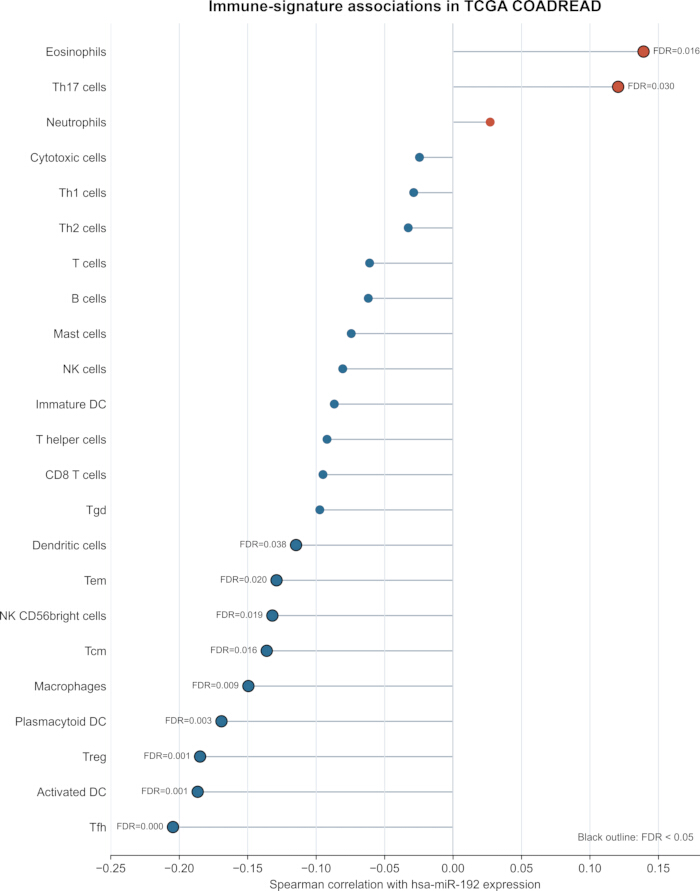
図 9: CRC腫瘍サンプルにおけるTCGA miR-192発現量と免疫関連シグネチャースコアの相関。解析の結果、免疫関連の相関には不均一性が見られ、いくつかの弱い負の相関と、主に好酸球およびTh17細胞のシグネチャーにおいて正の相関が認められた。この図の拡大版を表示するには、ここをクリックしてください。
| 特性 | TCGA miR-192の低発現 | TCGA miR-192の高発現 | p値 | 方法 |
| n | 308 | 308 | ||
| Tステージ、n (%) | 0.11 | カイ二乗検定 | ||
| T1 | 9 (1.5%) | 11 (1.8%) | ||
| T2 | 44 (7.2%) | 59 (9.6%) | ||
| T3 | 209 (34.1%) | 211 (34.4%) | ||
| T4 | 43 (7%) | 27 (4.4%) | ||
| Nステージ、n (%) | 0.019 | カイ二乗検定 | ||
| N0 | 156 (25.5%) | 190 (31%) | ||
| N1 | 88 (14.4%) | 63 (10.3%) | ||
| 窒素 | 61 (10%) | 54 (8.8%) | ||
| Mステージ、n (%) | 0.932 | カイ二乗検定 | ||
| M0 | 214 (39.9%) | 234 (43.7%) | ||
| M1 | 41 (7.6%) | 47 (8.8%) | ||
| 年齢、中央値(四分位範囲) | 66 (56, 75) | 69 (60, 77) | 0.004 | ウィルコクソン |
表1: CRCにおけるTCGA miR-192発現群と臨床病理学的特徴の関連。 高発現群および低発現群は、TCGA miR-192発現レベルの中央値によって定義された。要約表において、Nステージおよび年齢は有意であったが、TステージおよびMステージは有意ではなかった。
補足表1:本研究のために作成されたドライラボ再解析結果。ワークブックには、TCGA/GDC発現比較、バランスROC感度分析、leave-one-normal-out分析、臨床病理学的相関分析、生存分析、ハブ遺伝子の発現および相関の要約、ならびに免疫シグネチャー相関結果が含まれています。こちらのリンクをクリックしてファイルをダウンロードしてください。
補足フォルダー1:qRT-PCR、細胞トランスフェクション、および創傷治癒実験を裏付ける生の実験データ。これらのファイルには、論文に提示された解析に使用したオリジナルのqRT-PCR Ct値、フローサイトメトリー/トランスフェクションデータ、創傷幅の測定値、および代表的な顕微鏡画像が含まれています。こちらのリンクをクリックしてファイルをダウンロードしてください。
ディスカッション
本研究では、公開データセットの解析、局所組織による検証、ターゲットネットワーク予測、免疫シグネチャー解析、およびin vitroでの遊走実験を組み合わせることで、CRCにおけるmiR-192-5pの臨床的および生物学的関連性を評価した。解析では、検証済みのTCGAサンプル定義を用い、可能な限りCOADとREADを区別し、log2(RPM + 1)のmiRNA値を使用し、ペア比較と非ペア比較を区別し、ROCの堅牢性を検証し、さらにハブ遺伝子のRNA-seq感度解析を追加した。中心となる知見は、公開されているTCGA/GDCのmiR-192シグナルと、局所的な成熟miR-192-5pのqRT-PCR結果が、発現方向に相反することであり、データベースレベルの前駆体アノテーションと成熟miRNAの測定値を区別する必要性が強調された9,11。
この不一致は、単にサンプルサイズの不均衡のみで説明されるべきではありません。TCGAの正常群は小規模でしたが、非ペア、ペア、COADのみ、およびREADのみの解析のすべてにおいて、TCGA/GDCでは同様に腫瘍で高いという傾向が示されました。サンプルの由来、シーケンシングとqRT-PCRプラットフォームの違い、データベースレベルのhsa-mir-192アノテーションと成熟hsa-miR-192-5p測定値の違い、RNA処理、腫瘍の純度、隣接組織の定義、および集団特性などの複数の要因が寄与している可能性があります。バイオマーカーの解釈と腫瘍の不均一性に関する同様の懸念が、CRC研究においても強調されています5,6,7,8。したがって、これらの知見は、CRCにおけるmiR-192-5pについて、単一の普遍的な発現方向ではなく、コンテクストおよびプラットフォームに依存した解釈を支持するものです。
診断分析の結果についても、慎重に解釈する必要があります。TCGAベースのROC分析では高いAUCが得られましたが、比較対象に含まれる腫瘍サンプルの数は正常サンプルよりも遥かに多く、統合されたCOADREADコホートにおける正常サンプルはわずか11例でした。バランス再サンプリングにおいても依然として中央値のAUC値は高かったものの、各バランス比較が少数の正常グループによって制限されていたため、信頼区間は広くなりました。したがって、ROCの結果はTCGA/GDC内での探索的な腫瘍・正常分離を支持するものではありますが、miR-192-5pを臨床的な診断バイオマーカーとして確立させるには不十分です。この解釈は、探索的なバイオマーカーシグナルと、臨床的に検証された診断用または予後予測用バイオマーカーとの一般的な区別と一致しています4,8。
生存分析の結果、COADREAD、COAD、またはREADにおいて、miR-192の発現と全生存期間との間に有意な関連は見られませんでした。本解析では、miR-192が特定の臨床病理学的変数に関連している可能性がありますが、利用可能なデータは、強力な予後バイオマーカーであるという結論を支持するものではありません。予後バイオマーカーには、マーカーの状態が臨床的に関連のある文脈において、独立してかつ再現性を持ってアウトカムに関連しているという根拠が必要であるため、この区別は重要です8。
in vitro 創傷治癒アッセイにより、miR-192のアップレギュレーションがHT29細胞の遊走を抑制し得ることが機能的に証明された。この結果は、CRC細胞における潜在的な腫瘍抑制機能、および局所的なqRT-PCRの傾向と一致している。先行研究においても、miR-192関連パスウェイを含むmiRNAが、上皮間葉転換、細胞運命、および遊走に関連する表現型の制御において役割を果たすことが支持されている15,16,17。しかしながら、機能的なデータは依然として不十分である。メカニズムに基づいた腫瘍抑制モデルを裏付けるには、少なくとももう1つのCRC細胞株を用いたトランスフェクションの繰り返し、創傷治癒アッセイにおける増殖コントロール、Transwell遊走/浸潤アッセイ、選択したターゲットのデュアルルシフェラーゼ検証、ターゲットmRNAおよびタンパク質の測定、ならびにレスキュー実験などの追加的なウェットラボでの検証が必要である。
ハブ遺伝子解析は、仮説を生成するためのものと見なされるべきである。TCGA RNA-seqによる補完では、保持されたハブ遺伝子において腫瘍と正常組織の間で強い発現差が認められたが、miR-192との相関は混在していた。CDCA5、CCNB1、CDK1を含むいくつかの細胞周期遺伝子は、miR-192と負ではなく正の相関を示しており、これは単純なmiRNA標的抑制モデルとは一致しない。対照的に、PLP1、NRXN1、KIF5Cは負の相関を示した。これらの結果はネットワークの生物学的妥当性を支持しているが、ルシフェラーゼ解析、タンパク質レベルでの検証、およびレスキュー実験による検証なしには、直接的な標的であると結論付けられないことを示している。この慎重な解釈は、in silico標的ネットワーク解析の探索的な性質と一致している10,11。
免疫分析の結果は、慎重な解釈が必要であることをさらに裏付けています。腫瘍RNA-seqの免疫シグネチャースコアにより、miR-192の発現は複数の免疫シグネチャーと負の相関を示し、主に好酸球およびTh17細胞のシグネチャーと正の相関を示すことが分かりました。偽発見率(FDR)補正後であっても、ほとんどの相関は弱いものでした。免疫シグネチャー法はバルク発現データから経路または細胞状態の濃縮を推論するものであるため、これらの知見は探索的なものと考えられ、直交的な免疫プロファイリングアプローチを用いた検証が必要です13。
本研究にはいくつかの限界がある。第一に、局所の検証コホートが比較的小さく、単一施設からのデータであった点である。第二に、公開データセットの解析と局所のqRT-PCRによる検証で、異なるプラットフォームおよび測定レベルが用いられた点である。第三に、TCGAの正常miRNA-seqサンプル数が少なく、診断上の推論が制限された点である。第四に、ハブ遺伝子および免疫解析は計算上のものであり、実験的な検証が必要である点である。第五に、実施可能な機能実験がHT29の創傷治癒データに限定されていた点である。これらの限界があるため、本研究はmiR-192-5pがCRCにおける検証済みの診断、予後、またはメカニズム的なバイオマーカーであるという決定的な証拠としてではなく、統合的な探索的解析として提示することが妥当である6,8。
要約すると、miR-192-5pは大腸癌(CRC)において生物学的な関連があると考えられますが、その発現パターンと臨床的解釈は複雑です。TCGA/GDCの解析ではCRC腫瘍サンプルにおいてmiR-192のシグナルが高かった一方、局所的なペア組織コホートを用いたqRT-PCRでは、成熟miR-192-5pの発現が低いことが示されました。ROC解析では、腫瘍と正常組織の探索的な分離が認められましたが、TCGAの正常群のサンプル数が少なかったため、限定的な結果となりました。全生存期間との有意な相関は見られませんでした。ハブ遺伝子および免疫解析は仮説を生成するためのエビデンスを提供しており、HT29を用いた創傷治癒アッセイのデータは、miR-192-5pの上昇が細胞遊走を抑制する可能性を示唆しています。miR-192-5pがCRCにおける検証済みの診断的、予後的、または機序的なバイオマーカーとして検討されるには、さらなる独立したコホートによる検証および標的を絞ったウェットラボでの実験が必要です。
開示事項
著者は、開示すべき利益相反がないことを宣言します。
謝辞
著者は、技術的支援を提供した内モンゴル医科大学腫瘍分子診断研究所に感謝いたします。本研究は、塩城市衛生健康委員会の科学研究プロジェクト(助成金番号 YK2023101)の支援を受けており、同プロジェクトにより論文掲載料が賄われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.25%+2:60 トリプシン-EDTA | バイオ産業 | 03-054-1 | 細胞の消化・継代 |
| 10% 過硫酸アンモニウム | Solarbio Science & テクノロジー株式会社 | A8090 | SDS-PAGE試薬 |
| 10% ドデシル硫酸ナトリウム | Solarbio Science & テクノロジー株式会社 | SIS1070 | SDS-PAGE試薬 |
| 4xタンパク質負荷用バッファー | Solarbio Science & 株式会社Technology | P1016 | タンパク質試料の調製 |
| -80℃超低温冷凍庫 | 青島海爾生物医療有限公司 | https://www.haiermedical.com/ | サンプルの保存 |
| 抗マイコプラズマ除去試薬 | Wuhan Procell Life Science & テクノロジー株式会社 | P-CMR-001 | マイコプラズマ除染 |
| ARL2、BATF2、MEN1、およびbeta-actinプライマーセット | Sangon Biotech Co., Ltd.、中国、上海 | カスタム合成 | mRNA qPCRプライマー |
| 自動マイクロプレートリーダー | PerkinElmer, アメリカ合衆国 | VICTOR Nivo | 吸光度測定 |
| BCAタンパク質定量キット | Thermo Fisher Scientific | 23225 | タンパク質定量 |
| バイオセーフティキャビネット / クリーンベンチ | 青島海爾生物医療有限公司 | Haier Medical公式サイト | 無菌的細胞培養 |
| 細胞計数器 / 血球計数器 | 上海秋景生化試薬儀器有限公司 | http://www.shqiujing.net/ | 細胞計数 |
| セルカウンティングキット-8 (CCK-8) | Biosharp | BS350B | 細胞増殖・細胞毒性試験 |
| 細胞培養フラスコ、培養プレート、遠心チューブ、およびピペットチップ | Corning | https://www.corning.com/in/en.html | 一般的な細胞培養用消耗品 |
| 細胞周期およびアポトーシス検出キット | 大連美倫生物科技有限公司(中国、大連) | サプライヤー製品リスト | フローサイトメトリーによる細胞周期・アポトーシス解析 |
| CO2細胞培養インキュベーター | 青島海尔生物医療有限公司 | https://www.haiermedical.com/ | 細胞培養 |
| con238 陰性対照オリゴヌクレオチド | Sangon Biotech Co., Ltd.、中国、上海 | カスタム合成済み | トランスフェクションコントロール |
| Cytoscapeソフトウェア | Cytoscapeコンソーシアム | https://cytoscape.org/ | ネットワークモジュールおよびハブ遺伝子の可視化 |
| デジタル恒温マグネチックスターラー | 常州赛普实验仪器厂 | https://czxtyq.en.alibaba.com/ | 溶液の調製 |
| 電気恒温強制対流乾燥器 | 南京沃欢科技有限公司 | WTについて WTセンサー(WTSensor)は、高品質な温度センサー、温度プローブ、温度計および温度制御ソリューションの設計、開発、製造に特化した最先端の企業です。 私たちは、産業、医療、研究、商業など、さまざまな分野における顧客の複雑な熱測定ニーズを満たすために、革新的な技術と厳格な品質管理を組み合わせています。当社の製品ラインナップは、極低温から超高温まで、あらゆる温度範囲に対応できるよう設計されており、極めて高い精度と信頼性を提供します。 当社の使命は、最先端のセンサー技術を通じて、正確な温度データの取得を容易にし、プロセス効率を最適化し、最終製品の品質を向上させることです。 WTセンサーが選ばれる理由: ・高度な精度:当社のセンサーは、厳しい公差基準を満たすよう精密に校正されており、一貫した信頼性の高い測定値を保証します。 ・多様な製品展開:熱電対、白金抵抗温度計(RTD)、サーミスタなど、幅広いセンサータイプを提供し、あらゆるアプリケーションに最適なソリューションを提案します。 ・カスタマイズ対応:標準製品に加え、お客様の特定の要件に合わせて、プローブの長さ、直径、材質や接続方法などのカスタム設計を承っております。 ・耐久性と品質:過酷な環境下でも耐えうる高品質な材料を使用し、厳格な品質検査を通じて製品の長寿命化と安定性を実現しています。 ・専門的なサポート:経験豊富なエンジニアチームが、製品の選定から実装、アフターサービスまで、包括的なテクニカルサポートを提供します。 私たちは、絶え間ない研究開発(R&D)への投資を通じて、温度計測の限界を押し広げ、世界中のお客様に価値あるソリューションを提供し続けることに尽力しています。 | 乾燥/滅菌サポート |
| 電気泳動システム | Bio-Rad Laboratories | Mini-PROTEAN 3 細胞 | ゲル電気泳動 |
| 電気転写システム | Hoefer | TE77XP | タンパク質転写 |
| ウシ胎児血清 | 生物産業 | 04-001-1ACS | 細胞培養サプリメント |
| フローサイトメーター | ACEA Biosciences | NovoCyte | フローサイトメトリー |
| 蛍光倒立顕微鏡 | Ningbo Sunny Instruments Co., Ltd. | https://www.sunny-instrument.com/en | 細胞および創傷イメージング |
| GDC/TCGAポータル | 国立がん研究所 | オープンアクセスデータベース | 公開miRNA-seq、RNA-seqおよび臨床データ |
| GEOデータベース | 国立生物工学情報センター | GSE89076およびGSE156355 | 公開遺伝子発現データセット |
| GraphPad Prism | GraphPadソフトウェア | バージョン9 | 統計解析およびグラフ作成 |
| 高速冷却遠心機 | 上海旭祥仪离心机仪器有限公司 | https://www.bioridgecentrifuge.com/ | 試料調製 |
| HT29細胞 | 著者の研究室の細胞ストック | 該当なし | ヒト大腸がん細胞株 |
| 画像解析ソフトウェア | ImageJ | 該当なし | 創傷幅の定量化 |
| イメージングシステム | Tanon Science & テクノロジー株式会社 | Tanon-5200 | ゲル/ブロットイメージング |
| IncuCyte S3 動的細胞観察および機能解析システム | 北京センシワントンテクノロジー株式会社 | IncuCyte S3 | 生細胞イメージング/機能解析 |
| インテリジェント恒温水槽 | Leica | HI1210 | 温度制御インキュベーション |
| レンチウイルスおよび感染試薬 | Shanghai GeneChem Co., Ltd. | https://synapse.patsnap.com/organization/04ffbf33ff2a6311226a8fa05498cec4 | 安定細胞導入 |
| 手動ピペット | Gilson | PIPETMAN P | 液体ハンドリング |
| McCoy's 5A基礎培地 | Wuhan Procell Life Science & テクノロジー株式会社 | PM150710 | HT29細胞培養培地 |
| 医療用遠心分離機 | 珠海市の製造業者(指定なし) | 3200 | 試料調製 |
| 医療用冷蔵冷凍庫 | 青島海爾生物医療有限公司 | https://www.haiermedical.com/ | 試薬・サンプルの保存 |
| Meilunbio Fixer 超高感度ECL化学発光基質 | Meilun Biotechnology Co., Ltd.、中国、大連 | MA0186 | 免疫ブロット検出 |
| 卓上遠心機 | 北京DLAB科学有限公司 | https://www.dlabsci.com/ | 試料調製 |
| miR-192-5pおよびU6プライマーセット | TIANGEN Biotech Co., Ltd.、中国、北京 | カスタム合成済み | miRNA qPCRプライマー |
| miR-192-5p ミミック | Sangon Biotech Co., Ltd.、中国、上海 | カスタム合成された | 一過性導入オリゴヌクレオチド |
| miRcute Enhanced miRNA 第一鎖 cDNA 合成キット | TIANGEN Biotech Co., Ltd.、中国、北京 | KR211 | miRNA逆転写 |
| miRcute Enhanced miRNA 蛍光定量キット (SYBR Green FP) | TIANGEN Biotech Co., Ltd.、中国、北京 | FP411 | miRNA qPCR |
| miRWalk | 公共データベース | ウェブデータベース | miRNAターゲット予測データベース |
| ニトロセルロース膜 | Millipore | HATF00010 | タンパク質転写膜 |
| 脱脂粉乳 | Solarbio Science & テクノロジー株式会社 | D8340 | 免疫ブロットブロッキング剤 |
| ペアの大腸がん組織および隣接非がん組織 | 著者の所属機関 | 該当なし | 臨床検体 |
| PCRチューブ | Corning | PCR-02-C | PCR/qRT-PCRのセットアップ |
| ペニシリン・ストレプトマイシン溶液 | 生物産業 | 03-031-1B | 細胞培養用抗生物質 |
| PerfectStart Uni RT&qPCRキット | TransGen Biotech Co., Ltd.、中国、北京 | AUQ-01 | mRNA逆転写およびqPCR |
| リン酸緩衝生理食塩水 (PBS) | バイオ産業 | 02-023-1A | 細胞洗浄バッファー |
| プレステインタンパク質マーカー | Fermentas | 26619 | タンパク質分子量マーカー |
| 純水製造システム | 中国・ムール | 利用不可 | 純水の調製 |
| ピューロマイシン | ファイジーン | PH1143 | 導入細胞の選択 |
| Rソフトウェア | R Foundation for Statistical Computing | バージョン 3.6.3 | 統計解析およびバイオインフォマティクス |
| 迅速転写バッファー | Crisbio | 該当なし | タンパク質の電気転写 |
| リアルタイム蛍光定量PCRシステム | Applied Biosystems (ABI)、米国 | 利用不可 | qRT-PCR検出 |
| RIPAライシスバッファー | Solarbio Science & テクノロジー株式会社 | R0020 | タンパク質抽出 |
| RNaseフリーマイクロ遠心チューブ | Corning | 3208 | RNAの取り扱い |
| 無血清細胞凍結保存液 | 新規細胞 & Molecular Biotech Co., Ltd. | C40100 | 細胞の凍結保存 |
| SPSS Statistics | IBM | バージョン 25 | 統計解析 |
| 安定化抗体希釈液 | Solarbio Science & テクノロジー株式会社 | 該当なし | 一次/二次抗体希釈率 |
| 滅菌ピペットチップ | Wuhan Servicebio Technology Co., Ltd. | TP-10-C | 創傷治癒スクラッチツール |
| STRING データベース | STRINGコンソーシアム | ウェブデータベース | タンパク質相互作用ネットワーク解析 |
| TEMED | Solarbio Science & テクノロジー株式会社 | T8090 | SDS-PAGE試薬 |
| TransZol Up | TransGen Biotech Co., Ltd.、中国、北京 | ET111-01 | RNA抽出 |
| Tris-HCl緩衝液、pH 6.8 | Solarbio Science & テクノロジー株式会社 | T1020 | SDS-PAGEスタッキングゲル緩衝液 |
| Tris-HCl緩衝液、pH 8.8 | Solarbio Science & テクノロジー株式会社 | T1010 | SDS-PAGE分離ゲル緩衝液 |
| Tween-20 | Solarbio Science & テクノロジー株式会社 | T8220 | 免疫ブロット洗浄試薬 |
| 縦型高圧蒸気滅菌器 | Shanghai Boxun Medical Biological Instrument Corp. | BXM-30R | 滅菌 |
参考文献
- Sung, H. et al. Global Cancer Statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Siegel, R. L., Miller, K. D., Jemal, A. Cancer statistics, 2019. CA Cancer J Clin. 69 (1), 7-34 (2019).
- Issa, I. A., Noureddine, M. Colorectal cancer screening: an updated review of the available options. World J Gastroenterol. 23 (28), 5086-5096 (2017).
- Song, L., Jia, J., Peng, X., Xiao, W., Li, Y. The performance of the SEPT9 gene methylation assay and a comparison with other CRC screening tests: a meta-analysis. Sci Rep. 7 (1), 3032 (2017).
- Linnekamp, J. F., Wang, X., Medema, J. P., Vermeulen, L. Colorectal cancer heterogeneity and targeted therapy: a case for molecular disease subtypes. Cancer Res. 75 (2), 245-249 (2015).
- Sveen, A., Kopetz, S., Lothe, R. A. Biomarker-guided therapy for colorectal cancer: strength in complexity. Nat Rev Clin Oncol. 17 (1), 11-32 (2020).
- Whiffin, N. et al. Identification of susceptibility loci for colorectal cancer in a genome-wide meta-analysis. Hum Mol Genet. 23 (17), 4729-4737 (2014).
- Ballman, K. V. Biomarker: predictive or prognostic? J Clin Oncol. 33 (33), 3968-3971 (2015).
- Bartel, D. P. MicroRNAs: genomics, biogenesis, mechanism, and function. Cell. 116 (2), 281-297 (2004).
- Forterre, A., Komuro, H., Aminova, S., Harada, M. A comprehensive review of cancer microRNA therapeutic delivery strategies. Cancers (Basel). 12 (7), 1852 (2020).
- Ren, F. J., Yao, Y., Cai, X. Y., Fang, G. Y. Emerging role of miR-192-5p in human diseases. Front Pharmacol. 12, 614068 (2021).
- Nagy, Z. B. et al. Colorectal adenoma and carcinoma specific miRNA profiles in biopsy and their expression in plasma specimens. Clin Epigenetics. 9, 22 (2017).
- Hanzelmann, S., Castelo, R., Guinney, J. GSVA: gene set variation analysis for microarray and RNA-seq data. BMC Bioinformatics. 14 (1), 7 (2013).
- Staiteieh, S. A. et al. Study of microRNA expression profiling as biomarkers for colorectal cancer patients in Lebanon. Mol Clin Oncol. 16 (2), 39 (2022).
- Przygodzka, P. et al. Regulation of miRNAs by Snail during epithelial-to-mesenchymal transition in HT29 colon cancer cells. Sci Rep. 9 (1), 2165 (2019).
- Sun, C. Y., Zhang, X. P., Wang, W. Coordination of miR-192 and miR-22 in p53-mediated cell fate decision. Int J Mol Sci. 20 (19), 4768 (2019).
- Zhao, L., Wang, B., Sun, L., Sun, B., Li, Y. Association of miR-192-5p with atherosclerosis and its effect on proliferation and migration of vascular smooth muscle cells. Mol Biotechnol. 63 (12), 1244-1251 (2021).