ここでは、脳を頭蓋から取り出す際に失われやすい松果体(pineal gland)を保存するための解剖プロトコルを紹介します。このプロトコルにより、胚および出生直後のマウス脳標本において松果体を確実に保持することができ、免疫組織化学、in situ ハイブリダイゼーション、および空間トランスクリプトミクスなどの後続のアプリケーションへの適用が可能になります。
方法論記事
周産期マウス脳標本における松果体の保存
183 回視聴
⸱
2026年9月11日
この記事について
サマリー
要約
メラトニンを分泌する神経内分泌構造である松果体は、胚前脳の背側正中線にある原基から形成されます。マウスの胚齢(E)14.5では、一対の終脳胞の間に、間脳の屋根から突出する松果体憩室が認められます。この憩室は、上層にある軟骨、髄膜、および血管組織と密接に接しています。そのため、胚後期または出生直後に脳を摘出するために頭蓋蓋を開くと、容易に脱落してしまいます。松果体は重要な神経内分泌的役割を担っているにもかかわらず、その初期発生およびこの過程を制御するシグナル伝達機構については、マウス脳発生の胚段階においてこの構造を無傷に維持することが困難であることもあり、依然として十分に解明されていません。
本論文では、胚期から生後7日目(P7)までの脳分離において、松果体の構造的完全性と間脳背側への付着を維持したまま保存することが可能な、革新的な解剖手順を提示します。この手順はE18.5のマウス脳を用いて実演されており、したがって、以下のような組織構造の保存を必要とする後続のアプリケーションに適しています。 in situ ハイブリダイゼーション、免疫組織化学、および空間トランスクリプトミクス。また、本プロトコルは発達中の松果体を単離するためにも使用でき、これにより、そのサイズの小ささゆえに困難であったトランスクリプトームおよびプロテオーム解析における松果体特異的な表現の向上が可能になります。
概要
松果体は、脊椎動物の脳の背面正中線に位置する小さな神経内分泌構造であり、メラトニンの律動的な分泌を通じて概日生理の調節において中心的な役割を果たしている1,2。哺乳類の胚発生において、松果体は発達中の前脳の背面正中線から発生する。マウスでは、背面視床間脳神経上皮の特殊な領域が松果体原基/松果体陥凹を形成し、その後、胚齢(E)14.5日に外反して松果体憩室を形成することで、松果体の発達が始まる3,4,5。この憩室は視床間脳の屋根に付着しており、対をなす終脳胞の間に観察される。発達が進むにつれて、この憩室は脳の背面正中線にある上層構造、特に上矢状洞(SSS)および前脳の背面沿いに走る静脈管である横洞(TS)と密接に関連するようになる6。発達中の松果体はSSSとTSの交差点の直下に位置しており、脳を頭蓋腔から取り出すために上層の血管・髄膜構造を除去する際、背面視床間脳への繊細な付着部位が特に損傷しやすくなる7。そのため、脳抽出のために頭蓋腔を開いた際に松果体が引きちぎられることがあり、非常に損傷を受けやすい。その結果、日常的な解剖において松果体が失われることが多く、無傷の標本における構造や分子組成の解析が制限されている。
ここでは、間脳背側への付着部を維持したまま松果体を温存してマウス脳を解剖するためのステップバイステップのプロトコルについて説明します。本手法は、胎生16.5日(E16.5)から生後初期(P7)までの胚および新生仔に適用可能であり、以下の手法を用いた松果体発達の研究に適しています。 in situ ハイブリダイゼーション、免疫組織化学、および空間的トランスクリプトーム解析。ダウンストリームアプリケーションの実証として、 in situ 松果体濃縮マーカーであるCRXのハイブリダイゼーションおよび免疫組織化学染色を示す。
本手法における主要な革新点は、脳を頭蓋腔から取り出す際に松果体を剪断しうる物理的な付着部を慎重に除去することで、正中構造へのストレスを最小限に抑えたことです。これは標準的な手順に対する改善点となります。
この解剖法はP7までのステージに限定されます。これは、出生後の初期発達段階において頭蓋冠の骨化が進行することで頭蓋骨の剛性が増し、髄膜および血管構造との結合が強くなるためです。成体げっ歯類における松果体解剖の手順を記述した研究はいくつかありますが8、胚期および出生後早期という、松果体が特に脆弱で脳の単離中に損傷を受けやすい段階での保存に焦点を当てた研究はほとんどありません。
プロトコル
すべての手順は、Tata Institute of Fundamental Researchの機関動物倫理委員会の承認を受け、それに従って実施されました。
1. 材料の調製
- 処置を開始する前に、微小解剖に必要なすべての器具(材料表を参照)を準備してください。すべての器具を70%エタノールで滅菌します。空間的トランスクリプトーム解析やin situハイブリダイゼーションなどの後続アプリケーション用のサンプルを回収する場合は、RNase除染溶液で器具を拭いてください。
- 解剖顕微鏡のステージをRNase除染溶液で清掃し、解剖ベンチの近くに氷冷した1× PBSを用意しておきます。
- 本処置の前に、以下の器具およびプラスチックウェアを準備してください:
- 動物の準備用:鈍端ピンセット2組、外科用剪刀1組、ペトリ皿(10 cm)2枚、およびペトリ皿(6 cm)を必要数(頭につき1枚)準備します。
- 脳の分離用:#5ピンセット1組、#55ピンセット1組、微小解剖用剪刀1組、および後続アプリケーションに適した回収チューブまたは皿を準備します。
- 注:後続アプリケーションにin situハイブリダイゼーションや空間的トランスクリプトーム解析が含まれる場合は、使用前に解剖器具をRNase除染溶液で清掃してください。
2. 動物の準備
- 動物(E14.5–P0)については、以下の手順(2.1.1–2.1.6)に従ってください。
- 施設動物倫理委員会のガイドラインに従って、妊娠した親マウスを安楽死させます。本例では、頸脱臼により安楽死させました。
- 妊娠した親マウスの腹腔正中線を切開し、子宮を露出させます。鈍端鉗子を用いて子宮角を慎重に引き出し、氷冷した1× PBSを入れた滅菌済みの10 cmディッシュに入れます。
- 周囲の羊膜および胎盤から分離し、個々の胎児を慎重に単離します。
- 胎児を氷冷した1× PBSを入れた新しい10 cmペトリ皿に移し、脳の単離を行うまで氷上で保持します。胎児を1匹ずつ、氷冷PBSを入れた6 cmペトリ皿に移します。
- P7までの出生後ステージについては、施設動物倫理委員会のガイドラインに従って幼マウスを安楽死させます。その後、ステップ2.1.6以降の手順に進みます。
- 手術用鋏を用いて、前脳を不注意な損傷から保護するため、後脳が頭部側に含まれるように頭部を身体から切り離します。
- 冷PBSで頭部を洗浄し、血液を除去します。氷冷1× PBSを入れた新しい6 cmペトリ皿に移します。その後の解剖ステップにおいて血液や破片が洗い流されるよう、頭部をPBSに浸したまま保持してください。
3. 松果体を保持した状態で脳を単離するための解剖手順
注:以下のすべての工程は、解剖顕微鏡を用いて実施すること。倍率を2倍以上に調整する。× (または必要に応じて)、解剖を通して脳および周囲の構造を明確に可視化します。RNAおよびタンパク質の分解を最小限に抑えるため、解剖の全工程は氷冷PBS中で行います。ステップ3.1〜3.10では、ステップ3.1の指示に従い、非利き手で頭部をしっかりと保持し、手順全体を通して固定してください。ステップ3.2〜3.9は、非利き手で頭部を固定し、利き手で精密な操作を行います。まず#5ピンセットを使用し、その後、各ステップの指定に従って#55ピンセットまたはマイクロディセクション用鋏に切り替えます。
- 非利き手で#5ピンセットを使用する。2つの先端を、しっかりとした下方への動きで眼窩に挿入する。ステップ3.9が完了するまで、下方への圧力を維持して脳をペトリ皿の底に固定する。
注:脳は眼窩の上に位置しているため、眼窩へのピンセットの挿入による影響は受けない。一定の下方圧を維持することで、解剖全般にわたって脳を安定させることができる。 - 利き手を用いて、#5ピンセットで頭部を覆う皮膚をつまんで除去する。
注:この段階で、脳を覆う滑らかな軟骨頭蓋が見える。 - 中脳および後脳の上に位置する軟骨頭蓋の部分を、以下のように除去する。
- #5ピンセットを用い、中脳が終脳と接する箇所の両側にある軟骨頭蓋に、2か所の貫通切開を入れる。
- #5ピンセットの片方の先端を、終脳と中脳を分ける仮想の接線に沿って、軟骨頭蓋の下に接線方向へ滑り込ませる。しっかりと把持し、軟骨頭蓋を切り裂いて開く。
- 中脳と後脳が露出するように、軟骨頭蓋の除去を続ける。
- #55ピンセットに切り替える。終脳を覆う軟骨頭蓋の尾側縁のすぐ下に一方の先端を挿入する。血管組織や髄膜組織との接続を切り離し、軟骨頭蓋を慎重に分離させる。
- マイクロディセクション用ハサミを用い、終脳の背側正中線に沿って嗅球に向かって切開する。閉じた#55ピンセットを用い、軟骨頭蓋と脳の付着部を慎重に除去する。#5ピンセットを用いて、終脳半球を覆う軟骨頭蓋の2つの半分を分離させる。
注:この段階で、SSSが脳内軟骨頭蓋の上縁に沿った暗赤色の静脈として見え、TSがSSSと直交して見える。 - 松果体はSSSの直下にある。マイクロディセクション用ハサミを用い、SSSの吻側端を切断する。
- #55ピンセットを用い、松果体、SSS、およびTSをより明確に露出させるため、軟骨頭蓋の背側部分を両側から完全に除去する。
- マイクロディセクション用ハサミを用い、松果体の両側にあるTSを2か所切断する。#55ピンセットを用いて、TSの外側の付着部を切り離す。
- 閉じた#5ピンセットを用い、脳の吻側部分を腹側頭蓋底から慎重に剥離させる。閉じたピンセットを脳の腹側の下に滑り込ませ、完全に剥離させる。
- 以降の解析への適用に応じて、松果体が保持された状態で脳を保存する。
4. プロトコルの重要なステップ
注:この解剖プロトコルの成否は、松果体周囲の血管付着部の慎重な取り扱いに依存します。解剖の手順を通じて松果体を完全な状態で維持するためには、以下の点が極めて重要です:
- #5鉗子の先端を両側の眼窩に挿入して頭部を固定し、ステップ3.1~3.9の間、常にしっかりと下方へ圧力をかけます。これにより、脳に直接的な圧力をかけることなく、安定した支持が得られます。
- 軟骨頭蓋の除去(ステップ3.3)の際は、松果体が背側間脳から剥離する可能性があるため、過剰に引っ張ったり剥がしたりする動作は避けてください。
- 髄膜および血管の付着部の除去(ステップ3.4)および背側終脳軟骨頭蓋の開放(ステップ3.5)の際は、#55鉗子の先端のみを使用してください。鉗子を深く挿入すると、尾側終脳蓋の直下に位置する松果体を損傷する恐れがあります。
- 脳を摘出する前に、上矢状静脈洞の切断(ステップ3.6)および両側の横静脈洞の切断(ステップ3.8)を完了させてください。これらの切断により、背側静脈ネットワーク内の緊張が緩和され、脳の摘出時に松果体が剪断されるのを防ぐことができます。
- ステップ3.9では、閉じた状態の鉗子を用いて、背側正中線に影響を与えないように注意しながら、脳をそっと突き離します。すべての髄膜および血管の付着部が解放されていれば、脳は頭蓋 vault から容易に分離します。
結果
この解剖プロトコルにより、E16.5からP7までのマウス胚および生後早期の脳から、松果体を本来の解剖学的位置に保持したまま一貫して単離することが可能になります(図 1)。
軟骨頭蓋を段階的に除去し、髄膜および血管の付着部を慎重に除去することで、松果体に不意にせん断ストレスがかかるのを防ぎます。さらに、上矢状静脈洞(SSS)の吻側端を制御しながら切断し、あわせて横静脈洞(TS)を両側で切断することで、背側の血管ネットワークの緊張を効果的に緩和します。これにより、その後の脳抽出時に松果体がせん断されて脱落するのを防ぎます。その結果、頭蓋から脳を分離した後も、松果体は損傷せずの間脳正中に付着したままとなります(図2A)。
保存された松果体の完全性と、その後の解析への適合性を検証するため、松果体マーカーであるCrxのin situハイブリダイゼーションおよびCRXタンパク質の免疫組織化学染色を実施した9,10(図2B–D)。これにより、松果体の同一性と構造的な完全性が確認された。
この解剖プロトコルは複数の発生段階で検証され、大部分の試行において松果体が無傷で保存されました:E16.5 (N = 10)、E18.5 (N = 15)、P0 (N = 10)、および P7 (N = 6)。これにより、本手法が胚期および出生直後の脳の単離において、松果体を保存するための堅牢で再現性の高い方法であることが示されました(図 2E)。
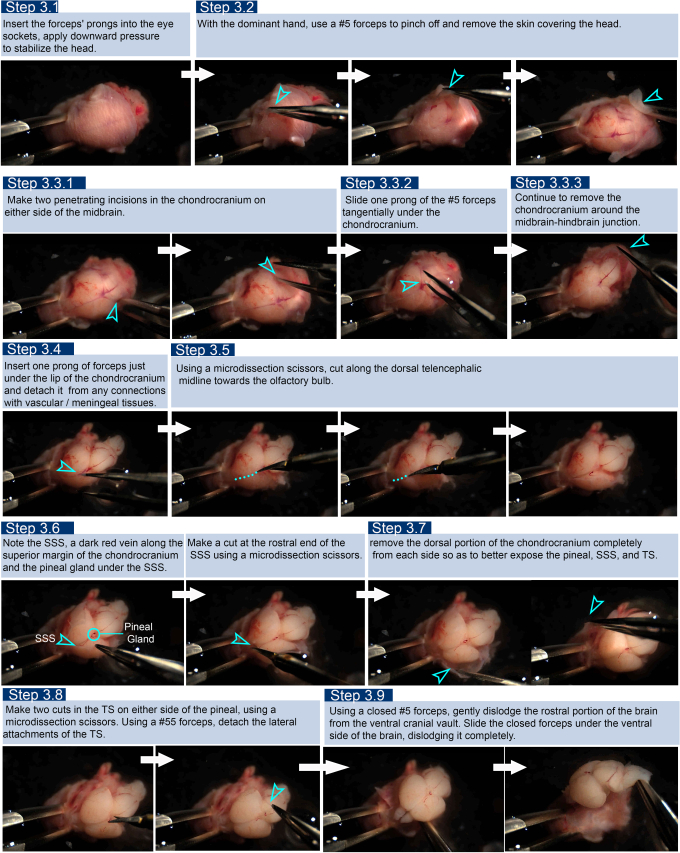
図 1: 松果体を温存した状態でE18.5マウス脳を単離する段階的な手順を示すビデオからの静止画。 こちらをクリックして、この図の拡大版を表示してください。
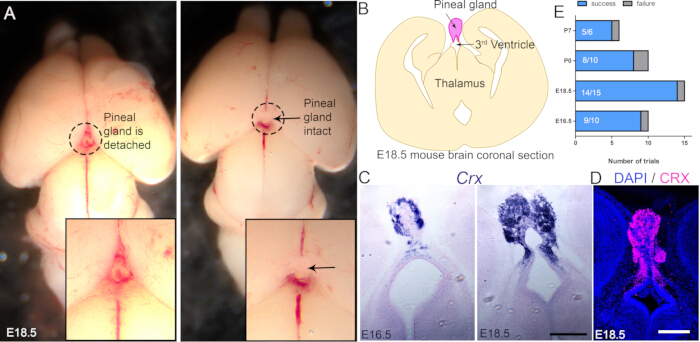
図 2: 代表的な結果。 (A) 標準的な解剖手順で松果体が脱落した2つのE18.5マウス脳の代表例(左)と、本手法を用いて松果体が保持された脳(右)の比較。(B) 松果体をピンク色で示したE18.5冠状断面の模式図。(C) E16.5およびE18.5におけるCrxのin situハイブリダイゼーション。松果体特異的な発現を示している。(D) E18.5におけるCRXの免疫染色。(E) 胚期(E16.5およびE18.5)および出生後(P0およびP7)の各発達段階における、本プロトコルの成功率(松果体が保持された状態で脳を単離)と失敗率(松果体が損傷または消失)を示す棒グラフ。スケールバー:100 µm。A、C、DについてはN = 6の生物学的反復。 こちらをクリックして、この図の拡大版を表示してください。
ディスカッション
ヒトの胎児および乳幼児の脳における標準化された松果体摘出法が開発されており、法医学者が乳幼児突然死症候群の原因を解明する際の手助けとなっています11。従来のプロトコールでは、松果体を表面血管、髄膜、および脈絡叢とともに摘出することが示されていました12。しかし、マウスやその他のげっ歯類の発達初期段階において、間脳背側に付着したままの完全な松果体を確実に保持する方法は、これまで報告されていません。
松果体切除および解析に関する古典的な解剖学的および方法論的な文献の多くは、腺がより大きく特定しやすいラットモデルを用いて構築されています13。対照的に、マウスの松果体はかなり小さく脆弱であるため、通常の脳摘出の手順において消失や損傷を受けやすいという特徴があります。いくつかの研究では、頭部全体で脳を固定することでこの課題への対処を試みています。しかし、この方法は組織切片作成のための準備段階において、さらなる技術的制限をもたらします。例えば、4% paraformaldehydeで固定した後、30% sucroseで凍結保護を行う際、頭蓋 vaultが下層の脳組織に圧力をかけ、背側前脳構造の圧縮や歪みが生じることがあります。このようなアーティファクトは脳の形態を損ない、正確な解剖学的組織に基づいた解析を困難にする可能性があります。さらに、組織を固定する方法がすべての用途に適しているとは限りません。したがって、脳全体の完全性を損なうことなく、松果体を保存し、視床間脳の屋根への付着を維持できる手法が、マウス松果体の発生学的および分子生物学的研究を促進するために必要とされています。
無傷の脳標本において松果体を確実に保存することは、いくつかの実験的応用に不可欠です。免疫組織化学やin situハイブリダイゼーションなどの組織学的および分子生物学的アプローチでは、腺内の遺伝子発現や細胞組織を調べるために、組織構造の保存が求められます。また、近年登場した空間トランスクリプトミクスやその他の空間分解能を持つ分子プロファイリング法においても、特定の解剖学的コンテキスト内で遺伝子発現をマッピングするために、無傷の組織形態が必要となります。現在まで、マウス胚の松果体における空間トランスクリプトミクスマップは報告されていません。これは、従来の脳解剖において松果体を無傷のまま保存することが技術的に困難であることに一部起因していると考えられます。したがって、松果体の完全性を確実に維持する方法は、松果体生物学における最新の空間トランスクリプトミクス的アプローチの適用を促進すると期待されます。さらに、松果体は全脳組織のごく一部にすぎないため、松果体を無傷のまま脳を摘出することで、その後、特異的に松果体を回収するという追加ステップが可能になります。このような回収物をプールすることで、トランスクリプトームおよびプロテオーム解析におけるバルク分析において、松果体特異的なデータの濃縮度を大幅に向上させることができます。
非優位手で#5鉗子を用い、頭部をしっかりと固定する必要があります。この固定状態は解剖プロセス全体を通して維持する必要があるため、必要に応じて優位手で器具の持ち替えを行ってください。照明を調整し、除去が必要な、松果体とそれを覆う血管髄膜組織との付着部をより明確に確認します。
開示事項
著者はすべて、競合する利益がないことを宣言します。
謝辞
優れたサポートをいただいたShital Suryavanshi博士およびタタ基礎研究所(Tata Institute of Fundamental Research)の動物飼育施設スタッフに感謝いたします。また、手順のビデオ撮影のために、研究室のOlympus MVX10ステレオマクロズーム顕微鏡を快く使用させてくださったSundar Naganathan博士に感謝いたします。本研究は、インド政府原子エネルギー省(DAE)からの助成金(プロジェクト識別番号:RTI4003およびRTI4015 (ST))、ICMR-DHR SUG助成金(GAP00303)、およびANRF PMECRG助成金(GAP00313 (AP))による支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 明視野顕微鏡 | Olympus | IX73 | カラーカメラを備えた明視野顕微鏡であれば、どのようなものでも使用可能です。 |
| 共焦点顕微鏡 | Olympus | FV3000 | 必要とされる解像度に応じて、共焦点顕微鏡またはエピ蛍光顕微鏡のいずれでも対応可能です。 |
| CRX抗体 | Invitrogen | PA5-32182 | Parichhaらによって記述された免疫染色のプロトコル9. |
| CRXプローブ | 特注品 | 特注品 | in situ ハイブリダイゼーションプロトコル Parichhaら10. |
| 精密ピンセット # 5 | F.S.T | 11251-23 | 他社製の同等品で代用可能です。 |
| 精密ピンセット # 55 | F.S.T | 11255-20 | 他社製の同等のツールで代用可能です。 |
| PBS, pH 7.4 | Gibco | 10010023 | 他社製の同等の製品で代用可能です。 |
| シャーレ | Corning | CLS351029 | 他社製の同等品で代用可能です。 |
| RNaseZap | Invitrogen | AM9782 | RNaseZap RNase除染溶液は、接触したRNaseを分解する表面除染溶液です。 |
| スプリングシザー(微小 dissect scissors) | F.S.T | 15020-15 | 他社製の同等のツールで代用可能です。 |
| ステレオズーム顕微鏡 | Nikon | SMZ745 | 任意の解剖顕微鏡が使用可能です。 |
参考文献
- Nakahara D, Nakamura M, Iigo M, Okamura H. Bimodal circadian secretion of melatonin from the pineal gland in a living CBA mouse. Proc Natl Acad Sci U S A. 2003;100(16):9584-9.
- Christ E, Pfeffer M, Korf HW, von Gall C. Pineal melatonin synthesis is altered in Period1-deficient mice. Neuroscience. 2010;171(2):398-406.
- Rath MF. Homeobox gene-encoded transcription factors in development and mature circadian function of the rodent pineal gland. J Pineal Res. 2024;76(3):e12950.
- Rath MF, Rohde K, Klein DC, Møller M. Homeobox genes in the rodent pineal gland: roles in development and phenotype maintenance. Neurochem Res. 2013;38(6):1100-12.
- Estivill-Torrús G, Vitalis T, Fernández-Llebrez P, Price DJ. The transcription factor Pax6 is required for development of the diencephalic dorsal midline secretory radial glia that form the subcommissural organ. Eur J Neurosci. 2001;14(6):1011-22.
- Dias M, et al. Transection of the superior sagittal sinus enables bilateral access to the rodent midline brain structures. eNeuro. 2021;8(4):ENEURO.0146-21.2021.
- Matsunaga MM, et al. Morphologic analysis of mice's pineal gland. J Morphol Sci. 2011;28(3):157-60.
- Boeckmann D. Morphological investigation of the deep pineal of the rat. Cell Tissue Res. 1980;210(2):283-94.
- Parichha A, et al. Constitutive activation of canonical Wnt signaling disrupts choroid plexus epithelial fate. Nat Commun. 2022;13:633.
- Parichha A, et al. Dentate gyrus morphogenesis is regulated by β-catenin function in hem-derived fimbrial glia. Development. 2022;149(21):dev200953.
- Sparks DL, Coyne CM, Sparks LM, Hunsaker JC 3rd. Recommended technique for brain removal to retain anatomic integrity of the pineal gland in order to determine its size in sudden infant death syndrome. J Forensic Sci. 1997;42(1):100-2.
- Bowyer JF, et al. A visual description of the dissection of the cerebral surface vasculature and associated meninges and the choroid plexus from rat brain. J Vis Exp. 2012;69:e4285.
- Calvo J, Boya J. Embryonic development of the rat pineal gland. Anat Rec. 1981;200(4):491-500.
再版と許可
