本レビューでは、精子形成の各段階におけるミトコンドリアの品質管理(生物発生、ダイナミクス、およびミトファジー)に関するエビデンスを統合し、代謝の変化と構造的な再構築を男性不妊症に関連付け、今後の研究の指針となる手法上の課題を明らかにします。
この記事について
サマリー
要約
男性不妊症は世界的に増加しています。精子形成はエネルギー消費が激しく、生合成、融合・分裂ダイナミクス、およびミトファジーを含むミトコンドリア品質管理(MQC)と密接に関連しています。本稿では、生殖細胞の発達段階にわたる現在のエビデンスを統合し、解糖系によるATP産生から酸化リン酸化(OXPHOS)主導の代謝への段階特異的な移行、およびミトコンドリア構造の中片鞘への再編について明らかにします。また、内膜・外膜融合に関与するOPA1/MFN1-2、分裂および鞘の構築に関与するDRP1/FIS1/MFFに関する遺伝学的および機能的データをまとめ、ミトコンドリア品質管理におけるPINK1-Parkin依存的および非依存的ミトファジーの役割を概説します。同時に、精子完成期の細胞質除去やアクロソーム維持には、特異的なミトファジーではなく一般的なオートファジーが関与している可能性があることも言及します。活性酸素種(ROS)の過剰産生、ミトコンドリア膜電位(MMP)の崩壊、ダイナミクスの調節不全、またはミトファジーの欠損といったミトコンドリア機能不全は、精子形成と精子機能を損ないます。さらに、臨床応用を制限している手法上の課題、特に標準化されたフェノタイピングの不足やヒトにおける遺伝学的エビデンスの欠如を特定します。MQCの因果関係と薬剤標的としての可能性を明らかにすることは、今後の男性不妊症における診断または治療研究を支援することにつながるでしょう。
概要
精子の質は世界的に低下しており、精子の質の異常に起因する男性不妊症の発症率は増加しています1。最近のメタ解析によると、1973年から2011年の間に、北米、欧州、オーストラリア、およびニュージーランドの男性における精子数は50–60%減少したことが示されており2、この減少は2000年以降に加速しています3。精子の質の急激な低下は世界中で報告されています2,3,4,5,6。この低下の理由はさらなる研究が必要であり、男性の生殖能を保護するための的を絞った対策が求められています。
精子形成は精巣の精細管で行われます。これは精細管の長軸に沿って精子形成細胞が特定の組み合わせで配置され、波のように進行するプロセスであり、最終的に精原幹細胞(SSC)が増殖し、精子へと分化します7。哺乳類の精子形成は、生物学において最も複雑で期間の長い分化プロセスの一つです。ヒトの場合、完全な精子形成サイクルは64〜74日に及び、各精細管上皮サイクルは16日間持続します。この複雑なプロセスにおいて、ミトコンドリアの形状、数、および分布に著しい変化が生じます8。
ミトコンドリア品質管理(MQC)は、ミトコンドリアの生合成、融合、分裂、および選択的ミトファジーの協調的なプロセスであり、変動する生物学的エネルギー需要の下でオルガネラの完全性を維持しています8,9。精巣におけるMQCはステージ特異的であり、増殖期精原細胞から減数分裂および精子形成への移行をサポートし、最終的に精子の中片において高密度にパッキングされたミトコンドリア鞘の構築に至ります9。図1に、精子形成過程におけるMQCのメカニズムを示します。MQC構成要素の破綻は、モデル生物およびヒトにおいて、精子形成不全や低妊孕性を引き起こす可能性があります。本レビューでは、現在のメカニズムに関する知見を統合し、トランスレーショナルな機会について概説します。
レビューと展望
精子形成とミトコンドリアエネルギー代謝
精子形成は、有糸分裂による増殖、減数分裂、および精子完成という3つの連続した段階で構成されており、精原細胞の増殖、精母細胞への分化、減数分裂、精細胞の成熟、そして精細管腔への精子放出が含まれます。精原細胞は、予備型と更新型に分類されます。一部の精原細胞は幹細胞として維持される一方、他の細胞は分化を通じて精子形成に関与します。さらに、一部の細胞はアポトーシスなどのプログラム細胞死を起こします。二倍体の一次精母細胞は、2回の減数分裂を経て、単倍体の精細胞へと分化します。精子完成の過程で、円形精細胞は分裂を停止し、高度に伸長した精細胞へと変形し、最終的に成熟した精子へと発達します。
精子形成には、生殖細胞(精原細胞、精母細胞、精細胞、および精子のそれぞれを含む)と支持細胞であるセルトリ細胞との間の協調的な相互作用、ならびに血液精巣関門の完全性の維持が必要です10,11。隣接するセルトリ細胞間の密着結合によって形成される血液精巣関門は、精細管上皮を基底コンパートメントと管腔側コンパートメントに分けることで、生殖細胞の分化に不可欠な特殊な微小環境を構築し、維持しています11,12。その結果、精原幹細胞から成熟精子に至る精子形成は、この独自の精巣微小環境内で進行します。精子産生プロセスはミトコンドリア機能に大きく依存しています13。真核細胞におけるエネルギー代謝の中心であるミトコンドリアは、精子産生に不可欠であると考えられています。精子の生成は、ミトコンドリアのエネルギー供給およびシグナル伝達機能に強く依存しています。発達中の生殖細胞において、ミトコンドリアは精子形成に必要なATPを供給するだけでなく、細胞内シグナル伝達、細胞周期調節、およびプログラム細胞死に関与することで、そのプロセスに影響を与えます13。ライディッヒ細胞では、ミトコンドリアがステロイドホルモンの産生において重要な役割を果たしており、これらの精巣間質細胞におけるテストステロン産生にはミトコンドリアでのATP合成が必要です14。さらに、独自のDNAを持つ唯一のオルガネラであるため、ミトコンドリアDNAは精子の質と密接に関連しています。したがって、ミトコンドリアの状態とその調節機構を理解することは、精子形成のプロセスを明らかにし、男性の生殖能を維持するために重要です。
エネルギー代謝は精子形成において極めて重要であり、多量のATPを必要とします。ATP産生の主な2つの経路は、ミトコンドリアの酸化的にリン酸化(OXPHOS)と糖新生です。ATP供給はステージ依存的であり、減数分裂や中片の形成に伴いOXPHOSの重要性が増す一方で、糖新生は、特に成熟精子においてATP産生に大きく寄与しています。また、糖新生は柔軟かつ迅速なエネルギー供給を行うことで、精子の成熟、運動性、および女性生殖管の通過をサポートしています。
しかしながら、精原細胞および初期精母細胞では、ミトコンドリアは比較的小さく、OXPHOS活性は限定的である。精子形成が精母細胞、精細胞、そして精子へと後期の段階に進むにつれて、ミトコンドリアはリモデリングされ、そのOXPHOS活性は空間的に集中し、効率的になる。さらに、血液精巣関門が存在するため、利用可能な基質は段階によって異なる。精細管上皮の基底区に位置する精原細胞は、血中のグルコースを利用して糖新生を通じてエネルギーを産生できる。対照的に、管腔区にある精母細胞および精細胞は、血液精巣関門によって血液および間質から隔てられており、セルトリ細胞がグルコース輸送体(GLUTs)を介してグルコースを吸収し、糖新生によってピルビン酸に変換することに依存している。その後、ピルビン酸は乳酸脱水素酵素(LDH)によって乳酸に変換される。乳酸はモノカルボン酸輸送体(MCTs)を介して精母細胞に輸送され、そこでLDHによって再びピルビン酸に変換され、さらにピルビン酸脱水素酵素(PDH)によってアセチルCoAに変換されてトリカルボン酸(TCA)サイクルへと導入される。最終的に、ピルビン酸はミトコンドリアピルビン酸キャリアを介してミトコンドリアに輸送され、OXPHOSを促進する。
ミトコンドリア機能不全による精子形成の障害
精子放出の際、成熟した精子はセルトリ細胞から精細管の腔内へと放出され、その後、精管へと輸送されます。このプロセスには、ミトコンドリアからの多大なエネルギー供給が必要です。ミトコンドリア機能が損なわれると、精子形成が妨げられます。ミトコンドリア機能不全の主な徴候として、活性酸素種(ROS)の過剰産生、ミトコンドリア膜電位(MMP)の変化、ミトコンドリアの分裂と融合のダイナミクスの不均衡、ミトコンドリア生物発生の障害、ミトファジーの欠陥、およびカルシウムイオン恒常性の崩壊が挙げられます。
ミトコンドリアがOXPHOSを通じてATPを産生する過程では、ROSの産生も同時に起こります。ミトコンドリアはROSの主要な発生源であり、ROSは主にミトコンドリア電子伝達系(ETC)の呼吸複合体IおよびIIIで生成されます15。通常の生理的条件下では、適切なレベルのROSが精子形成を調節するシグナル伝達経路に関与しています。しかし、過剰なROSは還元・酸化バランスの崩壊を招き、酸化ストレスを引き起こして精子形成を阻害します。したがって、ミトコンドリアのエネルギー代謝とROS産生のバランスは、精子形成を確実に行うための鍵となる要因です。
効率的なミトコンドリアのOXPHOSには、呼吸炭素基質(ピルビン酸や脂肪酸など)がミトコンドリア外膜を通過して膜間腔へ流入することが不可欠です。これらの基質は、その後、ミトコンドリア内膜に位置する輸送体 über 輸送されてマトリックスへ運ばれ、そこでTCAサイクルに組み込まれます。TCAサイクルにおいて、これらの炭素基質は酸化分解され、ニコチンアミドアデニンジヌクレオチド(NADH)とフラビンアデニンジヌクレオチド(FADH2)を生成します。これらの生成物は電子伝達系(ETC)に電子を供与し、ADPと無機リン酸(Pi)からATPを合成するためのOXPHOSを駆動します。TCAサイクルやETC経路の中断は、精子形成を損なう可能性があります16。細胞のエネルギー状態およびミトコンドリア機能の指標であるMMPは、精子の運動能17および全体的な受精能18に関連していることが示されています。
ミトコンドリアストレス下において、分裂は損傷したミトコンドリアセグメントを分離させることができ、一方で融合は成分の混合と機能的な相補性を促進させます。その後、損傷したミトコンドリアや過剰なミトコンドリアは、ミトファジーを通じて分解およびリサイクルされる可能性があります。これらのミトコンドリア生物発生、分裂、融合、およびミトファジーは、合わせてミトコンドリア品質管理(MQC)を構成し、ミトコンドリアの機能とリモデリングを維持しています19。
精子形成は精原細胞から精子への分化を伴い、これは細胞形態に劇的な変化をもたらすだけでなく、エネルギー代謝のサポートと調節を必要とします。細胞のエネルギー工場であるミトコンドリアは、エネルギー供給、信号伝達、プログラム細胞死など、精子形成の重要な局面において不可欠な役割を果たします。精子形成の間、生殖細胞の代謝要求は発生段階によって異なります。ミトコンドリアの数と形態は、精子形成の過程で大きく変化します。精子の形成過程において、多くのミトコンドリアは除去されますが、保持されたミトコンドリアは精子の中片部に集まり、軸糸および関連する鞭毛構造の周囲にミトコンドリア鞘を形成します。したがって、精子形成中のさまざまな精巣細胞内のミトコンドリアは、融合と分裂を絶えず繰り返しており、その正常な機能を保証し、精子形成の高いエネルギー需要をサポートするためには、効率的かつ精密なMQCメカニズムが必要となります。精子が産生される際、ミトコンドリアの形態と数の両方が著しく変化し、MQCはこのプロセスにおいて重要な役割を担っています。MQCに関与する主要な標的タンパク質を表1に示します。
精子形成とミトコンドリアダイナミクス
ミトコンドリアは非常にダイナミックなオルガネラであり、その形態、サイズ、および細胞内分布は、融合と分裂の協調的な制御を通じて絶えず再編されています。この一連のプロセスは総称してミトコンドリアダイナミクスと呼ばれます。通常の生理的条件下では、融合と分裂はダイナミックな平衡状態にあり、これによりミトコンドリアのホメオスタシスが維持され、機能的な相補性が促進され、細胞分裂時の適切なミトコンドリア継承が保証されます。遺伝的欠損、翻訳後修飾の異常、または病理学的ストレスによってこのバランスが崩れると、ミトコンドリア機能が損なわれ、エネルギー産生が低下し、最終的に精子形成が阻害されます。精子形成には劇的な代謝の変化と広範な形態的再編が伴い、段階に応じたミトコンドリアの構造および活性の適応が不可欠であるため、生殖細胞におけるミトコンドリアダイナミクスの精密な制御は特に重要です。
ミトコンドリア融合は、外膜上のMFN1およびMFN2と内膜上のOPA1によって媒介され、内容物の混合、機能的な相補、およびミトコンドリアDNAの完全性の維持を促進します。融合は単なる防御反応ではなく、生殖細胞の分化過程においてミトコンドリアの継承と代謝適応をサポートする、状況依存的なメカニズムです。精原細胞の分化過程ではMFNの発現が増加し、MFN1またはMFN2のいずれを欠損しても、精原細胞および精母細胞においてDNA酸化とアポトーシスが誘導され、結果として男性不妊につながります20,21。マウスにおいてMFN1の変異は精巣萎縮を引き起こし、精母細胞の著しい減少と精子形成の不全を招きますが、未分化な精原細胞は影響を受けないことから、MFN1は減数分裂の進行に必要であることが示唆されています20。対照的に、MFN2はミトコンドリアと小胞体の両方の機能を制御し、精子形成において独自の役割を果たしています21。
ミトコンドリア分裂はDRP1によって制御されており、DRP1はFIS1、MFF、MID49、MID51などのアダプタータンパク質を介してミトコンドリア外膜にリクルートされます。リクルートされたDRP1はリング状のオリゴマーを形成し、GTP依存的にミトコンドリアを収縮させ、分裂させます。このプロセスは主に3つのステップで構成されています。まずリン酸化によるDRP1の活性化、次にFIS1、MFF、MID49、MID51との相互作用を介した外膜へのリクルート、そして最後にミトコンドリアを囲んで収縮させるリング構造への組み立てであり、この過程でGTPが消費され、2つの独立したオルガネラが生成されます。分裂は、単に脱分極したミトコンドリアを除去したり、増加したエネルギー需要を満たしたりするためのメカニズムではなく、ミトコンドリアの分布、損傷した成分の分離、細胞分裂時の継承、およびミトコンドリア構造のリモデリングを調節する協調的なプロセスです。DRP1欠損マウスは胚性致死となり22,23、MFF欠損マウスは生殖能の低下と精子数の減少を示すため、雄性生殖細胞の発達におけるミトコンドリア分裂を研究するための有用なモデルとなります24。ミトコンドリア分裂は、精子形成過程におけるミトコンドリア鞘の適切な形成に不可欠です。
精子形成はエネルギー消費が激しく、主に精原細胞では糖分解、精母細胞および精細胞では酸化的にリン酸化(OXPHOS)に依存しています。OXPHOSは特に減数分裂において極めて重要であり、その効率は完全なミトコンドリアダイナミクスに依存しています25,26。減数分裂後、MFFおよびその他の分裂タンパク質がミトコンドリア分裂を制御し、精子のミトコンドリア鞘の形成に関与します24。精子完成過程において、一部のミトコンドリアは選択的に保持されて鞘へと再構成される一方、過剰なミトコンドリアや細胞質成分はオートファジーを介して除去されます27。OPA1、DRP1、MFFなどのタンパク質は、精子機能を向上させるための研究ターゲット候補となる可能性がありますが、その治療上の妥当性についてはさらなる検証が必要です。ヒトの精子形成におけるミトコンドリア品質管理(MQC)のさらなる研究は、将来的な男性不妊症の診断または治療研究を促進する可能性があります。
精子形成とミトコンドリアオートファジー
ミトファジーは精子形成において重要な役割を果たしている28。ミトファジーは主に、損傷したミトコンドリアがオートファゴソームに取り込まれることで進行する。損傷したミトコンドリアを含むオートファゴソームはその後、リソソームと融合し、ミトコンドリアがリソソームの作用によって分解されることで、損傷したミトコンドリアが除去され、品質管理が行われる。ミトコンドリアオートファジーの古典的な経路はPINK1/Parkin経路であるが、PINK1/Parkin非依存的な経路についても報告されている29。
オートファジーは、精子形成過程におけるアクロソームの完全性の維持、精細胞の極性化、および細胞質成分の分解を促進しますが、ミトコンドリアの除去が具体的に証明されない限り、これらのプロセスは選択的なミトファジーではなく、一般的なオートファジーを反映しています。研究により、ミトファジーはミトコンドリアダイナミクスと密接に関連しており、ミトコンドリア分裂が過剰または損傷したミトコンドリアを除去するためのミトファジーを促進する可能性があることが分かっています30。FIS1はミトコンドリア分裂タンパク質ですが、精子形成中のミトファジーにも関与しています31。RAB7Aはミトファゴソームの形成およびオートファゴソームの成熟に関与しています32。FIS1はミトコンドリアGTPase活性化タンパク質であるTBC1D15と相互作用します33,34。TBC1D15はRAB7Aの活性を調節し、RAB7Aは小胞とリソソームの融合およびオートファゴソームの成熟に関与しています34,35。FIS1が不活性化されると、RAB7Aがミトコンドリア表面で活性状態のままとなり、オートファゴソーム膜の増殖と管状化の調節不全を招きます。このとき、光学顕微鏡によってLC3の凝集が観察されます35。また、ミトファジーはDRP1介在性のミトコンドリア分裂とは独立して起こることもあるため、ミトコンドリアの除去において分裂が必須であると見なすべきではありません35。
精子完成過程において、精細胞は過剰な細胞成分を排除しますが、研究により、オートファゴソームは精細胞で最も豊富に存在することが分かっています36。中核となるオートファジー遺伝子であるAtg7は、精子形成における精細胞の極性化および細胞質の除去に関連していますが、この文脈において、初期の生殖細胞型は影響を受けにくいと考えられています27,36。加えて、ライディッヒ細胞29、精原幹細胞/前駆細胞37,38、セルトリ細胞39、および毒性物質に曝露したラットの未成熟精巣40を含む、損傷した精巣モデルにおいてミトコンドリアオートファジーが亢進しています。精子形成において、ミトコンドリアオートファジーはアポトーシスやその他の形態のプログラム細胞死に関連しており、それによって精巣内での精子生産に影響を及ぼします41,42。
ビブリオメトリクス的コンテキスト
1970年から2023年までのWeb of Science Core Collectionを対象に、「spermatogenesis」および「MQC」を検索キーワードとして絞り込んだビブリオメトリック解析を実施した。非哺乳類の研究および無関係なレコードは除外され、視覚化にはVOSviewer 1.6.20を用いた43。スクリーニングの結果、66カ国の1,217機関、5,705名の著者による1,019本の論文が抽出された。出版数は着実に増加した(図2A)。米国と中国が最も多くの論文を寄稿し(それぞれ212本と196本)、引用回数は米国が最多であった(12,295回;図2B)。機関および著者のネットワークは図2C、Dにまとめられている。
キーワード共起分析(頻度 > 7)により、精子運動率、酸化ストレス、アポトーシス/プログラム細胞死、DNA損傷、脂質過酸化、および精子品質が重視されていることが示された(図 3)。これらのビブリオメトリクス的なパターンは、メカニズムに関するレビューを補完するものではあるが、それに代わるものではない。すなわち、この分野は酸化損傷と運動性の結果に集中している一方で、ステージ特異的なMQC経路と不妊症を結びつける直接的なヒトでのエビデンスは依然として限られている。
結論
バイオテクノロジーの進歩に伴い、男性不妊に関する研究は、記述的な形態学や運動能から、精子形成の分子および細胞レベルのメカニズムへと移行しています。ミトコンドリアはこのプロセスの中心であり、ATPを生成し、減数分裂および精子完成時のリモデリングをサポートしますが、酸化ストレスや環境的な負荷に対して非常に敏感です44。このようなストレス下で機能を維持するために、ミトコンドリアは、バイオジェネシス、融合・分裂ダイナミクス、およびミトファジーを統合するMQCに依存しています。これらの経路の破綻は、生殖細胞の発達、精子中節の構造、そして最終的に不妊につながります。結論として、得られている証拠は、精子形成においてミトコンドリアダイナミクスとミトファジーがエネルギー産生、オルガネラの再構築、および損傷した構成成分の除去の調整を助けるという、ステージ特異的なモデルを支持しています。しかし、ヒトにおける直接的な証拠や標準化された表現型解析は依然として限られているため、MQC関連タンパク質は、確立された治療標的ではなく、さらなる検証を必要とする研究候補標的として捉えるべきです。
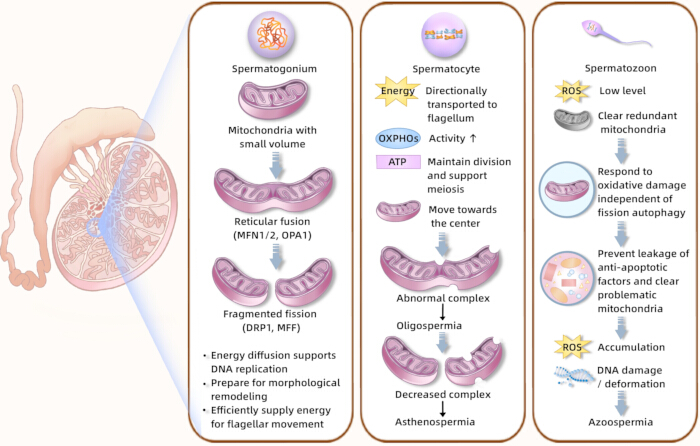
図1精子形成におけるミトコンドリア品質管理のメカニズム。 精子形成におけるステージ分解エネルギー代謝およびミトコンドリアリモデリング。この概略図は、セルトリ細胞と生殖細胞の代謝共役、グルコース輸送体、モノカルボン酸輸送体、ATP産生、減数分裂および精子完成過程における解糖系依存性代謝から酸化リン酸化への移行、ならびに活性酸素種に関連するミトコンドリア損傷を示している。略語:ATP = アデノシン三リン酸、OXPHOS = 酸化リン酸化、ROS = 活性酸素種。 こちらの図の拡大版を表示するには、ここをクリックしてください。
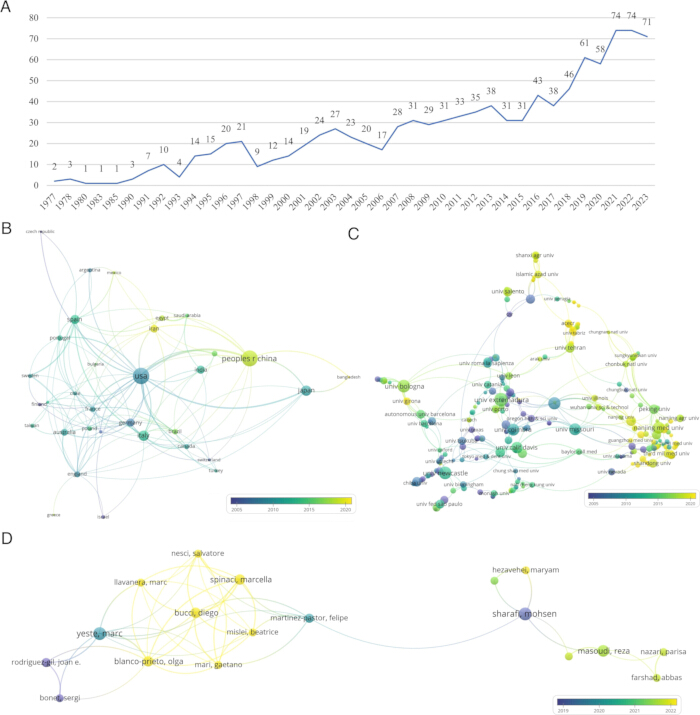
図2国、機関、著者による出版物および共同解析。 (A精子形成およびMQCの分野における年間の論文発表数。B精子形成およびMQC分野における国際共同出版物の経時的分布図。C) 精子形成およびMQC分野における機関間連携の時間的分布図。(D) 精子形成およびMQCの分野における著者の出版物の時間的分布マップ。ノードは出版物数を示し、ノードの色は古いものから新しいものまでの出版時期を示している。線は共同研究関係を表し、線が太いほど密接な共同研究であることを示す。略語:MQC = ミトコンドリア品質管理。 この図の拡大版を表示するには、ここをクリックしてください。
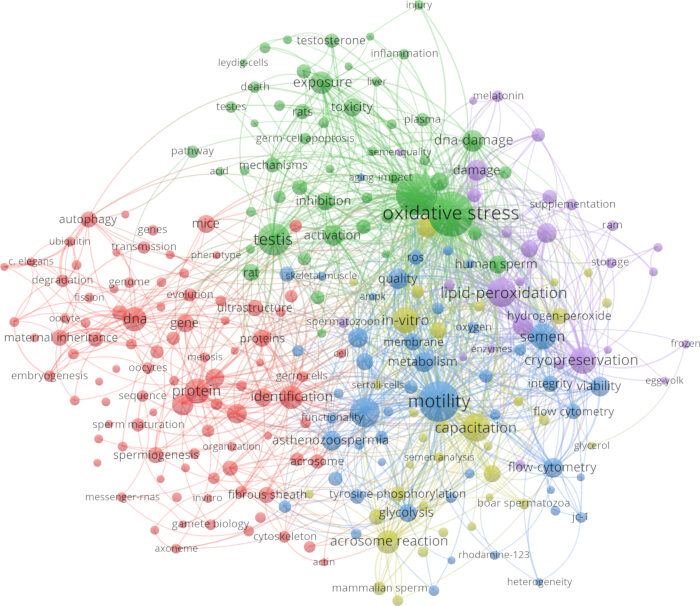
図3高頻度キーワード共起チャート ノードは高頻度キーワードを表し、ノードの大きさは出現頻度を表しています。ノードの色はクラスタリングを示しており、同じ色はより密接に関連するトピックであることを意味します。また、線はキーワード間の関係性を表しており、線が太いほど関係性が強いことを示しています。 この図の拡大版を表示するには、ここをクリックしてください。
| MQCプロセス | 標的タンパク質 |
| ミトコンドリア融合 | 視神経萎縮1 (OPA1) |
| ミトフシン1 (MFN1) | |
| ミトフシン2 (MFN2) | |
| ミトコンドリア分裂 | Dynamin関連タンパク質1 (DRP1) |
| ミトコンドリア分裂1タンパク質 (FIS1) | |
| ミトコンドリア分裂因子 (MFF) | |
| ミトファジー | PTEN誘導性推定キナーゼ1 (PINK1) |
| ユビキチンタンパク質リガーゼParkin(E3ユビキチンタンパク質リガーゼParkin) |
表1:ミトコンドリア品質管理における主要な標的タンパク質。この表は、精子形成過程におけるミトコンドリア融合、ミトコンドリア分裂、およびミトファジーに関与する代表的なタンパク質をまとめたものである。
開示事項
著者らに開示すべき利益相反はありません。
謝辞
本研究は、寧夏回族自治区自然科学基金プロジェクト (2025AAC030481, 2024AAC03715)、中国国家自然科学基金 (82560939, 82505601)、寧夏重点研究開発プログラム (2025FRG05005, 2025BEG2008)、北京自然科学基金 (7254520)、中国博士後科学基金 (2025T181076)、中国科学技術協会による若手エリート科学者支援プログラム (YESS20240193)、中国中医学会による若手人材支援プログラム (CACM-2024-QNRC2-B17)、および国家中薬品管理局による中医学高レベル重点学科建設プロジェクト (zyyzdxk-2023238) の支援を受けて行われました。
参考文献
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.