本プロトコルでは、培養細胞の同期化、夜間の回収を伴わない24~72時間における時間差タイムコースサンプリングの実施、および概日時計遺伝子の発現解析のための、実用的で再現性のあるワークフローを提供します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
概日リズムは、遺伝子発現、代謝、行動など、広範囲にわたる細胞および生理学的プロセスを制御する、約 24 h の内因性振動です。これらのリズムは、時間的および環境的な手がかりに反応する、相互に連結した転写・翻訳フィードバックループから生じます。概日調節は非常にダイナミックであるため、わずかな実験的変動であっても位相、振幅、およびリズム性に影響を及ぼす可能性があり、信頼性と再現性のある結果を得るためには、標準化された実験ワークフローが不可欠です。本プロトコルの目的は、標準的な実験室条件下で、培養細胞の同調、タイムコースサンプリング、および概日時計遺伝子の発現解析を行うための、実用的かつ再現可能なワークフローを提供することです。本プロトコルでは、血清ショック法による同調、夜間サンプリングを避けるための 24–72 h にわたるずらしサンプリング、リボ核酸抽出、相補的脱氧リボ核酸合成、定量的リアルタイムポリメラーゼ連鎖反応、および適切な統計的手法を用いた概日リズム解析について解説します。また、このワークフローでは、実験間の再現性を向上させるために、同調条件、サンプル品質の評価、参照遺伝子の選択、およびデータ解析を含む重要な実験上の検討事項についても強調しています。本手法は、分子的な概日メカニズムの調査および培養細胞におけるリズム性遺伝子発現の評価のための簡便なアプローチを提供し、生理学的および疾患関連の実験モデルにおける概日調節の研究を促進します。
概要
概日リズムは、約24時間周期を持つ内因性のサイクルであり、広範な生理的、代謝的、および細胞的プロセスを調節しています1。哺乳類においては、これらのリズムは視床下部の視交叉上核(SCN)に位置する中枢時計と、細胞レベルの自律的な分子時計によって調整されています。これらの時計は、circadian locomotor output cycles protein kaput (Clock)、basic helix-loop-helix aryl hydrocarbon receptor nuclear translocase-like 1 (Bmal1)、period (Per)、およびcryptochrome (Cry)を含む中核的な時計遺伝子が関与する、相互に連結した転写・翻訳フィードバックループで構成されています2。多様な生物学的プロセスにおいて概日時計が中心的な役割を担っていることから、in vitroの細胞モデルは、制御された実験条件下で時間的調節の分子メカニズムを調査するための重要なツールとなっています。
本プロトコルの目的は、血清ショック法を用いて培養細胞を同期させ、時間をずらしたタイムコースサンプリングを行い、徹夜でのサンプル回収を避けながら概日時計遺伝子の発現を解析するための、信頼性が高く実用的で再現可能なワークフローを提供することです。データの質を損なうことなく概日サンプリングの実現可能性を高めることで、本ワークフローは標準的な実験手法を用いたリズム生物学的プロセスの研究を促進することを意図しています。
概日リズムの研究は、ヒトがん細胞株3、Rat-1線維芽細胞4、SCN 外植片5、オルガノイド6など、幅広いin vitroモデルで実施されてきました。ほとんどの哺乳類細胞は機能的な概日時計を保持していますが、光などの同調手が欠如すると、培養下では急速に脱同調が起こり、in vitroでの概日リズム研究が制限されます7。したがって、分子時計のメカニズムや、それが健康および疾患に与える影響を調査するためには、同調技術が不可欠です。
培養哺乳類細胞のために、いくつかの同期戦略が開発されてきました。デキサメサゾンを用いた糖質コルチコイドベースの同期は、血清刺激に伴う変動の一部を軽減しつつ、多くの細胞型で概日リズムを強力にリセットできるため、最も広く用いられている手法の一つです8。同様に、フォルスコリンによるcAMP(環状アデノシン一リン酸)シグナリングの活性化も、特定の細胞モデルにおいて末梢時計を同期させるために成功裏に使用されてきました9。その他のアプローチとしては、血中シグナルによる処理4、異なる化学化合物8,10、培地交換3、温度ショック11、酸素サイクル12、および機械的刺激13などが挙げられます。総じて、これらの手法は概日リズム研究を大幅に前進させましたが、専用の装置や特定の実験条件、あるいは追加の最適化が必要な場合があるため、個々の生物学的モデルおよび実験的応用に合わせて、選択した同期戦略を検証することが重要です14
血清ショックは、最も広く確立されている同期手法の一つであり、培養細胞を短期間の高濃度血清刺激にさらすことで行われます4。刺激は一過性であるため、細胞シグナル伝達経路への長期的な摂動が最小限に抑えられ4、その後の解析に及ぼす潜在的な混入影響を軽減できます。そのため、血清ショックは概日遺伝子発現や分子時計機能の研究に特に適しています。さらに、この手順は実施が容易で特別な装置を必要としないため、多くの研究室で容易に導入および再現が可能です。しかし、血清ショック実験における実用上の制限は、概日リズム性を正確に特性評価するために必要となる集中的なサンプリングスケジュールです。信頼性の高いリズム解析には、通常、1回以上の概日サイクル(24–72 h)にわたって2–6 hごとの一定間隔でサンプルを回収する必要があり14、夜間の回収作業を伴うことがよくあります。
ここで述べるワークフローは、複数の培養プレートにわたって同期の開始時間をずらすことで、このロジスティック上の課題に対処しており、これにより、夜間のサンプル回収を避けつつ、標準的な勤務時間内に概日サンプリングを完結させることが可能になります。本プロトコルは、新しい同期戦略を導入するのではなく、確立された血清ショック法を、実用的なサンプリングスケジュールおよび下流の遺伝子発現解析と組み合わせて、詳細かつ再現可能な形で実装する方法を提供します。このワークフローは、汎用的な実験手法を用いて培養細胞における概日遺伝子発現を研究する場合に特に適しています。本プロトコルを他の細胞モデルに適応させる際は、細胞密度、同期条件、サンプリング間隔、および参照遺伝子の選択を含む実験パラメータを、導入前にその細胞型に合わせて最適化し、検証する必要があります。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
本プロトコルでは、マウス胚下垂体細胞株mHypoE-42における、検証済みの同期化方法について説明します。他の培養細胞種に適用する前に、同期化プロトコルの検証および最適化を個別に実施してください。参照してください。 図1 ワークフローの概要および 補足図1 週次サンプリングスケジュールに従ってください。「(参照先)」を参照してください。 材料一覧表 本プロトコルで使用するすべての試薬、器具、および装置について準備してください。すべての細胞培養操作は、滅菌済みの試薬および器具を使用し、認証済みのバイオセーフティキャビネット内で行ってください。
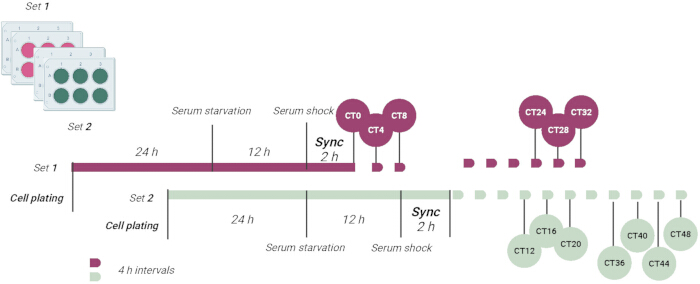
図 1. ずらして実施する血清ショック同期化プロトコルの概略図。2つのずらした実験セットで血清ショックを用いてmHypoE-42細胞を同期化させるワークフローを示す模式図。このずらした設計により、夜間のサンプリングを避けながら、標準的な勤務時間内に概日サンプリングを行うことが可能になる。その後、サンプルはRNA抽出、定量リアルタイムPCR(qRT-PCR)、および概日リズム解析のために処理される。Biorender.comを用いて作成。 この図の拡大版を表示するには、ここをクリックしてください。
1. 細胞培養
- 10% (v/v) 熱不活化ウシ胎児血清 (FBS)、3.7 g/L 重曹、および 1% 抗生物質溶液を添加した Dulbecco’s Modified Eagle Medium (DMEM) 高グルコース (4500 mg/L) で、接着性 mHypoE-42 細胞を培養する。
- T75 培養フラスコを用い、最終培養液量 10 mL で、空気 95% および 二酸化炭素 (CO2) 5% を含む 37°C の加湿インキュベーター内で細胞を維持する。
注:血清のロットによって差があるため、実験を開始する前に新しい FBS のロットをそれぞれテストすること。 - 細胞が約 80%–90% のコンフルエンシーに達した時に継代する。滅菌 1× リン酸緩衝生理食塩水 (PBS; pH 7.4) で細胞を洗浄し、0.5% トリプシン溶液 3 mL を加えて 3–5 分間インキュベートし、細胞を剥離させる。
- トリプシンを中和するため、トリプシン液量の少なくとも 2 倍量の 10% (v/v) FBS 含有完全培地を加える。
- 新鮮な増殖培地を用いて、細胞を最大 1:2 の割合で希釈する。
注:過剰な継代が行われた細胞(例:mHypoE-42 細胞で継代数 40 回超)の使用は避けること。すべての溶液は使用前に予熱する。定期的に培養物のマイコプラズマ汚染を確認すること。 - ステップ 2 に記載されている通り、1 ウェルあたり 2.0 × 10⁵ 個の細胞を播種し、24 時間後に同期化アッセイを行う。通常の細胞培養は、継代前に約 80%–90% のコンフルエンシーに維持する。
2. mHypoE-42細胞株の同調化
- 細胞の調製
- トリプシン処理後、細胞を 700 × g で5分間遠心分離する。
- 上清を捨て、細胞ペレットを10 mLの新鮮な培地で再懸濁する。
- 細胞懸濁液とトリパンブルー染色液を1:1の比率(合計20 μL)で混合し、血球計数器を用いて細胞濃度を測定する。
注意:トリパンブルーを含む溶液は、施設内の化学廃棄物処理ガイドラインに従って廃棄すること。未使用の染色液をシンクに捨てないこと。
- 細胞の播種および時差を設けた実験デザイン
- 6ウェルプレートまたは35-mm培養皿に、1ウェルあたり2.0 × 10⁵個の細胞を播種する。37°Cで24時間インキュベートする。
注意:細胞播種の24時間後に血清同期を開始する。したがって、同期前にあらかじめ定義された細胞コンフルエンスに達している必要はない。代わりに、同期手順を開始する前に、顕微鏡で培養細胞を確認し、細胞が完全に接着し、適切な形態を示していることを確認すること。 - 培養プレートをランダムに2つの実験セットに分ける。1つ目のセットを用いて、概日時間(CT)のCT0、CT4、CT8、CT24、CT28、CT32を作成する。2つ目のセットを用いて、CT12、CT16、CT20、CT36、CT40、CT44、CT48を作成する(図1、付随図1)。
- テクニカルレプリケートを含めるために、必要に応じてウェル数またはプレート数を増やす。
注意:すべてのプレートを同一の細胞懸濁液から調製し、播種密度と培養条件を同一に保ち、同一の試薬と実験設定を用いて同期を行うことで、ばらつきを最小限に抑える。他の細胞種を用いる場合は、必要に応じて培養容器の形式と播種密度を調整する。6ウェルプレートを使用する場合、プレートの利用効率を最適化するため、同時に回収するCTをまとめること。
- 6ウェルプレートまたは35-mm培養皿に、1ウェルあたり2.0 × 10⁵個の細胞を播種する。37°Cで24時間インキュベートする。
- 同期化
- 24時間後、1つ目のプレートセットから培地を吸引し、1 mLの無血清DMEMを加える。12時間インキュベートして血清飢餓を誘導する。
- 使用直前に、高グルコースDMEMを用いて50% (v/v) 馬血清溶液を調製する。
- 1つ目のセットから飢餓培地を吸引し、細胞を調製直後の50%馬血清溶液1 mLに2時間さらす。
- 同時に、2つ目のプレートセットから培地を吸引し、1 mLの無血清DMEMに交換する。12時間インキュベートする。
- 2時間の血清ショック後、培地を吸引し、10% (v/v) 熱不活化FBSを添加した高グルコースDMEM 1 mLを加える。この時点をCT0とする。
- サンプルの回収
- 培養プレートを氷上に置く。培地を吸引し、冷たい滅菌済み1× PBS 1 mLで細胞を2回洗浄し、洗浄液を捨てた後、最大1 mLの溶解試薬を用いて細胞を機械的に溶解する。
注意:溶解試薬には有害化学物質が含まれている。適切な個人用保護具を着用し、認定された化学薬品用ドラフトチャンバー内ですべての操作を行うこと。廃棄物は施設内の化学安全ガイドラインに従って処理すること。 - 各ライセートを滅菌チューブに移し、RNA抽出まで−80°Cで保存する。
- ステップ2.4.1および2.4.2を繰り返し、CT4およびCT8でサンプルを回収する。
- CT8において、2つ目の実験セットに対してステップ2.3.2を繰り返し、残りの細胞を同期させる。
- 2時間の血清ショック後、培地を10% (v/v) 熱不活化FBSを添加した高グルコースDMEM 1 mLに交換し、2つ目の実験セットの同期を終了させる。
- 2つの実験セットから交互にサンプルを回収し、CT12、CT24、CT16、CT28、CT20、CT32を得る。翌日、回収手順を繰り返し、CT36、CT40、CT44、CT48を得る。
注意:血清飢餓および同期は、あらかじめ定義された細胞コンフルエンスではなく、細胞播種後の実験タイムラインに従って開始した。同期を開始する前に、細胞が完全に接着し、適切な形態を示していることを確認すること。連続するCTは4時間の間隔があるが、回収は4時間おきに行うわけではない。週間回収スケジュールの詳細は付随図1を参照すること。
- 培養プレートを氷上に置く。培地を吸引し、冷たい滅菌済み1× PBS 1 mLで細胞を2回洗浄し、洗浄液を捨てた後、最大1 mLの溶解試薬を用いて細胞を機械的に溶解する。
3. サンプル処理:RNA抽出
注:プロトコルは実験の状況や用途によって異なる場合があります。以下のワークフローは、RNA抽出、相補的DNA(cDNA)合成、および定量リアルタイムポリメラーゼ連鎖反応(qRT-PCR)のための効果的な手順の一例を示したものです。フェノールベースの溶解と相分離を組み合わせた手法で全RNAを抽出し、その後、シリカスピンカラムを用いて精製します。
- サンプルの調製および相分離
- サンプルを融解し、ライセートを再ホモジナイズして、室温で5分間インキュベートする。
- 溶解試薬1 mLにつき、クロロホルムを200 μL添加する。
注意:クロロホルムは揮発性であり、毒性がある。クロロホルムを使用するすべての操作は、適切な個人用保護具を着用し、認定された化学薬品用ドラフトチャンバー内で行うこと。 - チューブを15秒間激しく振盪し、室温で3分間インキュベートする。
- サンプルを4°C、12,000 × g で15分間遠心分離する。サンプルを、タンパク質を含む下層のフェノール・クロロホルム相、DNAを含む白い中間相、およびRNAが濃縮された上層の水相の3相に分離させる。
- 中間相を乱さないように注意しながら、水相を新しい滅菌チューブに回収する。後でタンパク質またはDNAの単離を行う予定がある場合は、有機相を4°Cで保存する。
注:有機相からこれらの生体分子を回収する場合は、適切なプロトコルに従ってタンパク質またはDNAの単離を行うこと。
- RNAの精製
- 水相に等量の70%エタノール(RNaseフリー水で調製)を加え、ボルテックスミキサーで15秒間2回撹拌してRNAの結合を促進させる。
- サンプルをシリカスピンカラムにロードし、カラム精製ワークフローに従ってRNAを精製する。
- DNaseを用いて、室温で15分間、混入しているゲノムDNAを消化する。
- 付属の洗浄バッファーを用いてカラムを洗浄する。
- 洗浄バッファー100 μLでさらに洗浄し、11,000 × gで2分間遠心分離してシリカメンブレンを乾燥させる。
- スピンカラムを清潔なマイクロ遠心チューブに移す。RNaseフリー水40–60 μLをシリカメンブレンの中央に直接滴下し、11,000 × gで1分間遠心分離してRNAを溶出させる。
注:目的のRNA収量と濃度に応じて溶出量を選択する。溶出量を60 μLにすると、一般的にシリカメンブレンからより完全にRNAを回収できるが、RNA溶液は希釈される。対して、溶出量を40 μLにすると、より高濃度のRNA調製物が得られるが、総RNA回収量が減少する場合がある。溶出量は、メーカーの推奨事項および下流のアプリケーションの要件に従って最適化すること。
- RNAの品質評価
- RNAサンプルを氷上に置き、品質評価のために各サンプル5 μLを新しい滅菌マイクロ遠心チューブに移す。
- 1.5%アガロースゲル電気泳動またはキャピラリー電気泳動を用いてRNAの完全性を評価する。28Sおよび18SリボソームRNAの明確なバンドの存在を確認する。
- 分光光度計で吸光度を測定し、RNA濃度と純度を決定する。
注:フェノールを含む廃棄物は、施設の化学廃棄物処理ガイドラインに従って廃棄すること。有害化学廃棄物をシンクに捨ててはならない。培養細胞サンプルの場合、RNA濃度は通常200から1000 ng/μLの範囲であり、cDNA合成およびqRT-PCRに適している。A260/230比が2.0から2.2の間で、A260/280比がおよそ2.0のRNAサンプルを許容とする(付録表1を参照)。
- RNAの保存
- 精製したRNAサンプルは、cDNA合成まで−80°Cで保存する。
4. サンプル処理:cDNA合成
注:第一鎖cDNA合成キットを用いて、1 μgの全RNAからcDNAを合成します。反応量およびインキュベーション条件は、製造元の指示に従って調整してください。
- 逆転写
- RNAサンプルを氷上で解凍する。全RNA 1 μg、2× Master Mix(リボヌクレアーゼインヒビター、ランダムヘキサマー、oligo(deoxythymidine)プライマー、マグネシウムイオン [Mg2+]、およびデオキシヌクレオチド三リン酸を含む)10 μL、酵素ミックス(逆転写酵素を含む)2 μL、およびジエチルピロカルボネート処理水を加え、最終容量を20 μLとした20 μLの逆転写反応液を調製する。
- サーマルサイクラーを用いて、プライマーをアニーリングさせるため25°Cで10分間、続いてcDNA合成のため50°Cで30分間インキュベートする。反応液を85°Cで5分間インキュベートし、逆転写酵素を失活させる。
- RNase Hを1 μL加え、37°Cで20分間インキュベートして、RNA–DNAハイブリッドのRNA鎖を分解させる。
- アッセイの最適化要件に従い、cDNA調製液を滅菌水で最大1:20まで希釈し、定量リアルタイムポリメラーゼ連鎖反応(qRT-PCR)分析まで希釈したcDNAを−20°Cで保存する。
5. サンプル処理:リアルタイム定量ポリメラーゼ連鎖反応 (qRT-PCR)
注:qRT-PCRを用いて概日時計遺伝子の発現を測定してください。検証済みのプライマー配列、アニーリング温度、およびプライマー濃度については、付録表2を参照してください。
- アッセイの最適化
- 実験サンプルを解析する前に、プールしたcDNAサンプルと標準曲線を用いて、プライマー濃度、アニーリング温度、およびcDNA投入量を検証および最適化する。アッセイの最適化と検証は、既報の方法15,16に従って行う。
- 反応セットアップ
- 96ウェルPCRプレートに、2×マスターミックス 5 μL、フォワードおよびリバースプライマー各 0.4 μL、ジエチルピロカーボネート処理水 0.2 μL、およびcDNAテンプレート 4 μLを混合し、10 μLのqRT-PCR反応液を調製する。
- プレートを光学的に透明なシーリングフィルムまたはシーリングマットで封印する。気泡を取り除き、反応混合物を各ウェルの底に集めるため、プレートを4°Cで最大5分間、700 × gで遠心分離する。
- すべてのcDNAサンプルを解析し、標的遺伝子 Bmal1 および Per2 の発現を決定する。
- サンプル間の遺伝子発現を標準化するため、同じcDNA希釈率を用いて選択したリファレンス遺伝子(B2m)を解析する。
- サーマルサイクリング
- 以下のサイクリング条件でqRT-PCRを行う:95°Cで2分間の初期変性およびホットスタートDNAポリメラーゼの活性化の後、95°Cで5秒間および60°Cで30秒間のサイクルを39回繰り返す。
- 反応液を95°Cで5秒間加熱し、その後0.5°Cずつ段階的に95°Cまで昇温させ、各段階で5秒間保持することで融解曲線分析を行う。
注:必要に応じて、マスターミックスの推奨事項に基づき、保持時間と融解曲線の設定を調整すること。
- リファレンス遺伝子の検証
注:血清同期実験では、血清処理によってハウスキーピング遺伝子の発現が変化する可能性があるため17、リファレンス遺伝子の候補を評価すること。BestKeeper18、geNorm19、NormFinder20、または比較ΔCt法21などの手法を用いて発現の安定性を評価する。標準化のために最も安定した遺伝子を選択する。本研究では、複数のリファレンス遺伝子検証アルゴリズムを統合したRefFinderソフトウェア22を用いて、β-actin (Actb) および β-2-microglobulin (B2m) を評価した。概日時間経過を通じて B2m が最も高い発現安定性を示したため、これを標準化に選択した。 - 産物の検証
- 2%アガロースゲル電気泳動を用いてPCR産物を解析し、増幅の特異性を検証する。
注:複数の温度(例:58°C、60°C、62°C)をテストして、最適なアニーリング温度を決定する。プライマーダイマー形成の証拠がなく、単一の融解曲線ピークを維持しながら、最も低い定量サイクル(Cq)値を示す温度を選択する。
注:増幅効率が90%から110%の間であり、決定係数(R2)が0.99以上のアッセイを採用する。テクニカルリプリケート間の融解温度の差が0.5°C以内であることを確認する。解析にはCqの差が ≤0.5 のテクニカルリプリケートのみを採用し、これらの値を用いて平均発現レベルを算出する。すべての反応はテクニカルリプリケート(例:3連)で行い、ノンテンプレートコントロールおよび逆転写なしコントロールの両方を含める。
- 2%アガロースゲル電気泳動を用いてPCR産物を解析し、増幅の特異性を検証する。
6. データ解析
- 遺伝子発現解析
- 後続の解析を行う前に、各サンプルのテクニカルリプリケートの平均値を算出する。
- 以下の式を用いて、各サンプルおよびタイムポイントのΔCq値を算出する:
ΔCq = Cqターゲット遺伝子 - Cqハウスキーピング遺伝子 - 以下の式を用いて、各サンプルおよびタイムポイントのΔΔCq値を算出する:
ΔΔCq = ΔCqサンプル - ΔCqコントロール
注:ΔΔCqの算出において、ΔCqコントロールは、すべてのCTにおけるすべてのコントロールサンプルの平均ΔCq値として定義した。 - CircaCompare23を用いて、リズムの中間推定統計量(MESOR)、振幅、ピーク、および位相を含む概日リズムパラメータを評価する。解析は、オンラインアプリケーションまたはRパッケージの実装のいずれかを用いて行う。
- オンラインCircaCompare解析
注:オンライン実装では、データセットがリズム性の統計的基準を満たしている場合にのみ、完全な概日パラメータ推定値が報告される。リズム性が弱い場合、または統計的に有意でない場合は、R実装を用いてすべてのデータセットのパラメータ推定値を取得すること。- カンマ区切り値(.csv)ファイルを作成する。
- 列1に時間変数(数値;hour)を入力する。
- 列2にグループ変数(実験群は2群のみ)を入力する。
- 列3にアウトカム変数(数値;ΔΔCq)を入力する。
- 作成した.csvファイルをオンラインCircaCompareアプリケーションにアップロードする。
- 時間、グループ、およびアウトカム変数を対応する列に割り当てる。
- Runを選択して解析を実行する。
- カンマ区切り値(.csv)ファイルを作成する。
- RによるCircaCompare解析
- R version 4.5.1およびCircaCompareパッケージ version 0.2.024を用いて解析を行う。
- 必要なRパッケージをインストールする。
- devtoolsパッケージ(version 2.5.2)をインストールする。
- circacompareパッケージ(version 0.2.0)をインストールする。
- ggplot2パッケージ(version 4.0.3)をインストールする。
- svgliteパッケージ(version 2.2.2)をインストールする。
- 入力用.csvファイルをアップロードする。
- alpha_threshold = 1に設定した後、CircaCompare解析を実行する。
注:alpha_threshold = 1に設定すると、統計的な有意性に関わらず、フィッティングされたすべての振動の概日パラメータ推定値が報告される。ただし、p-value < 0.05の振動のみをリズム性があり統計的に有意であると解釈すべきである。 - スクリプトを実行する前にSupplementary File 1をカスタマイズする。
- 「XXX.csv」を入力データファイル名に置き換える。
- 「YYY.csv」を希望する結果ファイル名に置き換える。
- 「ZZZ.svg」を希望するプロットファイル名に置き換える。
- データセットに応じて、y軸の範囲(ylim)およびその他の作図パラメータを調整する。
- 入力ファイルの例については、Supplementary Table 3を参照すること。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
同期の成功は、対照条件下で解析した時計遺伝子が統計的に有意な概日リズムを示すこと(p < 0.05)によって判断されます。本研究では、0.1% ジメチルスルホキシドを陰性対照とし、3回の独立した生物学的実験を行いました。Bmal1 および Per2 は、分子概日時計のコアコンポーネントであり、特性がよく分かっている逆位相の発現パターンを示すため、代表的な概日マーカーとして選定しました。同期後に得られた代表的なリズム発現プロファイルを図2に示します。リズム性、MESOR、振幅、ピーク時刻を含む対応する概日パラメータを表1にまとめ、Bmal1 と Per2 のペア比較を表2に示します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
概日リズムとは、保存された分子時計メカニズムを通じて、広範な生理学的、代謝的、および細胞的プロセスを調節する約24時間の内因性サイクルである1,2。In vitro 同期モデルは、これらのメカニズムを調査するための制御された実験環境を提供し、環境汚染物質への曝露やその他の実験的な摂動を含む、正常および病理学的条件下での概日調節を研究するための貴重なツールとなっている25。本プロトコルでは、血清ショックによる培養細胞の同期、スタガードサンプリング戦略を用いたタイムコースサンプルの収集、およびqRT-PCRによる概日遺伝子発現の定量化という実用的なワークフローについて説明する。このワークフローは、夜間のサンプル収集に伴うロジスティクス上の課題を最小限に抑えつつ、時間的な遺伝子発現プロファイリングを必要とする研究に特に適している。本プロトコルの成功と再現性を決定付ける重要なステップがいくつか存在する。不十分な同期はリズム性の弱化や検出不能を招く可能性があるため、...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者らは、利益相反がないことを宣言します。
謝辞
本研究は、欧州連合(EU)の復興・レジリエンス基金および、プロジェクトLA/P/0058/2020 (DOI: 10.54499/LA/P/0058/2020)、UID/04539/2025、UID/PRR/04539/2025 (DOI: 10.54499/UID/PRR/04539/2025)、およびUID/PRR2/04539/2025 (DOI: 10.54499/UID/PRR2/04539/2025) を通じたFCT(科学技術財団)によるポルトガル国家資金、プロジェクトCENTRO2030-FEDER-02360200を通じたCentro 2030地域運用プログラムによる欧州地域開発基金(ERDF)、および助成金2023.17896.ICDT (DOI: 10.54499/2023.17896.ICDT)、2023.12355.PEX (DOI: 10.54499/2023.12355.PEX)、2021.02220.CEECIND/CP1656/CT0008 (DOI: 10.54499/2021.02220.CEECIND/CP1656/CT0008)、2020.04850.BD (DOI: 10.54499/2020.04850.BD)、および2021.05334.BD (DOI: 10.54499/2021.05334.BD) を通じたFCTによるポルトガル国家資金より共同助成を受けました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 6ウェル細胞培養プレート | Nest Biotechnology | 15140122 | 細胞培養プレート |
| アガロース | NZYtech | MB02702 | RNA品質評価 |
| 抗生物質混合液(ペニシリン/ストレプトマイシン) | Gibco, Thermo Fisher Scientific | D5648 | 細胞培養サプリメント |
| cDNA合成キット(第一鎖) | NZYtech | MB12502 | 逆転写 |
| クロロホルム | Sigma-Aldrich | A5256701 | 相分離試薬 |
| DMEM、高グルコース (4500 mg/L glucose, L-glutamine) | Sigma-Aldrich | 26050088 | 細胞培養基材 |
| Eppendorf マイクロ遠心チューブ | Eppendorf | 30120086 | サンプルの保存 |
| エタノール (96%) | Fisher Bioreagents | 15552393 | RNA精製 |
| 熱不活化ウシ胎児血清 | Gibco, Thermo Fisher Scientific | ※この入力は識別番号(J62692.K7)のみであり、翻訳すべきテキストが含まれておりません。翻訳対象のソーステキストをご提示ください。 | 細胞培養サプリメント |
| ハードシェル96ウェルPCRプレート | Bio-Rad Laboratories | HSP9601 | qRT-PCRプレート |
| 馬血清(熱不活化) | Gibco, Thermo Fisher Scientific | 15400054 | 血清ショック同期化 |
| mHypoE-42細胞株 (CVCL_D443) | CELLutions Biosystems Inc. | MB13402 | マウス胚視床下部細胞株 |
| オリゴヌクレオチドプライマー | NZYtech | MB12501 | qRT-PCRプライマー |
| リン酸緩衝生理食塩水 (PBS) | Thermo Fisher Scientific | MB18502 | 細胞の洗浄 |
| qPCR グリーンマスターミックス (2×) | NZYtech | MB22403 | qRT-PCR試薬 |
| リアルタイムPCR検出システム | Bio-Rad Laboratories | EP0030108116 | qRT-PCR装置 |
| RNA抽出キット | NZYtech | 288306 | シリカスピンカラム精製 |
| RNA溶解試薬 | NZYtech | MB18502 | フェノール系RNA抽出試薬 |
| 炭酸水素ナトリウム | Sigma-Aldrich | MB22401 | 細胞培養培地サプリメント |
| 滅菌済み35 mm培養ディッシュ | Thermo Fisher Scientific | 121V | 細胞培養ディッシュ |
| T100 サーマルサイクラー | Bio-Rad Laboratories | 1861096 | cDNA合成 |
| T75組織培養フラスコ | Corning | 430641U | 細胞培養容器 |
| トリパンブルー溶液 (0.4%) | Gibco, Thermo Fisher Scientific | 15250061 | 細胞計数 |
| トリプシン-EDTA (0.5%) | Gibco, Thermo Fisher Scientific | 15400054 | 細胞解離 |
参考文献
- Fuhr L, Abreu M, Pett P, Relógio A. Circadian systems biology: When time matters. Comput Struct Biotechnol J. 2015;13:417-426.
- Albrecht U. Timing to perfection: The biology of central and peripheral circadian clocks. Neuron. 2012;74(2):246-260.
- Relógio A, et al. Ras-mediated deregulation of the circadian clock in cancer. PLoS Genet. 2014;10(5):e1004338.
- Balsalobre A, Damiola F, Schibler U. A serum shock induces circadian gene expression in mammalian tissue culture cells. Cell. 1998;93(6):929-937.
- Hughes ATL, et al. Constant light enhances synchrony among circadian clock cells and promotes behavioral rhythms in VPAC2-signaling deficient mice. Sci Rep. 2015;5:12092.
- Fuhr L, et al. The circadian clock regulates metabolic phenotype rewiring via HKDC1 and modulates tumor progression and drug response in colorectal cancer. EBioMedicine. 2018;33:105-121.
- Nagoshi E, et al. Circadian gene expression in individual fibroblasts: Cell-autonomous and self-sustained oscillators pass time to daughter cells. Cell. 2004;119(5):693-705.
- Balsalobre A, et al. Resetting of circadian time in peripheral tissues by glucocorticoid signaling. Science. 2000;289(5488):2344-2347.
- Kaneko H, Kaitsuka T, Tomizawa K. Response to stimulations inducing circadian rhythm in human induced pluripotent stem cells. Cells. 2020;9(3):732.
- Chalmers JA, et al. Vascular circadian rhythms in a mouse vascular smooth muscle cell line (Movas-1). Am J Physiol Regul Integr Comp Physiol. 2008;295:R1529-R1538.
- Brown SA, et al. Rhythms of mammalian body temperature can sustain peripheral circadian clocks. Curr Biol. 2002;12(18):1574-1583.
- Adamovich Y, et al. Rhythmic oxygen levels reset circadian clocks through HIF1α. Cell Metab. 2017;25(1):93-101.
- Rogers EH, et al. Comparing circadian dynamics in primary derived stem cells from different sources of human adult tissue. Stem Cells Int. 2017;2017:2057168.
- Gaspar LS, et al. The importance of determining circadian parameters in pharmacological studies. Br J Pharmacol. 2019;176(16):2827-2847.
- Nolan T, Hands RE, Bustin SA. Quantification of mRNA using real-time RT-PCR. Nat Protoc. 2006;1(3):1559-1582.
- Derveaux S, Vandesompele J, Hellemans J. How to do successful gene expression analysis using real-time PCR. Methods. 2010;50(4):227-230.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCT method. Methods. 2001;25(4):402-408.
- Pfaffl MW, Tichopad A, Prgomet C, Neuvians TP. Determination of stable housekeeping genes, differentially regulated target genes and sample integrity: BestKeeper—Excel-based tool using pair-wise correlations. Biotechnol Lett. 2004;26(6):509-515.
- Vandesompele J, et al. Accurate normalization of real-time quantitative RT-PCR data by geometric averaging of multiple internal control genes. Genome Biol. 2002;3(7):research0034.1-research0034.11.
- Andersen CL, Jensen JL, Ørntoft TF. Normalization of real-time quantitative reverse transcription-PCR data: a model-based variance estimation approach to identify genes suited for normalization. Cancer Res. 2004;64(15):5245–5250.
- Silver N, Best S, Jiang J, Thein SL. Selection of housekeeping genes for gene expression studies in human reticulocytes using real-time PCR. BMC Mol Biol. 2006;7:33.
- Xie F, Wang J, Zhang B. RefFinder: a web-based tool for comprehensively analyzing and identifying reference genes. Funct Integr Genomics. 2023;23:125.
- Parsons R, Garner N, Oster H, Rawashdeh O. CircaCompare: A method to estimate and statistically support differences in mesor, amplitude and phase between circadian rhythms. Bioinformatics. 2020;36(4):1208-1212.
- Parsons R. circacompare: Analyses of circadian data. R package version 0.2.0. 2021. Available at: https://CRAN.R-project.org/package=circacompare
- Di Nisio A, et al. Impairment of human dopaminergic neurons at different developmental stages by perfluoro-octanoic acid (PFOA) and differential human brain areas accumulation of perfluoroalkyl chemicals. Environ Int. 2022;158:106982.
- Xiang S, et al. Oscillation of clock and clock-controlled genes induced by serum shock in human breast epithelial and breast cancer cells: Regulation by melatonin. Breast Cancer (Auckl). 2012;6:155-168.
- Chang HC, Guarente L. SIRT1 mediates central circadian control in the SCN by a mechanism that decays with aging. Cell. 2013;153(7):1448-1460.
- Yoo SH, et al. PERIOD2::LUCIFERASE real-time reporting of circadian dynamics reveals persistent circadian oscillations in mouse peripheral tissues. Proc Natl Acad Sci U S A. 2004;101(15):5339-5346.
- Ueda HR, et al. System-level identification of transcriptional circuits underlying mammalian circadian clocks. Nat Genet. 2005;37(2):187-192.
- Beaulé C, Granados-Fuentes D, Marpegan L, Herzog ED. In vitro circadian rhythms: Imaging and electrophysiology. Essays Biochem. 2011;49(1):103-117.
- Ribeiro RFN, et al. Circadian rhythms are disrupted in patients and preclinical models of Machado-Joseph disease. Brain. 2025;148(11):4127-4142.
- Masri S, Sassone-Corsi P. The emerging link between cancer, metabolism, and circadian rhythms. Nat Med. 2018;24(12):1795-1803.
- Ribeiro RFN, Cavadas C, Silva MMC. Small-molecule modulators of the circadian clock: Pharmacological potentials in circadian-related diseases. Drug Discov Today. 2021;26(7):1620-1641.
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
この記事は公開されました
動画は近日公開