私たちは、個々の細胞挙動を解析するためのモザイクオルガノイドと、ヒトおよびマウスの腸内オルガノイドにおける細胞型転移を監視するためのFATEレポーターオルガノイドという2つのレポーター戦略に適用された共焦点イメージングおよび追跡パイプラインについて説明します。
方法論記事
ヒトおよびマウス腸オルガノイドにおけるクローンの動態と運命転移を監視するためのライブセルイメージングおよび単細胞追跡
* These authors contributed equally
この記事について
サマリー
要約
腸上皮は幹細胞分裂、細胞分化、移動を通じて急速な自己更新を行います。個々の細胞がどのように特定の運命にコミットし、この組織内でクローンの動態がどのように現れるかを理解するには、細胞の挙動をリアルタイムかつ単一細胞分解能で捉える手法が必要です。腸オルガノイドは上皮の自己組織化や細胞型多様性の重要な特徴を再確認するため、制御された環境でこれらの過程を研究する強力なシステムとなっています。ここでは、ヒトおよびマウスの腸オルガノイドにおける長期共焦点ライブ細胞イメージング(最大72時間)および単細胞追跡のためのプロトコルを提示し、2つの補完的なレポーター戦略を基に構築しています。まず、異なる標識細胞群を組み合わせてモザイクオルガノイドを生成する方法を記述し、高密度上皮の個々の細胞に帰せない膜局在性および細胞骨格リポーターの単一細胞分解を可能にします。次に、細胞型特異的な運命報告装置(ゴブレット細胞のMUC2、パネス細胞のDEFA5)を用いて、分泌細胞型の遷移をリアルタイムで監視します。プロトコルでは、オルガノイド培養、モザイクオルガノイド形成、光毒性を最小限に抑える戦略を用いたサンプル準備、数日にわたる画像取得、そして細胞の軌跡や系統を時間とともに再構築するOrganoidTrackerを用いた半自動単一細胞追跡が含まれます。腸内オルガノイドで実証されているものの、この枠組みは胃、膵臓、大腸モデルなど他の上皮オルガノイド系にも容易に適応でき、上皮生物学、恒常性、疾患の研究に応用範囲を広げています。
概要
腸上皮は体内で最も速い自己更新組織の一つであり、ほとんどの細胞は3〜5日以内に置き換えられます。この継続的なターンオーバーは、腸のクリプト基部に存在するロイシンリピート含有Gタンパク質結合受容体5(Lgr5)陽性幹細胞によって維持されており、トランジット増幅前体を生み出し、腸内壁の特殊細胞タイプへと分化しながら絨毛先端1へ向かいます。主な分化系統には、吸収型腸血球、粘液分泌型ゴブレット細胞、ホルモン産生型腸内分泌細胞、抗菌性パネス細胞2が含まれます。個々の細胞がどのように特定の運命にコミットし、集団的な細胞行動が個々の細胞動態からどのように現れ、組織レベルの協調がどのように達成されるのかは、腸生物学における基本的な問いです。これらの問いに答えるには、細胞の挙動を単一細胞分解能でリアルタイムかつ分化や移動に関連する時間スケールで捉える実験的アプローチが必要です。
腸オルガノイドは、単一の幹細胞や組織断片から成長した三次元(3D)自己組織化構造であり、上皮構造、自己組織化、細胞型多様性の重要な側面を再確認します 4,5,6。オルガノイドはその開発以来、腸の生物学、疾患モデル、薬物反応の研究に欠かせないツールとなっています。マウスおよびヒト腸オルガノイドは、クラスター規則的間隔短回文反復(CRISPR)ベースの手法を用いた遺伝子改変で培養中長期維持可能であり、異なる遺伝子型やレポーター背景を持つ解離単細胞を混合してモザイク構造に結合し、基底膜抽出物7,8,9.モザイクオルガノイドは、異なる遺伝的または蛍光背景を持つ細胞を単一の構造内に組み合わせ、集団が同一のニッチシグナルと機械的文脈を経験し、内蔵された内部制御と比較することができます。この遺伝的扱い性により、特定の細胞集団6,10,11,12の正確な標識が必要なライブ画像研究に特に適しています。細胞型特異的な運命マーカーのように断続的に標識するリポーターは、単離された蛍光細胞を生成し、単一細胞追跡法で追跡・解析が可能です。しかし、細胞接合部や皮質ミオシンIIのような膜局在性および細胞骨格系タンパク質が上皮全体に均一に標識されると、持続的な課題が生じます。これらのシグナルは、共焦点顕微鏡の解像度で隣接する細胞同士が境界を共有しているため、個々の細胞に割り当てることはできません。モザイクオルガノイドはこの制約を克服します。蛍光リポーターを発現する細胞が標識されていない隣接細胞に囲まれている場合、その膜および細胞骨格の信号は明確にその単一の細胞に帰属し、移動、分裂、または押し出時に細胞骨格がどのように再構築されるかを明らかにします9,13。ラベリング比率を調整するとこの見方が逆転し、ラベルなしセル周辺の近傍応答を捉えられます。H2B-mCherryやH2B-iRFPのようなヒストンH2B核レポーターは、モザイクパターンを特定し、解析のための有益な細胞コンステレーションを特定するためのツールとして機能します。単一細胞分解能を超えて、モザイクオルガノイドは遺伝子型間の直接的な適応度比較も可能にします。両集団は同じニッチを共有しているため、細胞寿命や押出速度の違いが競合適応度の内部制御された読み取り結果を提供します9,14,15。
しかし、オルガノイドのライブセルイメージングには特有の技術的課題があります。3D形状は光学切断のために共焦点またはライトシート顕微鏡(16、17、18、19)を必要とします。分化や移動などの遅い過程を捉えるには、レーザー出力、露光時間、撮影間隔の最適化を慎重に調整し、光毒性を抑えるために24時間以上の撮影時間が必要です16,18。埋め込みマトリックスと培養培地は、顕微鏡光学系との互換性を保ちつつオルガノイドの健康を支えなければなりません。さらに、密集した3Dタイムラプスデータセットから定量的な単一セル情報を抽出するには、数百の時間点にまたがるセルを検出・リンクさせる専用の計算ツールが必要です。共焦点顕微鏡やライトシート顕微鏡以外にも、多光子顕微鏡や蛍光生涯イメージング顕微鏡(FLIM)は光毒性の低減やラベルフリー代謝表示などの追加機能を提供します(20,21)が、共焦点顕微鏡は蛍光標識オルガノイドの多色ライブイメージングにおいて最も広くアクセス可能で多用途なプラットフォームであり続けています。
オルガノイド内の細胞追跡には、手動注釈から半自動および完全自動化の深層学習ベースのパイプラインまで、いくつかの手法が開発されています。オルガノイドトラッカーは、ニューラルネットワークを用いて3次元共焦点スタック内の核を検出し、検出を時間点を超えてリンクして細胞軌道や系統樹を再構築する半自動化ソフトウェアツールです(3,23)。これは腸内オルガノイド内で数百個の細胞を数日間追跡することが実証されており、細胞分裂、移動、分化、押し出イベントを定量化するための柔軟な枠組みを提供します。マルチチャネルイメージングに対応しているため、スペクトル的に異なる核レポーターを持つモザイクオルガノイドと、細胞型特異的な運命マーカーを発現するオルガノイドの両方に直接適合しています。
本プロトコルでは、ヒトおよびマウスの腸オルガノイドにおける2つの補完的なリポーター戦略と共焦点のライブセルイメージングと単一細胞追跡を統合したモジュール式ワークフローを説明しています。最初の戦略は、異なるH2B核レポーターを持つ2つの細胞集団(H2B-mCherryとH2B-iRFP)を一定比率で混合して生成されたモザイクマウスオルガノイドを使用します(図1A)。さらに、Myosin-II-mNeonGreenのような共発現的な関心報告体も持っており、その膜局在シグナルは、2つ目の核ラベルのみを持つ隣接細胞に囲まれている場合、個々の細胞に明確に帰因します。これにより、単一細胞が移動、分裂、または組織内で細胞骨格をどのように再構築するかを直接観察することが可能になります。2つ目の戦略は、ヒトの腸オルガノイドにおける細胞型特異的運命報告装置を用い、ムシン2(MUC2)を用いてゴブレット細胞を標識し、デフェンシンアルファ5(DEFA5)を用いてパネス細胞を標識し、分泌細胞型遷移のリアルタイム監視を可能にします(図1B)。これら2つのシステムは、レポーター戦略を単に切り替えるだけで、共有画像および追跡パイプラインを多様な生物学的問題に適応させる方法を示しています(図1C,D)。以下のセクションでは、オルガノイド培養からモザイク生成、画像取得、定量的単細胞解析まで、このワークフローを実装するために必要なすべてのステップが紹介されます。
プロトコル
動物を対象としたすべての実験は、オランダ政府の動物実験中央委員会(CCD)およびKNAW/フブレヒト研究所動物福祉機関(IvD)が承認した機関的ガイドラインに従って実施されました。ヒト腸オルガノイドは、ユトレヒト大学医療センター(UMCU)で患者の同意のもとで入手した患者組織から生成されました。この調査はUMCU倫理委員会(オランダ・ユトレヒト)によって承認され、ヘルシンキ宣言およびオランダ法に従って実施されました。
1. オルガノイド培養と維持
- マウス腸オルガノイド用の表皮成長因子、NogginおよびR-スポンディン(ENR)成長培地を準備します(表1)。
- ヒト腸オルガノイド用に膨張培地(表2)、パターン培養地(表3)、成熟培地(表4)を準備します。
- 使用前に、成長因子還元基底膜抽出液(BME)のバイアルを氷で一晩解凍してください。
- BMEは早期ゲル化を防ぐために常に氷で保管してください。
- BMEに埋め込まれたENR培地でマウス腸オルガノイドを培養し、7日ごとに1:4から1:8の分割比率で機械的解離を用いる4。
- BMEに埋め込まれた膨張培地でヒト腸オルガノイドを培養し、7〜10日ごとに排出します。
注:単細胞解離後のマウスオルガノイドの増殖または回復のために、ENR培地でWnt調整培地(10 mMニコチンアミドおよび10 μM Y-27632ジヒドロクロライドを補足)で最初の2〜3日間培養し、オルガノイドの成長と生存を促進します。 - ヒト腸オルガノイドの分化を誘導するために、パターニング培地で14日間、その後成熟培地で7〜10日間を順次培養します。
注:オルガノイドの確立および培養に関する詳細なプロトコルについては、鼠の腸内オルガノイドについてはSatoら4、ヒト腸内オルガノイドについてはSatoら5、Heら6を参照してください。
2. 遺伝子転換型腸オルガノイドの生成
- 電解オーガノイドの通過は、マウスオルガノイドは電気穿孔の3日前、ヒトオルガノイドは5〜7日前に、電解開術の3日前に行われます。各電気孔反応には、24ウェルプレートの4〜8ウェル(約200〜400μLのオルガノイド含有BME、約500〜1,000個のオルガノイド)からオルガノイドを使用します。組換えトリプシン様解離試薬を用いてオルガノイドを単一細胞に解離し、37°Cで5〜10分間処理します。
- トランスポゾンベースの発現構造物(p2T-H2B-mCherry-IRES-BlastRまたはp2T-H2B-iRFP-IRES-PuroR;各5μg)とトランスポザーゼベクター(p2T-CAG-mT2TP;5 μg)を、確立されたプロトコル24に基づく電気孔システムで解離細胞に共エレクトロポレーションして核レポーターオルガノイドラインを生成します。
注:ステップ2.2で指定されたプラスミドDNAの量(1つの構成体あたり5μg)は、1回の電気穿孔反応で約500〜1,000個のオルガノイドに対して最適化されています。電気穿孔中は、電気穿孔器で測定されるインピーダンスが25〜55 Ω以内に収まるか確認してください。インピーピードが25 Ω未満の場合は、過剰なセル密度やバッファー導電性の問題を示します。インピーダンスが55 Ωを超えると、細胞数が不足または細胞の生存率が低いことを示します。インピーダンスがこの範囲を超えた場合はセル濃度を調整するか、電気孔隙バッファーを交換してください。 - 電気穿孔後、Wnt調整培地で培養細胞を10μM Y-27632ジヒドロ塩酸塩を補足して3日間、細胞回復とオルガノイド再形成を支援します。
- 過剰発現構成要素(H2B-iRFPラインにはプロマイシン(2 μg/mL)、H2B-mCherryラインにはブラストシジン(10 μg/mL))を用いて、選択圧の前に十分な回復を促すため、過剰発現構造物の抗生物質選択を開始します。
- 2週間連続選択を続けてください。
- 適切なフィルターセットを用いて、蛍光蛍光装置を備えた立体顕微鏡の下で蛍光オルガノイドクローンを採取します。
- 選択されたクローンを組換えトリプシン様解離試薬を用いて単一細胞に解離し、Wnt調整培地で2週間増殖した後、ENR培地に移行します。
- 蛍光信号の均一な核局在と通路間の安定した発現を確認し、リポーターラインを検証します。
- リポーター導入がオルガノイドの成長速度、形態、または分化能力を変化させないことを確認するために、標識されていない親系統と比較して確認します。
- 膜局在または細胞骨格タンパク質の読み取りを可能にするために、H2B核レポーターと同じオルガノイド線上に関心のある蛍光リポーター(例:mNeonGreenでタグ付けしたミオシンII)を共発現させます。
注:確立されたH2Bレポーターオルガノイドラインは拡張および低温保存が可能です。これらの線は下流のモザイク実験の汎用的なベースラインとして機能します。追加のレポーターや遺伝子変異を同じH2B標識背景に導入することで、セクション4で説明したモザイクワークフローと互換性のある線ライブラリを生成できます。
3. 内因性運命報告者ヒト腸オルガノイドの生成
- Artegianiら7に記載されたCRISPRメディズム相同非依存標的統合(CRISPR-HOT)を用いて、ヒト腸オルガノイドにおけるMUC2蛍光ノックインレポーターを生成する
- Heら6に記載されたように、ヒト腸オルガノイドにおけるホモロジー指向修復(HDR)によりDEFA5蛍光ノックインレポーターを生成する。
注:CRISPR-HOT(ステップ3.1)およびHDR(ステップ3.2)は内因性ノックインレポーターを生成します。 - MUC2およびDEFA5の蛍光シグナルと抗体染色の共局在を確認し、両方のレポーター発現を検証します。
- リポーター導入がオルガノイドの成長、形態、または分化能力に影響を与えないことを確認しましょう。
注:CRISPR-HOTアプローチは運命マーカーを超えて広く適用可能であり、ヒトおよびマウスオルガノイドにおいて、ミオシンII、E-カデリン、ZO-1などの膜局在性および細胞骨格タンパク質の内因性蛍光リポーターを生成するために使用できます。
4. モザイクオルガノイドの生成
- モザイクオルガノイド生成の3日前に、両方のオルガノイド系統をWnt調整培地に導入し、幹細胞の増殖を促進し、解離中の細胞生存率を最大化します。
- モザイク生成当日には、48ウェルプレートの各ウェルに5% BMEを20μLのDMEMでコーティングし、細胞付着用の薄い接着層を提供します。37°Cで1時間孵化します。
- 氷冷のベース培地を加えてBMEを溶解し、各ラインからオルガノイドを300 × gで遠心分離し、4°Cで5分間採取します。 オルガノイドを単一細胞に分離させるために、酵素細胞剥離液で37°Cの水浴で5〜7分間培養します。 P1000ピペットを使ってサスペンションを繰り返しピペットし、機械的解離を助けます。明視野顕微鏡で解離を監視し、主に単一細胞または2〜10個の細胞の小さなオルガノイド断片が見える場合は、過剰な氷冷のベース培地を加えて反応を止めます。
- 細胞を300 × gで遠心分離し、4°Cで5分間投与します。オプション:各細胞懸濁液を40μmの細胞ストレーナーでろ過し、残留した塊、細胞残渣、BMEゲル断片を除去します。
注:これにより細胞の懸濁液が清潔になり、モザイク均質性が向上し、あらかじめ形成された細胞クラスターから発生する大きなクローナルパッチのリスクが低減されます。細胞群間の境界を大きくするには、ろ過は推奨されません。 - トリパンブルー排除を用いて細胞生存率を評価し、生存可能な細胞をカウントします。2つの細胞集団を所望の比率(例:1:1、1:3、または1:9)で組み合わせ、合計30万個の細胞を500μLのWnt調整培地に10μMのY-27632ジヒドロクロライドを添加します。優しくピペットで混ぜてよく混ぜます。
注:混合比率によって分析の種類が決まります。低いレポーター対標識未標識細胞の比率(例:1:9)は標識のない隣接細胞の間から個別の標識細胞を分離し、膜および細胞骨格のシグナルを単一細胞に明確に帰属させることを可能にします。レポーターセルの割合が高い(例:9:1)はこの見解を逆転させ、標識のないセル周辺の近傍応答を捉えることができます。 - セル懸濁液を被覆された48ウェルプレートに種付けします。200×gで遠心分離し、室温で5分間培養し、37°Cで培養します。
- 24時間後、P200ピペットの先端でこそげ、氷冷のベース培地またはセルスクレーパーで十分にフラッシュして、機械的に細胞層を剥離します。分離した骨材は、追加の機械的せん断なしに300× gの遠心分離で4°Cで3分間回収します。BME内の集合体を再懸濁し、イメージング対応のサンプルキャリアにプレート化します。ENR媒体での培養。
注:BMEを使わない2次元集約ステップは、2つの細胞群の塩胡椒分布を持つよく混合されたモザイクオルガノイドを生成するために重要です。 - ヒトモザイクオルガノイドについては、Wnt調整培地とENRをヒトエクスパンション培地に置き換えます(表2参照)。その他のステップは変更されていません。
5. 共焦点生細胞イメージングのためのサンプル準備
- 高開口(NA)共焦点対物レンズとの光学的互換性を確保するために、ガラス底イメージングチャンバー(例:24ウェルガラス底板、高性能#1.5ホウケイ酸塩カバースリップ)を使用してください。
- オルガノイドBME懸濁液をガラス底の中央付近に薄いドーム状(≤0000 μL)としてメッキします。37°Cに移す前に、4°Cで5〜10分間培養し、重力によってオルガノイドがガラス底に沈むのを待ってからBMEゲル化を行います。
注:これによりオルガノイドとカバースリップの間の作業距離が短縮され、逆立型顕微鏡での画像品質が最大化されます。 - 37°Cに移し、BMEを20〜30分間固めます。次に、24ウェルごとに500μLの予温培養培地を加えます。オルガノイドは、メッティング後少なくとも24時間は回復し形態を確立させてから、ライブイメージングを開始してください。
- 長期撮影中の蒸発を最小限に抑えるために、加湿されたステージトップのインキュベーションチャンバーを使用します。試料を顕微鏡ステージの1〜2時間前に置き、熱平衡を促し、取得時のZドリフトを最小限に抑えます。
- ステージトップインキュベーターが画像撮影中、37°C、CO₂5%を維持していることを確認しましょう。
- ガラス底に近い(カバースリップから≤50μm)に位置し、健康な形態を持つオルガノイドを選びます。マウスオルガノイドは明確なcrypt-出芽構造、ヒトオルガノイドは嚢胞性・出芽構造。BMEの深部に位置するオルガノイドは避けてください。信号品質や追跡精度は画像深さに大きく劣化するためです。
注:BMEおよび培養培地におけるフェノール赤の存在は、本プロトコルで使用される蛍光報告剤(H2B-mCherry、H2B-iRFP、MUC2-mNeonGreen、DEFA5-dsRed)が十分な信号対雑音比を生み出し、信頼性の高い核検出および単一細胞追跡を可能にするため、有意な自己蛍光やイメージングアーティファクトを引き起こしません。しかし、弱いレポーターや追加の蛍光チャネルを用いた実験では、フェノールレッドフリーのBMEや培地に切り替えることが有益かもしれません。
6. 共焦点画像取得
- ステージトップインキュベーター(37°C、5% CO₂)、モーター駆動のZドライブ、使用中の蛍光体に適したレーザーラインを備えたレーザー走査共焦点顕微鏡を使用します。
- 実験要件に基づいて目標を選択します。作業距離0.62mmの40×/1.10NAの水浸式対物レンズを使って、BMEの奥深くに画像を撮ることができます。マルチオルガノイドや大視野の取得には、20×/0.75 NAの空気対物レンズを使用し、作業距離0.62mmを選択。
注:NAを高めると光の収集、解像度、光学的断片が向上するため、40×/1.10の水浸式対物レンズはBMEの奥深くの細かいディテールを分解し、高倍率では視野を1つまたは数個のオルガノイドに限定します。20×/0.75の空気対物レンズは光の収集量が少なく断面も狭いですが、広い視野で多くのオルガノイドを一度に捉えることができ、集団規模や多位置イメージングに適しています。 - 採取開始前に、試料と浸漬培地を顕微鏡ステージ上で少なくとも1〜2時間熱平衡させてください(ステップ5.8)。
- 最初の数ポイントで全位置のフォーカスを確認し、ドリフトが蓄積する前に手動で修正してください。
注:長期的な共焦点取得ではピントの喪失や像のずれがよく見られる課題であり、積極的に管理する必要があります。水浸け物レンズでは、水そのものではなく、水に合わせた屈折率(n = 1.333)の浸漬油を使い、蒸発を排除しつつ水浸しの光学特性を維持します。 - 各蛍光色素の励起および放出設定を設定してください。交差ブリードを最小限に抑えるために、蛍光チャネルを同時にではなく順次取得し、同時に1本のレーザーラインだけが活性化するようにしましょう。双方向逐次走査を用いて、チャネル分離を維持しつつ、各時間点あたりの総取得時間を短縮します。
注意:残留交差出血を定量化し、必要に応じてスペクトルアンミクシング補正を行うために、1つのリポーターのみを発現する単色制御オルガノイドを含めてください。 - 二色マウスモザイクオルガノイドの場合、H2B-mCherryには561 nm励起、H2B-iRFP670には638 nmの励起を適切な発光フィルターで用い、スペクトル漏れを最小限に抑えます。ヒト腸オルガノイドでは、MUC2-mNeonGreenに対して488 nm励起、DEFA5-dsRedに対して561 nmの励起を用います。
注:Hoechst 33342のような生きた核染料や極赤色蛍光DNA染料は、検出パイプラインが特定の蛍光色素ではなく核信号に基づいて動作するため、遺伝的な核マーカーの代わりに使われます。DNA結合染料は繰り返し照射すると光毒性や抗増殖性を持つことがあり、特に約400nmの励起を持つHoechstは濃度を低く保ち、長時間のライブイメージングには光毒性の低い極赤色染料を好むことに注意してください。 - Zスタックを25〜35の光学セクションで2μm間隔で設定します。マウス腸オルガノイドは5〜10分、ヒトオルガノイドは15〜30分の時間間隔を設定します。
注:オルガノイドトラッカーを用いた信頼性の高い核検出のために、以下の設定を出発点として推奨します:40倍水対物レンズ、スキャン速度600Hz、ズーム係数0.75×、ピクセルサイズはXYで0.38μmとなります。これらの設定により、個々の核を分解するのに十分な空間サンプリングが可能であり、zスタックあたりの取得時間を多位置長期イメージングに適した許容範囲内に保ちます。 - レーザー出力はできるだけ低く抑えつつ、核がはっきり分かるまで増やし続けてください。マルチポジションのタイムラプス取得を開始してください。ステージ移動やオートフォーカスの調整に対応するため、すべてのポジションのタイムポイントあたりの総取得時間を設定時間区間の90%を超えないようにしてください。生物学的な質問によりますが、12〜72時間の画像。
注意:長期のOrganoidTrackerランを始める前に、単一のZスタックを入手し、同定をテストしてください。見逃したり誤検知が少ない信頼性の高い同定は、設定が適切であることを裏付けます。そうでなければ、進行前にレーザー出力、検出器利得、またはZステップを調整してください。MUC2陽性のゴブレット細胞やDEFA5陽性のパネス細胞の出現などの分化イベントを捉えるには、通常48〜72時間かかります。細胞の押し出のような短期的な動態は12〜24時間以内に捉えられます。光毒性は長期イメージングにおける主要な制限要因です。兆候としては、細胞分裂の遅延、アポトーシス、核凝縮、オルガノイドの崩壊などがあります(図2)。内部参照としてイメージングされていない制御オルガノイドを含めることが推奨されます。観測された場合はレーザー出力を下げるか、時間間隔を延長してください。
7. OrganoidTrackerのような半自動オルガノイド細胞追跡ソフトウェアツールを用いた単一細胞追跡および系統再構築
- https://github.com/jvzonlab/OrganoidTracker の指示に従ってOrganoidTrackerをインストールしてください。
注意:このソフトウェアはPython 3.8以降のnumpy、scipy、matplotlib、tensorflowを必要とします。 - タイムラプスデータセットをOrganoidTrackerに読み込みます。受け入れられるファイル形式には、TIFFスタック、ND2、LIFが含まれます。ニューラルネットワークベースの核検出を核チャネル(マウスオルガノイドの場合はH2B-mCherryまたはH2B-iRFP)で実行します。
注:ソフトウェアに付属する事前学習モデルはH2B標識された腸オルガノイド核に最適化されており、MUC2-mNeonGreenやDEFA5-ds赤陽性細胞の自動識別に直接適用することはできません。 - 偽陽性(破片、自己蛍光物質、または二重数えられた有糸分裂指標の検出)、偽陰性(高密度領域やオルガノイド周辺部の核の見逃し)、および同一性スイッチ(2つの細胞が近接して通過した際の誤った細胞同一性割り当て)に焦点を当てて、手動で検出を修正します。
- リンクアルゴリズムを実行して、検出を時間点間で結びつけ、セルの軌跡を再構築します。リンクを手動で確認し、特に細胞分裂イベント(1つのトラックが2つの娘トラックに分裂)や細胞の押し出イベント(細胞が上皮を離れる際の終了トラック)に注目してください。
注:モザイクオルガノイドの場合、一次核チャネルで検出・追跡を行い、追跡した各細胞を2つの核チャネル間の蛍光強度比に基づいて集団AまたはBに分類してください。 - ソフトウェアの「手動追跡」オプションを使ってヒューマンフェイトレポーターのオルガノイドを追跡してください。手動トラッキング中に挿入された細胞中心位置周辺の定義されたROI内の平均信号強度を測定することで、リポーター蛍光を定量化します。記者の熱意が定められた閾値を超える時点が、運命へのコミットメントを示します。MUC2-mNeonGreen信号の開始はゴブレットセルコミットメントを定義し、DEFA5-dsRed信号の開始はパネスセルコミットメントを定義します。
- ソフトウェアの増分保存機能を使って定期的に追跡プロジェクトを保存し、修正プロセスを一時停止・再開できます。追跡データ(セル位置、系譜木、セル分類を含む)をエクスポートし、PythonやRで解析します。
8. 細胞運命遷移と単一細胞挙動の定量化
- 細胞型遷移を定量化するために、追跡中のリポーターチャネル強度に基づいて、各DEFA5-dsRed陰性細胞が初めてDEFA5-dsRed陽性(Paneth細胞コミットメント)になる時刻を特定します。追跡された各細胞について、MUC2-mNeonGreenおよびDEFA5-dsRedチャネルの蛍光強度を時間経過とともに抽出し、両リポーター間の時間的関係を監視します。個々の細胞ごとに二重チャネル強度のトレースをプロットし、相関したリポーターの動態を特定します。
注:個々の追跡細胞で両方のチャネルを同時にモニタリングすることは、ゴブレット細胞のコミットメント(持続的なMUC2-mNeonGreen活性化)とパネス細胞のコミットメント(一時的なMUC2-mNeonGreen活性化後にDEFA5-dsRedの開始)を区別するために不可欠です。単一チャネル解析だけではこの動態を捉えきれず、初期のパネス細胞前駆体がゴブレット細胞として誤分類される可能性があります。 - モザイクオルガノイドでは、追跡された各細胞ごとに細胞寿命(最後の分裂から押出または画像終了までの時間)、分裂速度、移動速度などの行動指標を抽出します。関心のある共発現報告者がいる場合は、分裂、移動、押し出など特定のイベントにおける動的変化を捉えるために、その蛍光強度を時間経過で定量化します。ラベル付きセルの挙動を直近の無ラベルセルと比較することで、これらの測定値をセルの局所的な近傍コンテキストに関連付けます。
注:2つの遺伝子型が同じオルガノイド内で混在する場合、これらの指標のいずれかに系統的な違いがあれば、一方の遺伝子型が他方より競争適応度優位であることを示す可能性があります。 - 適切な検定を用いて統計解析を行う。運命のコミットメントのタイミングや、寿命、移動速度、分裂率などの細胞ごとの指標を比較するには、マン・ホイットニーU検定を用いてください。報告者の強度動態を時間経過で比較するには、同じセル内での繰り返し測定を考慮した線形混合効果モデルを用いてください。
注:すべての量化は手動で補正された追跡データに基づいて行う必要があります。修正されていない、または部分的に修正されたデータセットは、運命のコミットメントのタイミング、空間割り当て、行動指標計算に体系的な誤りをもたらします。定量化に進む前に、手動修正のための十分な時間を予算化してください(第7節参照)。
結果
第4節で説明されたプロトコルに従い、H2B-mCherryおよびH2B-iRFP標識細胞を含むモザイクオルガノイドは、シードから48時間以内に形成されます。成功したモザイク形成は、使用された解離の度合いに応じて、塩胡椒分布または両集団間の明確な境界が特徴です。塩胡椒分布とは、2つの集団がランダムに単一細胞で混ざり合い、各集団の細胞が単一細胞レベルで散在し、大きなクローンドメインが存在しない状態を指します。対照的に、定義された境界は同じオルガノイド内の各細胞集団の一貫したパッチをもたらします。細胞分散の程度は解離段階の時間とピペッティングの力によって制御されます。徹底した単細胞解離は塩胡椒模様を生み出し、穏やかな断片化では小さなクローナルクラスターが保存されます(図3A)。
モザイク標識により、均一標識組織では解明できない過程を単細胞解析することが可能になります。関心のあるレポーター(例:蛍光ミオシンIIリポーター)を共発現する個々の細胞が標識されていない隣接細胞に囲まれている場合、移動、分裂、または押し出時の細胞骨格動態は明確にその細胞に帰属します(図3B)。核H2Bレポーターはモザイク内の有益な細胞コンステレーションの同定を容易にし、寿命、分裂速度、リポーター強度の動態などの細胞ごとの測定値も追跡データから抽出できます(図3C)。2つの遺伝子型が混合されている場合、これらの細胞ごとの指標を集団間で比較し、競争適応度の違いを評価できます。
MUC2-mNeonGreenおよびDEFA5-dsRedの運命報告者を持つヒト腸オルガノイドでは、分泌細胞の運命コミットメントは日々で徐々に増加するリポーター蛍光として明らかです。成熟培地で培養したオルガノイドは7日目にガラス底板に移され、共焦点生細胞顕微鏡で画像化されました(図4A)。タイムラプス画像は、2つの異なるレポーター動態を明らかにします。すなわち、ゴブレット細胞は画像期間中ずっと高いMUC2-mNeonGreen発現を活性化・維持するのに対し、パネス細胞は初期のMUC2-mNeonGreen活性化の後に進行的なシグナル低下、さらにDEFA5-dsRed活性化 6を示します(図4A)。単一細胞定量により、個々の細胞レベルでのこの連続的な遷移が確認されており(図4B)、パネス細胞のコミットメントは標識されていない前駆細胞からの直接ではなく、一時的なMUC2発現中間状態を通じて進行していることを示唆しています。複数の追跡細胞間の平均強度曲線は、このパターンが集団レベルで一貫していることを確認しており、Paneth細胞の前駆体はMUC2-mNeonGreenとDEFA5-dsRed信号の間に特徴的な逆関係を示します(図4C)。これらのデータは、デュアルレポーターシステムが単一細胞分解能で異なる分泌運命の軌跡を解明できることを示しています。
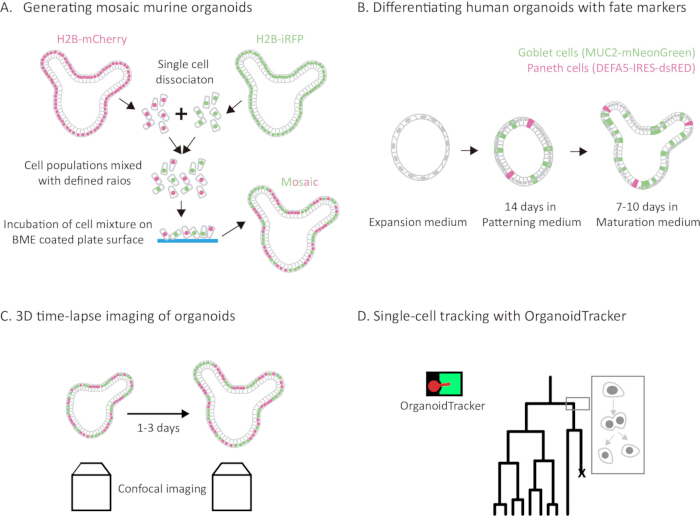
図1:ヒトおよびマウスの腸オルガノイドにおける共焦点生細胞イメージングと単細胞追跡を統合し、2つの補完的なレポーター戦略を統合したワークフロー。(A) モザイクオルガノイド生成ワークフローの概観。H2B-mCherry(マゼンタ)またはH2B-iRFP(緑色)を発現するマウス腸オルガノイドは単一細胞に解離され、定められた比率で混合され、BME被覆プレートにシードされて24時間の集合体形成を行い、その後再びBMEに埋め込まれます。(B) ヒト腸オルガノイド分化の概観。MUC2-mNeonGreen(ゴブレット細胞、緑色)およびDEFA5-dsRed(パネス細胞、マゼンタ色)の内因性ノックインレポーターを発現するヒトオルガノイドは、2段階プロトコルを用いて分化します。オルガノイドはまずパター培養培地で14日間培養され、その後成熟培地で7〜10日間培養されます。分化過程で、オルガノイドは嚢胞状の球状形態から広範囲に発芽した構造へと移行し、MUC2-mNeonGreen陽性のゴブレット細胞やDEFA5-ds赤陽性のパネス細胞を含む主要な腸細胞タイプを抱えています。(C) マウスモザイクの3Dタイムラプス共焦点イメージングで核レポーターを発現する腸オルガノイド。(D) 半自動オルガノイド細胞追跡ソフトウェアツールを用いた単一細胞追跡および系統再構築。検出された核は時間点を超えて連結され、細胞の軌跡や系統樹を再構築することで、細胞分裂、移動、押し出イベントの定量化が可能になります。この図の拡大版はこちらをクリックしてご覧ください。
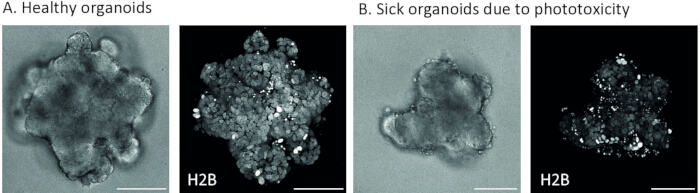
図2:ライブ共焦点イメージング中の健康なヒト腸オルガノイドと光毒性の比較。(A) 健康なヒト腸オルガノイドの代表的な明視野および蛍光画像。健康なオルガノイドは周囲培地に細胞残骸が見られず、透明な嚢胞性または出芽形態を示します。(B) 光毒性損傷を示すヒト腸オルガノイドの代表的な明視野および蛍光画像。光毒性の兆候には、周囲培地に細胞残骸が蓄積すること、核縮合、細胞分裂の停止などがあります。H2B-mCherry蛍光画像は最大強度投影として表示されます。スケールバー、100μm。この図の拡大版はこちらをクリックしてください。
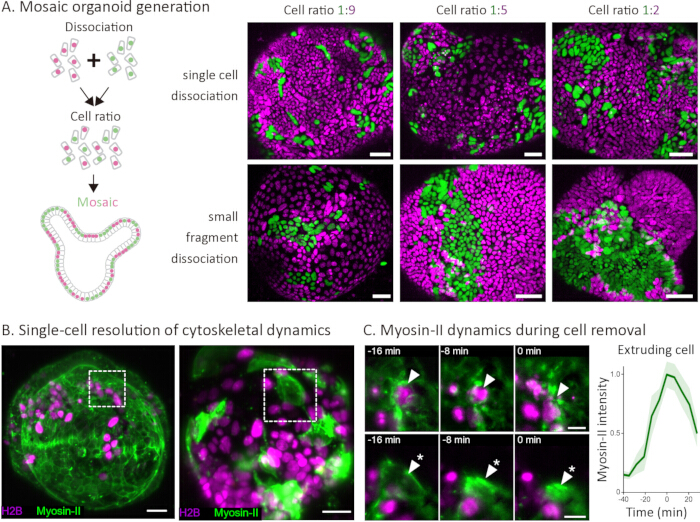
図3:マウス腸オルガノイドにおけるモザイクオルガノイド生成および細胞骨格動態の単一細胞分解能。 (A) 離離、定められた比率での混合、再集積によるモザイクオルガノイド生成の概説。モザイクオルガノイドの代表的な共焦点画像は、細胞比1:9、1:5、1:2で生成されました(H2B-mCherry、緑色;H2B-iRFP、マゼンタ)を用いて単細胞解離(上段)または小断片解離(下段)。単細胞解離は塩胡椒混合パターンを生み出し、小断片解離はより大きなクローナルパッチをもたらします。スケールバー、50μm(B) モザイクオルガノイドの共焦点画像。ここでは、密集した集団(左)またはまばらな集団がMyosin-II-mNeonGreen(緑色)を発現し、他の集団はH2B-iRFP(マゼンタ)のみを発現します。破線のボックスは(C)で拡大された領域を示します。スケールバー、20μm(C)のタイムラプスシリーズで、細胞が8分間隔で押し出され、細胞除去の瞬間(t = 0分)に合わせられています。上段(矢印):ミオシンII-mNeonGreen発現の隣接細胞に囲まれた標識のない細胞の押し出し、近傍応答が明らかになります。下段(アスタリスク):標識のない隣接細胞に囲まれた個々のミオシンII-mNeonGreen発現細胞の突出により、皮質ミオシンの動態を突出細胞に明確に帰属させる。スケールバー、10μm。右:細胞除去の瞬間(t = 0分)に合わせた、排出細胞の正規化されたミオシンII-mNeonグリーン蛍光強度。ミオシンIIは押出直前の数分間で段階的に蓄積し、除去時にピークに達します。陰で描かれた部分は標準偏差を示します。 この図の拡大版はこちらをクリックしてご覧ください。
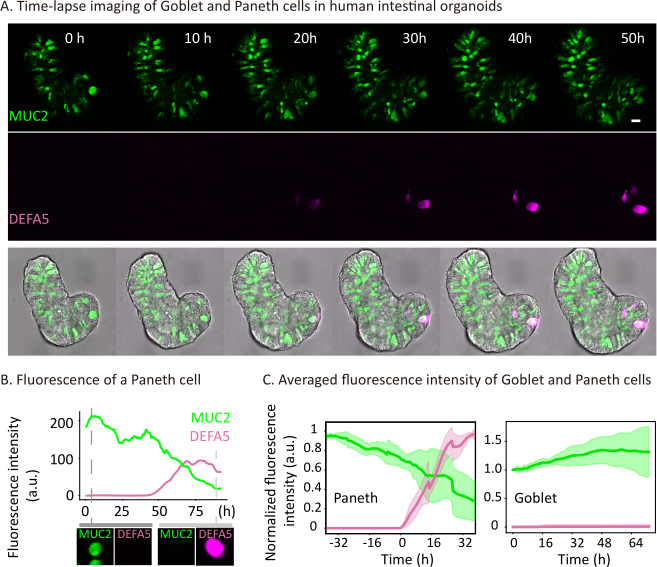
図4:MUC2-mNeonGreenおよびDEFA5-dsRedの運命報告者を用いたヒト腸オルガノイドにおける分泌細胞運命転移のリアルタイムモニタリング。 この図の拡大版はこちらをクリックしてください。
(A) 成熟培地で培養し、成熟7日目から撮影したヒト腸オルガノイドの代表的なタイムラプス共焦点画像。MUC2-mNeonGreen(緑色)はゴブレット細胞を示し、DEFA5-dsRed(マゼンタ色)はパネス細胞を示します。スケールバー、20μm(B) 代表的なパネス細胞におけるMUC2-mNeonGreen(緑)およびDEFA5-dsRed(マゼンタ)蛍光強度の単一細胞定量。初期のMUC2-mNeonGreen活性化の後、進行的なシグナル低下とその後のDEFA5-dsRedの発症が示されました。蛍光強度は任意の単位(a.u.)で示されます。(C) ゴブレット細胞(n = 7細胞)およびパネス細胞前駆体(n = 8細胞)の蛍光強度曲線の平均化。時間経過によるMUC2-mNeonGreen(緑)およびDEFA5-dsRed(マゼンタ)信号動態を示す6。パネス細胞の前駆体では、DEFA5-dsRed信号の最初の出現時刻(t = 0 h)に時間が割り当てられます。ゴブレット細胞は時間とともに一貫して高いMUC2-mNeonGreen強度を維持し、Paneth細胞の前駆体はMUC2-mNeonGreenとDEFA5-dsRed信号の間に特徴的な逆関係を示します。陰で描かれた部分は標準偏差を示します。
| 構成要素 | 家畜の集中度 | 最終集中 |
| アドバンスト・ダルベッコのモディファイドイーグル・ミディアム/F12(アドバンストDMEM/F12) | ベースメディア | |
| ヘペス | 1M | 10mM |
| グルタマックス | 200mM | 2mM |
| N2サプリメント | 100倍 | 1回 |
| B27サプリメント | 50倍 | 1回 |
| N-アセチルシステイン | 500mM | 1mM |
| ペニシリン/ストレプトマイシン | 10000U/ml、10000μg/ml | 100U/ml、100ug/ml |
| 組換えマウスEGF | 50ng/ml | |
| 組換えマウスノギン | 100ng/ml | |
| 組換えヒトR-スポンジン1 | 500ng/ml |
表1:マウス腸オルガノイドの培養培地。
| 構成要素 | 家畜の集中度 | 最終集中 |
| アドバンスト・ダルベッコのモディファイドイーグル・ミディアム/F12(アドバンストDMEM/F12) | ベースメディア | |
| ヘペス | 1M | 10mM |
| グルタマックス | 200mM | 2mM |
| B27サプリメント | 50倍 | 1回 |
| ペニシリン/ストレプトマイシン | 10000U/ml、10000μg/ml | 100U/ml、100ug/ml |
| プリモシン | 50mg/ml | 100ug/mlです |
| R-スポンディン調整培地(U-プロテインエクスプレス) | 2% | |
| ノギン調整培地(Uタンパク質エクスプレス) | 2% | |
| N-アセチルシステイン | 500mM | 1mM |
| ニコチナミド | 1M | 10mM |
| ヒト組換えEGF | 500ug/mlです | 50ng/ml |
| A83-01 | 5mM | 500nM |
| SB202190(p38阻害剤) | 30mM | 3uM |
| プロスタグランジンE2 | 10mM | 1uM |
| Wnt代理母 | 1000倍 |
表2:ヒト腸オルガノイドの膨張培地。
| 構成要素 | 家畜の集中度 | 最終集中 |
| アドバンスト・ダルベッコのモディファイドイーグル・ミディアム/F12(アドバンストDMEM/F12) | ベースメディア | |
| ヘペス | 1M | 10mM |
| グルタマックス | 200mM | 2mM |
| B27サプリメント | 50倍 | 1回 |
| ペニシリン/ストレプトマイシン | 10000U/ml、10000μg/ml | 100U/ml、100ug/ml |
| プリモシン | 50mg/ml | 100ug/mlです |
| R-スポンディン調整培地(U-プロテインエクスプレス) | 2% | |
| ノギン調整培地(Uタンパク質エクスプレス) | 2% | |
| N-アセチルシステイン | 500mM | 1mM |
| ヒト組換えEGF | 500ug/mlです | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Wnt代理母 | 1000倍 | |
| CHIR99021 | 3mM | 3uM |
| 組換えヒトIL-22 | 10 ug/ml | 2ng/ml |
表3:ヒト腸オルガノイドのパターニング培地。
| 構成要素 | 家畜の集中度 | 最終集中 |
| アドバンスト・ダルベッコのモディファイドイーグル・ミディアム/F12(アドバンストDMEM/F12) | ベースメディア | |
| ヘペス | 1M | 10mM |
| グルタマックス | 200mM | 2mM |
| B27サプリメント | 50倍 | 1回 |
| ペニシリン/ストレプトマイシン | 10000U/ml、10000U/ml | 100U/ml、100U/ml |
| プリモシン | 50mg/ml | 100ug/mlです |
| R-スポンディン調整培地(U-プロテインエクスプレス) | 2% | |
| ノギン調整培地(Uタンパク質エクスプレス) | 2% | |
| N-アセチルシステイン | 500mM | 1mM |
| ヒト組換えEGF | 500ug/mlです | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Wnt代理母 | 30000x | |
| 組換えヒトIL-22 | 10 ug/ml | 2ng/ml |
表4:ヒト腸オルガノイドの成熟培地。
ディスカッション
このプロトコルは、ヒトおよびマウスの腸内オルガノイドにおける生細胞共焦点イメージングおよび単細胞追跡のためのステップバイステップワークフローを提供します。これは、高密度な上皮内の個々の細胞挙動を解析するモザイクオルガノイドと、分泌細胞型遷移をリアルタイムで監視するMUC2-mNeonGreenおよびDEFA5-dsRedを発現する運命報告オルガノイドという2つの補完的な実験システムを基盤としています。
免疫蛍光や単細胞RNAシーケンスなどの固定時間点手法と比べて、ライブイメージングはスナップショットではなく遷移の動態を捉えます。クレに基づく系譜追跡と比べて、個々の運命決定を特定するための時間的な解像度を提供します。モザイクアプローチは、同じ組織文脈内で内部制御された比較を追加し、オルガノイド間変異の交関を回避します。
プロトコルのいくつかのステップは成功のために重要です。塩胡椒分布のモザイクでは、オルガノイドの単一細胞への解離は徹底的かつ穏やかでなければなりません。不完全解離は大きなクローナルパッチを生み出し、過度の解離は生存率を低下させます(セクション4.3)。BMEに再埋め込む前に平面上で24時間の集約ステップを行うことは、両集団の適切な混合に必要です。これを省略すると、モザイクの統合が不十分になります(第4.6–4.8節)。画像撮影中の光毒性管理には慎重な校正が必要であり、保守的なレーザー設定から始め、追跡ソフトウェアが過剰な偽陰性を出した場合のみ調整を進めます(6.8節)。
主な制約はオルガノイド系とライブイメージングの本質的な制約に関連しています。オルガノイドは細胞の挙動に影響を与えるストロマル、血管、免疫成分を欠いています。共焦点顕微鏡では、イメージング深度はカバースリップから約100μmに制限され、それを超えると光の散乱により信号品質や追跡精度が低下します。多光子顕微鏡やライトシート顕微鏡は、追加の機器やプロトコル適応の代償を伴い、この深さ範囲を大幅に拡張できます。半自動追跡方式は手動注釈より大幅に効率的ですが、特に高密度組織ではかなりの補正時間が必要です(セクション7.4)。
どちらの戦略も容易に拡張可能です。核マーカーと共発現するリポーターを変化させることで、皮質ミオシンIIによる機械的動力学から接合型E-カデリンによる癒着再構築、カルシウムバイオセンサー(tq-Ca-FLITSやColBD-Twitch)、SoNarのような代謝バイオセンサー(細胞NAD+/NADHの酸化還元状態)など、単細胞挙動のさまざまな側面を調べることができ、同じオルガノイド内で細胞の同一性、系統、生理状態を同時に読み取ることが可能になります。25、26、27。混合比率を調整することで解析が調整されます。標識細胞がまばらであれば膜信号の単一細胞帰属が可能であり、標識されていない細胞が稀であれば近傍応答が明らかになります。運命報告者の戦略は、CRISPR-HOTまたはHDRベースのタグ付けが可能な任意の内因性遺伝子座にも拡張可能です。両方のアプローチを同じオルガノイド内で組み合わせることで、系統のコミットメントと単一細胞の動態を同時に追跡することが可能になります。
より広くは、この画像診断および解析パイプラインは、胃、大腸、肝臓、膵臓など他の上皮組織由来のオルガノイドにも応用可能です。誘導多能性幹細胞(iPSC)由来オルガノイドは有望な拡張であり、H2Bベースの核標識や細胞混合によるモザイク生成が直接移転可能であり、このパイプラインにより患者特異的な細胞運命や競争動態の研究が可能になる可能性があります。ガストルロイドや幹細胞由来胚などの合成胚モデルも単一細胞トラッキングに適していますが、より複雑な形状と高い核密度のため、半自動オルガノイド細胞追跡ソフトウェアツールであるニューラルネットワークモデルの再学習とイメージングパラメータの適応が必要となる場合があります。脳オルガノイドはその大きさと光学密度のため、共焦点イメージングの深さを制限する追加の課題を抱えています。さらに、脳オルガノイドは意味のある画像診断実験を行うまでに数週間から数か月の分化が必要であり、腸内オルガノイドと比べて実験時間が大幅に長くなります。一部の脳オルガノイドプロトコルは、BME埋め込みではなく懸濁培養を利用しており、これはここで述べたサンプル調製方法とは互換性がなく、画像診断前にマトリックス埋め込みや表面付着形式への適応が必要です。光毒性を低減し、より深いイメージング深度を提供するライトシート顕微鏡は、これらのシステムにより適している可能性があります13。これらの拡張は、ここで述べた上皮オルガノイドを超えた多様な3Dモデルシステムにわたるパイプラインの広範な可能性を浮き彫りにしています。
開示事項
H.C.はオルガノイド技術に関連する特許の発明者です。他のすべての著者は競合する利害関係を一切表明していない。
謝辞
この研究はオランダ政府の教育・文化・科学省のNWO重力プロジェクト「物質駆動再生(024.003.013 ZWK MDR)」および欧州研究評議会の先進助成金「GutHormones(nr 101020405)」を通じて資金提供を受けています
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| A83-01 | Tocris | 2939 | |
| Accutase Cell Detachment Solution | Innovative Cell Technologies | AT104-500 | |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Invitrogen | 12634-010 | |
| B27 supplement | Thermo Fisher | 17504044 | |
| Blasticidin | InvivoGen | ant-bl-05 | |
| Cell strainer (40um) | Greiner Bio-one | 542140 | |
| CHIR99021 | Stemgent | 04-0004-base | |
| Confocal microscope | Leica | SP8 | 温度とCO2の気候制御付き |
| Cultrex Basement Membrane Extract (BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| Fiji | オープンソース | オープンソース https://imagej.net/software/fiji/ | |
| Glass bottom plates | CellVis | P24-1.5H-N | |
| Glutamax | Gibco | 35050-061 | |
| HEPES | Gibco | 15630-080 | |
| N2 supplement | Thermo Fisher | 17502048 | |
| N-acetylcysteine | Sigma-Aldrich | A9165 | |
| NEPA electroporation system | NEPAGENE | NEPA21 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| NucSpot Live | 遠赤色生細胞核染色 | ||
| Noggin conditioned medium (U-Protein Express) | IPA Therapeutics | N002 | |
| OrganoidTracker | オープンソース | オープンソース https://organoidtracker.org/ | |
| p2T-CAG-mT2TP | 自作 | プラスミド生成プロトコル DOI: 10.1126/science.adr8753 | |
| p2T-H2B-iRFP-IRES-PuroR | 自作 | プラスミド生成プロトコル DOI: 10.1126/science.adr8753 | |
| p2T-H2B-mCherry-IRES-BlastR | 自作 | プラスミド生成プロトコル DOI: 10.1126/science.adr8753 | |
| Penicillin/Streptomycin | Gibco | 11548876 | |
| Primocin | InvivoGen | ant-pm-05 | |
| Prostaglandin E2 | Tocris | 2296 | |
| puromycin | InvivoGen | ant-pr | |
| Recombinant human EGF | Peprotech | AF-100-15 | |
| Recombinant Human IL-22 | Peprotech | 200-22 | |
| Recombinant human R-spondin 1 | Thermo Fisher | 120-38-5UG | |
| Recombinant murine EGF | Thermo Fisher | 315-09-500UG | |
| Recombinant murine Noggin | Thermo Fisher | 250-38-100UG | |
| R-spondin conditioned medium (U-Protein Express) | IPA Therapeutics | R001 | |
| SiR-DNA | 遠赤色生細胞DNA染色 | ||
| SB202190 (p38 inhibitor) | Sigma-Aldrich | S7076 | |
| Suspension plate for organoid culture | Greiner | 665102 | |
| Trypan blue | Gibco | 15250061 | |
| TrypLE | Gibco | 12605-010 | |
| Wnt surrogate | U-Protein Express | カスタム注文 | |
| Wnt3A conditioned medium | 自作 | Wnt3A条件付培養液の生産は以下で見つけることができます: https://doi.org/10.1002/cpim.106 | |
| Y-27632 dihydrochloride | Abmole Bioscience | M1817 |
再版と許可
この記事は公開されました
動画は近日公開