本研究では、ラットおよび胃上皮細胞におけるクロピドグレル投与に伴う胃粘膜損傷を調査し、小胞体ストレスに関連する分子変化、アポトーシス、および全身性炎症との関連性を明らかにします。
研究記事
ラットにおける小胞体ストレスに関連したクロピドグレル誘発性胃粘膜傷害
* These authors contributed equally
この記事について
サマリー
要約
クロピドグレルは、動脈血栓性疾患の予防および治療のための抗血小板剤として広く使用されていますが、胃粘膜損傷を含む胃腸管への副作用により、その臨床応用が制限される可能性があります。上皮細胞の生存は胃粘膜の完全性を維持するために不可欠であるため、私たちはクロピドグレル誘発性の胃上皮損傷に、小胞体(ER)ストレスおよびアポトーシス関連マーカーの変化が伴うという仮説を立てました。この仮説を検証するため、ヒト胃上皮細胞株GES-1に異なる濃度のクロピドグレルを処置し、Cell Counting Kit-8 (CCK-8) アッセイ、フローサイトメトリー、定量リアルタイムPCR (qRT-PCR)、およびウェスタンブロッティングを用いて、細胞生存率、アポトーシス、細胞周期分布、および分子変化を評価しました。並行して、Sprague-Dawleyラットにクロピドグレルを経口投与し、in vivo 胃損傷モデルを作製しました。胃粘膜の病理学的変化をヘマトキシリン・エオジン染色により評価し、血清炎症性サイトカインレベルを酵素結合免疫吸着測定法 (ELISA) で測定しました。その結果、クロピドグレルはGES-1細胞の生存率を低下させ、アポトーシスを促進し、細胞周期の進行を変化させました。ラットでは、クロピドグレルにより胃粘膜のびらん、浮腫、および炎症細胞浸潤が誘発され、血清中のinterleukin (IL)-1β、IL-6、およびtumor necrosis factor-α (TNF-α) レベルの上昇が認められました。また、クロピドグレルは胃組織およびGES-1細胞の両方において、ERストレスマーカーであるC/EBP homologous protein (CHOP) およびactivating transcription factor 5 (ATF5) の発現を増加させ、Bcl-2-associated X protein (Bax) の発現を増加させ、B-cell lymphoma 2 (Bcl-2) の発現を減少させ、Bax/Bcl-2比を上昇させました。これらの知見は、本研究においてERストレスからミトコンドリアアポトーシスに至る直接的な因果経路は立証されなかったものの、クロピドグレル誘発性の胃粘膜損傷が、ERストレス関連マーカーの発現増加およびBax/Bcl-2バランスの崩壊に関連していることを示唆しています。
概要
上皮細胞、免疫細胞、およびシグナル分子から構成される胃粘膜の自然免疫および獲得免疫系は、相互に作用して粘膜の完全性を維持し、有害因子に対する重要な生理学的バリアとして機能している1,2。この保護機能は胃腸のホメオスタシスに不可欠であり、その破綻は胃炎を含む胃疾患の発症に寄与し得る3。臨床的に、薬剤誘発性の胃粘膜損傷は一般的な合併症であり、非ステロイド性抗炎症薬や抗血小板薬が最も頻繁な原因となっている4。胃粘膜の完全性は、細胞増殖とアポトーシスの動的なバランスに依存している5。薬剤を含む環境因子に慢性的に曝露されると、このバランスが崩れてアポトーシスが促進され、粘膜損傷が引き起こされる可能性がある6,7。小胞体は、細胞内ホメオスタシスの維持において中心的な役割を果たす。細胞ストレス条件下では、ミスフォールドまたはアンフォールドタンパク質の蓄積により、PERK/eIF2α/ATF4/CHOPシグナル伝達を含む小胞体ストレス応答(UPR)が活性化され、これがアポトーシスを促進し、B-cell lymphoma 2 (Bcl-2) ファミリータンパク質の発現を変化させる可能性がある8。ATF5もまた、ミトコンドリアストレス応答およびミトコンドリア機能不全と小胞体ストレスとのクロストークに関与している9。最近の臨床的エビデンスでは、クロピドグレルを含む抗血小板療法の継続が、進行性の胃および小腸粘膜損傷に関連していることが示されている10。
クロピドグレルは広く処方されている抗血小板薬であり、代謝的に活性化された後に血小板のP2Y12受容体に不可逆的に結合し、それによってアデノシン二リン酸介在性の血小板凝集を抑制し、抗血栓効果を発揮します11。このバイオアクティベーションは、主に肝臓のシトクロムP450酵素によって行われます。したがって、培養した胃上皮細胞にクロピドグレルの親化合物を直接曝露させても、in vivoにおけるクロピドグレル治療の完全な代謝および薬物動態的背景を再現することはできません。しかし、クロピドグレル治療が再発性胃潰瘍や胃腸出血に関連している可能性を示す根拠が増えており、抗血栓効果と胃腸の安全性のバランスを維持することの重要性が浮き彫りになっています12,13,14。これらの副作用は報告されていますが、クロピドグレルに関連する胃粘膜損傷の根底にあるメカニズムは十分に解明されておらず、標的を絞った予防および治療戦略の開発を制限しています。本研究では、Sprague–DawleyラットおよびGES-1細胞を用いて、クロピドグレルが胃粘膜に及ぼす影響を調査しました。ラットには経口ゾンデでクロピドグレルを投与し、相補的なin vitro実験をGES-1細胞を用いて実施しました。クロピドグレル誘発性の胃粘膜損傷が小胞体ストレスおよびアポトーシスに関連しているかどうかを調べるため、組織病理学的、分子生物学的、および細胞学的解析を行いました。したがって、本研究では因果関係のあるシグナル伝達経路の構築よりも、クロピドグレル誘発性胃損傷に関連する分子変化の特性評価に焦点を当てました。我々の知見は、クロピドグレル誘発性胃粘膜損傷に関連する分子変化についてさらなる洞察を提供し、これらの副作用の予防および管理を目的とした今後の研究に寄与する可能性があります。
プロトコル
すべての動物実験手順は、Dr. Can Biotechnology (Zhejiang) Co., Ltd.の動物実験倫理審査委員会によって審査および承認されました。本研究は、実験動物の飼育および使用に関する施設ガイドラインに従って実施されました。動物倫理承認番号はDRK-20251015210です。
動物および細胞株
倫理承認により、SPFグレードのSprague–Dawleyラット20匹の使用が認められた。本研究では、実験開始時に体重280–300 g、日齢6–8週のSPFグレードのSprague–Dawleyオスラット計12匹を用いた。ラットはHangzhou Ziyuan Laboratory Animal Technology Co., Ltd.(中国、杭州;製造ライセンスNo. SCXK [Zhejiang] 2024-0004)から購入し、対照群とクロピドグレル投与群に各6匹ずつランダムに割り当てた。ラットは、温度約22°C、12時間の明暗サイクルに制御された環境下で飼育し、標準飼料および滅菌飲料水を自由的に摂取させた。すべてのラットを実験前に1週間馴化させた。硫酸クロピドグレルを0.5%カルボキシメチルセルロースナトリウム(CMC-Na)に0.781 mg/mLの濃度で懸濁した。クロピドグレル投与群のラットには、硫酸クロピドグレルを10 mL/kg体重(体重100 gあたり1 mLに相当し、用量は7.81 mg/kg)の量で、3日間連続して1日1回経口投与した。対照群のラットには、同量の0.5% CMC-Naを投与した。投与量および3日間の投与期間は、既報のクロピドグレル経口投与によるラット短期モデルに基づいて選択した。3日目の最終投与後、水はad libitumで与えたが、飼料は12時間絶食させた。ラットを導入チャンバー内で酸素中の3%イソフルランにより麻酔し、その後ノーズコーンから1.5%–2.0%のイソフルランを投与して麻酔を維持した。角膜反射および足底逃避反射の消失により、十分な麻酔深度を確認した。深い麻酔下で心穿刺により採血を行った。深い麻酔状態を維持したまま、放血および両側開胸により安楽死させた。自発呼吸および心拍の停止が少なくとも5分間続き、かつ角膜反射および足底逃避反射が消失していることで死亡を確認した。その後、速やかに胃を摘出し、大弯に沿って切開し、氷冷生理食塩水で穏やかに洗浄した。
ヒト胃粘膜上皮細胞株GES-1は、iCell Bioscience Inc.(中国、上海;Cat. No. iCell-h062)より入手し、サプライヤーによるショートタンデムリピート(STR)解析によって認証された。細胞は、10%胎児牛血清(FBS)および1%ペニシリン・ストレプトマイシンを添加したRPMI-1640培地を用い、37°C、5% CO₂の加湿インキュベーター内で培養した。実験には継代数3から10の早期継代細胞を用いた。細胞密度が約80%~90%に達した時点で、1:3の分割比で継代した。その後の実験には、対数増殖期の細胞を用いた。CCK-8アッセイでは、細胞を96ウェルプレートに6 × 10³ cells/wellで播種した。アポトーシスおよび細胞周期解析では、細胞を6ウェルプレートに約5 × 105 cells/wellで播種し、クロピドグレル処理前に細胞を接着させた。
試薬および溶液
動物および細胞実験には、クロピドグレル硫酸塩(Cat. No. C874834; 純度 ≥ 99%)を使用した。クロピドグレルのストック溶液は、100 mg のクロピドグレル粉末をジメチルスルホキシド(DMSO)に溶解して 1 M のストック溶液として調製した。このストック溶液を、使用前に必要な作業濃度までさらに希釈した。1 M のストック溶液を DMSO で連続希釈し、10, 100, 200, 400, 600, 800, および 1000 mM の濃度の 1000×投与溶液を調製した。処理の直前に、各 1000×投与溶液を完全培地に 1:1000 (v/v) の割合で添加し、最終的なクロピドグレル濃度をそれぞれ 0.01, 0.1, 0.2, 0.4, 0.6, 0.8, および 1.0 mM とした。ビークル対照群には、クロピドグレルを含まない同容量の DMSO を投与した。これにより、すべての群において最終的な DMSO 濃度を 0.1% (v/v) に維持した。培養 GES-1 細胞では、肝臓のシトクロム P450 介在性のクロピドグレル生物学的活性化は再現されない。したがって、探索的な親化合物曝露モデルとして、クロピドグレルによる直接処理を用いた。濃度範囲は、実験条件下での濃度依存的な細胞応答を特徴づけるために選択したものであり、臨床的に達成可能な血漿または胃組織濃度と同等であると解釈されるべきではない。
細胞の継代
基礎培地にFBSおよびペニシリン-ストレプトマイシンを添加して完全培地を調製した。細胞のコンフルエンスが約80%に達した時点で、培地を除去し、滅菌済みリン酸緩衝生理食塩水(PBS)で細胞を3回洗浄した。その後、トリプシン-エチレンジアミン四酢酸(EDTA)溶液を用いて細胞を約1–2分間消化した。細胞が一部剥離した後、完全培地を加えて消化を停止させた。細胞懸濁液を1,200 × gで3分間遠心分離した。上清を除去した後、細胞ペレットを1–2 mLの完全培地で再懸濁し、実験条件に応じて新しい培養皿に播種した。
CCK-8細胞生存率アッセイ
対数増殖期のGES-1細胞を、6 × 10³ cells/wellの密度で96ウェルプレートに播種し、細胞を接着させるため一晩培養した。接着後、細胞を異なる濃度のクロピドグレル(0, 0.01, 0.1, 0.2, 0.4, 0.6, 0.8, および 1.0 mM)で24時間処理した。対照群には、同濃度の溶媒を添加した。処理後、各ウェルにCCK-8溶液を加え、キットの説明書に従って37°Cでインキュベートした。マイクロプレートリーダーを用いて450 nmにおける吸光度を測定した。細胞生存率は対照群に対する割合(%)として算出した。濃度反応結果に基づき、その後のアポトーシス、細胞周期、qPCR、およびウェスタンブロット解析には、0.1 mMのクロピドグレルによる24時間の処理を選択した。
フローサイトメトリー解析
GES-1細胞を6ウェルプレートに播種し、細胞接着後に0.1 mMのクロピドグレルで24時間処理した。処理後、浮遊細胞および接着細胞の両方を回収した。接着細胞をEDTA不含のトリプシンで消化し、冷PBSで2回洗浄した後、バインディングバッファーに再懸濁した。メーカーの指示に従い、Annexin V-FITC/PI Apoptosis Kitを用いて細胞を染色した。室温・暗所でのインキュベーション後、RaiseCyte 2L6Cフローサイトメーターを用いてアポトーシス細胞を検出した。データはRaiseFlower解析ソフトウェアを用いて取得し、FlowJoソフトウェア(バージョン10.8.1)を用いて解析した。FlowJoソフトウェアを用いて、初期アポトーシス、後期アポトーシス、および総アポトーシス細胞集団を定量化した。
フローサイトメトリーによる細胞周期分布の解析
GES-1細胞を6ウェルプレートに播種し、0.1 mMのクロピドグレルで24時間処理した。処理後、細胞を回収してPBSで洗浄し、4°Cで予冷した70%エタノールで固定した。固定した細胞を洗浄して残留エタノールを除去した後、製造元の指示に従い、暗所でRNase Aおよびプロピジウムヨード染色液とともにインキュベートした。細胞周期分布をフローサイトメーターを用いて解析した。データは専用の取得ソフトを用いて収集し、FlowJoソフトウェアを用いて解析した。細胞周期分布はWatsonモデルを用いてフィッティングし、G0/G1期、S期、およびG2/M期にある細胞の割合を算出した。
定量リアルタイムPCR (qPCR)
RNA抽出キットを用い、キットの説明書に従ってGES-1細胞およびラット胃組織サンプルから全RNAを抽出した。組織サンプルの場合、胃粘膜組織を迅速に採取し、低温条件下でホモジナイズした後、RNA抽出に供した。RNA濃度と純度は、260 nmおよび280 nmにおける吸光度を測定することで決定した。等量のRNAを、ゲノムDNA除去機能付きの逆転写キットを用いて相補的DNA(cDNA)に逆転写した。SYBR GreenベースのPCRマスターミックスを用いて定量リアルタイムPCRを行った。各反応は、10 µLの2×マスターミックス、1 µLのcDNA、0.4 µLのフォワードプライマー、0.4 µLのリバースプライマー、および8.2 µLのRNaseフリーddH₂Oを含む、合計20 µLの容量で実施した。サーマルサイクリング条件は以下の通りとした:95°Cで10分間の初期変性後、95°Cで10秒間の変性、60°Cで30秒間のアニーリング、72°Cで30秒間の伸長を40サイクル繰り返した。CHOP、ATF5、Bcl-2、およびBaxの発現レベルを測定した。内部標準遺伝子としてGAPDHを用いた。相対的遺伝子発現量は2−ΔΔCt法を用いて算出した。プライマー配列はSupplementary Table 1に記載している。
ウェスタンブロッティング
GES-1細胞およびラット胃組織サンプルから全タンパク質を抽出した。細胞サンプルの場合、処理後のGES-1細胞を冷PBSで洗浄し、プロテアーゼ阻害剤を含むラジオ免疫沈降法(RIPA)溶解バッファーを用いて溶解させた。組織サンプルの場合、胃粘膜組織を低温条件下でRIPAバッファーを用いてホモジナイズし、遠心分離して上清を回収した。タンパク質濃度はBCAタンパク質定量法を用いて決定した。1レーンあたり合計20 µgのタンパク質をドデシル硫酸ナトリウム-ポリアクリルアミドゲル電気泳動(SDS-PAGE)により分離し、ポリフッ化ビニリデン(PVDF)膜に転写した。牛血清アルブミン(BSA)でブロッキングした後、膜をCHOP(1:1000)、ATF5(1:1000)、Bcl-2(1:1000)、Bax(1:1000)、およびβ-actin(1:5000)に対する一次抗体とともに4°Cで一晩インキュベートした。洗浄後、膜を対応する西洋ワサビペルオキシダーゼ標識二次抗体(1:10000)でインキュベートした。タンパク質バンドは化学発光増強試薬を用いて可視化し、化学発光イメージングシステムでキャプチャした。バンド強度は画像解析ソフトウェアを用いて定量し、β-actinで標準化した。
組織病理学的評価
クロピドグレル投与後のSprague–Dawleyラットから胃組織サンプルを採取し、10%中性緩衝ホルマリンで固定した。サンプルを脱水、透徹し、パラフィンに包埋した後、厚さ4 µmで切片を作成した。パラフィン切片をヘマトキシリン・エオジン染色した。粘膜の形態、上皮の完全性、浮腫、および炎症細胞浸潤に基づき、光学顕微鏡下で組織病理学的変化を定性的に評価した。代表的な画像を撮影した。組織学的スコアリングシステムは適用していない。
免疫組織化学
パラフィン包埋した胃組織切片をキシレンで脱パラフィンし、段階的なエタノール系列を用いて再水和させた。クエン酸緩衝液を用いて熱誘起抗原賦活化を行った。3% 過酸化水素で10分間処理して内因性ペルオキシダーゼ活性をブロックし、室温で正常ヤギ血清を用いて30分間処理して非特異的結合をブロックした。その後、切片をCHOP、ATF5、Bcl-2、およびBaxに対する一次抗体とともに4°Cで一晩インキュベートした。PBSで洗浄後、切片を対応するホースラディッシュペルオキシダーゼ標識二次抗体とともにインキュベートした。免疫反応信号をDAB発色溶液を用いて可視化し、続いてヘマトキシリンで対比染色を行った。切片を脱水、透徹、封入し、光学顕微鏡下で観察した。代表的な画像を撮影し、画像解析ソフトウェアを用いて陽性染色領域を定量化した。
免疫蛍光染色
パラフィン包埋した胃組織切片を脱パラフィン化および親水化し、クエン酸緩衝液を用いて熱誘起抗原賦活化を行った。正常ヤギ血清で30分間ブロッキングした後、CHOP (1:50)、ATF5 (1:100)、Bcl-2 (1:50)、およびBax (1:200)に対する一次抗体とともに4°Cで一晩インキュベートした。PBSで洗浄後、対応する蛍光二次抗体 (1:500)を用いて室温・暗所で1時間インキュベートし、次いでDAPIで対比染色した。蛍光顕微鏡を用い、×200倍の倍率で画像をキャプチャした。各動物からランダムに選択した重複のない3つの視野をImage-Pro Plus 6.0を用いて解析し、蛍光強度はIOD/Areaとして算出した。1群あたり3匹の動物を解析に含めた。
酵素結合免疫吸着法 (ELISA)
処置後、Sprague–Dawleyラットから血液サンプルを採取し、室温で凝固させた。遠心分離により血清を分離し、分析まで−80°Cで保存した。IL-1β、IL-6、およびTNF-αの血清レベルを、キットの説明書に従ってELISAキットを用いて測定した。吸光度はマイクロプレートリーダーを用いて測定し、標準曲線に基づいてサイトカイン濃度を算出した。
統計解析
統計解析には統計解析ソフトウェアを使用した。データは平均値 ± SD で的に示す。正規性と分散の均一性は、それぞれ Shapiro–Wilk 検定および Levene 検定を用いて評価した。2群間の比較には Student の t 検定を用いた。多群間の比較には、一元配置分散分析の後、Dunnett のポストホック検定を行った。 P < 0.05 を統計的に有意であると見なした。すべての細胞実験は、少なくとも3回の独立した生物学的反復を用いて実施した。
結果
クロピドグレルはGES-1細胞の生存率を低下させ、in vitroでアポトーシスを増加させる
まず、クロピドグレルがGES-1細胞の生存率およびアポトーシスに影響を与えるかどうかを検討した。CCK-8アッセイの結果、クロピドグレル処理によりGES-1細胞の生存率が有意に低下したことが示され(Figure 1A,B)、細胞生存率の減少が認められた。テストした濃度範囲全体で細胞生存率が低下したことに基づき、以降のすべての細胞実験には0.1 mMのクロピドグレルを24時間処理する条件を選択した。続いて、アポトーシスおよび細胞周期分布を分析するためにフローサイトメトリーを行った(Figure 1C–F)。フローサイトメトリー分析では、S期の細胞割合が増加し、それに伴いG0/G1期の集団が減少した一方、G2/M期の集団に明らかな増加は見られず、G2/M期停止ではなくS期への蓄積が示唆された。これらの結果は、対照群と比較して、クロピドグレルがGES-1細胞のアポトーシスを有意に増加させ、細胞周期分布を変化させることを実証した。総合すると、これらの知見は、クロピドグレルがGES-1細胞の生存率を低下させ、アポトーシスの増加および細胞周期進行の変化に関連していることを示している。これらの結果は、選択した実験条件下でクロピドグレルの親化合物に直接曝露させた後の細胞毒性反応を示すものである。ただし、臨床的に関連のある曝露レベルで同様の効果が生じることや、観察された反応がクロピドグレルの活性代謝物によって媒介されることを立証するものではない。
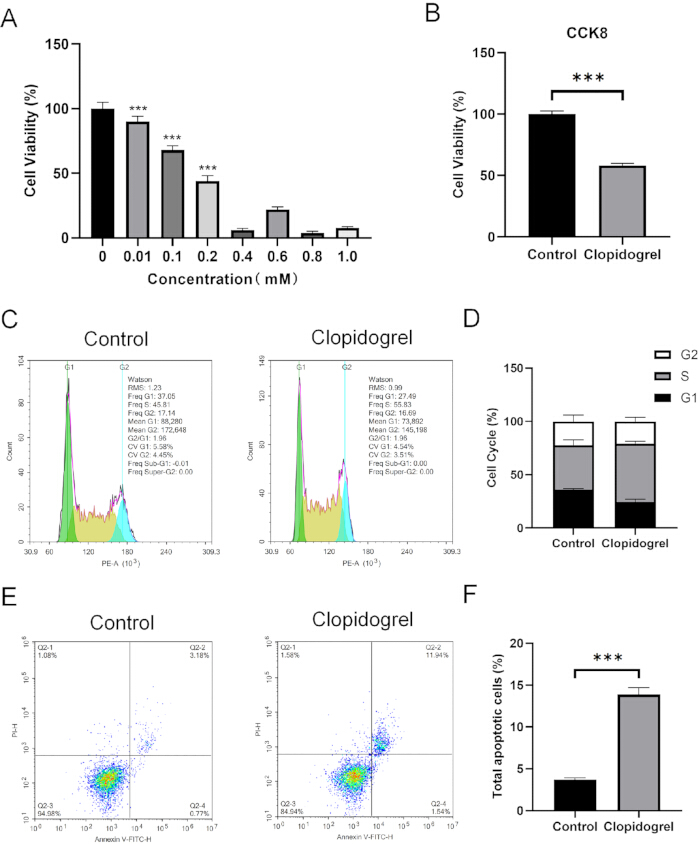
図1クロピドグレルは GES-1 細胞の生存率を低下させ、アポトーシスを増加させる。 (Aヒト胃上皮細胞株GES-1の細胞生存率を、クロピドグレル(0–1.0 mM)の濃度を段階的に上げて24時間処理した後、CCK-8アッセイを用いて評価した。B) コントロール群と0.1 mMのクロピドグレルで24時間処理した群との間における細胞生存率の定量比較。(C) Watsonモデルを用いて解析した代表的なフローサイトメトリー細胞周期プロファイル。(D) G0/G1期、S期、およびG2/M期にある細胞の割合の定量化。クロピドグレル処理により、G2/M期の細胞集団に顕著な増加は見られなかったが、S期の細胞集団が増加した。 (E) Annexin V-フルオレセインイソチアノ酸(FITC)およびプロピジウムイオダイド(PI)染色によるアポトーシスの代表的なフローサイトメトリードットプロット。(F) 総アポトーシス細胞集団の定量。すべての細胞実験は、3つの独立した生物学的反復(n = 3)を用いて実施した。データは平均値 ± 標準偏差(SD)で示す。統計的有意性は、対照群との比較により判定した。***P < 0.001. こちらの図の拡大版を表示するには、ここをクリックしてください。
クロピドグレル誘発性胃傷害は全身性炎症に関連している
Sprague–Dawleyラットを、対照群と、経口投与(gavage)を毎日行うクロピドグレル投与群の2群にランダムに分けた(各群 n = 6)。クロピドグレルの投与量および3日間の投与計画は、以前に報告されたクロピドグレル誘発胃傷害ラットモデル16に基づいて選択した。3日後、ヘマトキシリン・エオジン(H&E)染色のために胃組織を回収した。組織病理学的検査の結果、対照群と比較して、クロピドグレル投与群では胃粘膜のびらん、浮腫、および炎症細胞浸潤が認められた(Figure 2A)。血清炎症性サイトカインレベルをELISAで測定したところ、クロピドグレル投与群では対照群よりもインターロイキン (IL)-1β、IL-6、および腫瘍壊死因子-α (TNF-α) の血清レベルが有意に高かった(Figure 2B–D)。これらの結果は、クロピドグレルの投与が胃粘膜傷害および全身性炎症反応の亢進に関連していることを示している15,16。
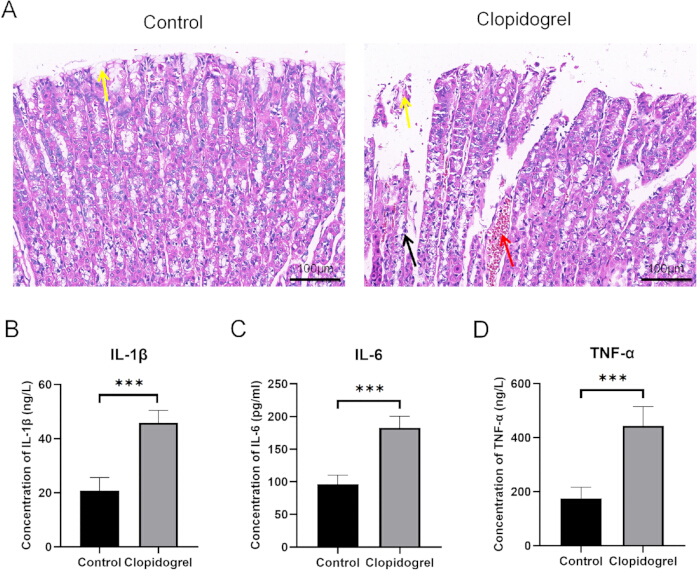
図2クロピドグレルはラットにおいて胃粘膜損傷を誘発し、血中の炎症性サイトカインレベルを上昇させる。 (A代表的なヘマトキシリン・エオジン(H&対照群およびクロピドグレル投与群のSprague–Dawleyラットにおける胃粘膜のH&E染色切片。組織学的検討により、対照群では胃粘膜構造が維持されているのに対し、クロピドグレル投与群では形態学的変化が認められる。黄色矢印は胃粘膜上皮細胞を、赤色矢印は粘膜層内の局所的な充血を、黒色矢印は軽度の炎症細胞浸潤を示す。元の倍率:×200、スケールバー= 100 µmn = 各群6匹。B–Dインターロイキン(IL)-1β、IL-6、および腫瘍壊死因子-α(TNF-α)の血清濃度を、酵素結合免疫吸着測定法(ELISA)を用いて測定した。データは平均値±標準偏差(SD)で示し、1群あたりn = 6匹とした。P < 対照群と比較して0.001であった。 この図の拡大版を表示するには、ここをクリックしてください。
クロピドグレルはラット胃粘膜におけるERストレスおよびアポトーシス関連マーカーを変化させる
クロピドグレル誘発性胃損傷に関連する分子変化を調べるため、胃組織切片を用いて免疫組織化学染色を行った。代表的な画像では、対照群と比較してクロピドグレル投与群でCHOP、ATF5、およびBaxの染色強度が強く、一方でBcl-2の染色は弱くなっていた(Figure 3A)。IOD/areaの定量分析により、クロピドグレル投与後にCHOP、ATF5、およびBaxの染色が有意に増加していることが示された(Figure 3B,C,E)。Bcl-2の染色は減少傾向を示したが、その差は統計的有意性に達しなかった(Figure 3D)。これらの結果は、クロピドグレル投与がラット胃粘膜におけるストレスおよびアポトーシス関連タンパク質の発現変化に関連していることを示している。免疫蛍光分析では、クロピドグレル投与群の胃粘膜組織において、より強いCHOPおよびATF5のシグナルが認められた。定量分析の結果、CHOP (Figures 4A および 5A) および ATF5 (Figures 4B および 5B) の有意な増加が確認されたが、Bcl-2 (Figures 4C および 5C) および Bax (Figures 4D および 5D) は、それぞれ減少傾向および増加傾向を示したものの、統計的有意差は認められなかった。以上の知見を総合すると、クロピドグレル投与はラット胃粘膜における小胞体ストレスおよびアポトーシス関連マーカーの発現変化に関連していることが示唆される。
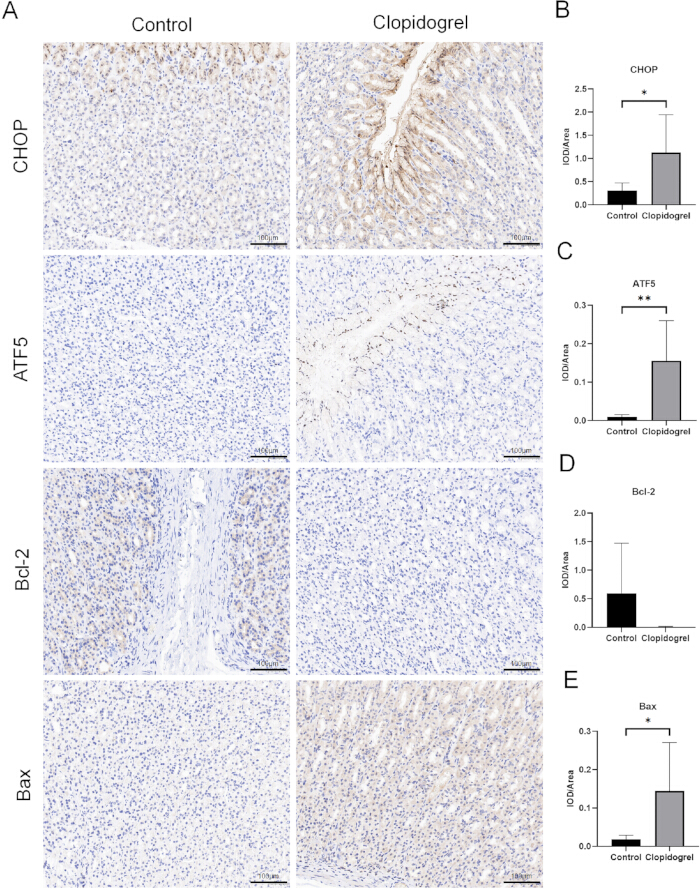
図3胃組織における小胞体ストレスおよびアポトーシス関連タンパク質の免疫組織化学的検出。 (A) 対照群およびクロピドグレル投与群のSprague–Dawleyラットの胃粘膜組織における、C/EBP相同タンパク質(CHOP)、活性化転写因子5(ATF5)、B細胞リンパ腫2(Bcl-2)、およびBcl-2関連Xタンパク質(Bax)の代表的な免疫組織化学染色像。茶色の染色は陽性免疫反応を示し、核はヘマトキシリンで対比染色した。提示した画像は、各群3匹の動物を含む解析した全サンプルの代表的なものである。原倍率 ×200;スケールバー = 100 µm. (B–E) CHOP、ATF5、Bcl-2、およびBaxにおける単位面積あたりの統合光学密度(IOD/Area)の定量分析。データは平均値±標準偏差(SD)で示す。*P < 0.05および**P < 対照群と比較して0.01であった。 この図の拡大版を表示するには、ここをクリックしてください。
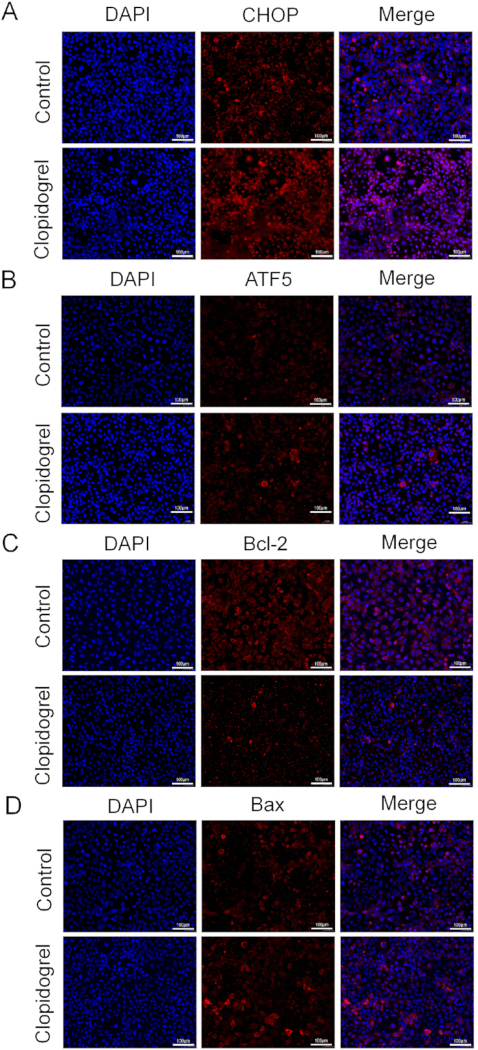
図4胃組織における小胞体ストレスおよびアポトーシス関連タンパク質の免疫蛍光検出。 対照群およびクロピドグレル投与 Sprague–Dawley ラットの胃粘膜組織における、C/EBP相同タンパク質(CHOP)、活性化転写因子5(ATF5)、B-cell lymphoma 2(Bcl-2)、および Bcl-2 関連 X タンパク質(Bax)の局在を示す代表的な免疫蛍光画像。核は 4′,6-ジアミジノ-2-フェニルインドール(DAPI)(青)で対比染色されており、陽性の免疫蛍光染色は赤色で示されている。右列にマージ画像を示す。A) CHOP. (B) ATF5. (C) Bcl-2. (D) Bax。原倍率200倍、スケールバー = 100 µm提示された画像は、各群n = 3匹の動物を用いて解析したすべてのサンプルの代表例である。 この図の拡大版を表示するには、ここをクリックしてください。
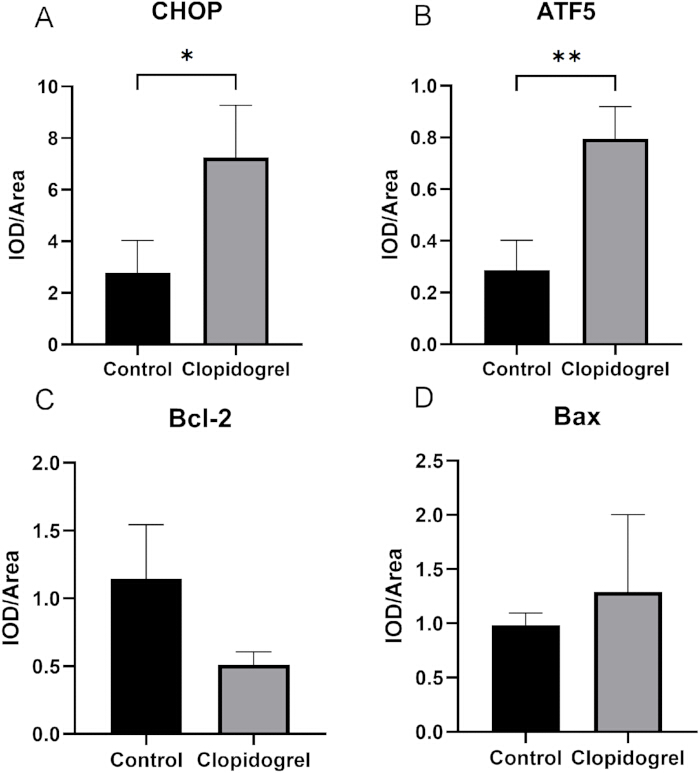
図5胃組織における小胞体ストレスおよびアポトーシス関連タンパク質の免疫蛍光染色の定量分析。 (A–D対照群およびクロピドグレル投与 Sprague–Dawley ラットの胃粘膜組織における、C/EBP homologous protein (CHOP)、activating transcription factor 5 (ATF5)、B-cell lymphoma 2 (Bcl-2)、および Bcl-2-associated X protein (Bax) の単位面積あたり積分光学的密度 (IOD/Area) の定量。個々の動物について、組織切片あたりにランダムに選択した重なりのない 3 つの顕微鏡視野を画像解析ソフトウェアを用いて解析し、その平均値を統計解析に使用した。データは平均値 ± 標準偏差 (SD) で示し、n = 各群 3 匹とした。*P < 0.05 および **P < 対照群と比較して0.01であった。 この図の拡大版を表示するには、ここをクリックしてください。
クロピドグレルは、GES-1細胞およびラット胃組織における小胞体ストレスおよびアポトーシス関連の遺伝子およびタンパク質発現を変化させる
先行研究により、小胞体(ER)ストレスが細胞ストレス応答およびアポトーシスにおいて重要な役割を果たすことが示されている17,18。クロピドグレル投与後のERストレス関連マーカーの変化を評価するため、GES-1細胞におけるCHOPおよびATF5の発現を検討した。qRT-PCRの結果、クロピドグレル投与後にCHOPおよびATF5のmRNA発現が増加することが示された。また、ウェスタンブロット解析により、CHOPおよびATF5のタンパク質発現の増加がさらに確認された(Figure 6A–E)。続いて、GES-1細胞およびラット胃組織においてアポトーシス関連タンパク質の発現を評価した。対照群と比較して、クロピドグレル投与によりBaxの発現が増加し、Bcl-2の発現が減少したため、Bax/Bcl-2比が上昇した(Figure 6A–J)。これらの発現パターンは、GES-1細胞およびラット胃組織の両方において、mRNAレベルとタンパク質レベルのいずれでも一貫して観察された。以上の結果から、クロピドグレル投与が、これら2つの実験モデルにおけるERストレスおよびアポトーシス関連マーカーの発現変動に関連していることが示された。
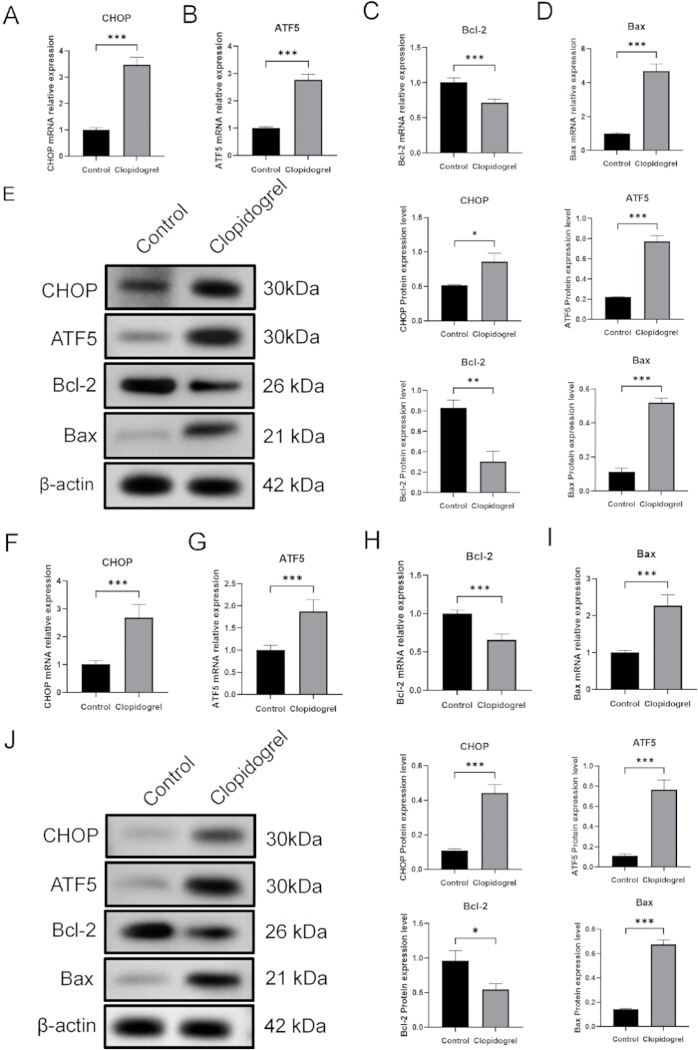
図6クロピドグレル投与後のGES-1細胞およびラット胃組織における小胞体ストレスおよびアポトーシス関連マーカーの発現。 (A–D定量リアルタイムポリメラーゼ連鎖反応(qRT-PCR)により測定した、ヒト胃上皮細胞株GES-1におけるC/EBP相同タンパク質(CHOP)、活性化転写因子5(ATF5)、B細胞リンパ腫2(Bcl-2)およびBcl-2結合Xタンパク質(Bax)の相対的なメッセンジャーRNA(mRNA)発現量。EGES-1細胞におけるCHOP、ATF5、Bcl-2、およびBaxタンパク質発現の代表的なウェスタンブロット画像と、それに対応するデンシトメトリー定量結果。タンパク質発現レベルはβ-actinで標準化した。細胞実験は、3つの独立した生物学的反復(n = 3)を用いて実施した。F–I) qRT-PCRにより定量したラット胃組織におけるCHOP、ATF5、Bcl-2、およびBaxの相対的mRNA発現量。(J) ラット胃組織におけるCHOP、ATF5、Bcl-2、およびBaxのタンパク質発現を示す代表的なウェスタンブロット画像と、それに対応するデンシトメトリー定量結果。タンパク質発現レベルはβ-actinで標準化した。組織実験では、1群あたりn = 3匹の動物を用いた。データは平均値±標準偏差(SD)で示している。統計的有意性は対照群との比較により決定した。*P < 0.05, **P < 0.01、および***P < 0.001. この図の拡大版を表示するには、ここをクリックしてください。
総合的に見て、これらの結果は、クロピドグレル投与がGES-1細胞の生存率を低下させ、アポトーシスを増加させ、ERストレスおよびアポトーシス関連マーカーの発現を変化させたこと、またラットにおいて血中炎症性サイトカインレベルの上昇を伴う胃粘膜傷害に関連していたことを示しています。これらの知見は、クロピドグレル投与が胃粘膜傷害およびそれに伴うERストレスおよびアポトーシス関連マーカーの変化に関連しているという本研究の仮説を支持するものです。
データの可用性:
本研究で生成または分析されたすべてのデータは、本公開論文およびその補足資料に含まれています。RT-PCRに使用したプライマー配列は補足表1に記載されています。元の実験データセットおよびソースファイルを含む、すべての図および個別の図パネルを裏付ける生データは、付属の生データ(Raw Data)補足アーカイブ(zipファイル)に提供されています。
付録表1. RT-PCR解析に使用したプライマー配列。 本研究においてGAPDH、CHOP、ATF5、Bcl-2、およびBaxのRT-PCR解析に使用したフォワード(F)およびリバース(R)プライマー配列を5′–3′方向に記載している。こちらのリンクからファイルをダウンロードしてください。
ディスカッション
クロピドグレルは心血管疾患の予防および治療に広く用いられていますが、その臨床使用は、消化管潰瘍、出血、穿孔を含む出血リスクおよび胃腸管合併症と関連しています19。したがって、クロピドグレル誘発性胃傷害に関連する分子変化を理解することは、これらの副作用の予防および管理を改善するために重要です。本研究では、胃上皮細胞およびラット胃組織に対するクロピドグレルの影響を調査し、細胞生存率、アポトーシス、炎症反応、ならびにERストレスおよびアポトーシス関連マーカーの発現の変化を観察しました。これらの知見は、クロピドグレル誘発性の胃粘膜傷害が、ERストレスおよびアポトーシス関連マーカーの発現変化に関連していることを示唆しています。ただし、薬理学的なレスキュー実験や遺伝的な機能喪失実験は行われていないため、これらの知見はERストレスとアポトーシスの間の因果関係を立証するものではありません。
先行研究により、クロピドグレルが胃粘膜の修復を損ない、胃潰瘍の治癒を遅らせる可能性が示唆されている20。本研究において、CCK-8アッセイによりクロピドグレルがGES-1細胞の生存率を低下させることが示され、フローサイトメトリーによりアポトーシスの増加と細胞周期進行の変化が実証された(図1)。これらの知見は、胃上皮細胞におけるクロピドグレル誘発性アポトーシスに関する過去の報告と一致している21。これらの観察結果は、クロピドグレル治療が胃上皮細胞の生存率低下およびアポトーシス増加に関連しており、それが胃粘膜損傷に寄与している可能性を示唆している11。ラットモデルでは、H&E染色により、クロピドグレル投与後の胃粘膜損傷が認められた(図2A)。また、血清中のIL-1β、IL-6、およびTNF-αレベルが有意に上昇しており(図2B–D)、胃粘膜損傷に伴う炎症反応が示された22。さらに、免疫組織化学的および免疫蛍光分析により、対照群と比較してクロピドグレル投与ラットの胃組織において、ERストレスおよびアポトーシス関連マーカーの発現が変化していることが実証された(図 3, 図4, 図5)。
CHOP、ATF5、Bcl-2、およびBaxは、細胞ストレス応答およびアポトーシスの重要な調節因子である23,24,25,26。本研究では、クロピドグレル投与により、GES-1細胞およびラット胃組織の両方において、CHOPおよびATF5の発現増加、ならびにBaxおよびBcl-2の発現変動が認められた(図6)。これらの結果は、ストレスおよびアポトーシス関連マーカーが同時に変動していることを示している。しかし、本研究では発現変化のみを評価しており、これらの分子がクロピドグレル誘発性の胃粘膜傷害を直接的に媒介しているかどうかは判断していない。同様に、Bax/Bcl-2比の上昇が観察されたが、ミトコンドリアアポトーシス経路の活性化を直接的に証明したわけではない。したがって、これらの知見は因果関係のあるシグナル伝達メカニズムの証拠ではなく、相関関係として解釈されるべきである。
本研究では、ラットを用いたin vivoモデルと、GES-1細胞における探索的な直接曝露実験を組み合わせ、クロピドグレル投与に伴う形態学的および分子的な変化を評価しました。in vivoモデルによって胃粘膜傷害の主要な根拠を提示し、一方でGES-1細胞を用いた実験により、親化合物への直接曝露後の細胞応答に関する補完的な根拠を得ています。組織病理学的解析、炎症性サイトカインの測定、免疫組織化学、免疫蛍光染色、qRT-PCR、およびウェスタンブロッティングを組み合わせることで、胃傷害に関連する形態学的および分子的な変化の包括的な評価を可能にしました。この実験的アプローチは、抗血小板薬の胃腸管への影響の調査や、今後の研究における潜在的な保護的介入の評価に有用であると考えられます。
いくつかの限界点を認める必要がある。クロピドグレルは肝臓での代謝活性化を必要とするプロドラッグであるが、GES-1細胞に親化合物を直接曝露させる手法ではこのプロセスを再現できず、臨床的な薬物動態を十分に反映していない。さらに、in vitroで使用した比較的高濃度の薬剤が、非特異的な細胞毒性を引き起こした可能性がある。したがって、GES-1を用いた実験は、直接曝露条件下における細胞応答の探索的な根拠として捉えるべきである。CCK-8アッセイでは細胞生存率低下の陽性コントロールを含めていなかったため、アッセイ性能の独立した検証に制限があった。また、観察された小胞体(ER)ストレス関連の変化の原因となる上流メカニズムは調査されておらず、ERストレスがBax/Bcl-2バランスおよびアポトーシスを直接調節しているかを確認するための薬理学的阻害、遺伝子ノックダウン、または遺伝子ノックアウト実験は実施されなかった。今後の研究では、親化合物と活性代謝物を比較し、適切な代謝活性化システムを導入し、これらの関係を明らかにするための機能的介入実験を行う必要がある。さらに、Annexin V-FITC/PIアッセイにおいて、十分に確立されたアポトーシス誘導陽性コントロールが含まれていなかった。そのため、クロピドグレル処理はビヒクルコントロールと比較してAnnexin V陽性細胞集団の増加に関連していたが、アポトーシスアッセイの技術的性能は陽性コントロール条件を用いて独立して検証されていない。今後の研究では、スタウロスポリンなどのアポトーシス誘導剤を同一の実験バッチに含めるべきである。
結論として、ラットへのクロピドグレル経口投与は胃粘膜損傷を引き起こし、それに伴いERストレスおよびアポトーシス関連マーカーの変化が認められた。また、実験条件下においてGES-1細胞をクロピドグレルの親化合物に直接曝露させたところ、細胞生存率が低下し、関連する分子マーカーが変動した。しかし、細胞モデルでは肝臓での生物学的活性化が再現されず、また比較的高い濃度を使用したため、in vitroでの知見を臨床的な曝露に直接的に外挿することはできず、非特異的な細胞毒性の可能性も排除できない。総じて、本知見は、クロピドグレル誘発性の胃粘膜損傷がERストレスおよびアポトーシス関連マーカーの発現変化に関連していることを示唆しているが、因果関係を確定させるにはさらなる機序研究が必要である。
開示事項
利益相反:
著者らは、本研究で報告された内容に影響を及ぼしたと思われる競合する資金的利益や個人的関係がないことを宣言します。
謝辞
本研究は、プロジェクト「クロピドグレル誘発胃粘膜上皮細胞アポトーシスにおけるCHOP/ATF5/Bcl-2シグナリング経路に関する基礎研究」(プロジェクト番号:2023BWKY009)の支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Annexin V-FITC/PI アポトーシス検出キット | Elabscience | E-CK-A211 | アポトーシス検出キット |
| ATF5抗体 | Proteintech | 67066-1-AP | 一次抗体 |
| BCAタンパク質定量キット | Solarbio | PC0020 | タンパク質濃度測定法 |
| Bax抗体 | Proteintech | 50599-1-AP | 一次抗体 |
| Bcl-2抗体 | Proteintech | 26593-1-AP | 一次抗体 |
| β$\beta$-アクチン抗体 | Proteintech | 66009-1-Ig | 一次抗体 |
| ブロッキング緩衝液 | Beyotime | P0252 | ウェスタンブロッティング用ブロッキング溶液 |
| CCK-8 細胞計数キット | KeyGen Biotech | KGA317 | 細胞生存率測定法 |
| cDNA合成キット | TransGen Biotech | AU341 | ゲノムDNA除去機能付き第一鎖cDNA合成キット |
| 細胞周期検出キット | Lianke Biotechnology | CCS012 | 細胞周期解析キット |
| CHOP抗体 | Proteintech | 15204-1-AP | 一次抗体 |
| 硫酸クロピドグレル(純度 ≥99%) | マックリン | C874834 | 試験薬 |
| DAB発色キット | Beyotime | P0201M | 免疫組織化学染色基質 |
| ジメチルスルホキシド(DMSO) | MedChemExpress | HY-Y0320C | 溶媒 |
| 化学発光増強(ECL)試薬 | Meilunbio | MA0186 | 化学発光基質 |
| 牛胎児血清 (FBS) | Gibco | 10099-141 | 細胞培養サプリメント |
| GES-1ヒト胃上皮細胞株 | iCell Bioscience | iCell-h062 | ヒト胃上皮細胞株 |
| ヘマトキシリン・エオシン(H&E)&E) 染色キット | Beyotime | C0105S | 組織学的染色 |
| 西洋わさびペルオキシダーゼ(HRP)標識二次抗体 | Proteintech | RGAM001/RGAR001 | 二次抗体 |
| 過酸化水素溶液 | アブシン | ABS9333-100mL | 内因性ペルオキシダーゼブロッキング試薬 |
| IL-1β ELISAキット | MEIMIAN | MM-0047R2 | 血清サイトカインアッセイ |
| IL-6 ELISAキット | 美眠 | MM-0190R2 | 血清サイトカインアッセイ |
| マイクロプレートリーダー | 北京六一生物技術 | WD-2102B | 吸光度測定 |
| ペニシリン・ストレプトマイシン溶液 | Solarbio | P1400 | 抗生物質溶液 |
| リン酸緩衝生理食塩水 (PBS) | Servicebio | G4202-500ML | 1× リン酸緩衝生理食塩水 |
| ポリフッ化ビニリデン (PVDF) 膜 | Millipore | IPVH00010 | ウェスタンブロット膜 |
| 一次抗体希釈液 | Beyotime | P0023A | 抗体希釈液 |
| タンパク質分子量マーカー | Yeasen | WJ103 | プレステインタンパク質ラダー |
| 定量リアルタイムPCRマスターミックス(SYBR Green) | CWBio | CW3008 | qPCR試薬 |
| 放射免疫沈降法(RIPA)ライシスバッファー | Solarbio | R0010 | タンパク質抽出バッファー |
| RNase A | Lianke Biotechnology | CCS012 | 細胞周期解析試薬 |
| RPMI-1640培地 | Servicebio | G4535-500ML | 基礎細胞培養基材 |
| Sprague-Dawleyラット | 杭州資源実験動物技術有限公司 | 該当なし | SPFグレード |
| TNF-α ELISAキット | 美眠 | MM-0180R2 | 血清サイトカイン測定法 |
| 全RNA抽出キット | TransGen Biotech | ER501-01 | RNA抽出キット |
| トリプシン-EDTA溶液 | Solarbio | T1300 | 細胞解離試薬 |
参考文献
- Mills JC, Shivdasani RA. Gastric epithelial stem cells. Gastroenterology. 2011;140(2):412-424.
- Zhou CB, et al. The role of pyroptosis in gastrointestinal cancer and immune responses to intestinal microbial infection. Biochim Biophys Acta Rev Cancer. 2019;1872(1):1-10.
- Boltin D, Niv Y. Pharmacological and alimentary alteration of the gastric barrier. Best Pract Res Clin Gastroenterol. 2014;28(6):981-994.
- Kwon DA, et al. Protective effects of a standardized extract (HemoHIM) using indomethacin- and ethanol/HCl-induced gastric mucosal injury models. Pharm Biol. 2019;57(1):543-549.
- Guo XZ, et al. Effect of Bax, Bcl-2 and Bcl-xL on regulating apoptosis in tissues of normal liver and hepatocellular carcinoma. World J Gastroenterol. 2002;8(6):1059-1062.
- Gomi A, et al. Effect of Bifidobacterium bifidum BF-1 on gastric protection and mucin production in an acute gastric injury rat model. J Dairy Sci. 2013;96(2):832-837.
- Chiou SK, et al. Suppression of growth arrest and DNA damage-inducible 45alpha expression confers resistance to sulindac- and indomethacin-induced gastric mucosal injury. J Pharmacol Exp Ther. 2010;334(3):693-702.
- Chen X, et al. Endoplasmic reticulum stress: molecular mechanism and therapeutic targets. Signal Transduct Target Ther. 2023;8(1):352.
- Lian X, et al. ATF5-regulated mitochondrial unfolded protein response attenuates neuronal damage in epileptic rats by reducing endoplasmic reticulum stress through mitochondrial ROS. Neurochem Res. 2024;49(2):388-401.
- He C, et al. Progression of gastrointestinal injury during antiplatelet therapy after percutaneous coronary intervention: a secondary analysis of the OPT-PEACE randomized clinical trial. JAMA Netw Open. 2023;6(11):e2343219.
- Zongdan J, et al. The mechanism of miR-363-3p/DUSP10 signaling pathway involved in the gastric mucosal injury induced by clopidogrel. Toxicol Mech Methods. 2021;31(2):150-158.
- Chan FK, et al. Clopidogrel versus aspirin and esomeprazole to prevent recurrent ulcer bleeding. N Engl J Med. 2005;352(3):238-244.
- Taha AS, et al. Upper gastrointestinal mucosal abnormalities and blood loss complicating low-dose aspirin and antithrombotic therapy. Aliment Pharmacol Ther. 2006;23(4):489-495.
- Wu HL, et al. Increased endoplasmic reticulum stress response is involved in clopidogrel-induced apoptosis of gastric epithelial cells. PLoS One. 2013;8(9):e74381.
- Forsgard RA, et al. Intestinal permeability to iohexol as an in vivo marker of chemotherapy-induced gastrointestinal toxicity in Sprague-Dawley rats. Cancer Chemother Pharmacol. 2016;78(4):863-874.
- Wu H, et al. Clopidogrel-induced gastric injury in rats is attenuated by stable gastric pentadecapeptide BPC 157. Drug Des Devel Ther. 2020;14:5599-5610.
- Zhu XM, et al. The involvement of endoplasmic reticulum stress response in immune dysfunction of dendritic cells after severe thermal injury in mice. Oncotarget. 2017;8(6):9035-9052.
- Oakes SA, Papa FR. The role of endoplasmic reticulum stress in human pathology. Annu Rev Pathol. 2015;10:173-194.
- Abrignani MG, et al. Gastroprotection in patients on antiplatelet and/or anticoagulant therapy: a position paper of the National Association of Hospital Cardiologists (ANMCO) and the Italian Association of Hospital Gastroenterologists and Endoscopists (AIGO). Eur J Intern Med. 2021;85:1-13.
- Takahashi K, et al. Influence of antiplatelet drugs on gastric ulcer healing after endoscopic submucosal dissection in patients with early gastric cancer. DEN Open. 2025;5(1).
- Wu H, et al. Role of MKP-5-p38/MAPK pathway in clopidogrel-induced gastric mucosal epithelial cells apoptosis and tight junction dysfunction. Am J Transl Res. 2020;12(5):1741-1753.
- Fu X, et al. Protective effect of teprenone on gastric mucosal injury induced by dual antiplatelet therapy in rats. Am J Transl Res. 2021;13(4):2702-2709.
- Oyadomari S, Mori M. Roles of CHOP/GADD153 in endoplasmic reticulum stress. Cell Death Differ. 2004;11(4):381-389.
- Sears TK, Angelastro JM. The transcription factor ATF5: role in cellular differentiation, stress responses, and cancer. Oncotarget. 2017;8(48):84595-84609.
- Zhang Y, et al. Puerarin attenuates neurological deficits via Bcl-2/Bax/cleaved caspase-3 and Sirt3/SOD2 apoptotic pathways in subarachnoid hemorrhage mice. Biomed Pharmacother. 2019;109:726-733.
- Manas A, et al. Immunohistochemical detection of the pro-apoptotic BaxΔ2 protein in human tissues. Histochem Cell Biol. 2020;154(1):41-53.
再版と許可
この記事は公開されました
動画は近日公開