本研究では、補腎健脾清腸方(Bushen-Jianpi-Qingchang formula)およびその処方構成の治療効果をラットの大腸炎モデルを用いて調査し、マルチオミクス解析を通じて、腸内細菌叢と胆汁酸代謝軸を標的とした調節メカニズムを明らかにします。
この記事について
サマリー
要約
伝統的な中医学(TCM)は、実証済みの有効性と良好な安全性プロファイルにより、潰瘍性大腸炎(UC)の管理に広く用いられています。慢性難治性UCの核心的な病態には、腸内の湿熱蓄積を伴う脾腎両虚が関与しており、補腎健脾清腸方(BJQF)はこの状態に対する臨床的に検証された複合処方です。本研究は、デキストラン硫酸ナトリウム(DSS)誘発ラット大腸炎に対するBJQFおよびその3つの分解サブ処方(補腎方:BSF、健脾方:JPF、清腸方:QCF)の治療効果を調査し、糞便胆汁酸(BA)プロファイルおよび腸内細菌叢に対する調節効果を特性付けることを目的としました。DSS誘発UCラットの糞便細菌組成およびBA濃度を、16S rRNA遺伝子シークエンシングおよび液体クロマトグラフィー・タンデム質量分析(LC-MS/MS)を用いて定量し、腸内細菌叢とBA代謝の潜在的な関連性を分析しました。BJQFは、UCモデルにおける大腸の炎症および潰瘍化を有意に改善しました。大腸炎ラットと健康な対照群との間で、細菌の多様性と組成に明確な変化が認められました。差異のある細菌とBAの関連性は、重要な代謝ノードとして23-デオキシコール酸(23-DCA)を中心に展開していました。特に、タウロリトコール酸-3-硫酸(TLCA-3S)およびリトコール酸-3-硫酸(LCA-3S)が、潜在的な有効性バイオマーカーとして機能する可能性があります。JPFサブ処方は、完全なBJQFに最も近い有効性を示しました。BJQFおよびその分解処方の投与は、UCラットにおける組織病理学的損傷、炎症、腸内細菌叢のディスバイオーシス、およびBA代謝異常を効果的に改善し、TCM複合療法にメカニズム的な根拠を提供するものです。
概要
炎症性腸疾患(IBD)の主要な形態である潰瘍性大腸炎(UC)は、大腸粘膜に限定された慢性的かつ持続的な非特異的炎症を特徴とする。UC患者は、下痢、腹痛、意図しない体重減少、血便や膿便などの臨床症状を呈し、これらはQOL(生活の質)を著しく低下させる。UCの病態生理には、環境的、遺伝的、微生物学的、および免疫学的因子が関与している。UCは通常、腸内細菌叢の不均衡に続いて発症し、このディスバイオーシスがUCの進行を著しく加速させることが知られている1。蓄積されたエビデンスにより、腸内細菌叢–胆汁酸(BA)代謝軸がUCの病態における中核的な調節モジュールであることが特定されている。胆汁酸代謝異常は、IBDにおける腸粘膜損傷の明確な特徴として認識されている。二次胆汁酸は、この生物学的変換に不可欠な7α-脱水酸化酵素などの主要酵素を発現する腸内細菌叢によって、宿主由来の一次胆汁酸からのみ生合成される。したがって、糞便中の胆汁酸プールは、中薬(TCM)治療によって誘導されるマイクロバイオームのリモデリングを反映する理想的な機能的リードアウトとして機能する。
これらの二次胆汁酸(BA)は、腸管の免疫恒常性、粘膜バリアの完全性、および上皮細胞の生存を維持するための重要なシグナル分子として機能します2。微生物叢のディスバイオーシスによる二次BAの欠乏やBAシグナルの破綻を含むこの軸の異常は、腸管の炎症性反応とバリア機能不全を直接的に誘発するため、潰瘍性大腸炎(UC)介入における有望な治療標的となります。腸内細菌叢はUCの発症に重要な役割を果たしており、発酵反応によって生成される胆汁酸などの代謝産物を介して宿主に影響を与えます。腸内細菌叢およびBA代謝の異常な変化は、UCと密接に関連しています3。腸内細菌叢が二次BAの生成を媒介するため、微生物の組成や存在量の変化がBA代謝を乱し、炎症性腸疾患(IBD)の発症に関与する可能性があります4。
中医学(TCM)は、抗炎症薬や免疫抑制剤の代替または補助として、長期治療における有効性と安全性が認められているため、潰瘍性大腸炎(UC)の管理に広く採用されています5。脾と腎を温め補い、腸を浄化し、湿を除去することが、UCにおける中核的な治療原則となります6。中医学の理論によれば、遷延性UCの主要な病態は、脾・腎虚(扶正:正気の補充)と腸管への湿熱の蓄積(祛邪:病因の排除)が組み合わさったものであり、これら2つの戦略を相乗的に適用することが、効果的なUC治療に不可欠です。
これまでの実験的研究により、BJQFの2つの主要な構成処方であるJPFおよびQCFが、UCに対して治療効果を有することが確認されています。JPFはNF-κB/HIF-1αシグナル伝達経路を介して粘膜炎症と腸管上皮バリア機能不全を改善し7、一方でQCFは腸内細菌叢-代謝の恒常性を回復させ、腸管上皮バリアを保護し、NLRP3/IL-1β経路を調節します8。腸内細菌叢-BA軸に対する「扶正(Fu-Zheng)」および「祛邪(Qu-Xie)」の各機能モジュールの具体的な生物学的寄与を解明するため、本研究では完全なBJQF処方と、分解した3つのサブ処方、すなわちBSF(補腎処方:脾腎を補う純粋な扶正)、JPF(健脾処方:脾を鼓舞する主要な扶正)、およびQCF(清腸処方:腸内の湿熱を除去する純粋な祛邪)を含める設計としました。この実験設計により、UC治療における各機能モジュールの相乗的および独立的な効果を分析することが可能となり、これは中医学の複合処方をエビデンスに基づく治療へと転換させるために極めて重要です。
本研究の作業仮説は、BJQFが腸内細菌叢の組成を再構築し、胆汁酸代謝を正常化させることでDSS誘発潰瘍性大腸炎を改善すること、およびJianpiモジュールが腸内細菌叢-BA軸に対する調節効果を駆動する中心的な機能的構成要素として作用することである。本研究は、BJQFの「化合物からモジュールへ」というメカニズムを体系的に解明するように設計された。全処方およびそれに対応する標的生理学的サブモジュールを評価することで、この中薬(TCM)化合物の生物学的相乗作用を解読し、腸内細菌叢-胆汁酸代謝軸の調節によるIBD治療の現代薬理学的根拠を提供することを目的とする。本論文では、DSS誘発潰瘍性大腸炎(UC)に対するBJQF完全処方および、それを分解して得られた3つの機能的処方の治療効果を体系的に比較する。UCの病態形成において腸内細菌叢-胆汁酸代謝軸が極めて重要な役割を果たすことを踏まえ、本研究ではBJQFの化合物-モジュール相乗メカニズムを詳細に分析し、Bushen、Jianpi、Qingchangの各モジュールの具体的な調節への寄与を明らかにし、各モジュールが腸内細菌叢の組成および糞便中胆汁酸プロファイルに及ぼす再構築効果を特性評価する。主な目的は、UCを緩和させるBJQFの現代生物学的根拠を明らかにすること、中薬介入における主要な微生物・代謝標的を特定すること、そしてIBDにおける複合中薬処方の合理的適用およびトランスレーショナルリサーチのためのメカニズム的な参照指標を提供することである。
プロトコル
体重200gの健康な雄性Sprague-Dawleyラット44匹 ± 本研究のために、20gの個体が供された。すべての動物は、標準的なペレット飼料および水に自由にアクセスできる特定病原体未導入(SPF)条件下で飼育され、実験前に1週間の馴化期間を設けた。すべての動物福祉および実験手順は、中国科学技術部が発行した「実験動物のケアおよび使用に関するガイドライン」に従って実施された。本研究は、南京中医药大学動物倫理委員会の承認(承認番号:2023DW-029-01)を得て行われた。動物の供給源および飼育用品の詳細については、以下に記載されている。 材料一覧表.
中薬処方の調製
完全な補腎健脾清腸方(BJQF)は、あらかじめ規定された用量に従い、9種類の生薬成分(15 g Astragali Radix、10 g 炒 Atractylodis Macrocephalae Rhizoma、10 g Scutellariae Radix、4 g Coptidis Rhizoma、10 g Sanguisorbae Radix、6 g Aucklandiae Radix、5 g Glycyrrhizae Radix、15 g Psoraleae Fructus、15 g Alpiniae Oxyphyllae Fructus)で構成した。すべての生薬原料を生理食塩水に1 h浸漬した後、1 h煎じて最終容量を1500 mLとした。同一の煎出プロトコルを用いて、3つの分解処方を調製した。補腎方(BSF)は15 g Psoraleae Fructusと15 g Alpiniae Oxyphyllae Fructusを含み、最終容量500 mLまで煎じた。健脾方(JPF)は15 g Astragali Radix、10 g 炒 Atractylodis Macrocephalae Rhizoma、5 g Glycyrrhizae Radixで構成し、最終煎出容量を500 mLとした。清腸方(QCF)は10 g Scutellariae Radix、4 g Coptidis Rhizoma、10 g Sanguisorbae Radix、6 g Aucklandiae Radixで構成し、同様に最終容量を500 mLに調整した。すべての生薬材料の詳細なメーカー仕様およびバッチ番号は、材料表に記載している。本文中では一貫して一般的な生薬名称を使用し、メーカー固有の詳細は材料表のみに限定して記載した。
大腸炎の誘発および実験群の構成
ラットをランダムに6つの実験群に分けた。コントロール群(n = 6):通常の飲用水 + 生理食塩水の経胃投与。UCモデル群(n = 6):3.5% (wt/vol) DSS飲用水 + 生理食塩水の経胃投与。BJQF投与群(n = 8):3.5% DSS飲用水 + BJQF(0.6 g/kg 体重)の経胃投与。BSF投与群(n = 8):3.5% DSS飲用水 + BSF(0.6 g/kg 体重)の経胃投与。JPF投与群(n = 8):3.5% DSS飲用水 + JPF(0.6 g/kg 体重)の経胃投与。QCF投与群(n = 8):3.5% DSS飲用水 + QCF(0.6 g/kg 体重)の経胃投与。
飲料水に3.5% DSSを添加し、10日間連続で投与することで実験性大腸炎を誘導した。対照群にはDSSを含まない蒸留水を与えた。各中薬(TCM)処方の投与量(0.6 g/kg)は、体表面積正規化法(Meeh-Rubner法)を用いて、臨床的な有効成人用量からラット換算量に変換した。処方の比較に焦点を当てた探索段階の研究であるため、単一の臨床等価量を採用した。1日目より、各TCM処方を1日1回経口投与した。対照群およびモデル群には、同量の生理食塩水(10 mL/kg)を投与した。11日目に、ラットを頸椎脱臼により安楽死させた。解析のため、血清、糞便サンプル、および結腸組織を回収した。体重を毎日測定した。全群の初期設計はn = 8とした。DSS誘導期間中、重症の大腸炎により対照群とモデル群でそれぞれ2匹のラットが死亡したため、これら2群の最終的なn = 6となった。事後パワー分析により、最終的なサンプルサイズですべての主要評価項目(組織学的スコア、主要サイトカイン、体重)において統計的パワー ≥ 0.8 が達成されており、標準的な統計要件を満たしていることが確認された。
炎症性サイトカイン濃度の測定
IL-1β、IL-10、およびTNF-αの血清レベルを、市販のELISAキットを用いて、製造元のプロトコルに厳密に従って定量した。吸光度は自動マイクロプレートリーダーを用いて測定した。統計解析:群間の全体的な差については一元配置分散分析(one-way ANOVA)を行い、その後、オミックスデータ解析に準じ、事後ペア比較に対してBenjamini-Hochberg法によるFDR補正を行った。
組織病理学的評価
結腸組織検体を10% formalinで固定し、脱水、パラフィン埋没、切片作成を行い、ヘマトキシリン・エオシン(HE)染色を施した。組織学的スコアリングは、実験的結腸炎に対して検証済みの半定量的評価基準である修正Cooper結腸炎スコアリングシステムを用いて行った9。スコアリングは、炎症性浸潤、陰窩の構造的損傷、粘膜浮腫、および潰瘍の広がりという4つの次元で評価した(合計スコア 0–12)。盲検化に関する記述:すべてのスライドは、スコアリング前に数値コードを用いて匿名化した。群割り付けを知らされていない2人の独立した病理学者が、各スライドを独立してスコア付けした。最終スコアは2人のスコアの平均とした。2点以上の乖離がある場合は、3人目の上級病理学者が判定し解決した。他の表現型データと同様に、一元配置分散分析(one-way ANOVA)およびペア比較のためのBenjamini-Hochberg FDR補正を用いた。
サンプルの収集およびDNA抽出
ラットの新鮮な糞便サンプルを1 mLの滅菌遠心チューブに採取し、直ちに−80 °Cで凍結させ、ドライアイスで輸送した。製造元の指示に従い、DNA Isolation Kitを用いて250 mgの糞便から糞便細菌ゲノムDNAを抽出した。DNA濃度は分光光度計で定量し、完全性は0.8%アガロースゲル電気泳動によって確認した。抽出および定量時には、ネガティブバッファーコントロールを含めた。抽出物は使用まで-20 °Cで保存した。
16S rRNA遺伝子シーケンシングおよびバイオインフォマティクス解析
16S rRNA遺伝子のV3–V4可変領域(338F–806R)を標的としてPCR増幅を行った。PCR産物を精製し、Illumina MiSeqプラットフォームを用いて2 × 300-bpペアエンドシーケンシングを実施した。クオリティフィルタリング後、1サンプルあたり平均68,450 ± 28,297本の高品質なクリーンリードが得られた(最大158,361本、最小28,294本)。配列を類似度97%でOTUにクラスター化した。希薄化曲線、豊富さ指数、および多様性指数を算出した。分類学的アノテーションはRDP Classifierを用いて行った。コミュニティの類似性を評価するため、UniFrac距離に基づくPCoAおよび階層的クラスター分析をRで実施した。有意に変動しているタクサを特定するため、GalaxyプラットフォームでLEfSe解析を行った(閾値:LDA > 3, Kruskal-Wallis p < 0.05, post-hoc Wilcoxon p < 0.05)。微生物量の多重比較にはBenjamini-Hochberg FDR補正を適用し、p(FDR) < 0.05を有意とした。
糞便中胆汁酸のLC-MS/MS分析
20 mgの糞便サンプルを200 µLのメタノールで均質化した。遠心分離後、上清を濃縮し、100 µLの50%含水メタノールで再構成して、LC-MS/MSを用いて分析した。検出システムには、Shimadzu UPLCシステムおよびApplied Biosystems 6500 QTRAP MS/MSシステムを使用した。胆汁酸標準物質の検量線を用いて定性および定量分析を行った。代謝プロファイルの分離を評価するためにPCAを用いた。変動のある胆汁酸は、VIP ≥ 1かつfold change ≥ 2または≤ 0.5と定義した。変動のあるBAの分布を可視化するためにバイオリンプロットを用いた。多重比較については、微生物データ分析と同様に、Benjamini-Hochberg FDR補正を適用した。
統計解析
Spearman相関は、Rのcor関数を用いて算出した。相関の有意性は、WGCNA RパッケージのcorPvalueStudent関数を用いて検定した。表現型データは平均値 ± 標準偏差(Mean ± SD)として的に示した。すべての多群間比較(表現型、微生物、代謝物)において、事後検定にBenjamini-Hochberg FDR補正を用いた一元配置分散分析(one-way ANOVA)を適用した。補正後の p < 0.05を統計的に有意とみなした。すべての解析はGraphPad Prism 7.00およびR 4.2.0を用いて行った。事後的なサンプルサイズの検出力計算は、G*Power 3.1を用いて行った。
結果
TCM処方はDSS誘発大腸炎における炎症および結腸損傷を改善する
TCM処方の保護効果を、まず体重変化によって評価した。対照群と比較して、UCモデル群では持続的な体重減少が認められた。BJQF、BSF、JPF、およびQCFはすべて、DSS誘発体重減少を有意に抑制した (図 1A)。HE染色では、対照群において結腸粘膜が維持されており、炎症は見られなかった。対照的に、モデル群の結腸組織では、激しい上皮の歪み、陰窩の破壊、および粘膜・粘膜下層への広範な炎症細胞浸潤が認められた。すべてのTCM治療により組織の回復が促進され炎症が軽減し、中でもBJQFで最も顕著な改善が認められた (図 1B–C)。定量的組織学的スコアリングにより、TCMが組織病理学的損傷を有意に改善することが確認された (p < 0.05)。
BJQF、BSF、JPF、およびQCFはいずれも、程度の差はあるものの血清IL-1β(図1D)およびTNF-α(図1F)を減少させた。治療群におけるIL-10レベルはコントロール群のレベルには達しなかったが、モデル群よりも有意に高かった(図1E)。これらの結果は、TCM処方がDSS誘発性腸管炎症を抑制することを示している。
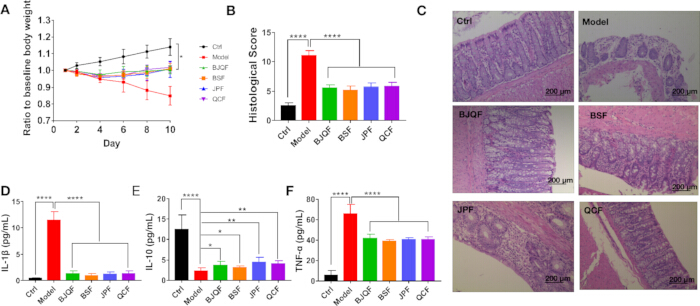
図 1: ラットのDSS誘発大腸炎に対するBJQFおよびその分解サブ処方の治療効果。(A>) 10日間の実験期間における各群のベースラインに対する体重比の動態変化;(B>) すべての実験群における結腸組織の定量的組織学的スコア;(C>) 各群の代表的なヘマトキシリン・エオシン (HE) 染色結腸組織切片(スケールバー = 200 µm);(D–F>) 各群の血清中炎症性サイトカイン濃度:(D>) IL-1β, (E) IL-10, (F) TNF-α。データは平均値 ± SDで表示。*p < 0.05, **p < 0.01, ****p < 0.0001。この図の拡大版を表示するには、ここをクリックしてください。
TCM治療はUCラットの腸内細菌叢のコミュニティ構造を再構築する
クオリティフィルタリング後、1サンプルあたり平均68,450 ± 28,297の高品質なクリーンリードが得られた。TCM治療は細菌のα多様性を変化させた(Chao1指数、Figure 2A)。BJQFは、UCラットで上昇したα多様性を有意に低下させた(p(FDR) < 0.05)。サブ処方の中では、JPFが多様性を有意に低下させたが(p(FDR) < 0.05)、BSFおよびQCFに有意な効果は見られなかった。β多様性については、UniFrac距離のunweighted PCoAにより群間で明確な分離が認められ、TCMが微生物組成全体を再構築したことが示された(Figure 2B)。さらに、階層的クラスター分析により、モデル群と治療群の間で明確なクラスター形成が確認された(Figure 2C)。
計13門、22綱、36目、65科、158属が検出された。門レベルでは、Firmicutes、Bacteroidetes、Actinobacteria、Verrucomicrobia、およびProteobacteriaが優占していた(>総存在量の99%、 図 2D). コントロール群では Firmicutes が優勢であり(86.98%)、UC 群では有意に減少していた(p(偽発見率) < 0.05)、およびTCMによって回復した(p(偽発見率) < 0.05)、BJQFが最も強い効果を示した。Bacteroidetes門およびProteobacteria門はUCにおいて有意に増加したが、すべてのTCM処方によってそれが回復した。属レベル(相対存在量 >1%, 図2E)、対照群ではLactobacillusが優勢であったが(59.77%)、UC(潰瘍性大腸炎)では著しく減少していた(3.57%、 p(偽発見率) < 0.05)、そしてTCMによって回復した(p(偽発見率) < (p < 0.05)。BJQFおよびJPFは、Lactobacillusの回復においてより強い効果を示した。UCでは、Bacteroides、Ruminococcus_2、Bifidobacterium、およびBlautiaが増加し、EnterorhabdusおよびCorynebacterium_1が減少したが、その大部分はTCMによって改善された。全体として、すべての処方がUCに関連する微生物叢のディスバイオーシスを改善し、BJQFおよびJPFが最も顕著な効果を示した。
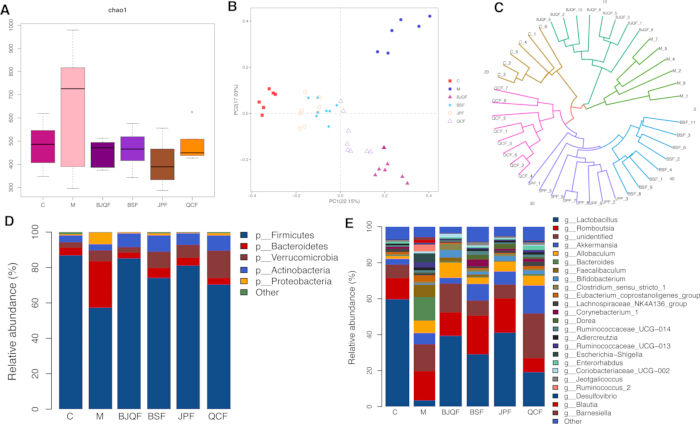
図 2: 群ごとの腸内細菌叢の組成。 (A) Chao 1を用いて評価した細菌のα多様性指数 (p(FDR) < 0.05 vs Model); (B) 各群のOTU組成および組成量に基づくUniFrac距離のPCoA; (C) 距離行列に基づく階層的クラスター分析; (D) 門レベルの相対存在量 (p(FDR) < 0.05 vs Model); および (E) 属レベルの相対存在量 (p(FDR) < 0.05 vs Model)。 ここをクリックして、この図の拡大版を表示してください。
LEfSeによるUC関連およびTCM関連の差異のある分類群の同定
群間で有意に濃縮されている分類群を同定するためにLEfSe解析を実施した(LDA > 3, p < 0.05, 図3)。UCで濃縮されていた分類群には、主にBacteroidetes門およびFirmicutes門に属するBacteroidaceae, Bacteroides, Clostridiales, Clostridia, Bacteroidia, Bacteroidales, Bacteroidetes, Faecalibaculum, Ruminococcaceaeが含まれていた。TCM治療後、BJQFで濃縮された分類群の大部分はFirmicutes門に属し、Actinobacteria門からはBifidobacteriaceae、Bifidobacteriales、Bifidobacteriumのみが認められた。BSFで濃縮された分類群も主にFirmicutes門であった。TuricibacterやDoreaなどのJPFで濃縮された分類群はFirmicutes門に属していた。QCFではVerrucomicrobia門(Akkermansiaを含む)の最も強い濃縮が示され、この門がQCF介入に対して高い感受性を持つことが示唆された。全般的に、BJQF、BSF、およびJPFに対して最も反応性が高かった門はFirmicutes門であった。
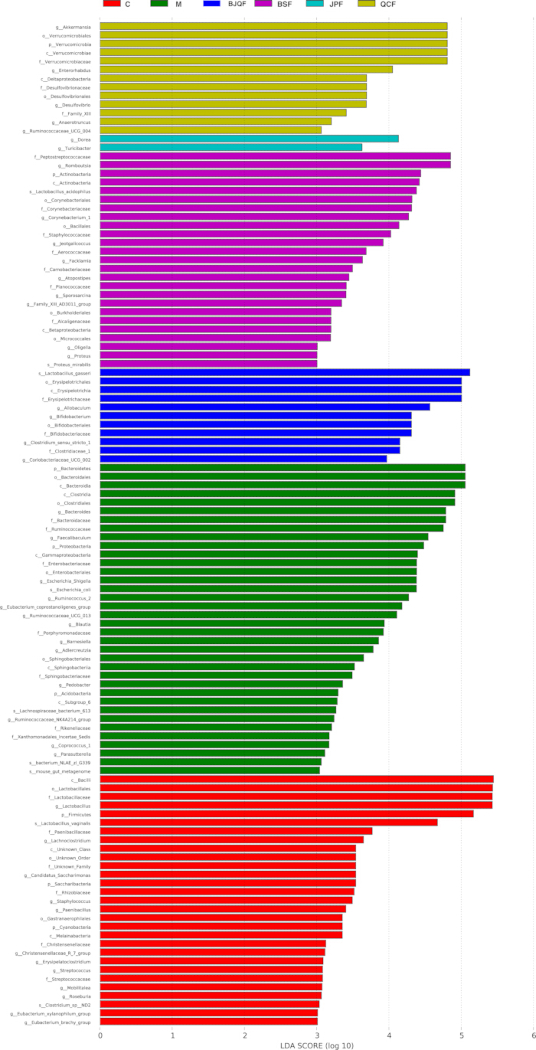
図3: LEfSeを用いて、異なる群間で最も変動幅の大きいOTUを特定した。 LDAスコアにおける有意な差(p < クラス間(Kruskal-Wallis検定)およびサブクラス間(Wilcoxon検定)で有意差(p < 0.05)が認められた。分画 taxa は、LDAしきい値スコアに基づいて決定された。 > 3および統計的有意水準0.05とした。(p: 門、c: 綱、o: 目、f: 科、g: 属)。 こちらの図の拡大版を表示するには、ここをクリックしてください。
TCM介入によりUCラットの糞便中胆汁酸プロファイルが正常化する
IBDにおけるBA吸収不良を考慮し、著者らはLC-MS/MSを用いて糞便中BAを定量した。PCAでは、コントロール群とモデル群の間で明確な分離が見られた一方、すべての治療群はコントロール群に近いクラスターを形成しており、BA代謝の一部が正常化したことが示された(Figure 4A)。モデル群で最も変動したBAは、増加したLCA-3Sと減少したGDCAであった(Figure 4B)。治療後、最もアップレギュレートされたBAはILCA (BJQF)、GCDCA (BSF)、DLCA (JPF)、およびGCDCA (QCF)であり、最もダウンレギュレートされたBAはTLCA-3S (BJQF)、LCA-3S (BSF)、LCA-3S (JPF)、およびTLCA-3S (QCF)であった(Figure 4C–F)。バイオリンプロットにより、群間での共通の変動BAを可視化した(Figure 5)。特筆すべき点として、すべてのTCM処方において23-DCA、3-oxo-DCA、およびDLCAが増加し、HCA、LCA-3S、TCA、およびTLCA-3Sが減少した。
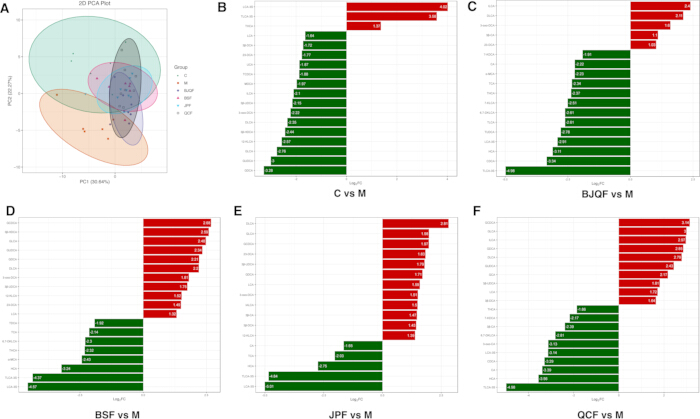
図4: UCモデルにおけるDSS誘発性胆汁酸異常に対するTCM処方の調節作用。 (A) Control群、Model群、BJQF群、BSF群、JPF群、およびQCF群の胆汁酸のPCAプロット。 (B) Model群とControl群の比較における倍率変化の棒グラフ。 (C) BJQF群とModel群の比較における倍率変化の棒グラフ。 (D) BSF群とModel群の比較における倍率変化の棒グラフ。 (E) JPF群とModel群の比較における倍率変化の棒グラフ、および (F) QCF群とModel群の比較における倍率変化の棒グラフ。 こちらのリンクをクリックして、この図の拡大版を表示してください。
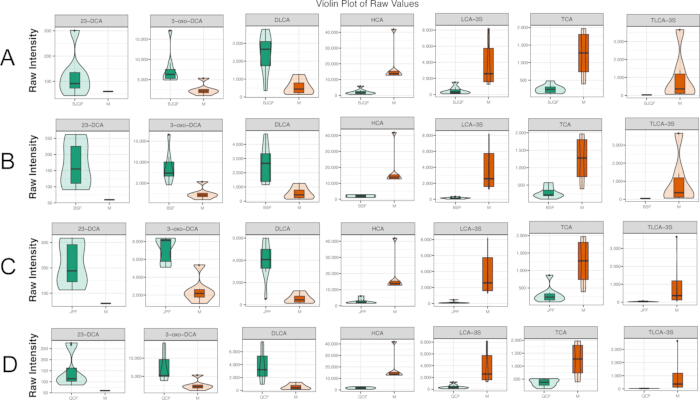
図5: 各比較群におけるBAsの変動を示すバイオリンプロット。 (A>) BJQF群とModel群におけるBAsの変動。 (B>) BSF群とModel群におけるBAsの変動。 (C>) JPF群とModel群におけるBAsの変動、および (D>) QCF群とModel群におけるBAsの変動。こちらのリンクをクリックして、この図の拡大版を表示してください。
糞便中胆汁酸と腸内細菌叢の豊富さとの相関
門レベルで有意差のあった分類群と、有意差のあったBAとの間でSpearman相関分析を行った(Figure 6A–F, Figure 7A–D)。コードチャートは|r| ≥ 0.8の相関を示している(Figure 6B, 6D, 6F)。モデル群対コントロール群の比較では、23-DCAはSaccharibacteriaおよびFirmicutesと正の相関を示し、ProteobacteriaおよびBacteroidetesと負の相関を示した(Figure 6B)。BJQF群対モデル群の比較では、ProteobacteriaはTLCA-3S、LCA-3S、TCA、α-MCA、6,7-DKLCA、HCA、CDCA、およびTHCAに関連していた(Figure 6D)。BSF群対モデル群の比較では、ProteobacteriaはTDCA、6,7-DKLCA、およびLCA-3Sと正の相関を示し、SaccharibacteriaはGUDCAおよび23-DCAと正の相関を示した(Figure 6F)。
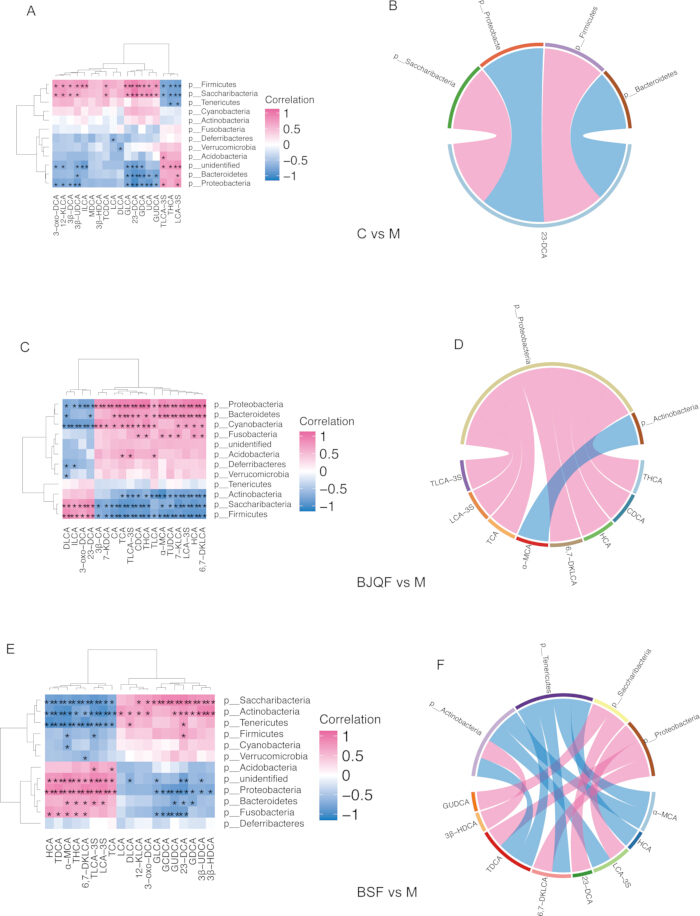
図6糞便中の差異のある胆汁酸(BA)と、門レベルでの差異のある細菌の存在量との相関。 (A, C, E) Control群対Model群、BJQF群対Model群、およびBSF群対Model群における、それぞれでのスピアマン相関分析。 (B, D, F) それぞれ、Control群 vs Model群、BJQF群 vs Model群、およびBSF群 vs Model群における強い相関(|r| ≥ 0.8)を示す対応するコードチャート。 こちらの図の拡大版を表示するには、ここをクリックしてください。
コードチャートは、|r| ≥ 0.8の相関を示しています(図 7B, 7D)。JPF対モデルの比較では、SaccharibacteriaはTLCA-3S、LCA-3S、およびHCAと負の相関があり、23-DCAと正の相関がありました(図 7B)。QCF対モデルの比較では、SaccharibacteriaはHCA、CA、LCA-3S、THCA、およびTLCA-3Sと負の相関があり、23-DCAと正の相関がありました(図 7D)。これらの結果は、異なるTCM処方が異なるパターンを通じて細菌・胆汁酸(BA)相互作用ネットワークを調節していることを示しています。
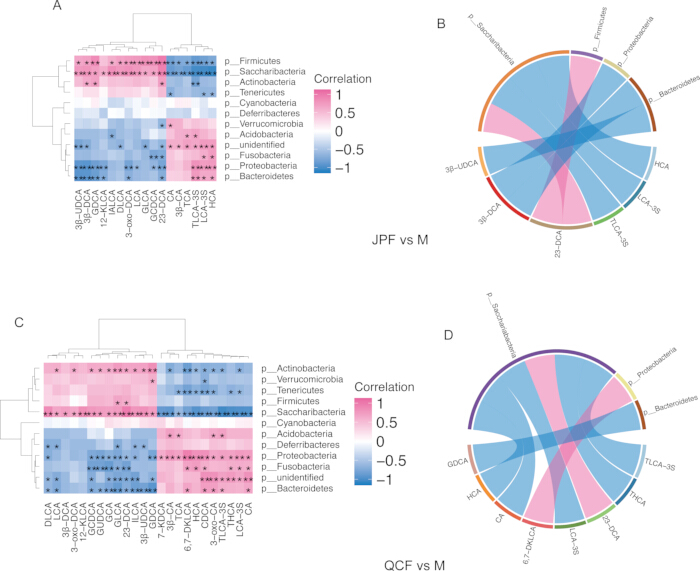
図7糞便中の差異のある胆汁酸(BA)と、差異のある細菌の存在量との相関。 (A, C) JPF対モデル群およびQCF対モデル群における、それぞれの手法によるスピアマン相関分析。 (B, D) それぞれJPF対モデルおよびQCF対モデルのグループにおいて、強い相関(|r| ≥ 0.8)を示すコードチャート。赤色は正の相関を、青色は負の相関を示す。 p < 0.05, p < 0.01. この図の拡大版を表示するには、ここをクリックしてください。
データの可用性:
すべての生データは、NCBI Sequence Reads Archive (SRA) データベース(アクセッション番号:PRJNA749732)にアップロードされています。https://www.ncbi.nlm.nih.gov/bioproject/PRJNA749732
ディスカッション
本研究では、腸内細菌叢-胆汁酸代謝軸を介して、BJQFおよびその分解処方がDSS誘発潰瘍性大腸炎(UC)を軽減させる治療メカニズムを調査しています。このマルチオミックス解析により、BJQFはUCに関連する細菌叢の乱れを回復させ、糞便中の胆汁酸(BA)プールを正常化することで抗大腸炎効果を発揮することが示唆されました。また、その分解処方はモジュール特有の異なる調節効果を示し、特にJPFは全処方(BJQF)に最も近い有効性を示したことから、健脾戦略の中核的な役割が明らかになりました。さらに著者らは、細菌叢の再構築とUCの改善を繋ぐ主要なBAノードとして23-DCAを、また潜在的な有効性バイオマーカーとしてTLCA-3S/LCA-3Sを同定しました。
BJQFによる微生物叢のディスバイオシスの回復は、胆汁酸(BA)プールの正常化および炎症の軽減に関連している可能性がある。潰瘍性大腸炎(UC)は免疫・微生物叢・代謝ネットワークの調節不全によって引き起こされ、主要な門(phyla)の不均衡は、患者および動物モデルの両方における典型的な特徴である10。これらの結果は、DSS誘発UCラットにおいてFirmicutesおよびLactobacillusが減少し、BacteroidetesおよびProteobacteriaが増加することを確認しており、これはUCの臨床的プロファイルと一致している11。BJQFおよびJPFがこれらの異常を最も効果的に改善し、BSFおよびQCFは中程度の効果を示した。LactobacillusやClostridiumなどのFirmicutes分類群が、二次BA生合成のための主要な酵素機構を保有していることが十分に文書化されていることから12、以下のような潜在的な関連性が示唆される。すなわち、BJQF、特にそのJianpiモジュールが、BA生合成能を持つFirmicutesを回復させ、それが二次BAの生物学的変換を促進し、代謝異常を矯正する可能性があるということである。属レベルでは、BJQFおよびJPFはBacteroides、Ruminococcus_2、Enterorhabdus、およびCorynebacterium_1におけるUC誘発性の変化も改善し、ディスバイオシスおよびBA合成関連機能をさらに修復した。
微生物叢のディスバイオーシスの回復は、抗炎症作用の重要な代謝メカニズムである胆汁酸(BA)プールの正常化に寄与している可能性があります。BA代謝は微生物活性に強く依存しており、二次胆汁酸は免疫恒常性とバリア機能の維持に不可欠です13。LC-MS/MSデータは、UCラットにおいて保護的に作用する二次胆汁酸(23-DCA、3-oxo-DCA、DLCA)が減少し、硫酸抱合BA(TLCA-3S、LCA-3S)が蓄積していることを示しており、これはUCに関連するBA調節不全に関する先行報告と一致しています14。硫酸抱合BAは腸管吸収性が低く、腸肝循環に入ることができません15。そのため、これらの蓄積はBA代謝の障害を反映しており、前炎症経路の活性化に関連しています16。すべての処方によってこの乱れが改善されましたが、特にBJQFとJPFで最も強い効果が認められました。
相関分析により、23-DCAが主要な門の変化に関連する鍵となるBAノードであることが確認されました。具体的には、Firmicutesと正の相関があり、Proteobacteriaと負の相関があります。抗炎症作用およびバリア保護効果を持つ二次BAとして17、BJQF/JPFによる23-DCAの上昇は、Firmicutesの増加と生合成の亢進に起因している可能性があり、サイトカインの減少および組織学的改善と相関しています。これらの相関関係に基づき、著者らは次のような仮想的なメカニズムモデルを提案しています:BJQFがFirmicutesの量を回復させ > 微生物による二次BAの生合成を亢進し > 保護的な23-DCAを増加させ > 腸管炎症を抑制する。このモデルについては、今後、機能的実験による検証が必要です。
本研究では、BJQFの機能モジュールを特定の微生物および代謝の変化にマッピングすることで、中医学(TCM)理論と現代の分子生物学を橋渡ししました。その中核となる連携概念が「健脾(Jianpi)」です。「脾腎互補(spleen and kidney mutual reinforcement)」という中医学理論18と一致して、BSFではFirmicutesの中程度の濃縮と23-DCAの上方調節が認められました。一方、QCFは主にVerrucomicrobia(Akkermansia)を濃縮し、ゼノバイオティクス代謝を調節しており、これは「清熱除湿(clearing dampness-heat)」の効果を反映しています。全処方は、単一のモジュールを上回る相乗効果を発揮しており、証に基づいた中医学の複合処方設計の合理性が検証されました。
相関分析により、各処方によって形成される異なる細菌–胆汁酸(BA)相互作用ネットワークがさらに明らかになりました。これらの違いはモジュール特異的な調節特性を反映しており、個別の臨床応用の根拠となります。すなわち、Firmicutes中心のディスバイオーシスを伴う脾虚主体のUCにはJPFを、粘膜バリア損傷を伴う湿熱主体のUCにはQCFを、そして典型的な複合症候群にはBJQF全処方を適用します。これらの知見と一致して、近年の研究でも、腸内細菌叢–胆汁酸軸がUCおよび中医学(TCM)介入の主要な治療標的であることが支持されています19,20,21,22。微生物叢のディスバイオーシスに起因する二次胆汁酸の欠乏は活動性UCの核心的な特徴であり、BAの恒常性を回復させることで炎症と粘膜損傷を効果的に軽減できます23。
本研究にはいくつかの限界がある。第一に、微生物叢のリモデリングと胆汁酸(BA)の正常化との間のすべての関連性は、相関的なマルチオミクス解析に基づいたものであり、糞便微生物移植などの機能的実験によって因果関係が検証されていない。第二に、サンプルサイズが比較的限定的であり、統計的な検出力や汎用性が制限される可能性がある。第三に、糞便中のBAのみを定量化しており、腸肝循環を反映する血清および粘膜のBAプロファイルは測定していない。第四に、微生物叢およびBAの調節を担う具体的な活性フィトケミカルが特定されていない。今後の研究では、FMT(糞便微生物移植)および無菌動物実験を通じて因果関係を検証し、BJQFの主要な活性成分を同定し、臨床パイロット研究を実施してトランスレーショナルな価値を検証する予定である。
開示事項
著者は開示すべき事項はありません。
著者の寄与:
Hongyu Chenは、概念化、方法論、検証、形式分析、調査、視覚化、および原稿の初稿執筆に寄与した。Song Zhaoは、方法論、プロジェクト管理、調査、視覚化、資金獲得、および原稿の初稿執筆に寄与した。Luzhou Xuは、概念化、リソース提供、原稿の査読および編集、プロジェクト管理、および研究全体の監督に寄与した。
謝辞
本研究は、中国国家自然科学基金 (81774243) の支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.2 mL PCR Tubes | Axygen | PCR-02-C | For 16S rRNA gene PCR amplification reactions |
| 1.5 mL Sterile Centrifuge Tubes | Axygen | MCT-150-C | Sterile containers for sample collection, storage and centrifugation |
| 10% Neutral Buffered Formalin | Solarbio Science & Technology | 1008128 | For fixation of colon tissue specimens |
| 6500 QTRAP MS/MS System | Sciex | 5009065 | For MRM-based quantitative profiling of fecal bile acids |
| -80 ºC Ultra-low Temperature Freezer | Thermo Fisher Scientific | 702-UR | For cryopreservation of fecal samples and biological specimens |
| Agarose | Sigma-Aldrich | A9539 | For DNA integrity detection via gel electrophoresis |
| Alpiniae Oxyphyllae Fructus | Nanjing TCM Co., Ltd. | Batch 20230321 | Raw herbal material, 15 g per dose, used in BJQF and BSF |
| Astragali Radix | Nanjing TCM Co., Ltd. | Batch 20230312 | Raw herbal material, 15 g per dose, used in BJQF and JPF |
| Aucklandiae Radix | Nanjing TCM Co., Ltd. | Batch 20230217 | Raw herbal material, 6 g per dose, used in BJQF and QCF |
| Bile Acid Standard Mix | Sigma-Aldrich | B4893 | For qualitative and quantitative calibration of fecal bile acids |
| Coptidis Rhizoma | Nanjing TCM Co., Ltd. | Batch 20230118 | Raw herbal material, 4 g per dose, used in BJQF and QCF |
| Dextran sulfate sodium (DSS, 36–50 kDa) | MP Biomedicals | 160110 | For rat UC induction, prepared as 3.5% (wt/vol) drinking solution for 10 consecutive days |
| Glycyrrhizae Radix | Nanjing TCM Co., Ltd. | Batch 20230411 | Raw herbal material, 5 g per dose, used in BJQF and JPF |
| GraphPad Prism | GraphPad Software | v7.00 | For statistical analysis, significance testing and scientific graph plotting |
| Hematoxylin-Eosin (H&E) Staining Kit | Beyotime Biotechnology | C0105S | For colon tissue section staining, histopathological observation and inflammation scoring |
| High-speed Refrigerated Centrifuge | Eppendorf | 5810R | For sample centrifugation in nucleic acid extraction and metabolomics preparation |
| HPLC-grade Methanol | Merck KGaA | 1.06007.4008 | For LC-MS/MS sample preparation and mobile phase preparation |
| Illumina MiSeq Sequencing Platform | Illumina Inc. | SY-410-1003 | For 16S rRNA gene high-throughput sequencing and gut microbiota profiling |
| KEGG Database | Kanehisa Laboratories | Release 107.0 | For microbial functional pathway annotation |
| Male SPF-grade SD rats | Shanghai Xipu-Bikai Experimental Animal Co., Ltd. | / | 44 rats weighing 200 ± 20 g, for UC model construction and follow-up experiments |
| Multiskan™ GO Microplate Reader | Thermo Fisher Scientific Oy | 51119080 | For ELISA absorbance reading and cytokine quantification |
| NanoDrop 2000 Spectrophotometer | Thermo Fisher Scientific | ND-2000 | For quantification and purity assessment of fecal bacterial genomic DNA |
| Paraffin Embedding Cassettes | Leica Biosystems | 3801520 | For colon tissue dehydration and paraffin embedding |
| PowerFecal® DNA Isolation Kit | MoBio (Qiagen) | 12830-50 | For extraction and purification of fecal bacterial genomic DNA |
| Psoraleae Fructus | Nanjing TCM Co., Ltd. | Batch 20230129 | Raw herbal material, 15 g per dose, used in BJQF and BSF |
| R Statistical Environment | R Foundation for Statistical Computing | v4.2.0 | For bioinformatics analysis and statistical computing |
| Rat IL-10 ELISA Kit | Lun Chang Shuo Biotech | YD-30194 | For quantitative detection of serum IL-10 concentration |
| Rat IL-1β ELISA Kit | Lun Chang Shuo Biotech | YD-30206 | For quantitative detection of serum IL-1β concentration |
| Rat TNF-α ELISA Kit | Lun Chang Shuo Biotech | YD-31063 | For quantitative detection of serum TNF-α concentration |
| Sanguisorbae Radix | Nanjing TCM Co., Ltd. | Batch 20230309 | Raw herbal material, 10 g per dose, used in BJQF and QCF |
| Scutellariae Radix | Nanjing TCM Co., Ltd. | Batch 20230407 | Raw herbal material, 10 g per dose, used in BJQF and QCF |
| Shim-pack UFLC UPLC System | Shimadzu Corporation | CBM-20A | For chromatographic separation of fecal bile acid samples |
| Stir-fried Atractylodis Macrocephalae Rhizoma | Nanjing TCM Co., Ltd. | Batch 20230225 | Raw herbal material, 10 g per dose, used in BJQF and JPF |
参考文献
- Gilbert JA, et al. Current understanding of the human microbiome. Nat Med. 2018;24(4):392-400.
- Fiorucci S, et al. Bile acid signaling in inflammatory bowel diseases. Dig Dis Sci. 2021;66(3):674-693.
- Sinha SR, et al. Dysbiosis-induced secondary bile acid deficiency promotes intestinal inflammation. Cell Host Microbe. 2020;27(4):659-670.e5.
- Zhan K, et al. Gut microbiota-bile acid crosstalk in diarrhea-irritable bowel syndrome. Biomed Res Int. 2020;2020:3828249.
- Zhang C, Jiang M, Lu A. Considerations of traditional Chinese medicine as adjunct therapy in the management of ulcerative colitis. Clin Rev Allergy Immunol. 2013;44(3):274-283.
- Zhang S, et al. Consensus on Chinese medical diagnosis and treatment of ulcerative colitis (2009). Chin J Integr Tradit West Med. 2010;30(5):527-532.
- Chen YL, et al. Systems pharmacology approach reveals protective mechanisms of Jian-Pi Qing-Chang decoction on ulcerative colitis. World J Gastroenterol. 2019;25(21):2603-2622.
- Hu J, et al. Qingchang Huashi Formula attenuates DSS-induced colitis in mice by restoring gut microbiota-metabolism homeostasis and goblet cell function. J Ethnopharmacol. 2021;266:113394.
- Cooper HS, et al. Clinicopathologic study of dextran sulfate sodium experimental murine colitis. Lab Invest. 1993;69(2):238-249.
- Zuo T, Ng SC. The gut microbiota in the pathogenesis and therapeutics of inflammatory bowel disease. Front Microbiol. 2018;9:2247.
- Kobayashi T, et al. Ulcerative colitis. Nat Rev Dis Primers. 2020;6(1):74.
- Wahlström A, Sayin SI, Marschall HU, Bäckhed F. Intestinal crosstalk between bile acids and microbiota and its impact on host metabolism. Cell Metab. 2016;24(1):41-50.
- Joyce SA, Gahan CGM. Bile acid-microbiota crosstalk in inflammatory bowel disease. Nat Rev Gastroenterol Hepatol. 2020;17(11):694-707.
- Duboc H, et al. Connecting dysbiosis, bile-acid dysmetabolism and gut inflammation in inflammatory bowel diseases. Gut. 2013;62(4):531-539.
- Alnouti Y. Bile acid sulfation: A pathway of bile acid elimination and detoxification. Toxicol Sci. 2009;108(2):225-246.
- Ungaro R, et al. Ulcerative colitis. Lancet. 2017;389(10080):1756-1770.
- Tang Y, Li Y, Zhang L, et al. 23-Deoxycholic acid ameliorates colitis by regulating gut microbiota and activating FXR signaling. J Ethnopharmacol. 2022;298:115463.
- Lu YH, Cong LL, Zhang Y. TCM syndrome classification and its correlation with gut microbiota in ulcerative colitis. Chin J Integr Tradit West Med. 2020;40(7):867-871.
- Zhang Y, Li X, Wang H. Traditional Chinese medicine for inflammatory bowel disease: From empirical therapy to mechanism-based treatment. J Ethnopharmacol. 2022;296:115347.
- Li J, Wang Y, Zhang L, et al. Targeting the gut microbiota-bile acid axis: a novel strategy for TCM compound prescriptions in treating chronic inflammatory diseases. Pharmacol Res. 2023;192:106589.
- Abdo W, et al. Gut Microbiota and Bile Acid Metabolism in Inflammatory Bowel Disease: Pathophysiological Links and Therapeutic Implications. Arch Med Res. 2023;54(8):789-801.
- Liu M, et al. Traditional Chinese Medicine Targeting Gut Microbiota-Bile Acid Axis for Ulcerative Colitis: A Systematic Review. Arch Med Res. 2022;53(6):542-553.
- Chen L, et al. Secondary Bile Acids as Key Mediators of Intestinal Mucosal Barrier Protection in Inflammatory Bowel Disease. Arch Med Res. 2023;54(2):189-200.