本プロトコルでは、箱クラゲTripedalia cystophoraの単離した触手感覚器(rhopalium)から、視覚誘発性のスイムペースメーカー信号を細胞外電気生理学的に記録する方法について解説します。これにより、障害物回避行動を定量的に読み取ることが可能となり、視覚情報処理および感覚運動統合の詳細な調査が行えます。
方法論記事
Tripedalia cystophoraの単離した触手輪(Rhopalium)からの視覚誘発性遊泳ペースメーカー信号の細胞外電気生理学的記録
この記事について
サマリー
要約
ボックスクラゲのTripedalia cystophoraは、像を結ぶレンズ眼と十分に解析された視覚誘導行動を、約100個のニューロンからなる扱いやすい触手根神経系(rhopalial nervous system)と併せ持っており、視覚情報処理および感覚運動統合のシステムレベルの調査における新たなモデル生物となっています。遊泳ペースメーカーニューロンは、傘の収縮を直接制御する運動指令を生成し、これらの信号は単離したrhopaliumの表皮茎神経から細胞外記録することが可能です。これにより、視覚駆動型の運動出力の定量的な指標が得られます。ペースメーカー信号のカウント数と瞬時周波数から導出される標準化された神経活動として定量化されるペースメーカー応答の強度は、決定遷移閾値(DTT)を超える刺激コントラストに応じて変化するため、視覚駆動型の感覚運動統合の段階的な評価が可能になります。本プロトコルでは、細胞外吸引電極の作製、rhopaliumの単離、記録チャンバーの構成、下側レンズ眼への視覚刺激の提示、ハードウェアレベルでの刺激タイミングの検証、表皮茎神経への電極配置、および標準的な実験室用ハードウェアを用いた電気生理学的データと刺激データの同期取得について解説します。
概要
神経系がどのように感覚情報を処理し、それを適応的な行動に変換するかを理解することは、神経科学における中心的な課題です。約200,000個のニューロンを持つ脳により、神経回路構成の詳細な解析が可能となったDrosophila melanogasterなどの大型で複雑なモデル生物や、高度なイメージングおよび回路マッピングツールを備えたその他の遺伝学的に扱いやすいモデルにおいて、大きな進展がありました1。しかし、これらのシステムの複雑さゆえに、感覚入力、神経計算、および行動出力の間の関係をシステムレベルで完全に理解することは困難です。複雑さのスペクトルの反対側では、302個のニューロンで構成されるCaenorhabditis elegansなどの、完全にマッピングされた小規模なシステムや、その他の最小ニューロン数モデルが扱いやすいサイズを提供していますが、これらには像を形成する目や、それに依存する視覚誘導行動が欠けています2。
Tripedalia cystophora(カリブ海ボックスジェリーフィッシュ、図1A)は、システムレベルの視覚情報処理と感覚運動統合の中間に位置するユニークな特性を有しており、これらの研究におけるモデル系として注目されています3。本プロトコル(図1)は、この動物が持つ実験的ポテンシャルを神経科学コミュニティ全般で活用できるように設計されています。
T. cystophoraは、その神経系の複雑さに比して、著しく洗練された視覚系を有しています。ロパリアと呼ばれる4つの感覚構造のそれぞれに6つの眼があり、その中には2つの結像レンズ眼、すなわち上レンズ眼(ULE)と下レンズ眼(LLE)が含まれます4(図1B)。これらは単純な光受容器官ではなく、脊椎動物の眼にも見られるマッティセン型(Matthiessen type)の傾斜屈折率レンズを備えており、LLEに約600個、ULEに約400個の光受容体が二次ニューロンに直接連結した反転網膜を有しています5,6,7。脊椎動物のc-opsinに相同なcnidops opsinおよび関連する光・電気変換成分を含む光受容機構の分子組成から8,9,10、これらが過分極型光受容体であることが強く示唆されており、T. cystophoraの視覚系は、独立して進化したものであるにもかかわらず、脊椎動物の眼と機能的に同じ広範なカテゴリーに分類されます。
極めて重要なのは、これらの光学的な投資が、実験的に特性評価可能な、精巧に視覚誘導された行動と一致していることです。T. cystophoraは、生息域内での位置を維持するために媒介される長距離航行と光束検知11,12、および没した支柱根を回避して航行するための障害物回避行動12,13,14を用いて、光学的に複雑なマングローブの生息地を移動します。本研究の基礎となる神経行動学的な枠組みでは、言語を持たない動物における感覚処理の唯一の有効な読み出しは行動であるとしています。動物に何が見えているかを尋ねることはできないため、実験計画は動物が検知し理解できる刺激、および動物が実行可能な行動に適応させなければなりません。これは、実験的な問いが研究者の視点ではなく、動物の視点から策定されなければならないことを意味します。T. cystophoraの障害物回避行動はこの原則を体現しています。箱クラゲの表皮はわずか単層の細胞厚であり、没した支柱根に衝突すると、その脆弱な身体への損傷により致命的になる可能性があります。感覚器(rhopalium)間の統合は環状神経を介して下流でのみ行われるため15、単一の感覚器神経系(RNS)が、立体視の視差から奥行きを計算するために必要な重複する両眼入力yを受け取ることはありません。その代わりに、この動物は水中光学の基本的な特性、すなわち物体と周囲の水のコントラストは距離が増すにつれて急速に減衰するという特性を利用しています。したがって、高コントラストの障害物は至近の障害物であり、即座に脅威となるものであり、低コントラストの障害物は遠くにあり、まだ脅威ではありません。この動物はコントラストを距離の代用指標として使用しています16。自由行動下にある動物において、障害物回避行動(OAB)はgo/no go決定に基づいています。動物が決定遷移閾値(DTT)を超えるコントラストの水中障害物を検知したときにイベントがトリガーされます。DTTとは、障害物が脅威となるほど十分に接近していると見なされる閾値であり、これによりgo反応、すなわち3~5回の急速なベルの収縮、120~180°の旋回、および障害物から離れる急速な遊泳が開始されます14 (Figure 1C)。DTTを超えた際の段階的なペースメーカー反応は、脅威の緊急性の段階的な強さを反映しています16。したがって、OABは感覚運動統合のための非常に扱いやすい行動アッセイを提供します。単一の明確に定義された視覚パラメータ(コントラスト)が、定型的で定量可能な運動出力を制御しており、視覚駆動型の意思決定の神経学的基礎を調査するための理想的な系となっています。
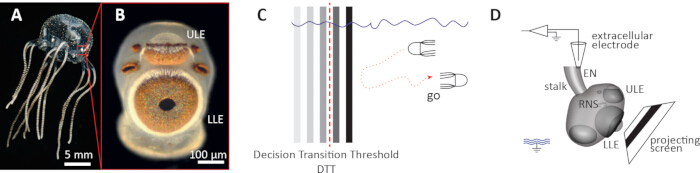
図1〜の概要 Tripedalia cystophora 細胞外電気生理学的記録のための分離した触角器の調製。 (A成人 *T. cystophora* メデューサ。スケールバー:5 mm。赤色の枠は、ベル縁にある1つの感覚器(rhopalium)の位置を示す。B単離したロパリウムの接写。上レンズ眼(ULE)と下レンズ眼(LLE)は像形成眼である。スケールバー: 100 µm画像:Dan-Eric Nilsson、許可を得て転載。C) 障害物回避行動(OAB)の模式図。決定遷移しきい値(DTT、赤色破線)を下回る場合、動物は障害物に向かって泳ぎ続ける(no go)。DTTを上回ると、障害物回避行動が開始される(go)。(D) 単離した触手盤(rhopalium)の電気生理学的準備の模式図。触手盤は、傾斜した投影スクリーンに向くように配置されている。細胞外電極により、表皮茎神経(EN)から遊泳ペースメーカー信号を記録する。RNS:触手盤神経系、ULE:上レンズ眼、LLE:下レンズ眼、EN:表皮茎神経。接地点の記号は、バス参照電極を示す。 この図の拡大版を表示するには、ここをクリックしてください。
この視覚処理を媒介する神経基盤はRNSであり、1つの触手体(rhopalium)あたり約1000個のニューロンで構成されています17。ニューロン数は限定的であるものの、RNSは構造的に洗練されています。免疫組織化学的な証拠から、RNSは異なるニューロペプチドプロファイルを発現する個別のニューロンクラスターに組織化されていることが示唆されており18、これは区画化された処理アーキテクチャと一致しています。視覚情報は、触手体上の特定の眼それぞれに関連付けられた下位振動クラスター(subOCs)を通じて処理され、それらが末端振動クラスター(trmOC)へと収束することが示唆されています。このtrmOCは、ベルの収縮を制御する運動出力信号を生成するペースメーカー細胞群に相当すると考えられています3。我々は、trmOCがsubOCsからの処理済み感覚情報を統合し、行動的な運動出力を駆動する遊泳ペースメーカー信号を生成すること、そしてsubOCsとtrmOCの間の同期が、視覚入力を行動制御出力へと変換する基盤となっていることを提案します3(図2)。
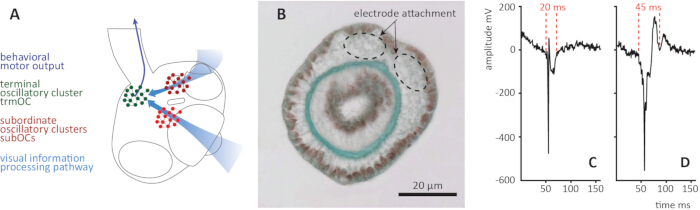
図2における遊泳ペースメーカー信号の神経回路の起源および電気生理学的同定 Tripedalia cystophora. (A) 触手盤神経系の概略図。視覚情報は、個々の眼に付随する下位振動クラスター(subOC、赤色)を介して処理され、終末振動クラスター(trmOC、緑色)に集約される。trmOCは、subOCから処理された感覚情報を統合し、行動的な運動出力を駆動する遊泳ペースメーカー信号を生成すると提案されている。水色の矢印は視覚情報処理経路を、濃い青色の矢印は行動的な運動出力を示す。(B) 切断された表皮柄表面のTEM顕微鏡写真。点線の円は、柄の口側表面における分枝した表皮柄神経の2つの付着点を示しており、これは記録電極の配置部位に対応している。(C) 活動電位様信号。波形は、持続時間が約20 msの鋭く狭い偏向(赤色の破線で表示)を特徴とする。(DtrmOC由来の遊泳ペースメーカー信号。波形はより幅広く、特徴的な持続時間は約45 msであり(赤色の破線で表示)、複数のtrmOCニューロンの総和活性を反映した複合的な形態を示す。2つの信号タイプの振幅は同等であるが、波形の持続時間と形態が下流解析における信頼性の高い識別基準となる。すべての電気生理学的値は増幅後(×1000)のものである。Bieleckiらの許可を得て改変。24. この図の拡大版を表示するには、ここをクリックしてください。
このアーキテクチャは、卓越した実験的機会を創出します。trmOCによって生成される遊泳ペースメーカー信号は、ベルの収縮を厳密に1対1の形式で駆動し19、単離した触手盤(rhopalium)の表皮茎神経から細胞外に記録することが可能です13,20。これは、視覚誘発性の運動指令、ひいては視覚誘導性の行動反応を、運動エフェクター自体が完全に除去された標本において、電気生理学的手法を用いてモニタリングできることを意味します14。したがって、単離した触手盤は、他のシステムでは達成が困難な手法的な中間領域を占めています。すなわち、時空間的な視覚刺激の精密な規定を含む、簡略化された標本による実験的制御を可能にしつつ、行動に関連する神経出力の直接的かつ定量的な読み出しを維持しています。非刺激条件下では、ペースメーカー信号は0.5–1 Hzで発生しますが、視覚誘発性の障害物回避反応では2–3 Hzへと増加することが特徴であり、これにより解析のための明確な信号ウィンドウが提供されます14(図 1D)。
これらの特性を併せ持つことで、T. cystophoraから単離した吻触手(rhopalium)標本は、視覚処理および感覚運動統合のシステムレベルの研究に適しています。本標本は、像を形成する眼と十分に特性解析された視覚誘導行動を持つ、扱いやすい神経系において、視覚処理、感覚運動統合、または振動ネットワークダイナミクスを調査しようとする研究者に適しています4。本手法には標準的な電気生理学装置、改造した市販のプロジェクター、および解剖顕微鏡が必要であり、専門的なインフラ設備のない研究室でも構築可能です。本標本について既報の、視覚刺激と機械的な感覚刺激を同時に提示する連合機械視覚学習パラダイム14は、ここに記載する基本的な記録プロトコルの拡張として実施できます。
プロトコル
本研究において、動物実験の倫理承認は不要でした。Tripedalia cystophoraを含む刺胞動物は、頭足類と脊椎動物のみに適用される科学的目的で使用される動物の保護に関する指令 2010/63/EU の範囲外です。本研究に使用した動物は、遺伝資源へのアクセスおよび利益配分に関する名古屋議定書の締約国ではない、米国プエルトリコのラ・パルゲラ沖のマングローブ creek から採取されました。したがって、事前の十分な情報に基づく同意(PIC)や、アクセスおよび利益配分(ABS)に関する合意は必要ありませんでした。Tripedalia cystophoraは、CITESまたは適用可能な国内の保存法によって絶滅危惧種または保護種として指定されていません。
1. ステージおよびシグナルチェーンのセットアップ
注:すべてのハードウェア構成部品とその接続は図3に示されています。本セクションを通じて図3を参照してください。本セクションのすべての工程は、動物を取り扱う前に完了させておく必要があります。この段階では、記録チャンバーに海水は満たされていません。
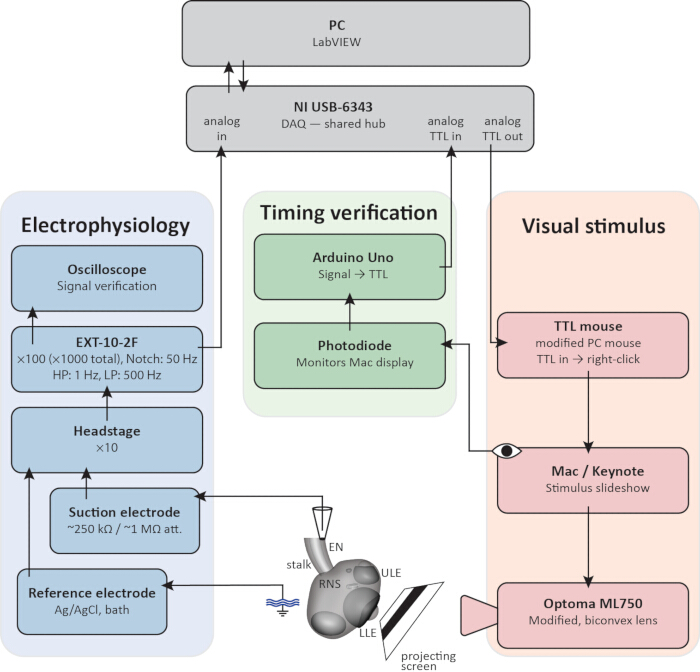
図3: 孤立した触手神経系(rhopalium)の細胞外電気生理学準備のための接続図。 VIおよびDAQを実行しているPC(上部、灰色)が、3つの信号チェーンすべての共通統合ハブとして機能します。電気生理学チェーン(青):スイムペースメーカー信号は、吸引電極(先端開放時 約250 kΩ、装着時 約1 MΩ)とバスに適用したAg/AgCl参照ペレット電極を介して表皮茎神経(EN)から記録され、EXT-10-2Fヘッドステージ(×10)およびメインアンプ(×100、合計×1000)で増幅され、バンドパスフィルター(HP: 1 Hz, LP: 500 Hz)および50/60 Hzノッチフィルター処理が施された後、オシロスコープで監視され、DAQによって取得されます。視覚刺激チェーン(赤):DAQのTTLパルスが、改造したPCマウス(TTLマウス)を介して刺激スライドショーを進め、DLPプロジェクター(改造済み、双凸レンズ)を駆動して、下レンズ眼(LLE)の前にある記録チャンバーの傾斜スクリーン壁に刺激を投影します。タイミング検証チェーン(緑):フォトダイオードが、刺激開始時に白から黒に切り替わり、終了時に白に戻るコンピュータディスプレイ上の白黒インジケーター正方形を監視します。Arduino Unoがこの信号をTTLパルスに変換し、検証済みの刺激ウィンドウとしてDAQによって記録されます。RNS: 触手神経系(rhopalial nervous system);ULE: 上レンズ眼;LLE: 下レンズ眼;EN: 表皮茎神経。すべての振幅値は増幅後(×1000)の値です。この図の拡大版を表示するには、こちらをクリックしてください。
- 記録チャンバーの構築
- サンプルの調製物、保持用マイクロピペットチップ、および記録電極チップを収容するのに十分な内部寸法を持つ記録チャンバーを設計または3Dプリントしてください。
注:機能的に重要な設計上の特徴は、カバーガラスの縁(エッジ)から2 mm離れた位置にロパリウムを配置するカバーガラスレッジと、スクリーン寸法(16 mm × 12 mm、傾斜角は 60°)、これらが合わせて、下位レンズ眼における視覚刺激の視角を決定します。本稿で述べるチャンバーは、底面の寸法が30 mm × 30 mmで、壁厚は約5 mmです。技術図面は~に提示されています。 図4. - Roth 20 mm × 26 mm ヘモサイトメーター用カバーガラスを、記録チャンバーのカバーガラス用レッジの上に設置します。カバーガラスは負の浮力によって固定されるため、接着剤による固定は不要です。
- M6貫通穴を使用して、記録チャンバーを顕微鏡ステージに固定します。投影された画像を記録チャンバーの投影スクリーン壁に微調整して合わせるため、x-y-zTranslationステージの使用を推奨します。
- 記録チャンバーのフロースルーチャネルの入口ポートと出口ポートを接続し、図 4A)を、水温を制御し水を循環させているウォーターバスに浸し、 28 °C.
注:記録室の温度は28~30 °C 実験を通して。
- サンプルの調製物、保持用マイクロピペットチップ、および記録電極チップを収容するのに十分な内部寸法を持つ記録チャンバーを設計または3Dプリントしてください。
- 光学構成(図3, 視覚刺激連鎖)
注意:プロジェクターの出力を直接見ないでください。特に、ニュートラルデンスィティ(ND)フィルターを装着する前(セクション4)は特に注意してください。メーカー製のレンズシステムを取り外すと、組み込まれた光量減衰機能が失われるため、眼に損傷を与える可能性があります。- プロジェクターからメーカーのレンズシステムを取り外します。
- プロジェクターの出力開口部の前面に単一の両凸レンズ(f = 30 mm)を設置し、投影画像を記録チャンバーの投影スクリーン壁面に集光させます。
- プロジェクターを調整し、投影された画像が記録室の投影スクリーン壁面でピントが合い、スクリーンの寸法(16 mm × 12 mm)全体に収まるようにしてください。
注:この段階では、ニュートラル密度フィルターは挿入しません。適切なフィルター強度は、セクション4の生物学的キャリブレーション中に経験的に決定します。
- シグナルチェーンの組み立て(図3、電気生理学およびタイミング検証チェーン)
- 電極ホルダーをEXT-10-2Fアンプに付属のヘッドステージアームに接続し、そのヘッドステージアームを1台のMM33マイクロマニピュレーターに固定します。
- ヘッドステージをメインアンプに接続します。ヘッドステージのゲインは10倍です。メインアンプのゲインを100倍に設定し、合計増幅率を1000倍にします。
- アンプの出力を、アナログ-デジタル変換器(DAQ)のアナログ入力チャネルに接続します。
- USB経由で、LabVIEW(バージョン2018または同等品)がインストールされたPCにDAQを接続します。
- Arduino UnoのTTL出力を、DAQの専用アナログ入力チャネルに接続します。
- コンピューターディスプレイ上の白黒のインジケーター正方形の上にフォトダイオードを配置します(ステップ1.4.2)。フォトダイオードの正極をArduino Unoのアナログ入力ピンA0に、負極をグランドに接続します。フォトダイオードのモニタリングおよびTTL出力しきい値ロジックを実装したArduinoスケッチを補足資料として提供しています(補足ファイル 1).
- 刺激幾何学的設計(図3, 視覚刺激連鎖)
- プレゼンテーションソフトウェアを用いて、マングローブの支柱根の障害物を模した、白背景上の移動する垂直方向の灰色バーとして視覚刺激を設計します。背景は最大輝度の白に設定してください。
注:白い背景に対するバーのグレーレベルによって刺激のコントラストが決定され、これはセクション4の放射照度特性評価において設定されます。バーは~を画角に収める必要があります。 30° 下側レンズ眼の視角(視野の中心で測定)に基づき、以下の速度で移動させる 10° s-1 視界の全幅にわたって、常に視界内に留まるようにします。投影された障害物の視角は、以下によって決定できます。
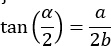
ここで、αは視角、aは画像特徴量の幅、bはレンズの下側の眼からスクリーンまでの距離である。バーの運動は、個別のスライドの連続としてではなく、1枚のスライド内のバーオブジェクトに適用された単一の連続的なオブジェクトアニメーション(例:Keynoteの「移動」ビルド)として実装される。このアニメーションを実装した代表的な刺激ファイルが、補足資料として提供されている(補足ファイル 2)。バーの幅と速度は物理的な単位ではなく視角で指定されるため、プレゼンテーションソフトにアニメーションのオブジェクトサイズと時間として入力する前に、記録チャンバーの具体的な作動距離と画面寸法に基づき、上記の式を用いて両者をミリメートルおよびmm/sに変換する必要があります。 - スライドの隅に、バーの移動開始と同時に白から黒に切り替わり、刺激終了時に白に戻る小さな白黒のインジケーター正方形を配置してください。ステップ3.3における刺激タイミングの検証のため、フォトダイオードを用いてコンピュータディスプレイ上のこの正方形をモニターしてください。
注:白黒の指標正方形は、プレゼンテーション中のコンピュータ画面上に表示させるためにスライドの一部である必要があるため、必然的に記録チャンバーのスクリーン上の投影画像内に現れます。しかし、この正方形のサイズは、コンピュータ画面上のフォトダイオード受光領域のみを満たすように設定されています。チャンバーのスクリーンに投影された際、この正方形は十分に小さいため、下位レンズの眼では個別の視覚的特徴として分解できず、スクリーン全体の輝度への寄与は無視でき、光のON/OFF反応を誘発することはありません。4,13,20. - 自動または手動のトリガーを用いて、プレゼンテーションソフトのスライドを進行させます。
- オプションA(自動):標準的なPCマウスを改造し、DAQ出力から受信した短い5 VのTTLパルスが右クリック信号の代わりとなるようにして、TTLマウスを構築します。TTLマウスをUSB経由でプレゼンテーション用コンピュータに接続します。右クリック入力時にスライドが進むように、プレゼンテーションソフトウェアを設定してください。
- オプションB(手動):刺激提示の意図した開始タイミングで、手動でスライドを進行させる。解析における確定的なタイミング記録として使用されるのは、トリガー信号そのものではなく、Arduinoで検証された刺激ウィンドウ(チャンネル3)であるため(ステップ6.2.1参照)、手動トリガーを用いてもタイミングの精度に影響はない。ただし、データ取得時にオペレーターによる正確なタイミング操作が必要となり、自動オプションに比べて利便性は低下する。
- プレゼンテーションソフトウェアを用いて、マングローブの支柱根の障害物を模した、白背景上の移動する垂直方向の灰色バーとして視覚刺激を設計します。背景は最大輝度の白に設定してください。
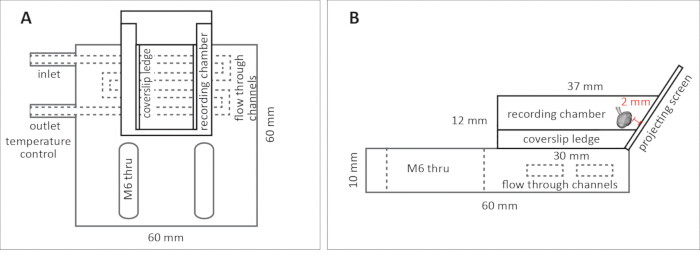
図 4: 分離した rhopalium 標本用の記録チャンバー。 (A) 上面図の概略図。記録チャンバーの両側には、ウォータージャケットによる温度制御用の流路があり、入口および出口ポート (OD 4.2 mm, ID 2.5 mm) が示されている。カバーガラス用段差はチャンバー内部の両壁に沿って縦方向に走り、チャンバー高さの中央でヘマサイトメーターのカバーガラスを支持する。M6の貫通穴は、チャンバーを顕微鏡ステージに固定するための取り付け点となる。全体の寸法:60 mm × 60 mm。 (B) 寸法付きの側面図概略図。記録チャンバーの内部高さは 12 mm、上部幅は 37 mm である。チャンバーの一方の壁が投影スクリーンとなり、下部レンズ眼の光軸に合わせて垂直に対して 60° 傾斜している。カバーガラス用段差により、rhopalium は投影スクリーン側のカバーガラス端に配置される。示されている 2 mm の作動距離は、本プロトコルで説明する特定のチャンバー、スクリーン、およびプロジェクターの構成を反映したものである。この設計を異なるハードウェアに適用する場合、読者はステップ 1.4.1 の式を用いて、自身のセットアップに適した作動距離を再計算する必要がある。温度制御用の流路は記録チャンバーの底部を走行しており、標本には接触しない。 こちらのリンクをクリックして、この図の拡大版を表示してください。
2. 電極の作製
注:細胞外吸引電極は、吸引密着および電位記録に適した開口部を形成するために先端を細く引き伸ばしたガラスキャピラリー管で構成されています。ガラスキャピラリーが電気絶縁体として機能するため、先端の電位のみが記録されます。キャピラリー内部に挿入された銀線がアンプに接続されます。この構成により、バスに設置した参照電極に対して、電極先端にあるペースメーカー細胞群からの電位を捉えるマルチユニット記録が可能になります。 電極は記録セッションの直前、使用当日に作製してください。保存された電極は先端が閉塞しやすく、海水がキャピラリー内に吸い込まれなくなるため、電極として機能しなくなります。 引き伸ばされたガラスキャピラリーの先端は鋭利で壊れやすいため、作製時は刺傷事故に十分注意して取り扱い、破損したもの、不合格のもの、または使用済みのキャピラリーは指定の鋭利物廃棄容器に廃棄してください。
- ガラスキャピラリー管の引き出し
- ホウケイ酸ガラスキャピラリー管(内径 1.16 mm × 外径 2.00 mm × 長さ 80 mm)をマイクロピペットプラーにセットする。
- 以下の引き出しプログラムを実行する:Line 1 (×1): heat 535, pull 0, velocity 12, time 200, pressure 600, ramp 540。Lines 2–4 (×3): heat 532, pull 0, velocity 12, time 100。
注:これらのパラメータは、使用する装置、ガラス、フィラメントに固有のものであり、異なる装置を使用する場合やフィラメントの摩耗後は調整が必要な場合がある。これらは固定された仕様ではなく、あくまで開始点として扱うこと。 - 引き出した電極を慎重に取り出し、機械的な損傷を防ぐため、先端を上にして保管する。
- 電極先端の研磨
- 先端を研磨し、キャピラリー軸に対して垂直で滑らかな真空シール表面を作成する。以下に示す2つのオプションを参照。オプションA(マイクロフォージ)が推奨される。
- オプションA:マイクロフォージによる研磨(推奨)
- 引き出した電極をマイクロフォージに固定する。
- 600倍の倍率(40倍対物レンズ、15倍接眼レンズ)で、先端を加熱フィラメントの近くに配置する。
- 開口部の抵抗値が約 250 kΩ(組織に接触した際に約 1 MΩ に相当)になるまで、先端を加熱して研磨する。600倍の倍率では、これは接眼レンズのレティクル目盛りの約3目盛りに相当する。
注:電極抵抗を測定するには、電極を海水で満たした後、BNCコア(電極の銀線に接続)とバスリファレンス(Ag/AgClペレット)電極の間にマルチメーターを接続する。標準的な視覚誘発記録では、信号品質が電極の適切さを判断する主要な基準となるため(ステップ 6.1.5)、電気抵抗の測定は必須ではない。ただし、本調製を、計算された電流投与を必要とする連合学習パラダイムに使用する場合は測定が必要となるが、これは本プロトコルの範囲外である14。 - 電極を完全に冷却させてから、マイクロフォージから取り出す。
- オプションB:マイクロフォージを使用しない手動研磨
注意:このステップでは裸火(エタノールランプ)を使用する。可燃物を火元から遠ざけ、標準的な実験室の裸火取り扱い上の注意事項に従うこと。- 引き出したキャピラリー先端をエタノールランプの火に短時間かざし、ガラスを溶かして先端を微細な液滴状にシールする。
- シールした先端を完全に冷却させる。
- 目の細かいサンドペーパー(1200番)の上に脱イオン水を一滴垂らし、キャピラリーを紙面に対して垂直に保持する。
- 時計回りと反時計方向を交互に、小さな円を描くように先端を研磨する。
- 毛細管現象によって、少量のガラス破片を含む水が先端に吸い込まれるまで、慎重に研磨を続ける。
- キャピラリーの反対端にゴムチューブを取り付け、それをシリンジに接続する。
- 緩やかな吸引を加え、先端から脱イオン水を吸い上げ、ガラス破片を洗い流す。
- 破片が除去されない場合は、短時間のみ再度緩やかに研磨し、洗浄ステップを繰り返す。
注:完成した先端における目標流量は、緩やかな吸引下で 10 s あたり約 1 cm の水柱である。先端作成の成否は、外観ではなく記録結果(低ノイズで高振幅の信号)によって定義される。どちらの研磨オプションにおいても、作成した電極の約 40%–50% がこのような記録を可能にするが、制限要因はオプションによって異なる。マイクロフォージ研磨(オプションA)の場合、失敗の多くは引き出しステップ(ステップ 2.1)で生じた不均一な孔の形状に起因しており、その後の熱研磨では完全には修正できない。手動研磨(オプションB)の場合、成功は主に操作者の習熟度に依存し、最も一般的な失敗は研磨しすぎによる孔の過大化である。滑らかで適切なサイズの円形の孔は、高品質な記録が得られる確率を大幅に高めるが、それを保証するものではない。最終的に重要となる唯一の基準は機能的な結果である。
- 電極の組み立て
- 研磨したキャピラリー管を電極ホルダーに挿入し、Ag/AgCl(塩化銀)線がガラスキャピラリー内で屈曲することなく伸びていることを確認し、EXT-10-2Fアンプに付属のヘッドステージアームに取り付ける。ヘッドステージアームをMM33マイクロマニピュレーターに固定する。
注:銀線がクロライド処理されていない場合は、電極の銀線と別の純銀電極の両方を 2 M KCl 溶液に浸し、絶縁リード線で 12 V DC 電源に接続して電気化学的にクロライド処理を行う。約 2 分間隔で電流を流し、その都度銀線を視覚的に確認する。銀線が目に見えて黒くなれば(通常は合計 5 分以内)クロライド処理は十分である。処理後、脱イオン水で十分にすすぐ。クロライド処理されていない線を使用すると、大きく不安定な DC オフセットが生じることがある。
注意:KCl 溶液中での電解クロライド処理により、塩素ガスおよび水素ガスが発生する。換気設備のある場所で実施すること。使用済みの KCl クロライド溶液は、施設内の有害廃棄物ガイドラインに従って廃棄すること。 - 記録の直前に、記録チャンバーから海水を直接キャピラリー内に吸い上げ、内部溶液が銀線の中ほどまで達するようにして電極を満たす。充填手順についてはステップ 3.1 を参照。
注:保持用マイクロピペットには、記録用電極のような光学的な仕様や電気的な仕様は必要ない。先端径が大きすぎる(抵抗値が 250 kΩ 未満)などの理由で作成段階(ステップ 2.2)で不採用となった電極や、先端の形状が中心からずれた電極は、この目的に適しているため、保管しておくべきである。専用の保持用マイクロピペットを別途作成する必要はない。
- 研磨したキャピラリー管を電極ホルダーに挿入し、Ag/AgCl(塩化銀)線がガラスキャピラリー内で屈曲することなく伸びていることを確認し、EXT-10-2Fアンプに付属のヘッドステージアームに取り付ける。ヘッドステージアームをMM33マイクロマニピュレーターに固定する。
3. システムのバリデーション
このセクションでは、実験準備を開始する前に、電極、信号伝達系、刺激提示、およびタイミング検証を含む記録システム全体が正しく機能していることを確認します。信号伝達系の全構成は図3に示されています。次へ進む前に、すべての接続が正しく行われていることを確認してください。
- チャンバーの充填と電極の準備
- 培養タンクからの0.20 µmフィルター済みの海水で記録チャンバーを満たします。これにより、培養環境と記録チャンバー間の化学組成の連続性が確保され、ペースメーカー活性や標本の生存率に影響を与える可能性のある外来化合物への曝露や水質変化を防ぐことができます。
- 記録用吸引電極について、記録チャンバーから海水を直接キャピラリー内に吸引し、内部溶液が銀線の半分まで達するように満たします。保持用マイクロピペットには、結晶への吸引吸着を可能にするのに十分な量の海水を記録チャンバーから満たします。
- Ag/AgCl(銀/塩化銀)焼結ペレット電極を記録槽に配置し、ヘッドステージのリファレンス入力に接続します。
- 接地とノイズの検証
注意:このセットアップでは、海水の至近距離で電気機器を動作させます。すべての電気接続および機器をチャンバーや漏水箇所から遠ざけ、湿潤環境での作業に関する施設内の電気安全基準に従ってください。- グランドループを防ぐため、すべての機器を単一の共通接地ポイントに接地します(スター grounding 構成)。
- オシロスコープで信号をモニターします。次へ進む前に、ベースラインがクリーンでノイズがないことを確認してください。
注:当研究室では、細胞外記録において一般的にファラデーケージを使用していません。厳格なスター grounding の方が、物理的な遮蔽よりも電気的(50/60 Hz)ノイズの除去に一貫して効果的であることが証明されているためです。
- タイミング検証チェーン
- LabVIEW 仮想インストゥルメント(VI)(補足資料として提供、Supplementary File 3)を実行します。システム検証中にこの VI を実行してください。これにより、TTL パルスが TTL マウスに送信されて刺激の生成がトリガーされ、.txt 出力ファイルが生成されます。これにより、実験標本を導入する前に、電気生理学的信号、LabVIEW TTL、Arduino TTL のすべてのチャンネルが正しく取得されているかを確認できます。
注:LabVIEW で記録された TTL コマンドと、Arduino で検証された刺激開始との間の遅延は、記録ごとに予測不能に変動し、この段階では解決されません。代わりに、解析時(ステップ 7.2.1)に各記録について個別に決定し、補正します。 - DAQ からの TTL パルスが刺激の生成を正しくトリガーし、視覚刺激が設計通りにプロジェクションスクリーンに提示されることを確認します。
- Arduino Uno がコンピュータディスプレイ上の白黒インジケーター四角形の変化を検出し、DAQ に TTL パルスを出力することを確認します。
注:Arduino Uno は analogRead(A0) を介してフォトダイオード電圧をサンプリングします。サンプリング値が経験的に決定されたしきい値(本セットアップでは 0–1023 の analogRead 範囲のうち 61)を下回ると、デジタル出力ピン 5 が 5 V(TTL high)に設定され、値がしきい値を上回ると出力は 0 V に戻ります。このしきい値はセットアップに依存するため、各スクリーンおよび周囲の照明条件に合わせて再校正する必要があります。 - Arduino Uno からの刺激ウィンドウ TTL が、電気生理学的チャンネルおよび VI デジタル TTL チャンネルと共に、LabVIEW VI によって生成された .txt ファイルに正しく記録されていることを確認します。
注:フォトダイオードの生出力は DAQ 入力において信頼性の高い刺激検出を行うにはノイズが多すぎるため、フォトダイオード信号は DAQ で直接記録されません。Arduino Uno によってクリーンな TTL パルスに変換することで、信頼性の高い低ノイズのタイミング信号が確保されます。フォトダイオードの監視と TTL 出力を実装した Arduino スケッチは、補足資料(Supplementary File 1)として提供されています。Arduino の 1 kHz のリフレッシュレートは DAQ のサンプリングレートと一致しており、タイミング情報の喪失がないことが保証されています。 - すべてのチャンネルが検証されたら、記録チャンバーを空にし、セクション 4 の準備としてチャンバーから電極を取り出します。
- LabVIEW 仮想インストゥルメント(VI)(補足資料として提供、Supplementary File 3)を実行します。システム検証中にこの VI を実行してください。これにより、TTL パルスが TTL マウスに送信されて刺激の生成がトリガーされ、.txt 出力ファイルが生成されます。これにより、実験標本を導入する前に、電気生理学的信号、LabVIEW TTL、Arduino TTL のすべてのチャンネルが正しく取得されているかを確認できます。
4. 光量校正とコントラストの決定
注:このセクションでは、下レンズ眼の視覚刺激に適した光学構成を確立し、コントラスト計算に必要な放射照度値を決定します。生物学的キャリブレーションのステップでは、犠牲となる触角(rhopalium)を使用します。放射照度の特性評価は、チャンバー内での準備なしに実施します。このセクションには時間がかかります。生物学的キャリブレーション、すべてのグレースケールにおける放射照度の特性評価、およびコントラスト計算には、記録日の前に専用のセッションが必要になる場合があります。生物学的キャリブレーションに使用した触角は、本セクションの後に廃棄する必要があり、記録には使用できません。
- 生物学的校正
- 録画チャンバーに~を満たします。 0.20 µm 培養タンクからのろ過海水。
- セクション5に記載されている手順に従い、触手感覚器(rhopalium)を単離し、記録チャンバーに転移させる。
- 保持用マイクロピペットを使用して、ロパリウムをカバーガラスの端に配置し、投影スクリーンに向けます(図1D).
注:ロパリウムをカバーガラスの表面ではなく端に配置することには2つの目的がある。第一に、カバーガラスの端を投影スクリーンから固定され再現性のある距離に配置できるため、すべての記録においてワーキングディスタンスを一定に保つことができる。第二に、下方のレンズ眼でスクリーンを見る際にガラスのカバーガラス越しに視認する必要がなくなり、視覚刺激の角度歪みを避けることができる。カバーガラスの端から投影スクリーンまでの距離によって、下方のレンズ眼におけるすべての投影刺激の視角が決定されるため、すべての記録においてこの距離を一定に保たなければならない。本プロトコルで述べるチャンバーでは、この距離は2 mmである。 - ステップ6.1に記載の手順に従い、記録電極を表皮柄神経に装着する。
- 最大コントラストの障害物(c ≈ 1.0、白背景上の黒いバー)を視野の全幅にわたって移動させ、ペースメーカー信号の応答を評価する(図1C; 図5).
注:光度測定により、使用した投影システムの最大輝度と最小輝度の間で達成可能な最大コントラストは c ≈ 0.99 であることが確認されました。これは刺激設計の制限ではなく、プロジェクターの黒レベルにおける残留輝度を反映したものです。これが、本プロトコル全体を通じて最大コントラスト刺激に対して近似表記(c ≈ 1.0)を用いている根拠となっています。
注:(重要)満足のいく反応とは、刺激提示期間全体にわたって持続するのではなく、障害物の前縁が視界の中心に到達した際に、短時間のタイムロックされたバーストとして、ペースメーカー信号の周波数が2 Hz以上に大幅に増加することであり、このバースト中に約5~15回のペースメーカー信号が認められる状態を指す(図 5B応答強度(周波数および信号数の両方)は、刺激コントラストに比例して増大します。したがって、最大コントラスト刺激(c ≈ 1.0)に対する応答は、可能な限り強くあるべきです。これは、LLE(線状光格子電極)の方向、電極の装着、およびプロジェクターのキャリブレーションが正しく行われていることを反映しており、より低いコントラストレベルでの応答を区別するための十分なダイナミックレンジを確保することになります。これにより、光受容体がダイナミックレンジ内で動作しており、過剰な放射照度によって飽和していないことが確認されます。 正常な試料で0.5~1 Hzの自発的なペースメーカー活動が認められるにもかかわらず、ペースメーカー周波数の変調が観察されない場合は、過剰な放射照度による光受容体の飽和が疑われます。レンズアセンブリに中性密度フィルタ(例:Thorlabs NE01A、光学密度 = 0.1、必要に応じて適宜使用)を挿入し、キャリブレーションを繰り返してください。堅牢なペースメーカー周波数応答が得られるまで、段階的に減衰量を増やします。以降のすべての記録は、このフィルタ構成を適用した状態で実施しなければなりません。 - 満足のいく生物学的応答が得られたら、ニュートラルデンシティフィルタの構成を記録してください。この構成は、この光学セットアップを用いた以降のすべての記録において固定されます。
- 記録室からロパリウムを取り出し、廃棄する。生物学的キャリブレーションに使用したロパリウムは、キャリブレーションの手順に時間を要するため、記録に使用することはできない。
- 放射照度の特性評価
- 記録チャンバーを空にし、投影スクリーンの表面が乾燥していることを確認する。分光計のファイバーを投影スクリーンの表面に直接、かつ垂直に配置する。
注:ほとんどの分光計用光ファイバーは防水仕様ではありません。ファイバーをスクリーン上に配置する前に、チャンバー内を空にし、スクリーンの表面を乾燥させる必要があります。 - プレゼンテーションソフトを用いて、測定対象となる各グレーレベルで投影スクリーンを均一に照射し、分光光度計を用いて放射照度(350~700 nm)を記録する。
注:高照度レベルでは分光計が過露光になる可能性が高いため、最大グレーレベルから最小グレーレベル(白から黒)の順に作業することを推奨します。過露光および低露光の両方を避けるため、グレーレベル範囲の異なる地点で積分時間の再校正が必要になる場合があります。すべてのグレーレベルにわたるこのプロセスには時間がかかるため、適切に計画を立ててください。 - 測定された各放射照度値を、~の吸収スペクトルに基づいて補正します。 *T. cystophora* 眼の下方水晶体にある500 nm オプシン21,22.
注:オプシン補正は、各波長で測定された放射照度に、λmaxが500 nmであるGovardovskii視覚色素テンプレートの対応する受光係数を乗じることで行われます。21その後、測定された波長範囲にわたって合算し、単一のオプシン補正済み放射照度値を算出します。この計算は、生の分光放射照度データを取得した後、任意の標準的な表計算ソフトで実行することが可能です。 - 補正後の放射照度値を用いて、各階調のコントラストを算出します。

どこ Iw 白色背景のオプシン補正照度 Ig グレーまたはブラックのバーのオプシン補正照度です。コントラスト値は、0(バーが背景と区別できない)から1(最大コントラスト、白背景にブラックのバー)の範囲となります。 - 算出されたコントラスト値から、実験プロトコルで要求されるコントラストレベルに対応するグレーレベルを特定します。これらのグレーレベルを用いて、プレゼンテーションソフトのスライドショーを更新してください。
注:コントラストは放射照度の値の比であるため、すべてのグレーレベルにおけるランプの絶対出力の一様な変化の影響は受けません。光学構成に変更がない限り、記録セッション間で放射照度の特性評価を繰り返す必要はありません。ただし、セッション間で刺激応答に予期しない変化が観察された場合は、放射照度の安定性を確認することが推奨されます。
- 記録チャンバーを空にし、投影スクリーンの表面が乾燥していることを確認する。分光計のファイバーを投影スクリーンの表面に直接、かつ垂直に配置する。
<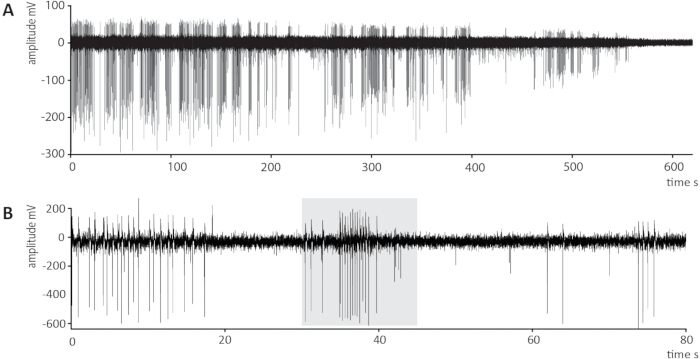
図 5: Tripedalia cystophoraの単離したrhopaliumから得られたスイムペースメーカー信号の代表的な細胞外記録。 (A) 長時間の記録セッション中に生じた、電極シールの漸次的な喪失の例。ペースメーカー信号の振幅は約 200–250 s で低下し始めており、これは電極先端と表皮茎神経との間の電気的接触の悪化を反映している。信号は約 580–600 s までに完全に消失している。信号振幅と背景ノイズの両方が並行して減少しており、これはシール喪失の特徴的な徴候である。(B) DTT上方で視覚的に誘発された障害物回避反応の代表的な記録。灰色に網掛けされた領域はArduino TTL信号によって定義された刺激ウィンドウであり、この間に高コントラスト (c = 0.80) の垂直バー状の障害物が、下レンズ眼の視界の全幅にわたって移動された。刺激ウィンドウ中、ペースメーカー信号の周波数は顕著に上昇しており、これは視覚的に誘発された障害物回避反応と一致し、刺激の停止後にベースライン周波数へと戻っている。刺激ウィンドウ外で発生する自発的なペースメーカー信号は想定内であり、視覚誘発反応を構成するものではない。パネル間のy軸スケールの違いは、示されている記録品質の違いを反映したものであり、信号強度の差を意味するものではないことに注意すること。細胞外電気生理学において、信号振幅は生理的反応の大きさではなく、電極シールの品質に依存する。すべての値は増幅後 (×1000) である。 この図の拡大版を表示するには、ここをクリックしてください。
5. 触手輪の分離と移送
注意:この手順は、rhopaliumが必要になるたびに毎回実施します。まずセクション4の生物学的キャリブレーション用に犠牲となるrhopaliumを用いて1回行い、その後、セクション6で使用する各実験用rhopaliumに対して行います。いずれの場合も、動物を扱う前にすべてのハードウェアを完全に組み立て、動作を確認する必要があります。実験用rhopaliumの数は、実験計画によって決定されます。
- 先端をカットして開口径を約 8 mm にした使い捨てプラスチック転送ピペットを用いて、飼育タンクから個体を 1 匹、飼育タンクの 0.20 µm ろ過海水が入った 35 mm ペトリ皿に移す。
- 個体が皿に密着して動かなくなるまで、乾燥させない程度に余分な海水を除く。
- 微細剪刀(Vannas 剪刀、刃 0.025 mm × 0.015 mm)を用い、感覚器(rhopalium)と傘(bell)をつなぐ柄を、感覚器の付着部から測って柄の長さの約 3 分の 2 の位置(すなわち感覚器より遠位)で切断する。切断後すぐに、飼育タンクの 0.20 µm ろ過海水をペトリ皿に満たす。
注意:Vannas 剪刀は非常に鋭利である。怪我を避けるため、解剖時は慎重に取り扱うこと。
注:切断後、感覚器が感覚器窩(rhopalial niche)に陥入することがある。ペトリ皿にろ過海水を満たすことで、ほとんどの場合、感覚器は押し出される。押し出されない場合は、パステールピペットを用いて優しく洗い出す。
パステールピペット(150 mm)を用いて、単離した感覚器を顕微鏡ステージ上の電気生理学記録チャンバーに移す。(重要)移送中および移送後、感覚器が常に海水に浸かっていることを確認すること。空気にさらされると、標本に不可逆的な損傷が生じる。 - 転送ピペットを用いて、個体を飼育タンクに戻す。
注:単一の感覚器を失っても、箱クラゲの通常の行動に大きな支障はない。感覚器を 1 つしか保持していない個体でも、通常の摂餌行動や光軸への反応行動を示す。さらに、感覚器は除去後 2 週間以内に、ペースメーカー信号の回復や正常な光受容体応答を含む完全な機能まで再生する23。個体は、感覚器がなくなるまで以降のセッションで繰り返し使用できる。4 つの感覚器がすべて除去されると、個体は泳動ペースメーカー信号の生成や傘の収縮ができなくなるため、感覚器組織の廃棄方法(ステップ 6.2.5)に従い、標準的な実験室のシンク廃棄にて人道的に処分する。
6. 記録
- 触手輪(Rhopalium)の配置と電極の装着
- 記録用吸引電極に海水を満たすため、内部溶液が銀線の半分まで到達するまで、記録チャンバーからキャピラリー内に直接海水を吸い上げます。保持用マイクロピペットには、結晶への吸引固定が可能な十分な量の海水を記録チャンバーから満たします。
- ホールディングマイクロピペットをマイクロマニピュレーターに取り付ける。接続したルアーロックシリンジで緩やかな吸引を行い、ホールディングマイクロピペットの先端を触手(rhopalium)遠位端の硫酸カルシウム(CaSO₄)結晶に付着させる。この結晶は、神経組織を損傷させることなく、強固な機械的固定点となる。
- ホールディングマイクロピペットを用いて、カバーガラスの端にある、投影スクリーン側の面に接するように触角器を配置します(図1D).
注:(重要)下側レンズ眼と投影スクリーンの間の距離を測定し、記録する必要があります。これは、以下の式を用いて、下側レンズ眼における投影画像の各特徴の角大きさ(受容角)を算出するために必要となるためです。
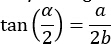
ここで、αは視角、aは像の特徴部の幅、bは下側のレンズ眼からスクリーンまでの距離である。作動距離2 mmにおいて、16 mm × 12 mm(幅 × 高さ)の投影像は、約(以下に続く)の視角を占める。 150° 水平に、および 120° 〜の垂直方向の 170° 下側レンズ眼の円形視野。すべての記録において作動距離を一定に保つ必要がある。いかなる逸脱であっても、提示刺激の角度計算が無効となり、記録間での直接的な比較ができなくなるためである。 - 保持用マイクロピペットで触手盤(rhopalium)の位置を固定しながら、2台目のマイクロマニピュレーターを用いて、記録電極を切断された柄の表面に向かって進めます。
注:表皮茎神経は、ロパリアの付着点から環状神経に至るまで、茎の全長にわたって縦方向に走行している。15切断面上では、二分した表皮柄神経の神経末端が露出し、柄の口側表面(レンズ眼側)で電極との接触が可能になります(図2B). - ルアーロックシリンジを用いて緩やかに吸引し、安定した信号が得られるまで調整する。
注:神経終末が切断面上で常に視覚的に識別できるとは限りません。解剖学的指標に基づき、表皮茎神経が存在すると想定される領域に電極先端を配置し、緩やかに吸引します。電極が適切に装着されると、期待される周波数である0.5~1 Hzで、波形が一定の、大きく鮮明なペースメーカー信号が現れます(図 5)。ペースメーカ信号は、波形の持続時間と形態に基づいて、活動電位様信号と区別されます(図 2C,D)13,20,24安定したペースメーカー信号が現れることが、電極が正しく配置されたかどうかの決定的な基準であり、神経への接触を視覚的に確認することではありません。信号が得られない場合は、吸引を解除し、電極先端を切断面にわずかに移動させてから、再度適用してください。過度な吸引は、組織の破片によって先端が閉塞したり、神経終末を機械的に損傷させたりするリスクがあります。記録中に信号振幅が漸減し、背景ノイズが増加した場合は、電極のシールが失われたことを示しています(図 5A). - 電極を装着した後、記録を開始する前に、検体を最低10分間順応させてください。この間、プロジェクタースクリーンには白背景を表示させ、グレーのバーを視界の中心外の片側に固定したままにしておいてください。
注: 順化を開始する前に、単一の最大コントラスト刺激(c ≈ 1.0)を提示し、標本の反応性を確認してください。反応しない触角(rhopalia)はデータセットから除外します。順化期間を設けることで、電極装着による機械的刺激の後、標本を安定させることができます。静止したバーが表示されたホワイトスクリーンを維持することで、光受容体が視覚刺激中のベースライン条件に光適応し、最初の刺激が提示される前にペースメーカーの初期ベースライン周波数が安定することが保証されます。これは、刺激制御にプレゼンテーションソフトウェアを使用することによるさらなる実用的利点です。順化中および記録間の画面内容は直接視認でき、追加のプログラミングなしで完全に制御可能です。 - 安定したペースメーカー信号が確立されたら、細胞外アンプのバンドパスフィルター設定を最適化し、信号対雑音比を最大化させるとともに、信号の振幅と波形形態を維持してください。その際、オシロスコープのディスプレイで効果を確認します。初期設定として、ハイパスフィルターを1 Hz、ローパスフィルターを500 Hzに設定し、50/60 Hzノッチフィルター(EXT-10-2F統合アドオン)を有効にしてください。観察される信号に基づいて、必要に応じて調整を行います。
注:ハイパスカットオフ周波数を1 Hz以上に上げると、ペースメーカー信号の低周波成分が段階的に減衰し、振幅が低下するため、信号検出に支障をきたす可能性があります。クリーンで容易に識別可能なペースメーカー信号を得るための増幅後信号の目標振幅は400~600 mVであり、最大で約1 Vとなります。
- データ収集
- VI(補足資料として提供)を構成し、 補足ファイル 3) DAQを介して、以下のチャネルをサンプリングレート1 kHzで同時に取得します。
チャンネル1:電気生理学的信号(EXT-10-2Fからの増幅およびフィルタリング済みペースメーカー信号)
チャンネル2:LabVIEWで生成されたアナログTTL出力からTTLマウスへ
チャンネル3:Arduino Uno アナログTTLタイムスタンプ(検証済み刺激ウィンドウを記録。刺激開始はTTLのハイへの移行、終了はTTLのローへの復帰と定義され、コンピュータ画面上の白黒インジケーター正方形を監視するフォトダイオードによって検出される)。
注:チャネル2は意図した刺激提示時間を記録し、チャネル3は検証済みの実際の刺激ウィンドウを記録します。すべての解析において、チャネル3を確定的な刺激タイミング記録として使用してください。 - 実験プロトコルに従って記録時間を設定してください。刺激提示の標準的なシーケンス(30秒の刺激前ベースライン、約15秒の視覚刺激、35秒の刺激後期間で構成)の場合、総記録時間を80秒に設定します。
注:本プロトコルでは、Bielecki et al. (2023) と整合性を保ち、反応強度を評価するために、通常10個の生物学的反復(平衡胞)を用います。これらの平衡胞は、可能な限り10匹の異なる個体から採取することが望ましいです。141回の調製において、同一の単離した触角器(rhopalium)に対し、コントラストが低い順から高い順へと、視覚刺激プロトコル全体を逐次的に提示する。この提示順序は、高コントラスト時に回避的な結果が生じなかったことによる動物の慣れを防ぐためであり、これにより、その後に提示される低コントラスト刺激への反応性が低下することを回避している。連続的な記録は2分の間隔で開始され、これにより、ある刺激期間の終了から次の刺激の開始まで105秒の間隔が確保される(これは、次の刺激の前にペースメーカー周波数がベースラインに戻るのに十分な時間である)。テクニカルレプリケート(技術的反復)は行わず、各触角器に対し、刺激シーケンス内の各コントラストレベルにつき1回のみ刺激を提示する。 - LabVIEW VI(補完資料として提供) 補足ファイル 3) DAQからTTLマウスへ、記録シーケンス内の適切なタイミングでTTLパルスを自動的に出力し、スライドを前進させて視覚刺激の提示を開始させます。取得したデータは、タブ区切りの.txtファイルとして保存してください。提供されるVIを使用する場合、記録のメタデータは保存時にファイル名に手動でエンコードされます。
注:録画を開始する前に、一貫したファイル命名規則を定めておくことが推奨されます。プレパレーション識別子とは、特定の録画を、それが由来する個別の感覚器(rhopalium)および実験セッションまで遡って追跡することを可能にする固有のコード(例:個体番号やセッション番号)のことです。正確な命名体系は、体系的であり、かつ、あらゆる録画を対応するプレパレーションまで曖昧さなく遡ることができるのであれば、研究者の判断に委ねられます。例えば、ファイル名に録画の日時と関連する刺激パラメータ(例:コントラストレベル、バーの寸法、速度)を組み合わせるなどの方法が考えられます。 - 特定の触手盤(rhopalium)に関するすべての記録が完了した後、触手盤組織は標準的な研究室のシンク廃棄手順に従って廃棄してください。
注意:録画を開始する前に、一貫したファイル命名規則を策定することを推奨します。日付、試料識別子、および刺激条件を含む体系的なファイル名があれば、後続の解析に十分です。 プレゼンテーション用ソフトウェアがLabVIEWで生成された視覚刺激よりも好ましい理由は、実用上の2つの理由によります。第一に、記録間に下側レンズ眼に投影される画像が常に既知であり、制御されていることが保証されるため、ソフトウェアインターフェースやシステム画面による意図しない視覚刺激を防ぐことができる点です。第二に、記録セッション間の画面消灯のリスクを排除できる点です。画面消灯が起こると、光受容体でlight-OFF反応が誘発され、その後のベースライン期間に偽のペースメーカー活性が導入されることになります。 眼球のレンズの幾何学的構造により、視界内におけるバーの知覚される視角サイズおよび速度は、非線形に変動します。この非線形性を補正しない理由は2点あります。第一に、自由に遊泳する動物は一定の速度や方向で障害物に接近するわけではないため、視角の補正は自然環境における妥当性が限定的であること。第二に、視角サイズを補正するには画面全体の輝度を変更する必要があり、そうなるとマングローブの光の隙間(ライトシャフト)の検出に関与するライトON/OFF応答が誘発されてしまうためです。
- VI(補足資料として提供)を構成し、 補足ファイル 3) DAQを介して、以下のチャネルをサンプリングレート1 kHzで同時に取得します。
7. データ解析
- Igor Proにおけるペースメーカー信号の識別
注:周波数解析を行う前に、生電位記録トレースにおいて、スイムペースメーカー信号を活動電位様信号から識別します。これら2種類の信号は記録中に同時に出現する可能性があるため、ペースメーカーのタイミングデータを抽出する前に区別する必要があります。両信号の代表例およびそれらを区別するための波形特性を以下に示します。 図2C,D.- Neuromaticプラグイン(バージョン2.00)を使用して、.txtデータファイルをIgor Pro(バージョン6.37以降)にインポートします。
- 信号の持続時間と波形形態に基づき、遊泳ペースメーカー信号を活動電位様信号から判別する。
注:スイムペースメーカー信号は、約45 msという特徴的な持続時間を持ち、複数のペースメーカーニューロンの合算活動を反映した複合波形形態を示します。活動電位様信号は、約10 msというより短い持続時間を持ち、より鋭い単一の波形を示します。2種類の信号は同程度の振幅に達することがあるため、信号振幅のみでは信頼できる判別基準とはなりません。24 (図2C,D)。スイムペースメーカー信号と活動電位様信号の識別可能な波形特性を示す代表的な図を提示する(図2C,D)。誤認するとペースメーカー周波数の推定に誤差が生じるため、解析前に両方の信号タイプに習熟しておくことが推奨される。信号波形の特徴は、同一の個体(準備試料)内では一貫しているが、個体間では多少異なる場合がある。したがって、判別基準は、上述の波形特性を一般的な指針としつつ、固定された普遍的な閾値としてではなく、個々の個体ごとに個別に評価されるべきである。自信を持って分類できない曖昧な波形や中間的な波形については、結果の明らかな強度を過大評価することを避けるため、予想される結果または仮説とは逆の方向に曖昧さを解消すること。例えば、信号数の増加が検証中の仮説を支持する場合に曖昧なイベントを除外する、あるいは信号数の減少が仮説を支持する場合にそれを算入する、といった対応を行う。 - 特定された各スイムペースメーカー信号のタイムスタンプを抽出して、各記録におけるペースメーカーイベントの時系列データを作成し、これらのタイムスタンプを(スプレッドシートや.csvファイルなどに)書き出して、後続の統計解析に利用します。
- 周波数解析
- 記録全体における信号間間隔の逆数として、ペースメーカー信号の周波数を算出します。
- LabVIEWで記録されたTTLコマンド(チャンネル2)とArduinoで確認された刺激開始(チャンネル3)の間の遅延を補正したペースメーカー信号のタイムスタンプを用い、刺激前ベースライン期、刺激期、および刺激後期のペースメーカー周波数を比較することで、視覚刺激の効果を評価する。
注:下側レンズ眼は、ソフトウェアに記録されたコマンドではなく、検証済みTTLのタイミングで刺激に反応します。そのため、各記録の検証済み開始時刻は、生のリズムメーカーおよびTTLのタイムスタンプと共にスプレッドシートにエクスポートされます(付表1) そして、SAS解析スクリプトによって直接的に使用され、すべてのペースメーカー信号を刺激前、刺激時、または刺激後のウィンドウに分類します(図6);スプレッドシートの段階でタイムスタンプ値が変更されることはありません。安静時のベースライン条件下では、ペースメーカー信号の周波数は0.5~1 Hzです。DTT(検出閾値)を超える視覚誘発性の障害回避反応は、ペースメーカー周波数が2~3 Hzに増加することを特徴とします。生理的な最大値は約4 Hzであり、これは信号間隔の最小値である250~280 msに相当します。25. ベースラインのペースメーカー周波数は標本ごとに異なるため、各記録の周波数値は、刺激前および刺激後の期間(刺激期間自体は除く)から算出されたその記録自体の平均周波数に基づいて標準化されます。この正規化により、ベースラインのペースメーカーレートの違いに依存せず、標本間で応答の大きさを比較することが可能になります。ベースライン、刺激時、および刺激後期間の比較に使用した非線形モデルを含む、応答の有意性を評価するための完全な統計的手順は、Bielecki et al. (2023) に記載されています。14; 対応するSAS解析コードは doi: 10.17632/csgymw8kjk.1 で入手可能です。生信号から判別、周波数算出、標準化を経て最終的な反応指標に至るまでの代表的な解析ワークフローを以下に示します。 図7.
- LabVIEWで記録されたTTLコマンド(チャンネル2)とArduinoで確認された刺激開始(チャンネル3)の間の遅延を補正したペースメーカー信号のタイムスタンプを用い、刺激前ベースライン期、刺激期、および刺激後期のペースメーカー周波数を比較することで、視覚刺激の効果を評価する。
- 記録全体における信号間間隔の逆数として、ペースメーカー信号の周波数を算出します。
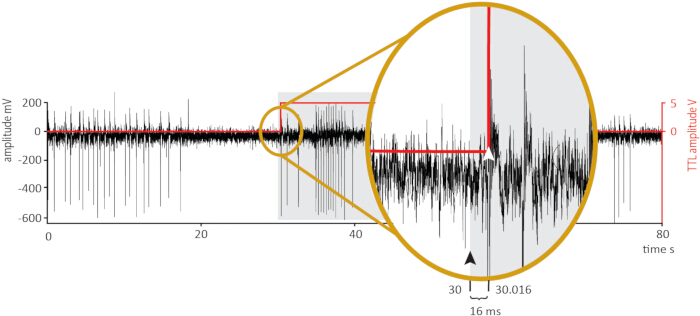
図6刺激検証済みタイミングのための、ペースメーカータイムスタンプ補正の代表的なデモンストレーション。 VIで記録されたTTLコマンドと、Arduinoで検証された刺激開始時刻との間の遅延を示す記録例。この遅延は、Arduino/フォトダイオードのタイミングチェーンを用いて各記録ごとに個別に検証され、スプレッドシートに出力された(付録表1SAS解析スクリプトで各ペースメーカー信号のタイムスタンプを、刺激前、刺激中、または刺激後のウィンドウに直接分類するために使用する。黒色のトレース(左y軸):電気生理学的信号(mV)。赤色のトレース(右y軸):TTL振幅(V)。灰色の網掛け領域は、ソフトウェアに記録されたTTLコマンドによる名目上の刺激ウィンドウを示す。挿入図:TTL立ち上がりの拡大図。黒色の矢印はLabVIEWに記録されたTTL送信時間(t = 30.000 s、チャンネル2)を示し、白色の矢印はArduino/フォトダイオード回路を介して検出され確認された刺激開始時間(t = 30.016 s、チャンネル3)を示す。示されている16 msの間隔は、~内における代表的な例である。 <自動TTLマウストリガーについて、20 msの範囲であることが報告された(結果)。この遅延は特定の記録内では一定であるため、対応するオフセット遷移は個別に図示していない。 この図の拡大表示を見るには、ここをクリックしてください。
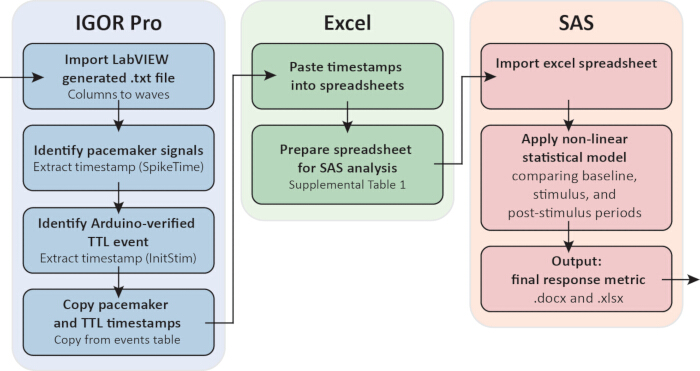
Figure 7: 生データ記録から最終的な応答指標までの代表的な解析ワークフロー。 ペースメーカー信号およびTTLタイムスタンプは、Igor Pro/Neuromaticのイベントテーブルから抽出される。ペースメーカー信号イベントは、持続時間と波形形態によって識別し(ステップ 7.1.2)、Arduinoで検証済みの刺激開始時刻(InitStim、Channel 3)を、計算された遅延ではなく絶対タイムスタンプとして各記録から抽出する。これらのタイムスタンプをスプレッドシート(Supplementary Table 1)にコピーし、各ペースメーカー信号イベントのスパイク間隔(Intval)と中間タイムスタンプ(MidTime)を算出することで、SAS解析用の準備を行う。SASで準備したスプレッドシートをインポートし、各記録の検証済み刺激開始時刻に基づいて分類された刺激前、刺激中、刺激後の期間におけるペースメーカー周波数を比較する非線形統計モデル(Bielecki et al., 202314)を適用し、最終的な応答指標(.docxサマリー、.xlsxデータテーブル)を出力する。こちらのリンクをクリックして、この図の拡大版を表示してください。
結果
信号品質と自発的ペースメーカー活動
切断した表皮柄神経への電極装着が成功すると、オシロスコープ上に自発的なペースメーカー信号が即座に現れます。高品質な記録は、増幅後の振幅が 40–60 mV と大きく、明瞭に分解されたペースメーカー信号が 0.5–1 Hz の安定した自発的周波数で発生し、かつ低ノイズのベースライン(ゼロの両側で約 10–15 mV のピーク偏差であり、これはターゲット振幅範囲内において約 27–40:1 の信号対雑音比に相当)であることが特徴です (Figure 5B)。振幅が 10 mV 程度まで低い記録でも解析は可能ですが、Igor Pro での信号識別時間が大幅に増加するため、特に経験の浅い操作者には推奨されません。複数の trmOC ニューロンの総和的な活動を反映したペースメーカー信号の複合波形形態は、記録中に現れる可能性のある、より短く鋭い活動電位様信号とは区別されます24 (Figure 2C,D)。ステップ 7.1 で述べたように、これら 2 種類の信号は、信号持続時間(ペースメーカー信号は約 45 ms、活動電位様信号は約 10 ms)と波形形態に基づいて、解析前に識別する必要があります。振幅のみでは信頼できる識別基準にはなりません。本プロトコルにおける信号識別は、経験豊富な 1 人の操作者によって行われたため、正式な評価者間信頼性の統計は算出していません(Discussion、Limitations を参照)。
視覚誘発ペースメーカー応答
健全で反応性の高い標本では、DTT上方に移動する垂直バー刺激を下側レンズ眼に提示すると、明確で時間的に同期したペースメーカー反応が誘発されます。ペースメーカー信号の周波数は、障害物の前縁が視野の中心を通過するタイミングに合わせて 2–3 Hz まで上昇し、刺激の終了後に基線周波数へと戻ります14 (図 5B)。刺激提示の開始タイミングは、LabVIEW 自体が報告するタイムスタンプに依存せず、Arduino/フォトダイオード・タイミングチェーン(ステップ 3.3)を用いて検証しました。TTL マウスを使用して提示ソフトウェアを進行させた場合の検証済み範囲は <20 ms であり、手動トリガー(オペレーターが希望する開始タイミングに合わせて通常のマウスをクリック)を使用した場合の検証済み範囲は 10–150 ms です。反応解析では、ソフトウェアが報告するトリガー(チャンネル 2)ではなく、検証済みの開始タイミング(チャンネル 3)を使用するため、トリガー方法に関わらず、この範囲が反応の定量化に影響を与えることはありません。この周波数の上昇は、自由遊泳動物で観察される障害物回避行動の電気生理学的な相関に相当し、その存在は標本の生存能と、下側レンズ眼と投影スクリーンの光学的なアライメントが正確であることを裏付けるものです。
ペースメーカー応答の大きさは、連続するペースメーカーイベント間の信号間隔の逆数として算出される瞬時信号周波数を用いて評価されます。このアプローチでは、周波数の値を確定させるために最低2つの連続したペースメーカー信号が必要となるため、単一の孤立した信号による偽陽性の応答検出に対する本質的な保護策となります。
移動バー刺激のコントラストによって、誘発反応の大きさが決定されます。Bielecki et al. (2023)14では、1 f-stop間隔で3つのコントラストレベル(c = 0.20, 0.40, 0.80)が使用されました。これらの特定のコントラスト値は、プロトコルの総所要時間を、約1 hという実行可能な記録時間内に収めるために選択されました。下レンズ眼のコントラスト感度限界や、その他の特定の視覚反応特性を調査する研究者は、これらの値を規定通りに採用するのではなく、自身の実験的な問いに適したコントラストレベルを選択してください。
不十分な記録および失敗モード
実際には、順化生存基準(ステップ6.1.6)を満たした調製物の約90%(10個中9個)において、安定した自発活性と測定可能な視覚誘発反応が得られます。この割合は操作者の習熟度に強く依存します。残りの調製物で失敗する場合、最も一般的な理由は以下の通りです。最も頻度の高い失敗モードは、記録セッション中の電極シールの漸次的な喪失です。これは、電極先端と神経終末との間の電気的接触の悪化を反映し、ペースメーカー信号の振幅と背景ノイズレベルの両方が徐々に減少することとして現れます(図5A)。このパターンが観察された場合は、吸引を一度解除し、切断された柄の表面で電極先端の位置をわずかに調整した後に再度吸引を適用してください。信号振幅が回復しない場合は、自発的なペースメーカー活性を確認して調製物の生存性を評価してください。分離後1時間以上経過した調製物において、再装着の試みの後に信号が完全に消失した場合は、電極の故障よりも調製物の劣化である可能性が高いため、新しい調製物を使用してください。
2つ目の不具合モードは、安定した自発的なペースメーカー活性があるにもかかわらず、視覚誘発反応が見られない場合である。標本が反応しないと結論付ける前に、光学構成を再評価する必要がある。最も一般的な原因は、投影スクリーンに対する下部レンズ眼の光軸ずれや、過剰な放射照度による光受容体の飽和である。ステップ4.1.5で説明した生物学的キャリブレーション手順を繰り返し、必要に応じてNDフィルターによる減衰量を増やすべきである。また、移動バー刺激が移動中の全過程で視野内に留まっていることを確認する必要がある。刺激が視野外に出ると、光OFF反応が誘発され、記録に偽のペースメーカー活性が混入するためである。
3つ目のパターンである、ペースメーカー信号を遮蔽する高いバックグラウンドノイズは、多くの場合、接地(グラウンディング)の問題または電源ノイズを反映しています。ステップ3.2.1で説明したスター接地構成を確認し、50/60 Hzのノッチフィルタが有効になっていることを確認してください。
補足ファイル 1:Arduinoスケッチ。フォトダイオードを用いた刺激提示開始検出を実装しています。Arduino Unoがフォトダイオードからサンプリングを行い、提示ディスプレイ上の白黒インジケーター正方形(ステップ 1.4.2)を1 kHzで監視し、しきい値比較によって生のアナログ信号をクリーンなデジタルTTLパルスに変換して、このパルスを確認済みの刺激タイミング信号(チャンネル 3、ステップ 6.2.1)として出力します。こちらのリンクからファイルをダウンロードしてください。
補足ファイル 2:代表的な刺激ファイル。移動バーの視覚刺激を単一の連続したオブジェクトアニメーションとして実装し、白黒のタイミング検証用インジケーター正方形(ステップ 1.4)を配置したプレゼンテーションソフトウェア(Keynote)ファイルの例です。刺激シーケンスを独自に設計する場合は、各刺激の提示前に十分な調節期間を設けてディスプレイを安定させる必要があります。フォトダイオード/Arduinoフィードバックループ(ステップ 3.3)により、使用するプレゼンテーションソフトウェアやスライド設計に関わらず、実際の刺激タイミングが検証されます。こちらのリンクからファイルをダウンロードしてください。
補足ファイル 3: LabVIEW バーチャルインストゥルメント (VI)。NI USB-6343 DAQ を、2 つのアナログ入力チャネル(AI0:アンプからの電気生理学的信号、および AI1:Arduino で検証された刺激開始 TTL、すなわちフォトダイオード フィードバック信号)と、1 つのアナログ出力チャネル(AO0:プログラムされた刺激タイミングで TTL マウスに TTL パルスを送り、プレゼンテーション ソフトウェアのスライドを進めるためのチャネル)で構成します。生成される .txt 出力ファイルには、電気生理学的信号 (AI0)、LabVIEW が記録した AO0 トリガー コマンドのタイムスタンプ(ソフトウェア上の記録であり、再取得した信号ではない)、および Arduino で検証された TTL (AI1) の 3 列が記録されます。こちらのリンクをクリックしてファイルをダウンロードしてください。
補足表1:SAS入力ファイル形式。統計解析のためにSASにアップロードするスプレッドシート(ステップ7.2.1)の列定義と具体例。代表的な記録から得られた4つの連続するペースメーカー信号のタイムスタンプを用いて、周波数計算に使用されるスパイク間隔(Intval)および中間点タイムスタンプ(MidTime)の導出方法を示している。リストの最後のイベントについては、間隔を完結させるための後続のタイムスタンプが存在しないため、Intval/MidTimeの値はない。こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
このプロトコルのいくつかのステップは、信頼性の高い記録を得るために極めて重要です。最も影響が大きいのは、吸引電極の作製と準備です。標準的な視覚誘発ペースメーカー記録においては、信号対雑音比(S/N比)を最適化できる電極であればいずれも許容されますが、作製物を電気的な非条件刺激の提示に使用する場合、提示電流を算出するために必要となるため、約 1 MΩ の付着抵抗が特に重要になります14。記録のみを目的とする場合、主要な基準は特定の抵抗値ではなく、信号の品質となります。
同様に重要なのが、記録を開始する前に行う光学系の生物学的キャリブレーションです(ステップ4.1.5)。プロジェクターの出力、レンズ構成、およびスクリーンの反射率が相互に作用して下側レンズ眼における有効放射照度が決定されるため、普遍的に適用可能な放射照度値を規定することはできません。生物学的キャリブレーション(最大コントラスト刺激に対するペースメーカーの周波数応答を光受容体のダイナミックレンジの基準として使用)により、ハードウェアに依存せず自己検証可能な方法で適切な刺激強度を設定できます。過剰な放射照度による光受容体の飽和は、視覚誘発性のペースメーカー応答を消失させ、検体が無反応であると誤認される可能性があるため、このステップを省略してはいけません。
分離および移送の全過程において、rhopaliumを常に浸漬状態に保つことが極めて重要です。rhopaliumの神経系は乾燥に非常に敏感であり、短時間の空気への露出であっても、試料に不可逆的な損傷を与える可能性があります。すべての移送操作は海水がある状態で行い、rhopaliumを導入する前に、記録チャンバーに0.20 µmフィルターでろ過した培養タンク海水を満たしておく必要があります。
最後に、切断した柄の表面への電極配置には忍耐が必要です。表皮の柄神経終末は常に視覚的に識別できるとは限らず、オシロスコープ上に自発的なペースメーカー信号が現れることで、正しく配置されたことを確認しなければなりません。
記録失敗の最も一般的な原因は、セッション中の電極シールの喪失です。このリスクを最小限に抑えるため、すべてのプロトコルはrhopaliumの分離から1時間以内に完了させる必要があります。ここで推奨される1時間という制限は、保守的で実践的な選択であり、動物の他の部位から切り離された分離神経標本は、ペースメーカー活性が持続している場合であっても、無期限に完全な生理機能を表し続けるとは限らないという一般的な想定を反映しています。分離されたrhopaliaは、本プロトコルで使用される記録ウィンドウよりもかなり長い、分離後約5時間まで、検出可能なペースメーカー信号を生成するという意味で生存し続けます。しかし、このウィンドウの後半に記録された応答が、完全な標本を十分に代表しているかどうかは系統的に特性評価されていないため、1時間の制限は厳密に定義された閾値ではなく、保守的なバッファーとして使用されています。電極シールの漸進的な喪失は、容易に特定可能な別の技術的な失敗モードであり、単一の記録セッション内での信号喪失の最も一般的な原因ですが(以下を参照)、時間の経過に伴う応答性のより微妙な変化に標本状態が寄与している可能性を排除するものではありません。記録中にシールの喪失が発生した場合は、吸引を解除し、電極を切断されたstalk表面に再配置して、吸引を再度適用させることができます。ただし、標本の分離から1時間以上経過している場合は、状態が悪化している標本のトラブルシューティングに時間を費やすよりも、新しい標本で開始することを推奨します。
フィルター設定は固定されたパラメータではなく、あくまで出発点として扱うべきです。本プロトコルで規定されているバンドパスフィルター値(ハイパス 1 Hz、ローパス 50 Hz、50/60 Hz ノッチ)は、著者の記録環境において信号対雑音比を最適化したものです。電気的干渉のレベルが異なる環境や、異なるアンプモデルを使用している研究室では、各セッションの開始時にオシロスコープのディスプレイで信号を監視しながら、アンプのコントロールでこれらの設定を経験的に調整する必要がある場合があります。
電極装着後に自発的なペースメーカー活動が見られない場合は、電極のトラブルシューティングを行う前に、標本の状態を確認する必要があります。健全な単離rhopaliumでは、電極装着後数分以内に0.5–1 Hzの自発的なペースメーカー信号が認められます。自発的な活動が見られない場合、その多くは電極の不具合ではなく、単離または移送時の標本への損傷を反映しています。逆に、自発的な活動はあるが視覚誘発反応が得られない場合は、標本が反応していないと結論付ける前に、光学キャリブレーションをやり直す必要があります。
本プロトコルを異なるハードウェアに適応させる研究室では、ステップ3.3で説明したTTLマウスおよびArduino Unoによるタイミング検証チェーンを、電気生理学的トレースと同期して取得される、ソフトウェアに依存しないハードウェアレベルの刺激ウィンドウ記録を提供できる任意のシステムに置き換えることができます。ここで説明している具体的な実装は、PC上のLabVIEWデータ収集環境と、別のコンピュータ上の提示ソフトウェアを橋渡しするために開発されたものであり、一般的なクロスプラットフォーム統合における課題に対する実践的なエンジニアリング上の解決策を反映しています。ソフトウェアによるトリガーのみでは正確な刺激応答タイミング解析に不十分であるという基本原則は、使用するハードウェアプラットフォームに関わらず適用されます。
単離したロパリウム標本の主な制限は、単一のロパリウムから独立して記録を行う点である。生体個体では、4つのロパリウムが環状神経を通じて接続されており15、その出力が統合されることで協調的な遊泳行動が生成される。この標本では、ロパリウム間の通信を観察することはできない。しかし、単一のロパリウム神経系内における視覚情報処理を調査するという目的においては、この単離は弱点ではなくむしろ利点となる。これにより、他のロパリウムからの入力による混同の影響が排除され、単一のRNSの視覚応答特性を完全に詳細に特徴づけることが可能になる。
ロパリウムを単離することで、ロパリウム自体の外部にあるマルチモーダルな感覚コンテキストも排除されます。その表面に解剖学的に記述されている推定化学受容体17は、ペースメーカー反応との機能的な関連性が示されていないため、この信号は非視覚的な入力による影響をほとんど受けない、視覚処理の読み出しとして合理的に解釈できます。より根本的な制限は、細胞外の柄神経からの記録では、統合されたtrmOC運動出力信号のみが捕捉されることです。視覚処理に対する個々のsubOCの寄与を電気生理学的に分解することはできず、これには空間分解能を備えたin vivoイメージング手法が必要です。したがって、ここで説明する電気生理学的手法は、RNS内部の中間処理ステップではなく、最終的な統合運動コマンドを測定するものです。
これには重要な実用的帰結があります。つまり、単離したrhopaliumの電気生理学プロトコルは、それ単独で完結する手法ではないということです。どの視覚刺激が傘の収縮頻度を変化させる行動を誘発するかを確定させるために、単離rhopalium実験を設計する前に、個体レベルでの行動解析を行うことが不可欠です。ペースメーカー信号の周波数に変化をもたらさない行動は、このアプローチでは評価できません。電気生理学的な読み出しは、具体的に遊泳運動出力を測定するものであり、選択した刺激がこの出力を関与させていることを確実にするために、実験設計は事前の行動特性評価に基づいたものである必要があります。
記録の成功と信号の分類は、いずれも操作者の経験に依存します。経験豊富な操作者が行った場合、順化生存率の基準(ステップ 6.1.6)を満たす標本の約 90% で、安定した自発活動と測定可能な視覚誘発反応が得られます。習熟までの初期段階では、この割合は低くなることが予想されます。本研究におけるペースメーカー波形と活動電位様波形の信号判別(ステップ 7.1.2)は、単一の経験豊富な操作者によって行われました。正式な評価者間信頼性の検証には複数の独立した観察者が必要であるため、評価者間一致度の統計量を算出することはできませんでした。その代わりに、曖昧な波形を同一記録内の正体が判明している信号(通常は最大コントラストの誘発反応)と比較することで、内部一貫性を維持しました。
本プロトコルにおけるハードウェアおよびソフトウェアの選択(改造したプロジェクターレンズ、カスタムTTLマウス、Arduinoタイミングチェーン、およびLabVIEW/Igor Pro/SAS)は、手法上の必須要件ではなく、著者の研究室ですでに利用可能であった設備および専門知識を反映したものです。プロジェクターレンズを改造したのは、標準的な構成ではセットアップ要件を満たさなかったためです。TTLマウスは刺激提示用コンピュータとデータ収集用コンピュータを橋渡しします。LabVIEWがTTLパルスをマウスに送信して送信時間を記録し(チャンネル2)、マウスのクリックがUSB経由で刺激の構築をトリガーします。この記録されたトリガーと実際の画面変化との間の遅延は変動するため、独立したフォトダイオード/Arduinoチェーンによって実際の刺激開始を検証し、2つ目のTTLをDAQにフィードバックします(チャンネル3)。マウスに代わる市販品が存在する可能性がありますが、著者は把握していません。これらのハードウェアはいずれも特殊な製造技術や高コストを必要とせず、代替のデータ収集システムは、1 kHzの同期マルチチャンネルサンプリング要件と、それに伴う電子工作またはプログラミングの専門知識さえ満たしていれば十分です。ただし、1点だけ例外があり、適切なアナログアンプをカスタマイズするには、読者が習得しているとは想定されない低ノイズ回路設計の専門知識が必要です。
T. cystophoraは、Drosophilaやゼブラフィッシュのような遺伝学的に操作可能なシステムの視覚的な精緻さと、C. elegansのような数値的に単純なシステムの回路レベルでの扱いやすさを兼ね備えています。具体的には、Drosophilaの脳が約200,0個1、C. elegansの神経系全体が302個2のニューロンで構成されているのに対し、感覚器(rhopalium)の神経系は約10個のニューロンで構成されています。このシステムのさらなる利点は、その感覚階層にあります。T. cystophoraは視覚に加えて、機械受容(連合学習に関与することが機能的に示唆されている14)や、推定される化学受容(解剖学的に記述されているが機能的には実証されていない17)を含む複数の感覚様式を備えています。しかし、単離した感覚器の標本においては、本プロトコルで評価するペースメーカー反応を駆動させることが機能的に実証されているのは視覚のみです。これにより、複数の能動的な感覚が同時に行動反応を形成することで生じる解釈上の複雑さを排除し、信号を視覚処理の比較的純粋な読み出しとして解釈することが可能になります。視覚刺激は空間、時間、コントラストにおいて精密に指定することができ、一方でペースメーカー信号は、個体全体の行動に関連する視覚駆動型の運動出力の定量的な指標として利用できます14。
視覚電気生理学以外にも、単離したロパリウム標本は、バス投与による神経伝達物質および神経調節物質アッセイを通じたRNSの薬理学的研究にうまく適用されており、ペースメーカー出力を調節する伝達物質系の特定が可能となっています24。また、この標本はカルシウムイメージングおよび電位イメージングの手法にも適しています。著者らの研究室における細胞透過性カルシウムインジケーターを用いた予備的な未発表研究では、本標本におけるカルシウムイメージングの実現可能性が支持されています。電位イメージングについては未検証です。このようなアプローチを用いることで、現在は作業モデルにとどまっているsubOC–trmOCネットワーク構造そのものを直接検証でき、さらに、細胞外記録のみでは不可能な、視覚刺激中のsubOCおよびtrmOCの活動を独立して解析するために必要な空間分解能を得ることができると考えられます。これらの相補的なアプローチを合わせることで、T. cystophoraの単離ロパリウムは、定義された限定的な複雑さを持つ神経系における視覚処理および感覚運動統合のシステムレベルの研究にとって、非常に扱いやすい標本となります。
開示事項
著者らは、競合する利害関係がないことを宣言します。
謝辞
著者は、rhopaliumの画像(図 1B)の使用を許可してくださったDan-eric Nilsson氏、技術的な支援を提供してくださったMathias Hoppe氏、Ingo Klein氏、Olaf Wendt氏、Holger Voigt氏(キール大学)、および培養維持にご協力いただいたSensory Biology Group(コペンハーゲン大学)のメンバーに感謝いたします。本研究は、ドイツ研究振興協会(DFG)の助成金(プロジェクトID 567357102、J.B.)による支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 35 mmペトリ皿 | Nunc | 153066 | 適切な同等のシャーレであれば何でも使用可能 |
| Arduino Uno | Arduino | — | フォトダイオード信号をTTLに変換して刺激タイミングを検証します。リフレッシュレートは1 kHzです。 |
| 両凸レンズ f = 30 mm | Linos | G063-02-0 | メーカー製レンズと交換し、記録チャンバーの投影スクリーン壁面に画像を結像させる。 |
| ホウケイ酸ガラスキャピラリーチューブ、内径 1.16 mm × 外径 2.0 mm × 長さ80 mm | 科学製品 | GB20-8P | 吸引電極の作製について |
| 使い捨て分注ピペット | Sarstedt | 86.1171 | 動物転送のため、チップの先端を約8 mmの開口部にカットする |
| 電極ホルダー PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | 吸引ポート付きBNCタイプホルダー(~0.25 mm 銀線付属) |
| EXT-10-2F 細胞外アンプリファイア | NPIエレクトロニクス | — | 差動AC結合アンプ;ヘッドステージ ×10、メインアンプ ×10, 全ゲイン ×10; 内蔵バンドパスフィルター:ハイパス 1 Hz、ローパス 50 Hz; 50/60 Hz ノッチフィルター・アドオン有効; ヘッドステージアーム付属 |
| 血球計数器用カバーガラス 20 mm × 26 mm | Carl Roth | L 189 | 負の浮力によりカバースリップの縁に固定されます。標準的なカバースリップよりも堅牢です。 |
| Igor Pro 6.37 | WaveMetrics Inc. | バージョン 6.37 | 米国オレゴン州レイクオスウィゴ;ペースメーカー信号解析用 |
| LabVIEW 2016 | National Instruments | 2016年版 | データ収集および刺激制御ソフトウェア;補足資料としてVIを提供 |
| ルアーロックシリンジ | — | — | 汎用品;適合する標準的なラボ用ルアーロックシリンジであれば何でも可 |
| Microforge MF-2 | ナリシゲ | — | 電極先端の研磨(オプションA)について |
| マイクロマニピュレーター MM3 | Märzhäユーザー ウェッツラー | 0-42-101-0(右)/ 0-42-102-0(左) | 手動3軸操作装置;2基必要(ピペット保持用および記録電極用) |
| マイクロピペットプラー、Flaming/Brown P-10 | Sutter Instrument | P-100 | 牽引プログラム:ライン1×1:加熱 535、プル 0、速度 12、時間 20、圧力 60、ランプ 540;ライン数 2–4 × 3: 加熱 532, プル 0, 速度 12, 時間 10 |
| Neuromaticプラグイン v2.0 | — | バージョン 2.0 | Igor Proを用いたペースメーカ信号の識別およびタイムスタンプの抽出 |
| ニュートラルデンシティフィルター | Thorlabs | NE10A | 透過率10%(減衰量は、生物学的キャリブレーション(ステップ4.1)によって経験的に検証すること) |
| NI USB-6343 DAQ | National Instruments | 781438-01 | 16ビット多機能DAQ;電気生理学データ収集、TTLマウス刺激提示、Arduino TTL入力;サンプリングレート 1 kHz |
| Optoma ML750 DLPプロジェクター | Optoma | ML750 | メーカー製レンズシステムを取り外し、単一のbiconvexレンズ(f = 30 mm)で代用した。 |
| オシロスコープ DS102E | Rigol | DS102E | 電極配置およびフィルター最適化中のリアルタイム信号モニタリング用 |
| パステールピペット 150 mm | Carl Roth | 4518 | ロパリウム移植用 |
| フォトダイオード BRW21 | OSRAM | BRW21 | シリコンフォトダイオード。コンピュータディスプレイ上の白黒のインジケーター正方形をモニターする。 |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | 米国ノースカロライナ州キャリー;ペースメーカー反応の統計解析;コードはdoi: 10.17632/csgymw8kjk.1で入手可能 |
| シリコーンチューブ | Erich Eydam KG | 9205000 | 電極ホルダーとシリンジの間の吸引接続用 |
| シリンジフィルター Filtropur S 0.20 µm ポリエーテルスルホン | Sarstedt | 83.1826.001 | 記録チャンバーおよび準備用ディッシュに使用する培養タンク海水のろ過用 |
| バナス剪刀 | World Precision Instruments | 500086 | 0.025 mm × 0.015 mmブレード;感覚器柄の切断用 |
| WTE var 3185 | アシスタント | — | 恒温水槽温度コントローラー |
参考文献
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.