本レビューでは、骨形成バイオマテリアルの候補として、真珠粉末、ナクレ(真珠層)、およびナクレ由来の水溶性マトリックス(WSM)を評価します。高用量における細胞毒性やオートファジー介在性の損傷よりも、骨形成活性に関する真珠特有の強力なエビデンスがあることを強調し、標準化された特性評価、用量反応試験、ストレスアッセイ、オートファジーフラックスの検証、およびより長期的なin vivo安全性評価の必要性を明らかにします。
レビュー記事
骨形成におけるナノパールパウダーおよび真珠層由来の水溶性マトリックス:エビデンス、メカニズムの空白、および安全性に関する考察
この記事について
サマリー
要約
真珠粉末、ナクレ(真珠層)、およびナクレ由来の水溶性マトリックス(WSM)は、骨再生研究において重要性が高まっている天然の無機・有機複合材料です。これらの生物学的活性は、炭酸カルシウム含有量だけでなく、骨芽細胞の挙動、ミネラル沈着、および細胞ストレス応答に影響を及ぼす可溶性マトリックス成分に依存していると考えられています。本ナラティブレビューでは、細胞、スキャフォールド、および欠損修復モデルにおける真珠特異的な骨形成研究を、未解決の安全性に関する問題を検討するために選定した比較用ナノ粒子研究と比較します。真珠特異的な文献では、一般に骨形成活性が支持されており、特に前骨芽細胞または骨芽細胞系譜モデルおよびWSM含有材料において顕著ですが、種、抽出方法、粒子径、放出挙動、投与量、およびエンドポイントの選択が研究間で異なるため、エビデンスには不均一性が残っています。ナノ真珠粉末をオートファジー関連の骨分化に結び付けるエビデンスは、特にMC3T3-E1モデルにおいて有望ですが、既存の真珠特異的な文献では、高用量毒性、オートファジーフラックスの阻害、免疫原性、重金属関連のリスク、分解速度に合わせた修復、または慢性的なバイオセーフティに関する直接的なエビデンスは限られています。今後の研究では、材料特性の評価、用量反応試験、酸化ストレスおよびミトコンドリアのリードアウト、オートファジーフラックス解析、および骨形成エンドポイントを単一の実験デザインに統合する必要があります。WSMベースまたはナノ真珠製剤が、骨再生バイオマテリアル開発において再現性があり安全な骨形成ウィンドウを提供できるかどうかを定義するために、このような研究が必要となるでしょう。
概要
骨の修復には2つの基本的なニーズがあります。材料が欠損部を充填すること、および骨芽細胞系の細胞による細胞外マトリックスとミネラルの生成を促進することです。Lamghariらは、真珠層が骨髄細胞を刺激し、骨形成をサポートすることを明らかにしました。Rousseauは、真珠層の水溶性マトリックス(WSM)分画がMC3T3-E1前骨芽細胞のミネラル化を早期に開始させることを示しました1,2。従来の自家移植、同種移植、ヒドロキシアパタイト、およびβ-リン酸三カルシウムは依然として有用ですが、ドナー部位の罹患、供給量、統合のばらつき、脆弱性、緩やかな再構築、または生物学的シグナリングの不足によって制限される場合があります。そのため、真珠由来材料は単なる炭酸カルシウム充填剤としてではなく、活性な天然の有機・無機複合代替材として研究されています。
真珠と真珠層は関連していますが、同一ではありません。真珠粉末は真珠の本体から生成され、有機成分がより少ない炭酸カルシウムを含んでいますが、一方で真珠層は、高度に組織化されたアラゴナイト-有機ラメラ構造を持つ真珠層のシェル層です。真珠層由来のWSMは、このマトリックスから抽出された可溶性画分です。これらの違いは重要であり、粉末全体の曝露、可溶性抽出物の曝露、スキャフォールドへの組み込み、およびナノスケール粒子の曝露では、放出プロファイル、細胞接触パターン、および生物学的結果が異なる可能性があるためです。
本レビューでは、比較対象となるナノ粒子の研究を、ハザードシグナルおよび仮説構築のための根拠としてのみ用いています。二酸化チタン、銀、ヒドロキシアパタイト、ジルコニア、およびその他の真珠以外のナノ粒子は、骨芽細胞関連モデルにおいて活性酸素種(ROS)を増加させ、ミトコンドリアを損ない、リソソームにストレスを与え、オートファジーを変化させることがあります。これらの影響は、真珠特有の安全性試験の指針となるべきものですが、ナノ真珠粉末が同様の損傷パターンを引き起こすという直接的な証拠として解釈されるべきではありません。
レビューと展望
真珠粉末、ナacre、および水溶性マトリックスの組成と生物活性
ナacreは単なる炭酸カルシウムではありません。貝殻の材料は、鉱物相の中に可溶性および不溶性の有機マトリックスを含んでいます。可溶性ナacreタンパク質は炭酸カルシウムの沈殿を修飾することができ、WSMのプロテオミクス研究により、鉱物結合、マトリックス組織化、および成長因子様シグナル伝達を含む、骨形成活性を持つ可能性のあるタンパク質が同定されています3,4,5。したがって、WSMの生物活性に関する主張は、WSMを単一の代替可能な材料として扱うのではなく、種、抽出方法、分画、および使用したモデルを明記する必要があります。
ナノパールパウダーの調製および特性評価
生物学的試験の前に、最低限の特性評価チェックリストを報告する必要がある。これには、由来種および組織、滅菌方法、粒度分布、形態、結晶相、ゼータ電位、培地中での分散安定性、凝集状態、関連する場合はエンドトキシンまたはバイオバーデンの状態、WSM含有量、タンパク質プロファイル、カルシウムイオン放出、WSM放出キネティクス、およびバッチ間の再現性が含まれる。また、適用可能な場合には、炭酸カルシウムのみの粒子、タンパク質除去または酵素処理済みWSM、粒径を合わせた非パールコントロール、スキャフォールドのみのコントロール、およびWSMのみのコントロールなど、炭酸カルシウムの効果を有機マトリックスの効果から分離させるためのコントロールを研究に含めるべきである。
最近のスキャフォールドに関する研究では、真珠由来の材料を現代的な製造戦略に統合できることが示されています。真珠層WSM、真珠層粉末、および真珠層模倣相が、多孔質、積層、およびプリントされたスキャフォールドに組み込まれています6,7,8。レビュー中に推奨されたアディティブ・マニュファクチャリング(積層造形)の研究では、複雑な欠損に対する適切な設計方向として、制御されたアーキテクチャ、形状記憶挙動、光熱機能、および複合材料による強化がさらに強調されています9,10,11,12,13。真珠由来のバイオマテリアルにおいて、スキャフォールドのアーキテクチャが骨形成シグナル伝達と細胞毒性曝露の両方を変化させる可能性があるため、これらの手法は放出挙動および細胞ストレスエンドポイントとともに評価されるべきです。
真珠由来材料の骨形成効果
骨形成の根拠となる強度は、エンドポイントの階層に基づいて解釈されるべきである。細胞生存率および増殖能は耐性を示すが、骨形成を証明するものではない。アルカリホスファターゼ(ALP)およびRunt-related transcription factor 2(Runx2)は早期分化を示す。コラーゲンI、オステオポンチン(OPN)、オステオカルシン(OCN)、および骨形態形成タンパク質-2(BMP-2)は、より後期のマトリックス関連シグナルの根拠となる。アリザリンレッド染色およびミネラル沈着は、特に細胞数で標準化した場合に、成熟を裏付ける。 In vivo イメージング、組織学、機械的統合、および欠損部の閉鎖は、単独のマーカーの変化よりも強力な修復の根拠となる。真珠に特有のいくつかの報告が早期および後期の骨形成エンドポイントを支持しているが、細胞数による標準化、放出キネティクス、および長期的な組織安全性については、依然として報告に一貫性がない1,6,7,8,14,15,16,17。
| 研究/エビデンスの種類 | 材料/モデル | 用量または期間 | 骨形成エンドポイント | 測定したオートファジーマーカー | エビデンスレベル/限界点 |
| 原著論文1 | ナクレ;骨髄細胞および生体内骨形成 | NR | 骨形成と細胞応答 | いいえ | 直接的な骨形成の証拠;旧モデルによる報告 |
| 原著研究2 | 真珠層WSM; MC3T3-E1 | NR | 早期石灰化 | いいえ | WSM特異的シグナル。成分の同定が不十分。 |
| 原著研究14 | 水溶性真珠層バイオアクティブ物質、骨芽細胞アッセイ | NR | 抗酸化活性および分化マーカー | いいえ | 生物活性を維持しているが、用量標準化には限界がある |
| 原著研究15 | ナノ真珠層粒子;MC3T3-E1 | 制御されたWSM/カルシウム放出;本表における正確な比較投与量NR | 骨分化誘導マーカー | いいえ | 骨形成への放出の関連性;安全性エンドポイントは限定的 |
| 原著研究16 | 水溶性ナノパールパウダー; MC3T3-E1 | 抽出された原稿におけるNR | 骨形成マーカーと分化 | はい | 分化に伴うオートファジー;フラックスおよびレスキューによる根拠の拡充が必要 |
| スキャフォールド研究 原著6-8 | スキャフォールドまたは欠損モデルにおけるWSM/真珠層粉末/真珠層由来複合体 | NRまたはモデル特異的 | 鉱物質化、組織学、欠損修復 | 通常はありません | トランスレーショナルな関連性;スキャフォールド構造がコンポーネントの効果を混同させる |
表1:骨形成および骨修復における代表的な真珠由来材料の研究。この表では、元の研究とより広範なスキャフォールドのエビデンスを区別しており、抽出されたソースに記載のない詳細についてはNRとしています。略称:ALP = アルカリホスファターゼ; OCN = オステオカルシン; OPN = オステオポンチン; BMP-2 = 骨形態形成タンパク質2; ARS =アリザリンレッド染色; NR = 報告なし。
細胞毒性、酸化ストレス、およびミトコンドリアストレス
比較対象となるナノ粒子のデータは、粒子径、粒子数、凝集、表面電荷、プロテインコロナ、取り込み経路、リソソーム負荷、投与量指標、曝露期間、ROS産生、ミトコンドリア膜電位、およびアポトーシスまたはネクローシスのエンドポイントといった、転移可能な曝露変数を通じて関連しています。一方で、材料固有の組成、WSMの放出、タンパク質介在性シグナリング、生分解性、または免疫原性については、直接的に転移させることはできません。したがって、パール特有の研究では、非パール材料からの毒性に関する結論を借用するのではなく、同様のストレスエンドポイントを直接的に試験する必要があります18,19,20,21,22,23,24,25,26,27.
臨床応用に伴う安全性の課題
臨床応用においては、ナノ粒子の短期間の細胞毒性だけでなく、より広範な安全性への検討が求められます。真珠粉末および真珠層由来の調製物は、鉛、水銀、カドミウム、ヒ素を含む重金属残渣についてスクリーニングを行い、その許容限界が薬局方またはバイオマテリアルの品質基準に準拠していることを確認する必要があります28。また、WSMには異種由来の貝殻タンパク質が含まれているため、免疫原性、補体活性化、マクロファージの分極化、および炎症性メモリーを評価する必要があります。分解速度は骨再生速度に合わせ、分解産物は局所組織、血液、肝臓、腎臓、および排泄経路を通じて追跡されるべきです。慢性的な安全性を一般化するためには、荷重部位や臨床的に関連のある欠損部位を用いた大型動物での研究が依然として必要です。
細胞ストレス応答としてのオートファジー
オートファジーはリソソームを基盤としたリサイクルプロセスである。保護的オートファジーとは、生存能、ミトコンドリアの質、酸化還元バランス、および分化能を維持するためのオートファゴソームの形成と分解の亢進を指す。一方で、機能不全なオートファジーとは、フラックスの遮断、過剰なリソソーム負荷、分解を伴わないLC3-IIまたはp62の蓄積、あるいはオートファジーに関連した細胞死および骨形成能の喪失を指す。Microtubule-associated protein 1 light chain 3 (LC3)、sequestosome 1 (p62)、およびBeclin-1の変化のみではこれらの状態を区別できないため、フラックスと因果関係を検証するには、bafilomycin A1、クロロキン、遺伝学的操作、タイムコース解析、および生存能回復デザインが必要である29,30,31,32。
WSMがオートファジーを調節する分子経路
最も直接的に真珠特異的なメカニズムとして残っているのは、MC3T3-E1細胞で報告されたmitogen-activated protein kinase kinase/extracellular signal-regulated kinase (MEK/ERK) 関連のオートファジーおよび分化応答である16。より広範な骨芽細胞およびバイオマテリアルに関する文献では、AMP-activated protein kinase (AMPK)、phosphoinositide 3-kinase/protein kinase B/mammalian target of rapamycin (PI3K/AKT/mTOR)、sirtuin 1 (SIRT1)、ROS感受性mitogen-activated protein kinase (MAPK) シグナリング、Yes-associated protein (YAP)/beta-catenin、mTOR/unc-51-like autophagy activating kinase 1 (ULK1)、およびミトファジー関連経路とのクロストークの可能性が示唆されている29,32,33,34,35,36,37,38,39,40,41。現時点では、これらのシグナルを開始させる受容体およびWSM成分は十分に定義されていない。プロテオミクスのエビデンスに基づくと、候補となる入力因子には、ミネラル結合タンパク質、オステオカルシン様またはマトリックス組織化タンパク質、およびtransforming growth factor-betaファミリー関連のシグナリングモチーフが含まれるが、これらの提案された関連性を立証するには、分画、受容体ブロッキング、遺伝的摂動、およびレスキュー実験が必要である。
骨分化におけるオートファジーの二重の役割
真珠特有のエビデンスの多くは、主に有益な側面を示しています。Chengらは、水溶性ナノ真珠粉末がMC3T3-E1細胞における骨分化マーカーを増加させ、オートファジーの阻害が分化反応を弱めたことを報告しました16。これは、当該モデルにおけるオートファジーの関連性と寄与の可能性を裏付けるものです。しかし、薬理学的阻害剤はオフターゲット効果を持つ可能性があり、また多くの研究においてフラックス検証と遺伝学的アプローチやレスキューアプローチの併用が行われていないため、オートファジーがすべての真珠由来製剤における普遍的な因果媒介因子であるという証明として扱うべきではありません。
| コンテキスト | オートファジーマーカーデータ | オートファジーフラックス測定法 | 結果 | 解析 |
| 水溶性ナノパール粉末; MC3T3-E1 | 報告されたLC3/p62パスウェイの変化 | 抽出された原稿において、フラックス検証に関する報告が不十分である。 | 骨形成マーカーの上昇、阻害剤による反応の減弱 | 分化に伴うパール特異的な関連性 |
| 骨芽細胞における酸化ストレスおよび代謝ストレス | LC3、p62、Beclin-1、AMPK、またはPI3K/AKT/mTORの変化 | 可変。多くの場合、バフィロマイシンA1またはクロロキンが必要である。 | ストレスに応じた保護またはアポトーシス | 保護的オートファジーと機能不全オートファジーを定義する |
| チタン/銀/シリカ/タンタル/ケイ酸ジカルシウムの比較試験 | LC3/p62およびパスウェイの変化 | 変数;いくつかのフラックス測定またはモジュレーションアッセイ | 骨形成、増殖、または損傷 | 真珠研究における仮説創出 |
| 次世代の真珠由来製剤 | LC3-II、p62、Beclin-1、ミトファジーマーカー | 必要条件:リソソーム阻害剤およびタイムコース、および可能な場合は遺伝学的介入/レスキュー実験 | 生存率、活性酸素種、ミトコンドリア膜電位、ミネラル化 | 適応的、中立的、または有害な反応に分類する必要があった |
表2:骨芽細胞およびバイオマテリアル応答に関連するオートファジーの根拠。本表では、マーカーのみを用いた研究とフラックス検証を必要とする研究を区別し、パール特有の根拠と比較対象から導き出された仮説を区別しています。略語:LC3 = microtubule-associated protein 1 light chain 3、p62 = sequestosome 1、TEM = 透過電子顕微鏡、NR = 報告なし。
WSM介在性の細胞毒性-オートファジー-骨形成軸
提案されたこの軸は検証可能なモデルであり、確立された経路ではありません。真珠特異的な直接的要素は、特定の細胞およびスキャホールドモデルにおけるWSMまたはナノパールへの曝露と骨形成マーカーとの関連です。比較対象から導き出された要素は、ROS、ミトコンドリア損傷、リソソーム負荷、およびオートファジーの阻害を伴う可能性のある高ストレス分岐です。検証すべき仮説は、適応的オートファジーが特定の閾値において機能不全のオートファジーへと移行し、骨形成が減少するという点です。
利用可能な用量反応ロジックに基づき、3つの暫定的なゾーンを実験の指針とすることができる。骨形成促進ゾーンでは、生存率が維持され、ミトコンドリア膜電位が保持され、ROSの遅延蓄積が回避され、オートファジーフラックスが完全に示され、細胞数で標準化した後に石灰化が増加する。明らかな影響がないゾーンでは、有意な骨形成能の向上はないが、材料耐性が示される。毒性傷害ゾーンでは、生存率の低下、持続的なROS、ミトコンドリア機能不全、p62の蓄積またはフラックスの阻害、炎症活性化、および骨形成エンドポイントの減少が示される。粒子径、凝集状態、曝露時間、およびWSM放出速度によって、これらのゾーンが変動する可能性がある(図1)。
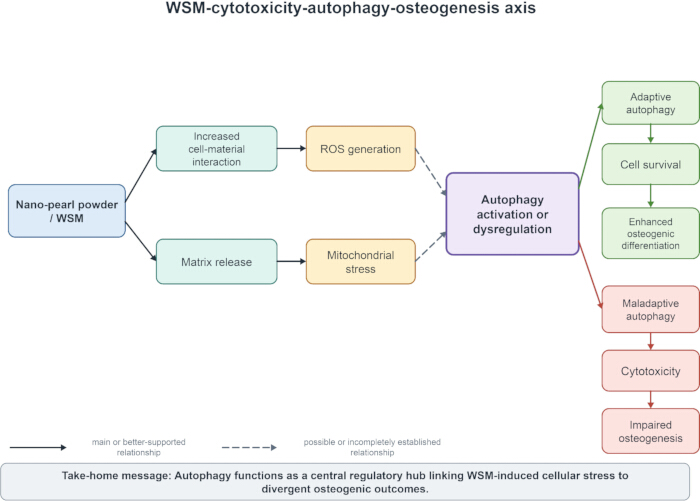
図 1: エビデンスに基づきマッピングされたWSM細胞毒性-オートファジー-骨形成フレームワーク。 実線の矢印は、特定のパールに関する研究によって裏付けられた関係(骨形成マーカーに対する選択的なWSMまたはナノパールの影響を含む)を示す。破線の矢印は、比較対象から導出された、あるいは仮説的なリンク(ROSの蓄積、ミトコンドリア損傷、リソソーム負荷、オートファジーの阻害、および骨形成の低下を含む)を示す。略語:WSM = water-soluble matrix; ROS = reactive oxygen species。 この図の拡大版を表示するには、ここをクリックしてください。
課題と限界
本論文は系統的レビューではなく、ナラティブレビューである。真珠特有の骨形成のエビデンス、真珠層/WSM組成に関するエビデンス、スキャフォールドおよび欠損修復モデル、ならびに酸化ストレス、ミトコンドリア損傷、およびオートファジーに関連する比較ナノ粒子研究をマッピングするために研究を選定した。正式なメタ解析、バイアスリスクのスコアリング、または網羅的な系統的検索プロトコルは実施していない。したがって、本レビューは効果量の定量的推定としてではなく、エビデンスマップおよび研究アジェンダとして解釈することが最適である。
エビデンスの強さは、主張によって異なります。選定された真珠由来材料における直接的な骨形成活性は、中程度に支持されています。WSM特有の効果は妥当と考えられますが、調製方法に依存します。スキャフォールドを介した有用性は中程度に支持されているのみであり、構造的およびキャリアによる影響が混在しています。In vivoでの修復は有望ですが、追跡期間と安全性エンドポイントによって制限されています。真珠特有の高用量細胞毒性とオートファジー介在性障害は、フラックス、ROS、ミトコンドリア、炎症、および長期的なin vivoデータが収集されるまで、支持が不十分であるか、あるいは仮説的な段階にあります。
今後の展望
短期的な優先事項は、材料特性評価の標準化、活性を持つWSM成分の特定、およびオートファジー・フラックス測定法の最小要件の確立である。推奨される同一バッチのプロトコルでは、粒子径、形態、ゼータ電位、結晶相、培地中での凝集、WSM放出プロファイル、カルシウム放出、ROS、ミトコンドリア膜電位、リソソーム機能、オートファジー・フラックス、生存率、ALP、Runx2、OPN、OCN、および石灰化を測定すべきである。報告書には、投与量の指標、血清条件、曝露時間、細胞数への正規化、およびbafilomycin A1やクロロキンなどのフラックス阻害剤の使用有無を明記する必要がある。
長期的な目標は、個別化または欠損部位特異的な投与量ウィンドウの定義、大型動物モデルにおける長期的な安全性の評価、骨再生速度と分解速度の比較、および多施設共同での前臨床検証の完了である。Go/no-go基準には、許容可能な急性および遅延生存率、持続的なROSまたはミトコンドリア損傷の不在、細胞数で正規化したミネラル化の維持または増加、再現性のあるWSM放出、慢性炎症または異所性組織反応の不在、許容可能な重金属およびエンドトキシンプロファイル、ならびに局所および全身の代謝と適合する分解生成物が含まれるべきである(図 2)。
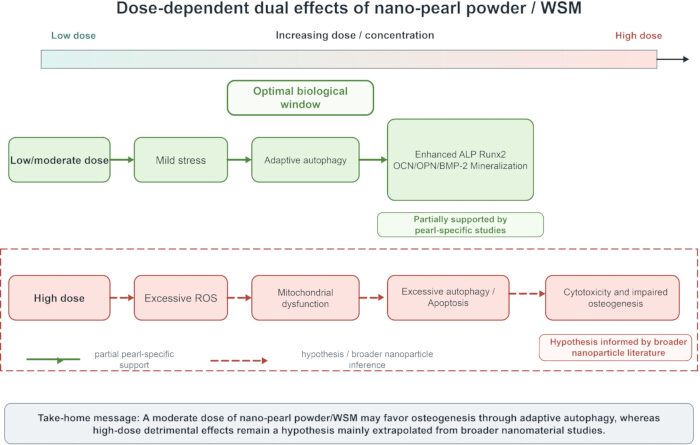
図 2: パール由来バイオマテリアルの用量ウィンドウモデル。低〜中程度の曝露ゾーンは、推定される骨形成促進ウィンドウを表す。中間ゾーンは、明確な有益性のない耐性領域を表す。高用量または長期曝露ゾーンは、パール特有の検証を必要とする仮説を表す。矢印のラベルは、粒子径、凝集、WSMの放出、および曝露期間によってゾーンの境界が変動し得ることを示している。こちらをクリックして、この図の拡大版を表示してください。
結論
選択された真珠由来およびWSM含有の製剤は、特定の前臨床モデルにおいて骨形成能を示すが、標準化された用量、放出、オートファジーフラックス、および安全性試験が行われていないため、これらのエビデンスをすべてのナノ真珠またはWSM製剤に一般化することはまだできない。最も強力な直接的エビデンスは、規定の細胞およびスキャフォールドシステムにおける骨形成促進に関するものである一方で、高用量の真珠特異的な毒性、オートファジー機能不全、免疫原性、重金属リスク、および慢性的バイオセーフティに関するエビデンスは不十分であり、比較材料から推外されていることが多い。したがって、本分野ではWSMおよびナノ真珠システムを、有望ではあるが検証が不完全なバイオマテリアル候補として扱うべきであり、今後の研究では、再現性のある特性評価、用量ウィンドウの定義、および骨形成と安全性エンドポイントの並行評価を優先させるべきである。
開示事項
著者に開示すべき利益相反はありません。
謝辞
著者らは、海南省科学技術人材イノベーションプロジェクトによる支援に感謝いたします。本レビューは、海南省科学技術人材イノベーションプロジェクト(KJRC2023D25)の資金提供を受けて作成されました。
参考文献
- Lamghari M, et al. Stimulation of bone marrow cells and bone formation by nacre: in vivo and in vitro studies. Bone. 1999;25(2 Suppl):91S-4S.
- Rousseau M, et al. The water-soluble matrix fraction from the nacre of Pinctada maxima produces earlier mineralization of MC3T3-E1 mouse pre-osteoblasts. Comp Biochem Physiol B Biochem Mol Biol. 2003;135(1):1-7.
- Heinemann F, Gummich M, Radmacher M, Fritz M. Modification of CaCO₃ precipitation rates by water-soluble nacre proteins. Mater Sci Eng C. 2011;31(2):99-105.
- Oliveira DV, et al. Identification of proteins with potential osteogenic activity present in the water-soluble matrix proteins from Crassostrea gigas nacre using a proteomic approach. ScientificWorldJournal. 2012;2012:765909.
- Sancho-Tomás M, et al. Calcium carbonate bio-precipitation in counter-diffusion systems using the soluble organic matrix from nacre and sea-urchin spine. Eur J Mineral. 2014;26(4):523-35.
- Li SG, et al. In vivo study on osteogenic efficiency of nHA/gel porous scaffold with nacre water-soluble matrix. Tissue Cell. 2024;88:102347.
- Ruan R, et al. Converting ocean nacre into bone mineral matrix composite for bone regeneration: in vitro and in vivo studies. Mater Des. 2024;245:113271.
- Liu B, et al. 3D printing nacre powder/sodium alginate scaffold loaded with PRF promotes bone tissue repair and regeneration. Biomater Sci. 2024;12(9):2418-33.
- Guo W, et al. Ionic substitution through bredigite doping for microstructure and performance adjustment in DLP 3D-printed TPMS porous HA bone scaffolds. Virtual Phys Prototyp. 2024;19(1).
- Guo W, et al. Biomimetic TPMS porous hydroxyapatite bone scaffolds doped with bioactive glass: digital light processing additive manufacturing, microstructure and performance. Compos Part A Appl Sci Manuf. 2025;193:108870.
- Guo W, et al. Niobium carbide-functionalized polylactic acid bone scaffold with near-infrared light-mediated shape memory and photothermal therapy for complex bone defects. Int J Biol Macromol. 2025;322(Pt 1):146578.
- Guo W, et al. Functionalized degradable soybean oil-based biomimetic porous scaffolds for complex bone defects: vat photopolymerization additive manufacturing, photothermal-mediated shape memory and tumor thermotherapy. Compos Sci Technol. 2026;265:111412.
- Guo W, et al. Multi-element CuFeSe₂ nanoparticle-functionalized 3D-printed polylactic acid scaffolds with photothermal shape memory and therapy for complex bone defects. Ceram Int. 2026. doi:10.1016/j.ceramint.2025.10.016.
- Chaturvedi R, Singha PK, Dey S. Water soluble bioactives of nacre mediate antioxidant activity and osteoblast differentiation. PLoS One. 2013;8(12).
- Xu J, et al. The osteoinductive effect of nano-nacre particles on MC-3T3 E1 preosteoblast through controlled release of water soluble matrix and calcium ions. Dent Mater J. 2019;38(6):981-6.
- Cheng Y, Zhang W, Fan H, Xu P. Water-soluble nano-pearl powder promotes MC3T3-E1 cell differentiation by enhancing autophagy via the MEK/ERK signaling pathway. Mol Med Rep. 2018;18(1):993-1000.
- Suwannasing C, et al. The osteoinductive effect of water-soluble matrix from nano-nacre particles of Haliotis diversicolor abalone on MC3T3-E1 osteoblasts. Appl Sci. 2025;15(6):2907.
- Bernier MC, El Kirat K, Besse M, Morandat S, Vayssade M. Preosteoblasts and fibroblasts respond differently to anatase titanium dioxide nanoparticles: a cytotoxicity and inflammation study. Colloids Surf B Biointerfaces. 2012;90:68-74.
- Inkielewicz-Stepniak I, et al. Titanium dioxide nanoparticles enhance production of superoxide anion and alter the antioxidant system in human osteoblast cells. Int J Nanomedicine. 2015;10:1095-107.
- Jin Y, et al. Oxidative stress-induced apoptosis of osteoblastic MC3T3-E1 cells by hydroxyapatite nanoparticles through lysosomal and mitochondrial pathways. RSC Adv. 2017;7(21):13010-8.
- Suh KS, Lee YS, Seo SH, Kim YS, Choi EM. Effect of zinc oxide nanoparticles on the function of MC3T3-E1 osteoblastic cells. Biol Trace Elem Res. 2013;155(2):287-94.
- Ye M, Shi B. Zirconia nanoparticles-induced toxic effects in osteoblast-like 3T3-E1 cells. Nanoscale Res Lett. 2018;13(1):353.
- Zielinska E, Tukaj C, Radomski MW, Inkielewicz-Stepniak I. Molecular mechanism of silver nanoparticles-induced human osteoblast cell death: protective effect of inducible nitric oxide synthase inhibitor. PLoS One. 2016;11(10).
- Andrée L, et al. Effect of hydroxyapatite nanoparticle crystallinity and colloidal stability on cytotoxicity. ACS Biomater Sci Eng. 2024;10(11):6964-73.
- Steckiewicz KP, Dmochowska M, Megiel E, Barcińska E, Inkielewicz-Stępniak I. Functionalization-dependent cytotoxicity of silver nanoparticles: a comparative study of chlorhexidine and metronidazole conjugates. Biomolecules. 2025;15(6):850.
- Xu J, Ze X, Zhao L, Sheng L, Ze Y. Titanium dioxide nanoparticles oral exposure induce osteoblast apoptosis, inhibit osteogenic ability and increase lipogenesis in mouse. Ecotoxicol Environ Saf. 2024;277:116367.
- Porter GC, et al. Endocytosed silver nanoparticles degrade in lysosomes to form secondary nanoparticle structures during expression of autophagy genes in osteogenic cells. Nanomedicine. 2021;33:102355.
- Chinese Pharmacopoeia Commission. Pharmacopoeia of the People’s Republic of China. Vol 1. Chinese Pharmacopoeia pearl powder quality standard. China Medical Science Press; Beijing; 2025.
- Wang X, Feng Z, Li J, Chen L, Tang W. High glucose induces autophagy of MC3T3-E1 cells via ROS-AKT-mTOR axis. Mol Cell Endocrinol. 2016;429:62-72.
- Liu W, et al. Dexamethasone-induced production of reactive oxygen species promotes apoptosis via endoplasmic reticulum stress and autophagy in MC3T3-E1 cells. Int J Mol Med. 2018;41(4):2028-36.
- Wang S, et al. Excessive production of mitochondrion-derived reactive oxygen species induced by titanium ions leads to autophagic cell death of osteoblasts via the SIRT3/SOD2 pathway. Mol Med Rep. 2020;22(1):257-64.
- Ruolan W, Liangjiao C, Longquan S. The mTOR/ULK1 signaling pathway mediates the autophagy-promoting and osteogenic effects of dicalcium silicate nanoparticles. J Nanobiotechnology. 2020;18(1):119.
- She C, Zhu LQ, Zhen YF, Wang XD, Dong QR. Activation of AMPK protects against hydrogen peroxide-induced osteoblast apoptosis through autophagy induction and NADPH maintenance: new implications for osteonecrosis treatment? Cell Signal. 2014;26(1):1-8.
- Zuo X, et al. Protective effect of photobiomodulation against hydrogen peroxide-induced oxidative damage by promoting autophagy through inhibition of PI3K/AKT/mTOR pathway in MC3T3-E1 cells. Oxid Med Cell Longev. 2022;2022:7223353.
- Shi Y, et al. Monotropein attenuates oxidative stress via Akt/mTOR-mediated autophagy in osteoblast cells. Biomed Pharmacother. 2020;121:109566.
- Chen F, et al. 5-(3′,4′-dihydroxyphenyl)-γ-valerolactone, a microbiota metabolite of flavan-3-ols, activates SIRT1-mediated autophagy to attenuate H₂O₂-induced inhibition of osteoblast differentiation in MC3T3-E1 cells. Free Radic Biol Med. 2023;208:309-18.
- Ling Z, et al. Copper-doped bioactive glass promotes matrix vesicles-mediated biomineralization via osteoblast mitophagy and mitochondrial dynamics during bone regeneration. Bioact Mater. 2025;46:195-212.
- Ha SW, Weitzmann MN, Beck GR Jr. Bioactive silica nanoparticles promote osteoblast differentiation through stimulation of autophagy and direct association with LC3 and p62. ACS Nano. 2014;8(6):5898-910.
- Kang C, et al. Involvement of autophagy in tantalum nanoparticle-induced osteoblast proliferation. Int J Nanomedicine. 2017;12:4323-33.
- Kang C, et al. Assessment of tantalum nanoparticle-induced MC3T3-E1 proliferation and underlying mechanisms. J Mater Sci Mater Med. 2021;32(11):133.
- Li L, et al. Nanotopography on titanium promotes osteogenesis via autophagy-mediated signaling between YAP and β-catenin. Acta Biomater. 2019;96:674-85.