本研究では、小児肺炎の公開トランスクリプトームデータ、マウス肺のシングルセルRNAシーケンシング、Paeonia由来化合物のスクリーニング、分子ドッキング、および分子動力学シミュレーションを統合し、好中球関連の炎症ターゲットを特定し、今後の検証に向けたカテキンとの予測相互作用を明らかにします。
この記事について
サマリー
要約
小児の肺炎には、過剰な炎症反応や免疫調節不全が頻繁に併発し、それが深刻な臨床結果につながる可能性があります。カテキンは複数の疾患において抗炎症活性を示すことが報告されていますが、肺炎におけるその役割と分子メカニズムは依然として不明です。本研究では、小児肺炎の公開バルクRNAシーケンシングデータ(GSE261482)および実験的肺炎モデルの公開マウス肺シングルセルRNAシーケンシングデータ(GSE295484)を用い、加重遺伝子共発現ネットワーク解析、差分発現解析、細胞型アノテーション、および遺伝子セット濃縮解析を行いました。カテキンと選択したタンパク質との相互作用は、分子ドッキングおよび分子動力学シミュレーションを用いて評価しました。その結果、肺炎関連形質に関連する主要な遺伝子モジュールが特定され、主に炎症および免疫関連パスウェイに濃縮された18個の候補遺伝子がスクリーニングされました。シングルセル解析により、これらの遺伝子は主に好中球および肺胞マクロファージに濃縮されており、炎症条件下では好中球の割合が増加していることが示されました。候補遺伝子としてMMP9、PYGL、およびGADD45Aが選定されました。ドッキングおよび動力学シミュレーションにより、カテキンとこれらの選択されたタンパク質との間に安定した予測相互作用があることが支持されました。カテキンは、好中球関連パスウェイを調節し、主要な免疫関連タンパク質と相互作用することで、肺炎関連の炎症パスウェイに関与している可能性があります。本研究は、肺炎におけるカテキンの作用をシステムレベルで提示し、さらなる実験的検証のための潜在的な標的を明らかにしました。
概要
肺炎は、主にMycoplasma pneumoniaeなどの感染因子によって引き起こされる、小児における一般的かつ潜在的に重篤な呼吸器疾患です。これは市中肺炎の主要な構成要素であり、過剰な炎症反応や免疫調節不全による著しい罹患率に関連しています1,2。腫瘍壊死因子-α (TNF-α) やインターロイキン-6 (IL-6) を含む炎症性サイトカインが、免疫細胞の動員、組織損傷、および肺機能不全を促進することで、疾患の進行において重要な役割を果たすことを示す証拠が増えています3。抗菌薬療法の進歩にもかかわらず、小児肺炎における炎症を駆動する分子メカニズムはまだ完全には解明されていません4。
フラボノイドは、その抗炎症作用および抗酸化作用により大きな注目を集めています5。茶や植物由来の食品に広く含まれる天然ポリフェノールであるカテキンは、さまざまな疾患モデルにおいて酸化ストレスおよび炎症反応を軽減させることが報告されています6。先行研究では、カテキンがMAPKおよびNF-κB経路を含む炎症性シグナル伝達カスケードを抑制し、サイトカイン発現を調節することで、炎症および代謝機能不全を緩和できることが示されています7。しかし、既存の研究の多くは代謝性疾患や心血管疾患に焦点を当てており、呼吸器系の炎症性疾患、特に肺炎におけるカテキンの役割については十分に解明されていません。さらに、肺炎におけるカテキン介在性の保護作用の根底にある分子標的およびメカニズムも不明なままです。
本研究は、肺炎におけるカテキンの潜在的な分子メカニズムを調査することを目的とした。カテキンが免疫調節に関与する主要なタンパク質およびシグナル伝達経路と相互作用することで、炎症反応を減弱させると仮説を立てた。この仮説を検証するため、ネットワーク薬理学、分子ドッキング、分子動力学シミュレーション、および単一細胞RNAシーケンシング解析を統合し、候補遺伝子を体系的に特定し、カテキンとの相互作用を評価した。さらに、免疫細胞の分布と遺伝子発現パターンを解析し、疾患の進行における好中球およびマクロファージの役割を探索した。
結果から、カテキンとPYGL、MMP9、GADD45Aを含む選択されたタンパク質との間に安定した予測結合が認められ、分子動力学シミュレーションを通じて構造安定性が維持されていることが示されました。加えて、単一細胞解析により、炎症条件下で免疫細胞、特に好中球の割合に有意な変動があることが明らかになりました。これらの知見は、カテキンが免疫細胞機能および主要なシグナル伝達経路に関与する抗炎症メカニズムに関連している可能性を示唆しています。本研究は、肺炎におけるカテキン関連の潜在的メカニズムをシステムレベルで提示するものであり、炎症性呼吸器疾患研究の候補化合物として、カテキンのさらなる検証を支持するものです。
プロトコル
本研究では、Gene Expression Omnibusデータベースから入手可能な、匿名化された公開データセットの二次分析を行いました。本研究のために、新たなヒト被験者の募集、動物実験、または臨床サンプルの収集や生成は行っていません。元のデータセットに関する倫理的承認およびインフォームド・コンセントは、元のデータを生成した研究の責任において行われています。したがって、今回の二次分析に際して、追加の倫理委員会の承認は必要ありませんでした。
データの収集および前処理
バルクRNAシーケンシング(RNA-seq)データは、Gene Expression Omnibus(GEO)データセットGSE2614828から取得した。本研究で使用した発現マトリックスには、小児肺炎サンプル139例と健常対照サンプル38例を含む、計177例の全血サンプルが含まれていた。利用可能なメタデータには、性別、病因分類、採取チューブ、バッチ、および疾患状態が含まれていた。肺炎サンプルは、元のデータセットの注釈に従い、確定細菌性(DB)、確定ウイルス性(DV)、推定細菌性(PB)、推定ウイルス性(PV)、または不明(U)としてアノテーションを行った。
シングルセルRNAシーケンシング(scRNA-seq)データは、実験的肺炎モデルのC57BL/6野生型マウスの肺組織から得られたGEOデータセットGSE2954849より取得した。このデータセットには、室気、PBS、またはE. coliに曝露し、吸引後48時間または96時間に回収した新生仔マウス(PND05)および若齢マウス(PND12)が含まれている。
加重遺伝子共発現ネットワーク解析 (WGCNA)
共発現ネットワークを構築するため、まず発現マトリックスをフィルタリングし、低発現の遺伝子を除去した。低発現遺伝子の除去後、中央絶対偏差 (MAD) を用いて変動性を評価した。MAD値が最も高い5,000個の遺伝子を選出し、Rを用いて加重遺伝子共発現ネットワーク解析 (WGCNA) に供した。ソフトしきい値パワーには、スケールフリートポロジー基準のR2> 0.8を満たしたため、15を適用した。このしきい値を用いて加重隣接行列を構築し、その後、トポロジカルオーバーラップ行列 (TOM) に変換した。次いで、TOMに基づく階層的クラスタリングツリーから遺伝子モジュールを検出した。肺炎関連の形質に関連するモジュールを特定するため、モジュールeigengeneを算出し、疾患の状態および病因との相関性を検定した。
発現変動解析
肺炎群と健康対照群をlimma Rパッケージを用いて比較し、発現変動遺伝子を特定した。多重検定補正にはBenjamini-Hochberg法を用いた。|log2 fold change| > 1および補正後p値 < 0.05の両方の閾値を満たした場合のみ、発現変動遺伝子として抽出した。
〜の同定 シャクヤク属由来の活性化合物およびターゲット予測
Paeoniaに含まれる生理活性化合物およびその潜在的な生物学的標的を系統的に特定するため、確立されたネットワーク薬理学のフレームワークに従い、信頼性と網羅性を確保するためのマルチデータベース統合戦略を採用した。まず、 シャクヤク 伝統中国医薬システム薬理学データベース(TCMSP, https://tcmsp-e.com)および、ETCMや文献ソースを含むその他の公開データベースから取得した。経口バイオアベイラビリティ(OB ≥ 30%)および薬物らしさ(DL ≥ 0.18)などの薬物動態パラメータに基づいて化合物をスクリーニングし、活性成分候補を特定した。
相補的なリガンドベースの手法を用いて、潜在的な標的タンパク質を予測した。既知の活性を持つリガンドと化合物の構造を比較して、可能性の高いヒト標的を特定するためにSwissTargetPrediction (http://www.swisstargetprediction.ch) を使用し、確率が0.1以上の予測のみを保持した。標的のカバー範囲を広げるため、Similarity Ensemble Approach (SEA, http://sea.bkslab.org) も併用し、標準的な標的予測では捉えられない相互作用を含む、タンパク質ファミリー全体の潜在的なオフターゲット関連性をスクリーニングした。さらにリガンドベースの予測を補完するため、PharmMapper Server (http://lilab.ecust.edu.cn/pharmmapper/) を利用して包括的なヒトタンパク質データベースに対するリバースファーマコフォアマッピングを行い、正規化フィットスコアが0.7以上の標的を選択した。加えて、標的同定の信頼性を高めるため、DrugBankやBindingDBなどの公共データベースから実験的に検証された化合物-標的相互作用を収集した。予測されたすべての標的は、その後UniProtデータベース (https://www.uniprot.org) を用いて、生物種を「Homo sapiens」に限定した上で、公式の遺伝子シンボルに標準化した。データの正確性を期すため、重複エントリーは削除した。統合された標的セットは、Paeoniaにおけるすべての予測および検証済み標的の和集合として定義し、これがその薬理効果の潜在的な分子基盤を表すものとした。カテキンはPaeonia由来の活性化合物の一つとして同定されており、抗炎症活性が十分に報告されているため、以降の分子ドッキングおよび分子動力学シミュレーションの代表化合物として選択した。
機能濃縮分析
clusterProfiler Rパッケージを用いて、ジーンオントロジー(GO)の生物学的プロセスおよび京都遺伝子・ゲノム百科事典(KEGG)パスウェイの機能濃縮解析を行った。偽発見率(FDR)が以下の値の場合に、濃縮された項を保持した。 < 0.05.
単一細胞RNAシーケンシング解析およびダウンストリーム解析
単一細胞RNAシーケンシングデータはSeuratを用いて処理した。ダウンストリーム解析には処理済みのGSE295484マトリックスを使用し、インポート後の細胞レベルでの追加フィルタリングは行わなかった。処理済みマトリックスには90,883個の細胞と26,511個の遺伝子が含まれていた。品質管理プロットでは、細胞あたりの検出遺伝子数について200および8,000、ミトコンドリアリード率について1.4%のリファレンスしきい値を用いた。データを正規化およびスケーリングし、主成分分析(PCA)にかけた。その後、細胞クラスタリングを行い、次元圧縮空間における細胞集団の可視化にt-SNEおよびuniform manifold approximation and projection(UMAP)を用いた。細胞の同定は、標準的なマーカー遺伝子に基づいて行った。マーカー遺伝子の特定には、only.pos = TRUE、min.pct = 0.25、およびlogfc.threshold = 0.25としたFindAllMarkersを使用した。
単一細胞レベルで候補遺伝子セットの活性を評価するため、AUCell Rパッケージを用いてAUCell解析を行った。あらかじめ定義された遺伝子シグネチャーの発現に基づいて細胞にスコアを付け、その濃縮パターンをUMAPプロットで可視化した。GSE295484については、吸引後48時間および96時間における室空気群、PBS群、およびE. coli群において、肺胞マクロファージや好中球を含む免疫細胞集団の割合を算出した。群間の差はノンパラメトリック統計検定を用いて評価した。単一細胞データセットから好中球マーカー遺伝子を特定し、以前に特定した候補遺伝子と交差させることで、さらなる解析のための主要な好中球関連遺伝子を抽出した。
分子ドッキング
分子ドッキングはAutoDock Vinaを用いて行い、受容体およびリガンドの調製はAutoDock Toolsを用いて行った。標的タンパク質の結晶構造は、GADD45A (PDB ID: 2KG4)、MMP9 (PDB ID: 6ESM)、およびPYGL (PDB ID: 3DDS)を含むProtein Data Bank (PDB)から取得した。タンパク質構造は、ドッキング前に水分子および共結晶化リガンドを削除して処理した。その後、極性水素原子を付加し、Gasteiger電荷を割り当てた。
カテキンの三次元構造をPubChemから取得し、AutoDock Toolsを用いて調製した。次にAutoDock Vinaを使用して、カテキンを各標的タンパク質にドッキングさせ、予測される結合親和性と相互作用パターンを評価した。ドッキング用のグリッドボックスパラメータは以下の通りとした。GADD45A-catechin:center_x = 0.131, center_y = -0.002, center_z = -0.018, size_x = 47.25, size_y = 47.25, size_z = 47.25。MMP9-catechin:center_x = -0.434, center_y = 43.036, center_z = 14.868, size_x = 47.25, size_y = 47.25, size_z = 47.25。PYGL-catechin:center_x = 88.408, center_y = -80.795, center_z = 105.959, size_x = 100.45, size_y = 100.45, size_z = 100.45。
分子動力学シミュレーション
タンパク質成分にはAMBER14SB力場を使用した。リガンドパラメータはsobtop_1.0 (dev3.1)を用いてGAFF2力場で作成し、RESP電荷を割り当てた。各タンパク質-リガンド複合体の溶媒和には、立方体シミュレーションボックス内でTIP3P水を用いた。系の中和および0.15 Mのイオン濃度を達成するため、Na⁺およびCl⁻イオンを添加した。長距離静電相互作用には、カットオフ値を1 nmとした粒子メッシュエバルト (PME) 法を用いた。結合拘束にはLINCSアルゴリズムを適用した。立体衝突を解消するため、最急降下法および共役勾配法を用いてエネルギー最小化を行った。
平衡化後、310 Kおよび1 barのNPT条件下で、Nosé–HooverサーモスタットおよびParrinello–Rahmanバロスタットを用いて制御し、プロダクションMDシミュレーションを実施した。各シミュレーションは、タイムステップ2 fsで100 nsの間実行した。
統計解析
すべての統計解析はRソフトウェアを用いて実施した。相関分析は、適宜ピアソン法またはスピアマン法を用いて行った。群間比較は、Kruskal–Wallis検定を含む非パラメトリック検定を用いて行った。p値 < 0.05を統計的に有意とみなした。
結果
WGCNAによる小児肺炎に関連する主要な遺伝子モジュールの同定
小児肺炎に関連する遺伝子モジュールを特定するため、肺炎患者および健康対照者の全血トランスクリプトームデータを用いてWGCNAを実施した。サンプルクラスタリング分析の結果、明らかな外れ値は認められず、以降の解析に適した良好なデータ品質であることが示された(図1A)。PCAにより、肺炎群と健康群の間に明確な分離傾向がさらに示され、疾患状態によってトランスクリプトームプロファイルが異なることが示唆された(図 1B)。スケールフリーネットワークを構築するため、遺伝子を中央値絶対偏差によってランク付けし、上位5,000個の遺伝子をネットワーク構築に選択した。また、スケールフリートポロジー適合指数(R2 > 0.8) と同時に、平均接続度は比較的低く維持し(図1C)。この閾値を用いて階層的クラスタリングを行った結果、異なる発現パターンを持つ複数の遺伝子モジュールが同定されました(図1D)。モジュールと形質の関係性の解析により、いくつかのモジュールが臨床表現型と有意に相関していることが明らかになった。特に、ブルーモジュールは疾患状態(肺炎 vs. 健康)と病因分類の両方と強い相関を示しており、疾患の進行および宿主応答において潜在的な役割を果たしていることが示唆された(図1E).
さらに、ブルーモジュールにおけるモジュールメンバーシップと遺伝子有意性の散布図分析では、強い正の相関(cor = 0.6, p = 2.1e−35)が示され、モジュール内で高度に結合している遺伝子が臨床的特性とも強く関連していることが明らかになりました(図 1F)。
ブルーモジュールと細菌性肺炎の病因との関連性
肺炎の病因による遺伝子発現の差をさらに調査するため、コントロール(C)、確定細菌性(DB)、確定ウイルス性(DV)、推定細菌性(PB)、推定ウイルス性(PV)、および不明(U)グループを含む複数の臨床分類を用いてWGCNAを実施した。モジュールと形質の関係解析により、いくつかのモジュールが特定の病因サブタイプと有意な相関を示すことが明らかになった。特に、ブルーモジュールはDBグループと最も強い正の相関を示し、細菌感染に特異的な宿主応答に関与している可能性が示唆された(図 2A)。
遺伝子クラスターのデンドログラムおよび対応するモジュール割り当てにより、モジュール構築の堅牢性と遺伝子クラスターの明確な分離がさらに確認されました(図 2B)。青色モジュールにおいて、モジュールメンバーシップと遺伝子有意性の分析を行ったところ、有意な正の相関(cor = 0.41, p = 7.8e−14)が認められ、このモジュール内で高度に接続された遺伝子が、病因的形質とも強く関連していることが示唆されました(図 2C)。
さらに、異なる病因グループ間でのモジュール固有遺伝子(eigengene)の発現を比較したところ、ブルーモジュールにおいて有意な差が認められました(Kruskal–Wallis検定、p = 1.5e−13)。具体的には、ブルーモジュールは他の病因カテゴリーと比較して、細菌性肺炎グループ、特にDBサブグループにおいて発現が上昇していました(図2D)。
18 シャクヤク属統合解析により同定された小児肺炎に関連する化合物由来の候補遺伝子
小児肺炎に関連する候補遺伝子および潜在的な シャクヤクに関連するターゲットについて、まず肺炎患者と健康対照者の間で差分的発現解析を行った。これらの基準を用いて、肺炎サンプルと健康対照サンプルの間で1,110個の差分的発現遺伝子(DEG)を同定し、そのうち524個が発現上昇遺伝子、586個が発現低下遺伝子であった。524個の発現上昇DEGは、以下の通り提供されている。 補足表 S1 (以下も参照 図3A)。さらに主要な遺伝子を絞り込むため、肺炎関連のDEG(発現変動遺伝子)と、糖尿病(DB)表現型に関連する遺伝子および予測ターゲットを共通して抽出した。 シャクヤクこの統合解析の結果、18個の重複遺伝子が特定され、疾患の進行におけるこれらの遺伝子の潜在的な役割が示唆されました。 ボタン属に関連する反応(図3B).
化合物と標的の相互作用ネットワークを構築し、~の活性成分間の関係を可視化しました。 シャクヤク および特定された候補遺伝子であり、化合物とターゲットとの間の広範な結合性が明らかになった(付随表 S2 および 図 3C). これら18個の遺伝子の生物学的機能を探索するため、機能濃縮解析を行った。GO生物学的プロセスの濃縮解析により、候補遺伝子は主に、炎症反応の調節、ペプチドホルモン応答、活性酸素種の代謝の正の調節、およびII型インターフェロンを介したシグナルの調節を含む免疫・炎症機能に関連していることが明らかになった(図3D)。さらにKEGG解析により、これらの遺伝子がIL-17およびNF-κBなどの炎症および免疫関連パスウェイに濃縮していることが示されました。κBシグナル伝達経路、ならびにグルカゴンシグナル伝達やステロイドホルモン生合成を含む代謝および内分泌関連経路(図 3D).
単一細胞トランスクリプトーム解析における好中球および肺胞マクロファージの候補遺伝子の濃縮
実験的肺炎における候補遺伝子の細胞分布を調査するため、マウス肺のscRNA-seqデータセットGSE295484を解析した。データの信頼性を評価するために品質管理解析を実施した。検出遺伝子数、UMIカウント、およびミトコンドリア遺伝子とリボソーム遺伝子の割合の分布は、処理済みマトリックスにおける単一細胞データが全体的に高品質であることを示した(図 4A)。散布図は、品質管理の可視化に使用した遺伝子検出およびミトコンドリア含有量の参照閾値を示している(図 4B)。
正規化と次元削減の後、細胞をクラスター化し、UMAPを用いて可視化した。好中球、肺胞マクロファージ、単球、上皮細胞、およびその他の免疫細胞やストローマ細胞を含む、異なる細胞集団が同定され、肺炎時における肺微小環境の細胞不均一性が示された(図 4C)。単一細胞レベルで18個の候補遺伝子の活性を評価するため、AUCell解析を行った。その結果、これらの細胞集団においてAUCスコアが高かったことから、遺伝子シグネチャーは主に好中球と肺胞マクロファージに濃縮されていることが示された(図 4D)。
マウス細菌性肺炎モデルにおけるPaeonia由来化合物ターゲットに関連する炎症性遺伝子
マウス実験的肺炎モデルにおける免疫細胞のダイナミクスをさらに調査するため、吸引後48時間および96時間における室気、PBS、およびE. coli群の肺胞マクロファージと好中球の割合を分析した。48時間後、E. coli感染下では、室気およびPBS条件と比較して肺胞マクロファージの顕著な減少が認められた一方、好中球の細胞割合は大幅に増加した(Figure 5A)。同様の傾向が96時間後にも観察され、E. coli刺激に反応して好中球の割合は高いままであったが、肺胞マクロファージは相対的に低いレベルを示した。これらの結果は、細菌感染中に好中球が著しく増殖することを示している。好中球の機能的特性を探索するため、好中球マーカー遺伝子を同定し、機能濃縮分析を行った。KEGG濃縮分析により、好中球マーカー遺伝子がTNF、MAPK、C型レクチン受容体経路を含む炎症性シグナル伝達に関連していることが示された(Figure 5B)。GO生物学的プロセス用語も、白血球遊走、白血球細胞間接着、防御反応の正の調節、および細菌由来分子への反応など、免疫応答機能に集中していた(Figure 5B)。好中球活性、肺炎、およびPaeoniaターゲットを繋ぐ鍵となる遺伝子を特定するため、好中球マーカー遺伝子と以前に同定した18個の候補遺伝子との積集合を求めた。この分析により、MMP9、PYGL、GADD45Aの3つの重複遺伝子が得られた(Supplementary Table S3およびFigure 5C)。最終的に、単一細胞遺伝子発現の可視化により、これら3つの遺伝子が主に好中球集団で発現していることが示され(Figure 5D)、好中球を介した炎症反応における潜在的な役割がさらに裏付けられた。
分子ドッキングにおけるカテキンと選択されたタンパク質の予測結合親和性
カテキンとタンパク質の潜在的な相互作用をさらに評価するため、選択されたタンパク質(MMP9、PYGL、およびGADD45A)と、Paeonia由来の活性化合物であるカテキンとの間で分子ドッキング解析を行った。GADD45A、MMP9、およびPYGLの結晶構造はProtein Data Bankから取得し、カテキンの3D構造はPubChemデータベースから取得した。ドッキングの結果、カテキンは選択した3つのタンパク質すべての部位に結合し得ることが示唆され、結合エネルギーはGADD45Aで−6.3 kcal/mol、MMP9で−7.6 kcal/mol、PYGLで−8.0 kcal/molであった(図6)。これらの選択されたタンパク質の中で、カテキンはPYGLに対して最も強い予測結合親和性を示し、次いでMMP9、GADD45Aの順であった。このことは、代謝関連タンパク質との優先的な相互作用の可能性を示唆している。
分子レベルでは、カテキンは各タンパク質の主要なアミノ酸残基と複数の水素結合および疎水性相互作用を形成していました。GADD45Aにおいて、カテキンはGLN33やTRP135などの残基と相互作用していました。MMP9では、GLN227、TYR248、HIS236を含む残基との安定した水素結合が観察されました。同様に、PYGLにおいて、カテキンはLYS554やASN631などの残基と複数の水素結合を形成し、結合安定性に寄与していました。水素結合に加えて、相互作用解析によりファンデルワールス力およびπ関連相互作用が明らかになり、予測されたリガンド-タンパク質複合体の安定性を高めるマルチモードの結合パターンが示されました。総合すると、これらの結果は、カテキンがMMP9、PYGL、およびGADD45Aと安定した予測複合体を形成できることを示唆しています。ただし、これらの相互作用の治療上の関連性については、さらなる実験的検証が必要です。
カテキンと選択されたタンパク質との間に予測される安定な相互作用
分子ドッキングで得られたドッキングポーズに基づき、カテキン-タンパク質複合体の安定性をさらに評価するため、100 nsの分子動力学シミュレーションを実施した。RMSD解析の結果、3つのタンパク質-リガンド複合体すべてがシミュレーション期間中に平衡状態に達したことが示された。そのうち、PYGL–catechinおよびMMP9–catechin複合体は比較的安定したRMSD変動を示したが、GADD45A–catechin複合体はわずかに高い変動を示したものの、許容範囲内に留まった(図 7A)。Rg解析では、すべての複合体がシミュレーションを通じて安定した構造的コンパクトさを維持し、経時的な変動は最小限であったことが示された(図 7B)。同様に、SASA解析により、すべての複合体で安定した露出レベルが実証され、構造的安定性がさらに裏付けられた(図 7C)。水素結合解析の結果、カテキンと選択されたタンパク質との間に持続的な相互作用があることが明らかになった。PYGL–catechin複合体は、MMP9およびGADD45Aと比較して、経時的により多くの水素結合を維持しており、より強力で安定した結合相互作用が示唆された(図 7D)。
残基レベルの柔軟性をRMSFを用いて評価した。その結果、ほとんどの残基で変動が低く、わずかな領域のみに高い柔軟性が認められたことから、リガンドの結合がタンパク質に大きな構造的不安定性を誘発しなかったことが示された(図 7E)。総合すると、これらの知見は、カテキンがMMP9、PYGL、およびGADD45Aと安定な予測複合体を形成し、特にPYGL–カテキンの相互作用において最強の安定性が観察されることを示唆している。これらの結果は、カテキンと選択したタンパク質との間に安定な予測相互作用が存在することを裏付けており、今後の実験的検証に向けた計算科学的な根拠となる。
データ可用性:
本研究では、公開データセットを解析しました。バルクRNA-seqデータセットは、Gene Expression Omnibus (GEO) のアクセッション番号 GSE261482 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE261482) から利用可能です。また、マウス肺 scRNA-seq データセットは、アクセッション番号 GSE295484 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE295484) から利用可能です。本論文で使用した処理済み出力データは、補足表 S1、補足表 S2、および補足表 S3として提供されています。
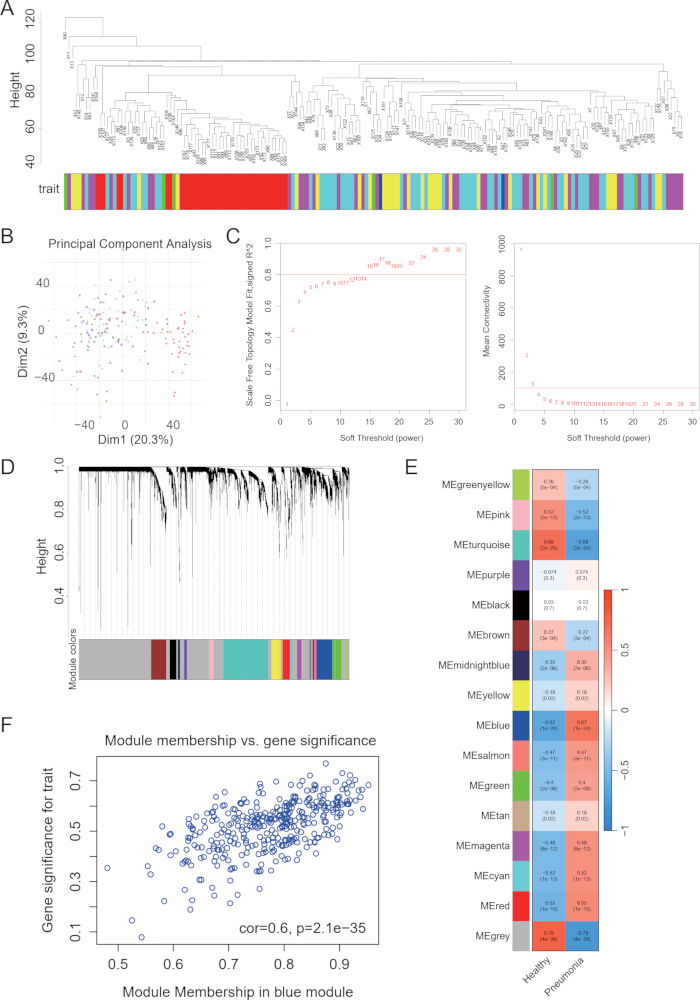
図 1WGCNAの構築および疾患関連モジュールの同定 (A遺伝子発現プロファイルからサンプルのクラスタリングを行い、対応する形質アノテーションをデンドログラムの下に表示した。B主成分分析により、第1および第2主成分に沿ったサンプルの分布が示されている。Cソフトしきい値処理のパワーは、スケールフリー・トポロジー適合指標および平均接続度を用いて評価した。D) 遺伝子はトポロジカルオーバーラップに基づいてクラスター化され、モジュールの割り当ては色で示されている。 (Eモジュール固有遺伝子と臨床形質の相関をヒートマップで示す。F青色モジュールにおける、モジュールメンバーシップと遺伝子有意性の関係を示す。 こちらの図の拡大版を表示するには、ここをクリックしてください。
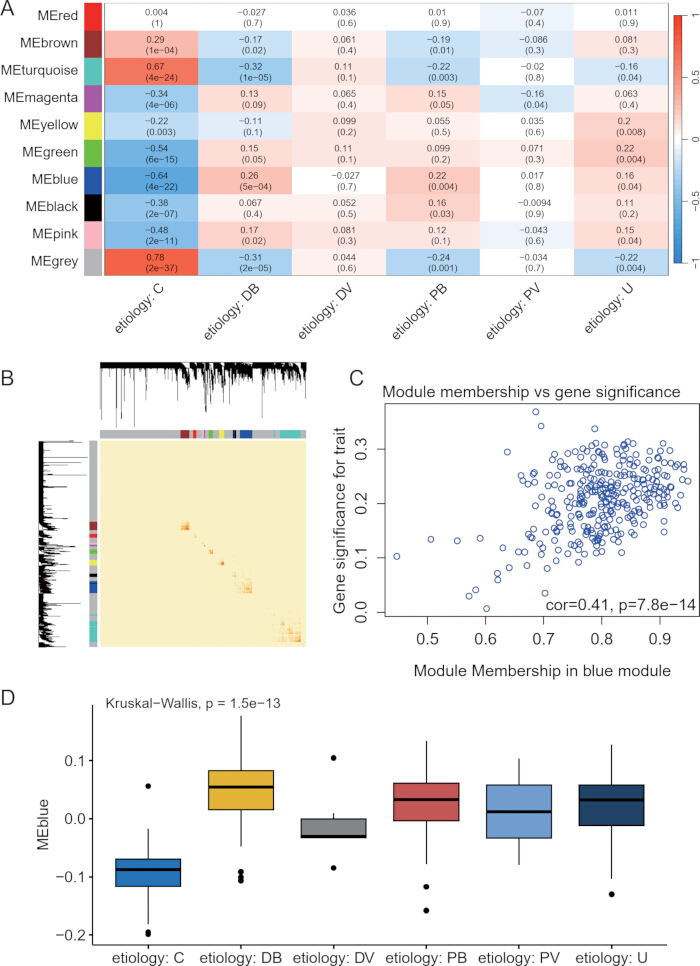
図2肺炎の病因に基づくWGCNA解析。 (A) コントロール、確定的な細菌性、確定的なウイルス性、可能性の高い細菌性、可能性の高いウイルス性、および不明を含む病因グループにおけるモジュール固有遺伝子相関を示す。 (Bトポロジカル・オーバーラップに基づくクラスター分析デンドログラムから、遺伝子モジュールを割り当てた。C) 青色モジュールのモジュールメンバーシップおよび遺伝子有意性がプロットされている。 (D) 青色モジュールの固有遺伝子(eigengene)発現を病因群間で比較している。略語:WGCNA = 加重遺伝子共発現ネットワーク解析、C = コントロール、DB = 細菌性確定、DV = ウイルス性確定、PB = 細菌性疑い、PV = ウイルス性疑い、U = 不明。 こちらの図の拡大表示をご覧になるには、ここをクリックしてください。
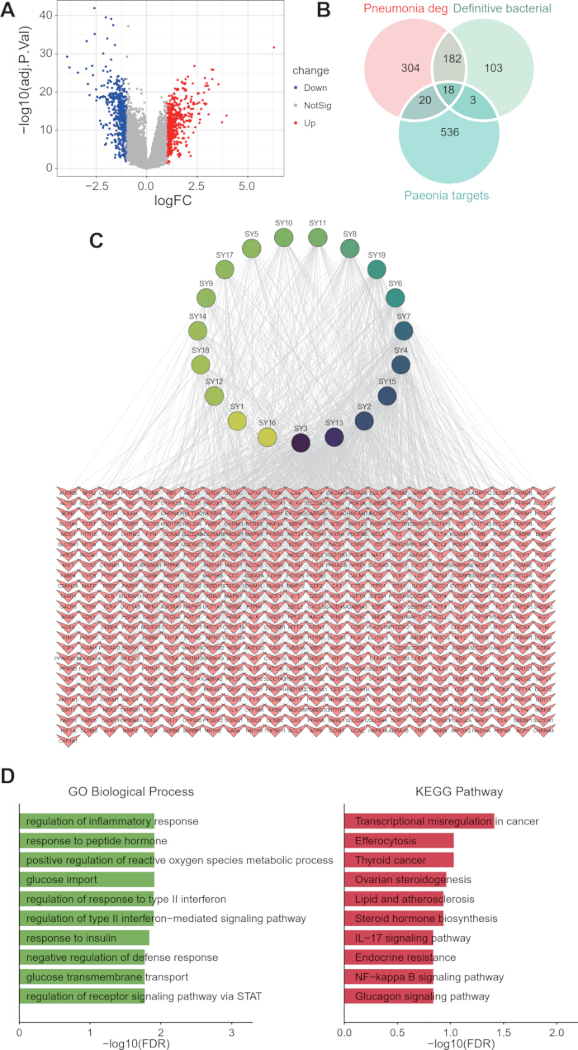
図3候補遺伝子の同定および機能解析。 (A)肺炎サンプルとコントロールサンプルの間で差次的に発現している遺伝子を示すボルケーノプロット。(B肺炎の変動遺伝子(DEG)、確定的な細菌関連遺伝子、およびそれらの重複を示すベン図 シャクヤク 標的遺伝子。C) の活性成分とターゲット間の相互作用ネットワーク ボタン属 および候補遺伝子。(D重なり合う遺伝子の、ジーンオントロジー(Gene Ontology)生物学的プロセス濃縮(左)およびKEGGパスウェイ濃縮(右)を示す棒グラフ。 こちらの図の拡大版を表示するには、ここをクリックしてください。
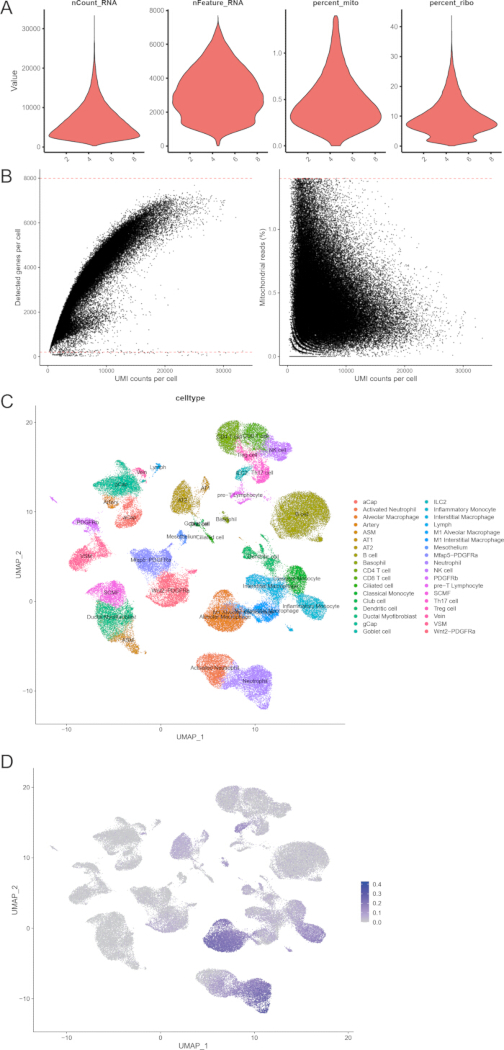
図 4. 肺炎の単一細胞トランスクリプトーム解析。(A>) nCount_RNA、nFeature_RNA、ミトコンドリア遺伝子割合、およびリボソーム遺伝子割合を含む品質管理指標のバイオリンプロット。(B>) UMIカウント、細胞あたりの検出遺伝子数、およびミトコンドリア遺伝子割合の相関を示す散布図。(C>) 細胞型でアノテーションされた細胞クラスターのUMAP可視化。(D>) 単一細胞における候補遺伝子シグネチャーのAUCellスコアを示すUMAPプロット。こちらをクリックして、この図の拡大版を表示してください。
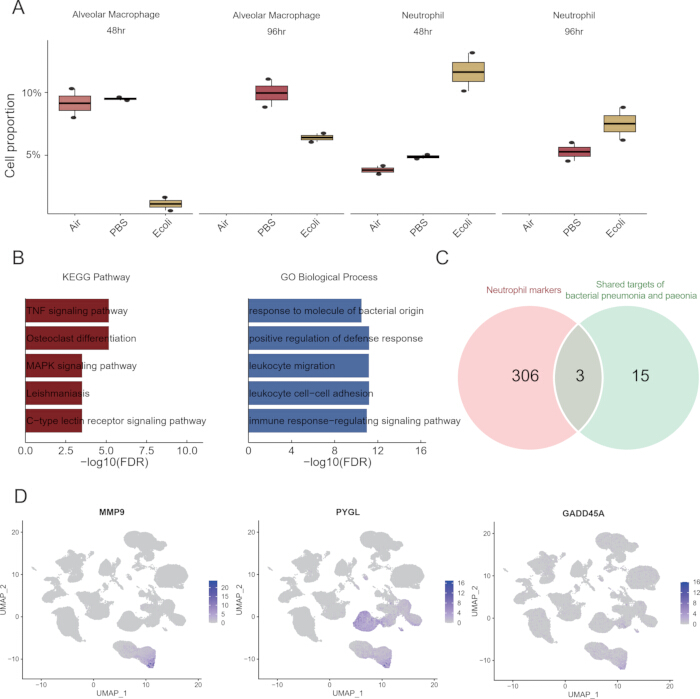
図 5. 好中球のダイナミクスと主要遺伝子の同定。(A) 48 h および 96 h における異なる条件下(air、PBS、および E. coli)での肺胞マクロファージと好中球の細胞割合を示すボックスプロット。(B) 好中球マーカー遺伝子の KEGG パスウェイ濃縮(左)および GO 生物学的プロセス濃縮(右)を示す棒グラフ。(C) 好中球マーカー遺伝子と、細菌性肺炎および Paeonia の共通ターゲットとの重複を示すベン図。(D) 細胞集団における MMP9、PYGL、および GADD45A の発現パターンを示す UMAP プロット。こちらのリンクをクリックして、この図の拡大版を表示してください。
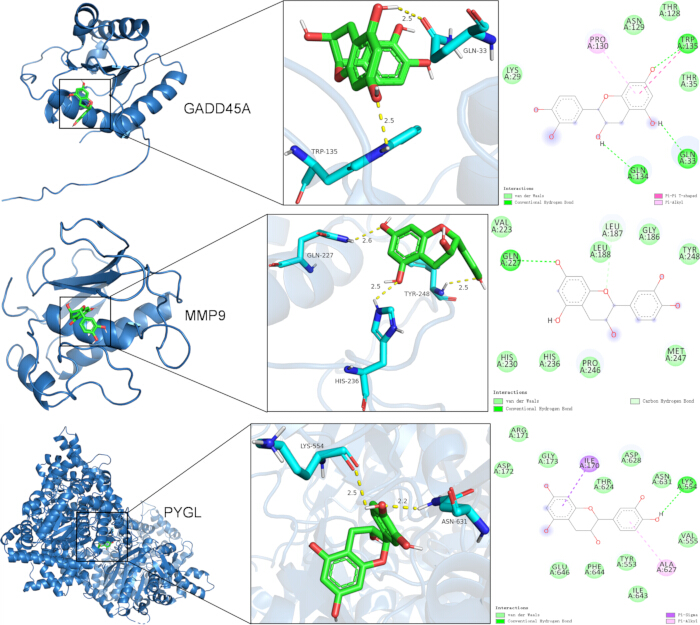
図6カテキンと選択したタンパク質の分子ドッキング。 カテキンのGADD45A(上)、MMP9(中)、およびPYGL(下)への結合を示すタンパク質-リガンド複合体の三次元構造。拡大パネルは結合領域と主要なアミノ酸残基との接点を示す。二次元図は、カテキンと選択したタンパク質との間の水素結合およびその他の相互作用を示す。 この図の拡大版を表示するには、ここをクリックしてください。
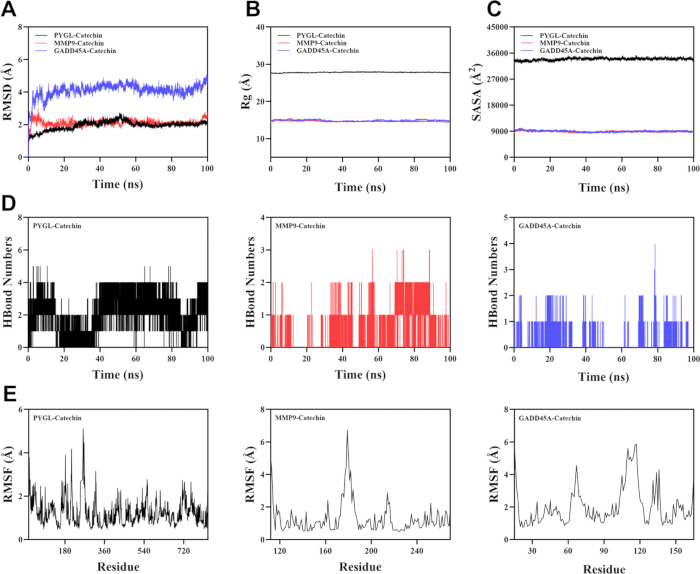
図7タンパク質-リガンド複合体の分子動力学シミュレーション。 (A) シミュレーション中の複合体の平方二乗平均平方根偏差。 (B回転半径の時間経過に伴う変化。C) シミュレーション中の溶媒接触表面積。(D) カテキンと標的タンパク質間の水素結合数の経時変化。 (E) 各複合体におけるタンパク質残基の平方平均二乗変動。略語:RMSD = 平方平均二乗偏差、Rg = 慣性半径、SASA = 溶媒接触表面積、RMSF = 平方平均二乗変動。 この図の拡大版を表示するには、ここをクリックしてください。
補足表S1. 小児肺炎サンプルと健康対照サンプルの比較における発現上昇差分的発現遺伝子。遺伝子シンボル、log2 fold change、P値、調整済みP値、および関連するlimma統計量を含む。 こちらのリンクをクリックしてファイルをダウンロードしてください。
補足表 S2. ネットワーク解析に使用したPaeonia化合物-ターゲット相互作用表。化合物識別子、化合物名、および関連するターゲット遺伝子を含む。 こちらをクリックしてファイルをダウンロードしてください。
補足表S3. GSE295484からのシングルセルマーカー遺伝子表。P値、平均log2フォールドチェンジ、発現率、補正P値、細胞クラスターアノテーション、および遺伝子シンボルを含む。 こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
肺炎は乳幼児および小児における病気と死亡の主要な世界的原因であり、公衆衛生上の大きな負担となっています1。小児肺炎の病態生理は複雑であり、過剰な炎症反応、酸化ストレス、ならびに免疫および代謝経路の調節不全を含む、相互に関連する複数のプロセスが関与しています2,10,11。先行研究では、特に好中球やマクロファージなどの自然免疫細胞の制御不能な活性化が、前炎症性サイトカイン、蛋白分解酵素、および活性酸素種(ROS)の放出を通じて肺組織の損傷に寄与することが示唆されています12。抗菌薬や支持療法の進歩にもかかわらず、これらの根本的な分子メカニズムを標的とした効果的な戦略は依然として限られています。したがって、炎症を調節し免疫恒常性を回復させることができる新規治療薬を特定することは非常に重要です。
フィトケミカル、特にカテキンは、その抗炎症作用、抗酸化作用、および免疫調節能が十分に実証されているため、ますます注目を集めています13,14,15。しかし、肺炎においてカテキンがどのような詳細な分子メカニズムで保護効果を発揮するかは、依然として大部分が不明です。本研究では、トランスクリプトーム解析、シングルセルRNAシーケンシング、分子ドッキング、および分子動力学シミュレーションを組み合わせた統合的なアプローチを用いて、小児肺炎におけるカテキン関連の潜在的なメカニズムを体系的に探索しました。
初期の仮説と一致して、WGCNAによって同定されたブルーモジュールは、疾患の状態および病因分類の両方と有意に関連していることが結果から示され、このモジュールが小児肺炎に関与するコアな転写プログラムを代表していることが示唆された。差分的発現解析とPaeoniaターゲット予測をさらに統合した結果、18個の重複遺伝子が明らかになり、これらは炎症反応、活性酸素種代謝、およびII型インターフェロンシグナル伝達を含む免疫関連パスウェイに濃縮されていた16,17。これらの知見は、免疫応答の調節不全と酸化ストレスが疾患進行の中心的な駆動要因であるという考えをさらに支持するものである。
単一細胞RNAシーケンシング解析により、候補遺伝子セットが主に好中球および肺胞マクロファージに濃縮されていることが明らかになり、肺炎の進行における自然免疫細胞の中心的な役割が浮き彫りになりました。好中球の割合は、E. coli 刺激下、特に48時間後および96時間後において有意に増加しており、急性炎症期に持続的な活性化が起こっていることを示しています。これは、炎症性メディエーターやROSを介した病原体除去と組織損傷という、好中球の二面的な役割と一致しています18。さらなる解析により、免疫応答、代謝調節、および細胞ストレスを繋ぐ潜在的なリンクとして、3つの重要遺伝子(MMP9、PYGL、GADD45A)が同定されました。MMP9は細胞外マトリックスの再構築および炎症性浸潤に関与し19、GADD45Aはストレスおよび免疫応答を調節しますが、PYGLは免疫活性化における代謝リプログラミングの関与を示唆しています20,21。分子ドッキングおよびダイナミクスシミュレーションでは、良好な結合エネルギー、ならびに安定したRMSD、Rg、SASAプロファイル、持続的な水素結合、低いRMSF値に裏付けられ、カテキンがこれらの選択したタンパク質に安定して結合することが予測されました。これらの知見は、カテキンがこれらの炎症および代謝標的に関連している可能性を示唆していますが、直接的な調節効果については、さらなる実験的検証が必要です22。
カテキンは、抗炎症作用に加えて、酸化ストレスと代謝バランスを調節することで保護的な役割を果たす可能性があります。ROS関連パスウェイの濃縮は、カテキンが抗酸化能を高めることで酸化損傷を軽減させる可能性を示唆しており、これはカテキンの抗酸化特性に関する先行報告と一致しています。さらに、PYGLなどの代謝酵素の関与は、炎症性疾患における新たな概念である免疫代謝の調節において、カテキンが潜在的な役割を担っていることを強調しています。
本研究にはいくつかの限界があることを認める必要がある。第一に、本研究は主に公開されているトランスクリプトームデータセットと計算解析に基づいており、予測されたメカニズムはまだ実験的に検証されていない。分子ドッキングおよび分子動力学シミュレーションにより、カテキンと候補標的タンパク質との間の安定した相互作用が示唆されたが、これらの知見は機能的な抑制、活性化、または治療効果を証明するものではない。カテキンによるMMP9、PYGL、およびGADD45Aへの調節効果を検証し、肺炎における治療上の関連性を決定するためには、さらなる生化学的アッセイ、細胞実験、およびin vivo研究が必要である。第二に、小児肺炎データセットで利用可能な臨床情報が限られていた。GSE261482データセットは、小児肺炎患者および健康対照群からの全血トランスクリプトームデータとともに、性別、病因分類、採取チューブ、バッチ、および疾患状態を含むメタデータを提供していた。
しかしながら、個々の年齢、肺炎の重症度、サンプリング時の治療状況、およびその他の疾患経過に関する情報を含む詳細な臨床変数は、本研究で使用したGEOメタデータでは完全には利用できなかった。したがって、臨床的な重症度、治療段階、または年齢サブグループによるさらなる層別分析を行うことはできなかった。第三に、バルクRNA-seqおよびシングルセルRNA-seqのデータセットは、異なる生物学的背景から得られたものである。GSE261482は小児患者の全血サンプルから生成されたものであるが、GSE295484は実験的肺炎モデルにおけるC57BL/6野生型マウスの肺組織から生成されたものである。したがって、シングルセルの結果は、ヒト小児肺炎における直接的な検証としてではなく、炎症細胞集団および候補遺伝子の分布に関する細胞コンテキストの裏付けとなるエビデンスとして解釈されるべきである。加えて、E. coli誘発マウス肺炎モデルは、細菌性、ウイルス性、細菌性の可能性、ウイルス性の可能性、および原因不明を含む、小児肺炎の不均一な病因を完全には代表していない。
最終的に、MMP9、PYGL、およびGADD45Aの選択は、統合的なバイオインフォマティクススクリーニングと既知の生物学的関連性に基づいたものであるが、好中球関連炎症におけるこれらの正確な役割およびカテキンによる調節機構については、まだ確認が必要である。これらの知見を検証し、カテキンのトランスレーショナルな可能性を明らかにするためには、小児臨床コホート、ヒト単一細胞データセット、標的特異的な機能アッセイ、および実験的肺炎モデルを用いた今後の研究が必要である。
要約すると、本研究は、カテキンが肺炎における好中球関連の炎症反応や、免疫調節、酸化ストレス、および代謝経路に関与する特定の遺伝子と関連している可能性を示唆しています。バルクRNAシーケンシング、シングルセルRNAシーケンシング、分子ドッキング、および分子動力学シミュレーションの統合解析を通じて、本研究では疾患関連遺伝子モジュールを特定し、カテキンのドッキングおよびシミュレーション解析の対象としてMMP9、PYGL、およびGADD45Aを選択しました。好中球および肺胞マクロファージにおける候補遺伝子の濃縮と、カテキンと選択したタンパク質との間に観察された安定した予測相互作用は、今後の実験的検証に向けた潜在的なメカニズムを支持するものです。全体として、これらの知見は肺炎におけるカテキン関連の潜在的なメカニズムにシステムレベルの視点を提供しますが、これらの観察結果を検証し、治療上の関連性を明らかにするには、さらなる実験的および臨床的研究が必要です。
開示事項
著者は開示すべき利益相反をありません。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| AMBER14SB force field 種類:力場 | 分子動力学シミュレーション用のタンパク質力場 | ||
| AUCell R package 種類:Rパッケージ | シングルセル遺伝子セット活性スコアリング | ||
| AutoDock Tools 種類:ソフトウェア | 受容体およびリガンドの調製 | ||
| AutoDock Vina 種類:ソフトウェア | 分子ドッキング | ||
| BindingDB 種類:データベース | BindingDB | 実験的に検証された化合物-標的相互作用;原稿にURL/バージョンは記載なし | |
| clusterProfiler R package 種類:Rパッケージ | GOおよびKEGG濃縮解析 | ||
| DrugBank 種類:データベース | DrugBank | 実験的に検証された化合物-標的相互作用;原稿にURL/バージョンは記載なし | |
| ETCM database 種類:データベース | ETCM | Paeonia活性化合物スクリーニング;原稿にURL/バージョンは記載なし | |
| GAFF2 force field 種類:力場 | 分子動力学シミュレーション用のリガンド力場 | ||
| GROMACS 2022 種類:ソフトウェア | GROMACS | 分子動力学シミュレーション | |
| GSE261482 種類:公開バルクRNA-seqデータセット | Gene Expression Omnibus (GEO) | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE261482 | 小児肺炎および健常対照群の全血発現データ |
| GSE295484 種類:公開scRNA-seqデータセット | Gene Expression Omnibus (GEO) | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE295484 | 実験的肺炎モデルからのマウス肺シングルセルRNAシーケンシングデータ |
| limma R package 種類:Rパッケージ | 発現変動解析 | ||
| PharmMapper Server 種類:データベース/ツール | PharmMapper | http://lilab.ecust.edu.cn/pharmmapper/ | 逆ファーマコフォアマッピング |
| Protein Data Bank (PDB) 種類:データベース | Protein Data Bank | GADD45A (2KG4)、MMP9 (6ESM)、およびPYGL (3DDS)のタンパク質構造 | |
| PubChem database 種類:データベース | PubChem | カテキンの三次元構造 | |
| R software 種類:ソフトウェア | R Project | 統計解析 | |
| Seurat R package 種類:Rパッケージ | シングルセルRNAシーケンシングの品質管理、正規化、クラスタリング、UMAP可視化、および細胞アノテーション | ||
| Similarity Ensemble Approach (SEA) 種類:データベース/ツール | SEA | http://sea.bkslab.org | 潜在的なオフターゲット相互作用の予測 |
| sobtop_1.0 (dev3.1) 種類:ソフトウェア | リガンドパラメータの生成 | ||
| SwissTargetPrediction 種類:データベース/ツール | SwissTargetPrediction | http://www.swisstargetprediction.ch | 化合物標的予測 |
| TIP3P water model 種類:水モデル | タンパク質-リガンド複合体の溶媒和 | ||
| Traditional Chinese Medicine Systems Pharmacology Database (TCMSP) 種類:データベース | TCMSP | https://tcmsp-e.com | Paeonia活性化合物スクリーニング |
| UniProt database 種類:データベース | UniProt | https://www.uniprot.org | 遺伝子シンボルの標準化 |
| WGCNA R package 種類:Rパッケージ | 加重遺伝子共発現ネットワーク解析 |
参考文献
- Chen L, Chen Y, Huang J, Zhang J. LncRNA LINC00707 serves as a sponge of miR-382-5p to alleviate lipopolysaccharide (LPS)-induced WI-38 cell injury through upregulating NKAP in infantile pneumonia. Autoimmunity. 2022;55(5):328-38.
- Li S et al. miRNA-302e attenuates inflammation in infantile pneumonia through the RelA/BRD4/NF-κB signaling pathway. Int J Mol Med. 2019;44(1):47-56.
- Kennedy II DE et al. Contribution of Puma to inflammatory resolution during early pneumococcal pneumonia. Front Cell Infect Microbiol. 2022;12:886901.
- Wang C et al. Suppressing neutrophil itaconate production attenuates Mycoplasma pneumoniae pneumonia. PLoS Pathog. 2024;20(11):e1012614.
- Shen N et al. Plant flavonoids: classification, distribution, biosynthesis, and antioxidant activity. Food Chem. 2022;383:132531.
- Peng X, McClements DJ, Liu X, Liu F. EGCG-based nanoparticles: synthesis, properties, and applications. Crit Rev Food Sci Nutr. 2025;65(12):2177-98.
- Li T et al. Synergistic anti-inflammatory effects of quercetin and catechin via inhibiting activation of TLR4-MyD88-mediated NF-κB and MAPK signaling pathways. Phytother Res. 2019;33(3):756-67.
- Viz-Lasheras S et al. A diagnostic host-specific transcriptome response for Mycoplasma pneumoniae pneumonia to guide pediatric patient treatment. Nat Commun. 2025;16(1):673.
- Michki SN et al. Age-dependent immune responses and resident cell dynamics in young mice following pneumonia. iScience. 2026;29(1):114219.
- Jin M et al. Catechin-functionalized cationic lipopolymer based multicomponent nanomicelles for lung-targeting delivery. Adv Mater. 2024;36(17):e2302985.
- Shin-Ya M et al. Effects of tea, catechins and catechin derivatives on Omicron subvariants of SARS-CoV-2. Sci Rep. 2023;13(1):16577.
- Zheng Q, Li J, Yang L. Systematic investigation of catechin/cyclodextrin encapsulated polymeric nanospheres for the treatment and nursing care of pediatric pneumonia-causing human pathogens. Microb Pathog. 2025;205:107524.
- Zhang Y et al. Anti-inflammatory effect of chlorogenic acid in Klebsiella pneumoniae-induced pneumonia by inactivating the p38MAPK pathway. Int J Med Microbiol. 2023;313(2):151576.
- Gleeson K, Reynolds HY. Life-threatening pneumonia. Clin Chest Med. 1994;15(3):581-602.
- Ross SM. Resveratrol: the anti-inflammatory effects of a phytochemical compound on pneumonia, respiratory syncytial virus, and severe acute respiratory syndrome (SARS-CoV-2). Holist Nurs Pract. 2023;37(2):110-2.
- Hu H et al. Hybrid biomimetic membrane coated particles-mediated bacterial ferroptosis for acute MRSA pneumonia. ACS Nano. 2023;17(12):11692-712.
- Dong L et al. A ROS-responsive nanoprodrug-engineered phage biotherapy for precision treatment of multidrug-resistant Gram-negative bacterial pneumonia. J Control Release. 2025;382:113708.
- Wiegman CH et al. Oxidative stress in ozone-induced chronic lung inflammation and emphysema: a facet of chronic obstructive pulmonary disease. Front Immunol. 2020;11:1957.
- Jiang T et al. Dual role of Baimao-Longdan-Congrong-Fang in inhibiting Staphylococcus aureus virulence factors and regulating TNF-α/TNFR1/NF-κB/MMP9 axis. Phytomedicine. 2025;139:156477.
- Zhang H et al. The attenuated Mycoplasma bovis strain promotes apoptosis of bovine macrophages by upregulation of CHOP expression. Front Microbiol. 2022;13:925209.
- Borella R et al. Metabolic reprograming shapes neutrophil functions in severe COVID-19. Eur J Immunol. 2022;52(3):484-502.
- Xu Y et al. Exosomal miR-155-5p drives widespread macrophage M1 polarization in hypervirulent Klebsiella pneumoniae-induced acute lung injury via the MSK1/p38-MAPK axis. Cell Mol Biol Lett. 2023;28(1):92.