小児のMycoplasma pneumoniae肺炎(MPP)において、MiR-93-5pはToll様受容体4(TLR4)を直接的に標的とします。その発現低下は、疾患の進行およびそれに伴う消化器系損傷に寄与している可能性があります。これらの知見は、miR-93-5pがMPPおよび消化器系損傷を伴うMPPの潜在的な診断バイオマーカーとして有用である可能性を示唆しています。
この記事について
サマリー
要約
miR-93-5pは急性肺損傷の調節に関与していることが示唆されていますが、消化器系損傷を伴う小児Mycoplasma pneumoniae肺炎(MPP)におけるその役割と診断的価値はまだ明らかではありません。本研究では、小児のMPPおよびそれに伴う消化器合併症の潜在的な診断バイオマーカーとしてのmiR-93-5pの役割を評価しました。MPPの小児患者および健康対照群から臨床検体を収集しました。miR-93-5pの発現量は、逆転写定量PCRによって定量しました。Mycoplasma pneumoniae(MP)感染A549細胞を用いて細胞レベルのMPPモデルを構築し、細胞生存率および前炎症性サイトカインの変化を評価しました。miR-93-5pによるToll様受容体4(TLR4)の標的化は、ルシフェラーゼレポーターアッセイを用いて評価しました。診断能は、受信者動作特性(ROC)曲線分析を用いて評価しました。健康対照群と比較して、MPP患者ではmiR-93-5pレベルが有意に低下しており(P < 0.001)、MPP単独の患者と比較して、消化器系損傷を伴うMPP患者ではさらに低下していました。MP感染は細胞生存率を低下させ、IL-6およびTNF-αレベルを上昇させましたが、miR-93-5pの過剰発現はこれらの影響を軽減しました。TLR4の発現はMP感染後に増加し、miR-93-5pによって負に制御されていました。臨床的には、MPP患者における消化器系損傷は、より低いmiR-93-5pレベルと関連していました。ROC曲線分析の結果、健康対照群とMPP患者の区別、およびMPP単独の患者と消化器系損傷を伴うMPP患者の区別において、良好な診断能が示されました。miR-93-5pは小児MPPにおいてTLR4を直接的に標的としており、その発現低下が疾患の進行およびそれに伴う消化器系損傷に寄与している可能性があります。これらの知見は、miR-93-5pがMPPおよび消化器系損傷を伴うMPPの潜在的な診断バイオマーカーとして有用である可能性を示唆しています。
概要
Mycoplasma pneumoniae (MP)は、小児における肺炎の主要な病原体であり1、世界中で深刻な呼吸器疾患を引き起こすことが多い。MPは主に肺感染症を引き起こすが、複数の臓器系にわたる肺外合併症を引き起こすこともある2。M. pneumoniae感染時に最も頻繁に報告される胃腸症状には、吐き気、嘔吐、下痢、腹痛が含まれる3。また、一連の胃腸疾患および症状が、M. pneumoniae関連肺外疾患(MPEPDs)の一部として特定されている2。消化器系損傷を合併したM. pneumoniae肺炎(MPP)の小児患者は、疾患の重症度を悪化させ、管理を困難にする臨床的課題を抱えている4。肺感染症と腸機能不全の間の相互作用が、この関連性の根底にある可能性を示すエビデンスが現れている5,6。MP感染中の免疫応答の調節不全も、消化器系損傷に関連している可能性がある7。
診断手法が進歩しているものの8、他の呼吸器感染症との臨床症状の重複や、肺外病変の多様性があるため9、MPPの早期かつ正確な特定は依然として困難です。肺と腸は共通粘膜免疫系の主要な構成要素であり、肺疾患時の腸管障害やその逆の効果に反映されるように、これらの器官は互いの機能に影響を及ぼし合うことがあり、この現象は肺-腸クロストーク(lung-gut crosstalk)として知られています10。さらに、小児看護ケアは主に呼吸器症状の管理に重点が置かれており11、一方で胃腸症状は見落とされるか、あるいは治療の副作用によるものとされる可能性があります。この乖離は、支持的な看護介入を最適化するために、肺と胃腸の両方の評価を統合した包括的なアセスメントが必要であることを強調しています12。近年の分子生物学的研究により、MPPにおける肺病理と腸管炎症の両方に関与する炎症性シグナル伝達経路の調節因子が明らかになっています12,13.
MiR-93-5pは急性肺損傷の病態に関与しており、その発現低下は肺機能の低下および炎症反応の増悪と相関することが報告されている14,15。これらの知見に基づき、MPP患児の血清においてもmiR-93-5pが同様に低下しているという仮説を立てた。TargetScanデータベースを用いたバイオインフォマティクス解析により、Toll様受容体4(TLR4)がmiR-93-5pの直接的な標的候補として同定された。TLR4は肺腸軸の調節に重要な役割を果たすことが報告されており16,17、したがってMPPにおける消化管合併症に関連している可能性が考えられた。そこで本研究では、消化器系損傷を合併した小児MPP患者におけるmiR-93-5pの関与について検討した。
プロトコル
本研究は、揚州大学附属病院の倫理委員会によって審査および承認されました(承認番号:2023-YKL01-(16);2023年1月17日)。関連する臨床検査のため、各参加者から末梢静脈血サンプルを採取しました。参加に先立ち、すべての参加者の法定後見者からインフォームドコンセントを得ました。本プロトコルで使用した試薬、装置、および器具は、材料表に記載しています。
1. 臨床検体の採取
2023年2月から2024年12月の間に、揚州大学附属病院にて2〜14歳の小児108名を登録した。108名全員がMPPと診断されており、それは胸部画像診断および鼻咽頭検体を用いたMP DNAのポリメラーゼ連鎖反応(PCR)検査によって確認された。鼻咽頭スワブ中のMP DNAは、MP特異的なP1アドヘシン遺伝子を標的とした定量的リアルタイムPCR法により検出した。
患者は疾患の状態に基づき、DSIを伴わないMPP群(n = 60)とDSIを伴うMPP群(n = 48)の2群に分類された。DSIは、下痢(1日3回以上の緩便または水様便が[期間]継続)を含む、少なくとも1つの消化器症状が存在することと定義された。 >(24時間)、悪心、嘔吐、または反跳痛の有無にかかわらず持続する腹痛があり、かつ少なくとも1つの異常な臨床検査値および/または確定的腹部画像所見を伴うこととした。異常な臨床検査値には、血清トランスアミナゼ、アミラーゼ、またはリパーゼの上昇、および/またはD-乳酸やエンドトキシンなどの腸管透過性マーカーの上昇が含まれた。確定的な腹部画像所見には、超音波検査またはコンピュータ断層撮影(CT)で検出された腸壁の肥厚、腸間膜リンパ節の腫大、または腹腔内液貯留が含まれた。さらに、定期検診を受けた健康な小児60名を対照群とした。
- 組み入れ基準
消化管症状に加え、臨床検査または画像診断で異常が認められた患者をDSI群に分類した。 - 除外基準
除外基準は、ウイルス性または細菌性肺炎、結核、研究使用薬に対する薬物アレルギーの既往、免疫疾患、栄養不良、腎機能障害、胃腸管奇形、および入院前の抗菌薬治療歴とした。
2. 細胞培養およびMPPモデル
マイコプラズマ・ニューモニエ 標準株ATCC 15531をPPLOブロスで培養した。ヒト肺胞上皮A549細胞は、10%胎児牛血清を含むRPMI-1640培地を用い、加湿条件下で 37 °C 5% CO含有₂.
MPPのin vitroモデルを構築するため、A549細胞にM. pneumoniae懸濁液を感染多重度(MOI)1:10018で感染させた。感染後、培養液を交換することで、未結合の細菌を除去した。感染効率は、感染後の培養上清中におけるMP DNAをqPCRで検出することにより確認した。
3. プラスミド構築およびトランスフェクション
MiR-93-5p mimic、TLR4過剰発現(oe-TLR4)プラスミド、およびそれらに対応するネガティブコントロールを市販品として合成した。MP感染A549細胞へのトランスフェクションには、脂質ベースのトランスフェクション試薬を用いた。トランスフェクション効率は、トランスフェクションの48時間後に逆転写定量PCR(RT-qPCR)により評価した。
4. RT-qPCR解析
実験終了時に回収したA549細胞から全RNAを抽出した。リン酸緩衝生理食塩水(PBS)を用いて細胞を溶解し、均質化した。フェノール系RNA抽出試薬を用いて全RNAを精製した。miR-93-5pの逆転写には逆転写キットを使用し、mRNA解析用の相補的DNAは市販の逆転写試薬を用いて合成した。RT-qPCR解析はSYBR Green法を用いて実施した。
5. MTTアッセイ
各実験群からトランスフェクションしたA549細胞を回収し、1ウェルあたり2 × 10³個の密度で96ウェルプレートに播種した。続いて、各ウェルに20 µLのメチルチアゾリルジフェニルテトラゾリウムブロミド(MTT)試薬を添加した。37 °Cでさらに2時間インキュベートした後、上清を慎重に除去した。代謝活性のある細胞によって形成されたホルマザン結晶を、アッセイの手順に従って溶解させた。マイクロプレートリーダーを用いて490 nmにおける光学密度(OD)を測定し、細胞生存率を間接的に定量した。
6. 酵素結合免疫吸着アッセイ
インターロイキン-6 (IL-6) および腫瘍壊死因子-α (TNF-α) のレベルを測定するため、市販の酵素結合免疫吸着測定法 (ELISA) キットを使用した。アッセイは製造元の指示に従って実施した。正確性と再現性を確保するため、2回の独立した実験反復において、各測定を3連(triplicate)で行った。
7. デュアルルシフェラーゼレポーターアッセイ
TLR4の3′非翻訳領域(UTR)内におけるMiR-93-5p結合部位をTargetScanデータベースを用いて予測した。野生型(WT)または変異型(MUT)配列を含むフラグメントをルシフェラーゼリポーターベクターにクローニングした。脂質ベースのトランスフェクション試薬を用いて、500 ngのWTまたはMUT構築物を、miR-93-5pミミックまたはコントロールとともにA549細胞に共導入した。48時間後、デュアルルシフェラーゼリポーターアッセイを用いてルシフェラーゼ活性を測定した。トランスフェクション効率を補正するため、ホタルルシフェラーゼ活性をレニラルシフェラーゼ活性で標準化した。
8. ウェスタンブロッティングアッセイ
ウェスタンブロッティングでは、細胞ライセートをローディングバッファーと混合し、10,000 × gで3分間遠心分離した。上清をドデシル硫酸ナトリウム-ポリアクリルアミドゲル電気泳動に供し、タンパク質をポリビニリデンフルオリド膜に転写した。膜を5%牛血清アルブミン(BSA)で室温で1時間ブロッキングした後、Tween 20および5% BSAを含むTris緩衝生理食塩水中で1:1000に希釈したglyceraldehyde-3-phosphate dehydrogenase (GAPDH)およびinhibitor kappa B alpha (IκBα)に対する一次抗体を用いて4 °Cで一晩インキュベートした。3回洗浄後、膜をHRP標識ヤギ抗ウサギIgG(1:500)で室温で1時間インキュベートした。さらに洗浄を行い、強化化学発光基質を用いてタンパク質バンドを可視化し、化学発光イメージングシステムで撮影した。画像解析ソフトを用いて、3回の独立した実験から標的タンパク質およびGAPDHのバンド強度を定量化した。
9. 統計解析
統計解析は統計解析ソフトウェアを用いて行いました。測定データの正規性はShapiro-Wilk検定を用いて評価しました。正規分布したデータは平均値として提示しています。 ± 標準偏差で示し、2群間の比較には独立サンプルt検定を、多群間の比較には一元配置分散分析(ANOVA)を用いた。ANOVAで全体的な有意差が認められた場合は、Tukeyのポストホック検定を用いてペア比較を行った。非正規分布のデータはMann-Whitney U検定を用いて分析した。カテゴリー変数は件数および割合で表記し、カイ二乗検定を用いて比較した。MPPまたはDSIを伴うMPPの予測におけるmiR-93-5pの診断能を評価するため、受信者動作特性(ROC)曲線分析を用いた。DSIを伴うMPPに関連する予測因子を特定するため、多変量ロジスティック回帰分析を行った。モデルに投入した変数は、年齢、性別、発熱期間、抗菌薬投与期間、および中央値で二分化したmiR-93-5p発現量とした。両側P値 <0.05を統計的有意水準とした。
結果
小児MPPにおけるMiR-93-5pの減少
小児MPPにおけるバイオマーカーとしての可能性を検討するため、miR-93-5pの診断能を評価した。図1Aに示すように、miR-93-5pの発現は、健康対照群と比較して小児MPP患者で有意に減少していた。2群の人口統計学的および血液学的特性を表1にまとめる。年齢または性別分布において、群間に統計的な有意差は認められなかった(P > 0.05)。しかし、末梢血白血球数(WBC)、好中球比率(Net%)、およびC反応性蛋白(CRP)値は、健康対照群と比較してMPP群で有意に上昇していた(P < 0.001)。
MPP患者と健康な子供を区別する miR-93-5p の診断能をさらに評価するため、受信者動作特性(ROC)曲線分析を行った(Figure 1B)。曲線下面積(AUC)は 0.9009 [95% 信頼区間 (CI): 0.8537–0.9482] であり、感度は 80.56%、特異度は 88.33% であった。これらの結果は、血清 miR-93-5p レベルの低下が小児 MPP と関連していることを示している。
MPP細胞モデルにおけるmiR-93-5pの影響
MPP細胞モデルにおけるmiR-93-5pの影響を評価するため、一連のin vitro実験を行った。対照細胞と比較して、MPP細胞モデルではmiR-93-5pの発現が低下していた(図 2A)。また、MP感染はA549細胞の生存率低下に関連していた(図 2B)。さらに、対照群と比較して、MPPモデルでは前炎症性サイトカインであるIL-6およびTNF-αのレベルが上昇していた(図 2C)。
miR-93-5pの機能的な影響をさらに評価するため、MP感染A549細胞においてmiR-93-5p過剰発現モデルを構築した(図2D)。miR-93-5pの過剰発現は、miR-93-5pを過剰発現させていないMPPモデルと比較して、細胞生存率を著しく増加させた(図2E)。これらの結果と一致して、miR-93-5pの発現増加に伴い、IL-6およびTNF-αの産生が減少した(図2F)。以上の結果は、MP感染時においてmiR-93-5pの発現低下が細胞生存率の低下および炎症反応の増強に関連しており、一方でmiR-93-5pの過剰発現がこれらの変化を抑制したことを示している。
MiR-93-5pはTLR4を標的とする
miR-93-5pとTLR4の調節関係を明らかにするため、バイオインフォマティクス解析を行い、TLR4 mRNAの3′非翻訳領域(UTR)内にmiR-93-5pの予測結合部位を同定した(図3A)。MP細胞モデルでは、対照群と比較してTLR4の発現が増加していた(図3B)。続いて、ルシフェラーゼレポーターアッセイを用いて、予測された相互作用を評価した。miR-93-5pミミックを共導入したところ、野生型構築物のルシフェラーゼ活性が低下し、予測部位への特異的な結合が示された(図3C)。
MP感染細胞においてmiR-93-5pを過剰発現させると、ミミック処理を行わなかった感染コントロールと比較してTLR4の発現が減少した(図 3D)。TLR4調節に関連する下流への影響をさらに調査するため、TLR4を過剰発現させたA549細胞モデルを構築した(図 3E)。ウェスタンブロット解析により、TLR4の過剰発現に伴いIκBαレベルが上昇することが示された(図 3F)。
MP感染後、TLR4の過剰発現は対照細胞と比較して細胞生存率を著しく低下させたが、miR-93-5pを同時に過剰発現させるとこの低下が回復した(Figure 3G)。炎症性サイトカインの測定では、TLR4の過剰発現によって前炎症性メディエーターのレベルが上昇したが、miR-93-5pを過剰発現させると、TLR4が過剰発現している条件下であってもこれらの変化が抑制されることが示された(Figure 3H)。これらの知見は、miR-93-5pがTLR4の発現を負に調節し、MP感染に伴う細胞変化を抑制することを示唆している。
MPPおよびDSIを伴うMPPにおけるmiR-93-5pの診断的価値
過去の報告により、肺および結腸組織におけるTLR4の関与が記述されている16。そのため、MPPにおけるmiR-93-5pと消化管損傷との潜在的な関連性を臨床的に評価した。図4Aに示すように、MPP+DSI群ではMPP群と比較してmiR-93-5pの発現が低下していた。
人口統計学的および血液学的特性を表2にまとめる。年齢または性別において、群間に有意な差は認められなかった。しかし、発熱期間および抗菌薬の使用期間は、DSIを合併した患者で有意に長かった(P < 0.05)。
ROC曲線分析を用いて、DSIを伴うMPP症例とDSIを伴わない症例を区別するmiR-93-5pの診断的価値を評価した。AUCは0.7866(95% CI: 0.6889–0.8843)であった。 (図4B)、 感度85.71%、特異度57.45%で。
多変量ロジスティック回帰分析の結果、MP感染時の消化器系損傷に関連する因子として、miR-93-5pの低発現、発熱期間の長期化、および抗菌薬投与期間の延長が特定された(表3; P < 0.05).
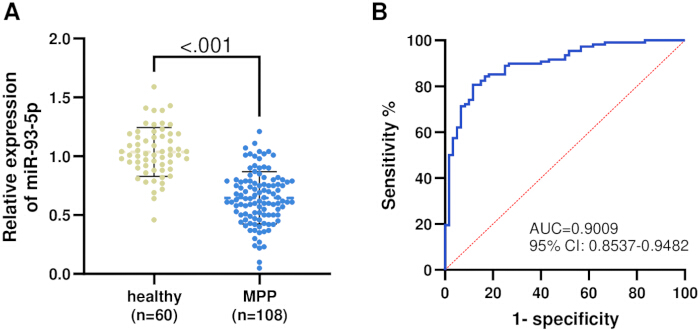
図 1: 健康対照群 (n = 60) および MPP 患者 (n = 108) における miR-93-5p の発現と診断的価値。(A) MPP 患者では miR-93-5p の発現が低下していた。 (B) miR-93-5p の ROC 曲線分析。ここをクリックして、この図の拡大版を表示してください。
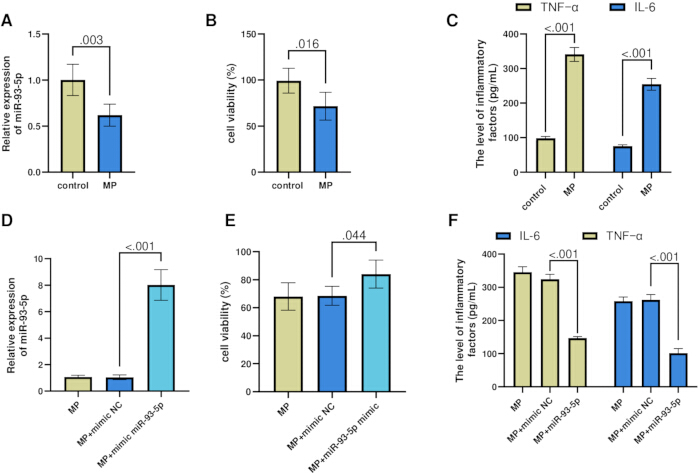
図 2: MP感染細胞モデルにおけるmiR-93-5pの機能的影響。(A) MP感染モデルにおいてmiR-93-5pの発現が減少した。 (B) MP感染モデルにおいて細胞生存率が低下した。 (C) MP感染モデルにおいてTNF-αおよびIL-6レベルが上昇した。 (D) miR-93-5p mimicの導入効率。 (E) miR-93-5pの過剰発現により細胞生存率が向上した。 (F) miR-93-5pの過剰発現によりTNF-αおよびIL-6レベルが低下した。n = 3. P < 0.05, P < 0.01, P < 0.001. こちらのリンクをクリックして、この図の拡大版を表示してください。
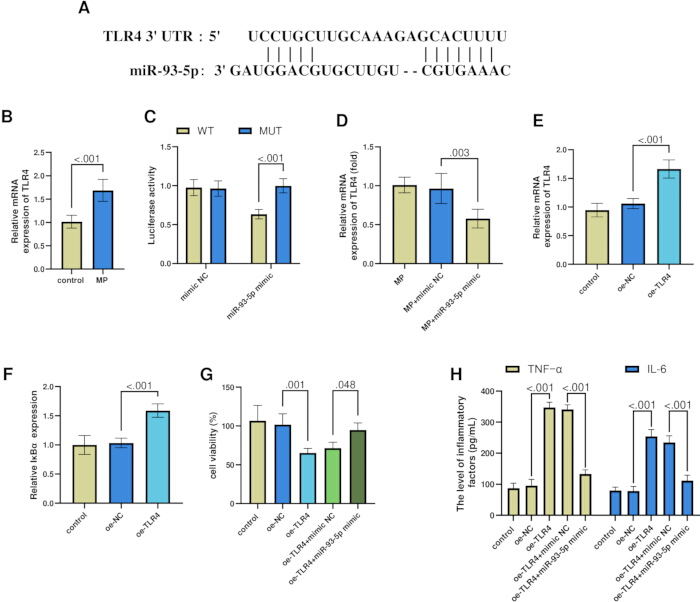
図 3: MiR-93-5pはTLR4を直接標的とする。(A) miR-93-5pとTLR4の間の予測結合部位。 (B) MP感染モデルにおけるTLR4の発現。 (C) デュアルルシフェラーゼレポーターアッセイ。 (D) miR-93-5pによるTLR4の負の調節。 (E) TLR4過剰発現の効率。 (F) IκBαのウェスタンブロット解析。 (G) 細胞生存率。 (H) TNF-αおよびIL-6レベル。n = 3. P < 0.05, P < 0.01, P < 0.001. こちらのリンクをクリックして、この図の拡大版を表示してください。
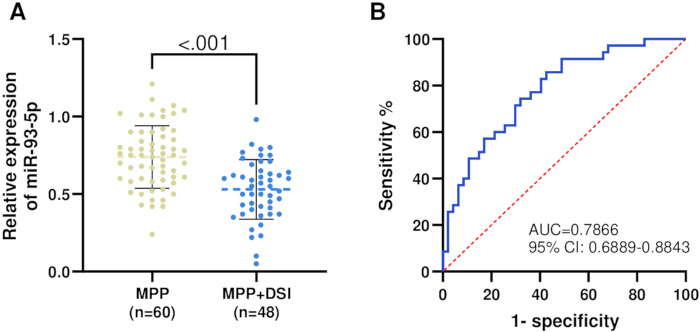
図 4: MPP患者 (n = 60) および DSI を伴う MPP 患者 (n = 48) における miR-93-5p の発現および診断的価値。(A) MPP+DSI 群における miR-93-5p の発現。 (B) miR-93-5p の ROC 曲線解析。この図の拡大版を表示するには、ここをクリックしてください。
| 変数 | 健康群(n = 60) | MPP (n = 108) | P |
| 年齢(歳) | 6.81± 3.14 | 7.12 ± 3.55 | 0.559 |
| 性別(オス/メス) | 28/32 | 49/59 | 0.872 |
| WBC (× 109/L) | 7.27 ± 0.89 | 9.86 ± 1.36 | <0.001 |
| CRP (mg/L) | 2.35 ± 0.17 | 11.53 ± 2.01 | <0.001 |
| 純率 (%) | 42.55 ± 5.62 | 56.51 ± 15.40 | <0.001 |
表1:健康対照群とMPP患者における人口統計学的特性およびルーチン血液パラメータの比較この表は、年齢、性別、WBC、好中球比率、好酸球比率、好塩基球比率、およびCRPを含む、健康対照群とMPP患者の人口統計学的特性およびルーチン血液学的パラメータをまとめたものである。群間比較および対応するP値が示されている。
| 変数 | MPP (n = 60) | MPP+DSI (n = 48) | P |
| 年齢(歳) | 6.88 ± 3.87 | 7.42 ± 3.11 | 0.441 |
| 性別(オス/メス) | 31/29 | 28/20 | 0.494 |
| WBC (× 10⁹/L) | 8.9 ± 0.89 | 11.05 ± 0.76 | <0.001 |
| CRP (mg/L) | 10.94 ± 1.62 | 12.27 ± 2.22 | <0.001 |
| 正味% | 55.87 ± 14.75 | 57.32 ± 16.29 | 0.629 |
| 発熱期間(日) | 4.60 ± 1.83 | 7.26 ± 1.04 | <0.001 |
| 抗生物質の使用期間(日) | 4.65 ± 1.147 | 6.29 ± 0.771 | <0.001 |
表2:MPP患者とMPP+DSI患者における人口統計学的特性および日常血液パラメータの比較この表は、MPP単独の患者とDSIを合併したMPP患者の間で、人口統計学的特性、日常的な血液学的パラメータ、および関連する臨床的特性を比較したものである。群間比較および対応するP値が示されている。
| 変数 | または | 95%信頼区間 | p値 | |
| 下げる | 上部 | |||
| miR-93-5p(低発現 vs 高発現) | 6.702 | 1.487 | 30.211 | 0.013 |
| 年齢 | 1.126 | 0.286 | 4.437 | 0.866 |
| 性別 | 1.071 | 0.27 | 4.248 | 0.923 |
| 発熱期間 | 73.416 | 15.018 | 358.895 | <0.001 |
| 抗生物質の使用期間 | 7.921 | 1.877 | 33.421 | 0.005 |
表3:消化器系損傷を合併したMP感染症児のロジスティック回帰分析この表は、MP感染症の小児における消化器系損傷に関連する因子のロジスティック回帰分析の結果を示す。分析には、各変数のOR、95% CI、およびP値が含まれている。
略語:Baso%、好塩基球割合;CI、信頼区間;CRP、C反応性蛋白;DSI、消化器系損傷;Eos%、好酸球割合;IκBα、抑制因子kappa B alpha;IL-6、インターロイキン-6;MP、Mycoplasma pneumoniae;MPP、Mycoplasma pneumoniae肺炎;NC、陰性対照;Net%、好中球割合;oe-TLR4、TLR4過剰発現;OR、オッズ比;ROC、受信者動作特性;TLR4、Toll様受容体4;TNF-α、腫瘍壊死因子-α;WBC、白血球数。
データ可用性:
図および表の根拠となる生の数値データは、補足表1として提供されています。
補足表 1:図および表の生数値データ。 こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
MP感染は主に肺の病原体であると考えられていますが、肺以外の複数の臓器系に影響を及ぼす多様な肺外合併症を引き起こす可能性があります19,20。新たな証拠により、肺-腸軸に沿った相互作用が示唆されており、肺疾患の過程で放出される炎症性メディエーターが、腸内フローラのバランス21および腸機能22を乱します。この双方向の相互作用は、呼吸器症状と胃腸の健康の両方に対処する包括的な患者評価の重要性を強調しています。そのため、血清循環バイオマーカーは、診断的または予後的価値を持つ可能性のある低侵襲ツールとして注目を集めています23,24。MiRNAは、その安定性と、MPの病態生理に関与する炎症関連シグナル伝達経路の調節における役割から、有望な候補として浮上しています25,26,27。本研究では、小児MPP、特に消化器系の損傷を合併した場合におけるmiR-93-5pの役割と臨床的重要性を体系的に探索しました。miR-93-5pレベルは、健康な対照群と比較してMPPの小児で低下しており、消化器系損傷を伴う症例ではさらに低下していました。これらの知見は、肺疾患におけるmiR-93-5pの調節異常の潜在的な役割と、肺外症状のバイオマーカーとなる可能性を示しています。
MiRNAは重症肺炎において、有望な感度、特異度、および総合的な診断精度を備えた診断的価値を示しています28,29。臨床的に、DSIを合併したMPPの小児は、消化器合併症のない小児と比較して、発熱期間が長く、抗菌薬治療期間が延長していました。多変量ロジスティック回帰分析では、これらの臨床パラメータとともに、miR-93-5pレベルの低下が消化器系の関与と独立して関連していました。さらに、ROC曲線分析により、DSIを伴うMPP患者とDSIを伴わない患者を区別する上で、血清miR-93-5pが良好な診断性能を持つことが示されました。したがって、miR-93-5pの測定は、小児のMP感染における早期特定およびリスク層別化にさらなる価値を提供する可能性があります。
日常的な臨床炎症マーカーに対する血中miR-93-5pの診断性能に関して、本知見は、miR-93-5pが従来の指標に取って代わるのではなく、相補的な価値を提供し得ることを示唆している。CRPおよびプロカルシトニン(PCT)は、感染の重症度評価および抗菌薬治療の指針として臨床現場で一般的に使用されており、メタ解析では、細菌性肺炎においてPCTがCRPよりもわずかに優れた診断精度を示すことが証明されている30。しかし、これらの急性相反応物質は、多様な炎症刺激に反応するため大部分が非特異的であり、MP感染を他の呼吸器病原体から確実に区別したり、肺外合併症のリスクを特異的に反映したりすることはできない。対照的に、TLR4/核因子カッパB(NF-κB)シグナリングに関連する調節分子であるmiR-93-5pは、従来のマーカーを補完する異なる病態生理学的情報を提供できる可能性がある。miR-93-5pとCRPの相関は比較的弱い(Pearson r = 0.2698)ことが報告されており、miR-93-5pが全身性の急性相反応とは異なる側面の炎症反応を反映している可能性が示唆される。
動物モデルからの新たなエビデンスにより、Mycoplasma pneumoniae感染は、腸内フローラが媒介する肺-腸軸を通じて、呼吸器系の病変だけでなく消化器系の損傷も誘発し得ることが示されている31。MPに感染したマウスでは、肺と結腸の両方で病理学的損傷が観察されるとともに、Corynebacterium glutamicumなどの有益菌の減少や、Lachnospiraceae NK4A136 groupおよびEscherichia-Shigellaなどの潜在的な病原菌の増加を含む腸内細菌叢組成の変化が認められ、これに伴い結腸内容物および血液中のリポ多糖(LPS)レベルの上昇が確認されている32。また、バイカリインはTLR4/NF-κB経路を介してMPPマウスの肺炎症を改善し、腸内フローラを調節することが報告されており、肺-腸クロストークへのこのシグナル伝達カスケードの関与が裏付けられている33。これらの知見は、本研究で検討したmiR-93-5p/TLR4軸におけるNF-κBシグナリングの関与の可能性と一致している。
メカニズムのレベルでは、炎症反応に関連する自然免疫の主要な媒介因子であるTLR434,35,36,37が、MP感染時にアップレギュレートされていた。TLR4の発現上昇に伴い、炎症性サイトカインであるIL-6およびTNF-αのレベルが上昇し、上皮細胞の生存率が低下した。miR-93-5pの過剰発現は、TLR4の発現を抑制し、炎症性サイトカインの放出を減衰させ、感染条件下での細胞生存率を改善した。したがって、MPP患者、特に消化器系損傷を伴う患者におけるmiR-93-5pのダウンレギュレーションは、TLR4を介した炎症性シグナル伝達の増強およびより広範な全身性炎症反応に関連している可能性がある。本知見では、リン酸化IκBαおよびp65を評価していないため、下流のNF-κBパスウェイの活性化については立証されていない。
本研究におけるいくつかの限界を認める必要がある。第一に、本研究は単一施設での研究であり、特にDSIサブグループにおいてサンプルサイズが比較的小さいため、統計的な検出力と汎用性が制限される可能性がある。これらの知見を裏付け、信頼性の高い臨床的なカットオフ値を確立するためには、より大規模な多施設共同コホートによる外部検証が必要である。第二に、Western blottingによりIκBαは検出されたが、MyD88、p-IκBα、p65を含むTLR4/NF-κB経路の他の下流コンポーネントの包括的な検証は行われていない。これらのシグナル伝達コンポーネントをタンパク質レベルで検証することで、メカニズム的な解釈をより強固にできると考えられる。第三に、観察研究のデザインであるため、因果推論は不可能である。miR-93-5pがMPに関連する消化器損傷に直接的に寄与しているか determining 決定するには、in vitroまたはin vivoでのmiRNAミミックや阻害剤を用いた機能喪失(loss-of-function)および機能獲得(gain-of-function)実験が必要である。第四に、in vitro実験はA549肺上皮細胞を用いて行われた。このモデルは肺におけるmiR-93-5pの抗炎症効果を評価するには適しているが、胃腸病理を直接的にモデル化することはできない。肺のmiR-93-5p/TLR4シグナル伝達と消化器症状との関連(おそらく肺-腸軸を介したもの)については、Caco-2細胞などの腸上皮細胞モデルや、MP感染のin vivo動物モデルを用いて直接的に検証する必要がある。最後に、RNAの安定性や標準化戦略など、miRNA検出に伴う技術的な課題が、日常的な臨床導入への障壁として依然として存在する。これらの限界はあるものの、本知見は今後のメカニズム研究および大規模な検証への基礎を提供するものである。
結論として、miR-93-5pのアップレギュレーションは、TLR4の抑制を通じて、肺上皮細胞におけるMP誘発性炎症を減弱させた。臨床的には、血中のmiR-93-5pレベルの低下がMPP患児における消化器系損傷と関連しており、胃腸合併症のリスクがある患者を特定するための補助的なバイオマーカーとして有用である可能性が示唆された。
開示事項
著者らは、利益相反がないことを宣言します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| A549ヒト肺胞上皮細胞 | ATCC, USA | Cat# CCL-185; RRID: CVCL_0023 | in vitro MPPモデルに使用したヒト肺胞上皮細胞株 |
| 抗GAPDH抗体 | Hangzhou XianZhi Biological Technology, China | Cat# AB-P-R001; RRID: AB_3096355 | ウェスタンブロッティングにおけるローディングコントロールとしてGAPDH検出に使用した一次抗体 |
| 抗IκBα抗体 | Beyotime, China | Cat# AG2741; RRID: AB_3731391 | ウェスタンブロッティングによるIκBα検出に使用した一次抗体 |
| ウシ血清アルブミン (BSA) | Solarbio, China | Cat# A8012 | ウェスタンブロッティング時に使用したブロッキング剤 |
| 遠心分離機 | Thermo Fisher Scientific, USA | Multifuge X4 Pro; Cat# 75016066; RRID: SCR_020726 | 細胞培養および試料調製時に使用した遠心分離機 |
| 化学発光イメージングシステム | Tanon, China | 5200Multi; RRID: SCR_027114 | ウェスタンブロットの化学発光シグナルを可視化するために使用したイメージングシステム |
| Dual-Luciferase Reporter Assay System | Promega, USA | Cat# E1910 | ホタルルシフェラーゼおよびRenillaルシフェラーゼ活性の測定に使用 |
| 胎児ウシ血清 (FBS) | Gibco, USA | Cat# A5256701 | 細胞培養培地用の血清サプリメント |
| ヤギ抗ウサギIgG, HRP標識 | Cell Signaling Technology, USA | Cat# 7074; RRID: AB_2099233 | ウェスタンブロッティングに使用したHRP標識二次抗体 |
| GraphPad Prism | GraphPad Software | Version 10.1.2; URL: https://www.graphpad.com | 統計解析およびグラフ作成に使用したソフトウェア |
| インターロイキン-6 (IL-6) ELISAキット | Elabscience, China | Cat# E-EL-H6156; RRID: AB_3665145 | IL-6を定量するために使用したELISAキット |
| Lipofectamine 3000 トランスフェクション試薬 | Thermo Fisher Scientific | Cat# L3000015 | A549細胞のトランスフェクションに使用した脂質ベースの試薬 |
| マイクロプレートリーダー | Tecan, Switzerland | Infinite M Plex; RRID: SCR_026522 | 490 nmでの吸光度測定に使用したマイクロプレートリーダー |
| miR-93-5p mimic | Ribobio, China | Cat# miR10000093-1-5 | miR-93-5pの過剰発現に使用した合成miR-93-5p mimic |
| miR-93-5p ネガティブコントロール | Ribobio, China | Cat# miR1N0000001-1-5 | miR-93-5p mimicトランスフェクション用のネガティブコントロール |
| MTT細胞増殖・細胞毒性アッセイキット | Beyotime, China | Cat# C0009S | 細胞生存率の評価に使用 |
| Mycoplasma pneumoniae 標準株 ATCC 15531 | ATCC, USA | Cat# 15531 | 感染モデルの構築に使用したM. pneumoniae標準株 |
| pGL3-Basic ルシフェラーゼレポーターベクター | Promega, USA | Cat# E1751 | デュアルルシフェラーゼレポーターアッセイに使用したレポーターベクター |
| リン酸緩衝生理食塩水 (PBS) | Solarbio, China | Cat# IP9212 | 細胞洗浄および試料調製に使用した緩衝液 |
| Pierce ECL ウェスタン基質 | Thermo Scientific, USA | Cat# 32209 | ウェスタンブロット検出に使用した化学発光基質 |
| Pleuropneumonia-like organism (PPLO) 培地 | BD, USA | Cat# 255420 | M. pneumoniaeに使用した培養培地 |
| ポリビニリデンフルオリド (PVDF) メンブレン | Bio-Rad | Cat# 1620177 | ウェスタンブロッティング中のタンパク質転写に使用したメンブレン |
| PrimeScript RT Master Mix (Perfect Real Time) | Takara Bio Inc., Japan | Cat# RR036A | cDNA合成に使用した逆転写マスターミックス |
| PrimeScript RT Reagent Kit | Takara Bio Inc., Japan | Cat# RR037A | 逆転写に使用した試薬キット |
| リアルタイムPCRシステム | Applied Biosystems, USA | QuantStudio 3 Real-Time PCR System; RRID: SCR_020238 | qPCR解析に使用したリアルタイムPCR装置 |
| RPMI-1640 培地 | Gibco, USA | Cat# 11875135 | A549細胞に使用した細胞培養培地 |
| SPSS | IBM | Version 27.0; RRID: SCR_016479 | 統計解析に使用したソフトウェア |
| TLR4 過剰発現ネガティブコントロール | Ribobio, China | NA | TLR4過剰発現実験用のネガティブコントロール |
| TLR4 過剰発現プラスミド (oe-TLR4) | Ribobio, China | NA | TLR4過剰発現に使用したプラスミド |
| TRIzol 試薬 | Invitrogen, Thermo Fisher Scientific | Cat# 15596026 | 全RNA抽出に使用した試薬 |
| 腫瘍壊死因子-α (TNF-α) ELISAキット | Elabscience, China | Cat# E-EL-H0109; RRID: AB_3665144 | TNF-αを定量するために使用したELISAキット |
| Universal SYBR qPCR Master Mix | Takara Bio Inc., Japan | Cat# BL697A | 定量PCRに使用したマスターミックス |
| ウェスタンブロットゲル電気泳動システム | Bio-Rad, USA | Mini-PROTEAN Tetra Cell; Cat# 1658004 | タンパク質分離に使用した電気泳動システム |
参考文献
- Yan C et al. Current status of Mycoplasma pneumoniae. infection in China. World Journal of Pediatrics. 2024;20(1):1-4.
- Poddighe D. Extra-pulmonary diseases related to Mycoplasma pneumoniae. in children: recent insights into the pathogenesis. Current Opinion in Rheumatology. 2018;30(4). doi:10.1097/BOR.0000000000000494.
- Schildgen O et al. Clinical manifestations in infants and children with Mycoplasma pneumoniae. infection. PLOS ONE. 2018;13(4). doi:10.1371/journal.pone.0195288.
- Li X et al. Intestinal necrosis due to nonocclusive mesenteric ischemia in a child with Mycoplasma pneumoniae. pneumonia: a case report. BMC Infectious Diseases. 2025;25(1):1049.
- Ran B, Yang Z, Li M. METTL3-mediated miR-4534 maturation promotes IVDD progression by targeting the Sirt6-mediated Nrf2/HO-1 pathway. 2024;21(6):2795-2813.
- Du B et al. The lung-gut crosstalk in respiratory and inflammatory bowel disease. Frontiers in Cellular and Infection Microbiology. 2023;13. doi:10.3389/fcimb.2023.1218565.
- Jiang Y et al. Intestinal bacteria flora changes in patients with Mycoplasma pneumoniae pneumonia. with or without wheezing. Scientific Reports. 2022;12(1):5683.
- Lin L-J et al. The diagnostic value of serological studies in pediatric patients with acute Mycoplasma pneumoniae. infection. Journal of Microbiology, Immunology and Infection. 2020;53(2):351-356.
- Cui J et al. Integrated microfluidic cartridge for rapid and colorimetric detection of Mycoplasma pneumoniae. Microchimica Acta. 2025;192(9):559.
- Wang X, Starodubtseva MN, Kapron CM, et al. Cadmium, von Willebrand factor and vascular aging. NPJ Aging. 2023;9(1):11.
- Chen J. Efficacy of the PDCA cyclic care model in improving lung function and speed of recovery in children with Mycoplasma pneumonia. American Journal of Translational Research. 2025;17(3):1792-1802.
- Li Y et al. Clinical significance of serum miR-98-5p in children with Mycoplasma pneumoniae. infection complicated with digestive system damage. Immunobiology. 2025;230(4):153101.
- Zhang Y, Wu ZM. LINC02605 involved in paediatric pneumonia complicated with diarrhoea via miR-539-5p/CXCL1 axis. European Journal of Clinical Investigation. 2024;54(9). doi:10.1111/eci.14234.
- Gao H et al. Knockdown of lncRNA MEG3 protects against sepsis-induced acute lung injury in mice through miR-93-5p-dependent inhibition of NF-κB signaling pathway. Pathology - Research and Practice. 2022;239:154142.
- Gao H et al. MicroRNA-93 contributes to the suppression of lung inflammatory responses in LPS-induced acute lung injury in mice via the TLR4/MyD88/NF-κB signaling pathway. Int J Mol Med. 2020;46(2):561-570.
- Wedgwood S et al. Intestinal dysbiosis and the developing lung: the role of Toll-like receptor 4 in the gut-lung axis. Frontiers in Immunology. 2020;11. doi:10.3389/fimmu.2020.00357.
- Zou N et al. Transcutaneous auricular vagus nerve stimulation as a novel therapy connecting the central and peripheral systems: a review. Int J Surg. 2024;110(8):4993-5006.
- Chen Y et al. Combination of azithromycin and methylprednisolone alleviates Mycoplasma pneumoniae.-induced pneumonia by regulating miR-499a-5p/STAT3 axis. Exp Ther Med. 2022;24(3):578.
- Poddighe D. Mycoplasma pneumoniae.-related extra-pulmonary diseases and antimicrobial therapy. Journal of Microbiology, Immunology and Infection. 2020;53(1):188-189.
- Meyer Sauteur PM, Ramien ML, Theiler M. Mycoplasma pneumoniae.: extrapulmonary manifestations in children with focus on mucocutaneous disease. The Pediatric Infectious Disease Journal. 9900. doi:10.1097/INF.0000000000004946.
- Liu C et al. Mast cells participate in regulation of lung-gut axis during Staphylococcus aureus pneumonia. Cell Proliferation. 2019;52(2).
- Guo J et al. People are an organic unity: gut-lung axis and pneumonia. Heliyon. 2024;10(6).
- Fan F et al. Clinical characteristics and serum inflammatory markers of community-acquired mycoplasma pneumonia in children. The Clinical Respiratory Journal. 2023;17(7):607-617.
- Ding L, Jiang Y. Biomarkers associated with the diagnosis and prognosis of Mycoplasma pneumoniae. pneumonia in children: a review. Frontiers in Cellular and Infection Microbiology. 2025;15. doi:10.3389/fcimb.2025.1552144.
- Peng W et al. Comparative analysis of the efficacy and safety of different methods for injecting polidocanol in the treatment of venous malformations. Phlebology. 2024;39(9):629-635.
- Wang J et al. Peripheral blood microR-146a and microR-29c expression in children with Mycoplasma pneumoniae. pneumonia and its clinical value. Italian Journal of Pediatrics. 2023;49(1):119.
- Chu C et al. High expression of miR-222-3p in children with Mycoplasma pneumoniae. pneumonia. Italian Journal of Pediatrics. 2019;45(1):163.
- Powell BH, Witwer KW, Meffert MK. Cellular miRNAs and viruses: trends in miRNA sequestering and target de-repression. J Virol. 2025;99(7).
- Gan T, Yu J, He J. miRNA, lncRNA and circRNA: targeted molecules with therapeutic promises in Mycoplasma pneumoniae. infection. Arch Microbiol. 2023;205(8):293.
- Im PK et al. Hyperuricemia, gout and the associated comorbidities in China: findings from a prospective study of 0.5 million adults. The Lancet Regional Health – Western Pacific. 2025;58. doi:10.1016/j.lanwpc.2025.101572.
- Hu J et al. Insight into the pathogenic mechanism of Mycoplasma pneumoniae. Curr Microbiol. 2022;80(1):14.
- Li B et al. Cecropin AD ameliorates pneumonia and intestinal injury in mice with Mycoplasma pneumoniae. by mediating gut microbiota. BMC Vet Res. 2025;21(1):39.
- Song D et al. The mechanism of baicalin in improving pulmonary inflammatory response and injury and regulating intestinal flora in Mycoplasma pneumoniae pneumoni.a mice. Cellular Signalling. 2025;126:111530.
- Coutinho-Wolino KS et al. Bioactive compounds modulating Toll-like 4 receptor (TLR4)-mediated inflammation: pathways involved and future perspectives. Nutrition Research. 2022;107:96-116.
- Thorburn AN et al. TLR2, TLR4 and MyD88 mediate allergic airway disease (AAD) and Streptococcus pneumoniae-induced suppression of AAD. PLOS ONE. 2016;11(6).
- Tang J et al. Effect of gut microbiota on LPS-induced acute lung injury by regulating the TLR4/NF-kB signaling pathway. International Immunopharmacology. 2021;91:107272.
- Jia H et al. Pulmonary epithelial TLR4 activation leads to lung injury in neonatal necrotizing enterocolitis. The Journal of Immunology. 2016;197(3):859-871.