本プロトコルでは、SARS-CoV-2(重症急性呼吸器症候群コロナウイルス2)とリポポリサッカライドの併用鼻腔内投与によって誘導される、COVID-19(新型コロナウイルス感染症)関連肺傷害のマウスモデルについて解説します。本モデルを用いることで、肺の炎症反応や、 type I インターフェロン反応の障害、および潜在的な治療的介入についての研究が可能となります。
方法論記事
重症急性呼吸器症候群コロナウイルス2およびリポポリサッカライドにより誘発される、新型コロナウイルス感染症2019関連肺損傷のマウスモデル
45 回視聴
⸱
2026年9月11日
* These authors contributed equally
この記事について
サマリー
要約
ワクチンの広範な導入や抗ウイルス療法の実施にもかかわらず、SARS-CoV-2感染は依然として脆弱な集団において相当な罹患率と死亡率の原因となっており、COVID-19の病態を調査し、薬物作用のメカニズムを解明し、潜在的な治療戦略を評価するための信頼性の高い実験モデルが急務となっています。SARS-CoV-2感染は、過剰な炎症反応と第I型インターフェロン(IFN-I)を介した抗ウイルス免疫の障害を特徴とする重篤な肺損傷を引き起こす可能性がありますが、現在の動物モデルでは、COVID-19に関連する免疫炎症反応の調節不全を再現することに限界があります。そこで、COVID-19の主要な免疫病理学的特徴を再現するために、SARS-CoV-2およびLPS誘導によるCOVID-19関連肺損傷マウスモデルを開発しました。このモデルは、炎症細胞の浸潤、肺胞構造の破壊、および前炎症性サイトカインの発現上昇など、肺組織における顕著な病理学的特徴を誘導し、それに伴いIFN-I反応の障害を引き起こします。本研究では、SARS-CoV-2およびLPS誘導肺損傷マウスモデルを確立するために用いた手順を詳細に記述し、肺の組織病理学的変化、ウイルス量、炎症性サイトカイン、およびIFN-Iレベルの解析を通じて、本モデルを体系的に特性評価します。本モデルは、COVID-19関連肺損傷の根底にある免疫炎症メカニズムや肺組織修復に関与するプロセスを調査するための実験プラットフォームを提供すると同時に、免疫炎症の調節不全を緩和し、肺機能の回復を促進することを目的とした治療戦略を評価するための基盤を提供します。
概要
2019年末に出現して以来、SARS-CoV-2は世界的な公衆衛生上の課題となっており、継続的なウイルスの進化は既存のワクチンや治療戦略に課題を突きつけ続けています1,2,3。したがって、疾患メカニズムを解明し治療戦略を前進させるためには、COVID-19に関連する肺損傷についてのさらなる調査が不可欠です。
SARS-CoV-2感染は深刻な肺損傷を引き起こし、急性呼吸窮迫症候群(ARDS)や多臓器不全へと進行することがあります4,5。COVID-19に関連する肺損傷の病態は非常に複雑であり、免疫および炎症反応の調節不全がその主要な特徴であることが多くの証拠によって示唆されています6,7,8,9。一方で、SARS-CoV-2感染は過剰な炎症反応を誘導し、interleukin-6 (IL-6)、interleukin-1β (IL-1β)、およびtumor necrosis factor-α (TNF-α) などの前炎症性サイトカインの大量放出を招き、いわゆる「サイトカインストーム」を誘発します10,1。これは肺損傷および疾患進行の主要な要因と考えられています。他方で、感染の初期段階において、SARS-CoV-2は複数のメカニズムを通じて宿主のIFN-I反応を抑制し、その結果、IFN-Iを介した抗ウイルス免疫が損なわれます12,13,14。したがって、前炎症性サイトカインレベルの上昇を伴うインターフェロン反応の遅延は、COVID-19の特徴的な所見であると見なされています6,15。
現在利用可能なCOVID-19の動物モデルは、主にhACE2トランスジェニックマウス、マウス適応型ウイルス株、またはフェレットや非ヒト霊長類などの他種に依存しています16,17。しかし、マウスを用いた従来のSARS-CoV-2感染モデルでは、COVID-19の過剰炎症の特徴を完全に再現できないことが多くあります18,19,20。TLR4アゴニストであるLPSは、強力な炎症反応を誘導し、急性肺損傷モデルに広く用いられています21。したがって、本研究で述べるSARS-CoV-2およびLPS誘導モデルは、COVID-19に関連する肺損傷、特に過剰な炎症活性化と抗ウイルス免疫応答の障害の根底にあるメカニズムに焦点を当てた研究用に設計されています。SARS-CoV-2のみのモデルと比較して、このアプローチはウイルス感染の状況を維持しつつ、免疫炎症の特徴を際立たせています。このモデルは、ウイルスの伝播やSARS-CoV-2感染の完全な自然経過をモデル化することよりも、免疫炎症メカニズムを調査することに大きな可能性を秘めています。
本プロトコルでは、SARS-CoV-2およびLPS誘発性のCOVID-19関連肺傷害マウスモデルの構築手順について概説します。COVID-19に伴う免疫炎症調節不全を再現する既存モデルには限界があるため、本手法は疾患メカニズムの研究および潜在的な治療戦略を評価するための実用的なプラットフォームを提供します。本モデルは、肺の組織病理学、ウイルス量、炎症性サイトカイン、およびIFN-I反応を通じて体系的に評価されました。
プロトコル
本研究では、SARS-CoV-2とLPSの経鼻投与により、COVID-19に関連する肺損傷のマウスモデルを構築し、トランスジェニックマウスモデルに代わる安定した費用対効果の高い手法を提示した。本実験プロトコルは四川省疾病予防管理センターによって承認され、動物倫理承認 [Sichuan CDC (Animal Ethics) Approval No. 05 (2025)] を得ている。すべての手順は、関連するガイドラインおよびバイオセーフティ規定を厳格に遵守して実施された。
主要な試薬および器具に関する詳細な情報は、材料表に記載されています。
1. 研究プロトコルの設計
- BALB/cマウスを対照群またはモデル群にランダムに割り当てる。
- 0日目に、モデル群のマウスにSARS-CoV-2を経鼻投与する。
- 2日目に、モデル群のマウスにLPSを経鼻投与する。
- 対応する時点で、対照群のマウスに等量の生理食塩水を経鼻投与する。
- SARS-CoV-2感染から3日後にすべてのマウスを安楽死させ、モデル検証のために肺組織を採取する。
注:実験ワークフローは図1Aに示されている。
2. 準備
- 動物の準備
- 月齢6〜8ヶ月、体重約25〜30 gのSPF(特定病原体のない)雌性BALB/cマウスを使用する。
- 乱数表を用いて、マウスを対照群またはモデル群のいずれかにランダムに割り当てる(各群4匹)。
- 餌と水を自由に摂取できる標準的な実験室条件下でマウスを飼育する。
注:先行研究により、高齢マウスは若齢マウスよりもSARS-CoV-2の経鼻感染にかかりやすいことが示されている18,2。そのため、本研究ではSARS-CoV-2関連肺損傷モデルの構築を容易にするために、高齢のBALB/cマウスを選択した。 - 各マウスに、最終感染量として1匹あたり4.5 x 10⁵ TCID₅₀に相当するウイルス懸濁液10 µLを経鼻接種する。
注:SARS-CoV-2は四川省疾病予防管理センターより提供された。本研究で使用した株はSARS-CoV-2 Omicron変異株であり、ウイルスストックタイターは4.5 x 10⁶ TCID₅₀/mLであった。
注意:SARS-CoV-2は強毒性の微生物であるため、ウイルスに関連するすべての手順は動物バイオセーフティレベル3(ABSL-3)施設で実施すること。異なるウイルス変異株や動物モデルを使用する場合は、予備実験に基づいて感染量を最適化すること。
- ワーキングストックの調製
- LPSストック溶液の調製:LPSパウダー3 mgを量り取り、生理食塩水1 mLに溶解させる。完全に溶解するまで静かに混ぜるか、または連続的にボルテックスし、濃度3 mg/mLのストック溶液を得る。投与前に、マウスの体重に応じて生理食塩水でストック溶液を目的のワーキング濃度までさらに希釈する。
- 麻酔液の調製:Zoletilパッケージに付属の滅菌注射用水でパウダーを再構成し、後の使用に必要な質量対容量比の溶液を調製する。
- ウイルスワーキング溶液の調製:使用前に、バイオセーフティキャビネット内でSARS-CoV-2ウイルス懸濁液1 mLを氷上でゆっくりと融解させる。
注:すべてのワーキング溶液の調製および使用にあたっては、各製造元の指示に従うこと。
3. マウスへの経鼻投与
- 投与前に各マウスの体重を測定し、記録する。
- 各マウスの体重に基づき、ZoletilおよびLPSの投与量を算出する。
- correspondingな調製液を作成し、後の投与に向けて適切なシリンジを用いて必要量を分注する。
- マウスの保定:左手の親指と人差し指を用いて、耳の後ろから首にかけての皮膚を優しく掴み、項皮保定を行う。
- 動物を手のひらに乗せ、薬指と小指で背中と尾を固定する。腹部を完全に露出し、体を安定させた状態で、マウスを仰臥位にする。
- 消毒:滅菌綿棒を用い、75% ethanolで腹部投与部位を消毒する。
- 麻酔:Zoletil (25mg/kg) を充填したシリンジの針を、下腹部正中線から外側に約0.5 cmの位置に刺入する。皮膚を貫通した後、腹腔内へ45°の角度で深さ約2–3 mmまで針を進める。逆血がないことを確認して吸引し、その後、ゆっくりと麻酔薬を投与する。
注:十分な麻酔状態を確保し、死亡率を最小限に抑えるため、予備実験に基づいて麻酔量を最適化すること。組織損傷を最小限にするため、繰り返しの穿刺は避ける。 - 麻酔の確認:呼吸困難や呼吸不全の兆候がなく、安定して規則的な呼吸が行われていることを観察し、麻酔状態を確認する。
- SARS-CoV-2の経鼻投与(0日目):マイクロピペットまたはシリンジを用い、安定した呼吸サイクルの吸気開始に合わせて、SARS-CoV-2ウイルス懸濁液 10 µL(片鼻につき50 µL)を外鼻孔にゆっくりと滴下投与する。
- 均一な吸入を促進するため、左右の鼻孔を交互に投与する。対照マウスには、同様の手順で等量の生理食塩水を投与する。
注:溶液は滴下し、目標量に達するまで、次の滴を投与する前に前の滴が鼻腔内に吸い込まれたことを確認しながら行う。 - 投与後の処置:経鼻投与後、溶液が下気道に届きやすくするため、マウスの頭部を約30–60 sの間、わずかに上げた状態で保持する。麻酔からの回復兆候が見られたらマウスをケージに戻し、完全に意識が回復するまで観察する。
- 記録とモニタリング:投与量と各マウスの個体識別番号を記録する。実験期間中、生存状態および全身的な生理状態について、動物を継続的にモニタリングする。
- LPSの経鼻投与(2日目):SARS-CoV-2感染後2日目に、マウスにLPSを投与する。SARS-CoV-2投与時と同じプロトコルに従い、LPS (5 mg/kg) の経鼻投与を行う。対照マウスには、同様の手順で等量の生理食塩水を投与する。
注:このステップでは、麻酔および経鼻投与を含め、SARS-CoV-2接種と同じ手順でLPSおよび生理食塩水を投与した。
4. マウスの解剖および肺組織の採取
- SARS-CoV-2感染後3日目に、組織回収のためマウスを安楽死させる。まず動物を麻酔し、その後、頸椎脱臼により殺処分する。対照群のマウスについても同様の手順で処理する。
注:頚椎脱臼に関する詳細な手順については、以下を参照してください。 補足ファイル 1. - 安楽死させたマウスを解剖台の上に仰臥位で固定し、腹部と胸部が十分に露出するようにします。汚染を最小限に抑えるため、腹部の被毛を75%エタノールで湿らせます。
- 滅菌済みの剪刀を用いて、両側の肋骨縁に沿って胸骨を慎重に切開し、胸腔を徐々に開きます。ピンセットを用いて組織を優しく牽引し、肺組織への機械的な損傷を最小限に抑えながら、周囲の胸郭構造から段階的に肺を剥離します。
注意:切断中は、心臓、肺、および主要な血管構造への損傷を避けるため、剪刀の先端の向きを慎重に制御してください。 - 摘出した肺組織を直ちに冷却済みのPBSまたは生理食塩水に入れ、2~3回緩やかに洗浄して、残留血液や残渣を除去する。組織の構造的損傷を防ぐため、圧縮を避け、糸くずの出ないフィルターペーパーを用いて表面の余分な液体を丁寧に吸い取る。
- 処理済みの肺組織を電子天秤を用いて速やかに的に量り、その測定値を記録する。
- 右尾葉を摘出し、直ちに組織の10倍量の4%パラホルムアルデヒドで固定し、その後の組織病理学的解析に供する。
注意:パラホルムアルデヒドは毒性があるため、施設の安全指針に従って取り扱ってください。 - 残りの肺組織を回収し、クライオバイアルに分注して液体窒素で急速凍結させ、−で保存する。80 °C 保存のために処理します。右肺の前葉、中葉、および副葉をSARS-CoV-2ウイルス量および前炎症性サイトカインの検出に割り当て、左肺をELISA解析用に保存します。
注意:液体窒素は極低温であるため、取り扱う際は低温火傷や凍傷を防ぐために、適切な極低温用手袋および保護メガネを着用してください。 - 解剖の終了後、標準的な手順に従ってすべての器具を十分に洗浄し、滅菌してください。動物の死骸および生物学的廃棄物は、動物実験に関する施設内および規制上のガイドラインに従って廃棄してください。
5. ヘマトキシリン・エオジン(HE)染色23
- 新鮮な肺組織を4%パラホルムアルデヒドを用い、室温で24時間固定する。
注意:固定時間は厳密に管理すること。固定不足は組織保存の不完全さを招き、固定時間の延長は過剰なタンパク質架橋を引き起こして染色品質に影響を与える可能性があるため、これらを避ける。 - 固定した組織を自動組織処理装置にかけ、段階的な脱水、透徹、およびパラフィン浸透を行う。
注意:自動組織処理装置のプロトコルはSupplementary File 2に記載されている。 - パラフィン浸透させた組織を包埋モールドに入れる。溶融パラフィンを加え、組織の向きを慎重に調整する。
- モールドをコールドプレートに移して凝固させる。完全に硬化した後、モールドからパラフィンブロックを取り出す。
- パラフィンブロックをミクロトームに装着し、切削面が刃と平行になるよう調整する。厚さ約3–5 µmの連続切片を作成する。
- 切片を直ちに約45 °Cの水槽に移して展延させ、完全に広げる。
- スライドの一端を水面に垂直に浸し、切片をすくい上げる。ピンセットを用いて、切片がスライド表面に適切に密着するように補助する。
- 組織の密着性を高めるため、スライドを65 °Cのスライド乾燥機に約1時間入れる。
注意:組織の種類、切片の厚さ、および装置の状態に応じて乾燥時間を調整すること。組織の損傷を防ぐため、過加熱を避ける。 - 自動染色機を用いて、乾燥させた切片のHE染色を行う。
注意:自動染色機のプロトコルはSupplementary File 3に記載されている。 - 染色した切片を取り出し、風乾させる。中性封入剤を1滴下し、カバーガラスで封入する。封入剤が凝固した後、光学顕微鏡下で切片を観察する。
6. 肺組織におけるSARS-CoV-2ウイルス量および前炎症性サイトカインの発現
- 肺組織のホモジナイズ
- ステンレスビーズ(直径3 mm)4~5個と、ホモジナイズ媒体としてあらかじめ冷却したライシスバッファー90 µLを加え、RNaseフリーのホモジナイズチューブを準備する。
注:ライシスバッファーの量は組織重量に合わせて調整し、通常は組織1 gあたり約9 mLの比率とする。 - 肺組織約50 mgを量り取り、組織を細かく刻んでからホモジナイズチューブに移す。
- 組織グラインダーを用いて組織をホモジナイズする(60 Hz、60秒、10秒の間隔を空けて2~3サイクル)。
注:使用する装置や組織の種類に応じて、ホモジナイズのパラメータを最適化すること。 - ホモジナイズ後、サンプルを確認し、完全に破砕されていることを確かめる。目視で組織の断片が残っている場合は、均一なライセートが得られるまでホモジナイズ工程を繰り返す。
- ステンレスビーズ(直径3 mm)4~5個と、ホモジナイズ媒体としてあらかじめ冷却したライシスバッファー90 µLを加え、RNaseフリーのホモジナイズチューブを準備する。
- 肺組織からのカラム法による全RNA抽出
注:製造元の指示に従い、カラムベースの精製法を用いて肺組織から全RNAを抽出する。適用可能な場合は、対応する製品マニュアルに従って別のRNA抽出法を行う。- ホモジナイズ液を新しい2 mL RNaseフリーマイクロ遠心チューブに移す。gDNA Eliminator溶液10 µLを加える。チューブのキャップをしっかり締め、15~20秒間激しく振盪する。
- キャップを短時間開き、クロロホルム180 µLを加え、15秒間十分にボルテックスする。
注意:クロロホルムは揮発性があり毒性があるため、換気の良い場所または化学ドラフトチャンバー内で取り扱い、吸入や皮膚への接触を避けるため適切な個人用保護具を着用すること。 - サンプルを室温で2分間インキュベートし、その後4 °Cで12,0 x g、15分間遠心分離する。
- 上層の水相を注意深く新しいチューブに移す。等量の70%エタノールを加え、ボルテックスで十分に混合する。
注:RNAの純度を確保するため、水相を回収する際に界面や有機層を乱さないようにすること。70%エタノールの添加後、遠心分離せずに直接次のステップに進む。 - 混合液をスピンカラムに移し、8,0 x gで15秒間遠心分離する。ろ液を捨てる。
- スピンカラムにウォッシュバッファー70 µLを加え、8,00 x gで15秒間遠心分離する。ろ液を捨てる。
- スピンカラムにウォッシュバッファー50 µLを加え、8,00 x gで15秒間遠心分離する。この洗浄ステップをもう一度繰り返す。
- スピンカラムを新しい回収チューブに移し、12,0 x gで1分間遠心分離して残留ウォッシュバッファーを除去する。
- スピンカラムを新しい1.5 mL RNaseフリーマイクロ遠心チューブに入れる。メンブレンの中央にRNaseフリー水を30 µL直接加え、8,0 x gで1分間遠心分離してRNAを溶出させる。
注:後続のアプリケーションに応じて、RNaseフリー水の量を30~50 µLの間で調整する。より高いRNA濃度が必要な場合は、溶出量を少なくする。
- 逆転写デジタルPCR(RT-dPCR)によるSARS-CoV-2ウイルス量の検出
注:SARS-CoV-2 RNAの絶対定量には、ワンステップRT-dPCRアッセイを用いた。ウイルスRNAコピー数の決定には、ヌクレオカプシド(N)遺伝子を標的とした特異的なプライマー・プローブセットを使用した。- RNAサンプルと試薬を氷上で解凍する。
- 製造元の指示に従い、RT-dPCR反応液を調製する。
- RT-dPCR反応液20 µLとRNAテンプレート20 µLを混合する。混合液を短時間ボルテックスし、短時間遠心したあと、氷上に保持する。
- 40 µLの反応液をデジタルPCRチップのウェルにロードし、装置のプロトコルに従ってチップを密封する。
- 以下のサーマルサイクリング条件で増幅を行う:50 °Cで40分(1サイクル)、95 °Cで2分(1サイクル)、続いて95 °Cで15秒および57 °Cで60秒を40サイクル。検出チャンネルをGREEN (250 ms) および RED (150 ms) に設定する。
- 逆転写定量PCR(RT-qPCR)による炎症性サイトカイン発現の検出
- UV分光光度計を用いてRNA濃度と純度を測定する。
- 製造元の指示に従い、相補的DNA(cDNA)を合成するための逆転写反応に、1反応あたり1,0 ngの全RNAを使用する。
- SYBR Green PCRマスターミックスと遺伝子特異的プライマーを用い、1反応あたり10 ngのcDNAをテンプレートとしてRT-qPCRを行う。サイクル条件は以下の通りとする:95 °Cで2分、続いて95 °Cで5秒および60 °Cで10秒を40サイクル。プライマー配列は表1に記載されている。
注:使用する特定の試薬や装置に応じて反応条件を最適化し、対応する製造元の指示に従うこと。 - GAPDHを内部参照遺伝子として用い、2−ΔΔCt法を用いて相対的な遺伝子発現レベルを算出する。
7. 酵素結合免疫吸着測定法(ELISA)による肺組織中の前炎症性サイトカインの検出24
注:ELISAキットは、各製造業者が提供する特定のプロトコルに従って使用してください。別のサプライヤーのキットを使用する場合は、該当する製造業者の指示に厳格に従ってください。
- 上述の手順に従い、肺組織をホモジナイズする。ホモジナイズ液にはPBSまたはELISA専用の組織溶解バッファーを使用する。
- ホモジナイズしたサンプルを遠心分離し(例:12,0 x g, 4 °C, 10 min)、後続の解析のために上清を回収する。
- 使用前にELISAキットを室温で30分間平衡化させる。アルミホイルポーチから必要なマイクロプレートストリップを取り出す。
- 製造元の指示に従い、標準試料ウェル、サンプルウェル、およびブランクウェルを準備する。標準試料ウェルに50 µLの標準試料を、サンプルウェルに10 µLのサンプルと40 µLのサンプル希釈バッファーを加える。各標準試料およびサンプルについて、2回のテクニカルリプリケートを行う。
- ブランクウェルを除き、各標準試料ウェルおよびサンプルウェルに10 µLの西洋わさびペルオキシダーゼ(HRP)標識検出抗体を加える。プレートを粘着フィルムで密閉し、37 °Cで60分間インキュベートする。
- インキュベーション後、各ウェルから液を廃棄し、プレートを吸収紙の上で軽く叩いて残液を除去する。
- 各ウェルに洗浄バッファーを加え、1分間静置した後、バッファーを廃棄する。プレートを吸い取って乾燥させる。この洗浄工程を計5回繰り返す。
- 各ウェルに基質溶液A 50 µLと基質溶液B 50 µLを順に加える。プレートを軽く混ぜ、暗所で37 °Cにて15分間インキュベートし、発色させる。
- 各ウェルに50 µLの停止液を加えて反応を停止させる。マイクロプレートリーダーを用い、10分以内に450 nmで吸光度(OD)を測定する。
- 標準濃度(x軸)に対してOD値(y軸)をプロットして標準曲線を作成し、曲線をフィッティングさせる。OD値を標準曲線の式に代入し、対応する希釈倍率を乗じることで、サンプル中の標的サイトカイン濃度を算出する。
- BCAタンパク質定量キットを用いて、肺組織中の総タンパク質濃度を決定する。最終的なサイトカインレベルを総タンパク質量で正規化し、結果を総タンパク質1 mgあたりの標的サイトカイン量(例:pg/mg protein)として的に表す。
結果
コントロール群とモデル群の両方において、肺の組織病理学的変化、SARS-CoV-2のウイルス量、および前炎症性サイトカインとI型インターフェロンのレベルを評価することで、モデルのバリデーションを行った。
統計解析
データは平均値 ± 標準誤差(SE)として提示する。モデル群と対照群の比較には、対応のないStudentのt検定を用いた。本検定は、2つの独立した群間における連続変数の平均値を比較するのに適しているため選択した。本研究では、マウスを独立かつランダムに2群に割り当てており、サンプルの独立性の仮定を満たしている。 p-値 < 0.05を統計的な有意水準とした。
マウスの体重および肺指数の変化
図1Bに示されるように、モデリング前のベースライン値と比較して、モデル群のマウスの体重は感染後に有意に減少し、統計的な有意差(p < 0.05)が認められました。図1Cに示されるように、モデル群のマウスの肺指数は、対照群と比較して有意に増加しており(p < 0.01)、これは肺損傷の特徴的な所見と一致しています。実験期間中に死亡例は観察されず、すべてのマウスがエンドポイントまで生存しました。
マウスの肺組織における組織病理学的変化およびSARS-CoV-2ウイルス量
図 2に、両群のマウス肺組織における組織病理学的変化およびウイルス量を示す。HE染色の結果、対照群では肺構造が保持されていたのに対し、モデル群では肺胞壁の肥厚、炎症細胞の浸潤、肺胞構造の破壊を含む顕著な肺病理学的変化が認められた(図 2A)。定量分析により、モデル群では対照群と比較して肺傷害スコアおよび肺胞炎症スコアの両方が有意に上昇していることが確認され(p < 0.001)、肺傷害および炎症反応が正常に誘導されたことが示された(図 2B,C)。
さらに、モデル群の肺組織において、SARS-CoV-2 RNAの高レベルな発現が検出されました。感染後3日目において、肺組織中の平均ウイルス量は5.5 x 10⁸ copies/gに達し(図2D)、ウイルスが正常に複製され、肺内で高レベルに維持されていることが示されました。
マウス肺組織における前炎症性サイトカインおよびIFN-Iの変化
図3は、マウス肺組織における炎症性サイトカインおよびIFN-Iの変化を示しています。結果から、対照群と比較して、モデル群の肺組織におけるIL-6、IL-1β、およびTNF-αのmRNA発現およびタンパク質レベルが有意に上昇しており(p < 0.05) (図3A–F)、炎症反応が著しく活性化していることが示されました。対照的に、ELISAの結果では、モデル群の肺組織におけるIFN-αおよびIFN-βのレベルが対照群と比較して有意に低下しており(p < 0.001) (図3G,H)、抗ウイルス免疫応答の抑制が示唆されました。
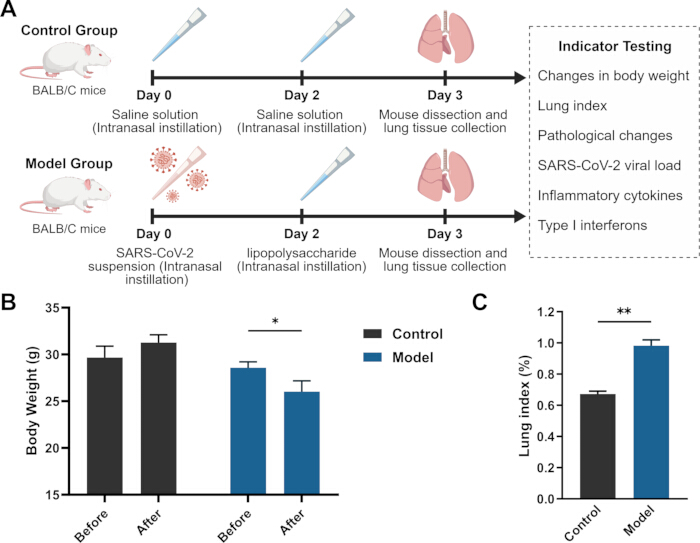
図 1: 実験フローチャートとマウスの体重および肺指数の変化。 (A) 実験フローチャート。 (B) マウスの体重変化。 (C) マウスの肺指数の変化。データは各群の平均値 ± SEで示している。群間の統計的有意差の評価にはStudent's t-testを用いた。 *p < 0.05; **p < 0.01; ***p < 0.001. 図 1AはBioGDP.com25を用いて作成された。 こちらをクリックして、この図の拡大版を表示してください。
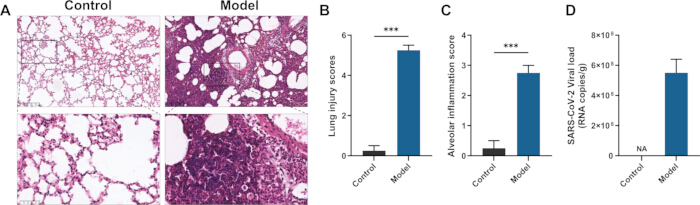
図2マウス肺組織における組織病理学的変化およびSARS-CoV-2ウイルス量。 (Aマウス肺組織のHE染色。 (B肺損傷スコア(Smithスコア) (C) 肺胞炎症スコア(Szapielスコア)。 (D) 肺組織におけるSARS-CoV-2ウイルス量。データは各群の平均値 ± 標準誤差(SE)で示す。群間の統計的有意差の評価には、Studentのt検定を用いた。 *p < 0.05; **p < 0.01; ***p < 0.001. この図の拡大版を表示するには、ここをクリックしてください。
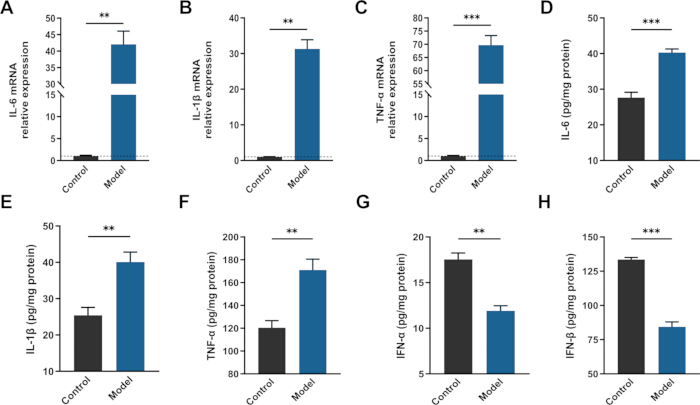
図3: マウス肺組織における炎症性サイトカインおよびIFN-Iの変化。(A–C) マウス肺組織における炎症性サイトカイン IL-6、IL-1β、および TNF-α の相対的mRNA発現量。(D–F) マウス肺組織における IL-6、IL-1β、および TNF-α のタンパク質レベル。(G–H) マウス肺組織における IFN-α および IFN-β のレベル。データは各群の平均値 ± SE として示されている。群間の統計的有意差の評価には Student's t-test を使用した。*p < 0.05; **p < 0.01; ***p < 0.001。こちらのリンクより、この図の拡大版をご覧いただけます。
| プライマー | フォワード配列(5'から3'方向) | 逆向き配列(5'から3'方向) |
| IL-6 | CTTCTTGGGACTGATGCTGGTGAC | AGGTCTGTTGGGAGTGGTATCCTC |
| IL-1β | TCGCAGCAGCACATCAACAAGAG | AGGTCCACGGGAAAGACACAGG |
| TNF-α | GCCTCTTCTCATTCCTGCTTGTGG | GTGGTTTGTGAGTGTGAGGGTCTG |
| GAPDH | GGCAAATTCAACGGCACAGTCAAG | TCGCTCCTGGAAGATGGTGATGG |
表1:本研究で使用したプライマー配列。標的遺伝子および内部参照遺伝子のフォワードおよびリバースプライマー配列(5′から3′)を示す。
補足ファイル 1 こちらをクリックしてファイルをダウンロードしてください。
補足ファイル 2 こちらをクリックしてファイルをダウンロードしてください。
補足ファイル 3 こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
本研究では、SARS-CoV-2およびLPSの経鼻投与により、COVID-19に関連する肺損傷のマウスモデルを構築した。その結果、SARS-CoV-2とLPSの経鼻併用投与は、IFN-Iシグナルの抑制を伴う強力な炎症反応を誘導することが示された。モデル群のマウスでは、著しい体重減少と肺指数の上昇が認められ、全身性の消耗と肺損傷の悪化が示唆された。HE染色の結果、モデル群では肺胞構造の破壊と広範な炎症細胞浸潤を特徴とする典型的なびまん性肺損傷が確認された。さらに、対照群と比較して、モデル群の肺組織ではIL-6、IL-1β、TNF-αなどの主要な前炎症性サイトカインの発現が有意に増加していた一方で、IFN-αおよびIFN-βのレベルは著しく低下していた。これらの知見は、抗ウイルス免疫の抑制を伴う前炎症性反応の過剰な活性化を特徴とする免疫不均衡状態を示唆しており、本モデルが疾患の免疫病理学的特徴を再現する上で有用である可能性をさらに裏付けるものである。
SARS-CoV-2感染は、COVID-19に関連する臓器障害の発現における中心的な駆動因子であると考えられています26,27。本研究では、モデルマウスの肺組織において高いウイルス量が検出され、顕著なびまん性肺損傷および炎症細胞浸潤を伴っていたことから、ウイルス感染が肺の炎症反応の主要なトリガーとなる可能性が示唆されました。既報の通り、SARS-CoV-2感染は肺の病理学的変化および免疫活性化を誘導し得ますが28、マウスにおける従来のSARS-CoV-2感染モデルでは炎症反応が限定的であることが多く、COVID-19患者で観察される過剰炎症表現型を十分に再現できない場合があります18,19,20。したがって、疾患に関連する免疫炎症調節不全のメカニズムをより詳細に調査するためには、追加的な自然免疫刺激が必要であると考えられます。自然免疫の代表的な活性化剤であるLPSは、Toll様受容体4 (TLR4) に結合し、MyD8依存性およびTRIF依存性の両方のシグナル伝達経路をトリガーすることで、NF-κBなどの主要な炎症転写プログラムを活性化し、複数の前炎症性サイトカインの発現を誘導します29。また、先行研究において、LPS刺激を単独またはSARS-CoV-2関連成分と組み合わせて行うことで、炎症反応が増強され、急性肺損傷に似た表現型が寄与することが示されており、COVID-19関連研究に炎症刺激としてLPSを導入することの妥当性が裏付けられています30,31,32。本研究では、モデル群の肺組織においてIL-6、IL-1β、およびTNF-αのレベルが著しく上昇しており、LPSが単なる細菌の共感染ではなく、SARS-CoV-2感染下における炎症増幅器として機能していることが示唆されました。ウイルス感染の背景を持たないLPS単独の炎症モデルと比較して、本研究で構築した複合モデルは、SARS-CoV-2誘導性の免疫変化とLPS介在性の炎症活性化を統合しており、COVID-19関連肺損傷を研究するためのより包括的なプラットフォームを提供しています。
IFN-Iは宿主の抗ウイルス免疫における主要なエフェクター分子であり、広範囲のインターフェロン刺激遺伝子(ISGs)を誘導することで、広範な抗ウイルス機能を果たします3。しかし、SARS-CoV-2は、パターン認識受容体(PRR)介在性の信号伝達への干渉、インターフェロン調節因子(IRF)活性化の抑制、および下流のJAK-STATシグナル伝達の遮断を含む複数のメカニズムを通じてIFN-Iシグナルを拮抗させ、それによって宿主の抗ウイルス防御を損なうことが示されています14,34。本研究では、モデル群の肺組織においてIFN-αおよびIFN-βのレベルが著しく低下していることが観察され、ウイルス感染とLPS刺激の相乗効果の下で、宿主が過剰な炎症活性化を示すだけでなく、抗ウイルス免疫の抑制も同時に起こることが示唆されました。このような免疫調節不全は、COVID-19の発症および進行における重要な免疫学的特徴の一つと考えられています8。したがって、本モデルはこの複雑な病理学的プロセスを部分的に再現しており、COVID-19に関連する免疫調節不全のさらなる調査、および関連する治療介入の開発のための貴重な実験ツールを提供します。
SARS-CoV-2とLPSの併用投与に基づいて本研究で確立されたCOVID-19マウスモデルは、前炎症性サイトカインの上昇やIFN-Iシグナルの抑制を含む疾患病理の主要な特徴を再現することが可能であり、これによりCOVID-19に関連する肺傷害で観察される免疫不均衡を部分的に模倣している。単独のウイルス感染モデルと比較して、この併用アプローチは外来性の自然免疫刺激を取り入れることで疾患に関連する炎症反応を増強させ、過剰な炎症および抗ウイルス免疫の低下に関連する病理プロセスの研究を可能にする。したがって、本モデルは、特にウイルス複製のみではなく免疫調節不全を標的とする抗炎症、免疫調節、および肺修復戦略の候補をin vivoで評価するために有用であると考えられる。
しかしながら、本研究におけるいくつかの限界を認める必要がある。第一に、LPSは主にTLR4の活性化を通じて炎症を誘導するが、これは臨床的なCOVID-19における複雑なウイルスと宿主の相互作用を完全に反映しておらず、炎症反応を変化させる可能性がある。第二に、予備的な最適化段階において、SARS-CoV-2のみおよびLPSのみの群を用いた比較実験を実施したが、これらのデータは本論文に含まれていない。今後の研究では、各成分の寄与をより明確にするため、SARS-CoV-2とLPSの単独および複合的な影響をさらに評価する。第三に、本モデルはSARS-CoV-2感染の完全な自然経過ではなく、特に免疫炎症調節不全というCOVID-19に伴う肺損傷の主要な免疫病理学的特徴を再現するように設計されている。最後に、SARS-CoV-2の投与量とLPS濃度は予備的な最適化実験に基づいて決定したが、マウス系統、ウイルスの変異株、検査方法、および実験条件の違いがモデルの再現性に影響を与える可能性があり、異なる研究環境でのさらなる検証が必要である。本プロトコルに記載された最適化条件下において、モデル構築の全体的な成功率は約90%であったが、この割合は実験設定によって異なる可能性がある。今後の研究では、異なるSARS-CoV-2変異株、遺伝子改変マウス系統、またはシングルセル・トランスクリプトーム解析などの高度な免疫プロファイリング手法を導入することで、ウイルスと宿主の相互作用をより詳細に特性評価し、治療標的を特定することで、本モデルをさらに最適化できる可能性がある。これらの取り組みにより、COVID-19研究における本モデルのトランスレーショナルな妥当性がさらに向上すると考えられる。
開示事項
著者に開示すべき利益相反はありません。
謝辞
本研究は、中国国家自然科学基金(82374291)、四川省科学技術計画(2024NSFJQ059)、四川省中医学管理局科学研究特別科目(2024zd05)、202年「天府青城計画」天府科学技術領軍人才プロジェクト(川青城 No. 1090)、および成都市衛生健康委員会と成都中医药大学の共同イノベーション基金(WXLH202403091)の支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 自動組織処理装置 | Dakewe Biotech Co., Ltd. | HP30 | 組織の脱水に使用されます。 |
| 自動染色装置 | Leica Biosystems | LEICA ST5010 | HE染色のに使用。 |
| 遠心分離機 | DLAB Scientific | D3024R | 試料または試薬の遠心分離に使用します。 |
| 恒温水槽 | Shanghai LICHEN-BX Instrument Technology Co., Ltd. | HH-6 | 恒温水槽に使用されます。 |
| デジタルPCRシステム | QIAGEN | QIAcuity One | RT-dPCRに使用。 |
| qPCR用TransScript All-in-One 第一鎖cDNA合成スーパーミックス(ワンステップgDNA除去機能付き) | TransGen Biotech Co.,Ltd. | AT341 | 逆転写に使用します。 |
| エオシン溶液 | BASO | BA4024 | 組織学的染色に使用される。 |
| 蛍光定量PCRシステム | Rocgene (北京) 科技有限公司 | Archimed X6 | RT-qPCRに使用。 |
| ヘマトキシリン溶液 | BASO | BA4041 | 組織学的染色に使用される。 |
| IBM SPSS Statistics ソフトウェア | IBM Corp.、米国ニューヨーク州アーモンク | バージョン 2.0 | 統計解析に使用。 |
| Escherichia coli O5:B5由来のリポ多糖 | Sigma-Aldrich (Shanghai) Trading Co., Ltd. | L280 | マウスモデルの作製に使用。 |
| マイクロプレートリーダー | Molecular Devices | SpectraMax Plus 384 | ELISAに使用。 |
| マウスIFN-α ELISAキット | ZCIBIO Technology Co., Ltd. | ZC-37863W | IFN-の検出に使用されるα マウス肺組織におけるレベル。 |
| マウスIFN-β ELISAキット | ZCIBIO Technology Co., Ltd. | ZC-3787W | IFN-の検出に使用されるβ マウス肺組織におけるレベル。 |
| マウスIL-1β ELISAキット | ZCIBIO Technology Co., Ltd. | ZC-37974W | IL-1の検出に使用されるβ マウス肺組織におけるレベル。 |
| マウスIL-6 ELISAキット | ZCIBIO Technology Co., Ltd. | ZC-3798W | マウスの肺組織におけるIL-6レベルの検出に使用される。 |
| マウスTNF-α ELISAキット | ZCIBIO Technology Co., Ltd. | ZC-39024W | TNF-αの検出に使用されるα マウス肺組織におけるレベル。 |
| デジタルPCR用ワンステップRT-PCRキット | QIAGEN | 4829104 | デジタルPCRに使用。 |
| パラフィン包埋機 | Hubei Aristion Medical Industrial Co., Ltd. | ABM-7L | マウス肺組織のパラフィン包埋に使用。 |
| QuantiNova SYBR PCR Mix キット | QIAGEN | 1129280 | RT-qPCRに使用。 |
| RNeasy Plus Universal Mini Kit | QIAGEN | 1062832 | 全RNA抽出に使用。 |
| スライサー | Leica Biosystems | LEICA RM2235 | パラフィン切片に使用。 |
| 組織ホモジナイザー用ステンレス製ビーズ | Beyotime Biotechnology | F621 | 肺組織のホモジナイズに使用する。 |
| デジタルPCR用XGプライマープール 1.0 | QIAGEN | 4828104 | デジタルPCRに使用。 |
| ゾレチル 50 | VIRBAC | BN9VS7A | マウスの麻酔に使用します。 |
参考文献
- Zhang X, et al. SARS-CoV-2 Evolution: Immune Dynamics, Omicron Specificity, and Predictive Modeling in Vaccinated Populations. Adv Sci (Weinh). 2024;11(40):e2402639.
- Yu Y, et al. COVID-19 Serum Drives Spike-Mediated SARS-CoV-2 Variation. Viruses. 2024;16(5):763.
- Alhamlan FS, Al-Qahtani AA. SARS-CoV-2 Variants: Genetic Insights, Epidemiological Tracking, and Implications for Vaccine Strategies. Int J Mol Sci. 2025;26(3):1263.
- Habashi NM, Camporota L, Gatto LA, Nieman G. Functional pathophysiology of SARS-CoV-2-induced acute lung injury and clinical implications. J Appl Physiol (1985). 2021;130(3):877-891.
- Nie X, et al. Multi-organ proteomic landscape of COVID-19 autopsies. Cell. 2021;184(3):775-791.e14.
- Blanco-Melo D, et al. Imbalanced Host Response to SARS-CoV-2 Drives Development of COVID-19. Cell. 2020;181(5):1036-1045.e9.
- Wang J, Li Q, Qiu Y, Lu H. COVID-19: imbalanced cell-mediated immune response drives to immunopathology. Emerg Microbes Infect. 2022;11(1):2393-2404.
- Sa Ribero M, Jouvenet N, Dreux M, Nisole S. Interplay between SARS-CoV-2 and the type I interferon response. PLoS Pathog. 2020;16(7):e1008737.
- El-Saber Batiha G, Al-Gareeb AI, Saad HM, Al-Kuraishy HM. COVID-19 and corticosteroids: a narrative review. Inflammopharmacology. 2022;30(4):1189-1205.
- Ye Q, Wang B, Mao J. The pathogenesis and treatment of the 'Cytokine Storm' in COVID-19. J Infect. 2020;80(6):607-613.
- Jiang Y, et al. Cytokine storm in COVID-19: from viral infection to immune responses, diagnosis and therapy. Int J Biol Sci. 2022;18(2):459-472.
- Zhang S, Wang L, Cheng G. The battle between host and SARS-CoV-2: Innate immunity and viral evasion strategies. Mol Ther. 2022;30(5):1869-1884.
- Beyer DK, Forero A. Mechanisms of Antiviral Immune Evasion of SARS-CoV-2. J Mol Biol. 2022;434(6):167265.
- Lei X, et al. Activation and evasion of type I interferon responses by SARS-CoV-2. Nat Commun. 2020;11(1):3810.
- Mostafa-Hedeab G, et al. A raising dawn of pentoxifylline in management of inflammatory disorders in Covid-19. Inflammopharmacology. 2022;30(3):799-809.
- Chen Z, et al. SARS-CoV-2 immunity in animal models. Cell Mol Immunol. 2024;21(2):119-133.
- Johansen MD, et al. Animal and translational models of SARS-CoV-2 infection and COVID-19. Mucosal Immunol. 2020;13(6):877-891.
- Zhang Y, et al. SARS-CoV-2 rapidly adapts in aged BALB/c mice and induces typical pneumonia. J Virol. 2021;95(11):e02477-20.
- Sun SH, et al. A Mouse Model of SARS-CoV-2 Infection and Pathogenesis. Cell Host Microbe. 2020;28(1):124-133.e4.
- Muñoz-Fontela C, et al. Animal models for COVID-19. Nature. 2020;586(7830):509-515.
- Liu T, et al. Therapeutic potential of inosine in acute lung injury: mechanistic insights into TLR4 suppression and macrophage polarization. Phytomedicine. 2025;143:156854.
- Powers JM, et al. Divergent pathogenetic outcomes in BALB/c mice following Omicron subvariant infection. Virus Res. 2024;341:199319.
- Fan F, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule's protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Xie N, et al. Rhodiola crenulate alleviates hypobaric hypoxia-induced brain injury via adjusting NF-κB/NLRP3-mediated inflammation. Phytomedicine. 2022;103:154240.
- Jiang S, et al. Generic Diagramming Platform (GDP): a comprehensive database of high-quality biomedical graphics. Nucleic Acids Res. 2025;53(D1):D1670-D1676.
- Onohuean H, et al. Covid-19 and development of heart failure: mystery and truth. Naunyn Schmiedebergs Arch Pharmacol. 2021;394(10):2013-2021.
- Zarrilli G, et al. The Immunopathological and Histological Landscape of COVID-19-Mediated Lung Injury. Int J Mol Sci. 2021;22(2):974.
- Fernandes de Souza WD, et al. Lung Inflammation Induced by Inactivated SARS-CoV-2 in C57BL/6 Female Mice Is Controlled by Intranasal Instillation of Vitamin D. Cells. 2023;12(7):1092.
- Ciesielska A, Matyjek M, Kwiatkowska K. TLR4 and CD14 trafficking and its influence on LPS-induced pro-inflammatory signaling. Cell Mol Life Sci. 2021;78(4):1233-1261.
- Brandenburg K, et al. A Comparison between SARS-CoV-2 and Gram-Negative Bacteria-Induced Hyperinflammation and Sepsis. Int J Mol Sci. 2023;24(20):15169.
- Samsudin F, et al. SARS-CoV-2 spike protein as a bacterial lipopolysaccharide delivery system in an overzealous inflammatory cascade. J Mol Cell Biol. 2023;14(9):mjac058.
- Petruk G, et al. SARS-CoV-2 spike protein binds to bacterial lipopolysaccharide and boosts proinflammatory activity. J Mol Cell Biol. 2020;12(12):916-932.
- Martin-Sancho L, et al. Functional landscape of SARS-CoV-2 cellular restriction. Mol Cell. 2021;81(12):2656-2668.e8.
- Minkoff JM, tenOever B. Innate immune evasion strategies of SARS-CoV-2. Nat Rev Microbiol. 2023;21(3):178-194.