本研究では、淡明細胞型腎細胞癌におけるARHGAP22の発現を評価し、予後、臨床病理学的特徴、腫瘍免疫微小環境、および計算によって予測された薬剤感受性との関連を検討します。
研究記事
淡明細胞型腎細胞癌における潜在的な予後バイオマーカーとしてのARHGAP22:腫瘍免疫および共発現ネットワークに関する知見
* These authors contributed equally
この記事について
サマリー
要約
淡明細胞型腎細胞癌(ccRCC)は腎癌の最も一般的な亜型であり、臨床的な不均一性が顕著であるため、信頼性の高い予後バイオマーカーが必要とされています。本研究では、The Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma(TCGA-KIRC)コホートのトランスクリプトームおよび臨床データに加え、外部検証データおよびHuman Protein Atlas(HPA)のタンパク質発現情報を利用し、ccRCCにおけるARHGAP22の発現パターン、予後との関連性、および免疫関連の相関を評価しました。ARHGAP22の発現を腫瘍組織と隣接する正常組織の間で比較し、全生存期間、臨床病理学的特徴、腫瘍微小環境スコア、および推定免疫細胞分画との関連性を検討しました。また、潜在的な生物学的関連性を明らかにすることを目的として、共発現解析および機能濃縮解析を実施しました。トランスクリプトームレベルにおいて、ARHGAP22はccRCC組織で有意に高発現しており、免疫組織化学染色画像においても同様の差異が認められました。ARHGAP22の高発現は、全生存期間の短縮、進行した臨床病理学的特徴、ならびに高いImmuneScore、StromalScore、およびESTIMATEScore値と相関していました。CIBERSORTによる解析では、偽発見率(FDR)補正後、高発現群においてM2マクロファージおよび調節性T細胞の推定分画が高く、ナイーブB細胞、静止期マスト細胞、および活性化樹状細胞の推定分画が低いことが示されました。機能濃縮解析により、ARHGAP22に関連する遺伝子が免疫関連プロセス、細胞遊走、ならびにケモカインおよびサイトキン介在性シグナル伝達経路に関連していることが明らかになりました。これらの知見は、ARHGAP22がccRCCにおける潜在的な予後および免疫関連バイオマーカーとなる可能性を示唆していますが、さらなる独立した臨床的および実験的な検証が必要です。
概要
淡明細胞型腎細胞癌(ccRCC)は、腎細胞癌の最も一般的な組織学的亜型であり、症例の約70%–80%を占め、腎癌関連死亡率に大きく寄与しています1˒2。腎細胞癌の罹患率は近年全体的に増加しており、地域によって顕著な疫学的差異が見られます。確立されたリスク要因には、喫煙、肥満、高血圧、および慢性腎臓病が含まれます3˒4。淡明細胞型腎細胞癌は、強い侵襲性と分子的な不均一性を特徴とします。診断時に転移性疾患を呈する患者群が存在し、術後の再発や進行も一般的です2˒5。分子レベルでは、von Hippel–Lindau(VHL)の不活化と低酸素誘導因子(HIF)シグナル伝達の持続的な活性化がccRCCの病原性における主要なイベントとして認識されており、広範なゲノムおよびエピジェネティックな変異を伴います6˒7。標的療法や免疫療法によって進行癌の予後は改善していますが、治療反応性は依然として非常に不均一であり、信頼性の高い予後指標および免疫関連バイオマーカーの必要性が強調されています8,9,10。
Rhoグアノシン三リン酸加水分解酵素(Rho GTPase)は、細胞骨格のリモデリング、細胞極性、接着、遊走、浸潤を制御する分子スイッチであり、腫瘍形成および癌の進展において多面的な役割を担っています11˒12。Rho GTPaseシグナル伝達は、腫瘍細胞の増殖、アポトーシス、運動性の調節に加え、血管新生、炎症反応、および腫瘍免疫微小環境のリモデリングにも寄与しています13,14,15。ccRCCにおけるRho GTPaseシグナル伝達の生物学的重要性への注目が高まっています。Racシグナル伝達はccRCCの増殖と血管新生スイッチを促進することが報告されており、一方でVHL/HIF駆動型のccRCCはRho GTPase/Rho関連キネース(ROCK)経路に依存している可能性があります16˒17。また、Rho GTPase関連の遺伝子シグネチャーは、ccRCCにおける予後不良、免疫抑制状態、および免疫療法に対する反応性の差と関連していることが示されており、この経路が腫瘍の進展と腫瘍免疫を結ぶ重要な分子的なリンクとなっている可能性が唆されています18˒19。
ARHGAP22はRho GTPase活性化タンパク質(RhoGAP)ファミリーおよびFilGAP関連サブファミリーに属し、主にRhoA–Rac1軸の拮抗的調節に関与するRac特異的RhoGAPとして機能します20˒21。このタンパク質はプレクストリンホモロジー(PH)ドメインとRhoGAPドメインを有しており、エンドソームへの局在化および細胞膜への輸送を通じてRac活性を調節することで、ラメリポディアの形成、細胞の展展、および遊走に影響を与えます20˒22˒23。先行研究では、ARHGAP22が細胞骨格ダイナミクス、腫瘍細胞の運動性、腫瘍免疫微小環境に関連していることや、いくつかの悪性腫瘍において潜在的なバイオマーカーとしての役割を持つことが示されています20,23,24,25。しかし、ccRCCにおけるARHGAP22の発現パターン、予後的意義、免疫との関連性、および潜在的な治療上の関連性については、十分に特性解析されていません。したがって本研究では、予後および免疫関連バイオマーカーとしての潜在的価値を評価することを目的とし、ccRCCにおけるARHGAP22の発現が、 clinicopathological progression(臨床病理学的進行)、患者の予後、免疫浸潤、計算予測による薬剤感受性、および共発現ネットワークに関連しているかどうかを検討しました。
プロトコル
本研究では、TCGA、HPA、およびその他のオープンアクセスデータベースから提供されている、匿名化された公開データを使用しており、新たなヒト被験者の募集、動物実験、または個人を特定できる個人情報の利用は含まれていない。したがって、追加の機関倫理委員会の承認およびインフォームド・コンセントは不要であった。プロトコルで使用したツールに関する詳細は、材料表に記載されている。
1. 公開データセットおよびバイオインフォマティクス解析
公開データセットを使用しており、ヒト被験者または動物を対象とした直接的な研究は行われていない。トランスクリプトームデータおよび臨床データはThe Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma(TCGA-KIRC)プロジェクトから取得し、タンパク質発現データはHuman Protein Atlasから取得した。この計算科学的アプローチにより、大規模なトランスクリプトームおよび臨床データセットの効率的なスクリーニングが可能となり、候補バイオマーカーの予備的な特定が支持され、その後の実験的検証の根拠が得られた。すべての計算解析は統計ソフトを用いて実施した。
2. データ収集およびサンプルの選択
Genomic Data Commons Data Portalにアクセスし、TCGA-KIRCプロジェクトを選択した。淡明細胞型腎細胞がん(ccRCC)のトランスクリプトームプロファイリングデータおよび対応する臨床情報をダウンロードした。その後のトランスクリプトーム解析には、Transcripts per million(TPM)で正規化したmessenger RNA発現データを使用した。TCGA-KIRCのトランスクリプトームマトリックスからARHGAP22の発現値を抽出し、TCGAサンプルバーコードを用いて対応する臨床記録と照合した。ARHGAP22の発現データおよび臨床アノテーションが利用可能な原発性腫瘍組織および隣接正常腎組織を組み込んだ。ARHGAP22の発現値が欠損しているサンプル、主要な臨床情報や生存情報が不完全なサンプル、重複レコード、または生存期間が30日未満のサンプルは除外した。フィルタリング後、533件の腫瘍サンプルと72件の隣接正常組織サンプルを後続の解析に使用した。
3. パンキャンセル発現解析
ARHGAP22のパンキャンセル発現解析は、TIMER2.0(http://timer.cistrome.org/; 2026年4月12日アクセス)のGene_DEモジュールを用いて実施した。TCGAのRNA-seqデータを用い、複数の癌種において腫瘍組織と対応する正常組織の間でARHGAP22の発現を比較した。発現値はlog2(TPM)として提示し、発現変動はTIMER2.0に実装されているWilcoxon順位和検定を用いて評価した。両側P値が0.05未満の場合を統計的に有意と見なした。
4. 外部GEOバリデーション
外部バリデーションは、BESTオンラインプラットフォーム(https://rookieutopia.hiplot.com.cn/app_direct/BEST/; 2026年7月9日にアクセス)を介して、Gene Expression OmnibusデータセットGSE167573を用いて行われた。ccRCCおよび正常腎組織におけるARHGAP22の発現は、プラットフォームから提供された正規化発現データを用いて比較し、対応のないStudentのt検定で評価した。生存分析では、同プラットフォームの最適カットオフ法を用いて患者を高発現群と低発現群に分け、ログランク検定を用いたKaplan-Meier分析により全生存期間を評価した。両側P値が0.05未満の場合を統計的に有意とした。
5. ARHGAP22発現解析
TPMで正規化したARHGAP22メッセンジャーRNAの発現データをTCGA-KIRCコホートから抽出し、統計解析の前にlog2(TPM + 1)として変換した。原発性腫瘍組織と隣接する正常腎組織の間におけるARHGAP22の発現差を評価した。腫瘍組織と正常組織の非ペア比較には、Wilcoxon順位和検定を用いた。ペア解析では、TCGAの患者バーコードを用いて腫瘍と正常組織のペアを特定し、隣接正常組織と対応する腫瘍組織の間でARHGAP22の発現を比較するためにWilcoxon符号付順位検定を適用した。両側P値が0.05未満の場合を統計的に有意であるとみなした。
6. 生存分析および受信者動作特性解析
臨床フォローアップデータが利用可能なTCGA-KIRC腫瘍サンプルを用いて、生存分析および時間依存性受信者動作特性(ROC)解析を行った。全生存期間を日から年に変換した。ARHGAP22発現量の中央値を用いて、患者をARHGAP22高発現群と低発現群に分けた。発現量に基づくグループ分けを含むすべての解析において、同一のカットオフ値を一貫して適用した。Kaplan–Meier曲線はsurvivalパッケージおよびsurvminerパッケージを用いて作成した。群間差はログランク検定を用いて評価した。ハザード比および95%信頼区間の推定にはCox比例ハザード回帰を用いた。時間依存性ROC曲線はtimeROCパッケージを用いて作成した。1年、3年、および5年時点の曲線下面積(AUC)をAalen加重法を用いて算出した。両側P値が0.05未満の場合を統計的に有意と見なした。
7. クリニカルパソロジカル相関分析
ARHGAP22の発現とクリニカルパソロジカル特性との相関を、TCGA-KIRCの腫瘍サンプルを用いて分析した。正常サンプルは除外した。年齢は65歳以下と65歳超に分類した。アノテーションが不明または欠損しているサンプルは、該当する分析から除外した。2群間の比較にはWilcoxonランク和検定を用い、3群以上の比較にはKruskal-Wallis検定を用いた。バイオリンプロットは、ggpubr、ggplot2、およびscalesパッケージを用いて作成した。ヒートマップによる可視化では、中央値をカットオフ値として、患者をARHGAP22高発現群と低発現群に分類した。発現群とクリニカルパソロジカル変数との相関は、カイ二乗検定を用いて評価した。ヒートマップは、limmaで前処理した後、ComplexHeatmapを用いて作成した。両側P値が0.05未満の場合を統計的に有意とみなした。
8. ノモグラムの構築
ARHGAP22の発現量と得られた臨床病理学的特性をCox比例ハザード回帰モデルに統合し、予後予測ノモグラムを構築した。このモデルを用いて、TCGA-KIRCコホートにおける1年、3年、および5年の全生存期間を推定した。個々の患者のリスクスコアは、適合させたCoxモデルを用いて算出した。1年、3年、および5年の全生存期間のキャリブレーション曲線は、1,000回のブートストラップ再サンプリング反復を伴うKaplan–Meier法を用いて作成した。ノモグラムで予測された生存確率と観察された生存結果との一致度を評価した。Cox回帰はsurvivalパッケージを用いて実行した。ノモグラムの可視化およびキャリブレーション分析は、regplotおよびrmsを用いて行った。両側P値が0.05未満の場合を統計的に有意であると見なした。
9. 共発現解析
TCGA-KIRCの腫瘍サンプルから得られたトランスクリプトームデータを用い、ピアソン相関解析によってARHGAP22と他のすべての遺伝子との共発現関係を評価した。ピアソン相関係数の絶対値が0.6より大きく、P値が0.001未満の遺伝子を有意な共発現遺伝子として定義した。有意な共発現遺伝子を相関係数の絶対値に基づいてランク付けした。上位の遺伝子を選択して相関行列を構築し、コードダイアグラムを作成することでARHGAP22に関連する共発現ネットワークを可視化した。
10. 発現変動遺伝子および機能濃縮解析
ARHGAP22高発現群と低発現群の間の発現変動解析は、偽発見率(FDR)補正を伴うウィルコクソン順位和検定を用いて行われた。log2フォールドチェンジの絶対値が1より大きく、かつFDRが0.05未満の遺伝子を有意な発現変動遺伝子と定義した。結果はボルケーノプロットおよびヒートマップを用いて可視化した。Gene OntologyおよびKyoto Encyclopedia of Genes and Genomes(KEGG)の濃縮解析は、clusterProfilerを用いて行った。遺伝子シンボルはorg.Hs.eg.dbを用いてEntrez IDに変換した。名目P値およびFDR調整済みP値がいずれも0.05未満のGene Ontology用語およびKEGGパスウェイを有意に濃縮しているとみなした。遺伝子セット濃縮解析(GSEA)は、Molecular Signatures Databaseのファイルc2.cp.kegg.v7.4.symbols.gmtにあるKEGG遺伝子セットを用いて行った。遺伝子はlog2フォールドチェンジによって順位付けされ、名目P値が < 0.05未満を、有意に濃縮されているとみなした。
11. 免疫浸潤および免疫チェックポイント解析
TCGA-KIRCの腫瘍サンプルを用いて、免疫浸潤および免疫チェックポイント解析を実施した。StromalScore、ImmuneScore、およびESTIMATEScoreの値は、estimateパッケージを使用して算出した。免疫細胞分率は、1,000回のパーミュテーションと分位正規化を用いてCIBERSORT Rスクリプトにより推定した。CIBERSORTデコンボリューションのP値が0.05未満のサンプルを保持した。患者をARHGAP22の発現レベルの中央値に基づき、ARHGAP22-high群とARHGAP22-low群に分けた。2群間のESTIMATEスコアおよび免疫細胞分率の差は、Wilcoxon順位和検定を用いて評価した。ARHGAP22の発現量と免疫チェックポイント遺伝子の相関は、ピアソン相関分析を用いて評価した。複数の免疫細胞比較および免疫チェックポイント相関テストから得られたP値は、Benjamini–Hochberg FDR法を用いて補正し、FDRが0.05未満を統計的に有意とした。FDRで有意な免疫チェックポイント遺伝子は、corrplotで作成した相関ヒートマップを用いて可視化した。データの前処理および可視化には、主にlimma、ggpubr、およびcorrplotを使用した。
12. 薬剤感受性予測
正常組織サンプルを除外した後、TCGA-KIRCの腫瘍トランスクリプトームデータを使用した。計算による半最大阻害濃度(IC50)の値は、oncoPredictパッケージおよびGenomics of Drug Sensitivity in Cancer 2に基づくリファレンスデータセットを用いて算出した。ARHGAP22発現量の中央値を用いて、患者をARHGAP22高発現群とARHGAP22低発現群に分けた。予測された半最大阻害濃度値を、ウィルコクソン順位和検定を用いて群間で比較した。複数の薬剤比較におけるP値はBenjamini–Hochberg法を用いて補正し、FDRが0.05未満の場合を統計的に有意であるとみなした。これらの結果は、実験的に検証された、あるいは臨床的に観察された薬剤反応ではなく、計算によって予測された薬剤感受性の推定値として解釈した。
13. ヒトプロテインアトラスによる検証
Human Protein Atlasデータベースにアクセスし、ARHGAP22を検索した。「Tissue」セクションを確認し、正常な腎組織におけるARHGAP22タンパク質の発現を評価した。次に「Pathology」セクションを開き、淡明細胞型腎細胞癌を選択して、腫瘍組織におけるARHGAP22タンパク質の発現を確認した。正常な腎組織およびccRCC組織の代表的な免疫組織化学染色像を取得し、正常組織と腫瘍組織の間でのARHGAP22タンパク質発現を比較するため、論文に掲載する画像として選択した。
結果
ARHGAP22の汎がん種発現プロファイリング
汎がん種の転写プロファイリングにより、腫瘍の種類および対応する正常組織においてARHGAP22の発現に顕著な不均一性があることが示された(図1)。いくつかの固形腫瘍において、ARHGAP22の発現が増加する全体的な傾向が観察された。ARHGAP22の発現は、乳浸潤癌、胆管癌、頭頸部扁平上皮癌、腎嫌色細胞癌、腎淡明細胞癌、腎乳頭状細胞癌、および肝細胞癌において、対応する正常組織よりも腫瘍組織で有意に高かった。これらの知見は、ARHGAP22が複数の癌種において特異的に発現しており、腫瘍関連バイオマーカーとしての関連性を有している可能性を示唆している。
淡明細胞型腎細胞癌におけるARHGAP22の発現パターンと予後診断的価値
トランスクリプトームデータ、生存分析、独立した検証データセット、および免疫組織化学染色画像を用いて、淡明細胞型腎細胞癌(ccRCC)におけるARHGAP22の発現パターンと臨床的意義を評価した。非ペアおよびペアの両方のThe Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma(TCGA-KIRC)サンプルにおいて、ARHGAP22の発現は正常腎組織よりもccRCC組織で有意に高かった(図1B、C)。Kaplan–Meier分析の結果、ARHGAP22の高発現患者は、低発現患者に比べて全生存期間(OS)が有意に短いことが示された(P = 0.013; 図1D)。時間依存性受信者動作特性(ROC)分析では、1年、3年、5年のOSに対する曲線下面積(AUC)がそれぞれ0.641、0.637、0.641となり、適度な予後予測能であることが示された(図1E)。これらの知見を独立したGSE167573データセットを用いてさらに評価したところ、ARHGAP22の発現は正常腎組織よりもccRCC組織で有意に高く(図1F)、ARHGAP22の高発現はOSの短縮に関連していた(図1G)。Human Protein Atlasから得られた免疫組織化学染色画像では、正常腎組織よりもccRCC組織でARHGAP22タンパク質の染色性が強く、トランスクリプトーム解析の結果をタンパク質レベルでさらに裏付ける結果となった(図1H、I)。
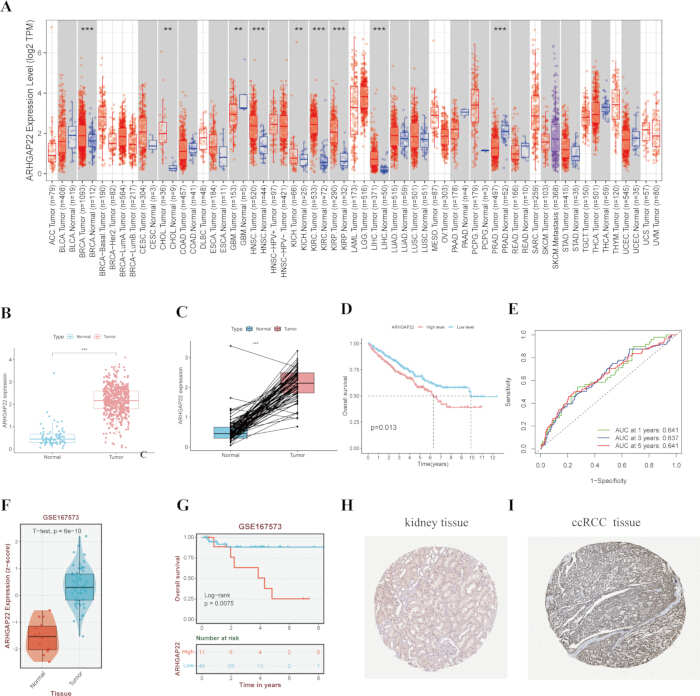
図 1: 淡明細胞型腎細胞癌におけるARHGAP22のパンキャンサー発現、発現パターン、および予後価値。(A) 複数の腫瘍型および対応する正常組織におけるARHGAP22のパンキャンサー発現プロファイル。(B) 非ペアの淡明細胞型腎細胞癌(ccRCC)および正常腎組織におけるARHGAP22の発現。(C) ペアのccRCCおよび隣接正常腎組織におけるARHGAP22の発現。(D) ARHGAP22の高発現患者と低発現患者を比較したKaplan–Meier全生存期間曲線。(E) 1年、3年、および5年の全生存期間に対するARHGAP22の予後予測能を評価した時間依存性受信者動作特性(ROC)曲線。(F) GSE167573データセットにおけるARHGAP22発現の検証。(G) GSE167573データセットにおけるKaplan–Meier全生存期間解析。(H, I) Human Protein Atlasによる、正常腎組織(H)およびccRCC組織(I)におけるARHGAP22タンパク質発現を示す免疫組織化学染色像。*P < 0.05; **P < 0.01; ***P < 0.001。略語:ccRCC, 淡明細胞型腎細胞癌; OS, 全生存期間; ROC, 受信者動作特性; DEG, 発現変動遺伝子; GO, Gene Ontology; KEGG, 京都遺伝子・ゲノム百科事典; GSEA, 遺伝子セット濃縮解析; FDR, 偽発見率; IC50, 半数最大抑制濃度。 ここをクリックして、この図の拡大版を表示してください。
ARHGAP22と臨床病理学的特徴との関連性
ARHGAP22の発現と臨床病理学的特性との関連を評価し、疾患の重症度によって発現が変動するかどうかを検討した。ARHGAP22の発現は、転移性疾患の患者を含む、T、M、N分類の進行した患者において有意に高かった(Figure 2A–C)。また、組織学的グレードおよび臨床病期の進行に伴い、発現も増加した(Figure 2D, E)。ヒートマップ解析では、ARHGAP22の高発現と、より高い組織学的グレード、進行した臨床病期、および不良なTNM分類との間に有意な関連があることがさらに示された(Figure 2F)。これらの結果は、ARHGAP22の発現上昇が、ccRCCにおけるより悪性度の高い臨床病理学的特徴と関連していることを示唆していた。
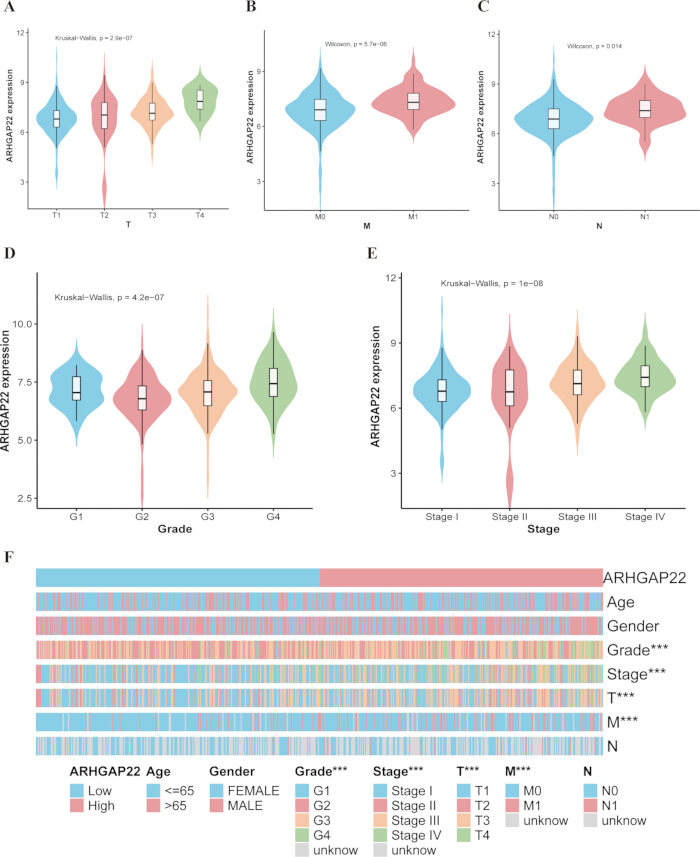
図2淡明細胞型腎細胞癌におけるARHGAP22の発現と臨床病理学的特徴との関連。(A–C) T、M、N分類それぞれに基づいたARHGAP22の発現。 (D) 組織学的グレードに応じたARHGAP22の発現。 (E) 臨床病期に応じたARHGAP22の発現。 (F) ARHGAP22の発現量と臨床病理学的特性との関連を示すヒートマップ。*P < 0.05; **P < 0.01; ***P < 0.001. この図の拡大版を表示するには、ここをクリックしてください。
clinicopathological features and overall survival( clinicopathological features and overall survival)
Kaplan–Meier解析の結果、 clinicopathological subgroupsの間でOSに有意な差が認められた(Figure 3)。組織学的グレードが高いG3–G4の患者は、グレードが低いG1–G2の患者よりもOSが有意に短かった(P < 0.0001; Figure 3A)。また、stage III–IVの患者は、stage I–IIの患者よりもOSが有意に短かった(P < 0.0001; Figure 3B)。T分類のサブグループ間でもOSに有意な差があり、T分類が進んでいるほど予後が不良であった(P < 0.0001; Figure 3C)。リンパ節転移(N1)または遠隔転移(M1)のある患者も、リンパ節転移および遠隔転移のない患者よりもOSが有意に短かった(ともにP < 0.0001; Figure 3D, E)。これらの結果から、ccRCCにおいて組織学的グレード、臨床病期、およびTNM分類が生存率に関連していることが確認された。
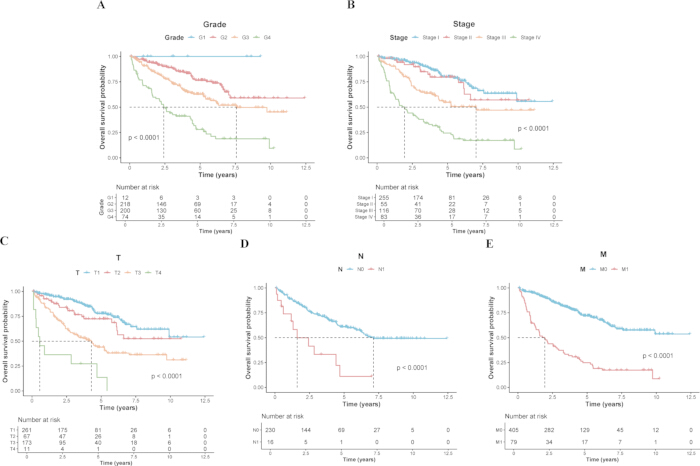
図3クリア細胞型腎細胞癌における clinicopathological features(臨床病理学的特徴)に基づいた全生存期間。(A–E) 組織学的グレード、臨床ステージ、T分類、N分類、およびM分類に基づいた、それぞれのカプラン・マイヤー全生存期間曲線。 こちらの図の拡大版を表示するには、ここをクリックしてください。
淡明細胞型腎細胞癌の予後ノモグラム
ARHGAP22の発現量と利用可能な臨床病理学的特性を統合した予後ノモグラムを構築し、ccRCC患者における1年、3年、および5年の全生存期間(OS)を推定した(図 4A)。キャリブレーション分析の結果、3つのすべての時点において、ノモグラムで予測された生存確率と実際に観察された生存確率との間に一致が認められた。キャリブレーション曲線は理想的な参照線に近く、十分なキャリブレーション性能を示していた(図 4B)。臨床モデルのコンコーダンス指数は0.779(95%信頼区間:0.729–0.828)であったのに対し、ARHGAP22を加えた場合のコンコーダンス指数は0.781(95%信頼区間:0.735–0.827)であり、予後予測能の向上はわずかであった。
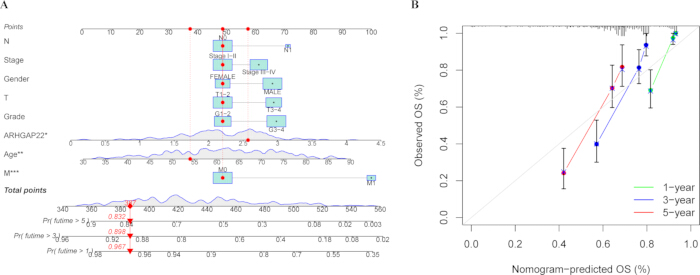
図 4: 淡明細胞型腎細胞癌におけるARHGAP22に基づく予後ノモグラムおよびキャリブレーション分析。(A) 1年、3年、および5年の全生存期間を推定するためのノモグラム。 (B) ノモグラムで予測された1年、3年、および5年の全生存期間と観察された生存期間を比較したキャリブレーション曲線。こちらのリンクをクリックして、この図の拡大表示を確認してください。
ARHGAP22の分子ネットワーク解析
ARHGAP22の発現に関連する分子ネットワークを特性評価するため、相関解析を実施した。相関ネットワークにより、ccRCCにおけるARHGAP22と複数の遺伝子との関連性が示された(図5A)。ARHGAP22の発現は、GMIP、TRPM2、CARD9、FMNL1、STAC3、およびMYO9Bと有意に正の相関を示した。また、BSND、HEPACAM2、ATP6V1G3、TMEM38A、およびFOXI1とは有意な負の相関が観察された(図5B–L)。これらの結果は、ccRCCにおいてARHGAP22の発現が複雑な共発現ネットワークに関連していることを示唆している。
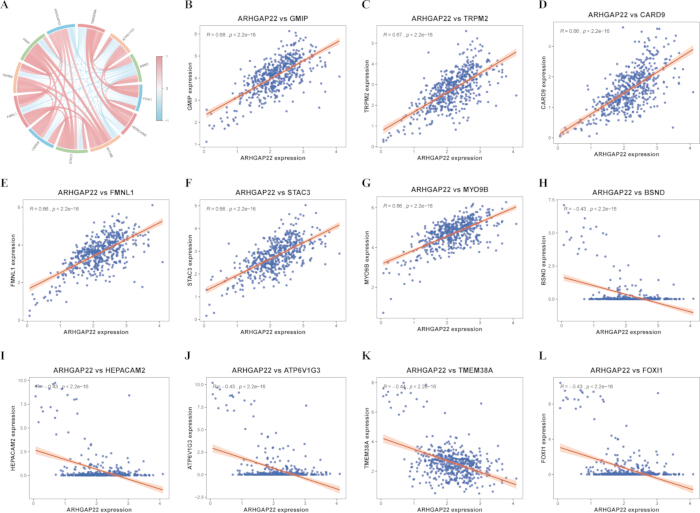
図5淡明細胞型腎細胞癌におけるARHGAP22関連の分子学的特徴。(A) ARHGAP22と関連遺伝子との相関を示す相関ネットワーク。 (B–G) 陽性 ARHGAP22とGMIP、TRPM2、CARD9、FMNL1、STAC3、およびMYO9Bとの相関関係、それぞれである。(H–L) ARHGAP22と、BSND、HEPACAM2、ATP6V1G3、TMEM38A、およびFOXI1との間に、それぞれ負の相関が認められた。 この図の拡大版を表示するには、ここをクリックしてください。
ARHGAP22に関連する発現変動遺伝子
淡明細胞型腎細胞癌の検体を、ARHGAP22の発現量の中央値を用いて高発現群と低発現群に分け、差分的発現解析を行った。その結果、高発現群において合計334個の遺伝子が発現上昇し、38個の遺伝子が発現低下していた(図6A)。ヒートマップ解析により、ARHGAP22高発現群と低発現群の間で異なる発現パターンが明らかになり、同定された変動遺伝子がこれら2つの群を分ける指標となることが示された。 (図6B)。
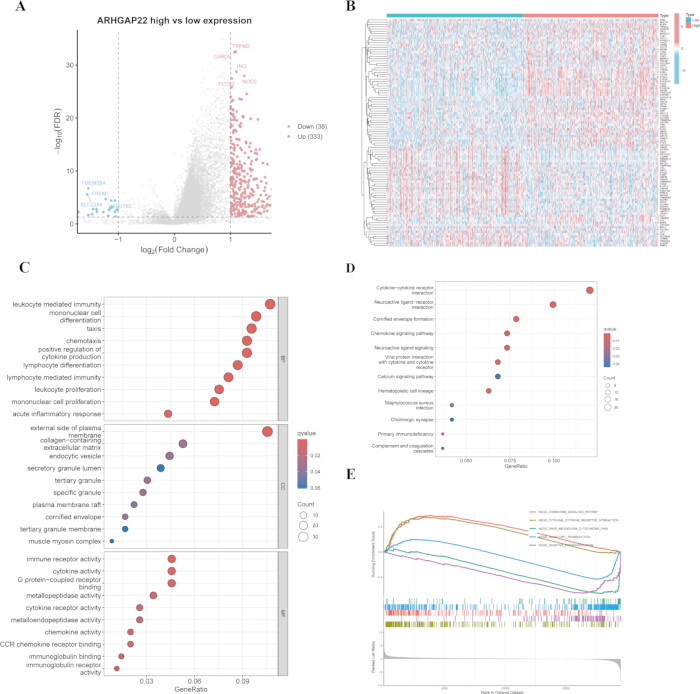
図 6: ARHGAP22に関連する変動遺伝子および機能濃縮分析。(A) ARHGAP22高発現群と低発現群の間で変動した遺伝子のボルケーノプロット。(B) 変動遺伝子のヒートマップ。 (C) Gene Ontology濃縮分析。 (D) Kyoto Encyclopedia of Genes and Genomes (KEGG) パスウェイ濃縮分析。 (E) ARHGAP22高発現群で濃縮されたパスウェイを示すGene Set Enrichment Analysis (GSEA)。こちらのリンクをクリックして、この図の拡大版を表示してください。
ARHGAP22に関連する変動発現遺伝子の機能濃縮解析
変動発現遺伝子に関連する生物学的プロセスを特徴付けるために、機能濃縮解析を実施した。遺伝子オントロジー解析の結果、白血球介在性免疫、走化性、サイトカイン産生、およびリンパ球の分化および増殖を含む、免疫関連の生物学的プロセスにおける濃縮が示された。細胞成分レベルでは、細胞外マトリックス、分泌顆粒、および細胞膜関連構造において濃縮が観察された。分子機能レベルでは、サイトカイン活性、ケモカイン受容体結合、およびメタロペプチダーゼ関連活性において濃縮が観察された(図6C)。Kyoto Encyclopedia of Genes and Genomes解析では、サイトカイン–サイトカイン受容体相互作用、ケモカインシグナル伝達、カルシウムシグナル伝達、ならびに感染および免疫関連経路において有意な濃縮が示された(図6D)。さらに、遺伝子セット濃縮解析により、ARHGAP22高発現群において複数の免疫関連経路が濃縮されていることが特定された(図6E)。
淡明細胞型腎細胞癌におけるARHGAP22と免疫微小環境
CIBERSORTに基づいた推定免疫細胞分画の解析により、ARHGAP22高発現群と低発現群との間に有意な差が認められた(図7A)。偽発見率(FDR)補正後、ARHGAP22高発現群ではM2マクロファージおよび制御性T細胞の推定分画が高く、ナイーブB細胞、静止期マスト細胞、および活性化樹状細胞の推定分画が低かった。相関解析により、ARHGAP22の発現はM2マクロファージおよび制御性T細胞と正の相関を示し、ナイーブB細胞、静止期マスト細胞、および活性化樹状細胞と負の相関を示した(図7B)。これらのCIBERSORTによる推定結果は、ccRCCにおけるARHGAP22の高発現が免疫抑制的なプロファイルと関連していることを示唆している。
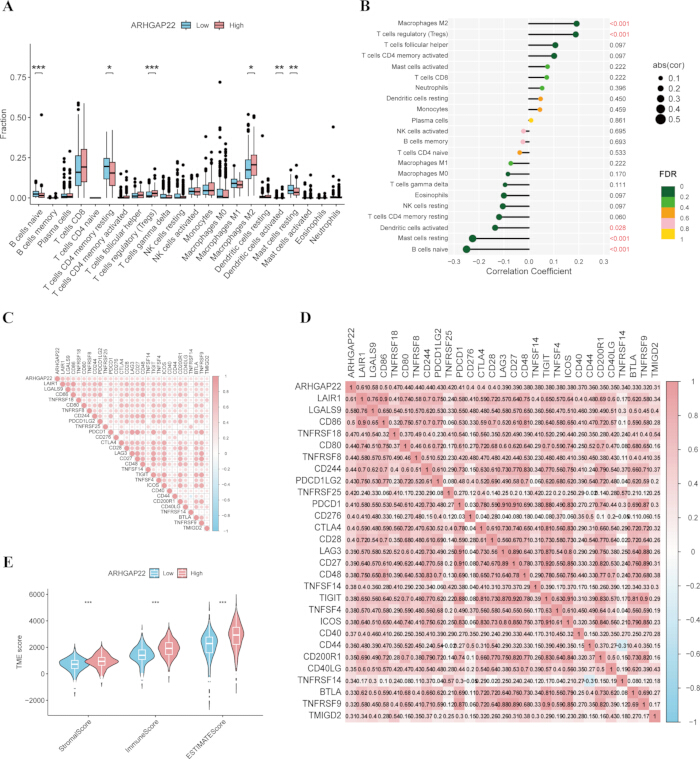
Figure 7: 淡明細胞型腎細胞癌におけるARHGAP22発現と免疫微小環境の特徴との関連。(A) ARHGAP22高発現群とARHGAP22低発現群におけるCIBERSORT推定免疫細胞画分の差。(B) ARHGAP22発現とCIBERSORT推定免疫細胞画分との相関。 (C) ARHGAP22発現と免疫チェックポイント遺伝子との関連を示す相関ヒートマップ。 (D) ARHGAP22と免疫チェックポイント分子の相関マトリックス。 (E) ESTIMATEアルゴリズムを用いて算出された、ARHGAP22高発現群とARHGAP22低発現群におけるStromalScore、ImmuneScore、およびESTIMATEScoreの差。*P < 0.05; **P < 0.01; ***P < 0.001. こちらをクリックして、この図の拡大版を表示してください。
ARHGAP22、免疫チェックポイント、および腫瘍微小環境成分
ARHGAP22の高発現は、PDCD1LG2、CTLA4、LAG3、TIGIT、およびICOSを含むいくつかの免疫チェックポイント遺伝子と正の相関を示し(Figure 7C, D)、免疫逃避に関連する特性との潜在的な関連性が示唆されました。また、ESTIMATE解析により、ARHGAP22高発現群においてStromalScore、ImmuneScore、およびESTIMATEScoreの値が有意に高く(Figure 7E)、腫瘍微小環境内のストロマ成分および免疫成分の増加を反映していることが示されました。これらの結果は、ccRCCにおいて、ARHGAP22の発現がCIBERSORTで推定された免疫細胞分画、免疫チェックポイントの発現、および免疫抑制的な腫瘍微小環境プロファイルと関連していることを示しています。
ARHGAP22と計算予測による標的薬感受性
ARHGAP22の発現量と計算予測による標的薬感受性との関連を、高発現群と低発現群の間で予測半最大阻害濃度(IC₅₀)値を比較することで評価した(図 8A–I)。低発現群では、axitinib、sorafenib、savolitinib、foretinib、cediranib、alpelisib、buparlisib、afuresertib、およびipatasertibにおいて、予測IC₅₀値が有意に低かった。予測IC₅₀値が低いことは、計算上の予測感受性がより高いことを示している。これらの結果は、ARHGAP22の低発現と、評価した標的薬剤に対する予測感受性の高さとの間に相関があることを示唆していた。なお、これらの結果は計算による予測であり、実験的または臨床的に検証された薬物反応を構成するものではない。
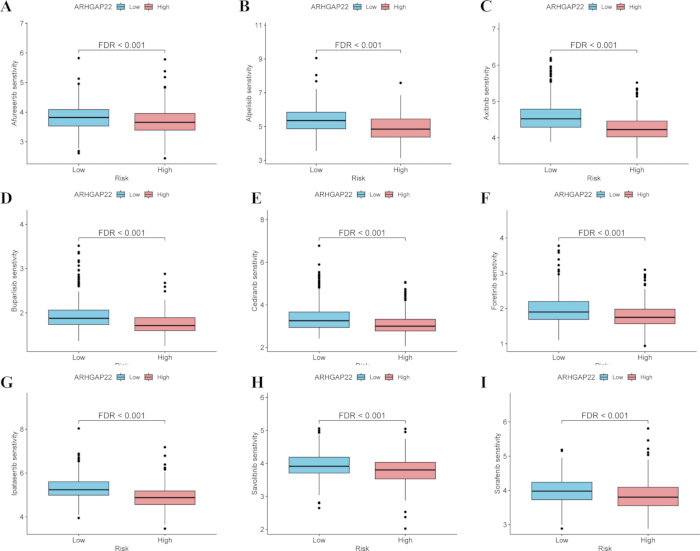
図 8: 淡明細胞型腎細胞癌におけるARHGAP22発現と計算予測標的薬感受性との関連。(A–I) ARHGAP22高発現群と低発現群における、axitinib、sorafenib、savolitinib、foretinib、cediranib、alpelisib、buparlisib、afuresertib、およびipatasertibのそれぞれについて計算予測された半数最大抑制濃度値の比較。予測される半数最大抑制濃度値が低いほど、予測される薬物感受性が高いことを示す。こちらのリンクから、この図の拡大版を表示してください。
データの可用性:
本研究で解析したトランスクリプトームおよび臨床データは、公開されているThe Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma (TCGA-KIRC) プロジェクト (https://portal.gdc.cancer.gov/) から取得しました。外部の発現および生存率の検証データは、Gene Expression Omnibus データセット GSE167573 から取得しました。タンパク質発現データは、Human Protein Atlas (https://www.proteinatlas.org/) から取得しました。パンキャンサー発現データは TIMER2.0 を用いて解析し、外部検証は BEST プラットフォームを通じて行いました。薬物感受性のリファレンスデータは Genomics of Drug Sensitivity in Cancer 2 データセットから取得し、エンリッチメント解析に使用した遺伝子セットは Molecular Signatures Database から取得しました。元のデータセットは、対応するリポジトリおよびプラットフォームを通じて公開されています。データ処理、統計解析、および可視化に使用した R スクリプトは、付録ファイル 1 として提供しています。処理済み結果は、完全な差分的発現解析結果を含む 付録表 1、Gene Ontology エンリッチメント結果を含む 付録表 2、および Kyoto Encyclopedia of Genes and Genomes パスウェイエンリッチメント結果を含む 付録表 3 として提供しています。
補足表1:差分的発現解析の完全な結果。このファイルには、ARHGAP22高発現群と低発現群の間で同定された差分的発現遺伝子の完全なリストが含まれており、遺伝子識別子、群ごとの発現値、log2 fold change、P値、偽発見率(FDR)補正後のP値、および調節方向が記載されています。こちらのリンクからファイルをダウンロードしてください。
補足表2:ジーンオントロジー(Gene Ontology)濃縮解析結果。このファイルには、生物学的プロセス、細胞成分、および分子機能のカテゴリーを含む、ARHGAP22関連の変動遺伝子に関する完全なジーンオントロジー濃縮結果が記載されており、濃縮統計量、P値、補正P値、遺伝子数、および関連する遺伝子識別子が含まれています。こちらをクリックしてファイルをダウンロードしてください。
補足表3:Kyoto Encyclopedia of Genes and Genomes(KEGG)パスウェイ濃縮分析結果。本ファイルには、ARHGAP22に関連する発現変動遺伝子の完全なKyoto Encyclopedia of Genes and Genomesパスウェイ濃縮結果が含まれており、パスウェイ識別子および名称、濃縮統計量、P値、補正P値、q値、遺伝子数、および関連する遺伝子識別子が記載されています。こちらのリンクをクリックしてファイルをダウンロードしてください。
補足ファイル 1:データ処理、統計解析および可視化のためのRスクリプト。 このファイルには、データの前処理、発現解析、生存解析、臨床病理学的関連解析、共発現解析、差分的発現解析、機能濃縮解析、免疫浸潤解析、薬剤感受性予測、および図の作成に使用したRスクリプトが含まれています。こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
腎細胞癌(RCC)は泌尿器系で最も一般的な悪性腫瘍の一つであり、明細胞型腎細胞癌(ccRCC)は主要な組織学的サブタイプであり、RCCに関連する死亡率の主な要因となっています。近年、RCCの発生率は全体的に増加しており、顕著な地域差が見られます。既知のリスク要因には、喫煙、肥満、高血圧、および慢性腎臓病が含まれます3˒4。診断と治療が進歩しているにもかかわらず、ccRCCは臨床的に不均一なままであり、一部の患者は進行性または転移性の疾患で発症し、術後の再発や遠隔転移も一般的です2˒5˒26。したがって、腫瘍の挙動および予後に関連する分子バイオマーカーの同定は、ccRCC研究における重要な目的であり続けています。本解析では、ARHGAP22がccRCCでアップレギュレートされており、全生存期間の短縮、不良な臨床病理学的特徴、免疫関連のトランスクリプトーム変化、免疫抑制的な腫瘍微小環境プロファイル、および計算予測による標的薬剤への感受性の差に関連していることが示されました。これらの知見は、臨床的な有用性や因果関係はまだ確立されていないものの、ARHGAP22が予後および免疫関連バイオマーカーの候補として潜在的な価値を持つことを支持しています。
ARHGAP22は、細胞骨格の調節および細胞運動に関与するRho GTPase活性化タンパク質をコードしています。このタンパク質は、プレクストリン相同ドメイン、RhoGAPドメイン、およびC末端のコイルドコイル領域を含んでおり、14-3-3タンパク質と相互作用できることから、成長因子によって調節される細胞遊走において役割を担っていることが示唆されています22。FilGAP関連タンパク質として、ARHGAP22はRhoA–Rac1軸の拮抗的な調節および細胞遊走モードの制御に関与しています21˒27。ARHGAP22は主にエンドソームに局在し、膜ラッフルや細胞膜へと輸送され、そこでRac依存的なラメリポディア形成および細胞展展を抑制します。その細胞内局在はRacGAP活性と密接に関連しています20˒23。また、腫瘍との関連も報告されています。ccRCCにおいて、ARHGAP22はブロモドメイン含有タンパク質4抑制に関連する転写解析の候補分子として同定されており、全生存期間の低下と関連しています28。さらに、ARHGAPファミリーのメンバーは、膀胱がんにおける腫瘍促進的な免疫浸潤および疾患の進行25、急性骨髄性白血病における発現変化およびエキソン変異24、ならびに転移性大腸がんにおけるベバシズマブに対する反応性の違い29にも関連していることが報告されています。
今回の知見は、これらの観察結果と一致していた。ARHGAP22の発現は、T、N、M分類、組織学的グレード、および臨床ステージの進行に伴って増加し、高発現は全生存期間の短縮と関連していた。Racシグナル伝達は、ccRCCの増殖と血管新生スイッチを促進することが以前に示されており16、一方でRho GTPase/Rho関連コイルドコイル含有プロテインキナーゼ経路は、ccRCCにおける悪性挙動に関連している17。したがって、観察されたARHGAP22のアップレギュレーションは、侵襲的な腫瘍表現型に関連する分子変化を反映している可能性がある。共発現および差分的発現解析により、ARHGAP22が広範な転写ネットワークに関連していることがさらに示された。FMNL1、CARD9、およびTRPM2を含む遺伝子との正の相関が観察された一方で、BSNDおよびFOXI1を含む遺伝子との負の相関が観察された。Gene Ontology、Kyoto Encyclopedia of Genes and Genomes、およびGene Set Enrichment Analysisの結果では、白血球介在性免疫、化学遊走、サイトカイン産生、リンパ球の分化および増殖、サイトカイン-受容体相互作用、およびケモカインシグナル伝達の濃縮が示された。ケモカインネットワークは、RCCにおける免疫細胞のリクルート、腫瘍増殖、および転移に寄与しており30、免疫関連経路の濃縮は、ccRCCにおける予後不良および腫瘍微小環境の変化に関連している31。淡明細胞型腎細胞癌はまた、臨床転帰および免疫微小環境の複雑性と関連した、明確な免疫転写シグネチャーを示す32。異常な遺伝子発現、免疫経路の濃縮、予後不良、および複雑な共発現パターンの間の同様の関係は、他の悪性腫瘍においても報告されている33。
ARHGAP22の発現は、腫瘍免疫微小環境における差異とも関連していた。偽発見率(FDR)補正後、高発現群では、調節性T細胞およびM2マクロファージの推定分率が高く、ナイーブB細胞、静止期マスト細胞、および活性化樹状細胞の推定分率が低かった。また、ARHGAP22の発現といくつかの免疫チェックポイント分子との間に正の相関が認められ、同時にImmuneScore、StromalScore、およびESTIMATEScoreの値も高かった。淡明細胞型腎細胞癌は、相当量の免疫浸潤を特徴とするが、この特徴が必ずしも効果的な抗腫瘍応答を示すわけではない34。機能不全に陥った免疫細胞の状態や免疫抑制的な特徴が、免疫チェックポイント阻害剤の有効性を制限している可能性がある35。RCCにおいて、調節性T細胞およびM2マクロファージは免疫抑制、腫瘍の進展、および予後不良に関連しているとされており36˒37、一方で免疫チェックポイント発現の上昇は、免疫逃避に関連するプロセスを反映している可能性がある38。したがって、本結果は、ARHGAP22の高発現が単に免疫浸潤の増大に関連しているのではなく、一般的に免疫抑制に関連する特徴を含む免疫プロファイルに関連していることを示唆している。ただし、免疫細胞の推定値はバルクRNAシーケンシングデータと単一の計算デコンボリューション法から導出されたものであるため、この解釈は推論にとどまる。
計算によって予測された薬剤感受性の差は、ARHGAP22の発現グループ間でも観察されました。ハイリスクな分子特性は、免疫浸潤の変動、免疫経路の濃縮、および薬剤反応の差に関連していることが以前に示されています39。また、ccRCCにおける免疫関連遺伝子シグネチャーは、生存率を層別化し、免疫療法や標的療法に対する反応の差を予測することが報告されています40˒41。本解析において、ARHGAP22低発現グループは、いくつかの標的薬剤に対して予測半最大抑制濃度(IC₅₀)値が低い値を示しました。これらの知見は、ARHGAP22の発現と計算上の予測薬剤感受性との関連性を示唆していますが、実際の治療反応や臨床的利益を証明するものではありません。サンプルの品質フィルタリング、一律の中央値に基づく発現カットオフ値の採用、CIBERSORT結果の信頼性フィルタリング、および多重比較のための偽発見率(FDR)補正を含むいくつかの手法上の選択により、解析の一貫性が確保されました。それにもかかわらず、予測された薬剤感受性は探索的なものとして解釈されるべきであり、実験的に測定された薬剤反応データや臨床的に観察されたデータを用いた独立した検証が必要です。
いくつかの制限事項を考慮する必要があります。GSE167573によってARHGAP22の発現および生存率との関連性の外部検証が行われましたが、より大規模な多施設共同臨床コホートでの検証が引き続き必要です。解析は主に遡及的な公開データセットおよびバルクRNA-sequencingデータに基づいて行われたため、ARHGAP22発現の細胞起源を、腫瘍細胞、ストローマ細胞、および浸潤免疫細胞の間で区別することができませんでした。シングルセルRNA sequencing、多重免疫蛍光染色、または空間トランスクリプトミクスを用いることで、この制限を解消できる可能性があります。免疫細胞の浸潤、免疫チェックポイントの発現、および薬剤感受性は計算によって推論されたものであり、生物学的機能や臨床的な治療反応を直接的に表していない可能性があります。また、独立した免疫デコンボリューション法、施設内免疫組織化学コホート、または実験的な摂動解析は含まれていません。さらに、観察された関連性は、ARHGAP22の発現、共発現遺伝子、免疫細胞浸潤、および薬剤反応の間の因果関係を立証するものではありません。したがって、臨床応用の前には、メカニズム解析実験、前向き臨床検証、およびモデル性能の比較が必要となります。全体として、本ワークフローは公開分子データセットを用いて候補バイオマーカーを評価するための再現可能な枠組みを提供していますが、ARHGAP22の生物学的および臨床的な妥当性については、さらなる独立した確認が必要です。
開示事項
著者らは利益相反がないことを宣言します。
謝辞
本研究では、The Cancer Genome Atlas (TCGA) の公開データを使用した。これらのリソースを生成し提供した TCGA Research Network に謝意を表する。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| circlize Rパッケージ | バージョン 0.4.16 | CRAN | Circosプロットおよびコードダイアグラムに使用されます。 |
| clusterProfiler Rパッケージ | バージョン 4.12.0 | Bioconductor | GO、KEGG、およびGSEAの濃縮分析に使用した。 |
| ComplexHeatmap Rパッケージ | バージョン 2.20.0 | Bioconductor | 複雑なヒートマップの視覚化および臨床アノテーションヒートマップに使用されます。 |
| e1071 Rパッケージ | バージョン 1.7.16 | CRAN | CIBERSORT関連解析におけるサポートベクター回帰に使用。 |
| enrichplot Rパッケージ | バージョン 1.24.0 | Bioconductor | 機能濃縮解析結果の視覚化に使用される。 |
| estimate Rパッケージ | バージョン 1.0.13 | Rパッケージ/ソースパッケージ | ストローマスコア、免疫スコア、およびESTIMATEスコアの算出に使用される。 |
| ggExtra Rパッケージ | バージョン 0.10.1 | CRAN | 周辺密度分布を伴う散布図に使用されます。 |
| ggplot2 R パッケージ | バージョン 3.5.1 | CRAN | 一般的なデータ視覚化に使用されます。 |
| ggpubr Rパッケージ | バージョン 0.6.0 | CRAN | ボックスプロット、バイオリンプロット、および統計的比較に使用します。 |
| ggrepel Rパッケージ | バージョン 0.9.5 | CRAN | ボルケーノプロットにおいて、テキストラベルが重ならないようにするために使用されます。 |
| limma Rパッケージ | バージョン 3.60.4 | Bioconductor | 発現データの前処理および差異発現関連解析に使用されます。 |
| oncoPredict Rパッケージ | バージョン 1.2 | CRAN | トランスクリプトームデータに基づき、薬剤感受性を予測するために使用される。 |
| org.Hs.eg.db Rパッケージ | バージョン 3.19.1 | Bioconductor | 遺伝子アノテーションおよび、遺伝子シンボルとEntrez ID間の変換に使用されます。 |
| pheatmap Rパッケージ | バージョン 1.0.12 | CRAN | ヒートマップによる視覚化に使用。 |
| preprocessCore Rパッケージ | バージョン 1.68.0 | Bioconductor | CIBERSORT関連解析における分位正規化に使用される。 |
| Rソフトウェア | バージョン 4.4.0 | R Foundation for Statistical Computing | 統計解析および視覚化に使用されます。 |
| RColorBrewer Rパッケージ | バージョン 1.1.3 | CRAN | 可視化におけるカラーパレットの生成に使用されます。 |
| regplot Rパッケージ | バージョン 1.1 | CRAN | ノモグラムの可視化に使用。 |
| reshape2 Rパッケージ | バージョン 1.4.4 | CRAN | 可視化前のデータ再形成に使用します。 |
| rms Rパッケージ | バージョン 6.8.1 | CRAN | 予後モデルの構築、キャリブレーション分析、およびノモグラム関連分析に使用されます。 |
| scales Rパッケージ | バージョン 1.4.0 | CRAN | スケールの調整および色の透過度設定に使用します。 |
| survival Rパッケージ | バージョン 3.5.8 | CRAN | Cox回帰およびカプラン・マイヤー生存分析に使用されます。 |
| survminer Rパッケージ | バージョン 0.4.9 | CRAN | カプラン=マイヤー生存曲線の可視化に使用します。 |
| timeROC Rパッケージ | バージョン 0.4 | CRAN | 時間依存性ROC曲線分析に使用されます。 |
参考文献
- Winter TD et al. Using Mendelian randomization to investigate etiologic heterogeneity across renal cell carcinoma subtypes. Int J Epidemiol. 2025;54(6):dyaf177. https://doi.org/10.1093/ije/dyaf177
- Hsieh JJ et al. Renal cell carcinoma. Nat Rev Dis Primers. 2017;3:17009. https://doi.org/10.1038/nrdp.2017.9
- Capitanio U et al. Epidemiology of renal cell carcinoma. Eur Urol. 2019;75(1):74-84.
- Siegel RL, Miller KD, Fuchs HE, Jemal A. Cancer statistics, 2022. CA Cancer J Clin. 2022;72(1):7-33.
- Wiechno P et al. Contemporary treatment of metastatic renal cell carcinoma. Med Oncol. 2018;35(12):156. https://doi.org/10.1007/s12032-018-1217-1
- Chen W et al. Targeting renal cell carcinoma with a HIF-2 antagonist. Nature. 2016;539(7627):112-117.
- Rydzanicz M, Wrzesiński T, Bluyssen HA, Wesoły J. Genomics and epigenomics of clear cell renal cell carcinoma: recent developments and potential applications. Cancer Lett. 2013;341(2):111-126.
- Barata PC, Rini BI. Treatment of renal cell carcinoma: current status and future directions. CA Cancer J Clin. 2017;67(6):507-524.
- Chowdhury N, Drake CG. Kidney cancer: an overview of current therapeutic approaches. Urol Clin North Am. 2020;47(4):419-431.
- Gulati S, Vaishampayan U. Current state of systemic therapies for advanced renal cell carcinoma. Curr Oncol Rep. 2020;22(3):26. https://doi.org/10.1007/s11912-020-0892-1
- Haga RB, Ridley AJ. Rho GTPases: regulation and roles in cancer cell biology. Small GTPases. 2016;7(4):207-221.
- Sahai E, Marshall CJ. RHO-GTPases and cancer. Nat Rev Cancer. 2002;2(2):133-142.
- Bustelo XR. RHO GTPases in cancer: known facts, open questions, and therapeutic challenges. Biochem Soc Trans. 2018;46(3):741-760.
- Crosas-Molist E et al. Rho GTPase signaling in cancer progression and dissemination. Physiol Rev. 2022;102(1):455-510.
- Li H, Peyrollier K, Kilic G, Brakebusch C. Rho GTPases and cancer. BioFactors. 2014;40(2):226-235.
- Goka ET, Chaturvedi P, Lopez DTM, Lippman ME. Rac signaling drives clear cell renal carcinoma tumor growth by priming the tumor microenvironment for an angiogenic switch. Mol Cancer Ther. 2020;19(7):1462-1473.
- Thompson JM, Landman J, Razorenova OV. Targeting the RhoGTPase/ROCK pathway for the treatment of VHL/HIF pathway-driven cancers. Small GTPases. 2020;11(1):32-38.
- Feng J et al. RhoJ promotes the progression of clear cell renal cell carcinoma via .the TNF-α/NF-κB axis. Transl Androl Urol. 2025;14(7):1849-1864.
- Guo K et al. Activation of RHO-GTPase gene pattern correlates with adverse clinical outcome and immune microenvironment in clear cell renal cell carcinoma. Clin Exp Med. 2025;25(1):67. https://doi.org/10.1007/s10238-025-01593-3
- Mori M, Saito K, Ohta Y. ARHGAP22 localizes at endosomes and regulates actin cytoskeleton. PLoS One. 2014;9(6):e100271. https://doi.org/10.1371/journal.pone.0100271
- Nakamura F. FilGAP and its close relatives: a mediator of Rho-Rac antagonism that regulates cell morphology and migration. Biochem J. 2013;453(1):17-25.
- Hu SH et al. The weak complex between RhoGAP protein ARHGAP22 and signal regulatory protein 14-3-3 has 1:2 stoichiometry and a single peptide binding mode. PLoS One. 2012;7(8):e41731. https://doi.org/10.1371/journal.pone.0041731
- Mori M et al. Endosomal localization of RacGAP protein ARHGAP22 regulates its GAP activity in human melanoma cells. Anticancer Res. 2022;42(12):5763-5771.
- El-Masry OS, Alamri AM, Alzahrani F, Alsamman K. ADAMTS14, ARHGAP22, and EPDR1 as potential novel targets in acute myeloid leukaemia. Heliyon. 2022;8(3):e09065. https://doi.org/10.1016/j.heliyon.2022.e09065
- Yang C et al. Transcriptomic analysis identified ARHGAP family as a novel biomarker associated with tumor-promoting immune infiltration and nanomechanical characteristics in bladder cancer. Front Cell Dev Biol. 2021;9:657219. https://doi.org/10.3389/fcell.2021.657219
- Schiavoni V et al. Recent advances in the management of clear cell renal cell carcinoma: novel biomarkers and targeted therapies. Cancers (Basel). 2023;15(12):3207. https://doi.org/10.3390/cancers15123207
- Sanz-Moreno V et al. Rac activation and inactivation control plasticity of tumor cell movement. Cell. 2008;135(3):510-523.
- Sakaguchi T et al. Bromodomain protein BRD4 inhibitor JQ1 regulates potential prognostic molecules in advanced renal cell carcinoma. Oncotarget. 2018;9(33):23003-23017.
- Stránská J et al. Copy number variation and clinical response to chemotherapy and bevacizumab in Czech patients with metastatic colorectal cancer. Klin Onkol. 2024;37(4):277-285.
- Parihar JS, Tunuguntla HS. Role of chemokines in renal cell carcinoma. Rev Urol. 2014;16(3):118-121.
- Chen Z, Wu R, Ma J, Zheng J. C chemokines are prognostic biomarkers correlated with diverse immune cell infiltrations in clear cell renal cell carcinoma. Transl Cancer Res. 2022;11(8):2501-2522.
- Şenbabaoğlu Y et al. Tumor immune microenvironment characterization in clear cell renal cell carcinoma identifies prognostic and immunotherapeutically relevant messenger RNA signatures. Genome Biol. 2016;17(1):231. https://doi.org/10.1186/s13059-016-1092-z
- Song DM et al. LIG1 is a novel marker for bladder cancer prognosis: evidence based on experimental studies, machine learning, and single-cell sequencing. Front Immunol. 2024;15:1419126. https://doi.org/10.3389/fimmu.2024.1419126
- Vuong L, Kotecha RR, Voss MH, Hakimi AA. Tumor microenvironment dynamics in clear-cell renal cell carcinoma. Cancer Discov. 2019;9(10):1349-1357.
- Burgers FH et al. Immunological features of clear-cell renal-cell carcinoma and resistance to immune checkpoint inhibitors. Nat Rev Nephrol. 2025;21(10):687-701.
- Davidsson S et al. Infiltration of M2 macrophages and regulatory T cells plays a role in recurrence of renal cell carcinoma. Eur Urol Open Sci. 2020;20:62-71.
- Zhang X et al. Tumor-associated M2 macrophages in the immune microenvironment influence the progression of renal clear cell carcinoma by regulating M2 macrophage-associated genes. Front Oncol. 2023;13:1157861. https://doi.org/10.3389/fonc.2023.1157861
- Tronik-Le Roux D et al. Comprehensive landscape of immune checkpoints uncovered in clear cell renal cell carcinoma reveals new and emerging therapeutic targets. Cancer Immunol Immunother. 2020;69(7):1237-1252.
- Hong J et al. A zinc metabolism-related gene signature for predicting prognosis and characteristics of breast cancer. Front Immunol. 2023;14:1276280. https://doi.org/10.3389/fimmu.2023.1276280
- Xu W et al. Prognostic immunophenotyping clusters of clear cell renal cell carcinoma defined by the unique tumor immune microenvironment. Front Cell Dev Biol. 2021;9:785410. https://doi.org/10.3389/fcell.2021.785410
- Gu J et al. A novel immune-related gene signature for predicting immunotherapy outcomes and survival in clear cell renal cell carcinoma. Sci Rep. 2023;13(1):18922. https://doi.org/10.1038/s41598-023-45966-8