miR-488-3pは、RAの新たな非侵襲的診断マーカーとして利用できる可能性があります。miR-488-3pはROCK1を介して滑膜細胞の生物学的機能を調節します。RA患者において、miR-488-3pは疾患の重症度と有意な負の相関を示しました。
この記事について
サマリー
要約
既存のバイオマーカーには限界があるため、関節リウマチ(RA)の診断は依然として困難です。本研究の目的は、血清中のmiR-488-3pがRAのバイオマーカーとなる可能性を調査し、その潜在的な作用機序を明らかにすることでした。本研究では、RA患者135名、変形性関節症(OA)患者130名、および健康対照者125名を対象としました。miR-488-3pの発現レベルはRT-qPCRを用いて検討しました。作用機序は、機能試験(CCK-8、フローサイトメトリー、ELISA)およびターゲット検証実験(ルシフェラーゼレポーター遺伝子、RIP)によって解析しました。血清miR-488-3pの発現レベルは、OA患者および健康対照者と比較して、RA患者で有意に低くなっていました(p < 0.001)。ROC曲線分析の結果、miR-488-3pはRAを健康対照者およびOA患者から区別する高い診断精度を示しました。miR-488-3pは、赤血球沈降速度(ESR)、C反応性蛋白(CRP)、リウマチ因子(RF)、およびDAS28スコアと負の相関がありました。機能検証により、miR-488-3pの過剰発現が滑膜細胞の増殖および炎症反応を抑制し、アポトーシスを誘導することが明らかになりました。機序研究により、miR-488-3pがRho関連キネース1(ROCK1)を直接標的とし、それが保護効果を媒介していることが示されました。血清miR-488-3pは、RAの新しい非侵襲的診断マーカーとして有望であり、滑膜細胞を損傷から保護します。
概要
関節リウマチ(RA)は、滑膜炎、関節侵食、および破壊を特徴とする一般的な自己免疫疾患である1,2。RAの世界的な有病率は約0.5%–1%であり3、患者の生活の質(QOL)や就労能力に深刻な影響を及ぼす。本疾患は潜行性の発症を示し、初期症状は非定型的なことが多く、誤診や見落としが起こりやすい4。疾患が進行すると、関節変形や機能喪失を招き、さらには心血管疾患などの合併症のリスクを高める可能性があり5、患者、その家族、および医療システムに多大な負担を強いることになる。
現在、RAの診断には、臨床症状、徴候、臨床検査、および画像評価の組み合わせが必要である6。一般的に用いられる臨床検査指標には、全身性炎症の非特異的マーカーである赤血球沈降速度(ESR)およびC反応性蛋白(CRP)、ならびにRAの重要な血清学的バイオマーカーであるリウマチ因子(RF)および抗環状シトルリン化ペプチド(anti-CCP)抗体がある7,8。しかし、これらの従来のバイオマーカーには限界がある。RFは一部の健康な人や他の自己免疫疾患の患者でも陽性となることがあり(偽陽性率は約5%)、anti-CCPは特異度が非常に高い(>95%)ものの、疾患の早期段階における感度は限定的であり(約60–70%)4,9、一部のRA患者は血清陰性のままである10。したがって、RAの早期診断、疾患モニタリング、および予後評価のために、より感度と特異度の高いバイオマーカーを見出すことが重要である11。
マイクロRNA(miRNA)は、長さ約22–25塩基の内因性非コード調節RNA分子のグループである12,13。miRNAはさまざまな疾患の発症における重要な調節因子として機能し、その異常発現は疾患の病態生理と密接に関連していることが判明しており13,14,15、疾患の診断および治療モニタリングのための有望なバイオマーカーとなっている。ここ数年、関節リウマチ(RA)におけるmiRNAの役割が注目を集めている16。研究により、RA患者の血清、滑膜組織、および末梢血単核球(PBMC)において、複数のmiRNA(例:miR-146a、miR-155など)の発現異常が認められていることが示されている17,18,19。これらのmiRNAは、炎症性サイトカインの産生を調節し、滑膜細胞の増殖と浸潤を促進し、破骨細胞の分化に影響を与えることで、RAの病態形成に寄与している20。その中でも、miR-488はヒト第1染色体1q25.2領域にマッピングされており21、先行研究によってその神経保護作用が確認されている。具体的には、グリオーマ22や神経芽細胞腫23の進行において調節的な役割を果たしており、特にmiR-488-3pは変形性関節症(OA)において変形性関節症軟骨細胞のアポトーシスを促進することが報告されている24。OAとRAは異なる関節疾患であるが、滑膜炎症と軟骨破壊という病理学的プロセスにおいて共通のメカニズムを有している25。我々は、miR-488-3pが同様の標的パスウェイを調節することでRAにおいても役割を果たしているのではないかという仮説を立てた。しかし、RAにおけるmiR-488-3pの具体的な役割と潜在的なメカニズムはまだ解明されていない。
本研究では、RA患者における血清miR-488-3p発現レベルの変化と、疾患活動性および臨床指標との関係を調査し、RAの非侵襲的な診断マーカーとしての潜在的な価値を評価することを目的としました。本研究は、RAにおける早期スクリーニングおよび疾患進行の予測に新たな知見を提供し、それによってRA患者の予後を改善させるものです。
プロトコル
本研究は合肥BOE病院の倫理委員会によって承認され(承認番号:2021–1)、すべての参加者から登録前に書面によるインフォームドコンセントを得た。
患者および検体
本研究では、合肥BOE病院のリウマチ・免疫科からRA患者135名(2010年ACR/EULAR分類基準に従って診断)、整形外科からOA患者130名(2018年中国医学会OA診断基準に従って診断)、および同院の健康診断センターから年齢と性を一致させた健康対照者125名を募集した。参加者の年齢は30~80歳であった。健康対照者は、詳細な病歴確認、身体診察、および臨床検査により、自己免疫疾患、関節疾患、および急性感染症がないことを確認した。併存する自己免疫疾患がある場合、過去3か月以内に感染症または外傷の既往がある場合、悪性腫瘍がある場合、または妊娠中もしくは授乳中の場合は、参加から除外した。
サンプリングおよび調製
すべての被験者から空腹時の静脈血を採取した。室温で30分間凝固させた後、1500 × g で15分間遠心分離し、血清サンプルを分離した。血清は、後の解析まで-80°Cで保存した。
臨床的および血清学的マーカーの検出
疾患の状態および炎症活性を包括的に評価するため、標準的な臨床検査法を用いて臨床的および血清学的バイオマーカーを測定した。非特異的な全身性炎症を評価するために、Westergren法を用いてESRを測定した。急性相炎症反応を評価するため、免疫濁度法(正常基準値:<10 mg/L)を用いてCRPを定量した。RFは、正常基準値 ≤20 IU/mLの酵素免疫測定法(ELISA)を用いて測定した。RAの診断に対する血清学的根拠を得るため、第2世代ELISAを用いて抗CCP抗体を測定した。
細胞株および培養
関節リウマチ(RA)罹患ヒト線維芽細胞様滑膜細胞(HFLS-RA)を、10% 胎児牛血清(FBS)および 1% ペニシリン-ストレプトマイシンを添加したDulbecco's Modified Eagle Medium(DMEM)で培養した。細胞は 37 °C、5% CO₂ のインキュベーター内で維持し、すべての実験には継代数 3回から 6回の細胞を用いた。
RNA抽出および定量リアルタイムRT-PCR
RNA抽出試薬を用いて、血清サンプルから全RNAを抽出した。miRNAにはmiRNA第一ストランド合成キットを、メッセンジャーRNA(mRNA)標的遺伝子には逆転写キットを用い、製造元の指示に従って逆転写を行った。SYBR GreenベースのPCRマスターミックスを用いたリアルタイムPCRシステムにより、定量的リアルタイムPCR(RT-qPCR)を実施した。サーモサイクルプログラムは、95 °Cで30秒間の事前変性後、増幅サイクルを40回(95 °Cで5秒間の変性と60 °Cで30秒間のアニーリング/伸長)に設定した。各サンプルは3連で分析した。miRNAとmRNAの正規化のための内因性リファレンス遺伝子として、それぞれU6小核RNA(U6 snRNA)とグリセルアルデヒド-3-リン酸脱水素酵素(GAPDH)を用いた。プライマー配列は付録表1にまとめている。miR-488-3pおよびその標的遺伝子の相対的な発現レベルは、2−ΔΔCt法を用いて算出した。また、miR-488-3pの過剰発現または抑制後の標的遺伝子のmRNAレベルの変化を分析し、それらの調節関係を検証した。
細胞へのトランスフェクション
HFLS-RA細胞を、5 × 10⁵ cells/wellの密度で6ウェルプレートに播種した。製造元の指示に従い、リポソームベースのトランスフェクション試薬を用いて細胞にトランスフェクションを行った。トランスフェクション群は、単独トランスフェクション群と共トランスフェクション群に分けた。単独トランスフェクション群は以下の通りである:1) コントロール:未トランスフェクション細胞;2) mimicネガティブコントロール(NC):miR-488-3p mimicのネガティブコントロールをトランスフェクションした細胞;3) miR-488-3p mimic:miR-488-3p mimicをトランスフェクションした細胞;4) inhibitor NC:miR-488-3p inhibitorのネガティブコントロールをトランスフェクションした細胞;5) miR-488-3p inhibitor:miR-488-3p inhibitorをトランスフェクションした細胞。共トランスフェクション群は以下の通りである:1) miR-488-3p mimic + 過剰発現-NC(oe-NC):miR-488-3p mimicおよびROCK1過剰発現ベクターのネガティブコントロールを共トランスフェクションした細胞;2) miR-488-3p mimic + oe-ROCK1:miR-488-3p mimicおよびROCK1過剰発現ベクターを共トランスフェクションした細胞。すべてのトランスフェクション配列を付録表1(Supplementary Table 1)にまとめた。ROCK1の過剰発現ベクターは、コーディング領域(CDS)をpcDNA 3.1プラスミドにクローニングすることで構築した。トランスフェクション後48時間経過した細胞を、以降の実験に使用した。
細胞機能アッセイ
細胞増殖アッセイ(Cell Counting Kit-8 [CCK-8]): トランスフェクションしたHFLS-RA細胞を、1ウェルあたり5 × 10³ cells/wellの密度で96ウェルプレートに播種し、1群につき3ウェルのn数を設けた。トランスフェクション後0、24、48、72時間において、各ウェルに10 µLのCCK-8溶液を添加し、37 °Cで2時間インキュベートした。マイクロプレートリーダーを用いて、450 nm(検出波長)および630 nm(参照波長)で吸光度を測定した。0時間をベースラインとして相対的な増殖率を算出した。
アポトーシス検出(フローサイトメトリー):アポトーシスの評価は、Annexin V-fluorescein isothiocyanate (FITC)/propidium iodide (PI) アポトーシスアッセイによる分析で行った。細胞に適切なプラスミドをトランスフェクションし、トリプシン処理後に回収した。アポトーシス率はフローサイトメトリーにより決定した。
炎症因子アッセイ(酵素結合免疫吸着法 [ELISA]): HFLS-RA細胞を24ウェルプレートに播種し、指定のmiR-488-3p mimic、miR-488-3p inhibitor、またはそれらに対応するネガティブコントロールをトランスフェクションして48時間培養した。細胞培養上清中のinterleukin-6 (IL-6)、tumor necrosis factor-α (TNF-α)、およびinterleukin-1β (IL-1β) の濃度をELISAキットを用いて定量した。
ターゲットバリデーション
標的予測: TargetScanデータベースを用いて、ROCK1がmiR-488-3pの下流標的であると予測された。26miR-488-3pと〜との間の予測結合部位 ROCK1 3′非翻訳領域 (3' UTR)′非翻訳領域(UTR) もまた特定された。
デュアルルシフェラーゼレポーター遺伝子アッセイ: ROCK1の野生型または変異型3′UTRをpGL3プラスミドにクローニングした。予測される結合部位および変異部位を図4に示す。HEK-293T細胞に、miR-488-3pミミックまたはインヒビターと構築したベクターを共導入した27。miR-488-3pミミックまたはインヒビターの導入から48時間後にルシフェラーゼ活性を測定した。
RNA免疫沈降(RIP):HFLS-RA細胞を抗Argonaute 2 (Ago2) 抗体(RRID: AB_2882071、1:200希釈)または免疫グロブリンG (IgG) コントロール抗体(RRID: AB_2819160、1:5000希釈)とともにインキュベートし、続いて前述の手法に従ってRNA抽出およびROCK1 mRNAの濃縮を確認するための定量PCR (qPCR) を行った。
統計解析
統計解析にはSPSS 23.0 (RRID: SCR_002865) および GraphPad Prism 9.0 (RRID: SCR_002798) を用いた。測定データは平均値 ± 標準偏差 (SD) で表記した。すべての実験は3つの生物学的反復を用いて行い、各生物学的反復を3回ずつ分析した。生データは補完資料として添付している。パラメトリック統計検定を行う前に、正規確率(P-P)プロットを用いてデータの評価を行った。連続的なベースライン変数(年齢、体格指数 [BMI] など)の比較には独立標本のt検定を、カテゴリー変数(性別など)にはカイ二乗検定を用いた。遺伝子発現レベルの比較には独立標本のt検定を用いた。異なる時点における細胞増殖の変化は反復測定分散分析 (ANOVA) で解析し、フローサイトメトリーで決定したアポトーシス率の比較には一元配置ANOVAを用いた。相関分析には、正規分布を満たさない変数にはSpearman法を、正規分布を満たす変数にはPearson法を用いた。診断能は受信者動作特性 (ROC) 曲線分析を用いて評価した。最適カットオフ値、感度、および特異度は、最大Youden指数を用いて決定した。すべての統計検定は両側検定とし、p < 0.05 を統計的に有意であると見なした。
結果
研究参加者の基本特性
本研究では、系統的な解析のために、健常対照者125名、OA患者130名、およびRA患者135名を組み入れた(表1)。年齢(p = 0.191)、性比(p = 0.203)、およびBMI(p = 0.562)に関して、3群のベースライン特性に有意な差はなく、研究対象集団の比較可能性が確保された。疾患特性に関しては、RA群のESR(82.63 ± 40.32 vs. 18.39 ± 6.38 mm/h, p < 0.001)およびCRP値(56.33 ± 38.07 vs. 10.54 ± 4.98 mg/L, p < 0.001)がOA群よりも有意に高く、全身性炎症のレベルを反映していた。一方、RAに関連する血清学的マーカーであるRFは70.37%(95/135)で陽性であり、血清濃度も有意に高かった(144.13 ± 81.05 vs. 5.10 ± 1.37 IU/mL, p < 0.001)。また、RA患者におけるanti-CCP陽性率は56.30%(76/135)であり、DAS28スコアは4.12 ± 1.36であった。
RA患者におけるmiR-488-3pの発現特性および診断的価値
RA患者におけるmiR-488-3pの血清発現レベルは、OA患者および健常対照群と比較して有意に低下していた(p < 0.0001, Figure 1A)。ROC曲線分析の結果、miR-488-3pはRAをOAおよび健常対照群から識別する高い診断精度を示した。RAと健常対照群の識別において、AUC値は0.931(95% CI: 0.896–0.967)、感度は96.15%(95% CI: 91.31%–98.35%)、特異度は80.95%(95% CI: 73.22%–86.85%, p < 0.001, Figure 1B)であった。また、RA患者とOA患者の識別においては、AUC値は0.800(95% CI: 0.747–0.854)であり、感度は85.93%(95% CI: 79.06%–90.80%)、特異度は66.15%(95% CI: 57.66%–73.72%, p < 0.001, Figure 1C)であった。多変量ロジスティック回帰分析により、miR-488-3pがRAのリスクに関連する独立した因子であることが特定された(OR = 0.166, 95% CI: 0.097–0.284; Table 2)。
miR-488-3pとRAの臨床指標との相関分析
血清miR-488-3pの発現レベルは、ESR、CRP、RF、DAS28を含むRAの主要な臨床指標と有意な負の相関を示した(すべて p < 0.001; 表 3)。具体的には、miR-488-3pはESR (r = −0.718)、CRP (r = −0.726)、RF (r = −0.805)、およびDAS28スコア (r = −0.836) と負の相関があった (表 3)。
miR-488-3pの過剰発現は、HFLS-RA細胞における細胞増殖および炎症反応を抑制し、アポトーシスを誘導する
miR-488-3pがHFLS-RAの機能に及ぼす影響を調べるため、ミミックおよびインヒビターの導入によりその発現を調節しました。RT-qPCR解析の結果、miR-488-3pミミック群ではコントロール群と比較してmiR-488-3pの発現レベルが有意に高く(p = 0.0001)、一方でmiR-488-3pインヒビター群では発現レベルが有意に低いことが確認されました(p = 0.0003, Figure 2A)。CCK-8アッセイの結果、miR-488-3pの過剰発現は細胞増殖を抑制し、24 h、48 h、および72 hにおいてコントロール群よりも有意に低い値を示しましたが(p = 0.0208, p < 0.0001, p = 0.0036)、miR-488-3p発現の抑制により細胞増殖は有意に促進されました(Figure 2B)。また、フローサイトメトリーにより、miR-488-3pの過剰発現がアポトーシスを有意に促進することが示されました(p = 0.0033, Figure 2C)。
次に、miR-488-3pの発現上昇が炎症性サイトカインレベルに及ぼす影響を調べるため、ELISAを実施した。その結果、miR-488-3pを過剰発現させると、炎症性サイトカイン(IL-6、TNF-α、およびIL-1β)のレベルが有意に低下し(p < 0.0001、Figure 3A-C)、一方でmiR-488-3pの発現を抑制すると逆の効果が認められた。これらの有意な調節効果は、3回の独立した生物学的反復実験すべてで確認され、陰性対照では有意な変化は見られなかった(p > 0.05)。
MiR-488-3pはROCK1分子のROCK1発現を調節する
RAの疾患進行におけるmiR-488-3pの役割の根底にある分子メカニズムを解明するため、miR-488-3pの下流ターゲットを探索しました。バイオインフォマティクス解析により、miR-488-3pがROCK1の3'UTR領域に結合することが予測されました(図4A)。デュアルルシフェラーゼレポーターアッセイにより、野生型ROCK1 3'UTRをmiR-488-3pミミックと共導入した際にルシフェラーゼ活性が有意に低下し(p < 0.0001)、miR-488-3pの発現を抑制した際にルシフェラーゼ活性が有意に上昇することが確認されました(p < 0.0001)。一方、結合部位に変異を導入した後は、この調節効果に有意な変化は見られませんでした(図4B)。さらに、RIP実験によりこの調節関係を検証したところ、IgGコントロールと比較してAgo2抗体濃縮複合体においてROCK1 mRNAの発現レベルが有意に上昇していることが示されました(p < 0.0001, 図4C)。
さらに、臨床検体において、ROCK1はmiR-488-3pとは逆の発現パターンを示し、OA患者および健常コントロールの両方と比較してROCK1の有意な発現上昇が観察されました(図 4D)。HFLS-RA細胞を用いたRT-qPCRでは、miR-488-3pの過剰発現によりROCK1の発現が有意に減少した一方(p = 0.0093)、miR-488-3pの抑制によりROCK1の発現が有意に増加したことが明らかになりました(p = 0.0003, 図 4E)。
ROCK1はHFLS-RA細胞におけるmiR-488-3pの調節効果を媒介する
HFLS-RA細胞において、miR-488-3pの過剰発現によるROCK1発現の抑制は、ROCK1過剰発現ベクターのトランスフェクションによって回復した(図 5A)。同様に、miR-488-3pの過剰発現による細胞増殖への抑制効果は、ROCK1の過剰発現によって減弱した(図 5B)。さらに、ROCK1の過剰発現は、miR-488-3pによって誘導されたアポトーシスの亢進を回復させ(図 5C)、miR-488-3pの過剰発現によって抑制されていた炎症性サイトカインレベルを回復させた(図 5D)。
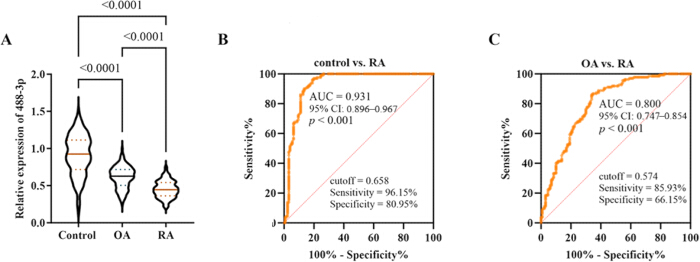
図1. 関節リウマチ(RA)患者、変形性関節症(OA)患者および健康対照群におけるmiR-488-3pの発現レベルと診断能 (A) RA患者、OA患者、および健常対照群におけるmiR-488-3pの相対的な発現レベルの比較。 (B) 関節リウマチ(RA)と健康対照群を区別するためのmiR-488-3pの受信者動作特性(ROC)曲線分析。 (CRA患者とOA患者を識別するためのmiR-488-3pのROC曲線解析。 AUC:曲線下面積、CI:信頼区間 この図の拡大版を表示するには、ここをクリックしてください。
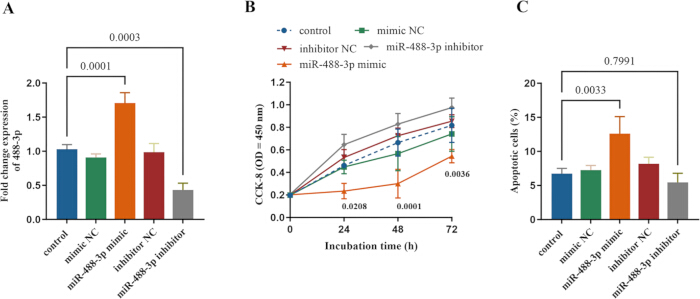
図 2. HFLS-RA細胞におけるmiR-488-3pの機能的効果. (A) 定量逆転写ポリメラーゼ連鎖反応(RT-qPCR)によって決定した、トランスフェクション後のHFLS-RA細胞におけるmiR-488-3pの相対発現量. (B) 細胞増殖に対するmiR-488-3pの過剰発現および抑制の効果. (C) アポトーシスに対するmiR-488-3pの過剰発現および抑制の効果. データは平均値 ± SDで示されている. すべての測定は、それぞれ3つのテクニカルリプリケートを持つ3つのバイオロジカルリプリケートを用いて行われた. p < 0.05は、示された群間に統計的に有意な差があることを示す. ここをクリックして、この図の拡大版を表示してください。
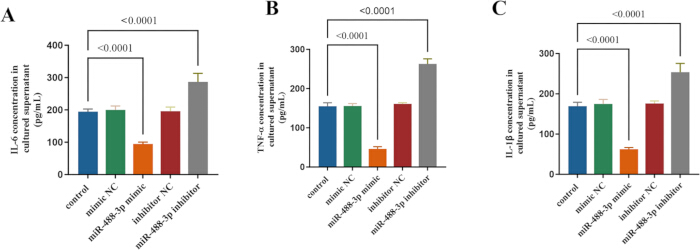
図3. 炎症性サイトカイン分泌に対するmiR-488-3pの影響. (A) Interleukin-6 (IL-6). (B) Tumor necrosis factor-α (TNF-α). (C) Interleukin-1β (IL-1β). サイトカイン濃度は酵素結合免疫吸着法 (ELISA) により測定した。データは平均値 ± SD で示している。すべての測定は、それぞれ3つのテクニカルリプリケートを含む3つの生物学的リプリケートを用いて実施した。 ここをクリックして、この図の拡大版を表示してください。
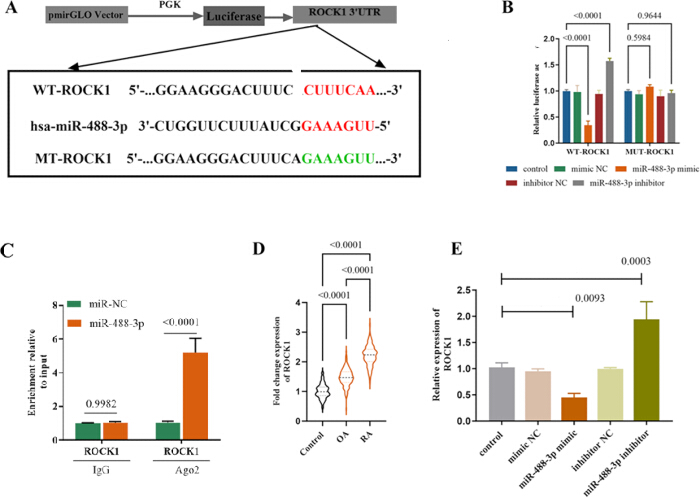
図4miR-488-3pによるROCK1の標的調節の根底にある分子メカニズムの検証。 (A) ROCK1の3′非翻訳領域(3′UTR)内におけるmiR-488-3pの予測結合部位。 (B) miR-488-3pと野生型または変異型ROCK1 3′UTRとの相互作用を示すデュアルルシフェラーゼレポーターアッセイ。(C) Argonaute 2 (Ago2) 抗体によって濃縮された複合体において、ROCK1 メッセンジャーRNA (mRNA) が濃縮されていることを示すRNA免疫沈降 (RIP) アッセイ。 (D) RA患者、OA患者、および健常コントロールにおけるROCK1の相対的発現レベル。 (E) 定量的逆転写ポリメラーゼ連鎖反応(RT-qPCR)により測定した、トランスフェクション済みHFLS-RA細胞におけるROCK1の相対的発現量。データは平均値 ± 標準偏差(SD)で示す。すべての測定は、3つの生物学的反復(biological replicates)を用い、それぞれ3つの技術的反復(technical replicates)で実施した。 こちらの図を拡大して表示するには、ここをクリックしてください。
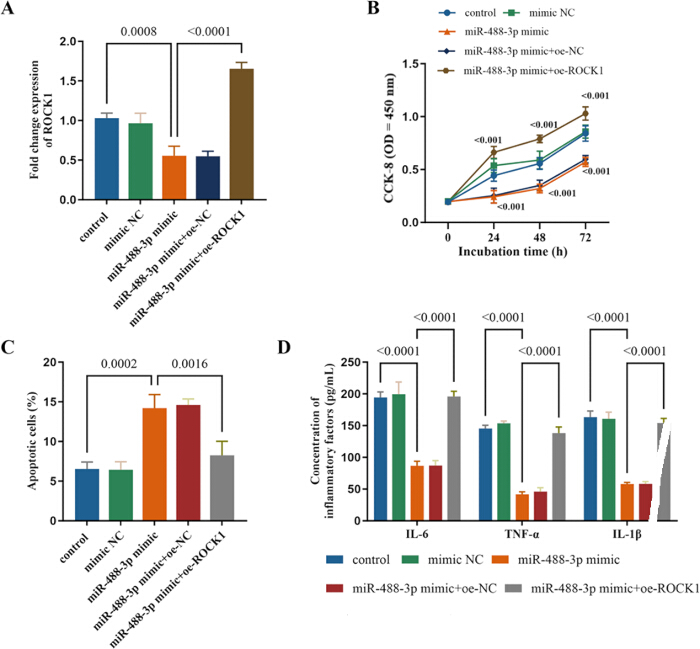
図 5. miR-488-3pによるHFLS-RA細胞の調節におけるROCK1の関与。 (A) 細胞トランスフェクション後のHFLS-RA細胞におけるROCK1発現の調節。 (B) miR-488-3p過剰発現下におけるROCK1過剰発現の細胞増殖への影響。 (C) miR-488-3p過剰発現下におけるROCK1過剰発現のアポトーシスへの影響。 (D) miR-488-3p過剰発現下におけるROCK1過剰発現の炎症性サイトカイン産生への影響。データは平均値 ± SDで示されている。すべての測定は、それぞれ3つのテクニカルレプリケートを含む3つの生物学的レプリケートを用いて行われた。 この図の拡大版を表示するには、ここをクリックしてください。
| 変数 | コントロール群 (n = 125) | OA群 (n = 130) | RA群 (n = 135) | p値 |
| 年齢 (years) | 55.10 ± 9.30 | 57.21 ± 10.27 | 55.22 ± 11.61 | 0.191 |
| 性別 (男性/女性) | 74/51 | 63/67 | 69/66 | 0.203 |
| BMI (kg/m2) | 22.79 ± 1.73 | 22.98 ± 1.98 | 23.04 ± 2.05 | 0.562 |
| 罹患期間 (years) | - | 7.96 ± 4.00 | 8.03 ± 3.83 | 0.882 |
| 抗CCP抗体陽性 (n/%) | - | - | 76 (56.30) | - |
| 赤沈 (mm/h) | 18.39 ± 6.38 | 82.63 ± 40.32 | <0.001 | |
| CRP (mg/L) | 10.54 ± 4.98 | 56.33 ± 38.07 | <0.001 | |
| RF陽性 | - | - | 95 (70.37) | |
| RF (IU/mL) | - | 5.10 ± 1.37 | 144.13 ± 81.05 | <0.001 |
| DAS28 | - | - | 4.12 ± 1.36 | - |
表1: 研究参加者のベースライン特性 3つの研究グループ間において、人口統計学的特性に差は認められなかった。RA患者では、炎症マーカーおよびRF値の上昇が認められた。
| 変数 | または | 95%信頼区間 | pp値 |
| 年齢(歳) | 1.411 | 0.822–2.422 | 0.211 |
| 性別(雄/雌) | 1.209 | 0.707–2.067 | 0.489 |
| BMI (kg/m²⁾2) | 1.336 | 0.778–2.295 | 0.293 |
| 罹患期間(年) | 1.13 | 0.663–1.929 | 0.653 |
| MiR-483-3p | 0.166 | 0.097–0.284 | <0.001 |
表 2:変量ロジスティック回帰分析により導出された、変形性関節症から関節リウマチへの進行に関連する独立因子。OA患者におけるRA発症のリスクに関連して、MiR-488-3pが同定された。
| 項目 | MiR-488-3p(関節リウマチ) | pp値 |
| 相関(r) | ||
| 赤沈 (mm/h) | -0.718 | <0.001 |
| CRP (mg/L) | -0.726 | <0.001 |
| RF (IU/mL) | -0.805 | <0.001 |
| DAS28 | -0.836 | <0.001 |
表3:RA患者におけるmiR-488-3pとクリニック病理学的特徴との相関。RA患者において、miR-488-3pはESR、CRP、RF、およびDAS28スコアと有意な負の相関を示した。
補足表 1. 細胞トランスフェクションおよび PCR アッセイの配列情報。 本研究で使用したプライマー配列およびトランスフェクション試薬をまとめている。こちらのリンクをクリックしてファイルをダウンロードしてください。
ディスカッション
RAの診断と治療に関する最新のガイドラインでSmolenら1によって強調されているように、新規バイオマーカーの開発は重要な臨床的価値を持っています。本研究において、血清miR-488-3pはRA患者で有意にダウンレギュレートされており、感度および特異度において比較的良好で有望な診断性能を示すことが確認されました。RAの早期診断は常に臨床的な困難を伴っており、既存のバイオマーカーはRAの診断において十分な感度を備えていません。一方で、miR-488-3pの顕著な診断能は、特に血清陰性RA患者の特定において、この課題を解決する可能性があります。健康な個人と比較して、RA患者はより顕著な全身性炎症を示しました。OA患者は主に局所的な変性関節疾患を呈しますが、低グレードの全身性炎症も頻繁に観察されます。したがって、miR-488-3pの識別能は、OA患者との比較よりも、健康な個人との比較において遥かに高くなります。miR-488-3pの診断性能は、既存の臨床バイオマーカーと直接的に比較されていません。本研究に含まれる患者は、抗CCP抗体、RF、ESR、CRPなどの既存バイオマーカーを組み込んだ現在のRAの臨床的ゴールドスタンダードに従って診断されました。これらのマーカーには、OA患者とRA患者の間で有意な差が認められました(表1)。そのため、本コホートはmiR-488-3pの診断性能をこれらの既存バイオマーカーと直接比較するのには適していませんでした。このような比較には、独立した検証コホートが必要です。
さらに、miR-488-3pの発現レベルは、血沈(ESR)やCRPなどの全身性炎症マーカー28、およびRFなどの自己抗体6を含む、RAのさまざまな臨床指標と有意な負の相関があることが明らかになりました。特に臨床的に重要な点として、miR-488-3pは疾患活動性スコア(DAS28)と強い負の相関を示しました。DAS28は、関節の腫脹、圧痛、炎症、および患者の臨床状態に基づいた疾患活動性を反映する複合指標です。したがって、これらの知見は、miR-488-3pがRAにおける疾患活動性の潜在的なバイオマーカーとして機能することを示唆しています。また、RAの病態形成における調節的役割を裏付けており、炎症性シグナル伝達経路や自己免疫反応を抑制することで、疾患の進行に影響を及ぼしている可能性があります29。
機能解析実験において、miR-488-3pはRA患者由来のHFLS-RA細胞の増殖を抑制し、アポトーシスを促進させ、炎症性サイトカイン(IL-6、TNF-α、およびIL-1β)の産生を有意に減少させることが明らかになりました。HFLS-RA細胞はRAの病理学的プロセスにおいて重要な役割を果たしており30、その異常な増殖と浸潤性増殖は滑膜の過形成と関節破壊を引き起こし、炎症因子の過剰産生は局所的および全身的な炎症反応をさらに悪化させます31。したがって、miR-488-3pによるHFLS-RA機能の調節は、RAにおける滑膜浸潤と骨浸食を直接的に抑制する可能性があり、新たな標的治療戦略の開発に向けた理論的根拠となります。先行研究において、miR-155などの他のmiRNAが滑膜細胞の機能を調節することでRAの進行に影響を与えることが示されており19、このことは我々の知見をさらに裏付けるものです。
メカニズム研究により、miR-488-3pがROCK1の3'UTRに結合することで、ROCK1を直接的に標的とし、その発現を抑制することが示された。ROCK1は、細胞骨格の再編成、炎症反応、および線維化に関与するRho/ROCKシグナル伝達経路の主要なエフェクター分子である32。先行研究では、ROCK1がRA滑膜細胞において高発現しており、それらの遊走および浸潤を促進することが示されている33。予想通り、ROCK1の過剰発現はHFLS-RA細胞に対するmiR-488-3pの効果を有意に消失させた。このことは、RAの進行におけるmiR-488-3pの調節的役割にROCK1が関与していることを示唆している。
しかしながら、今後の研究で取り組むべき課題はまだ多く残っている。臨床検体におけるmiR-488-3pの発現は、U6を内部標準としたRT-qPCRを用いて評価した。先行研究では、特に血清などの循環検体におけるU6の安定性について、相反する結果が報告されている。本研究においてもU6の安定性を確認するための予備実験を行ったが、U6の潜在的な変動性は依然として制限要因であり、誤診のリスクを高める可能性がある。より安定した内部標準遺伝用を用いたさらなる検証が必要である。一方で、miR-488-3pの臨床評価は、外部検証のない単一センターのコホートに基づいている。サンプルサイズは比較的小さく、病院規模に限定されていた。さらに、miR-488-3pの予後予測能を評価するための縦断的なフォローアップも不足していた。これらの制限は今後の研究で対処されるべきである。また、miRNAのin vivo導入は、臨床応用のための大きな課題であることがいくつかの研究で示されている34。今後の研究では、条件付きノックアウトマウスの作製や、ナノキャリアなどの標的輸送システムの利用により、miR-488-3pの治療的潜在能をin vivoで検証することが考えられる35。
結論として、本研究により、RAの診断および潜在的な治療標的におけるmiR-488-3pの有用性が明らかになりました。miR-488-3pは高い診断能を示し、HFLS-RA細胞の増殖および炎症反応を抑制すると同時に、アポトーシスを促進しました。このことは、miR-488-3pがRAの新規治療戦略の開発に向けた有望な標的となり得ることを示唆しています。今後の研究では、1) 大規模な多施設共同コホートにおけるmiR-488-3pの診断安定性の検証、2) JAK阻害剤や生物学的製剤28などの既存の治療薬との相乗効果の探索、および3) 臨床応用の実現可能性を高めるためのmiRNAデリバリーシステムの最適化36に焦点を当てるべきです。
データの利用可能性:
本研究の結果を裏付ける生データは、本原稿とともに提出された補足資料で入手可能です。
開示事項
著者は利益相反がないことを宣言します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Annexin V-FITC Apoptosis Detection Kit | BD Bioscience | 556547 | 細胞アポトーシス |
| anti-Ago2抗体 | Proteintech | 66720-1-Ig | RNA免疫共沈降 |
| CCK-8溶液 | Dojindo | CK04 | 細胞増殖 |
| Dulbecco's Modified Eagle Medium (DMEM) | Thermo Fisher | 121000146 | 細胞培養 |
| ウシ胎児血清 | Thermo Fisher | 10437028 | 細胞培養 |
| フローサイトメーター | BD Bioscience | FACSCalibur | 細胞アポトーシス |
| ヒト抗CCP抗体ELISAキット | Cusabio | CSB-E09077h | 抗CCP検出 |
| ヒトRF-IgA ELISAキット | Feien Biotechnology | EH4270 | RF検出 |
| ヒト関節リウマチ線維様滑膜細胞 (HFLS-RA) | Cell Applications | HFLS-RA-200 | miR-488-3pの機能に関するインビトロ検証 |
| IgGコントロール抗体 | Abcam | ab205718 | RNA免疫共沈降 |
| インターロイキン-1β (IL-1β)ELISAキット | R&D Systems | DY201-05 | 細胞内IL-1β濃度 |
| インターロイキン-6 (IL-6) ELISAキット | R&D Systems | D6050B | 細胞内IL-6濃度 |
| Liposome Transfection Reagent 3000 | Ingenuity Life Technologies | L3000015 | 細胞トランスフェクション |
| マイクロプレートリーダー | BioTek | ELx808 | ELISAアッセイ |
| Mir-XTM miRNA First-Strand Synthesis Kit | Nihonbao Bioengineering Co., Ltd. | 638313 | 逆転写 |
| Opti-MEM培地 | Ingenuity Life Technologies, Inc | 31985070 | 細胞トランスフェクション |
| pcDNA 3.1 | Invitrogen | V790-20 | ROCK1の過剰発現 |
| ペニシリン-ストレプトマイシン | Thermo Fisher | 15140122 | 細胞培養 |
| Phadia 250 Laboratory System | Thermo Fisher | Phadia 250 | 血液分析 |
| PrimeScriptTM Reverse Transcription Kit | Nihonbao Bioengineering Co., Ltd. | RR037A | 逆転写 |
| プロピジウムヨード (PI)/ リボヌクレアーゼ (RNase) | BD Bioscience | 550825 | 細胞アポトーシス |
| QuantStudio 5システム | Applied Biosystems, Inc. | A28138 | PCRアッセイ |
| RNAiso Plus試薬 | Nihonbao Bioengineering Co., Ltd. | 9108 | RNA単離 |
| SYBR Green Premix Ex Taq | Nippon Poh Bio-Engineering Co., Ltd. | RR420A | PCR増幅 |
| TargetScanデータベース | TargetScan | N/A | 結合部位の予測 (https://www.targetscan.org/) |
| Tina-quant C-Reactive Protein IV | Roche Diagnostics | 7876033190 | CRP検出 |
| 腫瘍壊死因子-α (TNF-α) ELISAキット | R&D Systems | DY210-05 | 細胞内TNF-α濃度 |
参考文献
- Smolen JS, et al. Rheumatoid arthritis. Nat Rev Dis Primers. 2018;4:18001.
- Kook HY, et al. Serum miR-214 as a novel biomarker for ankylosing spondylitis. Int J Rheum Dis. 2019;22(7):1196-201.
- Alamanos Y, Voulgari PV, Drosos AA. Incidence and prevalence of rheumatoid arthritis, based on the 1987 American College of Rheumatology criteria: a systematic review. Semin Arthritis Rheum. 2006;36(3):182-8.
- van der Linden MPM, et al. Long-term impact of delay in assessment of patients with early arthritis. Arthritis Rheum. 2010;62(12):3537-46.
- Anderson J, et al. Rheumatoid arthritis disease activity measures: American College of Rheumatology recommendations for use in clinical practice. Arthritis Care Res (Hoboken). 2012;64(5):640-7.
- Aletaha D, et al. 2010 rheumatoid arthritis classification criteria: an American College of Rheumatology/European League Against Rheumatism collaborative initiative. Arthritis Rheum. 2010;62(9):2569-81.
- Yang J, et al. MicroRNA-488: a miRNA with diverse roles and clinical applications in cancer and other human diseases. Biomed Pharmacother. 2023;165:115115.
- Molendijk M, Hazes JMW, Lubberts E. From patients with arthralgia, pre-RA and recently diagnosed RA: what is the current status of understanding RA pathogenesis? RMD Open. 2018;4(1):e000256.
- van Venrooij WJ, van Beers JJBC, Pruijn GJM. Anti-CCP antibodies: the past, the present and the future. Nat Rev Rheumatol. 2011;7(7):391-8.
- Szodoray P, et al. Anti-citrullinated protein/peptide autoantibodies in association with genetic and environmental factors as indicators of disease outcome in rheumatoid arthritis. Autoimmun Rev. 2010;9(3):140-3.
- Filer A, et al. Utility of ultrasound joint counts in the prediction of rheumatoid arthritis in patients with very early synovitis. Ann Rheum Dis. 2011;70(3):500-7.
- Zuo C, Fan P, Yang Y, Hu C. MiR-488-3p facilitates wound healing through CYP1B1-mediated Wnt/β-catenin signaling pathway by targeting MeCP2. J Diabetes Investig. 2024;15(2):145-58.
- Mendell JT, Olson EN. MicroRNAs in stress signaling and human disease. Cell. 2012;148(6):1172-87.
- Cai Z, Poulos RC, Liu J, Zhong Q. Machine learning for multi-omics data integration in cancer. iScience. 2022;25(2):103798.
- Fabian MR, Sonenberg N. The mechanics of miRNA-mediated gene silencing: a look under the hood of miRISC. Nat Struct Mol Biol. 2012;19(6):586-93.
- Duroux-Richard I, et al. Circulating miRNA-125b is a potential biomarker predicting response to rituximab in rheumatoid arthritis. Mediators Inflamm. 2014;2014:342524.
- Zakeri Z, et al. MicroRNA and exosome: key players in rheumatoid arthritis. J Cell Biochem. 2019;120(7):10930-44.
- Pauley KM, et al. Upregulated miR-146a expression in peripheral blood mononuclear cells from rheumatoid arthritis patients. Arthritis Res Ther. 2008;10(4):R101.
- Kurowska-Stolarska M, et al. MicroRNA-155 as a proinflammatory regulator in clinical and experimental arthritis. Proc Natl Acad Sci U S A. 2011;108(27):11193-8.
- Pers YM, et al. miR-155 contributes to the immunoregulatory function of human mesenchymal stem cells. Front Immunol. 2021;12:624024.
- Fu Q, et al. miR-488-3p alleviates neuropathic pain by regulating target gene ROCK1. Acta Neurobiol Exp (Wars). 2023;83(3):271-9.
- Xue W, et al. PVT1 regulates the malignant behaviors of human glioma cells by targeting miR-190a-5p and miR-488-3p. Biochim Biophys Acta Mol Basis Dis. 2018;1864(5 Pt A):1783-94.
- Muiños-Gimeno M, et al. Human microRNAs miR-22, miR-138-2, miR-148a, and miR-488 are associated with panic disorder and regulate several anxiety candidate genes and related pathways. Biol Psychiatry. 2011;69(6):526-33.
- Le TD, Zhang J, Liu L, Li J. Computational methods for identifying miRNA sponge interactions. Brief Bioinform. 2017;18(4):577-90.
- Scanzello CR, Goldring SR. The role of synovitis in osteoarthritis pathogenesis. Bone. 2012;51(2):249-57.
- McGeary SE, et al. The biochemical basis of microRNA targeting efficacy. Science. 2019;366(6472):eaav1741.
- Liu X, et al. Impaired AGO2/miR-185-3p/NRP1 axis promotes colorectal cancer metastasis. Cell Death Dis. 2021;12(4):390.
- Smolen JS, Aletaha D, McInnes IB. Rheumatoid arthritis. Lancet. 2016;388(10055):2023-38.
- O'Connell RM, Rao DS, Baltimore D. microRNA regulation of inflammatory responses. Annu Rev Immunol. 2012;30:295-312.
- Bottini N, Firestein GS. Duality of fibroblast-like synoviocytes in RA: passive responders and imprinted aggressors. Nat Rev Rheumatol. 2013;9(1):24-33.
- Firestein GS, McInnes IB. Immunopathogenesis of rheumatoid arthritis. Immunity. 2017;46(2):183-96.
- Amano M, Nakayama M, Kaibuchi K. Rho-kinase/ROCK: a key regulator of the cytoskeleton and cell polarity. Cytoskeleton (Hoboken). 2010;67(9):545-54.
- Peng H, et al. ROCK1 induces endothelial-to-mesenchymal transition in glomeruli to aggravate albuminuria in diabetic nephropathy. Sci Rep. 2016;6:20304.
- van der Meel R, et al. Smart cancer nanomedicine. Nat Nanotechnol. 2019;14(11):1007-17.
- Yin H, et al. Non-viral vectors for gene-based therapy. Nat Rev Genet. 2014;15(8):541-55.
- Setten RL, Rossi JJ, Han SP. The current state and future directions of RNAi-based therapeutics. Nat Rev Drug Discov. 2019;18(6):421-46.