空間トランスクリプトーム解析に向けたホルマリン固定パラフィン包埋(FFPE)骨サンプルの調製の標準的なワークフローには、RNAの完全性を維持するための10日間のEDTA脱灰工程が含まれます。主要な品質管理チェックポイントを設けることで、サンプルが後続の空間的遺伝子発現解析の要件を満たしているかを確認できます。
この記事について
サマリー
要約
骨髄(BM)は、空間的な関係性が細胞の挙動、シグナリング、および機能に影響を与える、複雑でダイナミックな構造体です。そのため、細胞間相互作用の全容を理解するには、細胞集団のアーキテクチャをin situで保持しマッピングできる補完的な空間技術が必要となります。単一細胞技術の大幅な進歩により、正常および疾患状態のBM組織における転写の不均一性の理解が進んでいますが、異なる細胞型の空間的配置やニッチ特異的な調節プログラム、およびそれらの相互作用については、さらなる研究が必要です。近年の空間トランスクリプトーム解析の発展により、さまざまな組織において空間的なコンテキストを維持したまま、バイアスのない遺伝子発現解析が可能となり、これらの技術は空間解像度を欠く単一細胞手法を補完するものとなっています。空間トランスクリプトーム解析は軟組織で広く利用されていますが、骨組織の処理に伴う困難があるため、BMのような石灰化組織への適用は限定的です。本プロトコルは、正常および疾患状態のマウスおよびヒト組織から、ホルマリン固定パラフィン包埋(FFPE)サンプルを調製するために使用されてきました。RNAの完全性を維持し、長管骨サンプルで空間トランスクリプトーム解析を可能にするため、10日間のエチレンジアミン四酢酸(EDTA)を用いた脱灰工程が含まれています。本プロトコルでは、組織処理、保存、切片作成を含むBMサンプルの空間トランスクリプトーム解析に向けた調製方法に加え、切片の完全性、組織形態、およびRNA品質の評価といった不可欠な品質評価ステップについて説明します。また、このワークフローは、細胞型の同定および単一細胞トランスクリプトームデータとの統合をサポートしており、細胞組成の特徴付け、細胞間相互作用の定義、ならびに正常および疾患状態における転写的に不均一な細胞の空間分布の可視化を可能にします。総じて、このワークフローは、BMのアーキテクチャを維持しつつ、完全に石灰化した正常組織および悪性組織を空間トランスクリプトーム解析に向けて調製するものです。
概要
骨髄(BM)は、造血および免疫細胞の成熟の主要な部位として機能する、非常に複雑で区分化された器官である1,2。この不均一な組織は、高度に専門化され組織化された三次元的なニッチにおいて共存する、造血系、間葉系、内皮系、および免疫細胞系の多様な配列で構成されている3,4。このニッチ内では、各細胞集団が異なる解剖学的領域を占めており、空間的なコンテキストが細胞の挙動、シグナル伝達、および機能を調節する上で根本的な役割を果たしている4,5。海綿骨や血管ネットワークなどの特定の構造への物理的な近接性は、造血幹細胞(HSC)の静止状態の維持や骨リモデリングを含む重要な生理学的プロセスを制御している6,7。その結果、この動的な微小環境と、その細胞成分およびストロマ成分間の厳密に調節された相互作用が、恒常性を維持し、血液悪性腫瘍の進行に影響を与える調節ネットワークを形成している8,9,10,11,12,13。
単一細胞RNAシーケンシング(scRNA-seq)の進歩により、骨髄(BM)の細胞多様性に関する理解が劇的に変わり、これまで認識されていなかった細胞サブタイプや、ニッチ内におけるそれらの予測される相互作用の発見が可能になりました3,10,11,12,14,15,16。しかし、単一細胞トランスクリプトーム解析は、造血ニッチの個々の構成要素に関する高解像度な情報を提供する一方で、組織消化プロセスによって細胞が本来の環境から解離し、本来の状態が変化する可能性があること17、および骨組織の構成を定義する空間的コンテキストが欠如していること4,18という固有の限界があります。この位置情報の喪失により、転写的に異なる特定の細胞集団がどこに存在するか、あるいは隣接する細胞とどのように相互作用しているかを決定的にマッピングすることは不可能です19。さらに、高密度の骨組織はしばしば部分的にしか解離されず、その結果、scRNA-seqデータセットにおいて骨細胞や脂肪細胞などの重要な細胞集団が過小評価され、組織の不均一性の表現に偏りが生じます20,21。空間トランスクリプトミクスでは、空間的に保存された組織切片内で遺伝子発現を in situ で解析できるため、コンテキスト情報を回復し、単一細胞技術の限界を克服することができます8,19,22,23,24,25,26。この技術は、BMを構成する異なる細胞集団の正確な空間的配置と構造的組織化を可能にするため、この分野における不可欠な進歩であり、本来の微小環境における相互作用や機能的役割を理解する上で不可欠です8,26。さらに、疾患の文脈において、空間トランスクリプトミクスは研究者や臨床医が従来の病理学とハイスループットゲノミクスの隔たりを埋めることを可能にし、分子データを形態学的画像に重ね合わせることができます1,8。空間トランスクリプトミクス技術は、大きく分けて、シーケンシングベースの手法とイメージングベースの手法の2つのグループに分類されます17,24。Visium、Curio Seeker、GeoMx Digital Spatial Profiler (GeoMx DSP)、Stereo-seq、Deterministic Barcoding in Tissue sequencing (DBiT-seq)、およびオープンソースのOpen-STなどのシーケンシングベースのプラットフォームは、次世代シーケンシングの前に、空間的にバーコード化されたアレイまたはビーズ上でmRNAをキャプチャします。Multiplexed Error-Robust Fluorescence in Situ Hybridization (MERFISH)、Molecular Cartography、RNAscope、CosMX、Xeniumを含むイメージングベースの手法は、マルチプレックスハイブリダイゼーションまたはパッドロックプローブ化学を用いて、転写物を in situ で直接可視化します27,28。あるいは、プローブベースの検出を必要とするかどうかに応じて、プラットフォームをターゲット型または非ターゲット型に分類することもできます17,24。
空間的トランスクリプトーム解析法は、脳、心臓、肝臓などの軟組織には容易に適用されており、これらの組織では無傷の組織切片を簡単に作製できます29,30,31。対照的に、骨への空間的トランスクリプトーム解析の導入は、その石灰化された性質のため considerably より困難です。そのためには、リン酸カルシウムを制御しながら除去し、組織を切片作成やその後の組織学的・分子分析が可能な柔らかさにまで処理する脱灰工程が必要となります32,338,20,23,34。臨床現場で日常的に用いられている従来の脱灰法は、通常、塩酸、硝酸、ギ酸、またはリン酸などの強力な酸性溶液に依存しており、これらはRNAの完全性を著しく低下させ、細胞形態を破壊します35,36。このような分子レベルの分解は、空間的アッセイにおけるS/N比を低下させ、軟組織と比較して遺伝子検出率が許容できないほど低くなることが頻繁にあります8,10。この制限は、シーケンスベースの空間的分析に向けて、石灰化サンプルにおいてmRNAの完全性を確実に保持できる標準化された脱灰ワークフローが必要であることを強調しています8,20。
本プロトコルでは、Muiños-Lopezらによって以前に適用された、空間トランスクリプトーム解析に向けたホルマリン固定パラフィン包埋(FFPE)骨髄(BM)サンプルの調製に関する標準化されたワークフローを提示します8。このワークフローには、制御されたpH条件下でエチレンジアミン四酢酸(EDTA)を用いた10日間の脱灰ステップが含まれています。強力な酸とは異なり、EDTAは穏やかなキレート剤として機能し、微細構造を維持しながら核酸の品質を保持するため、分子生物学的アプリケーションへの利用に適しています8,20,33,36,37。概念実証として、本プロトコルを健常および多発性骨髄腫(MM)マウスモデルの骨組織サンプル、ならびに健常者および疾患患者のヒトBM検体に適用し、その後Visium Spatial Gene Expressionプラットフォームを用いてシーケンシングを行いました38。このワークフローには、ヒトおよびマウスの骨サンプルからの組織採取、固定、脱灰、脱水、パラフィン包埋、および切片作成の標準化された手順が含まれており、それに続いて、切片の完全性の評価、ヘマトキシリン・エオジン(H&E)染色、RNA品質評価(DV200)、および細胞型確認のためのオプションの免疫蛍光(IF)染色を含む包括的な品質管理パイプラインが行われます。これらの調製ステップにより、高品質な切片のみが、組織切片の前処理、ライブラリ構築、シーケンシング、およびその後のデータ品質管理と解析を含む下流の空間トランスクリプトーム・ワークフローへと進むことが保証されます。
この標準化された手順は、空間トランスクリプトーム解析に向けたヒトおよびマウスのBMサンプルの調製と品質評価をサポートするものです。本手法は、血液疾患および骨格疾患におけるニッチ特異的な制御プログラムの研究を促進することを目的としています。
プロトコル
すべての動物実験は、科学的目的に使用される動物の保護に関する欧州指令 2010/63/EU に準拠して実施され、ナバラ大学動物倫理委員会(Comité de Ética para la Experimentación Animal;プロトコル CEEA082-20 および CEEA039-20)の承認を得て行われました。動物の飼育、取り扱い、および安楽死は、痛みと苦しみを最小限に抑えるため、スペインの法律に従って実施されました。
本ヒト研究は、ナバラ大学医学部研究倫理委員会(Comisión de Ética de Investigación, CEI; プロジェクト 2022.100mod1 および 2023.172)およびナバラ保健サービス研究倫理委員会(CEIm–Departamento de Salud de Navarra; PI_2022/92 MS-1)の承認を得て実施されました。ヒト参加者が関与するすべての手順は、ヘルシンキ宣言の倫理原則に従って行われました。個人データは、個人データ保護およびデジタル権利保障に関するスペイン有機法 3/2018 および生物医学研究に関するスペイン法 14/2007 を遵守し、機密として取り扱われました。
注:本研究で使用した試薬および装置の詳細なリストは、以下の〜に記載されています。 材料表骨組織に空間トランスクリプトミクスを実装するための包括的な実験パイプラインを、以下に模式的に示す。 図1 そして、検体採取、品質管理(QC)、および空間的トランスクリプトーム解析の3つの運用フェーズに整理されている。検体採取には、ヒトまたはマウスの骨断片の回収が含まれ、その後、固定、EDTA脱灰、脱水、パラフィン包埋、および切片作成とスライド調製を行う。QCフェーズでは、組織学的完全性とRNAの保存状態を評価する。検証済みの骨切片に対して、スライド上での組織透過処理、ライブラリ調製、シーケンシング、およびデータ解析を行う。
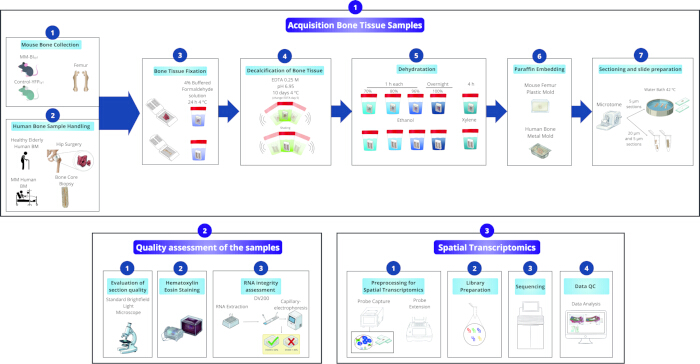
図1: マウスおよびヒト骨組織における試料採取およびEDTAを用いた調製ワークフロー。マウスの大腿骨およびヒトの骨試料を採取し、固定、EDTAによる脱灰、脱水、パラフィン包埋、および切片作成を行う。H&E染色およびRNA完全性(DV200)評価によって試料の品質を評価した後、空間トランスクリプトーム用の組織前処理、ライブラリ調製、シーケンシング、およびデータ品質管理を行う。略語:BM = 骨髄;DV200 = 200ヌクレオチドより長いRNA断片の割合;EDTA = エチレンジアミン四酢酸;H&E = ヘマトキシリン・エオジン;QC = 品質管理。ここをクリックして、この図の拡大版を表示してください。
1. 骨組織サンプルの採取および処理
- マウス骨の採取
- 5% isoflurane で動物を麻酔し、反射の消失を確認する。
- 完全に麻酔がかかった後、施設および規制のガイドラインに従い、頸椎脱臼により安楽死させる。
注:安楽死は訓練を受けた人員が実施し、組織採取に進む前に死亡を確認しなければならない。 - マウスの背面に 70% ethanol をスプレーして皮膚を消毒し、外科用鋏を用いて小さな切開を入れ、慎重に皮膚を取り除いて後肢を露出させる。
- 股関節の上部を切断して後肢を摘出し、10 mL の冷えた Dulbecco’s Phosphate Buffered Saline (DPBS) を含む 50 mL チューブに移す。チューブを氷上に置く。
- 滅菌ピンセットとメスを用いて、付着している筋肉と結合組織を取り除く。
- 骨を、清潔で冷えた DPBS があらかじめ満たされた 50 mL 滅菌容器に移し、容器を氷上に置く。
- 組織の完全性を維持するため、直ちにサンプル組織の固定を行う。
- ヒト骨サンプルの取り扱い
- 骨芯生検検体または外科的骨断片を 100 mL 滅菌容器で受け取る。
- 骨断片を、冷えた DPBS があらかじめ満たされた清潔な滅菌 100 mL 容器に移し、氷上に置く。
- 組織の完全性を維持するため、直ちにサンプルの固定を行う。
注意:ヒトサンプルは BSL 2 条件下で取り扱わなければならない。
- 骨組織の固定
- 骨サンプルが入った 50 mL または 100 mL 容器を取り出し、DPBS を捨てる。
- プラスチックカセットにラベルを貼り、骨サンプルを個別のカセットに入れる。その後の処理中に組織が消失しないよう、蓋をしっかりと閉める。
注:マウスサンプルの場合は、1つのカセットに1本の骨を入れる。ヒト骨サンプルの場合、必要に応じて滅菌メスを用いて組織を標準的なカセットに収まる十分な小ささの断片に切断し、1つのカセットに1つの断片を入れる。この段階でヒト骨サンプルが硬すぎて切断できない場合は、そのまま脱灰液に移してよい。脱灰されて組織が柔らかくなった後、適切なサイズの断片に切断し、ラベル付きカセットに入れる。 - サンプルと固定液の比率を 1:20 として 4% 緩衝ホルムアルデヒド溶液を加え、4 °C で 24 h インキュベートする。
注意:固定液は毒性と揮発性煙があるため、化学薬品用フード内で取り扱うこと。
注:過剰な固定(>48 h)は、FFPE ワークフローにおける RNA の完全性を低下させるため避ける39。
- 石灰化した骨組織の脱灰
- ホルマリンを捨て、骨サンプルを超純水で洗浄する。水ですすぎ、短時間攪拌して捨て、残っているホルマリン残渣を完全に除去する。
- 超純水で 0.25 M EDTA 溶液を調製し、pH を 6.95 に調整する。
注:従来の脱灰プロトコルでは EDTA はしばしば pH 8.0 に調整されるが、本ワークフローでは組織形態と RNA の品質を維持しつつ効率的なキレート作用をサポートするため、pH 6.95 付近の EDTA を使用する8。 - 骨サンプルが入った容器に EDTA 溶液を加え、緩やかに攪拌しながら 4 °C で 10 日間インキュベートする。
注:マウスサンプルの場合、通常は約 50 mL の EDTA 溶液で十分である。ヒト骨サンプルの場合、通常は約 100 mL が使用される。ただし、完全に浸漬させ、効果的に脱灰させるために、骨のサイズに基づいてこの容量を調整することができる。 - 脱灰から 5 日後、キレート能が時間とともに飽和するため、EDTA 溶液を捨て、同量の新鮮な EDTA に交換する。同じ条件下でインキュベーションを継続する。
- 10 日間のインキュベーション後、EDTA 溶液を捨て、脱灰が完了したか評価する。
- 滅菌メスで小さく切るか、または組織の隅や周辺領域に細い滅菌針を刺入する。その際、目的領域を変更しないよう、常に分析的関連性の低い領域を選択すること。切断や針の刺入中にサンプルを安定させるため、骨を滅菌シャーレの上に置く。組織が容易に切断できるか、または針が最小限の抵抗で通過する場合、サンプルは十分に脱灰されている。
- マウス大腿骨の場合、ピンセットで骨を軽く曲げて柔軟性を確認する。これは完全なミネラル除去の信頼できる指標となる。
注:脱灰ステップの期間は、骨サンプルのサイズと厚さ、および使用する EDTA の量に依存する。最初のインキュベーション期間後も骨が硬いままの場合は、組織が容易に切断できる程度に柔らかくなるまで脱灰を継続する。過度な延長は組織の品質と RNA の完全性を損なう可能性があるため、延長は適切な軟化を達成するために必要な最小限の時間に留めるべきである20。
- 脱水
- 骨サンプルが入った容器に超純水を加え、4 °C で 5 分間攪拌しながら洗浄する。
- 水を捨て、70% ethanol 溶液に交換する。4 °C で 1 h インキュベートする。
注:このステップを停止点とすることができる。サンプルは次のステップに進むまで 4 °C の 70% ethanol 中で保存できる。本プロトコルでは最大保存期間は実験的に検証されていないため、ユーザーは各自の研究室の標準的な慣行に従って進めること。 - エタノール濃度を段階的に上げて(70%, 80%, 96%;それぞれ 4 °C で 1 h ずつ)サンプルを順次脱水し、続いて 100% ethanol で 4 °C で一晩インキュベートする。
- 100% ethanol を捨て、キシレンに交換する。室温 (RT) で 4 h インキュベートする。
- キシレンを捨て、サンプルカセットを溶融した清潔なパラフィンが入ったガラス容器に入れる。60 °C で一晩、溶融パラフィン中でインキュベートする。
注:真空補助処理システムが利用可能な場合は、これらの装置によりパラフィンの浸透がより効率的に行われるため、浸透時間を短縮できる40,41,42。
注意:キシレンおよび段階的なエタノール溶液を用いるすべてのステップは、適切な換気を確保し、毒性および可燃性蒸気への暴露を最小限に抑えるため、必ず化学薬品用フード内で行わなければならない。
- パラフィン包埋
注:RNA 分解を防ぐため、包埋装置の表面を RNase 除染溶液で清掃すること。- 包埋装置の電源を入れ、パラフィンリザーバー、カセットパラフィンバス、モールドパラフィンバス、およびモールドウォーミングプレートを 60 °C に予熱する。包埋前に冷やすため、コールドプレートを起動させる。
- パラフィンを完全に溶かした後、パラフィン浸透済みのサンプルが入ったカセットをカセットパラフィンバスに入れる。包埋前にキシレンを完全に除去するため、2 h インキュベートする。
- 必要なすべてのモールドをモールドパラフィンバスに入れる。
注:ヒトサンプルの場合は、標準的な金属製包埋モールドを使用する。マウスサンプルの場合は、Visium スライド上に適切に切片を配置するのに適した寸法の正方形の空洞を持つ、Visium プラットフォーム互換のプラスチック製包埋モールドを使用する。マウスの骨全体はこれらのモールドの正方形の空洞に完全には収まらないため、包埋直前に滅菌メスを用いて骨を切断し、適切なサイズの断片にする。断片の寸法に応じて、1つのモールドに 1 〜 2 個の骨断片を包埋することができる。 - 包埋装置の中央出口から溶融パラフィンを dispensed し、薄いベース層を形成させる。
- カセットを開け、温めたピンセットを用いて組織をカセットからモールドへ慎重に移す。
- パラフィンが入ったモールドをモールドウォーミングプレートに置き、パラフィンが液状である間に、温めたピンセットで組織を希望する切断方向に方向付けする。
- モールドを包埋装置の冷たい表面に置き、骨断片の位置を短時間固定する。
- ディスペンサーから溶融パラフィンをモールドに完全に満たし、組織が完全に覆われ、大きな気泡が残っていないことを確認する。
- ラベル付きカセットをモールドの上に配置し、パラフィンブロックの底面とする。
- カセットが付いたモールドを包埋装置のコールドプレートに移す。ブロックが不透明で硬くなるまで、10 分間パラフィンを完全に凝固させる。
- 凝固後、パラフィンブロックをモールドから取り出し、切断まで 4 °C で保存する。
注:このステップを停止点とすることができる。パラフィンブロックは 4 °C で保存可能である。ただし、保存中の RNA 分解を最小限に抑えるため、可能な限り、包埋後速やかに組織切断および後続の空間的トランスクリプトーム解析を行うべきである43,44。
- 切断およびスライド調製
注:RNA 分解を防ぐため、ミクロトームとウォーターバスを RNase 除染溶液で清掃すること。- ウォーターバスに蒸留水を満たし、42 °C に予熱する。ミクロトームの電源を入れ、新しい刃を取り付ける。顕微鏡スライドに鉛筆でラベルを付ける。
- 希望する縦断切断方向に従ってカセットを方向付けし、パラフィンブロックを試料ホルダーに取り付ける。
注:氷を満たしたプラスチック袋を用意し、パラフィンが柔らかいために切断が困難になった場合は、ミクロトームに取り付けたままのブロックの上に氷袋を直接置き、ゴムバンドで数分間固定してパラフィンを硬くし、切片の品質を向上させる。 - ミクロトームの厚さを 20 µm に設定し、トリミングカットを行う。
- ミクロトームの設定を 5 µm に変更する。4 枚の 5 µm 切片をラベル付き RNase-free 1.5 mL マイクロ遠心チューブに回収する。チューブをドライアイス上に置き、-80 °C で保存する。
- 5 µm で切断を続け、リボンを切片をウォーターバスに浮かべる。切片が完全に広がり、しわがなくなったところで、ラベル付きスライドで拾い上げる。
- 一定の枚数ごと(例:組織サイズに応じて 5 〜 10 リボンごと)に、さらに 4 枚の 5 µm 切片を新しいラベル付き 1.5 mL チューブに回収する。5 µm 切片を含む 1.5 mL チューブが合計 3 本になるまでこのプロセスを繰り返す。
注:組織にひびが入ったり、破損したり、または連続切片が得られない場合は、脱灰が不十分であるため、追加の脱灰時間が必要である。脱灰段階までワークフローのステップを戻してサンプルを回収する。そのためには、パラフィンブロックを 60 °C で約 2 h 加熱して溶かし、検体をキシレン (2 h) に移す。段階的なエタノール溶液 (100%, 96%, 80%, 70%) に続き、蒸留水を用いてサンプルを再水和させる。再水和したサンプルを新鮮な 0.25 M EDTA (pH 6.95) に戻し、必要に応じて脱灰期間を延長した後、脱水、再包埋、および切断に進む。FFPE 処理を逆戻りさせると RNA の完全性が損なわれる可能性があるため、この回収手順は厳格に最終手段としてのみ使用すること。
- 一定の枚数ごと(例:組織サイズに応じて 5 〜 10 リボンごと)に、さらに 4 枚の 5 µm 切片を新しいラベル付き 1.5 mL チューブに回収する。5 µm 切片を含む 1.5 mL チューブが合計 3 本になるまでこのプロセスを繰り返す。
- スライドを 37 °C のオーブンに一晩置き、残留水分を蒸発させた後、4 °C で保存する。
- 組織の密着性を高めるために、オプションとして、37 °C で一晩インキュベートする前に、42 °C で 3 h 焼成(ベイク)する。
注:Table of Materials に記載されているガラススライドを使用する場合、これらのスライドは強力な密着性を提供し、通常、処理全体を通して組織がしっかりと付着しているため、このステップは一般的に不要である。このステップを停止点とすることができる。スライドは 4 °C で保存可能である。ただし、可能な限り、保存中の RNA 分解を最小限に抑えるため、包埋後速やかに後続の空間的トランスクリプトーム解析を行うべきである43,44。
2. サンプルの品質評価
- 切片品質の評価
- 標準的な明視野光学顕微鏡(4×–10×)を用いて、すべての切片を一つずつ観察する。各スライドを検査し、切片に断片化がないことを確認して、各切片の品質を記録する。
注:折り畳み、しわ、圧縮、またはチャッターマーク(波状の筋)がないか確認すること。これらはパラフィン硬度、刃の鋭さ、または脱灰不完全などの問題を示唆している可能性がある。切片作成時やウォーターバスへの移行時に、組織の脱落による欠損領域がないことを確認する。 - 空間トランスクリプトーム解析用に、最も保存状態の良い切片(最も完全で形態が良好なもの)を選択する。
- 選択した切片に隣接する連続切片を特定し、H&E染色およびIF用に確保する。これにより、染色画像がシーケンシングされる組織と可能な限り密接に対応するようにする。
- 標準的な明視野光学顕微鏡(4×–10×)を用いて、すべての切片を一つずつ観察する。各スライドを検査し、切片に断片化がないことを確認して、各切片の品質を記録する。
- 組織完全性のためのH&E染色
- スライドをガラス製スライド染色ラックに入れ、60 °Cで15分間インキュベートする。
- ラックをキシレンを含むガラス染色瓶に移し、15分間静置する。
- ラックを100%、96%、80%、70%のエタノールを含む染色瓶に順次移し、各溶液で5分間インキュベートして切片を再水和させる。
注意:キシレンおよび段階的なエタノール溶液を用いるすべての工程は、適切な換気を確保し、毒性および可燃性蒸気への暴露を最小限に抑えるため、化学薬品用ドラフトチャンバー内で行わなければならない。 - 水で満たした染色瓶の中で、スライドを5分間すすぐ。
- ラックをヘマトキシリンに10分間浸し、その後、すすぎ液が透明になるまで流水で洗浄する。
- 濃塩酸を5滴加えた水にラックを浸し、赤みがかった色調が現れるまで静かに攪拌する。
- 安定した青色に発色するまで、炭酸リチウム飽和水にラックを移し、その後、水で短時間すすぐ。
- 1% (w/v) エオジンで切片を5分間染色し、再び水ですすぐ。
- ラックを水、70%、80%、96%、100%のエタノールを含む染色瓶に順次移し、各溶液で5分間インキュベートしてスライドを脱水する。
- キシレンでスライドを15分間透徹する。
- 各スライドの裏面を静かに乾燥させ、カバーガラスに封入剤を塗布して切片を封入する。撮像前にスライドをRTで24時間乾燥させる。
- 高解像度顕微鏡を用い、20倍の倍率で組織撮像を行う。
注:まず隣接切片でH&E染色を行い、空間トランスクリプトーム解析へのサンプルの適合性を評価する品質管理ステップとする。選択後、Table of Materialsに記載されている空間遺伝子発現プラットフォームの製造元の組織調製ガイドラインに従い、空間トランスクリプトーム解析に予定している切片に直接2回目のH&E染色を行う。
- RNA完全性の評価(DV200)
注:空間遺伝子発現プロトコルでは、固定組織において18Sおよび28SリボソームRNAのピークが通常消失するため、従来のRNA Integrity Number (RIN) は有効ではない。そのため、200ヌクレオチドを超えるRNA断片の割合として定義されるDV200指標が、分解した臨床検体においてRINよりも情報量の多い品質パラメータとして一般的に使用される。Visium v2について、10x Genomics社は、効率的なプローブハイブリダイゼーションと最適なアッセイ性能を確保するために、DV200値が30%以上のFFPEブロックの使用を推奨している。利用可能な最高値のDV200を持つ組織ブロックを選択することで、シーケンシングのドロップアウトを防ぎ、スポットの感度を最大化できる。- 組織切片作成ステップで回収した5 µm切片を含む1.5 mLチューブを取り出し、RNA抽出のために氷上に置く。
- 全RNAを抽出する。この標準化された手順には、サンプルの脱パラフィン処理、ホルマリンによる架橋を解除するためのプロテイナーゼK消化、DNase I処理によるゲノムDNAの除去、および精製RNAのRNaseフリー水への最終溶出が含まれる。
- 高感度RNAアッセイを備えたキャピラリー電気泳動システムを用いてRNA完全性を評価する。ワークフローの概要はSupplementary File 142,45,46,47,48に記載されている。
- 細胞型検証のためのオプションIF
- FFPEスライドをガラス製スライド染色ラックに入れ、60 °Cで15分間インキュベートする。
- ラックをキシレンを含むガラス染色瓶に移し、15分間静置する。
- ラックを100%、96%、80%、70%のエタノールに順次2分ずつ移し、続いて水で5分間、PBS-Tween(0.1% Tween-20を添加した1x PBS)で5分間処理して切片を再水和させる。
注意:キシレンおよびエタノールを用いるすべての工程は、化学薬品用ドラフトチャンバー内で行わなければならない。 - 一次抗体の製造元の推奨に従って抗原賦活化を行う。賦活化バッファー、pH、および加熱条件が抗体データシートと一致していることを確認する。注:本ワークフローでは、抗原賦活化を10 mM Trisおよび1 mM EDTA (pH 9.0) を用い、加熱ポットシステムにて95 °Cで30分間行い、その後RTで20分間冷却して行う。
- PBS-Tweenでスライドを2回、各10分間洗浄する。
- 疎水性バリアペンを用いて組織の周囲に疎水性バリアを引き、加湿チャンバー内で1x DPBS中の5% BSAを組織切片に適用して、RTで少なくとも40分間非特異的結合をブロックする。
注:加湿チャンバーは、プラスチック製スライド染色ボックスにフィルターペーパーを敷き、蒸留水で十分に湿らせることで、抗体インキュベーション中に安定した湿度環境を維持するように準備する。 - 各抗体の推奨希釈倍率で、1x DPBSを用いて一次抗体溶液を調製する。
注:本ワークフローでは、製造元のプロトコルに従い、マウスのECおよびMSCをそれぞれ同定するためにEmcn (V.7C7) および Cd271 (ME20.4) に対する一次抗体を使用し、ヒトの対応細胞を同定するためにCD31 (JC70A) または PRRX1 (polyclonal) に対する抗体を使用した。 - スライドの端を吸収紙で軽く叩いて残った液滴を除去し、ブロッキング溶液を取り除いた後、一次抗体ミックスを適用し、加湿チャンバー内で4 °Cにてオーバーナイトでインキュベートする。
- PBS-Tweenでスライドを2回、各5分間洗浄し、製造元の推奨希釈倍率で二次抗体溶液を調製する。その際、蛍光色素がスペクトル的に適合し、重なり合わないことを確認する。
注:本ワークフローでは、1:200に希釈したAlexa Fluor結合二次抗体を使用した。 - 二次抗体ミックスを適用し、加湿チャンバー内で遮光し、RTで30分間インキュベートする。
- PBS-Tweenでスライドを2回、各5分間洗浄する。
- 1:1 PBS–グリセロール溶液で調製したDAPI含有封入剤(Table of Materialsを参照)を1:10に希釈して適用し、サンプルを5分間インキュベートする。
- カバーガラスで切片を封入し、乾燥を防ぐために端をマニキュアで密封する。
- マルチスペクトルイメージングプラットフォームを用いて、染色された組織を可視化する。
補足ファイル1:RNA完全性評価およびVisium空間トランスクリプトームワークフローのプロトコル手順の概要。この補足ファイルには、製造元の指示に従って実施された手順の詳細な概要が記載されています。内容には、(i) メインプロトコルの手順2.3.3に記載されているRNA完全性(DV200)を評価するために使用したHigh Sensitivity RNA ScreenTape Assay、および (ii) 組織の前処理、ライブラリ調製、シーケンシングを含むVisium CytAssist Spatial Gene Expressionワークフローの概要(メインプロトコルの手順3.1~3.3)が含まれています。こちらのリンクからファイルをダウンロードしてください。
3. 空間トランスクリプトーム解析
注:空間トランスクリプトーム解析のワークフローは、材料表に記載されたプラットフォームおよび試薬を使用し、対応するユーザーガイド42,45,46に従って実施してください。補足ファイル1に、主要な組織の前処理、ライブラリ調製、およびシーケンシングの手順をまとめています。
- 空間トランスクリプトームデータの品質管理
- Visiumデータセット用の標準パイプライン(材料表を参照)を使用して、空間トランスクリプトームデータをデマルチプレックスする。
- リードを適切なEnsembl 105リファレンスゲノムにマッピングする。
注:ヒトサンプルにはGRCh38を、マウスサンプルにはmm10を使用した。 - 同じパイプラインを使用してフィルタリング済みフィーチャー・バーコード行列を生成し、それらを後続のシングルセル/空間解析環境(材料表を参照)にインポートする。
- 空間トランスクリプトームパイプライン(材料表を参照)で提供される視覚化インターフェースでH&E染色画像を確認し、データセットに応じて皮質骨領域または骨組織に重なるスポットを手動で除去する。
- シングルセル解析ワークフローで一般的に適用される分散安定化変換法(材料表を参照)を用いて、データセットを正規化する。
結果
このEDTAベースのワークフローが、種や疾患の状況を問わず適用可能であるかを評価するため、本プロトコルを4つの骨髄(BM)サンプル(マウス大腿骨2検体、および健康な状態と多発性骨髄腫(MM)の状態を表すヒト骨検体2検体)に適用しました(表1および図1)。
| サンプルの識別 | 種 | 性別 | 年齢 | 疾患 |
| YFPcγ1 | マウス | 雌性 | 210日 | 健全な |
| mMM | マウス | オス | 314日 | MM |
| ヒト脳モデル(hHBM) | ヒト | オス | 76歳 | 健康な |
| hMM | ヒト | 雌性 | 50年 | MM |
表1:本研究に含まれるマウスおよびヒトの骨サンプル。 各サンプルについて、種、性別、年齢、および健康状態を記載している。略語:hHBM = 健康なヒト骨髄、hMM = ヒト多発性骨髄腫、mMM = マウス多発性骨髄腫、MM = 多発性骨髄腫、YFPcγ1 = 健康対照マウス。
本研究で使用したサンプルは、MMマウスサンプルを除き、当研究グループによる以前の出版物、具体的にはMuiños-LopezらおよびCenzanoらの研究において既に特性評価および報告がなされています。既報の検体については、空間トランスクリプトームデータおよび結果がそれらの研究8,10で提示されています。したがって、本稿に含まれる材料は、新たな生物学的知見を提示するためではなく、空間トランスクリプトームに対する本プロトコルの技術的な適合性を評価するために使用されています。
MM患者の臨床的および免疫学的特性を再現するBIC (BIcγ1) 遺伝子改変MMマウスモデル、およびそれに対応する健康対照マウス (YFPcγ1) からマウス大腿骨サンプルを取得した8,49。各個体から大腿骨を1本採取し、標準化されたプロトコルに従って洗浄および処理を行った(Figure 2A)。これらの解析に大腿骨を特に用いた理由は、得られる骨髄量が多く、ニッチの品質に優れ、再現性のある処理が容易であるため、シーケンシングベースの空間トランスクリプトームプラットフォームに適しているからである8,10。対照マウス大腿骨の脱灰が成功したことは、ピンセットによる手作業での操作時に組織の柔軟性が著しく向上したことで、肉眼的に確認された(Figure 2B)。その後、後続の分子解析に向けてRNAの完全性と組織構造を維持するため、空間トランスクリプトーム対応の専用モールドを用いて、この骨片をパラフィンに効率的に包埋した(Figure 2C)。
処理履歴の異なる2つのヒトBMサンプルについても解析を行った8,10。血液学的に健康なヒトの新鮮BMサンプルは、ナバラ大学病院での整形外科的な股関節置換術の際の外科的廃棄物から採取した(Figure 2D–F)。本プロトコルのトランスレーショナルな有用性を実証するため、このサンプルをマウスサンプルと同様に処理した。マウス組織で観察された結果と一致して、ヒト骨のEDTA脱灰の成功は、組織が完全に軟化し、針が容易に貫通することによって肉眼的に確認された(Figure 2E)。脱灰されたヒト骨片は、標準的な金属モールドを用いてパラフィンに正常に包埋され、後続の処理に供された(Figure 2F)。2つ目のヒトサンプルは、ナバラ大学クリニック(CUN)病理科に保管されていた、MM患者の腸骨稜から採取されたアーカイブFFPE BM生検組織である。特筆すべき点として、このアーカイブMMサンプルは、強酸を用いる標準的な臨床プロトコルを用いて事前に脱灰されていた36。このサンプルはEDTA処理検体との定性的な対比を示すが、組織源、固定履歴、保存状態、および脱灰方法が異なるため、観察された差異が脱灰剤のみに起因するものとは断定できない。
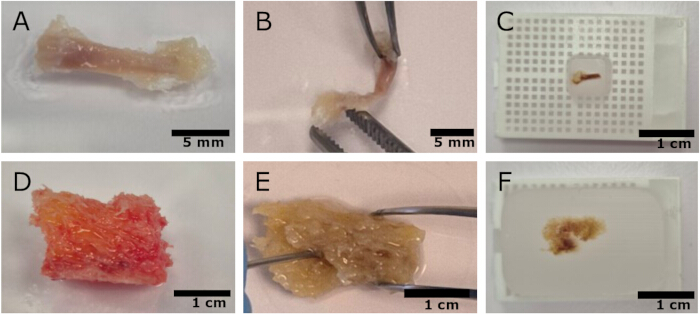
図 2: EDTAを用いた調製過程におけるマウスおよびヒトの骨サンプル。 (A) 脱灰前の未処理のコントロールマウス大腿骨。 (B) 柔軟性が増加した脱灰後のコントロールマウス大腿骨。 (C) パラフィンに包埋されたコントロールマウス骨断片。 (D) 脱灰前の股関節手術から採取された健康なヒト骨断片。 (E) EDTA脱灰後の同一断片であり、針が貫通している様子を示す。 (F) パラフィンに包埋されたEDTA脱灰後の健康なヒト骨。 スケールバー:(A, B) 5 mm; (C–F) 1 cm。 略語:EDTA = ethylenediaminetetraacetic acid。 こちらのリンクをクリックして、この図の拡大版を表示してください。
一般的な組織構造を解析するため、H&E染色を行った(図 3)。マウス切片でより良好な形態保存が観察されたことは、種固有の特性というよりも、サンプルの取り扱いおよび処理の違いを反映している可能性がある。マウス大腿骨は空間的トランスクリプトーム解析のために特別に採取され、そのままの骨として直ちに処理されたため、その構造が保持されていた(図 3A、B)。対照的に、ヒトサンプルは、股関節置換術中に得られた残余組織(図 3C)、または診断目的のMM骨生検組織(図 3D)に由来しており、どちらも分析前の組織品質にばらつきがある可能性がある。その結果、EDTA脱灰したヒトサンプルと酸脱灰したMM生検組織との形態的な差はわずかであった。これは、どちらのヒト検体においても、脱灰だけでなく一般的な組織処理によって導入されたベースラインの構造的制限がすでに認められるためである(図 3C、D)。したがって、空間的トランスクリプトーム解析のためのサンプル品質を包括的に評価するには、複数の異なるパラメータを評価する必要がある。第一に、組織の完全性を慎重に監視しなければならない。なぜなら、構造の保存状態は、使用した脱灰酸だけでなく、特定のサンプルタイプによって大きく異なる可能性があるからである。第二に、脱灰条件が影響を及ぼす可能性があるため、RNA品質も評価されるべきである20,35,36。
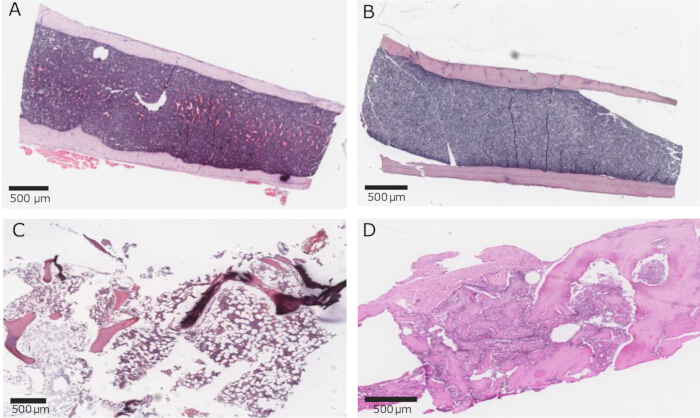
図 3: 組織品質評価に使用したH&E染色切片。連続FFPE切片は、(A) 健康なコントロールマウス10、(B) MM罹患マウス、(C) 健康なヒト骨8,10、および(D) ヒトMM生検組織8に対応している。スケールバー = 500 µm。略語:FFPE = ホルマリン固定パラフィン包埋、H&E = ヘマトキシリン・エオジン、MM = 多発性骨髄腫。こちらのリンクから、この図の拡大版を表示できます。
組織学的解析を補完するため、RNA品質の評価を行った。H&E染色の結果では差異が曖昧であったが、RNAの完全性によって2つの脱灰法の効果を明確に区別することができた(表2)。マウスサンプルおよび健康なヒト骨検体双方のDV200値は、Visium FFPEアッセイで推奨される閾値を超えており、プローブのハイブリダイゼーションおよびライブラリ作製に十分なRNA断片長分布であることが示された。YFP健康マウスサンプルのDV200は82.55%であり、健康なヒト骨(hHBM)サンプルは58%に達し、どちらも10x Genomics社が定義する許容閾値の30%を十分に上回っていた。MMマウス(mMM)サンプルのDV200は31.3%であり、許容限界の下限に近かったが、これは切片作成前のパラフィンブロックの4 °Cでの長期保存など、サンプル固有の要因を反映している可能性がある。対照的に、酸脱灰したヒトMM生検(hMM)のDV200はわずか8%であり、形態学的劣化がそれほど顕著でない場合であっても、RNAの完全性が著しく低いことに関連していた。要約すると、下流の空間解析に対するサンプルの適合性を評価するためには、構造的評価と分子的な評価の両方を行うことが重要である。
| サンプルの識別 | DV200 (%)1 |
| YFPcγ1 | 82.55 |
| mMM | 31.3 |
| ヒト血液脳関門(hHBM) | 58 |
| hMM2 | 8 |
| 1DV200:全RNA断片における割合 > 200ヌクレオチド | |
| 2この試料は、強酸を用いた標準的な臨床プロトコルに従って脱灰された。 | |
表2:研究サンプルのRNA品質。 DV200は200ヌクレオチドより長いRNA断片の割合であり、30%以上の値がその後の空間トランスクリプトーム解析に適していると見なされた。略語:hHBM = 健康なヒト骨髄、hMM = ヒト多発性骨髄腫、mMM = マウス多発性骨髄腫。
追加の品質評価を行うことも可能です。EDTA脱灰後の組織の完全性をさらに検証し、特定の細胞コンパートメントが保持されていることを確認するため、マウスおよびヒト組織の隣接するFFPE切片を用いて、オプションの免疫蛍光(IF)染色を実施しました。MMマウスサンプルにおいて、内皮細胞(EC)および間葉系細胞(MSC)をそれぞれ可視化するために、Endomucin (Emcn)およびCd271抗体を使用しました(図4A)。この染色により、EDTA処理された組織は、連続的なEmcn染色を伴う明確な血管構造と保持されたストローマネットワークを示し、テストしたマーカーが処理後も検出可能であることが示されました。さらに、自動マルチスペクトルイメージングシステムを用いた高解像度イメージングにより、細胞型の検証においてテストした抗原が引き続き検出可能であるという追加の根拠が得られ、空間トランスクリプトーム解析前のさらなる品質管理レイヤーが提供されました。さらに、これらの知見は健康な高齢者のヒト検体でも観察され、EC発現はCD31によって、MSCはPRRX1 (Paired Related Homeobox 1)抗体によって検出され、テストしたニッチマーカーがEDTA脱灰後も識別可能であることが示されました(図4B)。 対照的に、これらの結果は、さまざまな酸ベースの脱灰プロトコルに供したヒトMM生検組織では再現されませんでした。前述のとおり、これらのサンプルではRNAの完全性が低く、下流のトランスクリプトーム解析が制限されました。これらのヒト検体は分解が進んでいたため、下流での有用性はベースラインのトランスクリプトームプロファイリング8および悪性プラズマ細胞(PC)の免疫組織化学(IHC)評価に限定されました(図4C)。
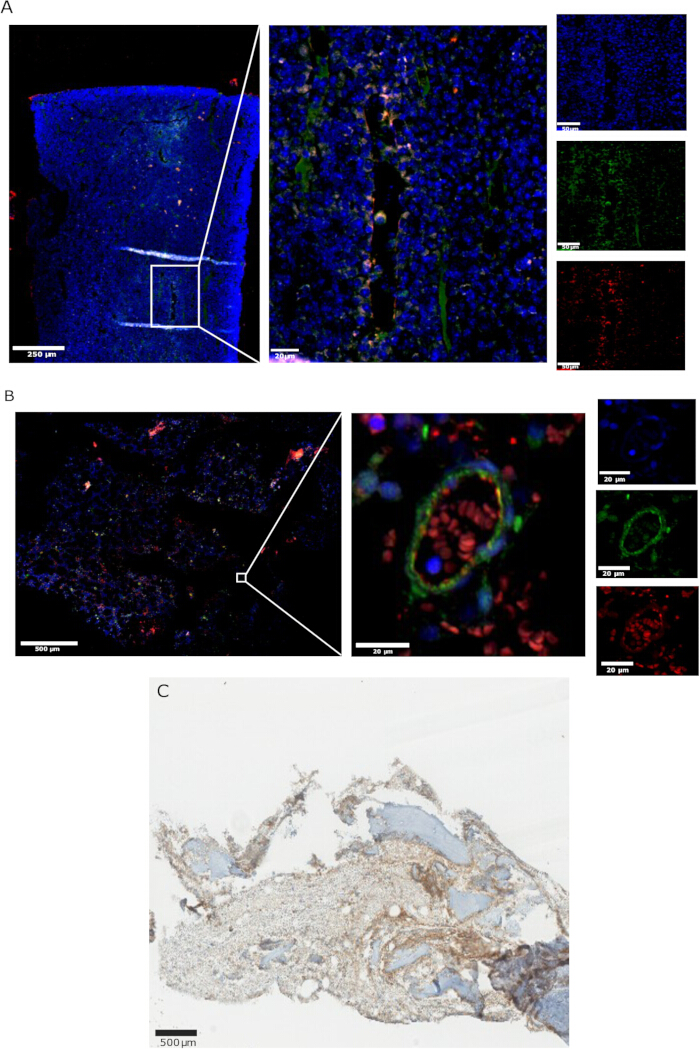
図 4: 細胞型の確認のための任意の免疫蛍光染色および免疫組織化学染色。 (A) DAPIで標識された核(青)、CD271陽性MSC(緑)、およびEMCN陽性EC(赤)を示すマウスMM組織。 (B) DAPIで標識された核(青)、PRRX1陽性MSC(緑)、およびCD31陽性EC(赤)を示す健康なヒト骨10。 (C) CD138陽性の悪性PCを示すヒトMM生検組織8。スケールバー: (A) 250 µm(全体像)、20 µm(マージ拡大図)、および 50 µm(シングルチャンネル画像); (B) 500 µm(全体像)および 20 µm(マージおよびシングルチャンネル拡大図); (C) 500 µm。略語:DAPI = 4′,6-diamidino-2-phenylindole、EC = 内皮細胞、MM = 多発性骨髄腫、MSC = 間葉系ストローマ細胞、PC = 形質細胞。こちらのリンクをクリックして、この図の拡大版を表示してください。
組織形態とDV200の結果を総合すると、EDTA処理したサンプルは、その後の空間トランスクリプトーム解析に適していることが示唆される。この調製ワークフローを用いた空間トランスクリプトームへの応用は、以前に報告されている8,10。
ディスカッション
EDTAベースの制御脱灰、標準化されたFFPE処理、および厳格な品質管理チェックポイントを統合することで、本プロトコルは空間トランスクリプトーム解析のための骨組織標本作製において伝統的に伴っていた多くの制限、特に強酸ベースの脱灰法によって引き起こされるRNA分解や形態学的損傷に関連する制限を克服している8,10,20,33,36。空間トランスクリプトーム解析のために石灰化試料を処理する上で最も重要なステップは脱灰である。脱灰が不十分であると、骨が切片作成に耐えられないほど硬いままとなり、空間トランスクリプトーム解析に適した高品質な切片を物理的に得ることが不可能になる8,20,23,37,50。骨組織が硬すぎる場合、ミクロトームの刃に対して組織が砕けたりチャタリングが発生したりし、切片の断裂や穴が生じて、本来のBM構造を正確に反映しなくなる。重要な点として、脱灰の成功はミクロトームでの切削段階まで完全には確認できない。外見上は軟化したように見える試料であっても、薄いFFPE切片を作製しようとした際に初めて顕在化する残留ミネラルが含まれている可能性がある。このため、再現性のある結果を確保するには、脱灰の進行状況を注意深くモニタリングすることが不可欠である。
このワークフローでは、0.25 M EDTA(pH 6.95)を用い、絶えず撹拌しながら10日間処理し、5日目に溶液を交換します8,10。プロトコルの開発段階において、EDTA単独、ポリビニルピロリドンを添加したEDTA、および10%ギ酸を評価し、併せて脱灰期間と溶液交換スケジュールの異なる条件を検討しましたが、それらの比較データはここでは示しません。10日より短い期間では、マウスサンプルの薄切時に組織の破損が頻発した一方、ヒトサンプルでは個体によって挙動が異なる結果となりました。したがって、マウスの大腿骨には10日間の期間を用いますが、ヒトサンプルでは密度や骨梁の内容に応じて、より長期間の脱灰が必要な場合があります。パラフィン包埋の前に、物理的な品質管理チェックポイントを設ける必要があります。マイクロトミー中に脱灰不足が判明した場合、再処理手順は最終手段としてのみ使用してください。追加の加熱、溶剤への曝露、および再水和によってRNAの品質が低下する可能性があるためです。
本手法の主な制限は処理時間が長いことであり、これは臨床病理学で一般的に用いられる迅速な酸ベースのプロトコルとは対照的です20,36。研究環境では一般的に長い処理時間でも許容されますが、Morse溶液(22.5% formic acidおよび10% sodium citrate)を用いて24 h以内に脱灰させるMiaoらによるプロトコルなどの最近の研究は、空間解析に向けた骨標本作成の迅速化への関心が高まっていることを示しています20。しかしながら、酸ベースの手法は歴史的にRNA分解のリスクが非常に高く、DV200値を低下させ、最終的に空間トランスクリプトミクスとの互換性を制限します1,8,35,36。このEDTAベースのアプローチは、速度よりもRNAの保存を優先しており、Visiumなどのシーケンシングベースの空間プラットフォームとの互換性を確保しています。
BM空間的トランスクリプトーム解析における潜在的な限界は、形質細胞(PC)由来の免疫グロブリン転写産物の含有量が多く、低発現遺伝子の検出能が低下する可能性があることです。当研究グループの先行研究で適用された品質管理およびフィルタリング戦略と同様に、低品質スポットの除去を含む(<200個のUMIおよび <150個の検出遺伝子)、寄与度の低い細胞型のフィルタリング(<(1スポットあたり20%)をデコンボリューション解析時に設定し、空間トランスクリプトームデータセットで検出されたマーカー遺伝子の選択を行う。また、必要に応じて、ダウンストリーム解析において免疫グロブリン転写物を計算的にフィルタリングし、その影響を最小限に抑えることも可能である。8標的型空間トランスクリプトーム解析アプローチを用いることで、特定のアプリケーションにおいて低発現トランスクリプトの検出能をさらに向上させることができる可能性がある。
本手法の潜在的な応用範囲は広範にわたります。空間データとシングルセルデータの最近の統合により、ヒトの特殊化した骨形成ニッチや、海綿骨から放射状に広がる複雑なシグナル勾配が明らかにされています3,26。さらに、空間トランスクリプトーム解析により、加齢がECの空間的な組織化とコミュニケーションを変化させることでBM微小環境を再形成し、その結果、骨形成サポートの低下と、老化ニッチ内における炎症性シグナルネットワークの出現が引き起こされることが示されています10。また、マルチオミクスプロファイリングにより、初期の骨髄球系造血をサポートする動脈・内骨膜領域や、造血幹細胞および前駆細胞が豊富な脂肪細胞周囲帯などの、明確な微小環境近傍領域が特定されています3。MMにおいて、本プロトコルは空間的およびシングルセル的なトランスクリプトームの枠組みを統合し、疾患状態にあるマウスBMの組成および細胞間相互作用を特徴付けることを可能にします。先行研究では、悪性PCの空間的に異なる分布が明らかになり、NETosisやIL-17シグナルなど、腫瘍濃縮領域と逆相関する免疫および炎症プログラムが特定されました。加えて、悪性PC密度の増加は、エフェクターT細胞から疲弊T細胞状態への移行と相関していました。これらの知見はヒトのFFPE BMサンプルでも検証されており、疾患負荷の異なる状況におけるトランスレーショナルな関連性が実証されています8。最終的に、この調製ワークフローは、BMの石灰化構造内における複雑な細胞間相互作用を探索するための技術的基盤を提供します。
高精細な空間的遺伝子発現プラットフォームにより、ほぼ単一細胞レベルの解像度で全トランスクリプトームプロファイリングを行うことが可能です38,51,52。これらのアプローチを用いることで、本調製ワークフローを、空間的に構成された骨髄(BM)および血液腫瘍の高解像度解析へと拡張できる可能性があります。したがって、本ワークフローは、生理的および悪性造血に関する今後の研究のための技術的基盤を提供します。
開示事項
著者らは、競合する利益がないことを宣言します。MMのMIcγ1マウスモデルのノウハウおよび実験的利用に関する特許は、MIMO Biosciencesにライセンス供与されています(出願番号 PCT/EP2023/071025)。
謝辞
本研究は、Instituto de Salud Carlos IIIによる支援およびERDF A way of making Europe (PI22/00983) による共同出資、CIBERONC (CB16/12/00489)、RICORS TERAV (RD21/0017/0009) および RICORS TERAV Plus (RD24/0014/0010)、AGATA 0011-1411-2020- 000010/0011-1411-2020-000011、Departamento de Salud Gobierno de Navarra (GN2024/04)、Cancer Research UK [C355/A26819]、Accelerator Award Programに基づくFC AECCおよびAIRC、International Myeloma Foundation (Brian van Novis) および The Paula and Rodger Riney Foundation (FPへの支援) によって支援を受けました。IACは、欧州委員会のMarie Curie grant (H2020- MSCA-IF-837491)、AECC Talent grant (INVES258003CALV)、およびDepartamento de Salud, Gobierno de Navarra (GN2023/03) の支援を受けました。MCは、Ministerio de Ciencia, Innovación y UniversidadesによるFPU fellowship (FPU22/03283) の支援を受けました。また、貴重な技術的および知的支援を提供いただいたCIMA Universidad de NavarraのAdvanced Genomics Laboratoryおよび動物施設のスタッフに感謝いたします。さらに、BMサンプルの提供および卓越した共同研究にご協力いただいたClínica Universidad de Navarra (CUN) およびHospital Universitario de Navarraの病理部門に感謝いたします。MMマウスモデルを提供いただいたJosé Ángel Martínez-ClimentおよびMarta Larrayozに特段の感謝を申し上げます。空間トランスクリプトミクスに向けたマウスおよびヒトBMサンプルの処理における技術最適化、プロトコル開発、およびトラブルシューティングにおいて多大なるサポートをいただいたPatxi San Martín-Uriz、Tania López、およびEduardo Larequiに感謝いたします。また、空間トランスクリプトミクスの計算解析に従事したBeñat AricetaおよびAsier Ullateに感謝いたします。最後に、本研究に寛大にご協力いただいた患者様および健康なドナーの方々に深く感謝申し上げます。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1.5 mLチューブ | Eppendorf | 15625367 | |
| 100 mL滅菌済み容器 | デルタラボ | 723-510 | |
| 4200 TapeStation | Agilent | G2991A | キャピラリー電気泳動–RNA完全性評価のためのベースシステム |
| 50 mL滅菌済み容器 | IberoMed | REOR001 | |
| 50 mLチューブ | FALCON | 352070 | |
| 高度なPAPペン | Ted Pella 22309 | Z377821-1EA | 疎水性バリアペン |
| ウサギで産生された抗PRRX1抗体 | Sigma-Aldrich | HPA051084 | |
| BSA(ウシ血清アルブミン) | Sigma-Aldrich | A9418-50G | |
| カセット | KartellLABWARE | 2921 | |
| CD271 (NGF受容体) モノクローナル抗体 (ME20.4) | Invitrogen | 14-9400-82 | |
| CD31, 内皮細胞(濃縮液)クローン JC70A | Agilent Dako | M0823 | |
| カバーガラス | Fisher Scientific | 12-544-EP | 50 mm x 24 mm |
| DAPI (DAPI含有VECTASHIELD退色防止封入剤) | Vector Laboratories | H-1200-10 | |
| 脱パラフィン溶液 | Qiagen | 19093 | |
| リン酸緩衝生理食塩水 | Thermo Scientific | AAJ67802AP | Thermo Scientific Chemicals リン酸緩衝生理食塩水 (DPBS, 1×)、ダルベッコ(Dulbecco)処方、カルシウム不含、マグネシウム不含 |
| 組織学的封入剤DPX | Sigma-Aldrich | 06522-500ML | |
| EDTA | Thermo Scientific | 15748687 | エチレンジアミン四酢酸 (EDTA)、0.5 M溶液、分子生物学グレード、超純粋 |
| 包埋装置 | Leica Biosystems | 14 0388 81101 | Leica EG1150H |
| Emcn抗体 (V.7C7) | Santa Cruz Biotechnology | sc-65495 | |
| Ensemblリファレンスゲノム(GRCh38 / mm10、リリース105) | EMBL-EBI | 翻訳するソーステキストが提供されていません。翻訳対象のテキストを入力してください。 | リードアライメントに使用したリファレンスゲノム。 |
| エオシン | Millipore Sigma | HT110116 | |
| エタノール | Millipore Sigma | E7023-500ML | 外科用鋏 |
| Falc Instruments B-I 組織学用ウォーターバス | Falc | 610.1030.00 | |
| 4% ホルマリン | PanReac AppliChem | 2524311315 | 3.7% ホルムアルデヒド–臨床診断用(CE-IVD)として、pH=7に緩衝し、メタノールで安定化した4.0% w/v溶液 |
| ガラススライド染色ラック | WHEATON | Z710970-3EA | |
| ガラス製染色瓶 | ブランド | BR472200-10EA | マスターサイクラー 50倍 |
| グリセロール | Sigma-Aldrich | C3H8O3 | |
| ヤギ抗マウスIgG (H+L) クロス吸着二次抗体、Alexa Fluo 568 | Invitrogen | A11004 | |
| ヤギ抗マウスIgG (H+L) 高度クロス吸着二次抗体、Alexa Fluo Plus 488 | Invitrogen | A32723 | |
| ヤギ抗ウサギ IgG (H+L) 高度クロス吸着二次抗体、Alexa Fluor 488 | Invitrogen | A11034 | |
| ヘマトキシリン | Millipore Sigma | MHS16 | |
| 高感度RNA ScreenTape | Agilent | 5067-5579 | RNA完全性の評価 |
| 高感度RNA ScreenTapeラダー | Agilent | 5067-5581 | RNA完全性の評価 |
| High Sensitivity RNA ScreenTape サンプルバッファー | Agilent | 5067-5580 | RNA完全性評価 |
| 高解像度顕微鏡 | Leica Biosystems | 翻訳対象のテキストが提供されていません。翻訳する英文をご提示ください。 | Aperio CS2スキャナー |
| 塩酸 (0.1 N HCl) | Fisher Chemical | SA54-1 | |
| Illumina NextSeq 2000 プラットフォーム | Illumina | 20038897 | |
| Invitroge ヤギ抗ラット IgG (H+L) クロス吸着二次抗体, Alexa Fluo 568 | Invitrogen | A11077 | |
| アイリス剪刀 - ToughCut | F.S.T | 14058-11 | |
| Isovet | BRAUN | BR3009 | イソフルラン |
| 炭酸リチウム | Merck | 554-13-2 | |
| Loupe Browser (v6.0.0) | 10x Genomics | 該当事項なし | HE画像を可視化し、Visiumスポットをキュレーションするために使用されるソフトウェア。解析パイプラインによって生成された.cloupeファイルを開くことができます。 |
| 金属包埋モールド | バイオオプティカ | 07-BM24256 | |
| 顕微鏡スライドグラス | アバントール | 631-0108 | Superfrost Plus マイクロスコープスライド |
| ミクロトーム刃 | 羽毛 | **要約** 本ビデオでは、野生型および変異型Krasタンパク質を発現する細胞株を用いて、Krasタンパク質の活性状態を定量的に評価するための、プルダウンアッセイを用いた生化学的な手法を紹介します。Rasファミリータンパク質は、不活性なGDP結合型と活性なGTP結合型の間でスイッチすることで、細胞内のシグナル伝達を制御しています。本プロトコルでは、GTP結合型Rasに特異的に結合するRaf-1のRBD(Ras結合ドメイン)を利用して活性型Krasを捕捉し、ウェスタンブロッティングによってその量を定量します。これにより、Krasの活性化状態や、阻害剤による活性抑制効果を分析することが可能になります。 **キーワード** Kras, プルダウンアッセイ, GTP結合型, Ras活性化, Raf-1 RBD, ウェスタンブロッティング, シグナル伝達, 細胞溶解液 | |
| ミクロトーム HM 340E | Epredia | 該当なし | HM 340Eモデル |
| 針 | BD | 301156 | BD Microlanc 3 針 21G 1インチ (25mm) |
| Nikon Optiphot-2 | ニコン | 71052 | 明視野光学顕微鏡 |
| パラフィン | PanReac AppliChem | 256993 | パラフィン M.P. 55–58°C 臨床診断用可塑剤入りDMSOペレット(CE-IVD) |
| シャーレ | Corning | CLS430167-100EA | |
| プラスチック包埋型 | バイオ・オプティカ | 07-MP7070 | |
| ポッツ・スミス鉗子 | F.S.T | 11012-18 | ピンセット |
| Qubit 3.0 フルオロメーター | Invitrogen | Q33216 | |
| Qubitアッセイチューブ | Invitrogen | Q32856 | |
| Qubit RNA HS Assay Kit | Invitrogen | Q32855 | |
| RNaseフリー 1.5 mL マイクロ遠心チューブ | Thermo Scientific | AM12400 | |
| RNaseフリー水 | メルク | W4502 | |
| RNaseZap RNase除去剤 | Invitrogen | AM9780 | 除染溶液 |
| RNeasy FFPE Kit (50) | Qiagen | 73504 | 全RNA抽出 |
| SCTransform (v0.3.5) | Satija研究室 | 入力がありません。翻訳するテキストを提供してください。 | Seuratに実装されている分散安定化正規化法。 |
| Seurat (v4.3.0.1) | Satija研究室 | 該当なし | シングルセルおよび空間トランスクリプトーム解析に使用されるRパッケージ。 |
| Space Ranger (v2.0.1) | 10x Genomics | 該当なし | Visiumデータセットのデマルチプレクシング、アライメント、およびフィーチャー・バーコードマトリックスの生成に使用されるソフトウェア。 |
| Stlimeスカルペル | Schreiber GmbH | 51-11-030 | |
| STutility (v1.1.1) | バーゲン研究室 | 該当なし | 空間トランスクリプトーム解析の可視化および統合に用いられるRパッケージ。 |
| 外科用メス刃 23番 | Swann-Morton | 210 | 外科用メス刃 |
| サーマルサイクラー | Eppendorf | 6313000018 | |
| Tween-200 | Sigma-Aldrich | P2287-500ML | |
| Vectra Polaris | PerkinElmer | CLS143455 | IF視覚化のためのマルチスペクトルイメージングプラットフォーム |
| Visium アクセサリーキット 10X Genomics | 10x Genomics | PN-1000194 | |
| Visium CytAssist | 10x Genomics | PN-1000441 | |
| Visium Human Transcriptome Probe Kit Small 10X Genomics | 10x Genomics | PN-1000363 | |
| Visium Mouse Transcriptome Probe Kit Small 10X Genomics | 10x Genomics | PN-1000365 | |
| Visium 空間遺伝子発現スライドキット 4反応 10X Genomics | 10x Genomics | PN-1000188 | |
| キシレン | Panreac | 214736 | キシレン、分析用異性体混合物、ACS、ISO |
参考文献
- Cooper RA, et al. Spatial transcriptomic approaches for characterising the bone marrow landscape: pitfalls and potential. Leukemia. 2025;39(2):291-295.
- Mercier FE, Ragu C, Scadden DT. The bone marrow at the crossroads of blood and immunity. Nat Rev Immunol. 2012;12(1):49-60.
- Bandyopadhyay S, et al. Mapping the cellular biogeography of human bone marrow niches using single-cell transcriptomics and proteomic imaging. Cell. 2024;187(12):3120-3140.e29.
- Tikhonova AN, et al. The bone marrow microenvironment at single-cell resolution. Nature. 2019;569(7755):222-228.
- Baccin C, et al. Combined single-cell and spatial transcriptomics reveal the molecular, cellular and spatial bone marrow niche organization. Nat Cell Biol. 2020;22(1):38-48.
- Kunisaki Y, et al. Arteriolar niches maintain haematopoietic stem cell quiescence. Nature. 2013;502(7473):637-643.
- Kusumbe AP, Ramasamy SK, Adams RH. Coupling of angiogenesis and osteogenesis by a specific vessel subtype in bone. Nature. 2014;507(7492):323-328.
- Muiños-Lopez E, et al. Characterization of the bone marrow architecture of multiple myeloma using spatial transcriptomics. Commun Biol. 2025;8(1):1620.
- Gui G, et al. Single-cell spatial transcriptomics reveals immunotherapy-driven bone marrow niche remodeling in AML. Sci Adv. 2025;11(28):eadw4871.
- Cenzano I, et al. Single-cell profiling reveals RAB13+ endothelial cells and profibrotic mesenchymal cells in aged human bone marrow. Aging Cell. 2026;25(4):e70475.
- de Jong MME, et al. The multiple myeloma microenvironment is defined by an inflammatory stromal cell landscape. Nat Immunol. 2021;22(6):769-780.
- de Jong MME, et al. An IL-1β-driven neutrophil–stromal cell axis fosters a BAFF-rich protumor microenvironment in individuals with multiple myeloma. Nat Immunol. 2024;25(5):820-833.
- Cenzano I, et al. Stromal and endothelial transcriptional changes during progression from MGUS to myeloma and after treatment response. Nat Commun. 2026;17:74389.
- Ye J, et al. Deconvolution of the hematopoietic stem cell microenvironment reveals a high degree of specialization and conservation. iScience. 2022;25(5):104225.
- Chen L, et al. An inflammatory T-cell-stromal axis contributes to hematopoietic stem/progenitor cell failure and clonal evolution in human myelodysplastic syndrome. Nat Commun. 2025;16(1):10041.
- Prummel KD, et al. Inflammatory stromal and T cells mediate human bone marrow niche remodeling in clonal hematopoiesis and myelodysplasia. Nat Commun. 2025;16(1):10042.
- De Jonghe J, et al. scTrends: A living review of commercial single-cell and spatial 'omic technologies. Cell Genom. 2024;4(12):100723.
- van den Brink SC, et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 2017;14(10):935-936.
- Asp M, Bergenstråhle J, Lundeberg J. Spatially resolved transcriptomes—next generation tools for tissue exploration. Bioessays. 2020;42(10):1900221.
- Miao J, et al. A practical protocol of processing mineralized tissue for Visium spatial transcriptomics. Mechanobiol Med. 2025;3(4):100163.
- Baldwin M, et al. A roadmap for delivering a human musculoskeletal cell atlas. Nat Rev Rheumatol. 2023;19(11):738-752.
- Duan H, Cheng T, Cheng H. Spatially resolved transcriptomics: advances and applications. Blood Sci. 2023;5(1):1-12.
- Xiao X, et al. Spatial transcriptomic interrogation of the murine bone marrow signaling landscape. Bone Res. 2023;11(1):59.
- Jain S, Eadon MT. Spatial transcriptomics in health and disease. Nat Rev Nephrol. 2024;20(10):659-671.
- Tilburg J, et al. Spatial transcriptomics of murine bone marrow megakaryocytes at single-cell resolution. Res Pract Thromb Haemost. 2023;7(4):100158.
- Lin W, et al. Mapping the spatial atlas of the human bone tissue integrating spatial and single-cell transcriptomics. Nucleic Acids Res. 2025;53(2):gkae1298.
- Marx V. Method of the Year: spatially resolved transcriptomics. Nat Methods. 2021;18(1):9-14.
- Yue L, et al. A guidebook of spatial transcriptomic technologies, data resources and analysis approaches. Comput Struct Biotechnol J. 2023;21:940-955.
- Joglekar A, et al. A spatially resolved brain region- and cell type-specific isoform atlas of the postnatal mouse brain. Nat Commun. 2021;12(1):463.
- Madissoon E, et al. A spatially resolved atlas of the human lung characterizes a gland-associated immune niche. Nat Genet. 2023;55(1):66-77.
- Wang F, et al. Single-cell and spatial transcriptome analysis reveals the cellular heterogeneity of liver metastatic colorectal cancer. Sci Adv. 2023;9(24):eadf5464.
- Robinson MH, et al. Regulation of antigen-specific T cell infiltration and spatial architecture in multiple myeloma and premalignancy. J Clin Invest. 2023;133(15):e167303.
- Wehrle E, et al. Protocol for preparing formalin-fixed paraffin-embedded musculoskeletal tissue samples from mice for spatial transcriptomics. STAR Protoc. 2024;5(2):103089.
- Sangeetha R, Uma K, Chandavarkar V. Comparison of routine decalcification methods with microwave decalcification of bone and teeth. J Oral Maxillofac Pathol. 2013;17(3):386-391.
- Yip RKH, et al. Profiling the spatial architecture of multiple myeloma in human bone marrow trephine biopsy specimens with spatial transcriptomics. Blood. 2025;146(15):1837-1849.
- Miquelestorena-Standley E, et al. Effect of decalcification protocols on immunohistochemistry and molecular analyses of bone samples. Mod Pathol. 2020;33(8):1505-1517.
- Ambrosi TH, et al. Human skeletal development and regeneration are shaped by functional diversity of stem cells across skeletal sites. Cell Stem Cell. 2025;32(5):811-823.e11.
- 10x Genomics. Visium Spatial Platform. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/platforms/visium#assays
- Amemiya K, et al. Influence of formalin fixation duration on RNA quality and quantity from formalin-fixed paraffin-embedded hepatocellular carcinoma tissues. Pathol Int. 2023;73(12):593-600.
- Srinivasan M, Sedmak D, Jewell S. Effect of fixatives and tissue processing on the content and integrity of nucleic acids. Am J Pathol. 2002;161(6):1961-1971.
- Nam SK, et al. Effects of fixation and storage of human tissue samples on nucleic acid preservation. Korean J Pathol. 2014;48(1):36-42.
- 10x Genomics. Visium Spatial Gene Expression Reagent Kits for FFPE User Guide. Document CG000407, Revision E. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/support/spatial-gene-expression-ffpe/documentation/steps/library-construction/visium-spatial-gene-expression-reagent-kits-for-ffpe-user-guide
- Eccher A, et al. Pathology laboratory archives: conservation quality of nucleic acids and proteins for NSCLC molecular testing. J Pers Med. 2024;14(4):333.
- Bai Z, et al. Spatially exploring RNA biology in archival formalin-fixed paraffin-embedded tissues. Cell. 2024;187(23):6760-6779.e24.
- 10x Genomics. Visium CytAssist Spatial Gene Expression for FFPE—Tissue Preparation Guide. Document CG000518, Revision D. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/support/cytassist-spatial-gene-expression/documentation/steps/tissue-prep/visium-cyt-assist-spatial-gene-expression-for-ffpe-tissue-preparation-guide
- 10x Genomics. Visium CytAssist Spatial Gene Expression Reagent Kits for FFPE User Guide. Document CG000495, Revision G. Pleasanton (CA): 10x Genomics. 2026. Available from: https://www.10xgenomics.com/support/cytassist-spatial-gene-expression/documentation/steps/library-construction/visium-cyt-assist-spatial-gene-expression-reagent-kits-for-ffpe
- Agilent Technologies. High Sensitivity RNA ScreenTape assay for TapeStation systems quick guide. Version A.01.05. Santa Clara (CA): Agilent Technologies. 2024: Available from: https://www.agilent.com/cs/library/usermanuals/public/HS-RNA_QuickGuide.pdf
- Agilent Technologies. Agilent 4200 TapeStation system—System manual. Publication G2991-90000, Version A.02.02. Santa Clara (CA): Agilent Technologies. 2024: Available from: https://download.chem.agilent.com/software/4200_tapestation_user_info_package_v2/tapestation%20user%20information/tapestation%20manuals/agilent%204200%20tapestation%20system%20manual_g2991-90000.pdf
- Larrayoz M, et al. Preclinical models for prediction of immunotherapy outcomes and immune evasion mechanisms in genetically heterogeneous multiple myeloma. Nat Med. 2023;29(3):632-645.
- Wang S. Resolving the bone – optimizing decalcification in spatial transcriptomics and molecular pathology. J Histotechnol. 2025;48(1):68-77.
- Oliveira MF, et al. High-definition spatial transcriptomic profiling of immune cell populations in colorectal cancer. Nat Genet. 2025;57(6):1512-1523.
- Bourgain-Chang E, Kuang X, Cang Z, Nie Q. Reconstructing single-cell resolution from spatial transcriptomics with CellRefiner. Nat Commun. 2026;17(1):3304.
再版と許可
この記事は公開されました
動画は近日公開