本研究では、全身性エリマトデスと習慣性流産との関係を調査し、今後の研究の候補バイオマーカーとしてIFI27を同定します。
研究記事
メンデルランダム化解析とバイオインフォマティクスにより、全身性エリテマトーゼにおける習慣性流産の候補バイオマーカーとしてIFI27を同定
* These authors contributed equally
この記事について
サマリー
要約
全身性エリテマトーデス(SLE)は不良妊娠転帰に関連しているが、習慣性流産(RPL)との因果関係および共通の分子特性は依然として不明である。本研究では、双方向の2サンプルメンデリンランダム化(MR)とトランスクリプトームバイオインフォマティクス解析を統合し、この関係を調査して候補となる共通バイオマーカーを同定した。大規模で重複のない欧州系のゲノムワイド関連解析(GWAS)要約統計量を提供しているため、FinnGenとUK Biobankを選定した。GSE61635(血液;|log₂ fold change| > 1)およびGSE165004(子宮内膜;|log₂ fold change| > 0.5)から、補正後 P < 0.05を用いて変動発現遺伝子(DEG)を同定し、続いて機能濃縮解析、タンパク質-タンパク質相互作用(PPI)解析、ハブ遺伝子スクリーニング、Least Absolute Shrinkage and Selection Operator(LASSO)回帰、GSE50772およびGSE198700を用いた外部検証、受信機特性曲線(ROC)解析、および単一サンプル遺伝子セット濃縮解析(ssGSEA)を実施した。遺伝的に予測されたSLEは、統計的に有意ではあるが定量的にわずかな自然流産の増加と関連していた(逆分散加重法 [IVW] オッズ比 [OR] = 1.01, 95% 信頼区間 [CI] = 1.00–1.02; P < 0.001)。操作変数の強度は十分であり、感度解析では重大な不均一性、方向性多面発現、または影響力のある単一変異は検出されなかった。59個の共通DEGは、抗ウイルス免疫応答、細胞接着、およびアポトーシス関連プロセスに濃縮されていた。IFI27はSLEの血液で一貫して過剰発現していたが、RPLの子宮内膜および絨毛膜絨毛では低発現であり、一方でCXCL11は一貫した外部検証が得られなかった。回顧的ROC解析の結果、曲線下面積(AUC)はSLEで0.822、RPLで0.872であった。計算的に推論されたssGSEAスコアは、IFI27の発現とTヘルパー2(Th2)細胞を含むいくつかの免疫細胞シグネチャーとの間に相関があることを示した。これらの知見は、IFI27がSLEとRPLに共通する候補バイオマーカーであることを示しているが、その生物学的および臨床的な意義を検証するためには、前向きな臨床的および実験的な研究が必要である。
概要
全身性エリマトーデス(SLE)は、多臓器の合併症と慢性的なが免疫調節不全を特徴とする複雑な自己免疫疾患である1。SLEにおける病理学的異常は、主に適応免疫応答の障害と抗原抗体複合体の沈着に起因し、自己免疫介在性の組織損傷および臓器障害を引き起こす2,3。SLEの世界的な発症率は10万人年あたり約5.14(1.4–15.13)例であり、女性における推定発症率は10万人年あたり8.82(2.4–25.99)例である4。SLEはあらゆる年齢層の人々に影響を及ぼすが、主に生殖年齢の女性に発症する5,6。SLEを合併した妊婦は、反復流産、死産、早産、子宮内発育不全などの不良妊娠転帰のリスクが高まる7,8。反復妊娠喪失(RPL)は、妊娠20–24週以前の流産が2回以上認められることと定義される9。報告されている有病率は約2.6%であり10、臨床的に重要な生殖器合併症となっている。SLEを合併した妊婦の約20%が流産を経験し11、SLEはRPLの重要なリスク因子として認識されている12。提案されているメカニズムには、ホルモンの変動や免疫調節不全が含まれる。抗カルジオリピン抗体やループスアンチコアグラントなどのバイオマーカーが、SLE患者における不良妊娠転帰の潜在的な予測因子として研究されてきた11。これらの自己抗体は、胎盤の栄養膜細胞に結合し、栄養膜細胞のシグナル伝達、増殖、浸潤を変化させ、ホルモンおよびサイトカインの分泌を調節し、アポトーシスを増加させることで、妊娠結果の悪化に寄与すると考えられている13。加えて、抗リン脂質抗体症候群の主要抗原であるβ2-GPI(beta-2 glycoprotein I)は、胎盤組織に発現している。抗β2-GPI抗体がβ2-GPIに結合すると、栄養膜細胞の増殖と分化が抑制され、胎盤欠損が生じる。この相互作用はまた、破壊的なサイトカイン産生と補体活性化を特徴とする前炎症性環境を促進し、胎盤血栓症および反復流産に寄与する14,15。しかし、これまでの研究では、脱落膜などの局所的な生殖組織の詳細な解析が不足していることが多く、全身性のバイオマーカーと局所的な病理学的変化を相関させる能力が制限されていた。さらに、SLEを合併した妊娠の管理および不良妊娠転帰の予防は依然として困難である。遺伝的感受性はSLEの発症に関与しており、遺伝的変異はRPLの病態生理にも関与しているとされる16,17。それにもかかわらず、SLEとRPLの間に因果関係が存在するかどうか、またそれらの共存の背景にある分子メカニズムや共通遺伝子は依然として不明である。
メンデルランダム化(MR)は、遺伝的変異を操作変数として用いることで、曝露が疾患アウトカムに及ぼす因果効果を推定する、因果推論において確立された手法である18。ジェノタイプとフェノタイプの関係を利用することで、MRは従来の観察研究と比較して、交絡因子や逆の因果関係によるバイアスを低減できる。並行して、ゲノムマイクロアレイプラットフォームとハイスループットシーケンシングの進歩により、トランスクリプトームプロファイリングを通じて候補となる診断バイオマーカーや治療標的を特定するバイオインフォマティクス解析が可能となった。これらの相補的なアプローチを統合し、因果的な遺伝学的根拠と疾患関連の遺伝子発現パターンを組み合わせることで、SLEとRPLの関係についてより包括的な理解が得られる可能性がある。したがって、本研究では、SLEとRPLの潜在的な因果関係を調査し、共通の候補バイオマーカーおよび生物学的パスウェイを特定し、今後の検証に向けた標的を優先順位付けすることを目的とした。これらの目的を達成するため、解析ワークフローを以下のように事前に規定した。まず、因果方向を評価するための双方向MRを行い、次いで独立した差分的遺伝子発現解析とトランスクリプトームの統合を実施した。その後、バイオマーカーの優先順位付けのためにタンパク質間相互作用(PPI)ネットワーク解析およびLASSO(least absolute shrinkage and selection operator)回帰を行い、外部発現検証と受信者動作特性(ROC)解析を実施した。最後に、免疫細胞シグネチャーとの関連を評価するために単一サンプル遺伝子セット濃縮解析(ssGSEA)を行った。この段階的なワークフローを図1にまとめる。
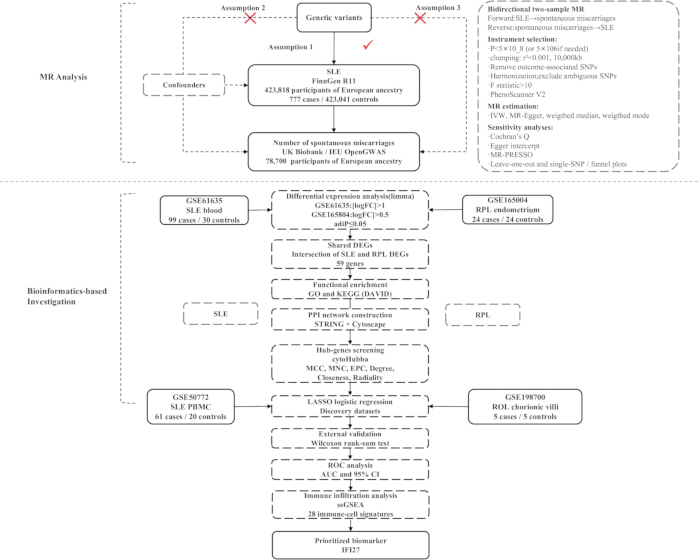
図1研究デザインおよび解析ワークフロー。
上段のパネルは、ゲノムワイド関連解析(GWAS)のサマリー統計量を用いて、全身性エリテマトーデス(SLE)と自然流産回数の関連性を評価した双方向2サンプルメンデルランダム化(MR)解析を示している。ここでは、操作変数の選択、連鎖不平衡クランピング、メンデルランダム化(MR)解析、および感度分析について要約されている。下段のパネルは、バイオインフォマティクスのワークフローの概要を示しており、これには、発現変動解析、共通の発現変動遺伝子(DEG)の同定、機能濃縮解析、タンパク質相互作用(PPI)ネットワークの構築、ハブ遺伝子のスクリーニング、LASSO(least absolute shrinkage and selection operator)回帰、外部検証、受信者動作特性(ROC)解析、シングルサンプル遺伝子セット濃縮解析(ssGSEA)、および候補バイオマーカーであるIFI27の優先順位付けが含まれる。IVW:逆分散加重法、KEGG:京都遺伝子・ゲノム百科事典、GO:ジーンオントロジー。 この図の拡大版を表示するには、ここをクリックしてください。
プロトコル
本研究では、公開されており匿名化されたゲノムワイド関連解析(GWAS)のサマリー統計量およびトランスクリプトームデータセットの二次解析のみを行ったため、倫理承認は不要であった。新しい参加者の募集、生物学的試料の収集、および個人レベルで識別可能な情報へのアクセスは行われていない。元のFinnGen、UK Biobank、およびGene Expression Omnibusの研究では、それぞれの機関、国家、およびデータベース固有の要件に従って倫理承認およびインフォームドコンセントが得られたことが報告されている。本研究で使用したすべてのデータセットは、適用されるデータベース利用ポリシー、データアクセス条件、および倫理ガイドラインに従ってアクセスおよび解析された。著者は参加者の再識別を試みていない。したがって、この二次解析に追加の書面によるインフォームドコンセントは不要であった。本研究の内容は、MR解析とバイオインフォマティクス解析の2つのパートで構成されている(図 1)。本研究は完全に計算機上で行われ、公開されているサマリーレベルのGWASおよびトランスクリプトームデータセットを使用した。ウェットラボの試薬や消耗品は使用していない。
MR解析
GWASサマリー統計量のデータソース、取得および前処理:
ループス紅斑のGWASサマリー統計量は、フィンランドの人口ベースコホートであるFinnGen Release 11 (finngen_R11_L12_LUPUS; RRID:SCR_022254)から取得した。表現型はICD-10コード L93を用いて定義され、症例777名と対照群423,041名の計423,818名の参加者が含まれた。FinnGenのサマリー統計量ファイルは、圧縮されたタブ区切り形式でFinnGenパブリックデータポータルからダウンロードし、データセットを曝露として使用するかアウトカムとして使用するかに応じて、TwoSampleMRのread_exposure_data()またはread_outcome_data()関数を用いてRにインポートした。rsID、染色体、ゲノム位置、エフェクトアレル、その他のアレル、エフェクトアレル頻度、ベータ係数、標準誤差、および関連性のP値を保持した。
自然流産の回数に関する要約統計量は、78,700人の参加者を対象としたIEU OpenGWASリソース(ukb-b-419; RRID:SCR_012815)を通じてUK Biobankから取得しました。前方解析では、選択したFinnGenの一塩基多型(SNPs)とアウトカムとの関連性をextract_outcome_data(outcomes = "ukb-b-419", proxies = FALSE)を用いて抽出しました。後方解析では、全身性エリマトーゼに関連するSNPsをextract_instruments(outcomes = "finngen_R11_L12_LUPUS", clump = FALSE)を用いて取得し、その後、UK Biobankの要約統計量ファイルから対応するSNPの関連性を抽出しました。双方向MR解析に使用したGWASデータセットの特徴を表1にまとめます。
| 形質 | サンプルサイズ | 家系 | コンソーシアム | 年 | GWASデータセット識別子 |
| 全身性エリテマトーデス | 4,23,818 | 欧州の | FinnGen (RRID: SCR_022254) | 2024 | finngen_R11_L12_ループス |
| 自然流産回数 | 78,700 | 欧州の | UK Biobank (RRID: SCR_012815) | 2018 | ukb-b-419 |
表 1: 双方向メンデリアンランダム化分析に使用したゲノムワイド関連解析(GWAS)の要約統計量。
本表は、順方向および逆方向のメンデリアンランダム化分析のエクスポージャーおよびアウトカムのソースとして使用した、公開済みのゲノムワイド関連解析データセットをまとめたものであり、サンプルサイズ、祖先、データソース、データ公開年、およびデータセット識別子が含まれている。
FinnGenとUK Biobankは、重複しないソース集団から得られた、主にヨーロッパ系祖先の大規模で公開アクセス可能なデータセットを提供しており、2サンプルMRに十分なバリアントカバレッジを有しているため選定されました。曝露群とアウトカム群のサンプル間に重複は報告されていません。サマリーレベルのデータのみを使用したため、個々のゲノムデータへのアクセスは行われず、参加者レベルでの追加の正規化も実施されず、本研究の解析者による参加者の除外も行われませんでした。本研究では、元のGWASコンソーシアムによって実施されたサンプルレベルおよびバリアントレベルの品質管理手順に依拠しました。今回の解析では、以下に述べる通り、有意性フィルタリング、連鎖不平衡クランピング、アレル調和、インストルメント強度の評価、および多面発現スクリーニングを通じて、バリアントレベルで追加の品質管理を実施しました。
FinnGen Release 11はGRCh38/hg38に基づいたゲノムポジションを報告していますが、IEU OpenGWASのハーモナイズ済みデータセットおよび連鎖不平衡リファレンスリソースでは、GRCh37互換のバリアントアノテーションが使用されています。そのため、曝露およびアウトカムのバリアントは、染色体ポジション座標ではなく、主に安定したrsIDによって照合されました。ビルド間での直接的なポジション照合は行っていません。一意のrsIDを持たないバリアント、またはデータセット間でアレル情報に矛盾があるバリアントは、MR解析の前に除外されました。FinnGen Release 11のサマリー統計量にはGRCh38が使用されていますが、OpenGWASのデータはBuild 37で使用されるリファレンス配列の慣習にハーモナイズされています。したがって、これら2つのリソースを組み合わせる際には、rsIDによる照合が重要となります。
MRの研究デザイン:
我々はSTROBE-MRガイドライン(Supplementary File 1)19を厳格に遵守した。遺伝的に予測されるループス紅斑と自然流産回数との関係を評価するために、双方向の2サンプルMRデザインを用いた。順方向解析では、ループス紅斑を曝露因子とし、自然流産回数をアウトカムとした。逆方向解析では、曝露因子とアウトカムを入れ替え、インストルメント選択、連鎖不平衡クランピング、データのハーモナイゼーション、因果推定、および感度解析の一連のワークフローを同様に繰り返した。操作変数(IVs)として一塩基多型(SNPs)を用いた。全ワークフローは以下の順序で実施した:GWASサマリー統計量の取得とフォーマット作成、曝露関連SNPの選択、重複またはアノテーション不完全なバリアントの除去、連鎖不平衡クランピング、対応するアウトカム関連性の抽出、アウトカムに直接関連するSNPの除外、曝露およびアウトカムアレルの中和(ハーモナイゼーション)、インストルメント強度の算出、潜在的な交絡表現型のスクリーニング、因果効果の推定、不均一性および水平多面性の評価、Mendelian Randomization Pleiotropy RESidual Sum and Outlier(MR-PRESSO)による外れ値検出、およびleave-one-out解析と単一SNP感度解析。すべてのMR解析は、R version 4.4.2 (RRID:SCR_001905)、TwoSampleMR version 0.6.6 (RRID:SCR_019010)、MRPRESSO version 1.0 (RRID:SCR_023697)、およびforestploter version 1.1.2を用いて実施した。MR解析は3つの主要な仮定に基づいている。第一に、関連性の仮定に基づき、選択されたSNPは曝露因子と強く関連していなければならない。第二に、独立性の仮定に基づき、選択されたSNPは曝露・アウトカム間の関連を交絡させる因子から独立していなければならない。第三に、除外制限の仮定に基づき、選択されたSNPは曝露因子を通じてのみアウトカムに影響を与えなければならない20(Figure 1)。
SNP選択方法:
操作変数の選択は以下の順序で実施した:(1) P < 5 × 10⁻⁸で曝露に関連するSNPを選択し、操作変数の数が不十分な場合はP < 5 × 10⁻⁶を用いた。(2) clump_data()関数を用いて、R2 < 0.001および遺伝的距離10,000 kbで連鎖不平衡(LD)クランピングを行い、解析可能な操作変数セットを維持するために必要な場合にのみ、基準を5,000 kb以内のR2 < 0.01に緩和した。(3) P = 5 × 10⁻⁵の閾値を用いて、アウトカムと有意に関連するSNPを除外した。(4) harmonise_data()関数を用いて曝露とアウトカムのアレルを調和させ、回文構造を持つバリアントまたはその他の曖昧なバリアントを除外した。(5) 操作変数の強度をF = β2/SE2として算出し、F < 10のSNPを除外した。(6) 保持したSNPをPhenoScanner V2でスクリーニングし、SLEと妊娠喪失の関係を混絡させる可能性のある表現型を確認した21。抗リン脂質抗体(aPL)は、SLEと自然流産数の共通のリスク因子である可能性がある。個々のSNPをPhenoScanner V2で検索した。すべての候補SNPについて、デフォルトのGWASカタログを用いてPhenoScanner V2でクエリを実行し、報告されているすべてのゲノムワイド関連解析(GWAS)の関連性を取得した。有意性の閾値はP < 1 × 10⁻5に設定し、デフォルトのリファレンスゲノムビルド(GRCh37)を使用した。研究集団が欧州系であったため、欧州リファレンスパネル(proxies = "EUR")を用いてプロキシバリアント検索を有効にし、LD閾値を1,000 kbウィンドウ内でR2 > 0.8とした。その他の検索パラメータはすべてデフォルト設定のままとした。あらかじめ指定した混絡因子である抗リン脂質抗体(aPL)と有意な関連を示したSNPは、多面発現性の可能性があるとみなし、メンデルランダム化の除外制約仮定への違反を最小限に抑えるために、最終的な操作変数セットから除外した。順方向および逆方向のMR解析に保持された操作SNPを、それぞれ付録表1および2に記載した。
統計解析:
操作変数の選択およびアレル調和の後、TwoSampleMRのmr()関数を用いて因果推論の推定値を算出した。解析ワークフローは以下の順序で実施した。まず、逆分散加重法(IVW)、MR-Egger回帰、加重中央値法、および加重モード法の4つのMR法を用いて、全般的な因果効果を推定した。自然流産の回数およびSLEに関する効果推定値は、オッズ比および対応する95%信頼区間として報告し、 P 値。すべての含まれるSNPが有効な操作変数であり、水平多面発現が存在しない場合、IVW法は高い統計学的検出力を提供するため、主解析として指定した。しかし、水平多面発現が存在する場合、IVW推定値にバイアスが生じる可能性がある。22水平多面発現の可能性が存在する場合における因果推論を評価するため、主にMR-Egger回帰を用いた。23加重中央値法では、分析ウェイトの少なくとも50%が有効な操作変数(IV)に由来している必要があります。この手法は、不均一性が存在するが水平多面発現が存在しない場合に最適です。24加重モード(weighted mode)は、同様の因果効果を持つ操作変数のクラスターを特定し、最大のクラスターからその効果を推定します。254つのMR法を用いて得られた効果推定値は、以下に示されています。 図2次に、mr_heterogeneity() 関数を用いて実装された Cochran の Q 検定により、SNP 特異的な因果推定値間の異質性を評価した。Q 統計量は、個々の SNP 推定値と全体的な因果推定値との偏差の二乗の加重和を表している。Q 検定は P 値 < 0.05を異質性の根拠とし、異質性が認められた場合にはランダム効果IVWモデルを適用した。有意な異質性が認められない場合は、固定効果IVWモデルを用いた。26第三に、mr_pleiotropy_test()関数を用いて実装されたMR-Egger切片検定により、方向性水平多面発現を評価した。切片が0と有意に異なる場合、 P < 0.05を方向性のある水平多面発現性の根拠とした。第4に、外れ値的な多面発現効果を持つSNPを検出するため、MRPRESSOパッケージ(RRID:SCR_023697)のmr_presso()関数を用いてMR-PRESSO法を実施した。27外れ値が検出された場合は、それらを除去し、残りのインストゥルメントを用いて因果推論分析を繰り返した。MR-PRESSOのグローバルテストを用いて全体的な水平多面発現性を評価し、外れ値の除去が因果推定値に実質的な変化をもたらしたかどうかを評価する際にディストーションテストを検討した。5番目に、mr_leaveoneout()関数を用いて、leave-one-out感度分析を行った。この分析では、各SNPを順次除外して、残りのSNPを用いてプールされた因果推定値を再計算した。結果はmr_leaveoneout_plot()を用いて可視化し、全体的な関連性が単一のインストゥルメントによって不当に牽引されていないかを確認した。6番目に、mr_singlesnp()関数を用いて、個々のSNP固有の推定値を算出した。これらの推定値を用いてmr_funnel_plot()でファンネルプロットを作成し、方向性を持つ水平多面発現に起因する可能性のある非対称性を視覚的に評価した。異なるMR法から得られた効果推定値と信頼区間を表示するため、forestploter(バージョン1.1.2)を用いてサマリーフォレストプロットを作成した。フォワードMR散布図、SNP固有のフォレストプロット、leave-one-out分析、およびファンネルプロットを以下に示す。 補足図1–4、それぞれ。
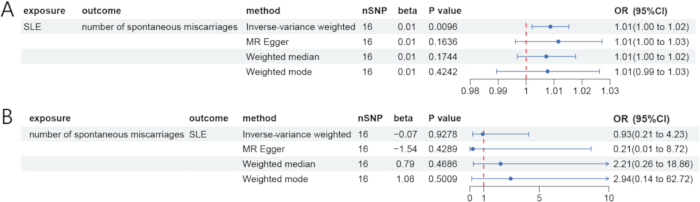
図2双方向メンデルランダム化分析の結果。
(A) 全身性エリテマトーデス(SLE)を暴露、自然流産回数をアウトカムとした前方メンデルランダム化(MR)解析のフォレストプロット。(B) 自然流産回数を暴露、SLEをアウトカムとした逆方向MR解析のフォレストプロット。効果推定値は、逆分散加重法、MR-Egger法、加重中央値法、および加重モード法によるオッズ比(OR)および95%信頼区間(CI)として提示されている。SNP:一塩基多型。 この図の拡大版を表示するには、ここをクリックしてください。
IVW推定値がP < 0.05で統計的に有意であり、MR-Egger、加重中央値、および加重モードの推定値がIVW推定値と一致する方向を示し、かつ不均一性、多面性、MR-PRESSO、またはleave-one-out感度分析によって結果が実質的に変化しなかった場合に、因果関係が支持されると考えた。すべての統計検定は両側検定とした。
バイオインフォマティクス解析
マイクロアレイデータ:
トランスクリプトームデータセットは、Gene Expression Omnibus (GEO; RRID:SCR_005012) データベース28から取得した。GSE61635、GSE165004、GSE50772、およびGSE198700について、処理済みのSeries Matrixファイル、サンプルのメタデータ、およびプラットフォームアノテーションファイルをダウンロードした。各データセットのプラットフォーム、組織ソース、サンプルサイズ、および解析カテゴリーを表2にまとめる。データセットが異なる組織およびマイクロアレイプラットフォームから生成されたため、各データセットは個別に前処理および解析を行った。異なるデータセット間の発現マトリックスを直接統合せず、プラットフォーム間のバッチ補正も適用しなかった。データセット間の統合は、各探索データセット内で独立して差分的発現解析を完了させた後、遺伝子シンボルのレベルでのみ実施した。
| GEOデータセット | 疾患 | プラットフォーム | 組織(Homo sapiens) | 症例 | 対照 | 実験タイプ | 寄稿者 | データセットカテゴリー |
| GSE61635 | 全身性エリテマトーデス(SLE) | GPL570 | 全血 | 99 | 30 | 発現マイクロアレイ | Greidinger EL | ディスカバリーデータセット |
| GSE165004 | 習慣性流産 (RPL) | GPL16699 | 子宮内膜 | 24 | 24 | 発現マイクロアレイ | Keleş ID29 | 探索データセット |
| GSE50772 | 全身性エリマトース (SLE) | GPL570 | 末梢血単核細胞 (PBMCs) | 61 | 20 | 発現マイクロアレイ | ケネディ WP30 | 検証データセット |
| GSE198700 | 習慣性流産 (RPL) | GPL13534 | 絨毛 | 5 | 5 | 発現マイクロアレイ | Li Y31 | 検証データセット |
表2: バイオインフォマティクス解析に使用したトランスクリプトームデータセット。
この表は、疾患、マイクロアレイプラットフォーム、組織源、サンプル数、実験タイプ、元の研究寄稿者、およびデータセットカテゴリーを含む、探索的解析および検証的解析に含まれるGene Expression Omnibus (GEO) トランスクリプトームデータセットをまとめたものである。
GSE61635は、Affymetrix Human Genome U133 Plus 2.0 Arrayプラットフォーム(GPL570)を用いて作成され、SLE患者から得られた、一部の患者の再診分を含む99件の全血アレイと、独立した健常対照群からの30件のアレイで構成されています。登録された発現マトリックスは、元の研究者によってロバスト多アレイ平均背景補正、クオンタイル正規化、プローブセット要約、およびlog2変換が既に適用されていました。したがって、二次的な背景補正やクオンタイル正規化は行っていません。患者識別子はGEOメタデータから抽出され、反復測定モデルに使用するために保持されました。
GSE165004は、Agilent SurePrint G3 Human Gene Expression v2 8×60K Microarrayプラットフォーム(GPL16699)を用いて作成されました。完全なデータセットには、24名の妊孕性コントロール、24名のRPL患者、および24名の原因不明の不妊症患者が含まれていました。本研究では、月経周期の19〜21日目に収集された24件のRPLサンプルと24件の妊孕性コントロールサンプルのみを対象とし、24件の原因不明の不妊症サンプルは、あらかじめ定義された比較範囲外であったため除外しました29。解析にはデポジターによって正規化された発現マトリックスを使用し、ボックスプロットおよび密度プロットを用いてサンプルの分布が同等であることを確認したため、アレイ間の追加的な正規化は行いませんでした。
独立したSLE検証データセットとしてGSE50772を使用し、これにはGPL570を用いて作成されたSLE患者61名および健常対照者20名の末梢血単核細胞サンプルが含まれていた30。GSE198700はGPL13534を用いて作成され、RPL患者5名および人工妊娠中絶による対照者5名の絨毛組織サンプルが含まれている31。登録されていた発現マトリックスをそのままインポートし、登録された発現値が非対数スケールで提供されていたため、log2(x + 1)を用いて一度変換を行った。この変換は、サンプルレベルの品質管理、プローブのアノテーション、遺伝子レベルの要約、候補遺伝子の検証、差分的発現解析、群間比較検定、およびROC解析を行う前の、完全な発現マトリックスに対して適用された。候補遺伝子を個別に変換することはせず、その後の検証解析において追加の対数変換は行わなかった。すべてのデータセットについて、解析前にサンプル識別子、疾患状態、組織由来、およびグループラベルを対応するGEOメタデータと照合した。品質管理には、ライブラリサイズまたは発現分布の評価、サンプルごとのボックスプロット、主成分分析、階層的クラスタリング、およびサンプル間距離ヒートマップが含まれた。品質管理評価の結果、追加で除外されたサンプルはなかった。
発現変動解析:
limma version 3.60.6 (RRID:SCR_010943) を用い、GSE61635およびGSE165004に対して独立して発現変動解析を行った。すべての発現行列は、行に遺伝子、列にサンプルを配置して整理した。発現変動の閾値は、Benjamini–Hochberg (BH) 補正後の P < 0.05 であり、|log₂ fold change| > 1 を GSE61635 に、|log₂ fold change| > 0.5 を GSE165004 にそれぞれ設定した。ボルケーノプロットは ggplot2 version 3.5.1 (RRID:SCR_014601) を用いて作成した。補正後 P 値に基づいてランク付けされた、上位50個の最も有意な発現変動遺伝子 (DEG) のヒートマップは、pheatmap version 1.0.12 (RRID:SCR_016418) を用いて作成した。共通のDEGは、Rの基本関数 intersect() を用いて、有意なSLEおよびRPLのDEGリストから公式の遺伝子シンボルを抽出して特定し、ggvenn version 0.1.16 (RRID:SCR_025300) を用いて可視化した。発現変動ヒートマップ、ボルケーノプロット、およびSLEとRPLのDEGリストの積集合は、図3に示す。
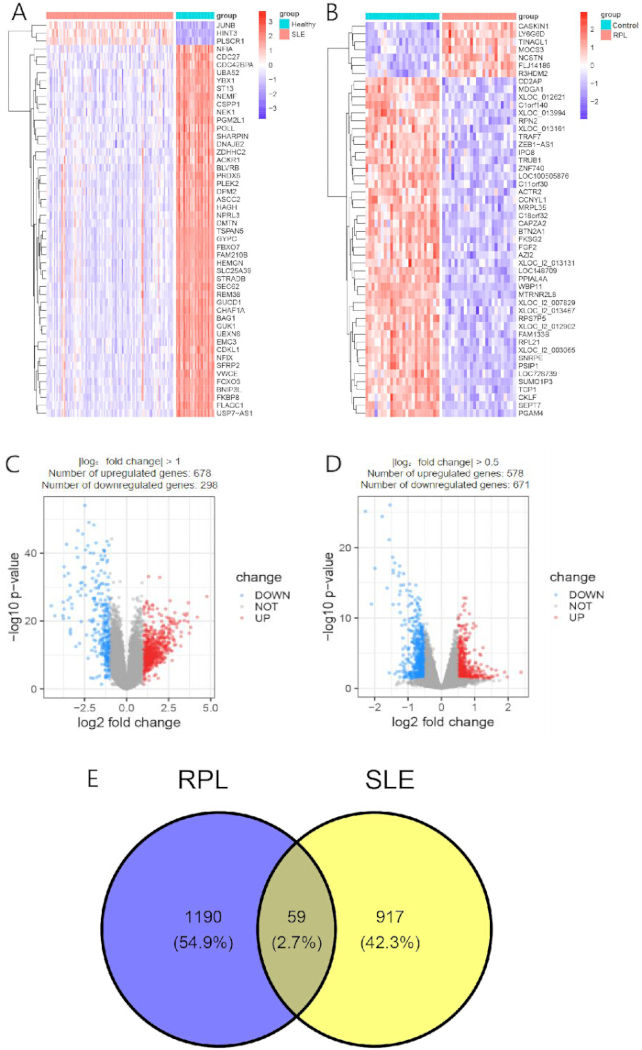
図3全身性エリテマトーデスおよび習慣性流産における発現変動遺伝子。
(A) GSE61635における全身性エリテマトーデス(SLE)患者と健康対照群との間で、最も有意な変動的に発現している50個の遺伝子(DEG)のヒートマップ。(B) GSE165004における習慣性流産(RPL)患者と妊孕性対照群との間で、最も有意な50個のDEGのヒートマップ。(C) GSE61635における遺伝子発現変動のボルケーノプロット。(D) GSE165004における遺伝子発現変動のボルケーノプロット。(E) SLEおよびRPLの探索データセットから得られた有意なDEGリストの重複を示すベン図。DEGs:変動的に発現している遺伝子。 こちらの図の拡大版を表示するには、ここをクリックしてください。
共通して変動した発現変動遺伝子(DEGs)の機能濃縮解析:
DEGの機能の分子レベルでの解析には、DAVIDオンラインツール(version 2021; RRID:SCR_001881)を使用した。32 Gene Ontology(GO)機能解析およびKyoto Encyclopedia of Genes and Genomes(KEGG)パスウェイ濃縮解析に使用された。識別子の種類として公式のヒト遺伝子シンボルをアップロードし、 Homo sapiens 種として選択されました。カスタム背景集団は、プローブ注釈および品質管理を通過し、GSE61635およびGSE165004の両方で測定可能であったすべての遺伝子の共通部分で構成されました。最小遺伝子数しきい値は2に設定され、DAVIDの修正片側フィッシャーの正確確率を表す最大EASEスコアは P 値は0.05に設定された。多重比較の制御には、DAVIDの「Benjamini」列に記載されているBenjamini–Hochberg法を用いた。機能的用語は、EASEスコアが < 0.05およびベンジャミーニ調整済み P 値は < 0.05。用語名、遺伝子数、EASEスコア、Benjamini補正済みを含むDAVIDの完全な出力結果 P 値、入力遺伝子マッピング、およびバックグラウンド遺伝子マッピングは、タブ区切りファイルとしてエクスポートされた。フィルタリング後のDAVIDの結果を視覚化するために、CNSknowallウェブサイトを使用した。GOおよびKEGGの濃縮解析結果を以下に示す。 図4A.
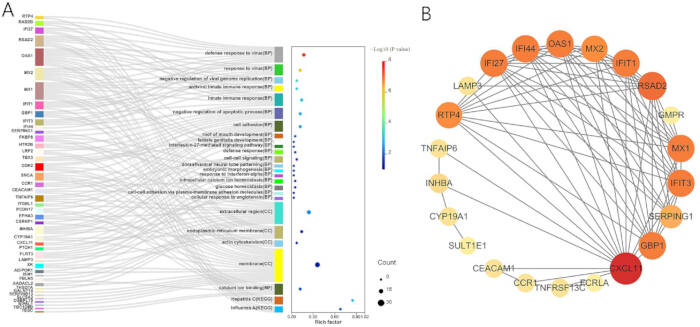
図4共通の変動遺伝子における機能濃縮分析およびタンパク質相互作用ネットワーク。
(A) 共通して変動した59個の変動遺伝子(DEG)の遺伝子オントロジー(GO)および京都遺伝子ゲノム百科事典(KEGG)濃縮分析。サンキーダイアグラムは遺伝子と濃縮されたGO項目の関係を示し、付随するバブルプロットは濃縮されたGOおよびKEGG項目をリッチファクター、遺伝子数、統計的有意性に基づいてまとめたものである。(B) STRINGを用いて59個の共通DEGから構築し、Cytoscapeで可視化したタンパク質相互作用(PPI)ネットワーク。ノードのサイズと色はネットワークの接続性を反映し、エッジは予測されるタンパク質間相互作用を示す。BP:生物学的プロセス、CC:細胞成分、MF:分子機能。 この図の拡大版を表示するには、ここをクリックしてください。
PPIネットワークおよびコア遺伝子の同定:
共通のDEGをSTRINGバージョン11.0 (RRID:SCR_005223)33にアップロードし、生物種としてHomo sapiens(タクソノミーID:9606)を選択した。機能的および物理的なタンパク質相互作用の両方を許容する完全なSTRINGネットワークを使用した。実験的根拠、キュレーション済みデータベース、共発現、テキストマイニング、遺伝子近接、遺伝子融合、遺伝子共出現を含む、利用可能なすべてのエビデンスチャネルを有効にした。
最小必要相互作用スコアは、中程度の信頼度に対応する0.400に設定した。第1シェルの相互作用因子または第2シェルの相互作用因子は追加しなかったため、ネットワークには提出された共通のDEGによってコードされるタンパク質のみが含まれた。ネットワークエッジは信頼度モードを用いて表示し、相互作用するタンパク質と統合STRINGスコアを含むタブ区切り値ファイルとしてエクスポートした。STRING信頼度スコアは、相互作用の大きさや結合強度ではなく、関連性が存在するということの信頼度を表している。
STRINGネットワークファイルをCytoscapeバージョン3.10.0 (RRID:SCR_003032)34にインポートした。ネットワークトポロジー解析35の前に、提出された他のタンパク質と相互作用のないノードを除去した。残ったネットワークは無向ネットワークとして扱った。可視化のためにSTRINGの結合スコアをエッジ属性として保持し、cytoHubbaランキングはデフォルトの重みなしトポロジー定義を用いて生成した。得られたPPIネットワークを図4Bに示す。
Hub遺伝子のランキングは、cytoHubba version 0.1 (RRID:SCR_017677) の6つのアルゴリズム(Maximal Clique Centrality (MCC)、Maximum Neighborhood Component (MNC)、Edge Percolated Component (EPC)、Degree、Closeness、Radiality)を用いて行いました36。各アルゴリズムにおいて、遺伝子を降順にランキングし、上位10個の遺伝子を抽出しました。ネットワークハブ候補は、これら6つの上位10位リストの厳密な共通部分(積集合)として定義しました。したがって、6つすべてのアルゴリズムで上位10位以内に含まれた遺伝子のみをネットワークハブとして保持しました。ランキングおよび共通部分の抽出手順はエクスポートされ、アーカイブされました。各cytoHubbaアルゴリズムによって特定された上位10個の遺伝子を表3に示します。
| 順位 | 最大クリーク中心性 (MCC) | 最大近傍成分 (MNC) | エッジ浸透成分 (EPC) | 次数中心性 | 近接中心性 | 放射状中心性 |
| 1 | RSAD2 | RSAD2 | RSAD2 | RSAD2 | RSAD2 | RSAD2 |
| 2 | RTP4 | RTP4 | RTP4 | RTP4 | RTP4 | RTP4 |
| 3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 |
| 4 | IFI27 | IFI27 | IFI27 | IFI27 | IFI27 | IFI27 |
| 5 | IFI44 | IFI44 | IFI44 | IFI44 | IFI44 | IFI44 |
| 6 | GBP1 | GBP1 | GBP1 | GBP1 | GBP1 | GBP1 |
| 7 | MX1 | MX1 | MX1 | MX1 | MX1 | MX1 |
| 8 | OAS1 | OAS1 | OAS1 | OAS1 | OAS1 | OAS1 |
| 9 | IFIT1 | IFIT1 | IFIT1 | IFIT1 | IFIT1 | IFIT1 |
| 10 | CXCL11 | CXCL11 | CXCL11 | CXCL11 | CXCL11 | CXCL11 |
表 3: 6つのcytoHubbaランキングアルゴリズムによって特定された上位10個のハブ遺伝子。
共通の発現変動遺伝子を、CytoscapeのcytoHubbaプラグインに実装されている6つのネットワークトポロジーアルゴリズムを用いてランク付けした。Maximal Clique Centrality (MCC)、Maximum Neighborhood Component (MNC)、Edge Percolated Component (EPC)、Degree、Closeness、およびRadialityの各アルゴリズムによって生成された上位10個のランク付け遺伝子を比較のために提示する。
コア遺伝子同定のためのLASSO回帰:
glmnet バージョン 4.1-8 (RRID:SCR_015505) を用い、SLEおよびRPLの探索データセットに対して独立してLASSOロジスティック回帰を実施した。予測行列は、行にサンプル、列に遺伝子を配置し、ネットワークハブ候補の正規化された発現値で構成した。疾患状態を1、対照群を0としてエンコードした。family = "binomial" および alpha = 1 を用いて、純粋なLASSOペナルティを適用した二項一般線形モデルを適合させた。予測変数は standardize = TRUE を用いて内部的に標準化し、切片を含めた。カスタムのbase Rコードを用いて、SLEおよびRPLのデータセットそれぞれに対してクラス層化10分割割り当てを生成した。各疾患状態の層において、sample(rep(seq_len(10), length.out = n)) を用いてサンプルインデックスをランダムに置換し、10個のフォールドに可能な限り均等に分配した。再現性を確保するため、各データセットのフォールド割り当てを生成する前にランダムシードを123に設定した。各疾患状態のグループに10サンプル以上が含まれていたため、すべての交差検証フォールドに症例群と対照群の両方が含まれた。得られた整数ベクトル (foldid_sle および foldid_rpl) を cv.glmnet() の foldid 引数に供給し、対応するデータセット内のすべての評価対象 λ 値に対して同一のフォールド割り当てを使用した。
モデルのフィッティングは、family = "binomial"、alpha = 1、nfolds = 10、type.measure = "deviance"、standardize = TRUE、intercept = TRUE、nlambda = 100、thresh = 1 × 10⁻7、およびmaxit = 100000を用いて行われました。ペナルティパラメータは、平均交差検証二項偏差を最小にするlambda値として定義されるlambda.minを用いて選択されました。また、感度分析の結果として、最小交差検証誤差の1標準誤差圏内にある最大のlambdaとして定義される、より保守的なlambda.1seを記録しました。LASSO法は、GSE61635およびGSE165004に対して個別に適用されました。両方の疾患特異的モデルにおいて係数が非ゼロであった遺伝子を、共通のLASSO選択候補遺伝子として定義しました。L1正則化項を導入することで、本手法は情報量の少ない遺伝子の係数を効果的にゼロに縮小させ、これにより特徴量選択が行われます37。SLEおよびRPLの探索データセットにおける係数プロファイルと10分割交差検証曲線は、図5に示しています。
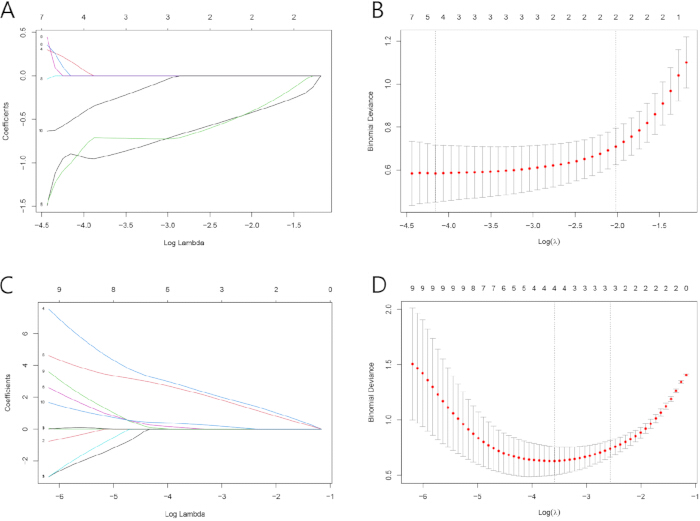
図5ネットワークハブ遺伝子のLASSO(Least Absolute Shrinkage and Selection Operator)回帰分析。
(A) 全身性エリテマトーデス(SLE)探索データセット(GSE61635)に対して、最小絶対収縮選択演算子(LASSO)ロジスティック回帰を用いて生成した係数プロファイル。(B) 最適なペナルティパラメータを決定するために用いられた10分割交差検証曲線(λ)をSLEモデルに使用した。(C) 反復妊娠喪失(RPL)の探索データセット(GSE165004)に対し、LASSOロジスティック回帰によって生成された係数プロファイル。(D) 最適なペナルティパラメータを決定するために用いられた10分割交差検証曲線(λRPLモデルについて。上部x軸の数値は、各値における非ゼロの回帰係数の数を示している。 λ垂直の破線は、以下のことを示しています。 λ_minおよび λ1秒 この図の拡大版を表示するには、ここをクリックしてください。
コア遺伝子の診断的価値の検証:
LASSOで選択された候補遺伝子の発現パターンを、独立したSLEデータセットGSE50772および独立したRPLデータセットGSE198700で評価した。外部データセットは、GSE61635およびGSE165004での候補遺伝子の選択が完了した後にのみ使用した。検証データセットにおいて、追加の特徴選択やモデルフィッティングは行わなかった。候補遺伝子の発現を、両側ウィルコクソン順位和検定を用いて症例群と対照群の間で比較した。1つのデータセット内で複数の候補遺伝子をテストした場合、得られたP値はBenjamini–Hochberg法を用いて補正した。多重検定補正後に症例群と対照群の間で発現に有意な差があり、かつその方向性が対応する探索データセットと一致した場合に、その候補遺伝子は外部的に再現されたとみなした。探索データセットおよび検証データセットにおける候補遺伝子の発現パターンを図6に示す。
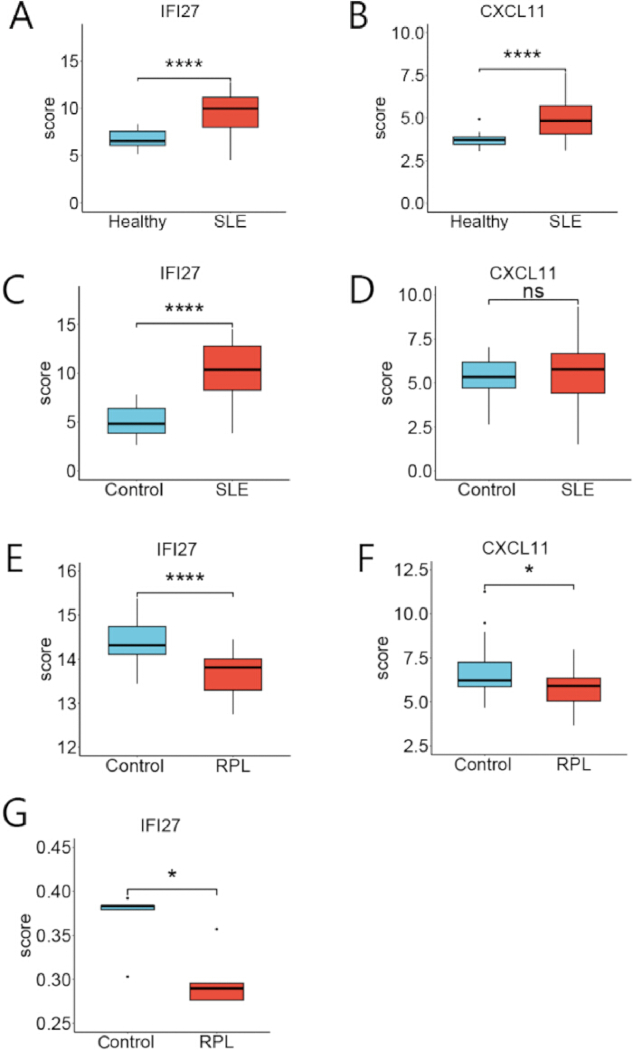
図6探索データセットおよび検証データセットにおけるIFI27およびCXCL11の発現。
(A,B) 全身性エリテマトーデス(SLE)探索データセット(GSE61635)におけるIFI27およびCXCL11のそれぞれの発現。(C,D) 独立したSLE検証データセット(GSE50772)におけるIFI27およびCXCL11のそれぞれの発現。(E,F) 反復流産(RPL)探索データセット(GSE165004)におけるIFI27およびCXCL11のそれぞれの発現。(G) 独立したRPL検証データセット(GSE198700)におけるIFI27の発現。遺伝子発現の群間比較には、両側ウィルコクソン順位和検定を用いた。 P 同一データセット内で複数の候補遺伝子を検証した場合は、ベンジャミニ・ホッホバーグ法を用いて値を補正した。 P < 0.05; **** P < 0.0001; ns, 有意差なし。 こちらの図の拡大版を表示するには、ここをクリックしてください。
受信者動作特性(ROC)解析は、pROC version 1.18.5 (RRID:SCR_024286)38を用いて実施した。各探索データセットの各候補遺伝子について、個別にROC曲線を作成した。ROC曲線下面積(AUC)およびその両側95%信頼区間は、DeLong法を用いて算出した。探索的診断カットオフ値は、最大Youden指数を用いて決定した。カットオフ値、感度、および特異度の信頼区間は、乱数シードを123に設定し、2,000回の層化ブートストラップ反復を用いて算出した。AUCは、閾値に依存しない識別能の指標として使用した39。データセットがレトロスペクティブであり、異なる組織、プラットフォーム、および標準化手順を用いて作成されていたため、Youden指数から導出されたカットオフ値は、各データセット内で個別に算出し、探索的なデータセット固有の閾値として扱った。これらは標準化された臨床カットオフ値とはみなされず、プラットフォーム間で直接転用は行わなかった。外部ROCの結果は、前向きな臨床的に検証ではなく、トランスクリプトームによる検証を示すものである。pROCは、coords()によるAUCのDeLong信頼区間およびYouden指数の最適化をサポートしており、ROC座標の信頼区間は層化ブートストラップ再サンプリングを用いて推定できる。SLEおよびRPL探索データセットにおける候補遺伝子の識別能を示すROC曲線および要約は、Figure 7に提示している。
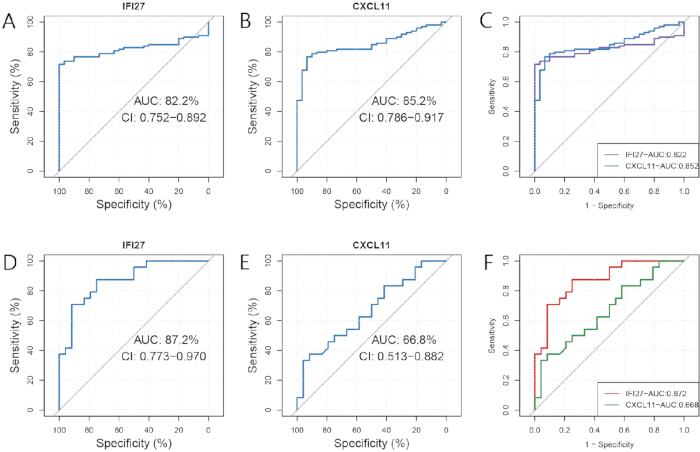
図7候補遺伝子の受信者動作特性(ROC)解析。
(A) 全身性エリマトーデス(SLE)探索データセットにおけるIFI27の受信者動作特性(ROC)曲線。(B) SLE探索データセットにおけるCXCL11のROC曲線。(C) SLE探索データセットにおけるIFI27およびCXCL11の診断能の要約。(D) 反復妊娠喪失(RPL)探索データセットにおけるIFI27のROC曲線。(E) RPL探索データセットにおけるCXCL11のROC曲線。(F) RPL探索データセットにおけるIFI27およびCXCL11の診断能の要約。曲線下面積(AUC)値は95%信頼区間(CI)とともに示されている。 こちらの図の拡大版を表示するには、ここをクリックしてください。
ssGSEAによる免疫浸潤解析:
SLEおよびRPLの病態における免疫細胞調節不全の役割を考慮し40,41、GSE61635およびGSE165004の探索データセットにおいて、免疫細胞の濃縮度を計算的に推定した。解析は各データセット内で個別に実施し、データセットの統合は行わなかった。免疫細胞の遺伝子シグネチャーコレクションには、Charoentong et al. 42 によって報告された28種類の免疫細胞集団のマーカー遺伝子セットを用いた。元のサプリメンタリー遺伝子シグネチャーテーブルを、公式のヒト遺伝子シンボルを用いて名前付き遺伝子セットリストに変換した。各遺伝子セット内の重複するシンボルは削除した。対応する発現マトリックスに存在しない遺伝子は破棄し、識別子のマッピング後に一致する遺伝子が5個未満となった遺伝子セットは、そのデータセットから除外した。シングルサンプル遺伝子セット濃縮解析(ssGSEA)は、GSVA version 1.52.3 (RRID:SCR_021058) および GSEABase version 1.66.0 を使用して実施した。GSVA version 1.52.3 では、手法固有のパラメータオブジェクトが必要である。パラメータには以下を用いた:minSize = 5, maxSize = 500, alpha = 0.25, normalize = TRUE, および checkNA = "yes.”
alphaパラメータを0.25に設定し、最終的なssGSEAスコアの正規化を有効にした。発現マトリックスとの照合後、遺伝子セットを5~500遺伝子に制限した。システム間で一貫した計算を保証するため、シングルスレッド実行を用いた。kcdfパラメータは、GSVAバージョン1.52.3のssgseaParam()プロシージャのパラメータではないため、使用しなかった。ssGSEAは、実験的に測定された免疫細胞数や絶対的な細胞分画ではなく、サンプルレベルでの相対的な遺伝子セット濃縮スコアを算出する43。GSVA 1.52.3のワークフローでは、メソッド固有のパラメータオブジェクトが必要であり、ssGSEAのパラメータにはalpha、スコア正規化、および遺伝子セットのサイズ制限が含まれる。
それぞれの免疫細胞シグネチャーについて、両側ウィルコクソン順位和検定を用いて、疾患群と対照群の間でssGSEAスコアを比較した。 P 28種類の細胞型の比較における値は、Benjamini–Hochberg法を用いて各データセット内で個別に補正されました。補正後の免疫細胞シグネチャーにおいて P 値 < 0.05未満の場合に、有意に濃縮されているとみなした。
各データセット内において、候補遺伝子の発現量と各免疫細胞シグネチャーのssGSEAスコアとの間で、スペアマン順位相関を算出した。相関 P 値は、そのデータセット内のすべての候補遺伝子と免疫細胞の組み合わせにわたって、ベンジャミニ・ホックバーグ法を用いて調整されました。相関は、調整後の値において統計的に有意であるとみなされました。 P 値 < 0.05。相関行列の可視化にはggcorrplotバージョン0.1.4.1を使用し、群間比較プロットの作成にはggplot2バージョン3.5.1を使用した。
すべての統計検定には、正規化された生のssGSEAスコアを使用した。ヒートマップおよび積層可視化は、記述的な提示のみに使用した。これらのスコアは免疫細胞の直接的な割合として記述されたものではなく、観察された関連性は、実験的に実証された細胞・遺伝子間相互作用ではなく、計算上の相関として解釈した。免疫細胞シグネチャーの濃縮プロファイル、グループ間比較、および候補遺伝子発現との相関を図8に示す。
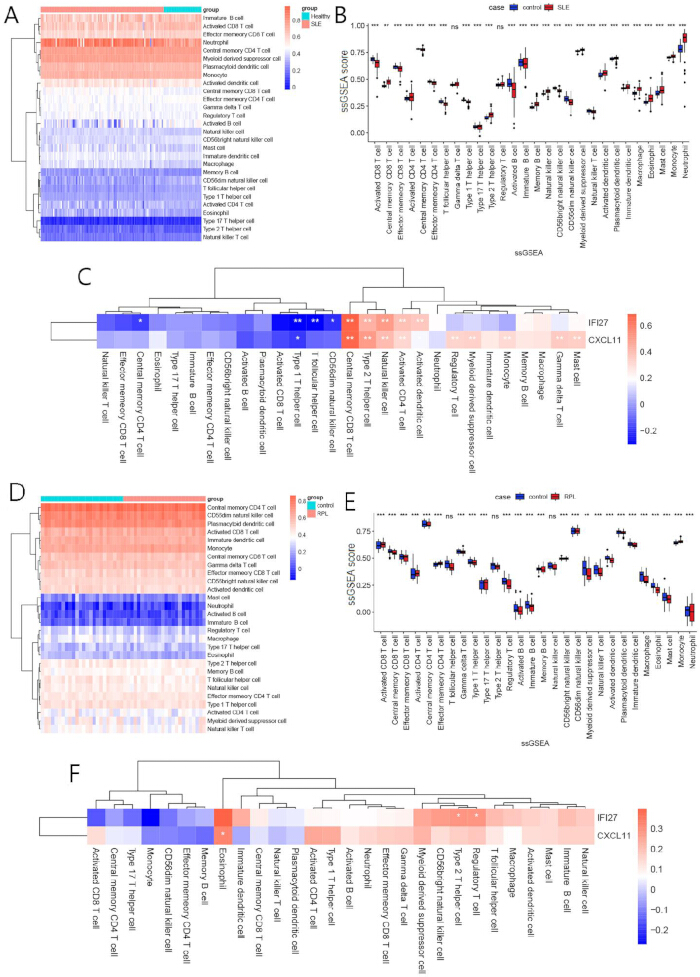
図 8全身性エリマトーデスおよび反復性流産における免疫細胞シグネチャーの濃縮および共通候補遺伝子との相関。
(A) 全身性エリテマトーデス(SLE)探索データセットにおける28種の免疫細胞シグネチャーのシングルサンプル遺伝子セット濃縮解析(ssGSEA)スコアの階層的クラスタリングヒートマップ。(B) SLE患者と健康対照群における免疫細胞シグネチャーssGSEAスコアの比較。(C) SLE探索データセットにおけるIFI27およびCXCL11の発現と28種の免疫細胞シグネチャーssGSEAスコアとの関連を示すスピアマン相関ヒートマップ。(D) 反復流産(RPL)探索データセットにおける28種の免疫細胞シグネチャーのssGSEAスコアの階層的クラスタリングヒートマップ。(E) RPL患者と妊孕性対照群における免疫細胞シグネチャーssGSEAスコアの比較。(F) RPL探索データセットにおけるIFI27およびCXCL11の発現と28種の免疫細胞シグネチャーssGSEAスコアとの関連を示すスピアマン相関ヒートマップ。相関はスピアマンの順位相関係数を用いて算出され、 P 値はBenjamini–Hochberg法を用いて補正した。 P < 0.05; ** P < 0.01; *** P < 0.001; ns:有意差なし。 こちらの図の拡大版を表示するには、ここをクリックしてください。
結果
MR解析
操作変数の選択およびデータの調和後、SLEを曝露、自然流産回数をアウトカムとした前方MR解析のために16個のSNPを保持した。操作変数の詳細な情報は付随表1に記載している。保持されたすべてのSNPはF統計量が10を超えており、弱操作変数バイアスの可能性は低いことが示された。また、保持された各SNPについてPhenoScanner V2を用いてスクリーニングを行い、aPLに関連するSNPは特定されなかった。MR-PRESSO解析では外れ値は認められなかった。CochranのQ検定では、SNP個別の推定値間に有意な不均一性は認められなかった(Q = 16.12, P = 0.31)。したがって、固定効果IVWモデルを適用した。MR-Egger切片検定では、方向性のある水平多面発現は示されなかった(P = 0.69)。IVW解析の結果、遺伝的に予測されたSLEと自然流産回との間に、統計的に有意ではあるが定量的に緩やかな正の相関が認められた(オッズ比 [OR] = 1.01, 95%信頼区間 [CI] = 1.00–1.02, P < 0.01; 図2A)。MR-Egger回帰(OR = 1.01, 95% CI = 1.00–1.03, P = 0.16)、加重中央値法(OR = 1.01, 95% CI = 1.00–1.02, P = 0.17)、および加重最頻値法(OR = 1.01, 95% CI = 0.99–1.03, P = 0.42)を用いて得られた効果推定値は、個別に統計的有意性に達しなかったものの、方向性はIVW推定値と一致していた。Leave-one-out解析では、単一のSNPを除外してもプール推定値に実質的な変動はなく、ほぼ対称的なファンネルプロットから、結果が顕著な方向性多面発現によって駆動されているという視覚的根拠は得られなかった。対応する散布図、SNP個別のフォレストプロット、Leave-one-out解析、およびファンネルプロットを付随図1–4に示す。
逆メンデルランダム化(MR)分析において、操作変数の選択後に16個のSNPが保持され、それらすべてにおいてF統計量は10を超えていた(付随表2)。MR-PRESSO解析により、外れ値は認められなかった。コクランのQ検定では、有意な異質性は認められなかった(Q = 13.41、 P = 0.50)であり、MR-Egger切片検定では方向性のある水平的多面発現の根拠は認められなかった(P = 0.41)。IVWによる推定では、遺伝的に予測された自然流産の回数とSLEリスクとの関連は支持されなかった(OR = 0.93, 95% CI = 0.21–4.23, P = 0.93; 図2B以上のMR解析の結果から、遺伝的に予測されたSLEから自然流産数への順方向には緩やかな関連性が認められた一方、逆方向の解析では、遺伝的に予測された自然流産数からSLEリスクへの関連性は認められなかった。
バイオインフォマティクス解析
発現変動解析:
GSE61635の発現変動解析により、SLE群と健康対照群の間で、発現上昇した678遺伝子と発現低下した298遺伝子を含む計976個のDEGが同定された(図 3C)。GSE165004の解析では、RPL群と対照群の間で、発現上昇した578遺伝子と発現低下した671遺伝子を含む計1,249個のDEGが同定された(図 3D)。これら2つの探索データセットにおいて最も有意な上位50個のDEGを示すヒートマップを図 3Aおよび図 3Bに示す。さらに、2つのデータセット間で共通する59個のDEGが同定された(図 3E)。これらの共通DEGを遺伝子セットとして、以降の機能エンリッチメント解析およびネットワーク解析に使用した。
共通DEGsの機能濃縮解析:
59個の共通DEGについて、DAVIDを用いてGOおよびKEGGパスウェイ濃縮解析を行った。生物学的プロセス(biological process)カテゴリーにおいて、共通DEGは、ウイルスに対する防御応答、ウイルスへの応答、ウイルスゲノム複製への負の制御、抗ウイルス先天性免疫応答、アポトーシスプロセスの負の制御、および細胞接着において濃縮されていた。濃縮された細胞成分(cellular component)用語には、細胞外領域、小胞体膜、アクチン細胞骨格、および膜が含まれていた。分子機能(molecular function)の濃縮用語としては、カルシウムイオン結合が同定された。KEGG解析では、C型肝炎およびA型インフルエンザに関連するパスウェイでの濃縮が示された(図4A)。これらの結果は、共通DEGが主に抗ウイルスおよび免疫関連の生物学的プロセスに関連していることを示しており、SLEおよびRPLの発見データセットに共通する遺伝子の機能的な背景を提示している。
PPIネットワークおよびハブ遺伝子の同定
共有された59個の発現変動遺伝子(DEG)をSTRINGにアップロードし、最低相互作用信頼度スコアを0.400としてタンパク質相互作用(PPI)ネットワークを構築した。得られたネットワークは59個のノードと80本のエッジで構成されていた。このネットワークをCytoscapeバージョン3.10.0に取り込んで可視化し、トポロジカル解析の前に孤立ノードを除去した(図 4B). ハブ遺伝子のランキングは、cytoHubbaプラグインを用いて行った。6つのアルゴリズム(Maximal Clique Centrality (MCC)、Maximum Neighborhood Component (MNC)、Edge Percolated Component (EPC)、Degree、Closeness、Radiality)を適用した。その結果、6つすべてのアルゴリズムで上位にランクされた遺伝子の中から、共通して10個の遺伝子(RSAD2、RTP4、IFIT3、IFI27、IFI44、GBP1、MX1、OAS1、IFIT1、CXCL11)が同定された(表3したがって、これらの遺伝子を、その後のLASSO回帰におけるネットワークハブの候補として保持した。
LASSO回帰により、共通の候補遺伝子としてIFI27およびCXCL11を同定
SLEおよびRPLの探索データセットを用いて、10個の候補ハブ遺伝子に対してLASSO回帰分析を行った。SLEデータセットでは、選択したlambda値において、IFIT3、IFI27、IFI44、CXCL11の4つの遺伝子が非ゼロの係数を保持し、それぞれの係数は2.575、0.057、2.359、0.307であった(Figure 5A,B)。RPLデータセットでは、IFI27、GBP1、OAS1、CXCL11の4つの遺伝子が非ゼロの係数を保持し、それぞれの係数は−0.897、0.167、−1.007、−0.519であった(Figure 5C,D)。2つの疾患特異的モデルによって選択された遺伝子を比較した結果、IFI27とCXCL11が共通のLASSO選択候補遺伝子として同定された。その後、これら2つの遺伝子について、探索データセットおよび外部検証データセットでの評価を行った。
IFI27およびCXCL11発現の外部検証
2つの候補遺伝子の発現パターンを、GEOデータベースから取得した独立した検証データセットGSE50772およびGSE198700を用いて評価した。GSE61635において、IFI27とCXCL11はともに、健康対照群と比較してSLE群で有意にアップレギュレートされていた(図 6A,B)。独立したSLE検証データセット(GSE50772)において、IFI27は引き続き有意にアップレギュレートされていたが(図 6C)、CXCL11は群間に有意な差は認められなかった(図 6D)。RPL探索データセット(GSE165004)では、IFI27とCXCL11はともに、対照群と比較してRPL群で有意にダウンレギュレートされていた(図 6E,F)。独立したRPL検証データセット(GSE198700)において、IFI27はRPL群で引き続き有意にダウンレギュレートされていたが(図 6G)、CXCL11は検出されなかった。全体として、IFI27はSLEおよびRPLの両方の探索および検証データセットにおいて一貫した差異発現を示した。対照的に、CXCL11は外部検証データセットで一貫して再現されなかった。したがって、その後の解析に向けて、IFI27を共通の候補バイオマーカーとして優先的に選択した。
診断識別能の探索的評価
解析したレトロスペクティブなトランスクリプトームデータセットにおいて、IFI27およびCXCL11の発現が疾患サンプルとコントロールを区別できる能力を評価するため、受信者動作特性(ROC)解析を行った。SLEでは、IFI27のROC曲線下面積(AUC)は0.822(95% CI = 0.752–0.892; Figure 7A)であり、CXCL11のAUCは0.852(95% CI = 0.786–0.917; Figure 7B)であった。SLEデータセットにおけるこれら2つの候補遺伝子のROC曲線の比較をFigure 7Cに示す。RPLでは、IFI27のAUCは0.872(95% CI = 0.773–0.970; Figure 7D)であったのに対し、CXCL11のAUCは0.668(95% CI = 0.513–0.882; Figure 7E)であった。RPLデータセットにおけるこれら2つの候補遺伝子のROC曲線の比較をFigure 7Fに示す。IFI27は両方の疾患データセットで0.80を超えるAUC値を示し、発現データセット全体を通してCXCL11よりも一貫した外部検証結果を示した。これらの知見は、IFI27がさらなる評価に値する候補バイオマーカーであることを支持している。ただし、ROC解析はレトロスペクティブな公開トランスクリプトームデータセットを用いて行われたため、結果はプロスペクティブな臨床診断的検証ではなく、トランスクリプトームによる識別の探索的根拠として解釈されるべきである。
免疫浸潤の計算機的評価
GSE61635およびGSE165004の探索データセットにおいて、28種類の免疫細胞シグネチャーの濃縮度を評価するためにssGSEAを実施した。SLEおよびRPLデータセットの免疫細胞濃縮ヒートマップをそれぞれFigure 8A,Dに、対応するssGSEAスコアの群間比較をFigure 8B,Eに示す。SLEデータセットでは、CD8+ T細胞、CD4+ T細胞、B細胞、樹状細胞、1型ヘルパーT(Th1)細胞、2型ヘルパーT(Th2)細胞、17型ヘルパーT(Th17)細胞、ナチュラルキラー細胞、マクロファージ、好酸球、マスト細胞、単球、および好中球などの複数の免疫細胞シグネチャーが、SLE患者と健康対照群の間で有意に異なっていた(Figure 8B)。RPLデータセットでは、活性化CD8+ T細胞、活性化CD4+ T細胞、エフェクターメモリーCD4+ T細胞、Th17細胞、および単球のssGSEAスコアが、対照群よりもRPL群で高かった。対照的に、制御性T細胞(Treg)およびマクロファージのssGSEAスコアは、対照群よりもRPL群で低かった(Figure 8E)。相関分析の結果、SLEデータセットにおいて、IFI27およびCXCL11の発現は、活性化CD4+ T細胞、ナチュラルキラー細胞、Th2細胞、およびセントラルメモリーCD8+ T細胞のssGSEAスコアと正の相関があり、Th1細胞のssGSEAスコアとは負の相関があった(Figure 8C)。RPLデータセットでは、IFI27の発現はTregおよびTh2細胞のssGSEAスコアと正の相関があり、CXCL11の発現は好酸球のssGSEAスコアと正の相関があった(Figure 8F)。
データの可用性:
本研究において、新たなヒト被験者の一次データは生成されていない。すべての解析は、公開されているゲノムワイド関連解析(GWAS)のサマリー統計量およびトランスクリプトームデータセットのみに基づいて行われた。SLEのGWASサマリー統計量は、FinnGen Release 11(アクセッション番号:finngen_R11_L12_LUPUS)から取得した。自然流産回数のサマリー統計量は、UK Biobankデータに基づくIEU OpenGWASリソース(アクセッション番号:ukb-b-419)から取得した。トランスクリプトームデータセットは、米国国立生物工学情報センター(NCBI)のGene Expression Omnibus(GEO)より、アクセッション番号GSE61635、GSE165004、GSE50772、およびGSE198700として取得した。これらの公開データセットは、以下のリポジトリからアクセス可能である:
-- FinnGen リリース 11: https://r11.finngen.fi/
-- IEU OpenGWAS: https://gwas.mrcieu.ac.uk/
-- Gene Expression Omnibus (GEO): https://www.ncbi.nlm.nih.gov/geo/
本研究の結果を裏付ける処理済みデータは、本論文およびその補足資料に含まれています。個人レベルのデータおよび個人を特定できる参加者のデータへのアクセスや保持は行われていません。解析ワークフローは、プロトコルに記載されている通り、公開されているソフトウェアおよびパッケージを使用して実施されました。
補足ファイル1. 記入済みSTROBE-MR報告チェックリスト。
完了 メンデルランダム化解析を用いた疫学における観察研究の報告の強化 (STROBE-MR) 原稿内のどこに各推奨報告項目が記載されているかを示すチェックリスト。 こちらのファイルをダウンロードするには、ここをクリックしてください。
補足図1. 順方向メンデルランダム化分析の散布図。
全身性エリテマトーデス(SLE)および自然流産回数に対する、操作変数として用いた一塩基多型(SNP)の遺伝的影響の関連を示す散布図。各点は1つのSNPを表し、水平および垂直の誤差棒はSNP効果推定値の標準誤差を示す。回帰線は、逆分散加重法、MR-Egger法、加重中央値法、および加重モード法のメンデルランダム化法に対応している。 こちらをクリックしてファイルをダウンロードしてください。
補足図 2. フォワードメンデルランダム化分析による一塩基多型(SNP)特異的な因果関係推定値。
全身性エリテマトーデス(SLE)と自然流産回数との関連について、各操作変数である一塩基多型(SNP)の因果効果推定値を示すフォレストプロット。黒い点は、95%信頼区間を伴うSNP特異的な効果推定値を表す。赤い点は、逆分散加重法およびMR-Egger法を用いて得られた全体的な因果効果推定値を表す。垂直の破線は効果なし(null effect)を示す。 こちらをクリックしてファイルをダウンロードしてください。
補足図 3. 前向きメンデルランダム化分析のleave-one-out感度分析。
全身性エリテマトーデス(SLE)と自然流産回数の関連を評価したleave-one-out感度分析の結果を示すフォレストプロット。各黒点は、一つの操作単一塩基多型(SNP)を逐次的に除外した後の逆分散加重法による全体的な因果効果推定値を表し、水平線は対応する95%信頼区間を示す。赤点は、すべての操作SNPを用いて得られた逆分散加重法の全体的な推定値を表す。垂直の点線はヌル効果を示す。 こちらのリンクからファイルをダウンロードしてください。
補足図 4. 順方向メンデルランダム化分析のファンネルプロット。
全身性エリマトーデス(SLE)と自然流産回数の関連における、SNP個別の因果効果推定値の分布を示すファンネルプロット。各点は1つのインストルメンタル単一塩基多型(SNP)を表す。垂直線は、逆分散加重法およびMR-Egger法を用いて得られた全般的な因果効果推定値を示す。y軸は標準誤差の逆数(1/SE)を表す。 ここをクリックしてファイルをダウンロードしてください。
補足表1. フォワードメンデルランダム化分析に選択された操作単一塩基多型。
本表は、全身性エリマトーデスと自然流産回数のフォワードメンデルランダム化分析に使用した操作単一塩基多型(SNP)を列挙しており、最近傍のアノテーション済み遺伝子、染色体、ゲノム上の位置、エフェクトアレル、エフェクトアレル頻度、エフェクトサイズ(Beta)、標準誤差(SE)、P値、およびF統計量が含まれています。染色体上の位置は、ゲノムワイド関連解析で使用されたソースゲノムアセンブリに基づいています。F統計量はBeta2/SE2として算出されました。 こちらをクリックしてファイルをダウンロードしてください。
補足表2. 逆メンデルランダム化分析に選択された操作単一塩基多型。
この表は、自然流産の回数を曝露、全身性エリマトースをアウトカムとして逆メンデルランダム化分析に使用した操作単一塩基多型(SNP)をリスト化したものであり、近接するアノテーション済み遺伝子、染色体、ゲノム上の位置、エフェクトアレル、エフェクトアレル頻度、エフェクトサイズ(Beta)、標準誤差(SE)、P値、およびF統計量が含まれています。染色体上の位置は、ゲノムワイド関連解析で使用されたソースゲノムアセンブリに基づいています。F統計量はBeta2/SE2として算出されました。 こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
双方向メンデルランダム化(MR)解析と多次元バイオインフォマティクス解析を組み合わせることで、本研究はSLEとRPLの間の正の因果関係を特定し、共有されるトランスクリプトームバイオマーカーを系統的にスクリーニングしました。我々の知る限り、双方向MR、トランスクリプトーム解析、および免疫浸潤解析を統合してこの関係を調査した研究は、本研究が初めてです。観察されたMRの効果量はわずかでしたが(IVW OR = 1.01)、この関連性は、実質的な異質性、水平多面発現、または影響力のある外れ値の証拠なく、複数の相補的なMR手法と感度分析によって一貫して支持されており、観察された関係が統計的に堅牢であるものの、定量的には小さいことが示唆されました。したがって、本知見は、SLEがRPLへの感受性に寄与する遺伝的な影響がわずかであることの証拠として解釈されるべきであり、大きな臨床的効果を示すものではありません。因果推論をトランスクリプトームによる検証および免疫浸潤解析と統合することで、本研究は複雑な免疫介在性生殖障害における候補バイオマーカーを優先順位付けするための再現可能な枠組みを提供します。2007年から2021年にかけてエジプトで実施された、SLE女性123名および計201回の妊娠を対象とした研究では、SLE女性における妊娠の20.4%が胎児喪失に至ったことが報告されています44。同様に先行研究においても、免疫調節不全が妊娠喪失の可能性を高めるため、SLEがRPLの重要なリスク因子であることが示唆されています12。
バイオインフォマティクス解析により、共通して発現変動した59個の遺伝子(DEGs)は、主に抗ウイルス免疫応答、細胞接着、およびアポトーシスの調節に関連するパスウェイに濃縮されていることが明らかになった。ウイルス感染はSLEの病態生理に寄与している可能性がある。SLE患者はしばしば自然免疫および適応免疫応答の両方において機能不全を示し45,46、その結果、ウイルス感染への感受性が高まっている。この感受性の増加は、胎盤炎症や胎盤細胞傷害などのメカニズムを通じて、流産に寄与している可能性がある47。胎盤の不可欠な構成要素として、栄養膜細胞のオートファジーおよび生物学的挙動の変化も、RPLの発生に関連している48,49。以上の観察結果を総合すると、SLEに関連する免疫調節不全は、栄養膜細胞の機能に影響を及ぼすことで妊娠結果に影響を与える可能性が示唆される。さらなる解析により、SLEとRPLに共通するハブ遺伝子の候補としてIFI27およびCXCL11が同定された。しかし、独立したデータセット間でより高い生物学的一貫性を示したため、後続の解析ではIFI27を優先して選択した。両遺伝子ともLASSOモデルによって選択されたが、探索データセットと外部検証データセットの両方で一貫した発現変動を示したのはIFI27のみであり、CXCL11は検証データセットで一貫して再現されなかった。さらに、IFI27はRPLに対してより強力な診断識別能を示し、血液および生殖組織のデータセット全体で有意な調節不全が認められた。総じて、これらの知見は、さらなる実験的検証が必要であるものの、IFI27がCXCL11よりも堅牢な候補バイオマーカーであることを支持している。SLEデータセットGSE50772およびRPLデータセットGSE198700を用いた検証により、IFI27の発現は検証データセット全体で一貫して調節不全であることが示された。特筆すべきは、IFI27は先行研究50と一致してSLE患者の血液サンプルで過剰発現していた一方で、RPL患者の子宮内膜および絨毛膜絨毛サンプルでは発現が低下していたことである。この対照的なパターンは、RPLを合併したSLEにおける全身的な免疫調節不全と、母体・胎児界面における局所的な免疫環境との違いを反映している可能性がある。
IFI27は、抗ウイルス免疫、インターフェロンシグナル伝達、およびウイルス感染後の宿主免疫応答に関与するインターフェロン刺激遺伝子である51,52。正常妊娠において、IFI27の発現は栄養膜細胞で著しく増加しており53、栄養膜機能の維持において重要な生理学的役割を担っていることが示唆される。対照的に、我々の解析では、RPL患者の子宮内膜および絨毛においてIFI27の発現が低下していることが示された。この知見は一部の先行報告54とは異なるが、本研究では対になった母体・胎児サンプルではなく、異なる組織から得られたトランスクリプトームデータセットを統合しているため、慎重に解釈する必要がある。一つの考えられる説明としては、SLEにおける慢性的な全身性I型インターフェロン活性化が、循環免疫細胞において持続的なインターフェロンシグナルを誘導する一方で、母体・胎児界面では受容体の脱感作、免疫疲弊、または代償的なネガティブフィードバック機構を促進している可能性が挙げられる。あるいは、組織特異的なエピジェネティック調節や、末梢血と生殖組織との間の細胞組成の違いにより、全身的なインターフェロン活性化にもかかわらず局所的なIFI27発現が抑制されている可能性がある。これらの仮説は推測の域を出ないものであり、組織特異的および細胞型特異的な調節メカニズムを区別するためには、対になった母体血、子宮内膜組織、および栄養膜サンプルを用いて、理想的にはシングルセルレベルでのメカニズム的な検証が必要である55。
免疫浸潤解析の結果、SLEおよびRPLの両方において免疫細胞シグネチャーに有意な差があることが示され、主にCD4+ T細胞関連ポピュレーションの変化を特徴としていました。IFI27の発現は、両疾患においてTh2細胞の濃縮と正の相関を示しましたが、これらの知見はssGSEAから得られた計算上の相関であり、実験的に検証された生物学的相互作用ではありません。先行研究では、SLE患者の末梢血においてTh1細胞およびTreg細胞の割合が減少し、Th2細胞の割合が増加していることが示されており56,57、これは我々の知見と一致しています。正常な妊娠中、母体・胎児界面におけるTh1/Th2免疫バランスはTh2優位の状態へとシフトします58。したがって、生殖組織におけるIFI27発現の低下は、母体・胎児耐性の不全に関連した局所的な免疫恒常性の変化を反映している可能性がありますが、IFI27がこのプロセスを直接的に調節しているかどうかについては、今後の実験的な検証が必要です。
いくつかの限界について言及すべきである。第一に、MR解析によって因果関係が支持されたものの、推定された遺伝的効果は比較的小さく、SLEがRPLの多因子的な病態形成の一要素に過ぎないことが示唆された。第二に、トランスクリプトーム統合において、異なる組織(末梢血、子宮内膜、絨毛膜絨毛)、マイクロアレイプラットフォーム、および独立したコホートから生成されたデータセットが含まれており、IFI27の一貫した検証がなされたとはいえ、生物学的および技術的な不均一性が導入された可能性がある。第三に、絨毛膜絨毛の外部検証コホートに含まれるサンプル数が限定的であったため、統計的検出力と汎用性が低下した可能性がある。第四に、公開データセットに含まれる臨床情報が限定的であったため、疾患活動性、抗リン脂質抗体ステータス、薬剤曝露、妊娠段階、およびその他の臨床共変量を含む重要な因子を完全に評価することはできなかった。最後に、PhenoScannerによるスクリーニングでMR解析における潜在的な多面的影響による共変性を最小限に抑えたが、残留交絡を完全に排除することはできない。
トランスレーショナルな視点からは、IFI27は現時点では臨床的に検証された診断マーカーではなく、候補バイオマーカーとして見なされるべきです。臨床導入の前には、多様な集団における診断能を検証し、標準化されたアッセイプラットフォームと診断閾値を確立し、妊娠段階、疾患活動性、および免疫抑制治療がIFI27の発現にどのように影響するかを明らかにするための前方視的多施設共同研究が必要です。また、IFI27が母体・胎児間の免疫調節に能動的に寄与しているのか、あるいは単にインターフェロン駆動性の免疫活性化を反映しているに過ぎないのかを解明するためには、機能実験に加えて空間的トランスクリプトーム解析および単一細胞トランスクリプトーム解析が不可欠となるでしょう。
開示事項
利益相反:
著者らは、競合する金銭的または非金銭的な利益がないことを宣言します。
謝辞
本研究は、北京中医薬品管理局中医学主要困難疾病中西医結合重点プロジェクト(2023BJSZDYNJBXTGG-003)、研究所基礎研究業務向け国家級公益性科学研究基金(ZZ16-XRZ-038)、および高水準中国医学病院推進プロジェクト(HLCMHPP2023087)の支援を受けて行われました。資金提供者は、研究デザイン、データ収集、データ解析、データ解釈、原稿作成、および原稿の投稿決定において、一切の役割を果たしていません。著者らは、データセットを公開してくださったFinnGen研究、UK Biobank、および国立生物工学情報センター(NCBI)Gene Expression Omnibus(GEO)の調査員および参加者に感謝いたします。また、フィンランドの研究機関、バイオバンク、および国際パートナー間の協力を通じて、フィンランドのバイオバンクサンプルを全国的な健康登録データと統合しているFinnGenコンソーシアムに謝意を表します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 28種類の免疫細胞遺伝子シグネチャー集 | 公開済みの補完的遺伝子シグネチャーリソース | Charoentongら(参考文献42)によって記述された補完的な免疫細胞マーカー遺伝子リスト | 該当なし RRID: 利用不可 目的/注意点: ssGSEAに使用される免疫細胞シグネチャー。 |
| CNSknowall | CNSknowallウェブプラットフォーム | DAVID出力ファイル | 該当なし RRID: 利用不可 目的/備考: フィルタリング後の機能濃縮解析結果の可視化。 |
| コンピューターワークステーション | 機関内コンピューティング環境 | 該当なし | 該当なし RRID: 該当なし 目的 / 注意事項: 計算解析。 |
| 消耗品 | 該当なし | 該当なし | 該当なし RRID: 該当なし 目的 / 注意事項: ウェットラボの消耗品は使用しませんでした。 |
| Cytoscape | Cytoscape コンソーシアム | 該当なし | 3.10.0 RRID: SCR_003032 目的 / 注意事項: タンパク質–タンパク質相互作用ネットワークの可視化およびトポロジー解析。 |
| cytoHubba | Cytoscape App Store | 該当なし | 0.1 RRID: SCR_017677 目的/注意点: MCC、MNC、EPC、次数中心性、近接中心性、および放射中心性を用いたハブ遺伝子のランキング。 |
| DAVID機能アノテーションツール | アメリカ国立衛生研究所 / 国立がん研究所 | アップロードされた共有DEGおよびバックグラウンド遺伝子リスト | 2021 RRID: SCR_001881 目的 / 注意事項: 遺伝子オントロジー(Gene Ontology)およびKEGGパスウェイ濃縮分析。 |
| 欧州LDリファレンスパネル | 1000ゲノムプロジェクト / IEU OpenGWAS | フェーズ3欧州パネル(GRCh37互換バリアント) | フェーズ3 RRID: 報告なし 目的/注記: OpenGWAS/TwoSampleMRワークフローを用いた連鎖不平衡クランピング。 |
| FinnGen | FinnGenコンソーシアム | finngen_R11_L12_ループス | リリース 11 RRID: SCR_022254 目的/注記: 全身性エリマトーゼに関するGWASサマリー統計量。 |
| フォレストプロット作成ツール | CRAN | 該当なし | 1.1.2 RRID: 利用不可 目的 / 注意事項: メンデルランダム化推定値のフォレストプロットによる可視化。 |
| Gene Expression Omnibus (GEO) | 国立生物工学情報センター | GSE61635; GSE165004; GSE50772; GSE198700 | 該当なし RRID: SCR_005012 目的 / 注意事項: 発見および検証用トランスクリプトームデータセットのソース。 |
| ジーンオントロジー | ジーンオントロジーコンソーシアム | DAVIDを通じてアクセスしたGO用語 | DAVID 2021 アノテーション RRID: SCR_002811 目的 / 注意事項: 生物学的プロセス、細胞成分、および分子機能のアノテーション。 |
| ggcorrplot | CRAN | 該当なし | 0.1.4.1 RRID: 利用不可 目的/注意点: 候補遺伝子の可視化–免疫細胞相関行列 |
| ggplot2 | CRAN | 該当なし | 3.5.1 RRID: SCR_014601 目的 / 注意事項: ボルケーノプロット、ボックスプロット、およびその他の統計グラフ。 |
| ggvenn | CRAN | 該当なし | 0.1.16 RRID: SCR_025300 目的/注意点: 共通の変動遺伝子の可視化。 |
| glmnet | CRAN | 該当なし | 4.1-8 RRID: SCR_015505 目的 / 備考: LASSOロジスティック回帰および交差検証。 |
| GSE165004 | NCBI GEO | GSE165004 / GPL16699 | 処理済みシリーズマトリックス RRID: SCR_005012 目的 / 注意事項: RPL子宮内膜探索データセット。 |
| GSE198700 | NCBI GEO | GSE198700 / GPL13534 | 処理済みシリーズマトリックス RRID: SCR_005012 目的 / 注意事項: 独立したRPL絨毛膜絨毛検証データセット。 |
| GSE50772 | NCBI GEO | GSE50772 / GPL570 | 処理済みシリーズマトリクス RRID: SCR_005012 目的/注記: 独立したSLE末梢血単核細胞検証データセット。 |
| GSE61635 | NCBI GEO | GSE61635 / GPL570 | 処理済みシリーズマトリクス RRID: SCR_005012 目的/注記: SLE全血ディスカバリーデータセット。 |
| GSEABase | Bioconductor | 該当なし | 1.66.0 RRID: 利用不可 目的 / 注意事項: ssGSEAのための免疫細胞遺伝子セットの管理。 |
| GSVA(遺伝子セット変動解析) | Bioconductor | 該当なし | 1.52.3 RRID: SCR_021058 目的 / 備考: 単一サンプル遺伝子セット濃縮解析(ssGSEA) |
| IEU OpenGWAS | MRC統合疫学ユニット | ukb-b-419; finngen_R11_L12_LUPUS | 該当なし RRID: 報告なし 目的/注記: GWASサマリー統計量および調和済み遺伝学的関連データの取得。 |
| 京都遺伝子ゲノム百科事典 (KEGG) | Kanehisa Laboratories | DAVIDを通じてアクセスしたKEGGパスウェイ | DAVID 2021 アノテーション RRID: SCR_012773 目的 / 注意点: パスウェイ濃縮アノテーション |
| limma | Bioconductor | 該当なし | 3.60.6 RRID: SCR_010943 目的 / 注意事項: 発現変動解析 |
| MRPRESSO | Verbanckら | 該当なし | 1 RRID: SCR_023697 目的/注意点: 水平多面発現および外れ値計量経済学的変数の検出。 |
| pheatmap | CRAN | 該当なし | 1.0.12 RRID: SCR_016418 目的/注意点: 発現ヒートマップ |
| PhenoScanner V2 | PhenoScannerコンソーシアム | SNPレベルの表現型クエリ | バージョン 2 RRID: 利用不可 目的 / 注意事項: 残存したSNPについて、潜在的な共変表現型との関連性をスクリーニングする。 |
| pROC | CRAN | 該当なし | 1.18.5 RRID: SCR_024286 目的 / 注意事項: ROC曲線、AUC、DeLong信頼区間、Youden Indexカットオフ値、およびブートストラップ信頼区間。 |
| R | R Foundation for Statistical Computing | 該当なし | 4.4.2 RRID: SCR_001905 目的 / 注意事項: 統計計算環境。 |
| 試薬 | 該当なし | 該当なし | 該当なし RRID: 該当なし 目的 / 注意事項: ウェットラボ試薬は使用していません。 |
| (入力文字列がありません。翻訳するテキストを提供してください。) | STRINGコンソーシアム | Homo sapiens (分類群 9606); 最小相互作用スコア 0.400 | 11 RRID: SCR_005223 目的 / 注意事項: タンパク質–タンパク質相互作用ネットワークの構築 |
| TwoSampleMR | MRC統合疫学ユニット | 該当なし | 0.6.6 RRID: SCR_019010 目的 / 注意事項: 双方向2サンプルメンデルランダム化解析、データ抽出、ハーモナイゼーション、因果推定、および感度分析。 |
| UKバイオバンク | UKバイオバンク | ukb-b-419 | 2018年要約データセット RRID: SCR_012815 目的 / 注意事項: 自然流産回数に関するGWASサマリー統計量。 |
参考文献
- Petri M. Pregnancy and systemic lupus erythematosus. Best Pract Res Clin Obstet Gynaecol. 2020;64:24-30.
- Zhao X, et al. Advances in drug therapy for systemic lupus erythematosus. Curr Med Chem. 2021;28(7):1251-1268.
- Stanescu II, et al. Salivary biomarkers of inflammation in systemic lupus erythematosus. Ann Anat. 2018;219:89-93.
- Tian J, Zhang D, Yao X, Huang Y, Lu Q. Global epidemiology of systemic lupus erythematosus: A comprehensive systematic analysis and modelling study. Ann Rheum Dis. 2023;82(3):351-356.
- Palma Dos Reis CR, et al. Prediction of adverse pregnancy outcomes in women with systemic lupus erythematosus. Clin Rev Allergy Immunol. 2020;59(2):287-294.
- Venne K, Scott S, Bernatsky S, Vinet E. Induced abortions in women with systemic lupus erythematosus. Lupus. 2021;30(4):484-488.
- Kim JW, et al. Lupus low disease activity state achievement is important for reducing adverse outcomes in pregnant patients with systemic lupus erythematosus. J Rheumatol. 2021;48(5):707-716.
- Braga A, et al. Systemic lupus erythematosus and pregnancy: A Portuguese case-control study. Clin Rev Allergy Immunol. 2022;62(2):324-332.
- Dimitriadis E, Menkhorst E, Saito S, Kutteh WH, Brosens JJ. Recurrent pregnancy loss. Nat Rev Dis Primers. 2020;6(1):98.
- Quenby S, et al. Miscarriage matters: The epidemiological, physical, psychological, and economic costs of early pregnancy loss. Lancet. 2021;397(10285):1658-1667.
- Valeff NJ, Ventimiglia MS, Diao L, Jensen F. Lupus and recurrent pregnancy loss: The role of female sex hormones and B cells. Front Endocrinol (Lausanne). 2023;14:1233883.
- Gao R, Zeng X, Qin L. Systemic autoimmune diseases and recurrent pregnancy loss: Research progress in diagnosis and treatment. Chin Med J (Engl). 2021;134(17):2140-2142.
- Pantham P, Abrahams VM, Chamley LW. The role of anti-phospholipid antibodies in autoimmune reproductive failure. Reproduction. 2016;151(5):R79-R90.
- Meroni PL, et al. Updating on the pathogenic mechanisms of antiphospholipid antibody-associated pregnancy loss. Clin Rev Allergy Immunol. 2008;34(3):332-337.
- Blank M, Shoenfeld Y. Antiphospholipid antibody-mediated reproductive failure in antiphospholipid syndrome. Clin Rev Allergy Immunol. 2010;38(2–3):141-147.
- Babker A, et al. Frequency of ACE I/D and PAI-1 4G/5G polymorphisms in women with recurrent pregnancy loss in Sudan. Biomed Pharmacol J. 2025;18(3):1953-1961.
- Babker AM, et al. Detection of human platelet antigen polymorphisms (HPA-1 and HPA-3) and factor XIII mutation in Sudanese women with recurrent pregnancy loss. BMC Res Notes. 2024;17(1):66.
- Grover S, Del Greco MF, Stein CM, Ziegler A. Mendelian randomization. Methods Mol Biol. 2017;1666:581-628.
- Skrivankova VM, et al. Strengthening the reporting of observational studies in epidemiology using Mendelian randomization: The STROBE-MR statement. JAMA. 2021;326(16):1614-1621.
- Emdin CA, Khera AV, Kathiresan S. Mendelian randomization. JAMA. 2017;318(19):1925-1926.
- Burgess S, Thompson SG, CRP CHD Genetics Collaboration. Avoiding bias from weak instruments in Mendelian randomization studies. Int J Epidemiol. 2011;40(3):755-764.
- Hemani G, et al. The MR-Base platform supports systematic causal inference across the human phenome. eLife. 2018;7:e34408.
- Bowden J, Davey Smith G, Burgess S. Mendelian randomization with invalid instruments: Effect estimation and bias detection through Egger regression. Int J Epidemiol. 2015;44(2):512-525.
- Bowden J, Davey Smith G, Haycock PC, Burgess S. Consistent estimation in Mendelian randomization with some invalid instruments using a weighted median estimator. Genet Epidemiol. 2016;40(4):304-314.
- Hartwig FP, Davey Smith G, Bowden J. Robust inference in summary data Mendelian randomization via the zero modal pleiotropy assumption. Int J Epidemiol. 2017;46(6):1985-1998.
- Burgess S, Butterworth A, Thompson SG. Mendelian randomization analysis with multiple genetic variants using summarized data. Genet Epidemiol. 2013;37(7):658-665.
- Verbanck M, Chen CY, Neale B, Do R. Detection of widespread horizontal pleiotropy in causal relationships inferred from Mendelian randomization between complex traits and diseases. Nat Genet. 2018;50(5):693-698.
- Barrett T, et al. NCBI GEO: Archive for functional genomics data sets—update. Nucleic Acids Res. 2013;41(Database issue):D991-D995.
- Keleş İD, et al. Gene pathway analysis of the endometrium at the start of the window of implantation in women with unexplained infertility and unexplained recurrent pregnancy loss: Is unexplained recurrent pregnancy loss a subset of unexplained infertility? Hum Fertil (Camb). 2023;26(5):1129-1141.
- Kennedy WP, et al. Association of the interferon signature metric with serological disease manifestations but not global activity scores in multiple cohorts of patients with SLE. Lupus Sci Med. 2015;2(1):e000080.
- Matsumoto Y, et al. Characteristic DNA methylation profiles of chorionic villi in recurrent miscarriage. Sci Rep. 2022;12(1):11673.
- Sherman BT, Lempicki RA. Systematic and integrative analysis of large gene lists using DAVID bioinformatics resources. Nat Protoc. 2009;4(1):44-57.
- Szklarczyk D, et al. STRING v11: Protein–protein association networks with increased coverage, supporting functional discovery in genome-wide experimental datasets. Nucleic Acids Res. 2019;47(D1):D607-D613.
- Shannon P, et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-2504.
- Jia P, Zheng S, Long J, Zheng W, Zhao Z. dmGWAS: Dense module searching for genome-wide association studies in protein–protein interaction networks. Bioinformatics. 2011;27(1):95-102.
- Chin CH, et al. cytoHubba: Identifying hub objects and subnetworks from complex interactome. BMC Syst Biol. 2014;8(Suppl 4):S11.
- Mohammadi M. A projection neural network for the generalized Lasso. IEEE Trans Neural Netw Learn Syst. 2020;31(6):2217-2221.
- Kumar R, Indrayan A. Receiver operating characteristic (ROC) curve for medical researchers. Indian Pediatr. 2011;48(4):277-287.
- de Hond AAH, Steyerberg EW, van Calster B. Interpreting area under the receiver operating characteristic curve. Lancet Digit Health. 2022;4(12):e853-e855.
- Xu H, et al. Single-cell transcriptomics reveals CCL3+ classical monocyte subset linked to autoimmune pathogenesis. J Inflamm Res. 2025;18:16273-16291.
- Zych M, et al. Surface immune checkpoints as potential biomarkers in physiological pregnancy and recurrent pregnancy loss. Int J Mol Sci. 2024;25(17):9378.
- Charoentong P, et al. Pan-cancer immunogenomic analyses reveal genotype-immunophenotype relationships and predictors of response to checkpoint blockade. Cell Rep. 2017;18(1):248-262.
- Liu J, Lu J, Wang G, Gu L, Li W. Prognostic characteristics of a six-gene signature based on ssGSEA in sarcoma. Aging (Albany NY). 2024;16(2):1536-1554.
- Mokbel A, et al. Pregnancy outcomes among Egyptian women with systemic lupus erythematosus: A prospective cohort study. Lupus. 2023;32(4):521-530.
- Illescas-Montes R, Corona-Castro CC, Melguizo-Rodríguez L, Ruiz C, Costela-Ruiz VJ. Infectious processes and systemic lupus erythematosus. Immunology. 2019;158(3):153-160.
- Banko A, et al. Epstein-Barr virus infection as a potential indicator of the occurrence and clinical presentation of systemic lupus erythematosus. Front Immunol. 2023;14:1307589.
- Nigro G, et al. Role of infections in recurrent spontaneous abortion. J Matern Fetal Neonatal Med. 2011;24(8):983-989.
- Yang D, et al. YY1-PVT1 affects trophoblast invasion and adhesion by regulating mTOR pathway-mediated autophagy. J Cell Physiol. 2020;235(10):6637-6646.
- Guan D, et al. Immunologic insights in recurrent spontaneous abortion: Molecular mechanisms and therapeutic interventions. Biomed Pharmacother. 2024;177:117082.
- Zhao X, et al. Identification of key biomarkers and immune infiltration in systemic lupus erythematosus by integrated bioinformatics analysis. J Transl Med. 2021;19(1):35.
- Villamayor L, et al. The IFN-stimulated gene IFI27 counteracts innate immune responses after viral infections by interfering with RIG-I signaling. Front Microbiol. 2023;14:1176177.
- Lim FY, et al. High-frequency home self-collection of capillary blood correlates IFI27 expression kinetics with SARS-CoV-2 viral clearance. J Clin Invest. 2023;133(23):e173715.
- Apps R, et al. Genome-wide expression profile of first-trimester villous and extravillous human trophoblast cells. Placenta. 2011;32(1):33-43.
- Li Y, et al. RNA sequencing of decidua reveals differentially expressed genes in recurrent pregnancy loss. Reprod Sci. 2021;28(8):2261-2269.
- Dankers W, et al. Failing maternal-fetal tolerance in SLE (FaMaLE): A prospective cohort study for finding the molecular mechanisms behind pregnancy complications. Lupus Sci Med. 2025;12(1):e001668.
- Xiang S, et al. Imbalance of helper T cell type 1, helper T cell type 2, and associated cytokines in patients with systemic lupus erythematosus: A meta-analysis. Front Pharmacol. 2022;13:988512.
- Tu J, et al. UC-BSC exosomes regulate Th17/Treg balance in patients with systemic lupus erythematosus via miR-19b/KLF13. Cells. 2022;11(24):4123.
- Wang W, et al. T helper (Th) cell profiles in pregnancy and recurrent pregnancy loss: Th1/Th2/Th9/Th17/Th22/Tfh cells. Front Immunol. 2020;11:2025.