本研究では、肺腺がんにおける有糸分裂崩壊に関連する8つの予後遺伝子(PDGFB、LDHA、ZEB2、H2AX、FKBP4、DMD、ANXA2、S100B)を特定し、許容可能な予測性能を持つリスクモデルを構築し、リスク群間における免疫微小環境の明確な特性の違いを明らかにしました。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
肺腺癌(LUAD)は、肺癌の中で最も一般的な亜型であり、予後が不良であることが知られている。LUADにおいて有糸分裂崩壊(mitotic catastrophe)を誘導して細胞死に至らせることは可能であるが、本疾患における有糸分裂崩壊関連遺伝子(MCRGs)の予後および生物学的意義は依然として不明である。TCGA-LUADコホートからLUADに関連する変動発現遺伝子(DEGs)をスクリーニングし、DEGsとMCRGsの共通遺伝子を定義した。機械学習を用いて予後候補遺伝子を選出した後、多遺伝子予後モデルを構築した。PDGFB、LDHA、ZEB2、H2AX、FKBP4、DMD、ANXA2、およびS100Bからなる8つの予後候補シグネチャーを確立したところ、トレーニングセットにおいて2年、3年、5年の曲線下面積(AUC)はそれぞれ0.723、0.715、0.625であり(ブートストラップ補正C-index:0.699、95% CI:0.657-0.742)、許容可能な予測信頼性を示し、GSE31210においても一貫した検証結果(AUC:0.812、0.766、0.814)が得られた。低リスク群の患者は、生存転帰が有意に良好であり、免疫浸潤の亢進、免疫スコアおよびストロマスコアの上昇、immunophenoscoreの増加、およびより活性の高い癌免疫サイクルを示した。高リスク群と低リスク群の間には、腫瘍変異負荷(TMB)および薬剤感受性に有意な差が認められた。定量PCR(qPCR)により、臨床検体における6つの予後関連候補遺伝子のトランスクリプトームプロファイルを検証した。リスクスコアと臨床ステージを組み込んだノモグラムは、良好な予測性能を示した。これらの知見は、これら8つのMCRG関連候補遺伝子が、LUADにおける患者の転帰予測およびリスク層別化に高い潜在能力を有しており、リスク群間で免疫微小環境の特性が異なることを証明している。
概要
肺がんは、世界的に最も一般的で致死率の高いがんの一つであり続けています1,2。非小細胞肺がん(NSCLC)においては、肺腺がん(LUAD)が支配的であり、全肺がん症例の約40%を占めています3,4。手術手技、分子標的治療、免疫チェックポイント阻害薬、および併用療法において大きな進歩が見られたものの、LUAD患者の臨床的な見通しは依然として芳しくありません5,6。LUADにおいて、病理学的および画像診断に基づくアプローチが広く用いられていますが、腫瘍の不均一性や分子的な特性を捉えるには固有の限界があります。対照的に、分子バイオマーカーに基づく腫瘍組織解析は、腫瘍生物学に関するより包括的な情報を提供することができ、予後評価や個別化治療戦略に寄与する可能性があります7。したがって、信頼性の高い分子バイオマーカーを特定することは、LUADの予後予測の向上および生物学的な理解を深めるために引き続き重要です。
細胞複製の不可欠なメカニズムである有糸分裂は、複製された染色体が2つの娘細胞へ正確に分配されることを保証します8。有糸分裂プロセスの調節不全は、制御不能な細胞増殖、ゲノム不安定性、および腫瘍の進行を促進する可能性があります。有糸分裂崩壊(Mitotic catastrophe; MC)は、有糸分裂の完了に失敗した際に誘発される細胞死経路であり、通常、紡錘体装置の損傷や欠陥のある細胞周期チェックポイントに起因します9。形態学的レベルでは、MCは多核化、微小核、多極紡錘体構成、および倍数化などの細胞異常として現れます10。重度の有糸分裂欠損を持つ細胞を排除するメカニズムとして、MCは腫瘍進行の抑制に寄与する可能性があります9。A549 LUAD細胞におけるp53の欠損は、有糸分裂崩壊と最終的な細胞死を誘導することができ11、これはMCとLUADに関連する細胞プロセスとの間に潜在的な関連があることを示唆しています。それにもかかわらず、LUADにおけるMC関連遺伝子(MCRGs)の予後的意義および生物学的機能は、依然として十分に解明されていません。
本研究では、TCGAおよびGEOのデータを用いて、LUADにおけるMCRGsの予後的重要性と想定される生物学的関連性を体系的に調査しました。まず、差分的発現解析および積集合解析を通じて、候補となるMCRGsを特定しました。次に、複数の機械学習アプローチを用いて候補遺伝子をスクリーニングし、予後リスクシグネチャーを構築し、その後外部検証を行いました。さらに、生存予測の精度を高めるため、リスクスコアと臨床的特性を組み込んだノモグラムを開発しました。加えて、免疫微小環境の特性解析、体細胞変異の評価、および化学療法感受性の評価を行い、特定された遺伝子の生物学的意義と臨床的有用性を検討しました。以上の結果を総合すると、LUADにおけるMCRGsの予後的潜在性が示され、バイオマーカーの開発や個別化管理に寄与する可能性があります。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
本研究はヘルシンキ宣言に準拠して実施され、プロトコルは2025年4月22日に安徽省胸科病院の倫理委員会(K2025-007)によって承認されました。研究に参加したすべての被験者からインフォームドコンセントを得ました。
データの抽出と正規化
LUADのトランスクリプトームプロファイルおよび対応する臨床データセットは、TCGAおよびGEOコホートから取得した。TCGA-LUADデータセットをトレーニングセットとし、GSE72094、GSE31210、およびGSE26939を外部検証用のコホートとして用いた(表1)。さらに、先行研究から900個のMCRGを収集した。12(補足表1)。トランスクリプトームデータは、GENCODE v36または対応するGPLプラットフォームのアノテーションファイルを用いてアノテーションを行った。プローブIDを遺伝子シンボルに変換し、重複する遺伝子はavereps関数を用いて統合し、タンパク質コーディング遺伝子のみを抽出して遺伝子レベルの発現マトリックスを作成した。TCGA-LUADトレーニングセットでは、100万個のマップ済みフラグメントあたりエキソンモデル1kbあたりのフラグメント数(FPKM)が < 50%以上のサンプルで値が1以下であったものは除外され、残りの発現値はlog2変換(log2[FPKM+1])を行った。GEOの検証コホートについては、生の発現データをダウンロードし、各プラットフォームのアノテーションファイルを用いてプローブIDを遺伝子シンボルにマッピングし、同一遺伝子に対応する複数のプローブは発現値の平均をとることで統合した。これらのデータセットは、必要に応じてlog2変換を行った。相対的な比較可能性を確保するためにコホートごとの標準化戦略を採用したため、TCGAとGEOの間でプラットフォーム間のバッチ効果補正は適用しなかった。具体的には、学習コホートと検証コホートの両方において、各データセットの平均と標準偏差を用いて遺伝子発現値をセンタリングおよびスケーリング(zスコア変換)した。その後、学習セットから得られた同一のCox回帰係数を用いて、すべてのコホートのリスクスコアを算出した。臨床的な適用性を維持し、いずれかの検証セットへの過剰適合を避けるため、学習コホートのリスクスコアの中央値を固定のカットオフ値として用い、すべての外部検証コホートにおいて患者を高リスク群と低リスク群に層別化した。年齢、性別、病理学的ステージ、TNMステージ、組織型、生存期間、生存ステータス、組織型を含む臨床情報を、利用可能な場合に抽出した。エンドポイントは全生存期間(OS)とした。生存情報または生存期間が不完全なサンプルは < 30日間を除外した。生存期間を年に変換し、生存ステータスは生存を0、死亡を1としてコード化した。
候補遺伝子の同定および機能解析
Limmaパッケージを用いて、トレーニングセットにおけるLUAD腫瘍サンプルと正常サンプルの間で発現変動遺伝子(DEG)を同定した。13以下の基準により、発現変動遺伝子(DEG)を定義した:|log2フローサイトメトリー > 0.5および調整済み pp値 < 0.05とした。続いて、RパッケージClusterGVisのmfuzzファジークラスター解析アルゴリズムを用いて、発現変動遺伝子(DEG)を異なる発現クラスターに分割した。メンバーシップスコアに基づき、各クラスターの上位5つの代表的な遺伝子に対して、ジーンオントロジー生物学的プロセス(GO-BP)解析を行った。DEGとモジュール共発現遺伝子(MCRG)の積集合を求めることで、共通遺伝子セットを導出した。また、ジーンオントロジーおよび京都遺伝子・ゲノム百科事典(GO/KEGG)を用いた機能濃縮解析により、重複遺伝子の生物学的関連性を評価した。タンパク質相互作用(PPI)ネットワークは、STRINGデータベースから取得した。14信頼度スコアを持つ相互作用のみ > ネットワークの信頼性を向上させるために、0.7が維持された。
予後関連遺伝子のスクリーニング
LUADにおける全生存期間に関連する可能性のある遺伝子を特定するため、Survivalパッケージを用いて単変量Cox回帰分析を行った。15~を持つ遺伝子 pp値 < 0.05未満を潜在的な予後指標と見なした。TCGA-LUADトレーニングコホートには、完全な生存データを持つ患者500名が含まれており、そのうち216名(43.2%)が追跡期間中に死亡イベントを経験していた。候補遺伝子数(n = 108)とイベント数(n = 216)の比率は約1:2であり、これはCox回帰分析において許容範囲内である。続いて、Least Absolute Shrinkage and Selection Operator(LASSO)回帰分析およびExtreme Gradient Boosting(XGBoost)モデルを用いて、さらに特徴量を選択した。Cox比例ハザードモデルは、glmnetパッケージのcv.glmnet関数を介してfamily = "cox"で構築した。最適な正則化パラメータは10分割交差検証を用いて特定し、最小の交差検証誤差を示すλ.min値を最適なλ値として選択した。回帰係数が非ゼロである遺伝子を候補特徴量として抽出した。XGBoostモデルでは、生存時間と生存ステータスを組み合わせてアウトカム変数とし、死亡イベントに正の値、打ち切り例に負の値を割り当てた。パラメータは、objective = "survival: cox"およびeval_metric = "cox-nloglik"とし、反復回数を100回、学習率を0.1に設定した。モデル学習後、特徴量のゲイン値を用いて遺伝子の重要度スコアを算出した。特徴量の次元数とモデルの複雑さを軽減するため、重要度スコアを降順にソートし、上位20遺伝子を保持した。LASSOとXGBoostの結果で重複した遺伝子を、候補予後遺伝子として特定した。
予後予測モデルの構築と評価
特定された候補遺伝子の多変量Cox回帰分析を用いて、予後予測モデルを構築しました。リスクスコアは、以下のように個別に算出しました:
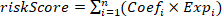 .
ここで、Coefiは遺伝子iの係数を指し、Expiはそれぞれの遺伝子発現値を示します。その後、リスクスコアの中央値をカットオフ値として、個体を高リスク群と低リスク群の2つのグループに分けました。次に、時間依存性受信者動作特性(ROC)曲線を作成しました。オーバーフィッティングの可能性を評価するため、1,000回の再サンプリング反復を用いたブートストラップ内部検証を行い、バイアス補正済みのC-indexおよび95%信頼区間を伴う時間依存性AUCを算出しました。2年、3年、および5年時点での予測生存確率と観察生存確率の一致度を評価するために、校正曲線を生成しました。さらに、RのggDCAパッケージを用いて決定曲線分析(DCA)を行い、2年、3年、および5年の時点におけるモデルの臨床的なネットベネフィットを評価し、異なる閾値確率における臨床的意思決定におけるリスクスコアの潜在的な価値を定量化しました。リスク層別化グループ間および他の臨床カテゴリー間での生存率の差は、ログランク検定を用いたKaplan–Meier(KM)生存曲線を用いて比較しました。さらに、モデルの性能に対する個々の遺伝子の寄与を明らかにするために、事後説明的解釈としてShapley Additive exPlanations(SHAP)分析を用いました。
ノモグラムの開発と外部妥当性の検証
モデルの臨床的適用性を評価するため、算出されたリスクスコアとさまざまな臨床的特徴(性別、年齢、TNMステージを含む)との関係を、Wilcoxon順位和検定またはKruskal-Wallis検定を用いて検討した。リスクスコアが独立した予後因子として機能するかどうかを評価するため、リスクスコアとともに臨床変数を多変量Cox回帰モデリングに組み込んだ。その後、生存確率の予測を個別化するため、独立した臨床的リスク因子(ステージなど)と遺伝的リスクスコアを組み合わせた予後ノモグラムをregplot Rパッケージを用いて構築した。ノモグラムで予測された生存確率と実際の生存転帰との一致性を評価するために、キャリブレーションカーブを用いた。最終的に、統合ノモグラムシステムの最終的な予測能および汎用性を、時間依存性ROC曲線およびコホート全体にわたる包括的なKM臨床サブグループ解析を通じて厳格に検証した。
免疫浸潤および免疫サブタイプ解析
LUAD患者における免疫細胞浸潤を評価するため、白血球遺伝子(LM22)シグネチャーマトリックスを用いたCIBERSORTにより、22種類の免疫細胞の相対的な割合を推定した。予後関連遺伝子の発現レベルと免疫浸潤との関係は、Spearman相関分析によって評価した。免疫スコア、ストローマスコア、腫瘍純度、およびESTIMATEスコアはESTIMATEアルゴリズムを用いて算出し、リスクグループ間の差異をWilcoxon検定で評価した。LUAD患者は、ImmuneSubtypeClassifierパッケージ16を用いて6つの免疫サブタイプに分類した。さらに、リスクグループ間での免疫サブタイプの分布を比較するためにWilcoxon検定を用いた。
免疫チェックポイント、免疫表現型スコア、およびがん免疫サイクルの解析
本研究では、LUADの免疫ランドスケープを特徴付けることを目的として、リスク層別化グループ間における21個の免疫チェックポイント遺伝子の評価にWilcoxon順位和検定を用いた17。候補となる予後遺伝子と免疫チェックポイント遺伝子の関連性は、Spearman相関を用いて分析した。異なるリスクレベルのLUAD患者における免疫チェックポイント阻害剤(ICI)への反応性の違いを評価するため、抗PD-1および抗CTLA-4治療の免疫フェノスコア(IPS)データをThe Cancer Immunome Atlas (TCIA)18から取得し、がん免疫サイクルの活性を評価するためにTracking Tumor Immunophenotype (TIP)19データベースを用いて、リスクグループ間で対応するスコアを比較した。
体細胞変異および薬剤感受性解析
TCGA変異解析ツールを用いてTCGA-LUAD症例の体細胞変異プロファイルを抽出し、リスクグループ間における変異パターンの変動を調査した。変異データの処理および可視化にはmaftoolsパッケージを使用した。各検体の腫瘍変異負荷(TMB)レベルを決定し、2つのリスクカテゴリー間で比較した。薬物ゲノム感受性解析は、Genomics of Drug Sensitivity in Cancer(GDSC)データベース20に基づき、pRRopheticパッケージを用いて実施した。各LUAD患者における抗がん剤の半数最大抑制濃度(IC50)値を予測し、リスクグループ間の差異をウィルコクソン順位和検定を用いて定量化した。
予後遺伝子の発現レベルの評価
各データセットを用いて、選定された候補のアウトカム関連遺伝子の転写レベルを評価しました。遺伝子発現と患者の予後を関連付けるため、survminer Rパッケージのsurv_cutpoint関数を用いて最適なカットオフ値を算出しました。これらの閾値に基づき、LUAD症例を後続の生存分析のために高発現サブセットと低発現サブセットに分類しました。
さらに、安徽省胸科病院から5組の対応するLUAD腫瘍および隣接正常組織のペアを取得し、続いてqPCRによる検証を行った。すべての参加者から書面によるインフォームドコンセントを得た。qPCR検証のために、6つの候補予後遺伝子(PDGFB、LDHA、ZEB2、FKBP4、DMD、およびS100B)を選定した。均質化した組織サンプルからRNA抽出試薬を用いてRNAを抽出し、次いでクロロホルム抽出およびイソプロパノール沈殿を行った。分光光度計を用いてRNA濃度と純度を測定した。6つの候補予後遺伝子のqPCR検証は、リアルタイムPCRシステムを用い、SYBR GreenベースのPCRマスターミックスで実施した。サイクル条件は、95 °Cで30秒間の初期変性後、95 °Cで20秒、55 °Cで20秒、72 °Cで20秒のサイクルを40回繰り返した。相対的な発現量は2-ΔΔCt法を用いて算出し、Glyceraldehyde-3-Phosphate Dehydrogenase(GAPDH)で標準化した。すべての試薬および器具の詳細は材料表に記載している。
統計解析
統計解析には、統計計算およびグラフ作成ソフトウェアを使用した。タンパク質間相互作用ネットワークは、ネットワーク解析ソフトウェアを用いて可視化した。正規性の評価後、正規分布を示す連続変数にはStudentのt検定を、非正規分布を示す変数にはMann-WhitneyのU検定を用いた。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
候補遺伝子の同定および機能解析
計4,915個のDEGが検出され、その内訳は発現低下したDEGが2,485個、発現上昇したDEGが2,430個であった(図1A)。機能モジュールのクラスタリング解析により、これらのDEGを6つの発現モジュール(C1-C6)に分類したところ、C1、C2、C3、およびC5モジュールが腫瘍サンプルにおいて相対的に高い発現を示した(図1B)。機能アノテーションにより、これらのモジュールは、アクトミオシン収縮環の構築、コラーゲン代謝過程、ヌクレオチド生合成過程、ロイコトリエン関連代謝、および脂肪酸酸化を含む生物学的プロセスに関連していることが示された。DEGとMCRGの積集合をとった結果、295個の重複遺伝子が同定された(図1C)。KEGGパスウェイ解析により、候補遺伝子が細胞周期、細胞老化、p53パスウェイ、AGE-RAGEパスウェイ、およびヒトT...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
LUADは主要な肺がんの一つであり、依然として公衆衛生上の大きな負担となっています21。MCは細胞死に関連するプロセスであり、深刻な有糸分裂異常を持つ細胞の除去や、腫瘍進行の抑制に寄与している可能性があります22。したがって、LUADにおけるMCRGsの潜在的な役割を探索することは、予後バイオマーカーの同定およびLUADの生物学的理解の向上に役立つと考えられます。本研究では、LUADにおけるMCRGsの予後との関連性および潜在的な機能的意義を分析し、8つの候補予後バイオマーカー(PDGFB、LDHA、ZEB2、H2AX、FKBP4、DMD、ANXA2、S100B)を同定しました。バイオインフォマティクス解析の結果、腫瘍の免疫学的景観はリスクグループ間で異なることが示唆されました。低リスク群では免疫スコアおよびストロマスコアが高く、免疫関連プロセスがより活性化していた一方、高リスク群では腫瘍純度が高いことが示されました。
差分的発現解析および交差解析を通じて、合計295個のLUAD関連MC...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者らは、利益相反がないことを宣言します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| ClusterGVis | CRAN | バージョン 0.1.2 | 遺伝子発現のクラスタリングおよび可視化 |
| Cytoscape | Cytoscape Consortium | バージョン 3.9.1 | タンパク質相互作用ネットワークの可視化 RRID:SCR_003032 |
| CFX384 リアルタイム定量蛍光PCRシステム | Bio-Rad | CFX384 Touch | qPCR試薬 |
| DMDプライマー | Tsingke | N/A | フォワード: 5’-GCTCAACCATCGATTTGCAGCC-3’ リバース: 5’-TTCAGCCTCCAGTGGTTCAAGC-3’ |
| FKBP4プライマー | Tsingke | N/A | フォワード: 5’-TGACTCCAGTCTGGATCGCAAG-3’ リバース: 5’-CTGGTTTGCAGGTGATGTGGCA-3’ |
| GEO | NCBI | オンラインツール | LUAD外部検証データセットの取得 RRID:SCR_005012 |
| GAPDHプライマー | Tsingke | N/A | フォワード: 5’-GTCTCCTCTGACTTCAACAGCG-3’ リバース: 5’-ACCACCCTGTTGCTGTAGCCAA-3’ |
| glmnet | CRAN | バージョン 4.1-8 | LASSO回帰における特徴選択 RRID:SCR_015505 |
| LDHAプライマー | Tsingke | N/A | フォワード: 5’-GGATCTCCAACATGGCAGCCTT-3’ リバース: 5’-AGACGGCTTTCTCCCTCTTGCT-3’ |
| limma | Bioconductor | バージョン 3.60.6 | DEGスクリーニング RRID:SCR_010943 |
| maftools | Bioconductor | バージョン 2.20.0 | 体細胞変異データの可視化 RRID:SCR_024519 |
| pRRophetic | CRAN | 0.5 | 薬物 IC50 値の予測 RRID:SCR_024417 |
| PDGFBプライマー | Tsingke | N/A | フォワード: 5’-GAGATGCTGAGTGACCACTCGA-3’ リバース: 5’-GTCATGTTCAGGTCCAACTCGG-3’ |
| qPCR SYBR Green Master Mix | Vazyme | Q111-02 | qPCR試薬 |
| R ソフトウェア | R Foundation | バージョン 4.2.2 | バイオインフォマティクス解析 |
| regplot | CRAN | バージョン 1.1 | 折れ線グラフの作成 |
| survival | CRAN | バージョン 3.8-3 | 生存分析およびCox回帰 RRID:SCR_021137 |
| STRING | STRING Consortium | オンラインツール | タンパク質相互作用ネットワーク解析 RRID:SCR_005223 |
| S100Bプライマー | Tsingke | N/A | フォワード: 5’-GAAGAAATCCGAACTGAAGGAGC-3’ リバース: 5’-TCCTGGAAGTCACATTCGCCGT-3’ |
| survminer | CRAN | バージョン 0.5.0 | 生存曲線のプロットおよび最適化 RRID:SCR_021094 |
| TRIzol | Tiangen | DP424 | qPCR試薬 |
| TCGA | NCI | オンラインツール | LUADトランスクリプトームおよび臨床データの取得 RRID:SCR_003193 |
| ZEB2プライマー | Tsingke | N/A | フォワード: 5’-AATGCACAGAGTGTGGCAAGGC-3’ リバース: 5’-CTGCTGATGTGCGAACTGTAGG-3’ |
参考文献
- Asada K, et al. Multi-omics and clustering analyses reveal the mechanisms underlying unmet needs for patients with lung adenocarcinoma and identify potential therapeutic targets. Mol Cancer. 2024;23(1):182.
- Sun Q, et al. Prediction of lung adenocarcinoma prognosis and diagnosis with a novel model anchored in circadian clock-related genes. Sci Rep. 2024;14(1):18202.
- Ho KH, et al. Cancer Essential Genes Stratified Lung Adenocarcinoma Patients with Distinct Survival Outcomes and Identified a Subgroup from the Terminal Respiratory Unit Type with Different Proliferative Signatures in Multiple Cohorts. Cancers (Basel). 2021;13(9):2128.
- Zhang J, et al. Unraveling the Expression Patterns of Immune Checkpoints Identifies New Subtypes and Emerging Therapeutic Indicators in Lung Adenocarcinoma. Oxid Med Cell Longev. 2022;2022:3583985.
- Zheng T, et al. The pathological significance and potential mechanism of ARHGEF6 in lung adenocarcinoma. Comput Biol Med. 2023;158:106894.
- Yu Y, et al. Predicting potential therapeutic targets and small molecule drugs for early-stage lung adenocarcinoma. Biomed Pharmacother. 2024;174:116528.
- Guo Q, et al. Heterogeneous mutation pattern in tumor tissue and circulating tumor DNA warrants parallel NGS panel testing. Mol Cancer. 2018;17(1):131.
- Wang S, et al. Development and validation of a mitotic catastrophe-related genes prognostic model for breast cancer. PeerJ. 2024;12:e18075.
- Mao Z, et al. Mitotic catastrophe heterogeneity: implications for prognosis and immunotherapy in hepatocellular carcinoma. Front Immunol. 2024;15:1409448.
- Zhang QY, et al. Multiple Regulatory Mechanisms of Post-Translational Modifications and Therapeutic Potential of Mitotic Catastrophe. Int J Mol Sci. 2026;27(8):3370..
- Minemoto Y, et al. Loss of p53 induces M-phase retardation following G2 DNA damage checkpoint abrogation. Arch Biochem Biophys. 2003;412(1):13-9.
- Liu Y, et al. Developing a prognosis and chemotherapy evaluating model for colon adenocarcinoma based on mitotic catastrophe-related genes. Sci Rep. 2024;14(1):1655.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Szklarczyk D, et al. The STRING database in 2023: protein-protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 2023;51(D1):D638-d46.
- Lei J, et al. Clinicopathological characteristics of pheochromocytoma/paraganglioma and screening of prognostic markers. J Surg Oncol. 2023;128(4):510-8.
- Thorsson V, et al. The Immune Landscape of Cancer. Immunity. 2018;48(4):812-30.e14.
- Guo Y, et al. Novel immune checkpoint-related gene model to predict prognosis and treatment responsiveness in low-grade gliomas. Heliyon. 2023;9(9):e20178.
- Sun X, et al. A transcriptomic-based model associated with PARP inhibitor sensitivity and immunogenic signatures in ovarian cancer. Discover Oncology. 2026;843.
- Wang L, et al. Identification of an ac4C modification related gene signature for predicting prognosis in laryngeal squamous cell carcinoma patients based on single-cell analysis and machine learning. 2026.
- Lin W, et al. Screening of Molecular Markers of Cisplatin Resistance in Lung Adenocarcinoma and Functional Verification Based on TCGA Database. Cancer Research on Prevention and Treatment. 2024;49(6):569-74.
- Gao W, et al. Promising therapeutic efficacy and safety of a novel integrin α6-targeting peptide-drug conjugate in lung adenocarcinoma. Molecular Cancer 2025;24(1):190.
- Vitale I, et al. Mitotic catastrophe: a mechanism for avoiding genomic instability. Nat Rev Mol Cell Biol. 2011;12(6):385-92.
- Liu M, et al. CDK1-mediated phosphorylation of LDHA fuels mitosis through LDHB-dependent lactate oxidation. EMBO Reports 2025;26(20):4923-4949.
- Zhang W, et al. Inhibition of LDHA suppresses cell proliferation and increases mitochondrial apoptosis via the JNK signaling pathway in cervical cancer cells. Oncology reports 2022;47(4).
- Mangé A, et al. FKBP4 connects mTORC2 and PI3K to activate the PDK1/Akt-dependent cell proliferation signaling in breast cancer. Theranostics. 2019;9(23):7003-7015.
- Meng W, et al. FKBP4 Accelerates Malignant Progression of Non-Small-Cell Lung Cancer by Activating the Akt/mTOR Signaling Pathway. Analytical cellular pathology (Amsterdam) 2020;2020:6021602.
- Xiu-Ying H, et al. PDGFBB facilitates tumorigenesis and malignancy of lung adenocarcinoma associated with PI3K-AKT/MAPK signaling. Sci Rep. 2024;14(1):4191.
- Sharma D, Singh M, Rani R. Role of LDH in tumor glycolysis: Regulation of LDHA by small molecules for cancer therapeutics. Semin Cancer Biol. 2022;87:184-95.
- Zhang P, et al. An Epithelial-Mesenchymal Transition-Based Prognostic Model for Survival Prediction in Lung Adenocarcinoma: COL5A2 and ZEB2. Current gene therapy 2026.
- Xu X, et al. Proteomic landscape of lung adenocarcinoma precancerous lesions reveals mitochondrial dsRNA-associated immune and stress responses. American journal of cancer research 2025;15(9):3888-3903.
- Li P, et al. Peripheral blood mononuclear cell DNA methylation biomarkers for prognostic stratification in Chinese lung adenocarcinoma: a genome-wide epigenetic profiling study. Clinical Epigenetics 2025;17(1):177.
- Chaudhary S, et al. Dissecting the MUC5AC/ANXA2 signaling axis: implications for brain metastasis in lung adenocarcinoma. Exp Mol Med. 2024;56(6):1450-60.
- Kondrup M, Nygaard AD, Madsen JS, Bechmann T. S100B as a biomarker for brain metastases in patients with non-small cell lung cancer. Biomed Rep. 2020;12(4):204-8.
- Jones L, Naidoo M, Machado LR, Anthony K. The Duchenne muscular dystrophy gene and cancer. Cell Oncol (Dordr). 2021;44(1):19-32.
- Peng G, Yan J, Shi P, Li H. LINC01140 Hinders the Development of Breast Cancer Through Targeting miR-200b-3p to Downregulate DMD. Cell Transplant. 2023;32:9636897231211202.
- Alnassar N, et al. Downregulation of Dystrophin Expression Occurs across Diverse Tumors, Correlates with the Age of Onset, Staging and Reduced Survival of Patients. Cancers (Basel). 2023;15(5):1378.
- Luce LN, Abbate M, Cotignola J, Giliberto F. Non-myogenic tumors display altered expression of dystrophin (DMD) and a high frequency of genetic alterations. Oncotarget. 2017;8(1):145-55.
- Hu Z, et al. IL6-STAT3-C/EBPβ-IL6 positive feedback loop in tumor-associated macrophages promotes the EMT and metastasis of lung adenocarcinoma. J Exp Clin Cancer Res. 2024;43(1):63.
- Ugel S, Canè S, De Sanctis F, Bronte V. Monocytes in the Tumor Microenvironment. Annu Rev Pathol. 2021;16:93-122.
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
この記事は公開されました
動画は近日公開