ここでは、「Four Cups」行動実験パラダイムを用いて、新規、短期、および長期の関係における社会的認識を測定するための詳細な手順を概説します。このパラダイムの利点と潜在的な用途に加え、結果を正確に解釈するための重要な情報についても説明します。
この記事について
サマリー
要約
社会的記憶とは、記憶し認識する能力のことである 同種個体。これは哺乳類の行動における基本的な側面であり、マウスやヒトなどの社会性の高い哺乳類において、生存上の利点があることが証明されています。 齧歯類、特にマウスは、社会記憶およびその根底にあるメカニズムを研究するために広く用いられている、確立した動物モデルである。 既存のほとんどの 社会記憶 これらのパラダイムは、主に短期的な社会的認識を評価するものであり、そこでは関係の持続期間や親密度が 被験者と薬剤の間 は5~15分間である。したがって、既存のパラダイムは および過去の研究 長期的な関係から得られる社会的記憶は収集せず、「新規性」対「短期的な親近感」という二分法に焦点を当ててください。 (空白) 社会的記憶のメカニズムに関する理解には大きな空白があります。この空白を埋めるため、我々は親密度(familiarity)の異なるレベルに対するマウスの反応を捉えるシンプルなアッセイを設計し、複雑な社会的記憶の想起を観察可能かつ定量化可能な状況に置きました。4つのカップを用いたパラダイムでは、被験マウスが 自由に探索する (入力テキストがありません。翻訳するソーステキストをご提供ください。) アリーナ 含有する 各コーナーに配置された4つの有孔カップ。これらのカップには3つの 剤 親和性のレベルが異なるマウス(社会的刺激):長期的に親しい個体(同籠個体:1か月間共同飼育)、短期的に親しい個体(10分間の事前曝露)、未知の同種個体、および対照としての空のカップ。CD-1系雄マウスは、未知の個体および長期的に親しい個体を探索する傾向を示す。 このパラダイムにおいて、短期的に馴染みのあるマウスを過剰に調査すること。このタスクは 実演する 親密度を認識し、攻撃的な行動を最小限に抑えつつ、依然として 〜を制御して 曝露歴。この新規アッセイは、直接的な比較を可能にするプラットフォームを提供します。 社会的行動の神経メカニズム 長期、短期、および新規記憶における記憶 個体。4つのカップを用いたパラダイムは、斬新な 測定 のため 既存の短期認識アッセイを補完する、長期的な親近感認識。
概要
社会的記憶は哺乳類の社会行動の中核的な特徴であり、マウスやヒトのような高度に社会的な種において特に発達しています。げっ歯類において、 他個体の認識 は、集団の結束、優位階層、交尾行動、親によるケアなど、家族や同種個体群の中での生存に不可欠な行動ダイナミクスを支えています1,2。 動物の生存における進化上の利点に加えて、ヒトにおける社会的記憶の障害は、自閉スペクトラム症、統合失調症、アルツハイマー病を含む、多くの神経精神疾患および神経疾患に共通して見られる顕著な特徴です3,4,5,6。社会的認識は社会的な種の日常的な機能にとって基本的であり、臨床的にも明確な重要性を持つため、その多面的な性質と神経基盤を正確に捉える行動解析法を開発することが極めて重要です。既存のパラダイムではマウスの社会的認識の一部の側面を測定できますが、ほとんどの解析法は、分単位または時間単位で形成された短期的な関係と未知の個体を比較することで新規性嗜好を 評価するように設計されており、 長期的な社会的関係の 認識を 定量化するものではありません 。
3チャンバーパラダイムや馴化・脱馴化パラダイムなどの既存のアプローチでは、多くの場合5~15分に限定されるような、ごく短時間の事前曝露後の新奇性好みを評価します7,8,9,10,11。これらの手法は マウスにおける このような 短期的な社会的 記憶の 神経メカニズム について 実質的な知見を 提供してきました12,13。 しかし、 自然な社会的記憶および社会機能には、同居、長期的な 社会階層、あるいは交配パートナーを通じて構築される、長期的な関係において作用する特有のメカニズムを組み込む必要があります 。一部の研究では、同腹子14や、被験体と最大72 h15,16まで共同飼育した既知のマウスを用いて3チャンバーパラダイムを用いていますが、このパラダイムの主な用途は依然として「新奇か既知か」という単純な二分法に集中しています。そのため、複数の異なる既知のマウス間での比較が制限されます。確立された社会的認識パラダイムが 短期的な関係の 研究に偏っているため、長期的な関係における社会的認識の根底にある神経メカニズムに関する知識には、明確な空白があることが分かります
この制限に対処するため、 我々は、シンプルで柔軟なアッセイである「4カップ・パラダイム」を開発しました。 分化させるように設計された 〜の認識 1回のテストセッション内で複数の社会的親密度レベルを評価します。このパラダイムでは、被験マウスがオープンアリーナの4つのコーナーを探索します。 それぞれ 含有する a 穿孔した カップ 保持 a 同種の またはコントロール用の空のカップ。 カップには、長期的に親しみのある同種の個体(ケージメイト)が入っています。 短期馴化 同種の 事前の経験が限られている状態で (10分)、a 新規の マウス、および (翻訳するソーステキストを入力してください。) 対照群。探索時間は、社会的認識および社会的好みの定量的指標として機能する。この構成により、直接的な身体的接触や潜在的な攻撃的遭遇を最小限に抑えつつ、親密度レベル間での同時比較が可能となる。
プロトコル
動物を用いるすべての処置は、 施設指針に従って実施し、フロリダ大学施設 動物ケアおよび使用委員会(IACUC) の承認を得なければなりません。
1. 動物の準備と飼育
- 成人を使用してください 同性の 群飼育マウス すべての実験において。 実験的なテストを行う前に、ハンドリングに慣れさせ不安を軽減させるため、少なくとも2日間マウスのハンドリングを行ってください。
- マウスを~に飼育する 逆明暗サイクル下にある標準的な実験用ケージで飼育し、餌と水は自由摂取とした。
注:代表的な実験には、成体のCD-1およびC57BL/6マウス(生後3〜4ヶ月)を用いた。マウスは1ケージあたり3〜4匹のグループで飼育した。代表的なデータセットには、CD-1マウスのオス10匹、メス12匹、およびC57BL/6マウスのオス31匹が含まれている。行動試験は、被験体の活動期(暗期)に実施する必要がある。本研究に含まれるマウスは午前9時から午後6時の間に試験を行い、逆転明暗サイクル(午前8時から午後8時までを暗期とする)で飼育した。 - 長期的に馴染みのあるエージェントを、〜と定義する。 同一系統かつ同性のケージメイト 対象のマウスと同じケージ内で、最低でも(以下)の間、同居していた 試験の3~4週間前。
- 短期的な親近個体および未知の同種個体を選択する 試薬 被験マウスと同系統かつ同性の個体から。
- 新規のマウスが、被験マウスに対して事前に身体的または嗅覚的な接触がないことを確認してください。
- 2匹の個体における同様の嗅覚的手がかりを避けるため、異なるホームケージから、新規個体1匹と短期的に親近感のある個体1匹を選択してください。
注: 使用したすべての動物のおおよその週齢(または月齢)を記録し、新規かつ短期間使用する薬剤を1日に何度も繰り返し使用することを最小限に抑えてください。薬剤を再利用する場合は、以下の項目を提示してください。 >ストレスによる影響を避けるため、テスト試行の間はホームケージ内で2時間の休息時間を設ける。
2. アリーナのセットアップ
- (ここに〜を)配置します。 洗浄、 正方形のオープンフィールドアリーナ(49.5 cm x 49.5 cm x 49.5 cm; 材料リスト)を、静穏な行動試験室で行う。
- 高さのあるランプまたはオーバーヘッドランプ1灯を使用し、以下の設定に調整して、当該領域を照らします。 約8~20ルクス。
- アリーナの四隅に、同一重量の穴あきプラスチックカップを4つ配置する(図1A).
- 可能な限り、視覚的に同一のカップを使用してください。異なる色のカップを使用する場合は、試行間でカップの割り当てと配置をカウンターバランスさせてください。
- 各カップの両端を押さえます。 洗浄 アリーナの壁際に配置してアクセスを制限し、潜伏行動を最小限に抑え、探索角度を標準化します。
- 脱走を防ぐのに十分な重量があり、かつ、這い上がりを防ぐのに十分な高さのあるカップを使用してください。
注:本研究では、代表的なデータカップとエージェントの配置を、色付きのプラスチックカップを時計回りに回転させることで被験者間で擬似ランダム化し、同時にエージェントのタイプを試行ごとに反時計回りに移動させた。
- 配置する カメラ ~が十分高い(ため) アッセイ全体 行動コーディング中の死角を避けるため、ボックス全体がフレーム内に収まるようにします。また、ボックスの床面全体で、反射を最小限に抑え、均一な照明を維持します(図1A).
- 試行ごとに、以下のものを用いてアリーナの床とカップを徹底的に洗浄してください。 適切な消毒剤、 その後、水ですすぎ、残留した臭いを除去します。
- 再導入する前に、アリーナを完全に乾燥させてください。 動物
3. 0日目のアリーナへの慣らし
- 被験体とそのケージメイトを、4つの空の有孔カップが置かれたアリーナに入れ、20分間自由に探索させる。
注:テザー実験を行う場合は、被験体を個別に馴化させる。追加の馴化セッションが必要な場合がある。1日での馴化後、マウスがアリーナ全体を十分に探索しない場合は、複数日の馴化を行うことが推奨される。 - すべてのマウスをアリーナから取り出し、ホームケージに戻す。
- すべてのソーシャルエージェントを10分間カップの下に置き、拘束状態に馴化させる。同じホームケージのエージェントは、1匹につき1つのカップを用いて同時に馴化させる(図 1B)。
- 新しいホームケージからマウスを導入する前に、アリーナとカップを洗浄する。
注:セッションを開始する前に、室内に運搬してから少なくとも15分間、マウスを休ませる。
4. ベースライン
- セクション2に従ってアリーナを設置してください 。すべての実験日にわたって、アリーナの構成を同一に維持します 。
- 4つの空のカップを配置したアリーナ に被験体を入れ 、10分間自由に探索させます。
注: 録画は途中で停止させず、現在の試行 の すべての段階を通じて継続的に記録してください 。
5. 短期取得
- 重量のある穴あきカップを用いて被験体を固定し、指定の "短期馴化" 薬剤 あるいは、清潔なケージ内で被験体を短期作用剤に曝露させます。
- アリーナ曝露を行う場合は、指定された短期馴化個体を閉じ込めてください。 薬剤 アリーナ内の穿孔カップ1つの下に配置し、残りの3つのカップはそのままにする 入力がありません。翻訳するテキストをご提示ください。
- リリース 被験者 および 10分間、自由に探索させる(図1B).
注意:アリーナ内で短期間の薬剤に曝露させる方法を用いる場合は、空間的なバイアスを避けるため、短期間の親近薬剤に使用するコーナーを被験体ごとに交代させてください。
6. 試行間間隔 (ITI)
- 短期親和 エージェント を回収し、ホームケージに戻す。被験マウスをアリーナ に単独で残し、10 min の間、自由に移動させる。
- テスト 相に向けて、 新規 および長期親和 エージェントマウスを集める。
注:短期親和エージェントは、短期獲得(セクション5)で使用したのと同じカップに戻す。これは、アリーナで短期獲得を行う場合に、空間的な位置による新規性を避けるために推奨される。
7. 社会的認識フェーズ
- 被検マウスに、さらに重り付きの穿孔カップを設置します。
- 3つの重み付き有孔カップのそれぞれの下にマウスを1匹ずつ配置します。 長期的に親しい個体(ケージメイト)、短期的に親しい個体、および未知の同種個体。 コントロールとして、指定した4杯目のカップを空のままにしておきます。
注:行動スコアリング時に薬剤の配置を識別できるよう、カップの蓋にラベルを貼ってください。 - 被験マウスから穿孔カップを取り外す。 アリーナの中央に配置し、10分間自由に探索させる(図1A).
- (期間の)終了時に、すべてのマウスを排除してください。 10分 間隔をあけ、録画を停止します。
- すべてのマウスをホームケージに戻してください。
- 次回の試行前に、アリーナとカップを十分に洗浄してください。
注意:破損に備えて、交換用のカップを用意しておいてください。
8. 行動スコアリング
- Behavioral Observation Research Interactive Software (BORIS)などの、手動アノテーションが可能な行動解析ソフトウェアに、録画したすべてのビデオをインポートします。
注:ケージメイトの配置に関する行動スコアリングは、各カップの上にエージェントIDが記載されたラベルが貼られており、ビデオで確認可能であったこと、またケージ番号が推測可能であったことから、盲検化されていなかった。ただし、スコアラーは表示されているラベルを意識的に注視せず、新規エージェントおよび短期エージェントの正体については盲検化されていた。すべてのスコアラーは、事前に定義された探索行動の操作的定義および標準化されたスコアリング基準に従った。 - スコアリングを開始する前に、行動マトリックスを定義してください。
- 調査回(investigation bout)を、マウスが鼻先をその中に入れた状態と定義する。 1 cm カップの(〜している間に) 呈している 持続的な調査姿勢。
注: カップに対する咀嚼およびかじり動作を、探索行動(investigation bouts)に含める。 - 10分間の社会的認識テストフェーズにおける、各カップに対する総探索時間を手動でアノテーションしてください。 必要に応じて、ベースラインと収集データのスコア付けを行ってください。
注:各カップを取り囲む1cmの半円形の関心領域(ROI)を用いて、自動ポーズトラッキングを行うことができる。 - 〜の注釈付きデータをエクスポートする 後続の 統計解析
結果
4カップパラダイムのプロトコルに従った結果、CD-1雄マウスは、長期的に親近感のある個体(ケージメイト)、短期的に親近感のある個体、および未知の同種個体に対して、異なる社会的探索行動を示した(図2)。各エージェントについて、10分間の社会的認識フェーズ中に、そのエージェントの探索に費やした秒数と空のカップの探索に費やした秒数に基づき、識別指数(DI)を(エージェント − 空カップ)/(エージェント + 空カップ)として算出した。この指数はShapiro-Wilk検定に基づき正規分布していたため、データの正規性を仮定した統計検定を用いた。マウスは、短期的に親近感のある同種個体と比較して、未知の同種個体に対して有意に高い識別能を示した(図2; 未知 vs 短期 t(9) = 3.70, Bonferroni-Holm補正 p = 0.01)。また、このパラダイムにより、マウスは短期的に親近感のある同種個体と比較して、長期的に親近感のあるケージメイトに対して有意に高い識別能を示すことが明らかになった(図2; ケージメイト vs 短期 t(9) = 2.87, Bonferroni-Holm補正 p = 0.04)。未知の同種個体とケージメイトの間の識別能に有意な差は認められず(図2; 未知 vs ケージメイト t(9) = -1.13, 補正 p = 0.29)、マウスは短期的に親近感のあるマウスよりも、未知および長期的に親近感のある同種個体の両方を優先的に探索することが示唆された。空のアリーナでのベースライン期間中における各カップ位置での探索時間は、その後にどの社会的エージェントがその特定のカップ位置に配置されるかにかかわらず差がなく、結果に影響を与える事前のカップ嗜好がなかったことが確認された(未知ベースライン vs ケージメイトベースライン t(9) = -1.99, p = 0.23; 未知 vs 短期ベースライン t(9) = -1.97, p = 0.23; ケージメイト vs 短期ベースライン t(9) = 0.54, p = 0.60)。
対照的に、CD-1雌マウスでは、新規個体、短期的に慣れた個体、および長期的に慣れた同種個体の間での識別指数に有意な差は見られなかった(図 3)。新規個体と短期的に慣れた個体(p = 0.35)、新規個体とケージメイト(p = 0.69)、または短期的に慣れた個体とケージメイト(p = 0.70)の間に有意な差は観察されなかった。雌マウスは空のカップ越しにすべての個体を幅広く探索しており、このタスクにおいて明確な行動パターンを示した。これは、雄マウスと比較してより広範な社会性を反映している可能性がある。
同様に、C57BL/6系統の雄マウスにおいても同じ方向性の傾向が見られ、短期的に親近感のある個体よりも、未知の同種個体に対してより強い識別傾向を示した。この差はボンフェローニ・ホルム補正後、有意水準に近づいたが、有意には至らなかった。これは、CD-1系統の雄よりも、このより大きなC57BL/6コホート(n = 31)において個体間分散が大きかったことを示唆している(図4; 補正後 p = 0.05)。未知の個体とケージメイトの間(p = 0.62)、および短期的に親近感のある個体とケージメイトの間(p = 0.62)に有意な差は認められなかった。これらの結果は、CD-1系統の雄で見られたケージメイトに対する強い探索行動が、系統や性別によって異なることを示唆している。
社会的優位性がケージメイトの探索に寄与したかどうかを判断するため、尿標識のDavidスコアとケージメイト識別指数との相関を調べた。CD-1雄マウス(Pearsonのr = 0.28, p = 0.4)およびC57BL/6雄マウス(Pearsonのr = 0.10, p = 0.57)のいずれにおいても有意な相関は見られず、社会的な順位はケージメイト識別指数に影響を与えていないことが示唆された。
以上の結果から、4つのカップを用いたパラダイムにより、1回の行動セッション内で、長期および短期的な親近感、ならびに社会的新規性を同時に評価しつつ、社会的探索の差異を検出できることが示されました。重要な点として、本アッセイにおける行動は、性別や系統によって影響を受ける可能性があります。
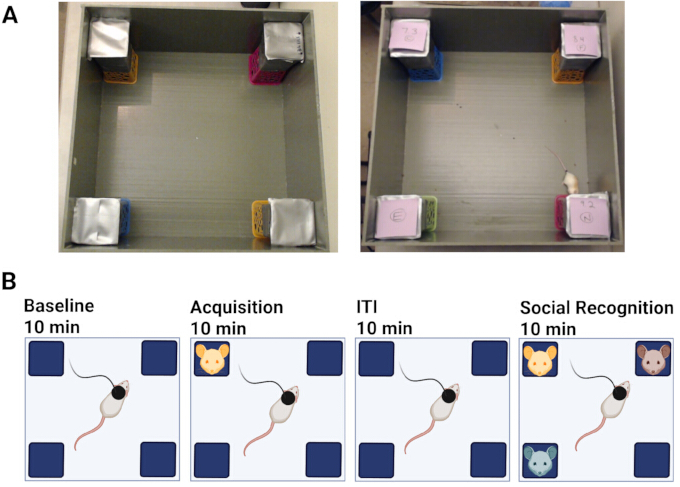
図14つのカップ・パラダイムのセットアップおよび実験プロセス. (A左:4つの穴あき空カップが配置された、4カップパラダイムボックス。右:エージェントを配置した4つの穴あきカップがある4カップパラダイムボックスを探索する被験体。ラベルは、正確な行動スコアリングを容易にするため、社会的エージェントの識別を示している。B) パラダイム1日目の行動概略図。マウスの色は個体識別を示している。なお、画像はカメラのフラッシュを使用して撮影されているため、実験に使用した8~20 luxの照明条件に比べてアリーナが明るく見えている。 この図の拡大版を表示するには、ここをクリックしてください。
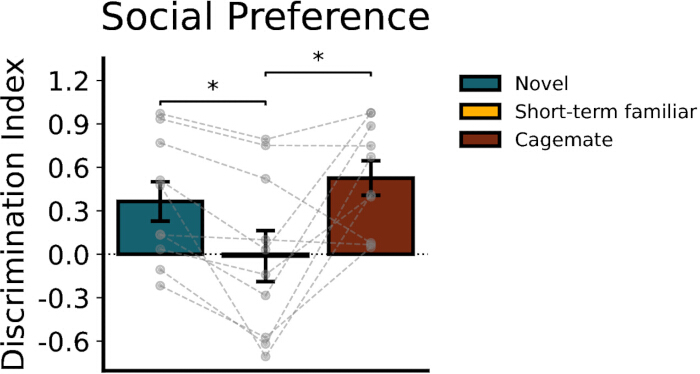
図2: CD-1系雄マウスにおける4カップ・パラダイムを用いた社会的選好性試験10分間の社会的認識フェーズにおける、未知の個体、短期的に慣れた個体、および長期的に慣れた個体(ケージメイト)の同種個体の調査における識別指数(DI)。DIは(エージェント-空)/(エージェント+空)として算出した。マウスは、短期的に慣れた同種個体と比較して、未知の個体およびケージメイトの同種個体に対して有意に高い識別能を示した(p < 0.05)であった一方、新規個体とケージメイトの識別間には有意な差は認められなかった。データは10匹のマウスの平均値 ± 標準誤差として示している。統計的比較は、対応のある[t検定]を用いて行った。 t-多重比較のためのボンフェローニ・ホルム補正を用いた検定。*p < 0.05. この図の拡大版を表示するには、ここをクリックしてください。
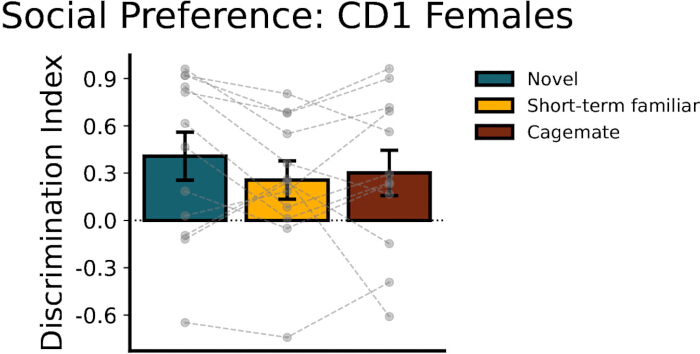
図3CD-1雌マウスにおける4カップパラダイムを用いた社会的好みの評価10分間の社会認識フェーズにおける、新規個体、短期的に馴染みのある個体、および長期的に馴染みのある個体(ケージメイト)という同種の個体に対する識別指数(DI)。DIは (agent – empty)/(agent + empty) として算出した。3種類の社会的刺激間で、識別指数に有意な差は認められなかった。データは12匹のマウスにおける平均値 ± 標準誤差として示している。統計的比較には対応のある[検定]を用いた。 t-多重比較のためのボンフェローニ・ホルム補正を用いた検定。*p < 0.05. この図の拡大版を表示するには、ここをクリックしてください。
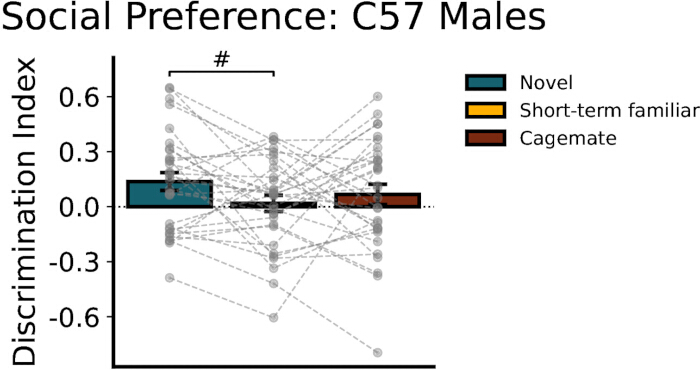
図4C57BL/6雄マウスにおける4カップパラダイムを用いた社会的好みの評価10分間の社会的認識フェーズにおける、新規個体、短期慣習個体、および長期慣習(同ケージ)個体の識別指数(DI)。DIは (agent − empty)/(agent + empty) として算出した。短期慣習個体よりも新規個体をより強く識別する傾向が観察されたが、ボンフェローニ・ホルム補正後には有意ではなかった(p = 0.05)。新規個体とケージメイト間、および短期親近個体とケージメイト間の間に、有意な差は認められなかった。データは31匹のマウスの平均値 ± 標準誤差として提示している。統計比較にはペアード(対応のある)を用いて行った。 t-多重比較のためのボンフェローニ・ホルム補正を用いた検定。 #p < 0.06. この図の拡大版を表示するには、ここをクリックしてください。
ディスカッション
他の実験室環境において、これらの社会的ダイナミクスを効果的かつ信頼性高く測定するために、4杯のカップ・パラダイムを適用する際の重要な検討事項があります。0日目の慣らしは、アリーナやカップに対する非社会的な新規性駆動の探索を減少させます。これを行わないと、テスト中の社会的調査が遮られてしまう可能性があります7,8,9。また、短期間の親近感形成(familiarization)の時間を精密に制御することも不可欠です。曝露時間のわずかな違いが、その後の好みのパターンを大きく変える可能性があるためです8,9,10。10分間の親近感形成期間は、強固な短期的社会記憶を形成しつつ、短時間の曝露期間を用いて既知個体と未知個体を区別する、既報の社会認識パラダイムと整合性を保つために選択されました7,8,10。さらに、繰り返しの短時間曝露ではなく、長期の同居を通じて安定した長期的な社会的親近感を形成させるため、3〜4週間の共同飼育期間が設定されました。この期間は、持続的な社会的相互作用と、ケージメイト間の永続的な親近感の形成に十分な機会を提供します10。10分間の親近感形成期間と3〜4週間の共同飼育期間を区別したのは、同一の行動セッション内で、質的に異なる2つの親近感レベル(最近の記憶と長期的な記憶)を作り出すためです。実験中、マウス固有の空間的バイアスを制御するために、試行を通じてカップの位置に対するエージェント個体の配置をカウンターバランスさせることが必要です7,8。同一のエージェントマウスを複数の試行で繰り返し使用すると、エージェントのストレスレベルが変化し、その結果、被験体の調査行動が変化する可能性があります。潜在的な混入変数を最小限に抑えるため、可能な限り同一のテスト日内でエージェントマウスを繰り返し使用せず、エージェントの個体とカップの位置を被験者間でカウンターバランスさせました。加えて、社会的優位性は社会的調査に影響を与える可能性があるため、縄張りベースの優位性とDavidスコアを用いて優位階層を評価しました。CD-1系雄マウスおよびC57BL/6系雄マウスにおいて、Davidスコアとケージメイト識別指数の間に有意な関係は認められず、観察された長期親近個体への選好は、優位性によって説明されるものではないことが示唆されました。解析においては、評価者間および実験コホート間での再現性を確保するために、調査行動、特に調査時間の操作的定義を統一することが不可欠です。すべての調査ベースの社会パラダイムが直面する潜在的な課題の一つに、調査時間がほぼゼロとなり比較ができなくなる「底効果(floor effects)」があります。社会的調査レベルが低いマウス系統では、可視光照明をさらに減らし、赤外線ビデオトラッキングを使用することで、不安を軽減し探索行動を増加させることができる可能性があります。
本プロトコルは、実験目的 depending on depending on 実験目的によって柔軟に変更や修正が可能ですが、特定の調整を行う際には慎重な検討が必要です。カップの材質は、本アッセイにおける重要な変数です。本プロトコルでは穴あきのプラスチック製カップを使用していますが、より小さな穴が開いた重みのある金属製カップを使用すると、軽量なプラスチック製カップに比べて、かじりつきや脱出の試みを減少させられる可能性があります。プラスチック製カップの使用は、かじりつきやかじり、登る動作などの操作行動を増加させる可能性があるため、スコアリング中にこれらを監視し、記録する必要があります。代替策として、穴あきのカップを、各コーナーを中央のアリーナから分離しつつ、嗅覚および限定的な視覚的コミュニケーションを維持できる、背の高い穴あき垂直仕切りに置き換える方法があります。この設計により登る行動をさらに抑制できる可能性がありますが、取り外し可能な穴あきカップを使用すれば、標準的なオープンフィールドアリーナを、恒久的な改造を行うことなく、迅速に4カップパラダイムに転換できるという実用的な利点があります。カップへの過剰な干渉は、カップの重量を増やす、穴のサイズを変更する、または色を統一してバイアスの原因を減らすことで軽減できます。さらに、意図しない慣れによる影響を軽減するため、エージェントマウスはカウンターバランスさせ、1日の試験内で再利用しないようにしてください。
4カップ・パラダイムには、いくつかの制限があることを認識しておく必要があります。社会的な相互作用が穿孔された障壁によって制限されているため、このアッセイでは、直接的な身体的接触よりも、嗅覚および限定的な視覚的手がかりに基づく、被験者主導の非相互的な探索が主に評価されます8,9。さらに、物理的および視覚的障壁としてカップを使用することで、探索行動の解釈に曖昧さが生じる可能性があります。ケージメイトへの探索行動の増加が観察された場合、特にCD-1系統のオスにおいて、それが単なる社会的認識を反映しているのか、あるいは探索と親和的動機(例:プラスチックカップをかじってケージメイトの脱出を助けようとするなど、親しい同種個体に対する援助に関連した行動)が組み合わさったものであるのかは不明確なままです。これらの考慮事項は、慎重な解釈の重要性と、可能な限り補完的な行動アッセイを併用することの重要性を強調しています。支配階層、親和的相互作用、および過去の社会的経験を含む、ケージメイト間の既存の社会関係も、探索の好みに寄与している可能性があります。しかし、支配順位とケージメイトへの探索行動との間に明らかな関連性は観察されませんでした。それにもかかわらず、これらの要因は系統、飼育条件、および実験パラダイムによって異なる可能性があり、長期的な親密度による好みを解釈する際に考慮されるべきです。
既存の社会的認識アッセイと比較して、4カップ・パラダイムでは、1回の行動セッション内で、長期的に親近な個体、短期的に親近な個体、および新規の同種個体など、複数のエージェントを同時に比較することが可能です。3チャンバー法や習慣化・脱習慣化アッセイなどの従来のパラダイムは、主に短期間の曝露後の短期的な新規性好みを評価するものです7,8,9,10。また、先行研究では、制限のない社会的相互作用パラダイムや、社会的親近感を評価するために設計された修正マルチチャンバー・アリーナを用いて、新規の同種個体とともに長期的なケージメイトを組み込む手法も導入されています17,18。しかし、これらのアプローチでは、同一のアッセイ内で長期的に親近な個体、短期的に親近な個体、および新規の社会的刺激を同時に比較することはできません。短期的なエージェントと併せて長期的なケージメイトを組み込むことで、4カップ・パラダイムは、長期的な同居から生じる持続的な社会的記憶を調査する手段を提供します。雄および雌のCD-1マウスの両方から得られた代表的なデータは、4カップ・パラダイムが雌雄にかかわらず適用可能であり、性別特有の行動パターンを示すことを実証しています。同様に、CD-1およびC57BL/6マウスの両方から得られた代表的なデータは、4カップ・パラダイムが一般的に使用される複数の実験用系統にわたって正常に実施できることをさらに示しています。社会的認識と新規性好みはマウス系統によって異なることが多いものの7,19、両系統の雄で観察された親近感識別の全体的なパターンは、このアッセイが広く適用可能であることを示唆しています。とはいえ、社会的認識行動は系統、性別、年齢、および実験的コンテキストによって異なる可能性があるため、研究者は自身の問いに関連する特定の動物モデルにおいて本アッセイを検証すべきです。さらに、このパラダイムは4アームまたは4チャンバーのアリーナに適応させることも可能ですが、オープンフィールド・アリーナで実施することで、ナビゲーションおよび空間記憶と社会的記憶をより明確に分離できます。異なる区画やアームを移動する場合、空間記憶の負荷が高くなります。したがって、社会的記憶のメカニズムを調査する場合、空間記憶は評価すべき重要な変数となります。Netserら(2017)も、空間ナビゲーションの必要性を最小限に抑える類似の2チャンバー・アリーナの代替案を提案する際、典型的な3チャンバー・アッセイ・アリーナに関するこれらの注意点について論じています20。本手法は、社会的親近感の神経表現、社会的認知の縦断的変化、および長期的な社会的記憶が選択的に変化する条件を調べる研究に適しています。
開示事項
著者は開示すべき事項はありません。
謝辞
本研究は、NPCに対するMcKnight Neuroscience AwardおよびKlingenstein Neuroscience Awardの支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 行動スコアリングソフトウェア | Behavioral Observation Research Interactive Software | Version 9.12.7 | 手動イベントアノテーション用ソフトウェア |
| オープンフィールドアリーナ | Rafferty Machine and Tool | 特注 | 構造用FRPガラス繊維シート製、正方形アリーナ (49.5 cm x 49.5 cm x 49.5 cm);不透明な壁。アリーナが透明な場合は、動物の注意散漫を最小限に抑えるために外壁を紙で覆う |
| オーバーヘッドカメラ | Logitech | Logitech C920x HD Pro PC Webcam | 連続ビデオ録画が可能なカメラ;アリーナ中央上部に設置 |
| 穿孔カップ | Chinco Store | ONG-Chinco-0279 | カップの寸法:4.01"L x 4.01"W x 4.52"H;穿孔済みのプラスチック製または金属製カップ。正方形または円筒形のもの |
| Prism | Graph Pad | Version 10.6.0 | データ解析用ソフトウェア;他のソフトウェアでも代用可能 |
参考文献
- Wolff JO, Sherman PW, editors. Rodent societies: an ecological and evolutionary perspective. University of Chicago Press; Chicago; 2008.
- Thor DH, Holloway WR. Social memory of the male laboratory rat. J Comp Physiol Psychol. 1982;96(6):1000-1006.
- Theory of mind and autism: A review. International Review of Research in Mental Retardation. Academic Press; 2000.
- Bediou B, et al. Impaired social cognition in mild Alzheimer disease. J Geriatr Psychiatry Neurol. 2009;22(2):130-140.
- Green MF, Horan WP, Lee J. Social cognition in schizophrenia. Nat Rev Neurosci. 2015;16(10):620-631.
- Bäckman L, Herlitz A. The relationship between prior knowledge and face recognition memory in normal aging and Alzheimer's disease. J Gerontol. 1990;45(3):P94-P100.
- Moy SS, et al. Sociability and preference for social novelty in five inbred strains: An approach to assess autistic-like behavior in mice. Genes Brain Behav. 2004;3(5):287-302.
- Engelmann M, Hädicke J, Noack J. Testing declarative memory in laboratory rats and mice using the nonconditioned social discrimination procedure. Nat Protoc. 2011;6(8):1152-1162.
- van der Kooij MA, Sandi C. Social memories in rodents: Methods, mechanisms and modulation by stress. Neurosci Biobehav Rev. 2012;36(7):1763-1772.
- Cum M, et al. A systematic review and meta-analysis of how social memory is studied. Sci Rep. 2024;14(1):2221.
- Oliva A, Fernández-Ruiz A, Leroy F, Siegelbaum SA. Hippocampal CA2 sharp-wave ripples reactivate and promote social memory. Nature. 2020;587(7833):264-269.
- Oliva A. Neuronal ensemble dynamics in social memory. Curr Opin Neurobiol. 2023;78:102654.
- Okuyama T. Social memory engram in the hippocampus. Neurosci Res. 2018;129:17-23.
- Hitti FL, Siegelbaum SA. The hippocampal CA2 region is essential for social memory. Nature. 2014;508(7494):88-92.
- Dykstra B, Kim P, Lin A, Berman GJ, Murugan M. The intermediate CA1 and CA3 subfields of the hippocampus differentially encode social recognition. bioRxiv. 2025; doi.org/10.1101/2025.10.27.684580.
- Rashid M, et al. A ventral hippocampal-lateral septum pathway regulates social novelty preference. eLife. 2025;13:RP97259.
- Phillips ML, Robinson HA, Pozzo-Miller L. Ventral hippocampal projections to the medial prefrontal cortex regulate social memory. eLife. 2019;8:e44182.
- Medeiros D, Polepalli L, Li W, Pozzo-Miller L. Altered activity of mPFC pyramidal neurons and parvalbumin-expressing interneurons during social interactions in a Mecp2 mouse model for Rett syndrome. J Neurophysiol. 2025;134(6):2070-2085.
- Netser S, et al. Distinct dynamics of social motivation drive differential social behavior in laboratory rat and mouse strains. Nat Commun. 2020;11(1):5908.
- Netser S, Haskal S, Magalnik H, Wagner S. A novel system for tracking social preference dynamics in mice reveals sex- and strain-specific characteristics. Mol Autism. 2017;8:53.
再版と許可
この記事は公開されました
動画は近日公開