N6-メチルアデノシン(m6A)関連遺伝子は乳がんで調節が不安定であり、メチル化やコピー数変化との相関は限定的です。 YTHDF3を含む6つの遺伝子が予後を示しました。YTHDF3は独立した予後因子であり、RNA代謝、DNA修復、テロメアの安定性、免疫浸潤に関与しています。その上位調節は臨床的に確認されており、さらなる調査が必要でした。
研究記事
m6A調節因子の包括的解析により、YTHDF3が乳がんの有望な予後バイオマーカーであることが特定されました
* These authors contributed equally
この記事について
サマリー
要約
N6-メチルアデノシン(m6A)関連遺伝子の発現状況や予後価値は、乳がんにおいてほとんど明らかにされていません。ここでは、発現プロファイルと臨床的関連性の統合解析を行いました。マルチオミクスデータセットと実験的検証を活用し、乳がんにおけるm6A関連遺伝子の体系的な調査を行いました。これらの遺伝子は乳がんにおいて顕著な差異発現を示しましたが、プロモーターのメチル化やコピー数の変化といった分子的特徴との相関は限定的でした。単変量生存分析では、RBM15B、METTL16、HNRNPC、YTHDF1、YTHDF3、 IGF2BP1の異常発現が患者の予後と有意に関連していることが示されました。多変量Cox回帰分析では、YTHDF3発現の上昇が独立した予後因子であることがさらに特定されました。機能ネットワーク解析により、YTHDF3はRNA処理や代謝だけでなく、DNA修復、pri-miRNA処理、テロメアの安定性、免疫浸潤にも関与する可能性が示されました。さらに、臨床乳がん検体においてYTHDF3 mRNAのアップレギュレーションが確認されました。総じて、乳がんではm6A関連遺伝子が調節不全を遂げ、患者の転帰と相関し、そのバイオマーカーの可能性が浮き彫りになります。特にYTHDF3は詳細な調査が必要です。
概要
乳がんは非常に多様な悪性腫瘍であり、世界的に最も一般的に診断されるがんとなり、女性のがん関連死亡の主な原因となっています。2020年には推定230万人の新規症例と68万人以上の死亡が報告されています。治療法の進歩にもかかわらず、すべての患者に対する決定的な治療法は依然として難しく、早期診断と予後のために分子バイオマーカーの特定が求められています。
異常なエピジェネティック修飾はがんの特徴です。多様なRNA修飾の中で、N6-メチルアデノシン(m6A)は乳がんにおける役割がますます認識されているエピトランスクリプトムマークです。m6Aは主に哺乳類mRNAの3'-UTRに沈着する可逆修飾であり、「ライター」(メチルトランスフェラーゼ)、「イレーザー」(デメチル化ゼ)、および「リーダー」(結合タンパク質)によって調整されます5。新たな証拠は、m6A関連遺伝子が腫瘍の発生と進行に関与していることを示しています。6.しかし、乳がんにおけるm6A調節因子の状況は依然として不明瞭であり、包括的な遺伝的およびエピジェネティック解析も不足しています。
本研究では、公開されたオミクスデータベースと実験的検証を用いて乳がんにおける差異発現のm6A関連遺伝子を特定しました。さらに臨床予後価値を評価し、生存分析および調節ネットワーク予測を通じて分子メカニズムを探りました。
プロトコル
遺伝子 発現と 生存データ
がんゲノムアトラス(TCGA)コホートデータは、1,034件の乳がん腫瘍サンプルと104件の正常隣接組織(NAT)から構成され、947人の患者の臨床情報も取得されました。これらのデータは、m6A関連遺伝子のmRNA発現プロファイルと予後との関連を解析するために用いられました。さらに、複数の乳がんデータセットを集約するKaplan-Meier Plotter(KMplotter)オンラインツールを用いて、YTHDF3発現と生存率の関連を検証しました。発現パターンのさらなる検証のために、Breast Cancer Gene-Expression Miner v4.7 9,10を通じてGenotype-Tissue Expression(GTEx)プロジェクトから92体の健康な乳腺組織のデータを含みました。UALCANは、臨床プロテオーム腫瘍解析コンソーシアム(CPTAC)およびTCGAデータセット11に基づき、乳がんおよび正常組織の異なるサブタイプにおけるYTHDF3のタンパク質およびmRNAレベルを解析しました。
遺伝的およびエピジェネティック評価
cBioPortalを用いて遺伝的変異を調査し、浸潤性乳がんデータセット(TCGA、暫定的、1,108件)に焦点を当てました12。メスカロン酸(MethHC)からプロモーターメチル化データを取得し、839件の乳がんサンプルと部分的に対合した隣接する正常対照群を含みました。
遺伝子調節ネットワークと免疫浸透解析
タンパク質間相互作用はSTRINGで探求されました(信頼度スコアは0.4に設定されています)14。遺伝子注釈および経路強化はMetascape(p < 0.01、最小カウント3、濃縮係数>1.5)を用いて実施されました。15。乳がんにおけるYTHDF3発現と免疫浸潤(B細胞、CD8+ T細胞、CD4+ T細胞、マクロファージ、好中球、樹状細胞(DC)の関連は、腫瘍免疫推定リソース(TIMER)を用いて解析されました。腫瘍純度と正規化された遺伝子発現レベルが最左パネル16に表示されました。
定量逆転写ポリメラーゼ連鎖反応(qRT-PCR)
すべての参加者は書面によるインフォームドコンセントを提供し、研究は南西医科大学付属病院の倫理委員会によって承認されました(承認番号はKY2022124)であり、ヘルシンキ宣言の原則に従って実施されました。全RNA抽出には凍結乳腫瘍標本および隣接する非腫瘍標本を用いました。抽出されたRNAの濃度と純度は分光光度計で評価され、A260/A 280 比率が1.8–2.0のサンプルのみが含まれました。RNAの完全性は1.5%アガロースゲル電気泳動によって確認されました。その後、製造元の指示に従い、1μgの全RNAから20μL反応で第一鎖cDNAが生成されました。定量リアルタイムPCRが行われ、各20μL反応には2×SYBRグリーンマスターミックス10μL、順方向および逆4μLプライマー(それぞれ10μM)、希釈cDNA2μL(1:10)、ヌクレアーゼフリー水7.2μLが含まれていました。qRT-PCRは前述通りに実施されました。プライマーは以下の通りです:β-アクチン-F、GAAGATCAAGATCATTGCTCCT;β-アクチン-R、TACTCCTGCTTGTTGTACCA; YTHDF3-F、AAAAGACGGGCCTCTCTCTC; YTHDF3-R、TTGGCCGAGTGATTGTTCCA。熱サイクル条件は95°Cで3分間、続いて95°Cで10秒、55°Cで20秒、72°Cで20秒(蛍光取得は72°C)の40サイクルでした。プライマー特異性を確認するために溶融曲線解析(95°Cから60°C、0.5°C/s増分)が実施されました。相対発現は2−ΔΔCt 法を用いて計算されました。
統計的手法
2群比較には非 ペアt検定が用いられました。カプラン・マイヤー生存分析を用いて対数ランク検定と多変量コックス回帰分析を用い、予後因子の評価を行いました。qRT-PCRの検証のために、ペアサンプルをΔCt値に対して二尾対対の学生の t検定を用いて比較しました。 図1では、Dunnett-Tukey-Kramer検定を用いてペアワイズ比較を行いました。P < 0.05は統計的に有意とされました。
結果
乳がんにおけるm6A関連遺伝子のmRNA発現の違い
TCGAおよびGTExのデータ(1,034件の腫瘍、104件のNAT、92件の健康組織)の分析により、ほとんどのm6A関連遺伝子が差異的に発現していることが明らかになりました(図1)。健康な乳腺組織と比較して、10の遺伝子が有意にアップレギュレーションされていました:KIAA1429、RBM15、RBM15B、HNRNPC、YTHDF1、YTHDF2、YTHDF3、IGF2BP1、IGF2BP3、 ALKBH5(いずれもP<0.0001、RBM15 P<0.001を除く)。8つの遺伝子がダウンレギュレーションされました:WTAP、METTL3、METTL14、HNRNPA2B1、YTHDC1、YTHDC2、IGF2BP2、 およびFTO(Pの<0.05からP<0.0001)。METTL16とeIF3Aでは有意な違いは認められませんでした。腫瘍とNATsを比較したところ、HNRNPA2B1はアップレギュレーションされ、YTHDF3、eIF3A、ALKBH5はダウンレギュレーションされていました。RBM15、RBM15B、YTHDF2では差が見られませんでした(図1)。NATsを対照として使用すること自体が疑問視されており、健康組織比較との不一致を説明している可能性があります。興味深いことに、CPTACデータセットでは正常組織と比較してすべての乳がんサブタイプでYTHDF3タンパク質の存在比が高まる傾向が観察されました(P < 0.0001)。さらに、YTHDF3のmRNA発現は正常組織と比較して乳がんの腔内サブタイプでのみ有意に高いことが観察されました(P = 0.004, < 0.01)(補足図S1)。全体として、乳がんではm6A関連遺伝子の有意な調節異常が確認されています。
乳がんにおけるm6A関連遺伝子のプロモーターメチル化および遺伝子増幅
DNAメチル化は遺伝子転写のエピジェネティック制御に重要な役割を果たし、プロモーターのハイパーメチル化はmRNA発現を阻害します20。メスHC解析では、腫瘍と対照群でIGF2BP1、IGF2BP2、IGF2BP3でのみ有意なプロモーターメチル化の違いが示されました(P < 0.005)。IGF2BP2 mRNAのダウンレギュレーションは部分的にその過メチル化に起因すると考えられます。cBioPortal解析では、WTAPとALKBH5はmRNAのダウンレギュレーションを示し、KIAA1429(VIRMA)、YTHDF1、YTHDF3、IGF2BP1はそれらのアップレギュレーションに関連する遺伝子増幅を示しました(補足図S2、補足図S3、補足図S4)。 これらの発見は、m6A関連遺伝子のmRNAレベルが主にプロモーターのメチル化や遺伝子増幅によって駆動されているわけではないことを示唆しています。
乳がんにおけるm6A関連遺伝子の生存分析
947人の患者を対象とした生存分析では、RBM15B発現の低さとMETTL16、HNRNPC、YTHDF1、YTHDF3、 IGF2BP1の高発現が、全生存期間の減少と有意な相関があることが示されました(図2および図3)。 年齢、ステージ、人種を調整した多変量Cox回帰分析により、YTHDF3のアップレギュレーションが全生存率の低下の独立予測因子であることが確認されました(HR: 1.024, 95% CI: 1.003–1.046, P = 0.024)(表1)。 外部検証のため、KMplotterオンラインツールを用いた解析により、高いYTHDF3発現は疾患予後が悪いことを予測することが示されました(補足図S5)。他の遺伝子は独立して有意ではありませんでした(補足表S1)。
m6A関連遺伝子YTHDF3の分子ネットワークと免疫浸透の可能性
YTHDF3のSTRING解析(インタラクターを50人に制限)では、224エッジと有意な濃縮(P < 1e-16)を持つネットワークが特定されました。YTHDF3はMETTL3、ALKBH5、WTAP、METTL14などと密接に関連しています (図4A)。メタスケープ濃縮解析では13の有意な機能クラスター(P < 0.01、最小数3、濃縮係数>1.5; 図4B)。最も上位にランクされたクラスターはmRNA代謝調節(GO1903311、22遺伝子)でした。その他のがん関連クラスターには、DNA脱キル化修復(GO0006307)、プリミルRNA処理(GO0031053)、テロメラーゼ安定化(GO1904356)などが含まれます。クラスター名、関連遺伝子、および濃縮統計の完全なリストは補 足表S2に掲載されています。さらに、 YTHDF3 発現と免疫細胞の間に有意な正の相関(いずれも P < 0.01)( 補足図S6)が示されました。したがって、 YTHDF3 のアップレギュレーションはmRNA代謝、DNA修復、テロメア維持、免疫浸潤と関連している可能性があります。
乳がんにおける YTHDF3 のmRNA発現のアップレギュレーション
2023年7月から2023年10月にかけて、南西医科大学付属病院の乳腺外科部門で手術を受けた20名の患者から乳がん組織および相応する正常な乳腺組織を採取しました。これらのペアサンプルのqRT-PCR解析では、腫瘍組織で隣接する正常組織よりも有意に高い YTHDF3 mRNA発現が認められました(P = 0.001)(補足図S7 および 補足表S3)。
データの利用可能性
本研究で分析されたすべてのデータセットは、以下のオープンアクセスリポジトリから公開されています。遺伝子発現および臨床データ:乳がんRNA-seq発現データおよび対応する臨床情報は、The Cancer Genome Atlas(TCGA-BRCA)およびThe Human Protein Atlas(https://www.proteinatlas.org/)から取得されました。さらに、Genotype-Tissue Expression(GTEx)プロジェクト(dbGaP登録番号phs000424.v8.p2)からBreast Cancer Gene-Expression Miner v4.7(http://bcgenex.ico.unicancer.fr/)を通じて正常な乳腺組織発現データを取得しました。生存の検証はKaplan-Meier Plotter(https://kmplot.com)を用いて実施されました。タンパク質およびmRNAの発現データはUALCAN(http://ualcan.path.uab.edu/)によって取得されました。遺伝的変異:侵襲性乳がんデータセット(TCGA、暫定、1108サンプル)の体細胞変異およびコピー数変異データはcBioPortal(https://www.cbioportal.org/)を通じてアクセスされました。DNAプロモーターメチル化:メチル化データは、839件の乳がんサンプルと部分的に対比した正常対照群を含むMethHC(http://methhc.mbc.nctu.edu.tw/)から取得されました。タンパク質間相互作用および経路の濃縮:機能ネットワーク解析はSTRING v12.0(https://string-db.org/、信頼度0.4)およびMetascape(http://metascape.org/)を用いて実施されました。免疫浸潤解析はTIMER(https://cistrome.shinyapps.io/timer/)を用いて実施されました。数値の基礎となる追加データは、正当な要望があれば通信著者から提供可能です。
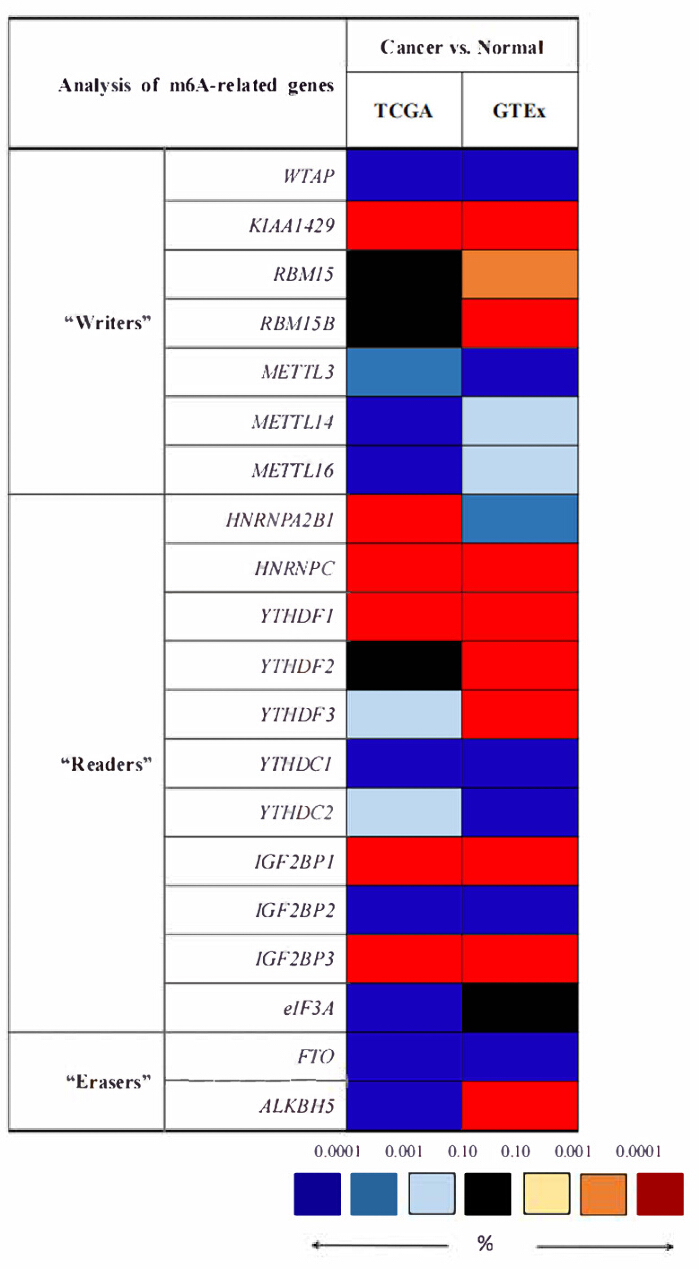
図1。乳がんにおけるN6-メチルアデノシン(m6A)関連遺伝子のmRNA発現の違い。赤は アップレギュレーションを示します。青はダウンレギュレーション、黒は発現差なし、白は遺伝子発現データなしを示します。色分けは統計的有意性を反映しています。ペアワイズ比較にはDunnett-Tukey-Kramer検定が用いられました。注:「正常」とは、TCGAにおける腫瘍とNATsの比較、およびGTExにおける腫瘍と健康組織の比較を指します。略称:NATs = 正常隣接組織;TCGA = がんゲノムアトラス;GTEx = 遺伝子型-組織発現。 この図の拡大版はこちらをクリックしてご覧ください。
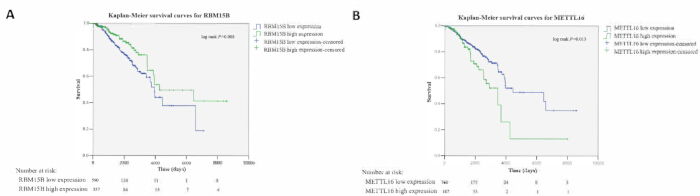
図2。m6A「ライター」 RBM15B の異常mRNA発現と METTL16 と乳がん患者の総生存率との関連。 (A) RBM15B の低発現は全体生存期間の短縮と関連していた(ログランク検定、 P = 0.008、<0.01);(B) METTL16 の高い発現は予後不良と関連していた(対数ランク検定、 P = 0.013、<0.05)。患者は最適なカットオフ値を用いて高発現群と低発現群に二分法されました。n = 947人(TCGA-BRCAコホート)。青と緑の曲線はそれぞれ低発現群と高発現群を表しています。mRNA発現の単位は、マッピング済みリードあたりの転写本のフラグメント数(Fragments Per Kilobase)でした。略称:TCGA-BRCA = がんゲノムアトラス 乳房浸潤性癌;m6A = N6-メチルアデノシン。 この図の拡大版はこちらをクリックしてご覧ください。
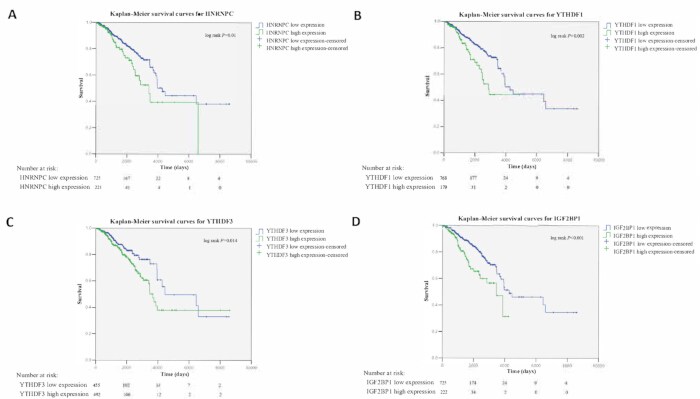
図3。乳がん患者におけるm6A「リーダー」HNRNPC、YTHDF1、YTHDF3および IGF2BP1の異常なmRNA発現と全生存期間との相関。(A) 高いHNRNPC mRNA発現は全生存期間の減少と関連していました(ログランク検定、P = 0.01、<0.05)。(B-D)YTHDF1、YTHDF3、 IGF2BP1の高い発現は予後悪化と有意に関連していました(対数ランク検定ではそれぞれP = 0.002、P = 0.014、P < 0.001)。患者は最適なカットオフ値を用いて高発現群と低発現群に二分法されました。n = 947人(TCGA-BRCAコホート)。青と緑の曲線はそれぞれ低発現群と高発現群を表しています。遺伝子mRNA発現の単位は、マッピング済みリードあたりの転写本のフラグメント数(Fragments Per Kilobase)でした。略称:TCGA-BRCA = がんゲノムアトラス 乳浸潤性癌;m6A = N6-メチルアデノシン。この図の拡大版はこちらをクリックしてご覧ください。
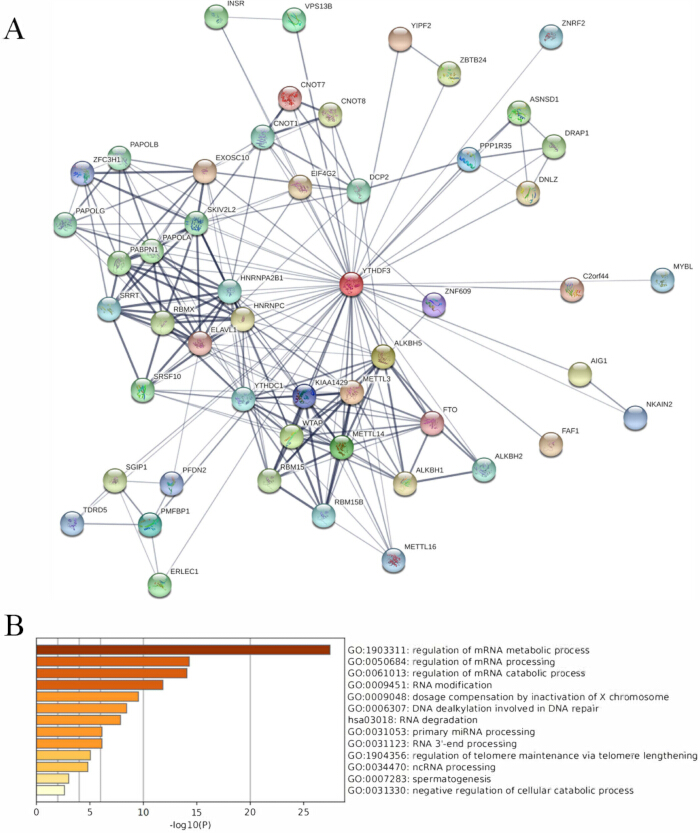
図4。YTHDF3の分子調節ネットワークの可能性。(A) YTHDF3を餌にしてSTRINGデータベースをクエリして構築したタンパク質相互作用ネットワーク(信頼度≥0.4、最大インタラクター数=50)。エッジ幅は証拠の強さを示します。(B) メタスケープ解析により13の有意な機能クラスター(P < 0.01、最小数=3、濃縮係数>1.5)が特定されました。存在論の情報源には、京都の遺伝子とゲノム経路百科事典や遺伝子生物学的プロセスに関するものがあります。この図の拡大版はこちらをクリックしてご覧ください。
| パラメータ | 人事 | 95%信頼区間 | p値 |
| YTHDF3 | 1.024 | 1.003-1.046 | 0.024 |
| 年代 | 1.036 | 1.023-1.050 | <0.001 |
| レース | 1.275 | 0.892-1.821 | 0.182 |
| 舞台 | 2.263 | 1.796-2.851 | <0.001 |
表1:m6A関連遺伝子 YTHDF3の多変量Cox生存回帰解析結果。 略称:HR = ハザード比;95% CI = 信頼区間。
補足図S1。CPTACおよびTCGAデータセットの乳がんおよび正常組織の異なるサブタイプにおけるYTHDF3のタンパク質およびmRNAレベル。 YTHDF3のタンパク質発現は、(A)原発腫瘍および正常組織、(B)乳浸潤性がんサブタイプにおけるものでした。Z値は、対応するがんタイプごとにサンプル間の中央値からの標準偏差の数を示します。CPTACのlog2スペクトルカウント比値はまず各サンプルプロファイル内で正規化され、その後サンプル間で正規化されました。(C) 乳浸潤性がんの異なるサブタイプにおける YTHDF3 のmRNA発現(RNA-seq、転写本の1キロベースあたりの断片数)。略称:CPTAC = 臨床プロテオム腫瘍解析コンソーシアム;TCGA = がんゲノムアトラス。 このファイルをダウンロードするには、こちらをクリックしてください。
補足図S2。M6A関連遺伝子のプロモーターメチル化状態をMethHCデータベースから取得。(A) 乳がんおよび正常対照群におけるm6A「ライター」のプロモーターメチル化。(B)乳がんおよび正常対照群におけるm6A「消しゴム」のプロモーターメチル化。(C)乳がんおよび正常対照群におけるm6A「リーダー」のプロモーターメチル化。赤は乳がん;緑、通常操作。*P < 0.05、**P < 0.005。略称:m6A = N6-メチルアデノシン。このファイルをダウンロードするには、こちらをクリックしてください。
補足図S3。cBioPortalによるm6A「ライター」および「消しゴム」の遺伝子変異およびコピー数変化(TCGA、暫定版、n = 1,108)。 (A) m6A「ライター」の変更。(B) m6A「消しゴム」の改造。棒グラフは各変異タイプの頻度を示しています:ミスセンス変異、増幅、深欠失、複数変異。変異頻度が1%≥遺伝子のみが示されています。遺伝子ごとの全体の変異頻度は右側に示されています。略称:TCGA = がんゲノムアトラス;m6A = N6-メチルアデノシン。このファイルをダウンロードするには、こちらをクリックしてください。
補足図S4。m6A「リーダー」の遺伝子変異およびコピー数変化をcBioPortalで解析(TCGA、暫定、n = 1,108)。棒グラフ は各変異タイプの頻度を示しています:ミスセンス変異、増幅、深欠失、複数変異。変異頻度が1%≥遺伝子のみが示されています。遺伝子ごとの全体の変異頻度は右側に示されています。略称:TCGA = がんゲノムアトラス;m6A = N6-メチルアデノシン。このファイルをダウンロードするには、こちらをクリックしてください。
補足図S5。KMプロッターにおける乳がん患者の生存率とYTHDF3の相関。 (A) 高い YTHDF3 mRNA発現は総生存期間の低下と関連していました(P = 0.011, <0.05)。(B-D)YTHDF3の高い発現は、再発なし生存率、遠隔転移なし生存率、進行後生存率の低下と有意に関連していました(それぞれP = 1.9e-09、 P = 0.06、 P = 0.029)。すべてのP値は対数ランク検定で計算されました。各プロットの下にリスクのある患者数が示されています。最適なカットオフはツールの自動選択ベストカットオフ機能によって決定されました。略称:KMplotter = Kaplan-Meier Plotter。 このファイルをダウンロードするには、こちらをクリックしてください。
補足図S6。乳がんにおけるYTHDF3発現と免疫浸潤の相関。 YTHDF3の発現は、TIMERデータセットにおけるB細胞、CD4+ T細胞、CD8+ T細胞、マクロファージ、好中球、DCの浸潤レベルと正の相関を示しました。部分スピアマン相関解析では腫瘍純度を共変量として用いました。略称:DCs = 樹状細胞;TIMER = 腫瘍免疫推定リソース。 このファイルをダウンロードするには、こちらをクリックしてください。
補足図S7。20組のペア乳がん組織および隣接正常組織におけるYTHDF3 mRNA発現の定量的逆転写ポリメラーゼ連鎖反応検証。YTHDF3 mRNAレベルはβアクチンに正規化されました。データは2⁻ΔΔCtの数値で提示されます。統計比較は、ΔCt値(P = 0.001)に対する両側対対Student's t検定を用いて実施されました。略称:NC = 隣接する正常乳房組織;BrCa = 乳がん組織。このファイルをダウンロードするには、こちらをクリックしてください。
補足表S1。m6A関連遺伝子における多変量生存解析の結果をまとめた。 略称:HR = ハザード比;95% CI = 信頼区間。このファイルをダウンロードするには、こちらをクリックしてください。
補足表S2。Metascapeに基づく13の YTHDF3関連遺伝子の注釈および濃縮結果。このファイルをダウンロードするには、こちらをクリックしてください。
補足表S3。20組の乳がんサンプルの臨床情報。このファイルをダウンロードするには、こちらをクリックしてください。
ディスカッション
治療的改善にもかかわらず、乳がんの早期診断や個別化治療は依然として課題であり、新規分子標的の発見が必要とされています21。 本研究は、乳がんにおけるm6A関連遺伝子の特性評価のためにマルチオミクスデータを統合しました。我々の結果は、これらの遺伝子の広範な調節異常がプロモーターのメチル化や遺伝子増幅とはほぼ独立していることを示し、特に YTHDF3などの複数の遺伝子の異常発現が予後不良と関連していることを示しています。さらに臨床サンプルにおける YTHDF3 のアップレギュレーションを確認し、がん関連経路への関与を予測しました。
m6Aメチル化は、WTAP、KIAA1429、RBM15、METTL3、 METTL1422を含む「ライター」複合体によってインストールされます。WTAPは多様な悪性腫瘍でがん性を示しますが、乳がんでのダウンレギュレーションは文脈依存的な機能を示唆しています。KIAA1429アップレギュレーションは、乳がんにおけるCDK1の調節におけるその役割と一致しています25。 造血および肉腫に影響を与えることが知られているRBM15は上位調節され、一方でRBM15Bの上位調節は生存率向上と関連し、BAP1との正の相関とも一致した28。let-7gの抑制が報告されているにもかかわらず、METTL3のダウンレギュレーションは他の人によって観察されています29,30。METTL14ダウンレギュレーションは、m6A修飾による腫瘍抑制因子の役割と一致しています。METTL16表現は依然として議論の的であり、さらなる研究が必要です29,32。
「消しゴム」に関しては、我々のコホートではFTOがダウンレギュレーションされ、これは一部のTCGAベースの研究と同様でしたが、対照的な報告ではBNIP3による進行促進が示唆されています。ALKBH5は対照群によって発現が変動し、低酸素症下での乳がん幹性維持に関与していることが示唆されています34,35。
YTHドメインを含む「リーダー」はm6Aを認識し、HNRNPCやHNRNPA2B136も認識します。HNRNPA2B1はSTAT3/ERK1/2で37,38を信号する役割に合わせて上位調整されました。HNRNPCのアップレギュレーションは、dsRNA誘導インターフェロン応答の調節機能と整合しています。39。
YTHDF1とYTHDF2は様々ながんで二重の役割を示します(40,41)。蓄積される証拠はYTHDF3が腫瘍性プロセスに関与していることを示している。EGFR/STAT342による肝細胞癌、EGFR/ATK/ERK/p21 43による膠芽腫、代謝再プログラミングによる子宮頸がんの転移を促進する44。本研究では、乳がんにおけるYTHDF1、YTHDF2、YTHDF3のアップレギュレーションが健康組織と比較して現れ、YTHDF3のアップレギュレーションが実験的にさらに検証されました。これは乳がんにおけるYTHDF3のさらなる研究を支持しています。YTHDC1およびYTHDC2はダウンレギュレーションされましたが、他の研究では子宮内膜がんおよび大腸がんにおける転移性役割が報告されています45,46。
IGF2BPタンパク質はm6Aリーダーとしても機能します47。IGF2BP1アップレギュレーションは、クロンジョニクス成長を支える役割と一致しています48。IGF2BP2はプロモーターメチル化による可能性のあるダウンレギュレーションを受けており、その遷移的役割の報告とは対照的である49。IGF2BP3アップレギュレーションは、トリプルネガティブ乳がんにおけるTRIM25による増殖促進と共に転移を促進し、トリプルネガティブ乳がんにおけるIGF2BP2との協調転移と一致しています51。eIF3Aはここでダウンレギュレーションされていますが、治療標的として提案されています。 コピー数の増加はYTHDF1および他のがんにおけるIGF2BP1発現と相関していることが報告されています54。 これらの発見は、m6A調節異常が乳がんに広く見られることを強調しています。
重要なのは、YTHDF3が独立した予後因子として特定され、最近の研究55、56、57、58、59を裏付けたことです。FTOやIGF2BP3など他のm6A遺伝子も乳がんの予後不良や化学療法耐性と関連しています33,60,61。
私たちの経路強化は、RNA代謝におけるYTHDF3の期待される役割を明らかにしました。さらに注目すべきは、ALKBHファミリーのメンバーを介したDNA脱キル化修復への関与を示唆したことである63,64。 さらに、HNRNPA2B1、SRRT、METTL3 65,66,67,68を通じたpri-miRNA処理や、EXOSC10およびDCP2 69によるテロメラーゼ安定化への関連は、多面的なメカニズムの可能性を示唆しています。興味深いことに、YTHDF3の過剰発現はST6GALNAC5およびGJA1の翻訳を促進することで乳がん脳転移と関連しています。最近の研究では、YTHDF3はmTOR-HIF1α-LDHA軸71を通じて解糖作用と増殖を促進することが示されています。ZEB1およびSMAD5のm6A依存翻訳による骨溶解性骨転移を促進すること、72;トリプルネガティブ乳がんでは、YTHDF3はCENPI mRNAを安定化させて腫瘍形成を促進する73;また、eIF4BをリクルートしてNotch2翻訳74を刺激することで、上皮間葉の遷移と転移を促進します。一貫して、最近の研究では、乳がんにおけるより広範なm6A調節ネットワーク、例えば脳転移におけるpiR-1170/WTAPによるメチル化再プログラミングや、TNBC76におけるPOP1依存的YTHDF2認識によるCDKN1A mRNAの分解などが強調されています。これらの研究は、YTHDF3が多様な悪性過程に関与している可能性を示唆しています。したがって、YTHDF3は有望な予後バイオマーカーとなり得ますが、乳がんの成長、アポトーシス、転移におけるその役割に関するさらなるメカニズム的研究が不可欠です。
興味深いことに、TIMER解析では乳がんにおける複数の免疫細胞サブセットの浸潤レベルとYTHDF3発現との間に一般的な正の相関が示されました。この観察の生物学的根拠は現在不明であり、YTHDF3高腫瘍における腫瘍微小環境の全体的な変化を反映している可能性があります。YTHDF3が乳がんの免疫構造形成に果たす特定の役割を解明するためには、専用の免疫ゲノム学的および機能的研究が必要です。
この研究にはいくつかの制限があります。第一に、分析は主に公開データセットに依存しています。TCGAとGTExのデータを統合すると、サンプル処理、シーケンスプラットフォーム、正規化パイプラインの違いによりバッチ効果が生じる可能性があり、これらのデータベースの遡及的性質には選択バイアスや注釈バイアスが本質的に存在します。第二に、臨床検証コホートは小規模で追跡調査が限られており、新たに発見されたm6A関連遺伝子は含まれていませんでした。第三に、YTHDF3の予後価値の独立したコホート検証が不足しており、mRNAとタンパク質発現の不整合は未解決のままです。さらに、乳がんにおけるYTHDF3の生物学的機能に関する直接 的なin vivo および in vitro の証拠は存在せず、薬剤感受性や治療反応の解析も行われておらず、YTHDF3が下流標的に対してm6A修飾を媒介する特定のメカニズムも解明されていません。これらの注意点は、私たちの調査結果を慎重に解釈するべきです。将来的には、標準化されたプロトコル、より大きなサンプルサイズ、機能実験を用いた前向き研究が必要であり、YTHDF3をバイオマーカーとして検証し、乳がんにおけるその機序的役割を明らかにするために必要です。
結論として、この統合解析は乳がんにおけるm6A関連遺伝子を包括的に評価しました。遺伝的およびエピジェネティックな変異は遺伝子発現に限定的な影響を与えましたが、これらの遺伝子は広く調節が乱れており、予後と関連していました。本研究結果は、YTHDF3が独立した予後バイオマーカーとして機能し、乳がんに関するさらなる生物学的調査を検討する可能性を示しています。
開示事項
著者には利益相反を主張するものはありません。
謝辞
本研究は四川省自然科学基金(助成金番号:2022NSFSC1425)、四川医学会腫瘍特別研究プロジェクト(助成金番号:2024HR20)、瀂州西南医科大学研究プロジェクト(助成金番号:2024LZXNYDJ051)、北京西四科臨床腫瘍研究基金(助成金番号:Y-SS2025MS-0009)、北京克川医学開発基金(助成金番号:KC2023-JX-0288-BM74)によって資金提供されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Breast Cancer Gene-Expression Miner v4.7 | Omics Data Science Unit of Integrated Center for Oncology | http://bcgenex.ico.unicancer.fr/ | GTExの正常な乳房組織の 発現データを取得するのに使用。 方法/データの利用可能性に記載 |
| cBioPortal | 該当なし | https://www.cbioportal.org/ | 遺伝子変異とコピー数変異の 分析。方法/データの 利用可能性に記載 |
| Clinical Proteomic Tumor Analysis Consortium (CPTAC) | Clinical Proteomic Tumor Analysis Consortium | 該当なし | UALCANを通じて使用されるプロテオミクスデータセット。 方法/データの利用可能性に記載 |
| Genotype-Tissue Expression (GTEx) project | GTEx Consortium | dbGaP accession phs000424.v8.p2 | 正常な乳房組織の発現データソース。 方法/データの利用可能性に記載 |
| Hieff qPCR SYBR Green Master Mix (No Rox) | YEASEN | qPCRマスターミックスの利用。著者の 修正に記載 | |
| Hifair III 1st Strand cDNA Synthesis SuperMix for qPCR | YEASEN | 一本鎖cDNA合成。著者の 修正に記載 | |
| Kaplan-Meier Plotter (KMplotter) | 該当なし | https://kmplot.com | オンラインの生存検証ツール。 方法/データの利用可能性に記載 |
| Metascape | NIH助成金によってサポート U19 AI106754 U19 AI135972 R01 DA03373 | http://metascape.org/ | 遺伝子のアノテーションと経路の エンリッチメント分析。方法/データの 利用可能性に記載 |
| MethHC | 該当なし | http://methhc.mbc.nctu.edu.tw/ | DNAプロモーターのメチル化データ/ リソース。方法/データの 利用可能性に記載 |
| NanoDrop 2000分光光度計 | Thermo Fisher Scientific | RNAの濃度と純度の測定。著者の 修正に記載 | |
| QuantStudio 7 Flex Real-Time PCR System | Applied Biosystems | 定量的リアルタイムPCR。著者の 修正に記載 | |
| SPSS 13.0 | 論文では提供されていません | バージョン13.0 | 統計解析。著者の修正に記載 |
| STRING v12.0 | STRING Consortium | https://string-db.org/ | タンパク質-タンパク質相互作用ネットワーク 解析。信頼性スコア0.4。図4/データの 利用可能性に記載 |
| The Cancer Genome Atlas (TCGA-BRCA) | The Cancer Genome Atlas | TCGA-BRCA | 遺伝子発現、臨床データ、 遺伝子変異/コピー数のデータセットソース。 方法/データの利用可能性に記載 |
| The Human Protein Atlas | The Human Protein Atlas | https://www.proteinatlas.org/ | TCGA乳がんのRNA-seq発現と 臨床データを取得するためのソース。 方法/データの利用可能性に記載 |
| TIMER | X Shirley Liu Lab | https://cistrome.shinyapps.io/timer/ | 免疫浸潤解析。方法/データの 利用可能性に記載 |
| TRIzol reagent | Invitrogen | RNA抽出。著者の修正に記載 | |
| UALCAN | The University of Alabama at Birmingham | http://ualcan.path.uab.edu/ | CPTACとTCGAデータに基づくタンパク質とmRNAの発現解析。 方法/データの利用可能性に記載 |
参考文献
- Yeo SK, Guan JL. Breast cancer: multiple subtypes within a tumor? Trends Cancer. 2017;3(11):753-60.
- Sung H et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-49.
- Bennett RL, Licht JD. Targeting epigenetics in cancer. Annu Rev Pharmacol Toxicol. 2018;58:187-207.
- Wu L et al. Changes of N6-methyladenosine modulators promote breast cancer progression. BMC Cancer. 2019;19(1):326.
- Roignant JY, Soller M. m6A in mRNA: an ancient mechanism for fine-tuning gene expression. Trends Genet. 2017;33(6):380-90.
- Pan Y et al. Multiple functions of m6A RNA methylation in cancer. J Hematol Oncol. 2018;11(1):48.
- Uhlen M et al. Towards a knowledge-based Human Protein Atlas. Nat Biotechnol. 2010;28(12):1248-50.
- Győrffy B. Survival analysis across the entire transcriptome identifies biomarkers with the highest prognostic power in breast cancer. Comput Struct Biotechnol J. 2021;19:4101-9.
- Jézéquel P et al. bc-GenExMiner 4.5: new mining module computes breast cancer differential gene expression analyses. Database (Oxford). 2021;2021:baab007.
- GTEx Consortium. The GTEx Consortium atlas of genetic regulatory effects across human tissues. Science. 2020;369(6509):1318-30.
- Chandrashekar DS et al. UALCAN: an update to the integrated cancer data analysis platform. Neoplasia. 2022;25:18-27.
- Cerami E et al. The cBio cancer genomics portal: an open platform for exploring multidimensional cancer genomics data. Cancer Discov. 2012;2(5):401-4.
- Huang WY et al. MethHC: a database of DNA methylation and gene expression in human cancer. Nucleic Acids Res. 2015;43(Database issue):D856-61.
- Szklarczyk D et al. STRING v10: protein-protein interaction networks, integrated over the tree of life. Nucleic Acids Res. 2015;43(Database issue):D447-52.
- Zhou Y et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 2019;10(1):1523.
- Li T et al. TIMER: a web server for comprehensive analysis of tumor-infiltrating immune cells. Cancer Res. 2017;77(21):e108-10.
- Wang Y et al. Zinc finger and SCAN domain-containing 18 suppresses the proliferation, self-renewal, and drug resistance of glioblastoma cells. Heliyon. 2023;9(6):e17000.
- Cancer Genome Atlas Research Network. The Cancer Genome Atlas Pan-Cancer analysis project. Nat Genet. 2013;45(10):1113-20.
- Aran D et al. Comprehensive analysis of normal adjacent to tumor transcriptomes. Nat Commun. 2017;8(1):1077.
- Xiang TX et al. Aberrant promoter CpG methylation and its translational applications in breast cancer. Chin J Cancer. 2013;32(1):12-20.
- Pasculli B, Barbano R, Parrella P. Epigenetics of breast cancer: biology and clinical implication in the era of precision medicine. Semin Cancer Biol. 2018;51:22-35.
- Meyer KD, Jaffrey SR. Rethinking m6A readers, writers, and erasers. Annu Rev Cell Dev Biol. 2017;33:319-42.
- Jo HJ et al. WTAP regulates migration and invasion of cholangiocarcinoma cells. J Gastroenterol. 2013;48(11):1271-82.
- Chen Y et al. WTAP facilitates progression of hepatocellular carcinoma via m6A-HuR-dependent epigenetic silencing of ETS1. Mol Cancer. 2019;18(1):127.
- Qian JY et al. KIAA1429 acts as an oncogenic factor in breast cancer by regulating CDK1 in an N6-methyladenosine-independent manner. Oncogene. 2019;38(33):6123-41.
- Garcia-Dios DA et al. MED12, TERT promoter and RBM15 mutations in primary and recurrent phyllodes tumours. Br J Cancer. 2018;118(2):277-84.
- Hu M, Yang Y, Ji Z, Luo J. RBM15 functions in blood diseases. Curr Cancer Drug Targets. 2016;16(7):579-85.
- Shahriyari L, Abdel-Rahman M, Cebulla C. BAP1 expression is prognostic in breast and uveal melanoma but not colon cancer and is highly positively correlated with RBM15B and USP19. PLoS One. 2019;14(2):e0211507.
- Zhang B et al. Expression and prognostic characteristics of m6A RNA methylation regulators in breast cancer. Front Genet. 2020;11:604597.
- Cai X et al. HBXIP-elevated methyltransferase METTL3 promotes the progression of breast cancer via inhibiting tumor suppressor let-7g. Cancer Lett. 2018;415:11-9.
- Gu C et al. Mettl14 inhibits bladder TIC self-renewal and bladder tumorigenesis through N6-methyladenosine of Notch1. Mol Cancer. 2019;18(1):168.
- Yeon SY et al. Frameshift mutations in repeat sequences of ANK3, HACD4, TCP10L, TP53BP1, MFN1, LCMT2, RNMT, TRMT6, METTL8 and METTL16 genes in colon cancers. Pathol Oncol Res. 2018;24(3):617-22.
- Niu Y et al. RNA N6-methyladenosine demethylase FTO promotes breast tumor progression through inhibiting BNIP3. Mol Cancer. 2019;18(1):46.
- Zhang C et al. Hypoxia-inducible factors regulate pluripotency factor expression by ZNF217- and ALKBH5-mediated modulation of RNA methylation in breast cancer cells. Oncotarget. 2016;7(40):64527-42.
- Zhang C et al. Hypoxia induces the breast cancer stem cell phenotype by HIF-dependent and ALKBH5-mediated m6A-demethylation of NANOG mRNA. Proc Natl Acad Sci U S A. 2016;113(14):E2047-56.
- Liao S, Sun H, Xu C. YTH domain: a family of N6-methyladenosine (m6A) readers. Genomics Proteomics Bioinformatics. 2018;16(2):99-107.
- Alarcón CR et al. HNRNPA2B1 is a mediator of m6A-dependent nuclear RNA processing events. Cell. 2015;162(6):1299-308.
- Hu Y et al. Splicing factor hnRNPA2B1 contributes to tumorigenic potential of breast cancer cells through STAT3 and ERK1/2 signaling pathway. Tumour Biol. 2017;39(3):1010428317694318.
- Wu Y et al. Function of HNRNPC in breast cancer cells by controlling the dsRNA-induced interferon response. EMBO J. 2018;37(23):e99017.
- Nishizawa Y et al. Oncogene c-Myc promotes epitranscriptome m6A reader YTHDF1 expression in colorectal cancer. Oncotarget. 2018;9(7):7476-86.
- Zhong L et al. YTHDF2 suppresses cell proliferation and growth via destabilizing the EGFR mRNA in hepatocellular carcinoma. Cancer Lett. 2019;442:252-61.
- Hu B et al. m6A reader YTHDF3 triggers the progression of hepatocellular carcinoma through the YTHDF3/m6A-EGFR/STAT3 axis and EMT. Mol Carcinog. 2023;62(10):1599-614.
- Lee HH et al. YTHDF3 modulates EGFR/AKT/ERK/p21 signaling axis to promote cancer progression and osimertinib resistance of glioblastoma cells. Anticancer Res. 2023;43(12):5485-98.
- Zhong S et al. The inhibition of YTHDF3/m6A/LRP6 reprograms fatty acid metabolism and suppresses lymph node metastasis in cervical cancer. Int J Biol Sci. 2024;20(3):916-36.
- Zhang B et al. YT521 promotes metastases of endometrial cancer by differential splicing of vascular endothelial growth factor A. Tumour Biol. 2016;37(12):15543-9.
- Tanabe A et al. RNA helicase YTHDC2 promotes cancer metastasis via the enhancement of the efficiency by which HIF-1α mRNA is translated. Cancer Lett. 2016;376(1):34-42.
- Huang H et al. Recognition of RNA N6-methyladenosine by IGF2BP proteins enhances mRNA stability and translation. Nat Cell Biol. 2018;20(3):285-95.
- Fakhraldeen SA et al. Two isoforms of the RNA binding protein, coding region determinant-binding protein (CRD-BP/IGF2BP1), are expressed in breast epithelium and support clonogenic growth of breast tumor cells. J Biol Chem. 2015;290(21):13386-400.
- Li Y, Francia G, Zhang JY. p62/IMP2 stimulates cell migration and reduces cell adhesion in breast cancer. Oncotarget. 2015;6(32):32656-68.
- Wang Z et al. Blockade of miR-3614 maturation by IGF2BP3 increases TRIM25 expression and promotes breast cancer cell proliferation. EBioMedicine. 2019;41:357-69.
- Kim HY, Ha Thi HT, Hong S. IMP2 and IMP3 cooperate to promote the metastasis of triple-negative breast cancer through destabilization of progesterone receptor. Cancer Lett. 2018;415:30-9.
- Meyer KD et al. 5′ UTR m6A promotes cap-independent translation. Cell. 2015;163(4):999-1010.
- Yin JY et al. eIF3a: a new anticancer drug target in the eIF family. Cancer Lett. 2018;412:81-7.
- Bell JL et al. IGF2BP1 harbors prognostic significance by gene gain and diverse expression in neuroblastoma. J Clin Oncol. 2015;33(11):1285-93.
- Liu L et al. N6-methyladenosine-related genomic targets are altered in breast cancer tissue and associated with poor survival. J Cancer. 2019;10(22):5447-59.
- Anita R, Paramasivam A, Priyadharsini JV, Chitra S. The m6A readers YTHDF1 and YTHDF3 aberrations associated with metastasis and predict poor prognosis in breast cancer patients. Am J Cancer Res. 2020;10(8):2546-54.
- Zhao G et al. Gene signatures and cancer-immune phenotypes based on m6A regulators in breast cancer. Front Oncol. 2021;11:756412.
- Demircan T, Yavuz M, Akgul S. m6A pathway regulators are frequently mutated in breast invasive carcinoma and may play an important role in disease pathogenesis. OMICS. 2021;25(10):660-78.
- Lv W et al. Analysis and validation of m6A regulatory network: a novel circBACH2/hsa-miR-944/HNRNPC axis in breast cancer progression. J Transl Med. 2021;19(1):527.
- Ohashi R et al. IMP3 contributes to poor prognosis of patients with metaplastic breast carcinoma: a clinicopathological study. Ann Diagn Pathol. 2017;31:30-5.
- Ohashi R et al. Prognostic value of IMP3 expression as a determinant of chemosensitivity in triple-negative breast cancer. Pathol Res Pract. 2017;213(9):1160-5.
- Chen XY, Zhang J, Zhu JS. The role of m6A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Drabløs F et al. Alkylation damage in DNA and RNA: repair mechanisms and medical significance. DNA Repair (Amst). 2004;3(11):1389-407.
- Fedeles BI et al. The AlkB family of Fe(II)/α-ketoglutarate-dependent dioxygenases: repairing nucleic acid alkylation damage and beyond. J Biol Chem. 2015;290(34):20734-42.
- Villarroya-Beltri C et al. Sumoylated hnRNPA2B1 controls the sorting of miRNAs into exosomes through binding to specific motifs. Nat Commun. 2013;4:2980.
- Hu X et al. Depletion of Ars2 inhibits cell proliferation and leukemogenesis in acute myeloid leukemia by modulating the miR-6734-3p/p27 axis. Leukemia. 2019;33(5):1090-101.
- Chen Y et al. Ars2 promotes cell proliferation and tumorigenicity in glioblastoma through regulating miR-6798-3p. Sci Rep. 2018;8(1):15602.
- Alarcón CR et al. N6-methyladenosine marks primary microRNAs for processing. Nature. 2015;519(7544):482-5.
- Shukla S et al. Inhibition of telomerase RNA decay rescues telomerase deficiency caused by dyskerin or PARN defects. Nat Struct Mol Biol. 2016;23(4):286-92.
- Chang G et al. YTHDF3 induces the translation of m6A-enriched gene transcripts to promote breast cancer brain metastasis. Cancer Cell. 2020;38(6):857-71.e7.
- Liu Z et al. YTHDF3 mediates the occurrence and development of breast cancer by regulating glycolysis through the mTOR-HIF1α-LDHA axis. J Cell Mol Med. 2026;30(9):e71105.
- Xu L et al. YTHDF3 promotes breast cancer osteolytic bone metastasis by enhancing the translation of ZEB1 and SMAD5. Oncogenesis. 2025;14(1):41.
- Zhang Y, Chen S, Wu Q. The m6A reader YTHDF3 promotes TNBC progression by regulating CENPI stabilization. Front Oncol. 2025;15:1546723.
- Chen H et al. YTHDF3 drives tumor growth and metastasis by recruiting eIF4B to promote Notch2 translation in breast cancer. Cancer Lett. 2025;614:217534.
- Luo Y et al. piR-1170 drives brain metastasis and immune evasion via WTAP-mediated m6A methylation reprogramming in triple-negative breast cancer. Mol Cancer. 2026;25(1):52.
- Zhang C et al. POP1 facilitates proliferation in triple-negative breast cancer via m6A-dependent degradation of CDKN1A mRNA. Research (Wash D C). 2024;7:0472.