本プロトコールでは、メカノ免疫調節研究に特許取得済みのバイオリアクターのセットアップおよび操作方法について説明します。本稿では、生理学的力を再現するカスタムバイオリアクターを用いて、マクロファージが機械的刺激に対して明確な前炎症性反応を示すことを実証します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
炎症は、急性および慢性疾患の両方を引き起こす複雑なプロセスである。それは、免疫細胞の活性化をもたらす一連の生化学的および生物物理学的なシグナルによって調節される。マクロファージは、がん、線維症、自己免疫疾患を含む多くの炎症状態に関与する主要な免疫細胞種である。マクロファージの活性化を調査する従来の方法では、定義されたサイトカインまたはケモカインシグナルを用いた生化学的刺激が行われ、マクロファージを前炎症性または抗炎症性の状態へと活性化させていた。組織内の生化学的シグナルに加えて、生物物理学的シグナルもマクロファージの活性化に役割を果たすことが、新たな証拠によって示唆されている。このような普及している機械的シグナルのひとつに、胃腸管、子宮、発達中の気道、および尿管で発生する、多軸方向のひずみとせん断応力からなる蠕動運動がある。本研究では、蠕動運動がマクロファージを活性化し得るという仮説を検証した。本プロトコルでは、マクロファージの機械的活性化を調査するための蠕動バイオリアクターの使用について記述する。マクロファージの接着性を高めるため、ポリジメチルシロキサン膜にフィブロネクチンをコーティングした。不死化マウス骨髄由来マクロファージ(iBMDM)をフィブロネクチンコーティング膜上に播種し、静止対照群として維持するか、あるいは4時間の間、蠕動運動に曝露させた。蠕動運動はマクロファージを活性化し、以下の遺伝子発現に有意な差が認められた。 Il6 (静止対照群と比較して50.9倍; p < 0.0001, t検定)および Nos2 (静止対照群に対して19.8倍; p = 0.0046)。興味深いことに、~において有意な変化は観察されなかった。 Chil3 (静止対照群に対し1.22倍; p = 0.9726) または Mrc1 (静止コントロールと比較して1.16倍; p = 0.9810) 静的コントロールと比較して、炎症性活性化は主に力学的刺激によって誘導されたことが示された。本知見は、マクロファージのメカノ免疫調節という概念を支持するものであり、特に多くの平滑筋組織に共通して見られる蠕動運動のメカニクスに対する反応において顕著である。
概要
マクロファージは自然免疫細胞であり、食作用やサイトカイン分泌を通じて、宿主防御、組織リモデリング、および炎症調節において不可欠な役割を果たします1,2,3,4。 in vivo微小環境内の刺激に応じて、未分化マクロファージ(M0)は、前炎症性(M1)または抗炎症性/前再生性(M2)の表現型へと可塑的に分極します5,6。 マクロファージ分極を駆動する複雑なメカニズムをより深く理解するために、通常、これらの異なる刺激を分離させたin vitroモデルが用いられます。 古典的に活性化されたM1マクロファージは、通常、リポ多糖(LPS)やインターフェロンガンマ(IFN-γ)などの生化学的刺激によってin vitroで誘導され、その結果、誘導型一酸化窒素合成酵素(iNOS)、インターロイキン-6(IL6)、腫瘍壊死因子アルファ(TNF-α)を含む炎症性メディエーターの発現が増加します7,8。 一方、代替的に活性化されたM2マクロファージは、一般的にインターロイキン-4(IL-4)およびインターロイキン-13(IL-13)への曝露によって誘導され、組織リモデリングや創傷治癒反応を促進します8,9。 M2マクロファージは、さらに異なる活性化経路と表面マーカーの発現プロファイルに基づいて、M2a、M2b、およびM2cの表現型に細分されます10,11。 マクロファージ分極の生化学的調節については、in vivoおよびin vitroの両方の系で広範に特性解析が行われてきましたが、マクロファージは相当な生物物理学的刺激も含まれる、非常にダイナミックな微小環境内に存在しています12。 可溶性サイトカインやケモカインに加えて、マクロファージは細胞外マトリックスや細胞間相互作用、基質の剛性、流体せん断応力、静水圧、および周期的な組織変形にさらされています12,13,14。 メカノセンシティブ(力学的刺激感受性)な細胞であるマクロファージは、これらの物理的な手がかりに応じて炎症性表現型を変化させることができ、免疫調節におけるメカノバイオロジーの重要性が浮き彫りになっています。
単独の機械的刺激が、ということを示した文献が数多く報告されている。 in vitro マクロファージの活性化状態に大きな影響を及ぼす可能性があります(図1)。より硬い基質への曝露は、再生促進的な表現型を誘導したより柔らかい基質と比較して、M1極性化および炎症性サイトカイン産生を増加させた。15,16,17,18,19,20同様に、流体剪断応力はマクロファージの表現型を強度依存的に調節し、低レベルの間質液流はしばしば再生促進的な活性化を促します。21,22 動脈で見られる値に近いより高い剪断応力は、炎症性反応を誘導する可能性がある一方で、23,24,25,26,27,28周期的なストレッチング in vitro 筋骨格、心筋、肺、および腸管組織の力学特性を模倣して設計されたモデルにおいても、炎症性メディエーターの発現増加が示されているが、その結果は印加される力の大きさ、持続時間、頻度、および次元によって異なる。29,30,31,32さらに、マクロファージのメカノセンシティビティ(機械刺激感受性)は種や細胞源によって異なり、メカノバイオロジー研究において適切な実験モデルを選択することの重要性が強調されている。13,14.
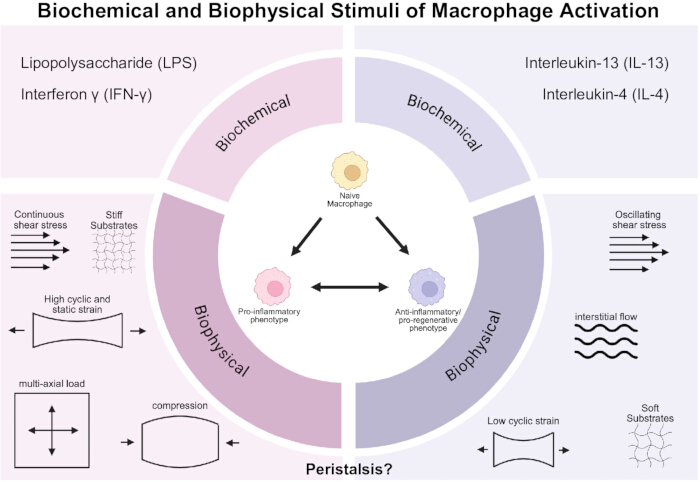
図1~を示す模式図 in vitro マクロファージを前炎症性または前再生性のいずれかの状態へと活性化させる生化学的および生物物理学的刺激。 マクロファージは刺激によって前炎症性状態へと誘導することができる。 in vitro 化学的刺激(リポ多糖(LPS)またはインターフェロンγ(IFN-γ))の添加、あるいは、せん断応力、剛性の増加、高頻度および静的な一軸伸展誘導ひずみ、圧縮、および多軸圧縮誘導ひずみを含む機械的刺激への曝露により、マクロファージを親再生状態で刺激することができる。 in vitro 化学的刺激であるインターロイキン-13(IL-13)およびIL-4の添加。また、振動剪断応力、間質流、軟らかい基質、または低レベルの一軸周期的な歪みといった形態の機械的刺激にさらされることで、これらは前再生的な状態になることもある。 この図の拡大版を表示するには、ここをクリックしてください。
単独の機械的刺激を個別に調べることに加え、マクロファージが(~であるため)、複合的な物理的力の及ぼす影響を研究し始めるために、本研究を基盤として発展させることが重要である。 in vivo 一般的に、複数の力が同時に作用する環境にさらされています。蠕動運動は、平滑筋の収縮によって生じる多軸的な周期的な伸張力と流体剪断応力が同時に作用する、そのような複雑な力学的環境の一例です。33これらのメカニズムは、胃腸管、発達中の気道、血管系、子宮、尿管を含む、複数の器官系にわたって存在しています。34,35,36重要なことに、線維症、炎症性腸疾患、がん、および気道リモデリング疾患を含む炎症性疾患では、蠕動機能が頻繁に乱れており、これらすべてにおいてマクロファージが媒介する実質的な炎症が関与しています。33,37,38,39これらの疾患におけるマクロファージの役割は認識されているものの、蠕動による機械的な力がマクロファージの活性化にどのように直接影響を与えるかについては、依然として重要な解明すべき課題が残っている。
本プロトコルでは、生理学的に適切な機械的条件下でマクロファージのメカノ・免疫変調を調査するための、蠕動バイオリアクターシステムの利用について説明します。従来の静的な培養システムや単一方向の機械刺激プラットフォームと比較して、本手法では周期的多軸伸展と流体剪断応力を同時に適用することが可能であり、平滑筋ベースの組織におけるin vivoの機械的微小環境をより忠実に再現できます。本プロトコルにおいて、蠕動条件下でバイオリアクター内で培養された不死化マウス骨髄由来マクロファージ(iBMDMs)は、M1活性化マーカーの上昇を示し、一方でM2活性化への傾向は見られませんでした。これらの知見は、蠕動による力学的刺激がマクロファージの炎症挙動を調節するのに十分であり、動的な平滑筋駆動の力にさらされる組織におけるメカノ・免疫変調というより広範な概念を支持することを証明しています。本手法は、メカノバイオロジー、炎症、組織工学、胃腸生理学、肺の発達、線維症、およびマクロファージが複雑な機械的微小環境にさらされるその他の疾患を研究する研究者に特に有用です。慎重な組み立て、一貫したキャリブレーション、および継続的なモニタリングを行うことで、ユーザーは再現性のあるバイオリアクターの性能を確保し、本手法における一般的な制限を回避することができます。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
本プロトコルでは、メカノ免疫調節研究のための特許取得済み40バイオリアクターシステムの組み立てと操作について説明します。使用した試薬および装置は、材料表に記載されています。
1. 細胞培養
- 不死化マウス骨髄由来マクロファージ(iBMDMs)を、10% 熱不活化FBS、1% HEPES緩衝液、1% ピルビン酸ナトリウム、および 1% ペニシリン-ストレプトマイシンを添加した完全RPMI 1640培地を用い、37 °C、5% CO2条件下で維持する。
2. ポリジメチルシロキサン (PDMS) の作製
- シリコーンエラストマーキットのベースと硬化剤を10:1(w/w)の比率で計量し、混合する。
- 混合物を5分間攪拌し、均一に混ざっていることを確認する。
- 混合したPDMSを、高さが3mmになるまで100 mm x 15 mmの正方形ペトリ皿に慎重に注ぐ。
- PDMSを入れたペトリ皿をデシケーターに配置する。
- 真空状態で1時間脱気し、気泡を除去する。
- PDMSをデシケーターから取り出し、気泡が残っていないことを確認する。
- 未硬化のPDMS膜を60 ˚ Cに予熱したオーブンに移し、4時間硬化させる。
- PDMS膜をオーブンから取り出し、ベンチトップで一晩冷却する。
- 18~24時間後、硬化したPDMS膜をペトリ皿から慎重に剥離し、70 mm x 40 mm x 3 mmのサイズにカットしてPDMS膜を作成する。
3. PDMSメンブレンの滅菌
- バイオセーフティキャビネット内で、PDMSメンブレンを70%エタノールで洗浄し、バイオセーフティキャビネット(BSC)の表面に直接置きます(補足資料 図1).
- UVで10分間滅菌した後、PDMSメンブレンを、UV照射した面を上にして、非組織培養処理済みの90 mm培養皿に移す。
注意:汚染のリスクを軽減するため、PDMSは必ず側面を持って保持し、PDMSの上方で手を交差させないようにしてください。 - 蠕動実験には、元の寸法のままのPDMSメンブレンを使用してください。
- 静置培養条件では、70 mm x 40 mmのPDMSメンブレンをそれぞれ等分に切り、35 mm x 40 mmの半分ずつのサイズにする。
4. PDMSメンブレンのフィブロネクチンコーティング
- BSC内で、メンブレン1枚あたり100 µL使用するのに十分な量の、リン酸緩衝生理食塩水(PBS)に溶解した滅菌済み0.5 mg/mL フィブロネクチン溶液を調製する。
- このコーティング溶液100 µLを各PDMSメンブレンの中央に分注し、コーティング領域がPDMSとスクリューのメンブレン接触領域と正確に一致するようにする。
注:ピペットチップを使用して、溶液を薄く均一な層にゆっくりと広げる。 - 吸着させるため、蓋を外した状態で、コーティングしたPDMSメンブレンを培養皿に入れたまま45分間放置する。
注:連続的な気流を維持するため、BSCのサッシを開けたままにする。 - 45分後、各メンブレンから残りのフィブロネクチン溶液を吸引除去する。
- 滅菌済みPBS 1 mLでメンブレンを優しく洗浄する。
5. PDMSメンブレンへのiBMDM細胞の播種
- T25フラスコで培養したiBMDM細胞が70%~80%のコンフルエンシーに達した時点で、トリプシン処理を行い、細胞を表面から剥離させる。
- ヘモサイトメーターを用いて細胞濃度を測定し、培地中で100,000 cells/mLの細胞密度となるように調製する。
- フィブロネクチンでコートした各PDMSメンブレンに、調製した細胞懸濁液を1枚あたり1 mLずつ播種する。
- 条件間の並行比較を確実にするため、各実験において、少なくとも1枚の静的なメンブレンと1枚の蠕動(ぜんどう)メンブレンに細胞を播種してください。
- 播種したPDMSメンブレンを、加湿インキュベーター内の以下の条件に設置します。 37 °C 5% CO含有2 静止条件およびペリスタルティックポンプ条件下(の両方)で、細胞を接着させるため、少なくとも24時間(付録 図1B).
6. バイオリアクター
- バイオリアクターの特許(US12522795)40に記載されているコンピュータ支援設計(CAD)ファイルおよび仕様に基づきバイオリアクターを製作するか、あるいは著者から組み立て済みのユニットを入手してください。
7. Arduino回路の組み立てとキャリブレーション
- 回路構築
- ポテンショメータ、抵抗器、トランジスタ、および導電性配線を用い、図に示す通りにブレッドボード上で制御回路を組み立てます。 補足資料 図2.
- コンピューターにArduino IDEをインストールし、新しいスケッチを開きます。
- モーター速度を5 rpmに、ペリスタルティックポンプを28 mL/minに設定してください。
- Arduinoボードをコンピュータに接続します。 経由で USBに保存し、提供されたコードをアップロードしてください。 補足ファイル1 IDEのアップロードボタンを使用して。
注:アップロード中はArduinoのLEDがオレンジ色に点灯し、実行準備が整うと緑色に戻ります。アップロード完了後、電源が投入されるとArduinoは自動的にプログラムを実行します。
- モーターのキャリブレーション
- モーターを始動させ、ストップウォッチを使用して1分間の回転数をカウントします。
注:5 RPMを実現するために、必要に応じてArduinoコードのモーター速度パラメータを調整してください。 - 希望の速度が得られるまで、調整を行うたびにコードを再アップロードしてください。
- モーターを始動させ、ストップウォッチを使用して1分間の回転数をカウントします。
- ポンプの校正
- ポンプを30秒間作動させ、回収された質量を測定して、流量が28 mL/min(30秒間で約14 g)であることを確認する。
- ポテンショメータを調整し、30秒間の出力が安定して14g付近になるまでこの操作を繰り返します。
- モーターとポンプの両方の校正が完了したら、それらをバイオリアクターユニットとペアリングしてください。
注:校正済みのモーター・ポンプ・バイオリアクターアセンブリが、これで実験に使用可能な状態になりました(図2).
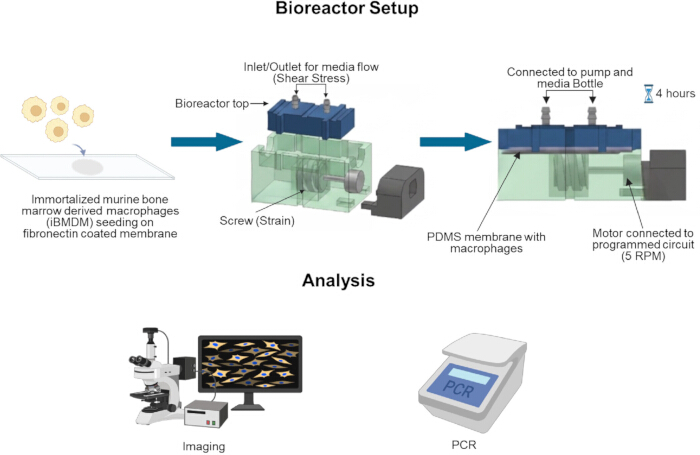
図 2: 蠕動バイオリアクター装置の概略図およびダウンストリーム解析。iBMDM細胞を、バイオリアクター内に設置されたフィブロネクチンコートPDMSメンブレン上に播種する。4時間の蠕動刺激への曝露、または静的なコントロールとしての維持後、細胞を回収し、qPCR、免疫蛍光染色、イメージングなどのダウンストリーム解析を行う。この図の拡大版を表示するには、ここをクリックしてください。
8. ペリスタルス・バイオリアクターの組み立てとセットアップ
- コンポーネントの調製
- 培地ボトル、培地キャップ、3Dプリント製培地ボトルトップ、3Dプリント製バイオリアクタートップ、3Dプリント製バイオリアクターボトム、3Dプリント製スクリュードライブ、結束バンド(バイオリアクター1台につき3本)、スリップジョイントプライヤー、ニッパー、150 mm組織培養皿、シリコングリス、および3Dプリント製モーターサポートを含む、すべての必要部品を準備します。各アイテムに70%エタノールをスプレーしてから、BSC内に配置してください。
- DCモーター、ペリスタルティックポンプ、および追加のポンプチューブをBSC内に配置します。
- BSCの蓋を閉め、UVランプを10分間点灯させてすべてのコンポーネントを滅菌します(補足図 1C).
- 細胞の接着および生存率の確認
- 播種した静止状態および蠕動運動状態の両方のPDMSメンブレンを顕微鏡下で観察し、確認する。 >フィブロネクチンコーティングしたPDMS表面への細胞接着率を80%とし、細胞形態を観察して生存率を確認する。
- 必要に応じて、アセンブリ前に細胞の代表的な画像を撮影してください。
- 静的コントロールの調製
- 各静止膜から完全RPMI培地を1 mL吸引する。
- 各メンブレンに、新鮮な完全RPMI培地を1 mLずつ加える。
- ディッシュに「静止」とラベルを貼り、インキュベーターに戻す。
- 蠕動バイオリアクターの組み立て
- バイオリアクターに使用する各培地ボトルに、培地を15 mLずつ加える。
- 3Dプリントされたボトルトップ(inlet/outletポート付き)を装着した培地キャップを、培地ボトルに取り付けます。これらを脇に置いておきます(付録 図1D).
- バイオリアクターのベースを組み立てる。
- 3Dプリントしたスクリュードライブを、バイオリアクター底面の中心ウェルに挿入します。
- DCモーターをバイオリアクター底面のモーター用スロットに挿入します。
- モーターのドライブシャフトが、3Dプリントされたスクリュードライブの中央孔にしっかりと固定されていることを確認してください。
- モーターホルダーをスライドさせて位置を合わせ、モーターを固定します。
- 組み立てを完了させた後、BSCからインキュベーターへ移動させやすくするため、部分的に組み立てたバイオリアクターを150 mmの組織培養ディッシュに入れます(補足資料 図1E).
- PDMSメンブレンがスクリュードライブに接触するスクリュードライブの溝に、シリコングリースを薄く塗布します。これにより、ネジがスムーズに回転し、摩擦が軽減されます。
- 細胞播種済みPDMSメンブレンの装着
- 細胞を播種した蠕動運動PDMSメンブレンを、インキュベーターから生物安全キャビネット(BSC)内へ慎重に移動させてください。
- 各メンブレンから培地を吸引し、細胞が播種された面を上向きに(グリスを塗布したスクリュードライブインターフェースと反対側に)して、メンブレンをバイオリアクター内に配置する。
- バイオリアクターの上部を、細胞チャンバーのくぼみがPDMSメンブレンと一致するように配置します。その後、上部をバイオリアクター下部のガイド溝に沿ってスライドさせて挿入します。
- バイオリアクターの固定
- 結束バンドと斜行ペンチを使用して、バイオリアクターの上下部を固定します。
- プライヤーで結束バンドの余分な長さを切り取ります。
- 流体接続およびシステムのセットアップ
- ペリスタルティックポンプを調整し、金属コネクタがモーターコネクタと同じ方向を向くようにしてください。
- バイオリアクターに最も近いポンプチューブを、バイオリアクター上部のモーターに最も近い入口ポートに接続します。チューブを入口ノズルに完全に押し込んでください。
- このチューブの反対端を培地ボトルの中に浸します。
- 予備のポンプチューブを使用し、一方の端をバイオリアクター上部の出口ノズルに取り付け、もう一方の端を培地ボトル内の培地液面より上の位置に配置して、逆流させることなく再循環できるようにします(補足資料 図1F).
- インキュベーションおよび操作
- バイオリアクターアセンブリ全体(150 mmディッシュ内)をインキュベーターの中に入れます(付録 図1G)とし、回路基板およびArduinoは電源に接続した状態で外部に保持します。
- ワニ口クリップを接続します。
- ポンプ:正極を正極に、負極を負極に接続してください。
- モーター:回路設計に従って極性を反転させる。
- 後でサンプルを回収するため、滅菌済みの空のペトリ皿をインキュベーターに入れておく。
- ペリスタルシスバイオリアクターシステムを4時間(または任意の時間)作動させます(補足資料 図1H)インキュベーター内の標準培養条件下で。
9. バイオリアクターの解体
- インキュベーターを開き、培地ボトルからインレットチューブを持ち上げてシステム内に空気を導入し、バイオリアクターから残りの培地を完全に排出させる。
- 培地の流れが止まったら、回路基板からモーターおよび/またはポンプのリード線を外し、機械的な動作を停止させる。
- バイオリアクターアセンブリ全体をBSC(バイオセーフティキャビネット)に移動させ、チューブを取り外し、結束バンドを切断し、バイオリアクターの上部を取り外す。
- PDMSメンブレンから残った培地を吸引し、メンブレンを準備時に使用したのと同じペトリ皿に戻す。
- 細胞培養顕微鏡で細胞の形態を評価し、細胞の接着状態と生存率を確認した後、必要に応じて後続の解析を行う。
10. ダウンストリーム解析
- qPCRサンプルの回収
- BSC内で、細胞種や実験条件を含むサンプル識別子を1.5 mLマイクロ遠心チューブに記入する。
- 細胞培養顕微鏡を用い、静止条件および蠕動条件の両方において、PDMS上に細胞が存在することを確認する。
- 各PDMSメンブレンから残留培地を吸引除去する。
- Buffer RLTにβ-メルカプトエタノールを1:100の割合で添加し、RNA溶解バッファーを調製する。
- 細胞を溶解させるため、各PDMSメンブレンにBuffer RLT + β-メルカプトエタノールを370 µL添加する。
- 滅菌済みのセルスクレイパーを用い、PDMSの細胞播種領域を強くスクレイピングしてすべての細胞を剥離させる。
- 溶解液 約350 µLを対応する1.5 mLチューブに移す。
- RNA抽出を行うか、または使用時までサンプルを-80 °Cで保存する。
- BSCを汚染除去する。
注:Buffer RLTおよびβ-メルカプトエタノールは、それぞれのSDSに従って取り扱い、適切な廃棄物容器に廃棄すること。
- 免疫蛍光染色
- 各メンブレンに4%パラホルムアルデヒド(PFA)を1 mL添加し、室温で20分間インキュベートする。
- PFAを吸引し、指定の有害廃棄物容器に廃棄する。
- 各メンブレンにPBSを1 mL添加し、残留した固定液を除去する。
- ターゲットマーカーに適した免疫蛍光染色プロトコルに従って操作を続ける。
11. バイオリアクターおよび関連部品の洗浄
- バイオリアクターの入口および出口ポートを含め、培地、細胞、またはPDMS膜に接触するすべてのバイオリアクター構成部品に70%エタノールをスプレーする。
- 培地ボトルから残りの培地をすべて吸引し、その後、内部に70%エタノールを十分にスプレーして再度吸引することで洗浄する。
- 滅菌済みのすべての構成部品をBSCから取り出し、指定のクリーンエリアに保管する。
- 培地ボトルの場合:
- 20%漂白剤で洗浄し、撹拌した後、流水を出しながら内容物をシンクに捨てる。
- 1:10に希釈した酢でこすり洗いし、石鹸と超純水で洗浄した後、70%エタノールでリンスし、逆さまにして乾燥させる。
- 培地キャップとポンプインサートを70%エタノールで洗浄する。
- ペリスタルティックポンプの洗浄
- 250 mLビーカーを用意し、(1) 70%エタノール、(2) 超純水、または (3) 空の廃棄容器をそれぞれ入れる。
- 閉回路の流路になるようチューブでポンプを接続し、Arduino制御の回路基板を使用して電源を入れる。
- ポンプを70%エタノールで1分間、その後超純水で1分間運転させ、空の廃棄ビーカーに流し込む。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
本プロトコルの目的は、蠕動性の機械的力がマクロファージの活性化をどのように直接的に調節するかを決定するための再現可能な手法を実証することである。バイオリアクターを用いた実験に先立ち、iBMDMsが標準的な生化学的刺激条件下で適切に極性化することを確認した。本プロトコルに従い、PDMSメンブレンにフィブロネクチンをコーティングし、iBMDMsを播種した。細胞を24時間静置して接着させた後、視覚的検査を行い、接着の成功、メンブレン表面への均一な分布、およびベンダーの説明にある不規則な「目玉焼き状」の形態による生存を確認した(Figure 3A,B)。接着不良、播種ムラ、または細胞剥離が認められるメンブレンは、機械的刺激が不均一となり、下流のシグナリングにばらつきが生じる可能性があるため、実験から除外した。正常に播種されたメンブレンは、蠕動性刺激を行うためにバイオリアクターシステムに組み込むか、静止コントロールとして維持した。4時間の培養後、サンプルを再評価し、機械的刺激後も細胞が接着したままであることを確認した(
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
炎症性疾患において蠕動運動の調節不全が一般的であるにもかかわらず、蠕動力がマクロファージ機能にどのような影響を与えるかについての現在の理解は依然として限られています。せん断応力や周期的な歪みなどの個別の機械的刺激がマクロファージの活性化を調節することは知られていますが、蠕動運動を構成する多軸的な歪みと流体フローが同時に作用した際の影響については、マクロファージのメカノバイオロジーの観点から十分に研究されていません。本プロトコルでは、生理学的に適切な条件下で、これらの複合的な機械的力がマクロファージの炎症挙動をどのように制御するかを研究するための再現可能なプラットフォームを提供します。本システムを用いた検証により、4 hの蠕動刺激への曝露が、Il6およびNos2の発現が有意に増加することを特徴とする、主に前炎症性のマクロファージ表現型を促進することが示されました。
重要な点として、マクロファージのメカノセンシティビティ(機械刺激感受性)は、印加される力の大きさ、周波数、および持続時間に強く依存します12
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者は開示すべき利益相反はありません。
謝辞
本研究は、米国国立科学財団(National Science Foundation)の助成金(Award Number 2440798)による支援を受けて行われました。図1および図2は、BioRender.comのライセンス版を用いて作成されました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.25% Trypsin-EDTA | Fisher | 25200056 | |
| 1.5 mL マイクロ遠心チューブ | USA Scientific | 1615-5510 | |
| 100 mm x 15 mm ペトリ皿 | Fisher | 50-190-0276 | |
| 150 mm 培養皿 | Fisher | FB012925 | |
| 4% パラホルムアルデヒド | Santa Cruz | sc-281692 | |
| 90 mm 培養皿 | Fisher | FB012923 | |
| Alexa Fluor 488 Anti-F4/80 抗体 | Abcam | ab204266 | |
| Alexa Fluor 647 Anti-CD40 抗体 | Abcam | ab275158 | |
| Arduino Uno | Amazon | B008GRTSV6 | |
| ブレッドボード | Amazon | ||
| Buffer RLT | Qiagen | 79216 | |
| セルスクレイパー | Fisher | 353087 | |
| DAPI | MilliporeSigma | 50-874-10001 | |
| デシケーター | MilliporeSigma | Z119008 | |
| 斜め pliers(ニッパー) | Amazon | ||
| ウシ胎児血清 | Innovative Biosciences | 11-01-500 | |
| フィブロネクチン | MilliporeSigma | F1141-1MG | |
| HEPES バッファー | Fisher (Gibco) | 15630080 | |
| iBMDM | Applied Biological Materials Inc. (abm) | T0673 | |
| モーター | Robotshop | FT-SPARK16-360 | |
| PE Anti-Ym-1 + Ym-2 抗体 | Abcam | ab211621 | |
| ペニシリン-ストレプトマイシン | Fisher | 15140122 | |
| ペリスタルティックポンプ | DigiKey | 1150 | |
| リン酸緩衝生理食塩水 | Fisher | 14190250 | |
| PLA フィラメント | Amazon | B0D7ZYCVTY | |
| ポテンショメータ B1K 1K Ohm | Amazon | B0CZ747F6F | |
| RPMI 1640 | Fisher | 11875085 | |
| シリコングリース | Amazon | B000XBH9HI | |
| ジョイントプライヤー | Amazon | ||
| ピルビン酸ナトリウム | Cytiva Hyclone | SH3023901 | |
| Sylgard 184 シリコンエラストマーキット | Fisher | NC9285739 | |
| T-25 培養フラスコ | Fisher | 229331 | |
| トランジスタ | DigiKey | IRF520NPBF-ND | |
| 配線/ワニ口クリップ | Amazon | ||
| 結束バンド 18 インチ | Amazon | ||
| β-メルカプトエタノール | Fisher | AC125472500 |
参考文献
- Mass E, Nimmerjahn F, Kierdorf K, Schlitzer A. Tissue-specific macrophages: how they develop and choreograph tissue biology. Nat Rev Immunol. 2023;23(9):563-579.
- Kumar V, Kumar V. Macrophages: the potent immunoregulatory innate immune cells. In: Macrophage Activation - Biology and Disease. London: IntechOpen; 2019. doi:10.5772/intechopen.88013.
- Ross EA, Devitt A, Johnson JR. Macrophages: the good, the bad, and the gluttony. Front Immunol. 2021;12:708186.
- Sreejit G, Fleetwood AJ, Murphy AJ, Nagareddy PR. Origins and diversity of macrophages in health and disease. Clin Transl Immunology. 2020;9(12):e1222.
- Locati M, et al. Diversity, mechanisms, and significance of macrophage plasticity. Annu Rev Pathol. 2020;15:123-147.
- Mosser DM, Edwards JP. Exploring the full spectrum of macrophage activation. Nat Rev Immunol. 2008;8(12):958-969.
- Boutilier AJ, Elsawa SF. Macrophage polarization states in the tumor microenvironment. Int J Mol Sci. 2021;22(13):6995.
- Orecchioni M, Ghosheh Y, Pramod AB, Ley K. Macrophage polarization: different gene signatures in M1 (LPS+) versus classically and M2 (LPS−) versus alternatively activated macrophages. Front Immunol. 2019;10:1084.
- Huang X, Li Y, Fu M, Xin HB. Polarizing macrophages in vitro. Methods Mol Biol. 2018;1784:119-126.
- Gharavi AT, et al. The role of macrophage subtypes and exosomes in immunomodulation. Cell Mol Biol Lett. 2022;27(1):83.
- Peng Y, et al. Regulatory mechanism of M1/M2 macrophage polarization in the development of autoimmune diseases. Mediators Inflamm. 2023;2023:8821610.
- Clevenger AJ, Jha A, Moore E, Raghavan SA. Manipulating immune activity of macrophages: a materials and mechanics perspective. Trends Biotechnol. 2025;43(1):33-49.
- Khanmohammadi M, Mirzaalikhan Y, Baratchi S. Immunity in motion: the role of mechanics in macrophage biology. Cell Chem Biol. 2025;32(12). doi:10.1016/j.chembiol.2025.11.004.
- Adams S, et al. Mechano-immunomodulation: mechanoresponsive changes in macrophage activity and polarization. Ann Biomed Eng. 2019;47(11):2213-2231.
- Meizlish ML, et al. Mechanosensing regulates tissue repair program in macrophages. Sci Adv. 2024;10(11):adk6906.
- Lee M, Du H, Winer DA, Clemente-Casares X, Tsai S. Mechanosensing in macrophages and dendritic cells in steady-state and disease. Front Cell Dev Biol. 2022;10:1044729.
- Chen M, et al. Substrate stiffness modulates bone marrow-derived macrophage polarization through NF-κB signaling pathway. Bioact Mater. 2020;5(4):880-890.
- Blakney AK, Swartzlander MD, Bryant SJ. The effects of substrate stiffness on the in vitro activation of macrophages and in vivo host response to poly(ethylene glycol)-based hydrogels. J Biomed Mater Res A. 2012;100A(6):1375-1386.
- Sridharan R, Cavanagh B, Cameron AR, Kelly DJ, O'Brien FJ. Material stiffness influences the polarization state, function and migration mode of macrophages. Acta Biomater. 2019;89:47-59.
- Previtera ML, Sengupta A. Substrate stiffness regulates proinflammatory mediator production through TLR4 activity in macrophages. PLoS One. 2015;10(12):e0145813.
- Song C, et al. Microfluidic three-dimensional biomimetic tumor model for studying breast cancer cell migration and invasion in the presence of interstitial flow. Chin Chem Lett. 2019;30(5):1038-1042.
- Li R, et al. Interstitial flow promotes macrophage polarization toward an M2 phenotype. Mol Biol Cell. 2018;29(16):1927-1940.
- Son H, et al. Shear stress induces monocyte/macrophage-mediated inflammation by upregulating cell-surface expression of heat shock proteins. Biomed Pharmacother. 2023;161:114566.
- Zhou H, Scatena M, Tu LN, Giachelli CM, Nigam V. Monocyte adhesion to and transmigration through endothelium following cardiopulmonary bypass shearing is mediated by IL-8 signaling. Front Cardiovasc Med. 2024;11:1454302.
- Jui E, et al. Shear stress induces a time-dependent inflammatory response in human monocyte-derived macrophages. Ann Biomed Eng. 2024;52(11):2690-2705.
- Castro-Núñez L, Dienava-Verdooold I, Herczenik E, Mertens K, Meijer AB. Shear stress is required for the endocytic uptake of the factor VIII-von Willebrand factor complex by macrophages. J Thromb Haemost. 2012;10(9):1929-1937.
- Cheng C, et al. Atherosclerotic lesion size and vulnerability are determined by patterns of fluid shear stress. Circulation. 2006;113(23):2744-2753.
- Seneviratne AN, et al. Low shear stress induces M1 macrophage polarization in murine thin-cap atherosclerotic plaques. J Mol Cell Cardiol. 2015;89(Pt B):168-172.
- Bonito V, de Kort BJ, Bouten CVC, Smits AIPM. Cyclic strain affects macrophage cytokine secretion and extracellular matrix turnover in electrospun scaffolds. Tissue Eng Part A. 2019;25(17-18):1312-1325.
- Ballotta V, Driessen-Mol A, Bouten CVC, Baaijens FPT. Strain-dependent modulation of macrophage polarization within scaffolds. Biomaterials. 2014;35(18):4919-4928.
- Dziki JL, et al. The effect of mechanical loading upon extracellular matrix bioscaffold-mediated skeletal muscle remodeling. Tissue Eng Part A. 2018;24(1-2):128-139.
- Wehner S, et al. Mechanical strain and TLR4 synergistically induce cell-specific inflammatory gene expression in intestinal smooth muscle cells and peritoneal macrophages. Am J Physiol Gastrointest Liver Physiol. 2010;299(5):G1187-G1197.
- Clevenger AJ, et al. Rapid prototypable biomimetic peristalsis bioreactor capable of concurrent shear and multiaxial strain. Cells Tissues Organs. 2023;212(1):57-72.
- Huizinga JD. Gastrointestinal peristalsis: joint action of enteric nerves, smooth muscle, and interstitial cells of Cajal. Microsc Res Tech. 1999;47(4):239-247.
- Kunz G, Leyendecker G. Uterine peristaltic activity during the menstrual cycle: characterization, regulation, function and dysfunction. Reprod Biomed Online. 2002;4(Suppl 3):5-9.
- Hosseini G, et al. A computational model of ureteral peristalsis and an investigation into ureteral reflux. Biomed Eng Lett. 2018;8(1):91-101.
- Clevenger AJ, et al. Peristalsis-associated mechanotransduction drives malignant progression of colorectal cancer. Cell Mol Bioeng. 2023;16(4):315-330.
- Leyendecker G, Kunz G, Wildt L, Beil D, Deininger H. Uterine hyperperistalsis and dysperistalsis as dysfunctions of the mechanism of rapid sperm transport in patients with endometriosis and infertility. Hum Reprod. 1996;11(7):1542-1551.
- Iwakiri K, et al. Mechanisms underlying excessive esophageal acid exposure in patients with gastroesophageal reflux disease. Esophagus. 2017;14(3):213-218.
- Raghavan S, Crawford LZ. 3D rapid prototypable tunable peristalsis bioreactor. United States patent. 2022: US12522795.
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。