本プロトコルでは、N-lactoyl-phenylalanineが糖尿病性心筋症、心臓の脂質代謝、およびコレステロール合成に及ぼす影響を、adenosine monophosphate-activated protein kinase alpha 1/3-hydroxy-3-methylglutaryl-coenzyme A reductase経路に焦点を当てて調査するための、in vivoおよびin vitroのアプローチについて説明します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
糖尿病性心筋症(DCM)は、糖尿病における最も深刻な合併症の一つです。内因性代謝物であるN-ラクトイル-フェニルアラニン(Lac-Phe)は、体重減少を促進し、グルコース恒常性を改善することができます。本研究では、DCMに対するLac-Pheの治療効果を調査し、さらにその潜在的なメカニズムを探索することを目的としました。DCMを伴う2型糖尿病マウスにLac-Pheを投与したところ、Lac-Pheは心収縮機能を亢進させ、病理学的リマデリングを改善し、心臓における脂質蓄積を減少させました。in vitroでは、高グルコースおよびパルミチン酸で刺激したH9c2細胞を用いてLac-Pheの効果を検討しました。Lac-Pheは、H9c2細胞におけるコレステロール合成を減少させることで、脂質蓄積を抑制しました。メカニズムとしては、Lac-Pheはアデノシン一リン酸活性化プロテインキナーゼα1(AMPKα1)のリン酸化および活性化を促進しました。続いて、活性化されたAMPKα1がその下流ターゲットである3-ヒドロキシ-3-メチルグルタリルCoA還元酵素(HMGCR)をリン酸化して抑制し、その結果、コレステロール合成が減少し、最終的にH9c2細胞における脂質代謝不均衡が改善されました。これらの知見は、Lac-PheがAMPKα1/HMGCR経路を介してDCMにおけるH9c2細胞の脂質代謝を改善し、それによって心収縮機能を亢進させ、病理学的リマデリングを改善することを示しています。Lac-Pheは、糖尿病性心筋症に対する潜在的な治療アプローチとなる可能性があります。
概要
糖尿病は、持続的な高血糖を特徴とする代謝性疾患である1。過去20年間で、糖尿病は世界における死因の上位10位の一つとなっており、毎年600万人以上の人々が糖尿病およびその合併症により亡くなっている2。糖尿病に伴う心臓の病理的状態である糖尿病性心筋症(DCM)は、糖尿病に関連する最も深刻な合併症の一つである3,4。DCMは心不全の独立したリスク因子として機能し、心線維化や心筋細胞肥大などの心筋の構造的および機能的変化を特徴としており5,6、最終的に拡張不全と収縮不全の両方を引き起こす。β遮断薬、アンジオテンシン変換酵素(ACE)阻害薬、アンジオテンシンII型1受容体拮抗薬などのいくつかの従来の心血管治療法が現在DCMの管理に用いられているが7,8、臨床現場におけるその有効性は依然として不十分である。DCMの根底にあるメカニズムが十分に研究されていないため9、現時点ではこの疾患を標的とした明確な治療戦略は存在しない10,11。DCMの臨床症状は、初期段階の無症候性拡張不全から、後期段階の収縮不全および臨床的心不全、さらには死に至るまで進行する12,13。したがって、本疾患に対する効果的な治療オプションを探索し、開発することが急務となっている。
脂質代謝の不均衡は、DCMの主要な特徴である14。DCMでは、血中の遊離脂肪酸(FFA)レベルの上昇が、心筋細胞による脂肪酸の過剰な取り込みを招く可能性がある15,16。心筋細胞における脂肪酸代謝は、主に脂肪酸酸化に依存している。時間の経過とともに、心筋細胞における脂肪酸酸化では取り込まれたすべての脂肪酸を完全に代謝させることが不十分となり、過剰な脂肪酸およびその中間代謝物が心筋細胞内に蓄積する17。この過剰な脂質負荷はリポ毒性を誘発し、心筋のエネルギー供給を乱し、心臓の酸化ストレスおよび炎症反応を促進し、最終的に心筋細胞に深刻な損傷を与える18,19。したがって、心臓の脂質代謝を能動的に調節することは、DCMの潜在的な治療標的となる可能性がある20。
N-ラクトイルフェニルアラニン(Lac-Phe)は、運動後に濃度が急速に上昇する内因性代謝物である21。メカニズムとしては、Lac-Pheは細胞質酵素であるカルノシンジペプチダーゼ2(CNDP2)によって、乳酸とフェニルアラニンの縮合を通じて合成される。この生合成経路は、マクロファージ、上皮細胞、間葉系幹細胞を含む多様な細胞型に広く分布しており、これらの細胞は身体活動に続いてLac-Pheを血中に分泌する22。Lac-Pheの慢性的な投与は、食事摂取量の効果的な抑制、肥満および体重の減少、そしてグルコース恒常性の改善をもたらすことが示されている21。最近の研究では、Lac-Pheが脊髄損傷後のミクログリア/マクロファージの脂質代謝能を改善できることが示された23。興味深いことに、2型糖尿病の第一選択薬であるメトホルミンの急性および慢性投与の両方がLac-Pheレベルを上昇させ、Lac-Pheがメトホルミンの抗肥満効果を媒介することが研究で示唆されている22。さらに、Shaらは最近、Lac-Pheがミトコンドリア機能不全を軽減することで心筋細胞死を改善し、それによって横行大動脈狭窄(TAC)誘発性心不全を改善することを実証した24。長期にわたる高血糖と肥満は、拡張型心筋症(DCM)における脂質代謝調節不全に寄与する重要な要因である25。以上の証拠を総合すると、Lac-PheはDCMに対して潜在的な治療効果を持つ可能性が示唆される。しかし、現在まで、DCMにおけるLac-Pheの具体的な役割については調査されていない。
本研究において、糖尿病性心筋症(DCM)罹患マウスへのLac-Pheの外因性投与が、心収縮機能を効果的に改善し、心臓の病理学的リモデリングを軽減することを見出しました。また、Lac-Pheが脂質代謝不全の調節を通じて、DCMマウスの心機能を改善することを明らかにしました。Lac-Pheは、DCMマウスの心筋細胞における脂質滴(LD)の蓄積を抑制し、心臓内のコレステロール含量を減少させました。メカニズムとしては、Lac-Pheがアデノシン一リン酸活性化プロテインキナーゼα1(AMPKα1)のリン酸化および活性化を促進し、それによって3-ヒドロキシ-3-メチルグルタリルCoA還元酵素(HMGCR)のリン酸化を促進することが分かりました。HMGCRのリン酸化はその活性を低下させ、結果としてコレステロール産生を減少させ、心筋細胞における脂質代謝不全を改善します。これらの結果は、Lac-Pheを用いたDCMの潜在的な治療法に対する理論的根拠を提供するものです。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
動物実験プロトコルは、南京鼓楼医院の施設倫理委員会の承認を得て(承認番号:2025AE1065、2025年9月26日)、以下のガイドラインに従って実施された。 実験動物の飼養および使用に関する指針 (第8版)、米国国立衛生研究所発行。
動物
本研究では、5週齢の雄性C57BL/6Jマウス30匹を使用した。1週間の順化飼育後、すべてのマウスを温度22°C ± 2°C、湿度40%–60%の条件下で、12時間の明暗サイクルにて、食物と水に自由にアクセスできる状態で飼育した。DCMマウスモデルの作製には、HFDと低用量STZを組み合わせて使用した(図 1A)。高脂肪食(HFD; 脂肪 60%、タンパク質 20%、炭水化物 20%)の給餌開始から4週間後、マウスを一晩絶食させ、その後、ストレプトゾトシン(STZ; クエン酸緩衝液 pH 4.5に溶解し 8 mg/mLとしたもの)を 35 mg/kg/day の用量で3日間連続して腹腔内投与した。対照群のマウスには対照食(脂肪 10%、タンパク質 20%、炭水化物 70%)を給餌し、同量のクエン酸緩衝液を投与した。さらに15週間の高脂肪食維持後、ランダム血糖値 ≥13.3 mmol/L および左室駆出率(LVEF) <55% の両方の基準を満たしたマウスを、DCMモデルの作製に成功したと定義した。これらの検証済みDCMマウスに番号を振り、乱数表を用いてDCM群とDCM + Lac-Phe群にランダムに割り当てた。約半数のマウスでモデルの作製に失敗し、これらの動物は動物倫理規定に従って安楽死させた。簡潔に述べると、マウスをControl群、DCM群、DCM + Lac-Phe群の3群に分けた(各群 n = 10)。各群の10匹すべてのマウスに対して、心エコー検査、体重測定、およびOGTTを行った。28日間の治療期間後、後続の解析のために心臓を採取した。各群に10匹のマウスがいた。このうち、各群3匹をトランスクリプトームシーケンシングに、3匹を透過電子顕微鏡観察および組織学的染色に、3匹をタンパク質発現解析に使用した。各群の残りの1匹はバックアップとして確保した。DCMモデルの作製成功後、Lac-Pheを生理食塩水に溶解し、最終濃度を 10 mg/mL とした。DCM + Lac-Phe群のマウスには、Lac-Pheを 50 mg/kg/day、投与量 5 mL/kg で、1日1回、28日間連続して腹腔内投与した。Control群およびDCM群のマウスには、溶媒対照として同量の生理食塩水を投与した。
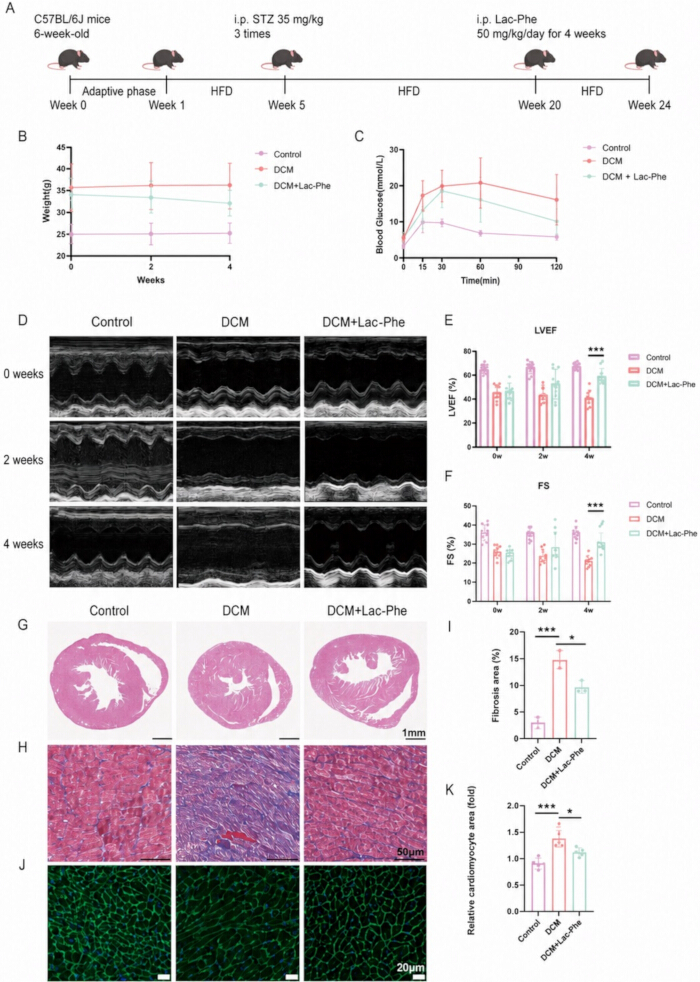
図1Lac-Pheは、糖尿病性心筋症モデルマウスにおいて心機能および病理学的リモデリングを改善する。 (A) HFD/STZ誘発DCMマウスモデルおよびLac-Phe投与プロトコルの概略図。(B) 4週間の投与期間中における対照群、DCM群、およびDCM + Lac-Phe群のマウス体重;各群 n = 10。(C) 指示された各群における経口糖負荷試験(OGTT);各群 n = 10。(D) 投与0、2、および4週目における代表的な心エコー画像。(E,F) 左室駆出率(LVEF)(E) および短縮率(FS)(F) の定量化;各群 n = 10。(G) 代表的なヘマトキシリン・エオシン(H&(E)心臓切片の染色像。スケールバー = 1 mm。(H, I)心臓切片の代表的なマッソン・トリクローム染色像 (H) および線維化領域の定量結果 (I);n = 各群 3。スケールバー = 50 μm(J, K) 心臓切片の代表的な小麦胚芽凝集素(WGA)染色像(J)および心筋細胞相対面積の定量結果(K)。n = 各群3。スケールバー = 20 μmデータは平均値として提示する。 ± 標準偏差 P < 0.05, **P < 0.001. この図を拡大して表示するには、ここをクリックしてください。
心機能
イソフルラン吸入による麻酔後、マウスを温度制御プラットフォーム(37°C)上の仰臥位に固定した。40 MHzトランスデューサを搭載した超音波診断装置を用いて、左心室の寸法および拡張期と収縮期の僧帽弁血流速度を測定し、そこからLVEFおよび短縮率(FS)を算出した。各マウスから3回連続の心周期を収集した。
細胞処理
H9c2細胞を、10%胎児牛血清および1%ペニシリン・ストレプトマイシンを添加したDulbecco's modified Eagle's mediumを用い、5% CO₂を含む37°Cの加湿雰囲気下で培養した。細胞のコンフルエンスが70%~80%に達した時点で、2~3日ごとに継代した。実験では、細胞を10 cmディッシュに播種し、コントロール群、高グルコース/パルミチン酸(HG/PA)群、およびHG/PA + Lac-Phe群の3群に分けた。HG/PA群およびHG/PA + Lac-Phe群の細胞を、まず0.25 mMパルミチン酸および50 mMグルコースに24時間的に暴露した。その後、HG/PA + Lac-Phe群の細胞には、HG/PAへの暴露を維持したまま10 μg/mL Lac-Pheをさらに24時間処理し、HG/PA群には同一のHG/PA条件下で等量のPBSを投与した。p-AMPK阻害実験では、10 μM AMPK-IN-3(DMSOに溶解)をLac-Pheと同時に24時間添加し、対応するコントロール群には等量のDMSOを投与した。アトルバスタチンを用いた実験では、HG/PA条件下にあるH9c2細胞に対し、10 μMアトルバスタチンを単独で、または10 μg/mL Lac-Pheと併用して24時間処理した。
組織学的染色
Lac-Pheの投与から28日後、マウスの心臓を採取し、4%パラホルムアルデヒド(pH 7.4)に24時間浸漬固定した。固定した心臓組織をパラフィン包埋し、厚さ6-μmの切片を作成した。組織切片をヘマトキシリン・エオジン、小麦胚芽凝集素、およびマッソン・トリクロームで染色した。すべての染色手順は、製造元のプロトコルに厳密に従って実施した。デジタルカメラシステムを備えた高解像度明視野顕微鏡を用い、20×倍率でホールスライドイメージングを行った。
ウェスタンブロット解析
タンパク質濃度はBradford法を用いて決定した。組織溶解物を10% (w/v) アクリルアミドゲルでSDS-PAGEにより分離し、ポリフッ化ビニリデン共重合体膜に電気泳動転写した。非特異的結合部位を5% 牛血清アルブミンで室温にて2時間ブロッキングした。次に、一次抗体(1:1,000に希釈)を用いて4°Cで一晩インキュベートし、その後シェーカー上でTBSTを用いて6回洗浄(各5分間)した。続いて、膜を西洋 horseradish peroxidase 標識二次抗体(1:5,000に希釈)で室温にて2時間インキュベートし、再びTBSTで6回洗浄(各5分間)した。タンパク質のバンドは、強化化学発光試薬キットを用いて可視化した。ウェスタンブロット結果の定量は、ImageJソフトウェアを用いた密度分析により行った。本研究で使用したすべての抗体は、材料表に記載されている。
トランスクリプトーム解析
TRIzol ReagentおよびRNeasy miniキットを用いて、C57BL/6Jマウスの心臓組織から全RNAを単離した。2100バイオアナライザーを用いてRNA品質を評価し、高いRNA純度と完全性が確認された。RNA-seqライブラリはVAHTS Universal V10 RNA-seq Library Prep Kitに従って調製し、Illumina NovaSeq 6000 System(シングルリード、150 bp)を用いてシーケンスを行った。DESeq2を用いて変動遺伝子を同定し、補正P値 < 0.05および絶対log₂ fold change > 1を統計的に有意と見なした。変動遺伝子に対して遺伝子オントロジー(GO)濃縮解析を行い、GO用語における変動遺伝子の濃縮の有意性を超幾何分布アルゴリズムを用いて算出した。
Oil Red O染色およびLD540脂質染色
心臓組織をOCTコンパウンドに埋め込み、厚さ10-μmの切片を作成した。凍結切片を室温で30分間静置して平衡化し、4%パラホルムアルデヒドで10分間固定した。PBSで洗浄後、切片を60%イソプロピルアルコールに15秒間浸し、Oil Red O作業溶液を加えて30分間反応させた。その後、切片を60%イソプロピルアルコールで15秒間処理し、PBSで3回洗浄した。LD540による脂質染色のために、H9c2細胞をPBSで洗浄し、室温で4%パラホルムアルデヒドを用いて10分間固定した。次に、細胞を10 μM LD540と共に室温で30分間インキュベートした。
透過電子顕微鏡法 (TEM)
新鮮なマウス心臓組織を1–2 mm3の大きさに切断し、電子顕微鏡用固定液を用いて4°Cで4時間固定した後、二回蒸留水で洗浄し、段階的に濃度を上げたエタノール溶液に浸漬させた。その後、試料を包埋・薄切し、透過型電子顕微鏡下で観察した。
総コレステロール (TC) 量
血清およびH9c2細胞サンプルの総コレステロール(TC)値を、Amplex Red Cholesterol and Cholesteryl Ester Assay Kitを用い、製造元のプロトコルに従って測定しました。
経口糖負荷試験 (OGTT)
マウスを14時間(19:00から9:00まで)絶食させた後、グルコース(20%ストック溶液、2 g/kg)を経口投与した。経口投与後 0、15、30、60、および120分に尾静脈から採血し、血糖値を測定した。
Cell counting kit-8 (CCK-8) 測定
細胞生存率の測定にはCCK-8を使用した。H9c2細胞を、初期密度 3 × 10⁴ cells/wellで96ウェルプレートに播種した。HG/PA条件下で異なる濃度のLac-Pheを用いて24時間処理した後、1ウェルあたり100 μLの培地に10 μLのキット試薬を添加し、37°Cで4時間インキュベートした。マルチモードマイクロプレートリーダーを用いて450 nmでの吸光度を測定し、光学密度(OD)値を算出した。
分子ドッキング
Lac-PheおよびAMPKα1の結晶構造をPubChem26からダウンロードした。分子ドッキングプロセスはCB-DOCK227を用いて実施した。
統計解析
すべての超音波心エコー測定、組織学的染色、および画像定量化は、群分けを知らされていない研究者によって行われた。すべてのデータ解析にはPrismおよびSPSS 20.0を使用した。各実験は少なくとも3回繰り返し、データは平均値 ± 標準偏差として的に示した。分散の均一性はLevene検定を用いて評価した。正規性は残差のグラフ視覚的確認により確認した。多群間の比較には一元配置分散分析を用い、次いでペア比較のためにTukeyのポストホック検定を行った。OGTTデータについては、群を被験者間因子、時間を被験者内因子とする二元配置反復測定分散分析を用い、次いでBonferroniのポストホック検定を行った。P < 0.05を統計学的に有意と見なした。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
Lac-Phe improves cardiac function in diabetic cardiomyopathy mice
We induced DCM in C57BL/6J mice using an HFD combined with STZ injections (Figure 1A) and randomly assigned the successfully established DCM mice to an untreated group (DCM group) and a Lac-Phe treatment group, with control C57BL/6J mice serving as the negative control. According to the study by Li et al.21, we selected 50 mg/kg as the therapeutic dose of Lac...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
本研究において、我々はLac-PheがDCMに対して治療効果を持つことを支持する根拠を提示します。Lac-Pheは、心筋細胞におけるコレステロール産生を抑制し、脂質代謝不全を改善させることで、DCMにおける心室リモデリングおよび心機能不全を改善しました。メカニズムとしては、Lac-PheがAMPKα1のリン酸化を促進していました。続いて、AMPKα1のリン酸化亢進は、その下流ターゲットであるHMGCRのリン酸化亢進および抑制と関連しており、これがコレステロール合成の減少を導き、最終的に心筋細胞における脂質代謝不全を改善しました。要約すると、本研究はLac-PheがAMPK/HMGCRシグナリング経路を介してDCMにおける心脂質代謝を改善することを示しています。主要な知見と提案されたメカニズムの概略図を図7に示します。
脂質代謝の不均衡は、拡張性心筋症(DCM)における心筋障害に寄与する重要な因子の1つです15。心筋細胞への過剰な脂質蓄積はリポトキシンを引き起こし、その結果、心...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
利益相反:
著者に開示すべき事項はありません。
謝辞
技術的なサポートを提供してくださった南京鼓楼医院臨床医学院および南京大学医学院附属病院の研究者およびスタッフの皆様に心より感謝申し上げます。本研究は、中国国家自然科学基金(助成金番号 81870291 および 82300384)、中国博士後科学基金(助成金番号 2023M731625)、および江蘇省自然科学基金(助成金番号 BK20220175)からの助成金によって支援を受けました。また、南京工業大学高度合成研究所によるリソースの提供および共同研究への支援に感謝いたします。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| AMPK-IN-3(p-AMPK阻害剤) | MedChemExpress (MCE) | HY-132921 | 使用時点 10 μM Lac-Phe処理細胞におけるAMPKシグナリングを抑制するための、AMPK阻害実験において。 |
| Amplex Red コレステロールおよびコレステリルエステル測定キット | Beyotime | S0211S | 血清およびH9c2細胞サンプル中の総コレステロール値を測定するために使用します。 |
| 抗AMPK抗体α1 | Cell Signaling Technology | 2532; RRID: AB_330331 | AMPKのウェスタンブロット解析に使用した一次抗体α1. |
| 抗GAPDH抗体 | 細胞シグナル伝達技術 | 5174; RRID: AB_10622025 | GAPDHのウェスタンブロット解析に使用した一次抗体。 |
| 抗HMGCR抗体 | Abcam | ab174830; RRID: AB_2749818 | HMGCRのウェスタンブロット分析に使用した一次抗体。 |
| 抗p-AMPK抗体α1 (Thr172) | 細胞シグナル伝達技術 | 2535; RRID: AB_331250 | リン酸化AMPKのウェスタンブロット解析に使用した一次抗体α1. |
| 抗p-HMGCR (Ser872) | Abcam | ab124350 | リン酸化HMGCRのウェスタンブロット解析に使用した一次抗体。 |
| 抗ウサギIgG抗体(HRP標識) | Cell Signaling Technology | 7074; RRID: AB_2099233 | ウェスタンブロット検出に1:5,000の希釈倍率で使用。 |
| 抗-β$\alpha$-チューブリン | 細胞シグナリング技術 | 2128; RRID: AB_823664 | 〜のウェスタンブロット解析に使用した一次抗体 β$\alpha$-チューブリン |
| アトルバスタチン | MedChemExpress (MCE) | HY-17379 | 単独で、またはLac-Pheと組み合わせて使用し、HG/PA処理したH9c2細胞における脂質蓄積、総コレステロール値、およびHMGCRリン酸化への影響を評価する。 |
| ウシ血清アルブミン | Sigma-Aldrich | A7906 | ウェスタンブロット解析における非特異的結合をブロックするため、5%の濃度で使用します。 |
| ブラドフォード法アッセイ試薬/キット | Thermo Fisher Scientific | 23200 | ウェスタンブロット解析前のタンパク質濃度定量に使用されます。 |
| C57BL/6Jマウス(5週齢、雄) | 南京大学モデル動物研究センター | 提供されたソーステキストがありません。翻訳対象となるテキストを入力してください。 | HFD/STZ誘発糖尿病性心筋症マウスモデルの作製に使用される。 |
| セルカウンティングキット-8 (CCK-8) | Sharebio | SB-CCK8S | 処理後のH9c2細胞の生存率を測定するために使用した。 |
| クエン酸緩衝液 | 院内で調製 | 翻訳対象のテキストが提供されておりません。翻訳する原文をご提示ください。 | pH 4.5で調製し、STZの溶解に、および対応する溶媒対照として使用した。 |
| 対照食(脂肪10%、タンパク質20%、炭水化物70%) | Research Diets, Inc. | D12450J | 対照群のマウスの飼料として使用した。 |
| D-(+)-グルコース | Sigma-Aldrich | 翻訳するソーステキストが提供されていません。翻訳が必要なテキストを入力してください。 | HG/PA細胞処理および経口ブドウ糖負荷試験に使用される。 |
| ジメチルスルホキシド (DMSO) | Sigma-Aldrich | D2650 | AMPK-IN-3の溶媒として、および対応するビークルコントロールとして使用した。 |
| ダルベッコ’修飾Eagle’培地 | Gibco, Thermo Fisher Scientific | 11965092 | H9c2細胞の基礎培地として使用する。 |
| 40 MHzトランスデューサ搭載超音波心エコー装置 | FUJIFILM VisualSonics | Vevo 3100 LT; 40 MHz トランスデューサー | 左室寸法および僧帽弁血流速度の測定、ならびに左室駆出率(LVEF)および短縮率(FS)の算出に使用されます。 |
| 電子顕微鏡用固定液 | ServiceBio | G1102 | 透過電子顕微鏡観察用に、新鮮なマウス心臓組織を固定するために使用します。 |
| エタノール | Sigma-Aldrich | E7023 | 透過電子顕微鏡試料作製における脱水過程で、濃度を段階的に上げて使用する。 |
| ウシ胎児血清 | Gibco, Thermo Fisher Scientific | 10099141 | H9c2細胞培養培地の補完として10%の濃度で使用する。 |
| H9c2細胞株 | サンセル | RRID: CVCL_0286 | HG/PAおよびLac-Phe処置実験のin vitro心細胞モデルとして使用した。 |
| ヘマトキシリン・エオシン染色 | ServiceBio | G1005-1/2 | 心臓組織の組織学的評価に使用される。 |
| 高脂肪食(脂肪分 60 kcal%) | Research Diets, Inc. | D12492 | 低用量のSTZと併用し、糖尿病性心筋症マウスモデルを構築する。 |
| 高解像度明視野顕微鏡 | Leica | DM2500 | 染色済み心臓組織の20倍全スライドイメージングに使用。× 倍率 |
| ImageJ | アメリカ国立衛生研究所 | 翻訳対象のテキストが提供されていません。翻訳するソーステキストを入力してください。 | ウェスタンブロット結果のデンシトメトリーによる定量に使用されます。 |
| イソフルラン | Sigma-Aldrich | 792632 | マウス心エコー検査中の麻酔に使用します。 |
| イソプロピルアルコール | Sigma-Aldrich | I9516 | 凍結心臓切片のオイルレッドO染色において、60%の濃度で使用した。 |
| LD540脂質染色 | Beyotime | C2050S-1 | 使用場所: 10 μM 細胞内脂質を染色するため。 |
| マッソン’三色染色(トリクローム染色) | ServiceBio | G1006 | 心臓組織の組織学的染色に使用される。 |
| N-ラクトイル-フェニルアラニン (Lac-Phe) | MedChemExpress (MCE) | HY-146098 | DCMマウスに投与し、HG/PAに曝露させたH9c2細胞の治療に使用した。 |
| オイルレッドO作業溶液 | ServiceBio | G1015-100ML | 凍結心臓組織切片における脂質の染色に使用されます。 |
| Omni-ECL 高効率化学発光キット | EpiZyme | SQ203L | ウェスタンブロッティング後、タンパク質バンドを化学発光により可視化するために使用します。 |
| パルミチン酸 | Sigma-Aldrich | P0500 | 高グルコースとともに0.25 mMで使用し、HG/PA処理H9c2細胞モデルを構築する。 |
| パラホルムアルデヒド | Sigma-Aldrich | P6148 | 4%溶液として調製し、組織学的染色または脂質染色の前に心臓組織および細胞を固定するために使用する。 |
| ペニシリン-ストレプトマイシン | Gibco, Thermo Fisher Scientific | 15140122 | H9c2細胞培養液に1%の割合で使用する。 |
| リン酸緩衝生理食塩水 (PBS) | Gibco, Thermo Fisher Scientific | 10010023 | 染色手順中の洗浄、および細胞処理実験における対応する溶媒として使用する。 |
| Prism | GraphPad ソフトウェア | バージョン 8.0 | 実験データの統計解析に使用されます。 |
| PVDF転写膜、 0.45 μm | Thermo Fisher Scientific | 88518 | ウェスタンブロット分析におけるタンパク質の電気泳動転写に使用される。 |
| RNeasy Mini Kit | QIAGEN | 74104 | マウス心臓組織からの全RNAの単離および精製に使用します。 |
| 塩化ナトリウム溶液 0.9%(生理食塩水) | Sigma-Aldrich | S8776 | Lac-Pheの溶解および、Control群およびDCM群のマウスに対するビヒクルコントロールとして使用した。 |
| SPSS | IBM | バージョン20.0 | 実験データの統計解析に使用されます。 |
| ストレプトゾトシン (STZ) | Sigma-Aldrich | S0130 | 糖尿病性心筋症マウスモデルを確立するため、高脂肪食(HFD)の投与とともに投与した。 |
| TBS Tween-20緩衝液 (20×) | Thermo Fisher Scientific | 28360 | ウェスタンブロット分析において、一次抗体および二次抗体によるインキュベーション後にメンブレンを洗浄するために使用します。 |
| Tissue-Tek O.C.T. コンパウンド | Sakura Finetek | 4583 | Oil Red O染色のための凍結切片作製前の心臓組織の包埋に使用します。 |
| 透過電子顕微鏡 | 日立 | HT7800 | マウス心臓組織における超微形態的変化の検討に使用された。 |
| TRIzol試薬 | Invitrogen | 15596026 | マウス心臓組織からの全RNA抽出に使用。 |
| VAHTS Universal V10 RNA-seq ライブラリ調製キット | Vazyme | NR616-01 | トランスクリプトーム解析のためのRNA-seqライブラリ調製に使用します。 |
| 小麦胚芽凝集素 (WGA) | ServiceBio | W7024 | 心臓組織の組織学的評価に使用されます。 |
参考文献
- Pan KL, Hsu YC, Chang ST, Chung CM, Lin CL. The role of cardiac fibrosis in diabetic cardiomyopathy: from pathophysiology to clinical diagnostic tools. Int J Mol Sci. 2023;24(10):8604.
- Saeedi P, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Zou R, et al. PGAM5-mediated PHB2 dephosphorylation contributes to diabetic cardiomyopathy by disrupting mitochondrial quality surveillance. Research. 2022;2022:0001.
- Jia G, DeMarco VG, Sowers JR. Insulin resistance and hyperinsulinaemia in diabetic cardiomyopathy. Nat Rev Endocrinol. 2016;12(3):144–53.
- Low Wang CC, Hess CN, Hiatt WR, Goldfine AB. Clinical update: cardiovascular disease in diabetes mellitus: atherosclerotic cardiovascular disease and heart failure in type 2 diabetes mellitus—mechanisms, management, and clinical considerations. Circulation. 2016;133(24):2459–502.
- Liu P, Zhang Z, Chen H, Chen Q. Pyroptosis: mechanisms and links with diabetic cardiomyopathy. Ageing Res Rev. 2024;94:102182.
- Park JJ. Epidemiology, pathophysiology, diagnosis and treatment of heart failure in diabetes. Diabetes Metab J. 2021;45(2):146–57.
- Gilca GE, et al. Diabetic cardiomyopathy: current approach and potential diagnostic and therapeutic targets. J Diabetes Res. 2017;2017:1310265.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. Int J Mol Sci. 2022;23(7):3587.
- Han X, et al. Cardiomyocyte OTUD1 drives diabetic cardiomyopathy via directly deubiquitinating AMPKα2 and inducing mitochondrial dysfunction. Nat Commun. 2025;16(1):666.
- Jia G, Hill MA, Sowers JR. Diabetic cardiomyopathy: an update of mechanisms contributing to this clinical entity. Circ Res. 2018;122(4):624–38.
- Yao Y, Yang B, Shi J. TiO(x)(OH)(4-2x) nanosheets with catalytic antioxidative activity alleviate oxidative injury in diabetic cardiomyopathy. J Am Chem Soc. 2025;147(4):3885–95.
- Seferovic PM, et al. Diabetic myocardial disorder: a clinical consensus statement of the Heart Failure Association of the ESC and the ESC Working Group on Myocardial & Pericardial Diseases. Eur J Heart Fail. 2024;26(9):1893–903.
- Wang H, et al. Inhibition of fatty acid uptake by TGR5 prevents diabetic cardiomyopathy. Nat Metab. 2024;6(6):1161–77.
- Zhao Y, et al. Ferroptosis: roles and molecular mechanisms in diabetic cardiomyopathy. Front Endocrinol. 2023;14:1140644.
- Nakamura M. Lipotoxicity as a therapeutic target in obesity and diabetic cardiomyopathy. J Pharm Pharm Sci. 2024;27:12568.
- Nakamura M, et al. Glycogen synthase kinase-3α promotes fatty acid uptake and lipotoxic cardiomyopathy. Cell Metab. 2019;29(5):1119–34.e12.
- Ritchie RH, Abel ED. Basic mechanisms of diabetic heart disease. Circ Res. 2020;126(11):1501–25.
- Thakur M, Tupe RS. Lipoxin and glycation in SREBP signaling: insight into diabetic cardiomyopathy and associated lipotoxicity. Prostaglandins Other Lipid Mediat. 2023;164:106698.
- Dhar A, et al. A comprehensive review of the novel therapeutic targets for the treatment of diabetic cardiomyopathy. Ther Adv Cardiovasc Dis. 2023;17:17539447231210170.
- Li VL, et al. An exercise-inducible metabolite that suppresses feeding and obesity. Nature. 2022;606(7915):785–90.
- Xiao S, et al. Lac-Phe mediates the effects of metformin on food intake and body weight. Nat Metab. 2024;6(4):659–69.
- Ying W, et al. N-lactoyl-phenylalanine modulates lipid metabolism in microglia/macrophage via the AMPK-PGC1α-PPARγ pathway to promote recovery in mice with spinal cord injury. J Neuroinflammation. 2025;22(1):167.
- Sha L, et al. N-Lac-Phe ameliorates myocardial cell death by improving mitochondrial dysfunction, ultimately improving TAC-induced heart failure. Cardiovasc Drugs Ther. 2026;40:1391–401.
- Ke J, Pan J, Lin H, Gu J. Diabetic cardiomyopathy: a brief summary on lipid toxicity. ESC Heart Fail. 2023;10(2):776–90.
- PubChem. PubChem. Available from: https://pubchem.ncbi.nlm.nih.gov/. Accessed August 15, 2026.
- Liu Y, Yang X, Gan J, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164.
- GeneCards. GeneCards: the Human Gene Database. Version 6.1, June 17, 2026.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Jo Y, DeBose-Boyd RA. Post-translational regulation of HMG CoA reductase. Cold Spring Harb Perspect Biol. 2022;14(12):a041253.
- Steinberg GR, Hardie DG. New insights into activation and function of the AMPK. Nat Rev Mol Cell Biol. 2023;24(4):255–72.
- Istvan ES, Deisenhofer J. Structural mechanism for statin inhibition of HMG-CoA reductase. Science. 2001;292(5519):1160–4.
- Beaudry D, et al. Statin therapy in cardiovascular diseases other than atherosclerosis. Curr Atheroscler Rep. 2007;9(1):25–32.
- Koch CG. Statin therapy. Curr Pharm Des. 2012;18(38):6284–90.
- Dewanjee S, et al. Autophagy in the diabetic heart: a potential pharmacotherapeutic target in diabetic cardiomyopathy. Ageing Res Rev. 2021;68:101338.
- Madonna R, et al. Empagliflozin inhibits excessive autophagy through the AMPK/GSK3β signalling pathway in diabetic cardiomyopathy. Cardiovasc Res. 2023;119(5):1175–89.
- Madhavi YV, et al. Targeting AMPK in diabetes and diabetic complications: energy homeostasis, autophagy and mitochondrial health. Curr Med Chem. 2019;26(27):5207–29.
- Fang C, et al. The AMPK pathway in fatty liver disease. Front Physiol. 2022;13:970292.
- Liu S, et al. AICAR-induced activation of AMPK inhibits TSH/SREBP-2/HMGCR pathway in liver. PLoS One. 2015;10(5):e0124951.
- Zhou H, et al. Empagliflozin rescues diabetic myocardial microvascular injury via AMPK-mediated inhibition of mitochondrial fission. Redox Biol. 2018;15:335–46.
- Lu QB, et al. METRNL ameliorates diabetic cardiomyopathy via inactivation of cGAS/STING signaling dependent on LKB1/AMPK/ULK1-mediated autophagy. J Adv Res. 2023;51:161–79.
- Wang D, et al. FGF1(ΔHBS) prevents diabetic cardiomyopathy by maintaining mitochondrial homeostasis and reducing oxidative stress via AMPK/Nur77 suppression. Signal Transduct Target Ther. 2021;6(1):133.
- He L. Metformin and systemic metabolism. Trends Pharmacol Sci. 2020;41(11):868–81.
- Yang F, et al. Metformin inhibits the NLRP3 inflammasome via AMPK/mTOR-dependent effects in diabetic cardiomyopathy. Int J Biol Sci. 2019;15(5):1010–9.
- Regitz-Zagrosek V, Gebhard C. Gender medicine: effects of sex and gender on cardiovascular disease manifestation and outcomes. Nat Rev Cardiol. 2023;20(4):236–47.
- Evrony GD, Hinch AG, Luo C. Applications of single-cell DNA sequencing. Annu Rev Genomics Hum Genet. 2021;22:171–97.
- Verboom K, et al. Smarter single cell total RNA sequencing. Nucleic Acids Res. 2019;47(16):e93.
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
この記事は公開されました
動画は近日公開