本プロトコールでは、脂質代謝、炎症反応、酸化ストレス、アポトーシス、およびAMP活性化プロテインキナーゼ関連シグナル伝達を評価することにより、RAW264.7マクロファージにおける酸化低密度リポタンパク質誘発性機能不全に対するペオニフロリンの効果を評価する方法について記述し、マクロファージ機能不全のメカニズム研究を支援します。
研究記事
ペオニフロリンは、AMP活性化プロテインキナーゼの関与を介して、酸化低密度リポタンパク質によって誘導されるRAW264.7細胞の機能不全を軽減する
* These authors contributed equally
この記事について
サマリー
要約
本研究では、ネットワーク薬理学とin vitro実験を統合したプロトコルを用いて、酸化低密度リポタンパク質(ox-LDL)誘発性のマクロファージ機能不全に対する黄芩湯(HQT)およびその生理活性成分の一つであるペオニフロリン(PF)の保護効果を評価し、AMP活性化プロテインキナーゼ(AMPK)関連シグナル伝達を調査する方法を記述します。ネットワーク薬理学により、動脈硬化(AS)に関連するHQTの標的およびパスウェイを同定しました。ox-LDL誘発RAW264.7マクロファージモデルを用いて、脂質蓄積、コレステロール流出、アデノシン三リン酸(ATP)レベル、炎症反応、ミトコンドリア機能、酸化ストレス、アポトーシス、およびマクロファージ表現型マーカーを評価しました。非細胞毒性濃度において、HQTとPFを比較しました。AMPKの関与は、細胞熱シフトアッセイ(CETSA)、薬理学的阻害、および小干渉RNA(siRNA)によるノックダウンを用いて評価しました。ATP結合カセット輸送体A1(ABCA1)、肝X受容体アルファ(LXRα)、核内因子カッパB(NF-κB)関連タンパク質、およびアポトーシス関連タンパク質をウェスタンブロッティングにより検討しました。ネットワーク薬理学により、TNF、PPARG、NOS3を含む12個の重複標的が同定され、脂質代謝、炎症、AS、およびAMPKシグナル伝達に関連するパスウェイに濃縮されていました。PFとHQTの両方がAMPKのリン酸化を増加させ、ox-LDL誘発性の脂質蓄積と炎症性サイトカイン分泌を抑制し、コレステロール流出を改善しました。PFはATPレベルとミトコンドリア膜電位を回復させ、活性酸素種の産生とアポトーシスを抑制し、ABCA1の発現を増加させました。CETSAにより、PF処理後にAMPKの熱安定性が向上することが示されました。AMPKの薬理学的阻害またはsiRNAによるノックダウンは、PFに伴うABCA1発現、コレステロール流出、脂質蓄積、LXRα活性化、およびNF-κB抑制の変化を減弱させました。PFはCD86⁺マクロファージを減少させCD206⁺マクロファージを増加させましたが、AMPKのサイレンシングはこれらの変化を部分的に逆転させました。NF-κBの抑制は、コレステロール恒常性とマクロファージ表現型マーカーに同様の効果をもたらしました。本プロトコルにより、ox-LDL誘発性のマクロファージ機能不全およびAMPK関連シグナル伝達に対するPFおよびHQT介在性の効果の評価が可能になります。試験条件下において、PFはox-LDL誘発性の脂質代謝機能不全、炎症、酸化ストレス、ミトコンドリア機能不全、およびアポトーシスからRAW264.7細胞を保護し、PFとHQTはマクロファージ関連のエンドポイントにおいて方向的に同様の変化をもたらしました。
概要
心血管疾患は世界的な罹患率および死亡率の主要な原因であり、動脈硬化(AS)は多くの心血管疾患の主要な病理学的基盤となっています1,2,3,4。ASは、脂質蓄積5、慢性炎症6、および動脈壁内におけるプラークの漸進的な形成7を特徴とします。その開始と進行には、内皮機能不全、酸化ストレス、脂質代謝の調節不全、および持続的な免疫活性化が関与しています。酸化低密度リポタンパク質(ox-LDL)は、内皮の活性化ならびに単球走化性タンパク質-1(MCP-1)などの接着分子やケモキンの発現を促進し、これにより動脈内膜への単球の動員を促進します8。マクロファージへと分化した後、これらの細胞はスカベンジャー受容体を介してox-LDLを取り込み、徐々に脂質を蓄積した泡沫細胞へと分化します9。この過程に伴い、活性酸素種(ROS)および前炎症性サイトカインの産生が増加し10、血管炎症と酸化損傷をさらに悪化させます。これらの炎症メディエーターの中で、腫瘍壊死因子アルファ(TNF-α)は、一部に核内因子カッパB(NF-κB)経路の活性化を介して、泡沫細胞の形成と炎症シグナル伝達に寄与します11。静止条件下では、NF-κBはNF-κB抑制因子アルファ(IκB-α)との相互作用によって細胞質に保持されています12。刺激を受けると、IκBキナーゼ(IKK)が活性化され、IκB-αの分解とそれに続くNF-κBの核内移行が起こり13、そこでTNF-α、インターロイキン-1ベータ(IL-1β)、およびインターロイキン-6(IL-6)を含む炎症性遺伝子の転写が促進されます14。脂質低下療法や抗炎症療法の進歩にもかかわらず、相当な心血管リスクが依然として残っており、ASに関与する複数の病理学的プロセスを同時に標的とするさらなる治療戦略を開発する必要性が浮き彫りとなっています。
伝統的な中薬(TCM)の処方は、多様な分子標的およびシグナル伝達経路との相互作用を通じて治療効果を発揮する可能性のある、複数の生物活性成分を含んでいます15,16。この多成分・多標的の作用機序は、ASのような複雑な疾患の管理において潜在的な利点をもたらす可能性があります。黄芩湯(HQT)は、Scutellaria baicalensis(黄芩)、Paeonia lactiflora(白芍)、Glycyrrhiza uralensis(甘草)、およびZiziphus jujuba(大棗)の4種類の生薬で構成される伝統的な中薬処方です17,18。これらの生薬由来の生物活性成分は、脂質代謝を調節し、炎症反応を緩和し、酸化ストレスを軽減することが報告されています19。しかし、HQTの潜在的な抗動脈硬化効果の根底にある分子標的およびシグナル伝達経路については、まだ十分に解明されていません。
本研究では、ネットワーク薬理学とin vitro実験を組み合わせ、HQTおよびその生理活性成分の一つであるペオニフロリン(PF)が、ox-LDL誘導性のマクロファージ機能不全に対して示す保護効果の潜在的なメカニズムを調査する方法を確立しました。まず、ネットワーク薬理学解析を行い、HQTおよびASに関連する候補化合物、治療標的、およびシグナル伝達経路を特定しました。AMP活性化プロテインキナーゼ(AMPK)シグナリングへの関与の予測および既報のエビデンスに基づき、PFを実験的検証の対象として選択しました。RAW264.7細胞を用いて、脂質蓄積、コレステロール流出、炎症反応、エネルギー代謝、ミトコンドリア機能、酸化ストレス、アポトーシス、およびマクロファージの表現型マーカーに対するPFの影響を評価しました。また、非細胞毒性条件下でHQTとPFを比較しました。さらに、薬理学的阻害および小分子干渉RNA(siRNA)を用いたAMPKのノックダウンを行い、AMPK依存的なATP結合カセット輸送体A1(ABCA1)および肝X受容体α(LXRα)/NF-κBシグナリングの調節が、PFの保護効果に寄与しているかを検証しました。この統合的なアプローチは、ox-LDL誘導性のマクロファージ機能不全に対するHQTおよびPFの効果を評価し、本手法が同様のin vitroモデルにおけるAMPK関連メカニズムの解明に適しているか判断するための枠組みを提供するものです。
プロトコル
GSE100927は、一般に公開されており個人を特定できない二次データセットとして解析されました。参加者の募集、新たなヒト検体の採取、および直接的な個人識別情報の参照は行われなかったため、追加の施設審査委員会(IRB)による承認およびインフォームドコンセントは不要でした。細胞実験では、確立されたマウスマクロファージ細胞株のみを使用し、生体動物、動物一次組織、ヒト参加者、またはヒト一次材料は使用しなかったため、施設によるヒトまたは動物の倫理承認は適用されませんでした。
HQT生物活性化合物および標的の同定
Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP)、PubMed、China National Knowledge Infrastructure (CNKI)、およびUniProtデータベースの2026年7月16日時点のバージョンを利用した。TCMSPデータベースにおいて、Scutellaria baicalensis Georgi、Paeonia lactiflora Pall.、Glycyrrhiza uralensis Fisch.、およびZiziphus jujuba Mill.を、それぞれのラテン名、英語名、および中国語の生薬名を用いて個別に検索した。経口バイオアベイラビリティ(OB)が30%以上、かつ薬物類似性(DL)値が0.18以上の化合物を抽出した。複数の植物材料から同定された重複化合物は、化合物名および対応するTCMSP識別子を用いて統合した。
PubMedでは(“Huangqin Tang” OR “Huang-Qin-Tang” OR “Huang Qin Tang”)AND (constituent OR compound OR ingredient OR phytochemical OR target)という用語を用いて検索し、CNKIでは “Huangqin Tang” AND (“chemical constituents” OR “active ingredients” OR “pharmacological targets”)を用いて検索を行った。2025年12月16日までに発表された論文をスクリーニングした。化合物またはターゲットは、HQTまたはその4つの植物成分のいずれかとの関連が明記されている場合のみ含めた。追跡可能な一次根拠に欠けるレビュー、名称不明の化合物、および実験的またはデータベース的な根拠のない予測ターゲットは除外した。
UniProtデータベースの識別子マッピングツールを使用し、生物種をHomo sapiens(タクソン識別子 9606)に限定してタンパク質ターゲットのマッピングを行った。承認済みのヒト遺伝子シンボルを保持し、マッピングされなかった項目および重複したエントリは削除した。重複を排除した化合物-ターゲットのエッジリストをCytoscapeネットワーク可視化ソフトウェア(バージョン 3.7.2)にインポートし、HQT化合物-ターゲットネットワークを構築した。
AS関連ターゲットの同定およびバイオインフォマティクス解析
GeneCards、Online Mendelian Inheritance in Man (OMIM)、Comparative Toxicogenomics Database (CTD)、およびGene Expression Omnibus (GEO)の各データベースについて、2026年7月16日時点で利用可能なバージョンにアクセスした。GeneCards、OMIM、およびCTDの検索には「atherosclerosis」という用語を使用した。GeneCardsから取得した遺伝子のうち、全取得レコードの中央値に相当するRelevance Scoreが1.163以上のものを保持した。OMIMおよびCTDからは、ASに関連することが直接的に記載されている遺伝子のみを抽出した。
GEOより、GSE100927シリーズマトリックス、サンプル注釈ファイル、およびGPL17077プラットフォーム注釈ファイルをダウンロードした。全104例のヒト末梢動脈サンプルを、リポジトリの表現型メタデータに基づきASまたはコントロールに分類し、動脈の部位によるサンプルの除外は行わなかった。
バイオインフォマティクス解析は、R統計ソフトウェア(バージョン 4.3.2)を用い、limmaパッケージ(バージョン 3.58.1)、ggplot2パッケージ(バージョン 3.4.4)、ComplexHeatmapパッケージ(バージョン 2.18.0)、clusterProfilerパッケージ(バージョン 4.10.1)、およびorg.Hs.eg.dbパッケージ(バージョン 3.18.0)を使用して実施した。プローブのアノテーションにはGPL17077プラットフォームのアノテーションファイルを用い、承認済みのジーンシンボルを持たないプローブは除外した。同一の遺伝子にマッピングされる複数のプローブは、avereps関数を用いて平均化した。99パーセンタイル値が100を超えた場合にのみlog2(x + 1)変換を適用し、それ以外の場合は提供された対数値をそのまま保持した。アレイの正規化にはクアンタイル法を用いた。
サンプルを「Control」および「AS」としてコード化し、切片なしのデザイン行列を次を用いて作成した。 model.matrix(~0 + group)線形モデルは、以下の手法を用いて適合させた。 lmFit, makeContrasts, contrasts.fit、および eBayes 機能。すべての遺伝子は、~を用いて抽出した。 topTable(number = Inf, adjust.method = “BH”)発現変動遺伝子は、絶対log2 1を超えるフォールドチェンジおよび名目上の p 値 <0.05とし、Benjamini–Hochberg法で補正した p 値は完全な出力の中に保持されました。
log2 fold-change値および−log₁₀名目p値を用いてボルケーノプロットを作成しました。選択した遺伝子の行方向へのzスコア標準化を行った後、ヒートマップを作成しました。すべてのサンプルに同一の前処理および可視化設定を適用しました。
GeneCards、OMIM、CTD、およびGEOから得られた遺伝子は、UniProtデータベースを用いて標準化されました。遺伝子識別子は、承認済みの遺伝子シンボルの大文字に変換され、各データソース内の空白、マッピング不能なエントリ、および重複エントリは削除されました。コンセンサスのAS関連ターゲットは、4つのデータソースのうち少なくとも2つで特定された遺伝子として定義されました。標準化されたHQTターゲットセットと共通する遺伝子を特定するために、Rのintersect()関数が使用されました。
重複するHQT-ASターゲットをSTRINGデータベース(バージョン12.0、2025年12月16日にアクセス)に提出した。解析対象をHomo sapiensに限定し、最小相互作用スコアを0.700に設定して、すべてのエビデンスチャネルを保持し、第1または第2シェルの相互作用因子は追加しなかった。相互作用テーブルをエクスポートし、無向ネットワークとしてCytoscapeにインポートした。セルフループと重複エッジを削除し、CentiScaPeプラグイン(バージョン2.2)を用いて次数中心性、媒介中心性、および近接中心性の値を算出した。ハブ遺伝子は、これら3つの中心性指標すべてがネットワークの対応する平均値を超えているものと定義した。
承認済み遺伝子シンボルは、~を用いてEntrez識別子に変換されました。 bitr 機能。マッピングされなかった識別子および重複した識別子は除外され、アノテーション済みデータセット内で正常にマッピングされたすべての遺伝子をバックグラウンドとして使用した。すべてのオントロジーに対するGene Ontologyエンリッチメント解析を、以下を用いて実施した。 enrichGO (ont = “ALL”)、およびKyoto Encyclopedia of Genes and Genomes(KEGG)のパスウェイ解析を以下を用いて実施した。 enrichKEGG (生物 = “hsa”)とした。Benjamini-Hochberg補正を適用し、調整後のp値が p 値 <0.05が保持された。
前処理、差異発現解析、可視化、および濃縮解析の全スクリプトは、TCMSP analysis.RおよびTranscriptome analysis.Rとして提供された。ネットワーク解析の結果および既報の根拠に基づき、paeoniflorin (PF)、liquiritin、baicalin、wogonoside、およびglycyrrhizic acidがHQTの主要成分として同定された20。PFは、脂質代謝およびAMP活性化プロテインキナーゼシグナルの調節における役割が報告されているため、代表的な化合物として選定された。
HQT抽出液の調製
同定済みのS. baicalensis Georgi、P. lactiflora Pall.、G. uralensis Fisch.、およびZ. jujuba Mill.を乾燥重量比3:2:2:3で混合した。脱イオン水を1:10 (w/v)の比率で加え、混合物を1時間還流させた。抽出液を熱いうちにろ過し、残渣を脱イオン水を用いて1:8 (w/v)の比率で再度1時間抽出した。この手順は既報19に従った。ろ液を合わせ、60°Cで減圧濃縮した後、恒量になるまで真空乾燥させた。抽出収率は36.34%であった。 乾燥抽出物を滅菌水に1 g/mLの濃度で溶解し、0.22 µmメンブレンでろ過した後、分注して使用時まで−20°Cで保存した。実験濃度は、培養液1 mLあたりの乾燥抽出物のマイクログラム数で表記した。
細胞培養、トランスフェクション、および処理
RAW264.7マウスマクロファージを、10%胎児ウシ血清、100 U/mLペニシリン、および100 µg/mLストレプトマイシンを添加した高グルコースDulbecco's modified Eagle mediumを用い、5% CO2を含む37°Cの加湿インキュベーター内で培養した。細胞はコンフルエンスが約80%に達した時点で継代し、解凍後 pasaj 5から20までの細胞のみを使用した。細胞株の同一性はリポジトリの証明書と照らして確認し、細胞の形態、接着性、および増殖特性を定期的にモニタリングした。マイコプラズマ陰性の培養物のみを使用した。コンタミネーション、異常増殖、顕著な空胞化、大量のデブリ、著しい脱落、または細胞分布の不均一が見られた培養物は廃棄した。
AMPKα1のサイレンシングのため、細胞を6ウェルプレートの各ウェルに2 mLの培地を用いて2 × 10⁵ cells/wellで播種し、コンフルエンスが50%~60%に達した時点でトランスフェクションを行った。計100 pmolのsi-AMPKα1またはノンターゲティングsiRNAを125 µLの低血清培地で希釈し、一方で5 µLのリポソームベースのトランスフェクション試薬を別途125 µLの低血清培地で希釈した。室温で15分間インキュベートした後、これら2つの溶液を混合し、最終的なsiRNA濃度が50 nMとなるように細胞に滴下した。si-AMPKα1の配列は、センス鎖が5′-CCCATCTTATAGTTCAACCAT-3′、アンチセンス鎖が5′-ATGGTTGAACTATAAGATGGG-3′である。6時間後に培地を交換し、ox-LDLおよびPF処理を行うまで、合計48時間インキュベートした。AMPKα1のノックダウンはqRT-PCRおよびウェスタンブロッティングにより確認し、ネガティブコントロールのsiRNA群と比較して有意な減少が認められた実験のみを以降の解析に含めた。
PF、dorsomorphin、およびBAY 11-7082はジメチルスルホキシド(DMSO)で調製し、HQTは滅菌水で調製した。すべての処理群において最終的なDMSO濃度を0.1%以下に維持し、対照群には対応する溶媒を添加した。
濃度スクリーニングのため、細胞をPF(0、1、5、10、20、または40 µM)またはHQT(0、12.5、25、50、100、または200 µg/mL)で24時間処理した。その後、細胞生存率およびAMPKリン酸化を評価した。これらの結果に基づき、以降のすべての実験において20 µMのPFおよび100 µg/mLのHQTを選択した。
PFおよびHQTの比較のため、処置群として対照群、50 µg/mL ox-LDL群、ox-LDLおよび20 µM PF併用群、およびox-LDLおよび100 µg/mL HQT併用群を設定した。全群を24時間インキュベートした。AMPKの薬理学的阻害については、ox-LDLおよびPF併用群に対して、24時間の併用処置の前に10 µM dorsomorphinで1時間前処理を行った21,22。
AMPKを遺伝学的に抑制するため、細胞にsi-NCまたはsi-AMPKα1を48時間 transfectionし、その後、Control群、ox-LDL群、PF群、またはsi-AMPK plus PF群に割り当てた。PF群およびsi-AMPK plus PF群には、50 µg/mL ox-LDLと20 µM PFを併用して24時間投与した。ox-LDL群にはox-LDLのみを投与し、Control群には対応する溶媒を投与した。
NF-κBシグナリングの関与を評価するため、別の処置群において、50 µg/mLのox-LDLに24 hさらす前に、10 µMのBAY 11-7082で1 hの前処理を行った23,24,25。その後、ABCA1の発現、コレステロール流出、脂質蓄積、ならびにCD86⁺およびCD206⁺マクロファージの割合を測定した。
特に断りのない限り、細胞は処理の12~16時間前に播種し、各処理群につき3つの反復ウェルを使用した。細胞生存率スクリーニングでは、濃度ごとに5つのテクニカルレプリケートウェルを用いて5回の独立した実験を行ったが、それ以外の各アッセイは、異なる日に3回の独立して培養した細胞調製を用いて実施した(n = 3)。テクニカルレプリケート、二連測定、および複数の顕微鏡視野を階層的に平均し、各独立した実験につき単一の値を算出した。
均一に接着し、コンフルエンスが約60%–80%(トランスフェクション実験の場合は50%–60%)に達した培養細胞のみを処理に使用しました。必須となる材料、ソフトウェア、および器具は、付随する材料表に記載されています。
細胞生存率アッセイおよび定量リアルタイムPCR
RAW264.7細胞を96ウェルプレートに1ウェルあたり5 × 10³個で播種し、一晩静置して接着させた。セクション4に記載の濃度のPFおよびHQTで細胞を24時間処理した。培養液を100 µLの細胞生存率測定用ワーキングソリューションに交換し、37°Cの暗所で2時間インキュベートして細胞生存率を測定した。吸光度は450 nmで測定した。
試薬のみを加えたブランクウェルを用意し、その吸光度値をすべての測定値から差し引いた。各濃度の5つのテクニカルレプリケートウェルから得られた吸光度値の平均を算出した。細胞生存率は(処理群の吸光度/対照群の吸光度)× 100として計算し、未処理の対照群を100%と定義した。5回の独立した実験を行った。
フェノール・グアニジニウムRNA抽出試薬を用いて全RNAを抽出し、A260/A280値が1.8から2.0の範囲にあるサンプルのみを使用した。1 µgの全RNAを逆転写し、各20 µLの定量PCR(qPCR)反応液に、10 µLの2× SYBR Green master mix、10 µMのフォワードおよびリバースプライマーを各0.4 µL、2 µLのcDNA、および7.2 µLのヌクレアーゼフリー水を添加した。
定量PCRは、95°Cで30秒間行い、続いて95°Cで10秒間、60°Cで30秒間のサイクルを40回繰り返した。その後、65°Cから95°Cまで融解曲線分析を行った。プライマー配列は以下の通りである:Prkaa1 正方向、5′-ACCAGAAGCGGTGCCGGAAAGCTGG-3′;Prkaa1 逆方向、5′-TGTAGTCGGTTTATGCAGCAACGAG-3′;Gapdh 正方向、5′-CGACTTCAACAGCAACTCCCACTCTTCC-3′;およびGapdh 逆方向、5′-TGGGTGGTCCAGGGTTTCTTACTCCTT-3′。
各サンプルはテクニカルトリプリケートで解析し、テンプレートなしコントロール(no-template control)を含めた。単一の融解ピークが観察され、かつテンプレートなしコントロールで増幅が検出されなかったプライマーペアのみを採用した。相対的なPrkaa1発現量は、Gapdhをリファレンス遺伝子として2−ΔΔCt法を用いて算出し、si-NC群の発現量を1として標準化した。
脂質蓄積、ATPレベル、およびコレステロール流出の測定
Oil Red O染色のために、RAW264.7細胞を24ウェルプレートの1ウェルあたり500 µLの培地を用い、5 × 10⁴ cells/wellで播種した。処理後、細胞を500 µLのリン酸緩衝生理食塩水(PBS)で2回洗浄し、500 µLの10%中性緩衝ホルマリンで20分間固定した。その後、PBSで2回洗浄し、500 µLの60%イソプロパノールで1回すすぎ、調製したばかりのOil Red O作業溶液500 µLを用いて室温で15分間染色した。染色後の細胞は、背景が透明になるまで蒸留水で洗浄した。セクション8に記載の方法に従い、各ウェルから5つの顕微鏡視野を撮影し、固定された色しきい値を用いて、「陽性領域÷全視野領域×100」としてOil Red O陽性面積を算出した。対照細胞の染色が最小限であり、ox-LDL処理細胞に個別の細胞内脂質滴が認められ、かつ細胞外の背景が透明である場合にのみ、染色の結果を採択した。びまん性の沈殿物やムラのある染色、あるいは広範囲な細胞剥離が見られたサンプルは除外し、染色手順を繰り返した。
ATP測定のため、細胞を6ウェルプレートの各ウェルに、2 mLの培地を用いて 5 × 10⁵ cells/wellの密度で播種した。処理後、細胞を氷冷した1 mLのPBSで2回洗浄し、200 µLのATPアッセイ用溶解バッファーで溶解させ、4°Cで12,000 × g、5分間遠心分離した。上清 10 µLを100 µLのATP検出試薬と混合し、化学発光を測定した。ATP濃度は標準曲線から算出した。各溶解液をデュプリケートで測定し、3つの独立した実験において、それぞれ3つの反復ウェルを解析した。
コレステロール流出分析のため、細胞を5に播種した。 × 104 1ウェルあたりの細胞数 500 µL 24ウェルプレート中の培地。処理後、細胞に〜をロードした。 1 µg/mL NBD-コレステロールで24時間処理し、3回洗浄した。 500 µL PBSで洗浄し、~内で4時間インキュベートした。 500 µL いずれかを含む無血清培地の 10 µg/mL アポリポタンパク質A-Iまたは 50 µg/mL 高密度リポタンパク質。培養上清を回収し、1,000で遠心分離した。 × g 5分間。細胞をPBSで2回洗浄し、以下の溶液で溶解した。 200 µL 溶出バッファーの。上清および溶解液の蛍光を、励起波長485 nm、蛍光波長535 nmで2回ずつ測定した。NBD-コレステロールを含まないウェルから得られた蛍光値を差し引き、コレステロール流出率を「上清の蛍光値 ÷(上清の蛍光値 + 溶解液の蛍光値)」として算出した。 × 各コレステロール受容体につき100個。
炎症性サイトカイン、ミトコンドリア膜電位、活性酸素種、およびアポトーシスの測定
酵素結合免疫吸着測定法(ELISA)では、RAW264.7細胞を6ウェルプレートの1ウェルあたり2 mLの培地を用いて5 × 10⁵ cellsで播種した。24時間の処理後、培養上清を回収し、4°Cで1,000 × gで10分間遠心分離した後、直ちに分析するか、分注して分析まで−80°Cで保存した。凍結融解の繰り返しは避けた。マウスTNF-α、IL-6、およびIL-1βの濃度は、サンドイッチELISAキットを用いて測定した。すべての試薬は使用前に室温に戻した。標準液、ブランク、およびサンプルを1ウェルあたり100 µLずつ2連(duplicate)でロードした。各抗体インキュベーション後、ウェルを300 µLの洗浄バッファーで5回洗浄した。テトラメチルベンジジン基質を用いて呈色させ、製造元の指示に従って反応を停止させ、450 nmで吸光度を測定した。サイトカイン濃度は4パラメータロジスティック標準曲線から算出し、pg/mLとして表記した。変動係数(CV)が15%を超える2連測定値は再測定し、測定範囲を超えたサンプルは希釈して再分析した。
ミトコンドリア膜電位の解析のため、細胞を24ウェルプレートの各ウェルに、500 µLの培養培地を用いて5 × 10⁴ cells/wellの密度で播種した。処理後、細胞を2回洗浄し、500 µLのJC-1作動液とともに37°Cの暗所内で20分間インキュベートした。その後、細胞を染色緩衝液で2回洗浄し、同一の顕微鏡視野において、励起/蛍光波長525/590 nmで赤色凝集体の蛍光を、490/530 nmで緑色モノマーの蛍光をそれぞれ取得した。次いで、背景減算後の緑色対赤色蛍光比を算出した。
細胞内活性酸素種(ROS)分析のため、細胞を24ウェルプレートに1ウェルあたり5 × 10⁴ cellsで播種した。処理後、細胞を無血清培地で2回洗浄し、200 µLの培養培地で希釈した10 µLの2′,7′-dichlorodihydrofluorescein diacetateと共に、37°Cの暗所で2時間インキュベートした。インキュベーション中、プレートを5分ごとに緩やかに攪拌した。その後、細胞を3回洗浄し、励起波長488 nm、蛍光波長525 nmで蛍光強度を測定した。
アポトーシス解析のため、細胞を24ウェルプレートに1ウェルあたり5 × 10⁴個で播種した。処理後、細胞を2回洗浄し、4% パラホルムアルデヒドで20分間固定し、3回洗浄した後、0.1% Triton X-100含有PBSで10分間透過処理した。TUNEL(terminal deoxynucleotidyl transferase dUTP nick-end labeling)反応液を計250 µL加え、加湿した暗室内にて37°Cで60分間インキュベートした。3回洗浄後、核を4′,6-diamidino-2-phenylindole (DAPI) で5分間対比染色した。各実験において、terminal deoxynucleotidyl transferaseを欠いたネガティブコントロールを設けた。
ミトコンドリア膜電位が維持されていることは、主に点状の赤いJC-1蛍光によって示され、一方で膜脱分極は拡散した緑色蛍光の増加によって示された。ROS画像は、緑色蛍光が細胞内にあり、沈殿物や信号飽和がない場合のみ採用された。アポトーシス染色は、赤色蛍光が主に核に認められ、かつ酵素除去コントロールにおいてバックグラウンド信号が最小限である場合のみ採用された。
画像取得および定量的解析
明視野および蛍光画像は、デジタルカメラと20×対物レンズを備えた倒立蛍光顕微鏡を用いて取得した。各ウェルから、中央の1視野と周辺の4視野を含む、重複しない5つの視野を収集した。処理条件が判明する前に、傷、ウェルの端、剥離した細胞シート、または大きなデブリを含む領域を除外した。自動露光およびゲイン設定は無効にした。照明強度、露光時間、ゲイン、対物レンズ、および画像サイズは、最強の蛍光信号が飽和しないように、代表的なControlウェルおよびox-LDLウェルを用いて設定した。各独立した実験において、すべての処理群で同一の画像取得設定を維持した。赤色および緑色の蛍光チャンネルのペアは、顕微鏡ステージを移動させずに取得した。未調整の画像は、調査者が処理割り当てを盲検化した状態で、ImageJ画像解析ソフトウェアを用いて解析した。細胞のない領域からの背景信号を減算し、代表的なControlおよびox-LDL画像を用いて画像しきい値を設定した。各実験を通じて、同一のしきい値を適用した。図の提示に際しては、画像全体に対する一律の調整のみを行った。JC-1の結果は、緑色対赤色の蛍光比として算出した。活性酸素種およびアポトーシス信号は、解析領域で正規化した背景減算後の平均蛍光強度として算出し、相対解析のためにControl群の平均値を1に正規化した。5つの顕微鏡視野を平均して各ウェルの値を1つ算出し、3つのウェルの値を平均して各独立した実験の値を1つ算出した。
ウェスタンブロット分析
RAW264.7細胞を6ウェルプレートの各ウェルに2 mLの培地を用いて5 × 10⁵ cells/wellで播種し、各ウェルから1つのタンパク質ライセートを調製した。全細胞タンパク質の抽出には、細胞を氷冷PBSで2回洗浄し、プロテアーゼおよびホスファターゼ阻害剤を添加したradioimmunoprecipitation assay (RIPA) バッファーを用いて氷上で30分間溶解させた後、4°Cで12,000 × gで15分間遠心分離した。核タンパク質の抽出には、10 mM HEPES、10 mM KCl、1.5 mM MgCl2、0.5 mM ジチオスレイトール、およびプロテアーゼ/ホスファターゼ阻害剤を含むバッファーに細胞を懸濁し、氷上で15分間インキュベートした。非イオン性界面活性剤を最終濃度0.5%になるように添加し、短時間ボルテックスした後、4°Cで700 × gで5分間遠心分離した。得られた核ペレットを、20 mM HEPES、420 mM NaCl、1.5 mM MgCl2、0.2 mM EDTA、25% グリセロール、0.5 mM ジチオスレイトール、およびプロテアーゼ/ホスファターゼ阻害剤を含むバッファー中で、時々混合しながら氷上で30分間抽出した。その後、抽出液を4°Cで14,000 × gで15分間遠心分離した。
タンパク質濃度は、ビシンコニン酸法を用いて決定した。同量(25–30 µg)のタンパク質を各レーンにロードし、95°Cで5分間加熱した後、8%–12% SDS-PAGE(ドデシル硫酸ナトリウム-ポリアクリルアミドゲル電気泳動)で分離し、冷却条件下で100 Vで90分間、0.45 µm PVDF(ポリフッ化ビニリデン)膜に転写した。全タンパク質を含む膜は5%脱脂分乳でブロッキングし、リン酸化タンパク質を含む膜は、ポリスルベート20を含むTris緩衝生理食塩水で調製した5%ウシ血清アルブミンを用いて1時間ブロッキングした。その後、AMPK、リン酸化AMPK、BAX、BCL-2、caspase-3、ABCA1、p65、リン酸化p65、LXRα、IκB-α、リン酸化IκB-α、およびヒストンH3に対する一次抗体を用い、4°Cで一晩インキュベーションした。希釈倍率は、ヒストンH3を1:2,000とした以外はすべて1:1,000とした。GAPDHおよびβ-actin抗体は1:5,000の希釈倍率で使用した。一次抗体によるインキュベーション後、膜を10分間ずつ3回洗浄し、1:5,000に希釈したHRP(西洋ホースラジッシュペルオキシダーゼ)標識ヤギ抗ウサギまたはヤギ抗マウス二次抗体で1時間インキュベーションした。さらに洗浄後、化学発光検出試薬を用いてタンパク質バンドを検出した。すべての標的タンパク質においてバンドが飽和しない最短の露光時間を設定し、同一膜上のすべての群に対して同一の露光および画像取得設定を維持した。
局所的なバックグラウンド除去の後、ImageJ画像解析ソフトウェアを用いてタンパク質バンドを定量した。Total AMPK、ABCA1、BAX、BCL-2、caspase-3、IκB-α、およびphosphorylated IκB-αは、GAPDHまたはβ-actinで標準化した。Phosphorylated AMPKとtotal AMPK、およびphosphorylated p65とtotal p65の比率を算出した。核内LXRα、p65、およびphosphorylated p65のレベルはhistone H3で標準化し、各独立した実験におけるControlまたはsi-NC群の平均値を1として標準化した。予想される分子量に明確なバンドが見られ、バックグラウンドが低く、信号が飽和しておらず、ローディングコントロールが同等であるブロットのみを解析に含めた。レーンの歪み、不完全なタンパク質転写、過剰なバックグラウンド、または信号の飽和が見られるメンブレンは、再処理または除外した。個別に調製したタンパク質ライセートを用いて、3回の独立した実験を行った。
細胞熱シフトアッセイ
RAW264.7細胞を100 mm培養ディッシュに3 × 10⁶ cells、10 mLの培地で播種し、一晩インキュベートした。細胞を回収し、氷冷PBSで2回洗浄した後、0.4% NP-40およびプロテアーゼ/ホスファターゼ阻害剤を含むPBS中で氷上30分間溶解し、4°Cで20,000 × gで20分間遠心分離した。清澄化したライセートのタンパク質濃度を2 mg/mLに調整した。等量の清澄ライセートを、20 µM PFまたは0.1% DMSOと共に室温で1時間インキュベートした。各サンプルを50 µLずつ分注し、37°C、41°C、45°C、49°C、53°C、57°C、61°C、65°C、69°C、または73°Cで3分間加熱した。サンプルを直ちに4°Cで3分間冷却し、4°Cで20,000 × gで20分間遠心分離した。可溶性上清を等量ずつウェスタンブロッティングにより分析し、AMPKおよびリン酸化AMPKを検出した。各温度で得られたシグナルを、100%と定義した対応する37°Cのシグナルで正規化した。可溶性タンパク質の存在量を温度の関数としてプロットし、独立して培養した細胞を用いて全アッセイを3回繰り返した。37°Cのリファレンスバンドが検出され、温度上昇に伴い可溶性AMPKの漸次的な消失が認められ、かつ最高温度において深刻なレーンの歪みや可溶性タンパク質の異常な増加が見られなかった実験のみを解析に含めた。
フローサイトメトリー解析
RAW264.7細胞を、6ウェルプレートの各ウェルに2 mLの培地を用いて5 × 10⁵ cells/wellの密度で播種した。処理後、細胞を氷冷PBSで2回洗浄し、2%胎児牛血清および2 mM EDTAを含むPBSを用いて、セルスクレイパーで穏やかに回収した。細胞懸濁液を4°Cで400 × g、5分間遠心分離し、PBSで2回洗浄した後、1サンプルあたり約1 × 10⁶ cellsの濃度に調整した。細胞を固定可能なアミン反応性生存染料で、室温・暗所にて20分間染色した。洗浄後、抗マウスCD16/32抗体を用いてFc受容体を4°Cで15分間ブロッキングした。CD45、CD11b、F4/80、CD86、およびCD206に対する蛍光標識抗体を、1 × 106 cellsあたり各抗体5 µLずつ添加し、4°C・暗所にて30分間インキュベートした。
抗体染色の後、細胞を2回洗浄し、300 µLの染色バッファーに再懸濁して、フローサイトメトリーで解析した。各サンプルについて、合計で少なくとも50,000イベントを、また可能な限り、生存しているCD45⁺CD11b⁺F4/80⁺イベントを少なくとも20,000イベント取得した。未染色コントロール、単染色コンペンセーションコントロール、およびCD86とCD206のfluorescence-minus-oneコントロールを含めた。各実験内のすべての処理群に同じコンペンセーションマトリックスを適用した。前方散乱光(FSC)および側方散乱光(SSC)の特性に基づいてデブリを除去し、FSC area対FSC heightを用いてダブレットを除去した。生存染料陰性細胞を特定し、CD45⁺細胞をゲートし、マクロファージをCD11b⁺F4/80⁺細胞として定義した。対応するfluorescence-minus-oneコントロールから設定した閾値を用いて、マクロファージゲート内のCD86⁺およびCD206⁺細胞を定量した。すべてのサンプルに同じゲーティング階層を適用した。3つの繰り返しウェルのそれぞれから染色細胞懸濁液を1つずつ調製し、3つのウェルから得られたパーセンテージを平均して、1回の独立した実験につき1つの値を算出した。この実験を、独立して培養した細胞を用いて3回繰り返した。
安全性と廃棄物処理
すべての細胞培養手順、ox-LDLの取り扱い、および細胞由来物質の処理は、バイオセーフティレベル2の実践に従い、クラスII生物安全キャビネット内で行われました。すべての手順において、白衣、手袋、および眼の保護具を着用しました。作業表面および器具は、使用後に除染しました。ホルムアルデヒドおよびパラホルムアルデヒドは、その毒性と潜在的な発がん性のため、適切な予防措置を講じて取り扱いました。固定液、Oil Red O溶液、DMSO含有溶液、および蛍光染色溶液は、適切な個人用保護具と十分な換気を使用して取り扱いました。固定液、染色溶液、DMSO含有溶液、およびox-LDL含有培養液は個別に回収し、機関の規定に従って有害化学廃棄物として廃棄しました。細胞を含む培養液、汚染された消耗品、およびフローサイトメトリー用サンプルは、生物学的廃棄物として処理しました。液状の生物学的廃棄物は、調製直後の10%次亜塩素酸ナトリウムで30分以上消毒し、固体の生物学的廃棄物は、機関のバイオセーフティ手順に従い、廃棄前にオートクレーブ処理を行いました。
統計解析
すべての統計解析は、GraphPad Prism統計ソフトウェア(バージョン10.1.2)を用いて行いました。データは平均値 ± 標準偏差で示しています。nの値は、テクニカルリプリケートのウェル数、機器による測定回数、または顕微鏡の視野数ではなく、独立した実験回数を表しています。前節に記載した通り、各独立した実験から得られた階層的に平均化した値を、すべての統計解析に使用しました。2群間の比較には、非ペアの2方向Student's t-testを用いました。3群以上の比較には、一元配置分散分析(one-way ANOVA)を行い、次いでTukeyの多重比較検定を行いました。すべての統計検定は両側検定とし、p値 <0.05を統計的に有意とみなしました。
結果
HQTの活性化合物およびその標的
TCM Systems Pharmacologyデータベースから得られたデータのスクリーニングと統合により、HQTから計137個の候補生物活性化合物が同定されました。重複エントリーを除去した後、これらの化合物に関連する391個の固有の推定ターゲットが保持されました。その後、図1に示すように、Cytoscapeバージョン3.7.2を用いてHQT–化合物–ターゲット相互作用ネットワークが構築されました。
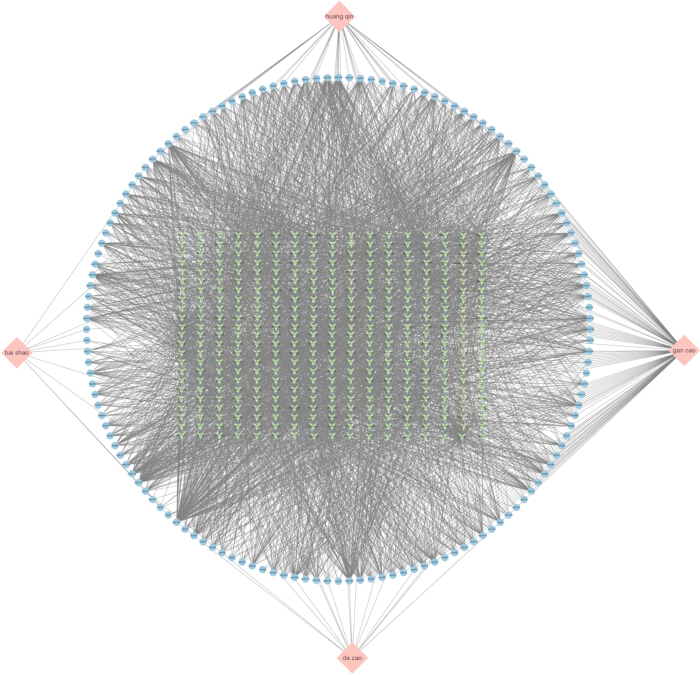
図1黄芩湯の構成成分と推定ターゲットの予測相互作用ネットワーク。 黄芩湯(HQT)の4つの生薬成分、候補となる生理活性成分、および推定分子標的の間の予測相互作用を示すネットワーク。ピンク色の菱形ノードは4つの生薬成分を、青色の円形ノードは候補化合物を、緑色のノードは予測標的を表す。エッジは、予測された生薬–化合物間または化合物–標的間の関連性を示す。 この図の拡大版を表示するには、ここをクリックしてください。
ASにおけるHQT介入に関連する標的の同定
GSE100927データセットの遺伝子発現データは、Gene Expression Omnibusデータベースから取得した。差分的発現解析により、対照群の動脈サンプルと比較して、動脈硬化動脈サンプルにおいて1,513個の有意に発現上昇した遺伝子と922個の有意に発現低下した遺伝子が同定された。対応するボルケーノプロットおよびヒートマップをそれぞれ図2Aおよび図2Bに示す。続いて、GeneCards、Online Mendelian Inheritance in Man、およびComparative Toxicogenomicsの各データベースからAS関連ターゲットを抽出した。関連性スコアの閾値を≥1.163としたところ、GeneCardsから600個の潜在的ターゲットが得られ、Online Mendelian Inheritance in ManおよびComparative Toxicogenomicsの各データベースからはそれぞれ188個および64個のターゲットが抽出された(図2Cに要約)。データベース由来のターゲットと差分的発現遺伝子を統合した結果、少なくとも2つのデータソースによって支持される29個のAS関連ターゲットが同定された。これらのターゲットをHQTの予測ターゲットと比較したところ、12個の重複するターゲットが得られ、これらがHQTがASに効果を及ぼす際の候補ターゲットであると考えられた(図2D)。
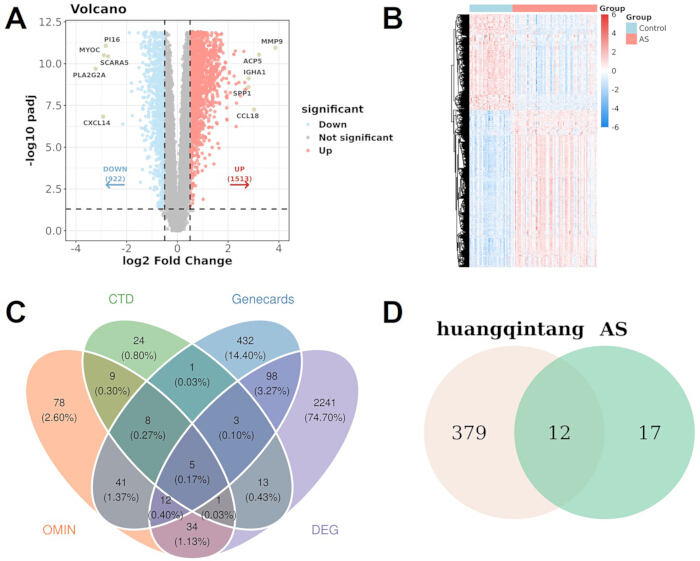
図2動脈硬化関連遺伝子の同定および、予測された黄芩湯標的との重複について。 (AGSE100927データセットにおける、アテローム動脈硬化(AS)群とコントロール動脈サンプル間の変動発現遺伝子(DEG)を示すボルケーノプロット。赤色の点は発現が上昇した遺伝子を、青色の点は発現が低下した遺伝子を表し、灰色の点は有意な変動が見られなかった遺伝子を表している。B) コントロール群およびAS検体における発現変動遺伝子(DEG)の発現パターンを示すヒートマップ。 (C) Comparative Toxicogenomics Database、GeneCards、Online Mendelian Inheritance in Man、およびGSE100927のDEG解析から得られた、AS関連遺伝子の重複を示すベン図。 (D) パネルCにおいて、少なくとも2つのソースから保持されたAS関連ターゲットと、予測されたHQTターゲットとの重複を示すベン図。 こちらの図の拡大版を表示するには、ここをクリックしてください。
候補ターゲットのタンパク質間相互作用ネットワークおよび機能濃縮解析
12個の重複するターゲットの相互作用および生物学的妥当性を特徴づけるため、STRINGデータベースを用いてタンパク質-タンパク質相互作用(PPI)ネットワークを構築し、その後Cytoscapeで可視化および解析を行った。このネットワークには、NOS3、OLR1、ALOX5、SPP1、ESR1、IL10、TNF、VCAM1など、脂質代謝、血管炎症、およびASに密接に関連する複数のターゲットが含まれていた(図 3A)。ノードのサイズが大きく色が濃いほど、ネットワーク内でのトポロジー上の重要度が高いことを示しており、これらのタンパク質がASに対するHQTの潜在的なターゲットネットワークにおいて、比較的中心的な位置を占めている可能性が示唆された。これらのターゲットに関連する生物学的機能およびシグナリング経路をさらに詳細に検討するため、Gene Ontology (GO) および Kyoto Encyclopedia of Genes and Genomes (KEGG) のエンリッチメント解析を実施した。GO生物学的プロセス(BP)解析の結果、ターゲットは主にステロイド代謝プロセス、ステロイドホルモンおよび栄養レベルへの応答、ならびに脂質恒常性の調節に関連していることが示された(図 3B)。GO細胞成分(CC)解析では、膜ラフトおよび関連する膜マイクロドメインへの顕著な濃縮が認められ(図 3C)、一方でGO分子機能(MF)解析では、低密度リポタンパク質粒子受容体活性、リポタンパク質粒子受容体活性、プロテアーゼ結合、サイトカイン活性、核受容体活性、リガンド調節転写因子活性、カーゴ受容体活性、転写共役調節因子結合、核受容体結合、およびインテグリン結合における濃縮が明らかになった(図 3D)。さらにKEGGパスウェイ解析により、Lipid and Atherosclerosisパスウェイ、糖尿病合併症における終末糖化産物-終末糖化産物受容体(AGE–RAGE)シグナリングパスウェイ、およびAMPKシグナリングパスウェイを含む、脂質代謝、AS、および代謝調節に関連するパスウェイにおける有意な濃縮が実証された(図 3E)。総合的に、PPIネットワークおよびエンリッチメント解析は、候補ターゲットが脂質恒常性、炎症シグナリング、およびエネルギー代謝の調節に関与している可能性を示している。特に、AMPKシグナリングパスウェイの濃縮は、その後のin vitroにおけるPFのAMPK関連効果の検討に対する根拠となった。
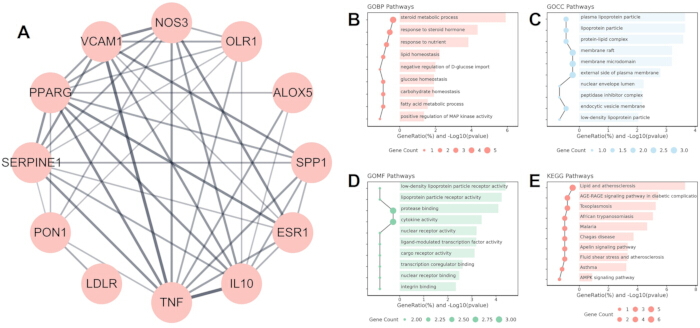
図 3. 黄芩湯と動脈硬化の共通標的におけるタンパク質間相互作用ネットワークおよび機能濃縮分析。(A>) 黄芩湯(HQT)と動脈硬化(AS)の共通標的におけるタンパク質間相互作用ネットワーク。ノードはタンパク質を、エッジは予測または記録されたタンパク質間相互作用を表す。(B>) Gene Ontologyの生物学的プロセス濃縮分析。(C>) Gene Ontologyの細胞成分濃縮分析。(D>) Gene Ontologyの分子機能濃縮分析。(E>) Kyoto Encyclopedia of Genes and Genomes(KEGG)パスウェイ濃縮分析。点の大きさは濃縮された遺伝子数を表し、水平バーは軸に示される通り、対応する濃縮の有意性と遺伝子比率を表す。こちらのリンクから、この図の拡大版を表示できます。
PFおよびHQTはAMPKを活性化し、ox-LDL誘発性のマクロファージ機能不全に対して保護効果を発揮する
以降の実験に適した濃度を決定するため、まずPFおよびHQTがRAW264.7細胞の生存率に及ぼす影響を評価した。1から40 µMの範囲の濃度でPF処理を行ったが、未処理のコントロール群と比較して細胞生存率に顕著な影響は見られなかった(Figure 4A)。同様に、12.5から200 µg/mLの範囲の濃度のHQTにおいても、細胞生存率の明らかな低下は誘導されなかった(Figure 4B)。これらの結果は、テストした濃度のPFおよびHQTが、一般的にRAW264.7マクロファージに良好に耐容されることを示した。続いて、AMPK活性化に対するPFおよびHQTの影響を評価するためにウェスタンブロット分析を行った。全AMPKの発現は異なる処理群間で比較的安定していたが、PFは濃度依存的にp-AMPK/AMPK比を上昇させた。HQT処理もまた、テストした濃度においてAMPKのリン酸化を増強した(Figure 4C)。細胞生存率の維持と観察されたAMPKの活性化に基づき、以降の比較実験には20 µM PFおよび100 µg/mL HQTを選択した。オイルレッドO染色により、ox-LDLへの曝露がRAW264.7細胞内の脂質蓄積を著しく増加させることが示された。PFまたはHQTのいずれかによる処理は、ox-LDL群と比較してオイルレッドO陽性面積を有意に減少させた(Figure 4D)。同時に、ox-LDL曝露はApoA-I介在性およびHDL介在性の両方のコレステロール流出を阻害した。PF処理はこれら両方の形態のコレステロール流出を有意に回復させ、HQTも同様に細胞からのコレステロール排出を改善させた(Figure 4E,F)。また、ox-LDL曝露は、前炎症性サイトカインであるTNF-α、IL-6、およびIL-1βの分泌を著しく増加させた。PF処理は、培養上清中のこれら3つのサイトカインすべての濃度を有意に減少させた。HQT処理も同様に、ox-LDL誘発性のサイトカイン分泌を減弱させた(Figure 4G)。総合すると、これらの結果は、PFがAMPK活性化、脂質蓄積の減少、コレステロール流出の増強、および炎症反応の抑制を含む、HQT全製剤で観察されたいくつかの保護効果を再現することを示している。これらの知見は、以降のメカニズム解析に向けたHQTの生物活性成分としてPFを選択することを支持するものである。
PFがAMPKの熱安定性に影響を与えるかを確認するため、細胞熱シフトアッセイ(CETSA)をさらに実施した。インキュベーション温度の上昇に伴い、 vehicle投与群およびPF投与群の両方において、検出可能なAMPKおよびリン酸化AMPKのレベルが徐々に低下した。しかし、いくつかの温度において、PF投与は対応するvehicle投与群と比較してAMPKおよびp-AMPKの保持量を増加させた(Figure 4H,I)。これらの結果は、PFがAMPKの熱安定性を向上させることを示唆しており、PFとAMPKの間の潜在的なターゲット結合と一致する。これらの結果に基づき、その後の実験で、AMPKの薬理学的または遺伝学的な阻害が、ox-LDL処理したマクロファージにおけるPFの保護効果を減弱させるかどうかを検討した。
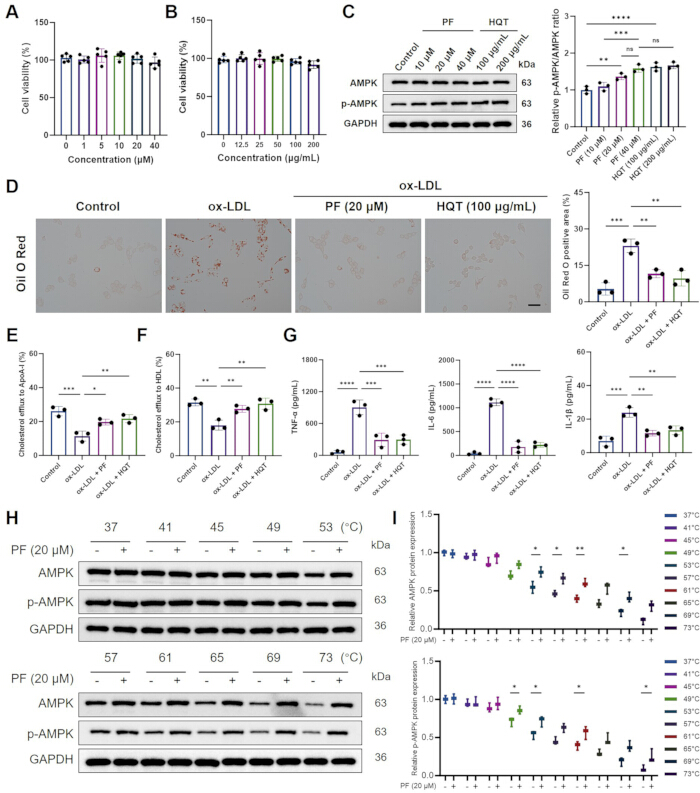
図4. ペオニフロリン(Paeoniflorin)および黄芩湯(Huangqin Tang)はAMPKを活性化し、酸化低密度リポタンパク質(ox-LDL)誘発性のマクロファージ機能不全を緩和する。(A) 指定濃度のペオニフロリン(PF; n = 5)処理後のRAW264.7細胞の生存率。(B) 指定濃度のHQT抽出物(n = 5)処理後の細胞生存率。(C) PFまたはHQT処理後のAMPKおよびリン酸化AMPKの代表的なウェスタンブロット像、およびp-AMPK/AMPK比の定量結果(n = 3)。GAPDHをローディングコントロールとして使用した。(D) 代表的なオイルレッドO染色像および細胞内脂質蓄積の定量結果(n = 3)。スケールバー = 100 µm。(E) アポリポタンパク質A-I介在性のコレステロール流出(n = 3)。(F) 高密度リポタンパク質介在性のコレステロール流出(n = 3)。(G) ELISAにより測定した培養上清中のTNF-α、IL-6、およびIL-1β濃度(n = 3)。(H) PFの不在下または存在下で指定温度でインキュベートした後のAMPKおよびp-AMPKの代表的な細胞熱シフトアッセイ(CETSA)ブロット像。GAPDHをローディングコントロールとして使用した。(I) AMPKおよびp-AMPKの熱安定性の定量結果(n = 3)。データは平均値 ± SDで示す。統計的有意性は *P < 0.05, **P < 0.01, ***P < 0.001, および ****P < 0.0001として示す。水平バーはテストしたペア比較を特定している。パネルCにおいて、示された比較は、Control対PF (20 µM)、PF (10 µM)対PF (40 µM)、PF (20 µM)対PF (40 µM)、Control対HQT (100 µg/mL)、およびPF (40 µM)対HQT (200 µg/mLである。パネルD–Gにおいて、示された比較は、Control対ox-LDL、ox-LDL対ox-LDL + PF、およびox-LDL対ox-LDL + HQTである。パネルIにおいて、水平バーで示される各温度で、溶媒対照(vehicle)処理サンプルとPF処理サンプルを比較した。こちらのリンクをクリックして、この図の拡大版を表示してください。
PFはox-LDL処理したRAW264.7細胞において、脂質の蓄積と炎症性サイトカインの放出を抑制し、細胞内ATPを回復させる
Oil Red O染色は、ox-LDL処理がRAW264.7細胞において著しい細胞内脂質蓄積とフォーム細胞形成を誘導することを示しており、これは対照群と比較して多数の強く染色された脂質滴によって裏付けられている(Figure 5A,B)。PF処理は、ox-LDL群と比較して脂質滴の数と染色面積の両方を著しく減少させた。この脂質蓄積の改善と一致して、PFはox-LDLによって誘導される炎症反応も減弱させた。培養上清中のTNF-α、IL-6、およびIL-1βのレベルは、ox-LDL曝露後に有意に上昇したが、PF処理によって著しく減少した(Figure 5C–E)。さらに、ox-LDLは細胞内ATPレベルを有意に低下させたが、PFはATP含有量を部分的に回復させ、細胞のエネルギー状態が改善していることが示された(Figure 5F)。また、ox-LDLはApoA-I介在性およびHDL介在性のコレステロール流出を損なわせたが、PFはox-LDL群と比較してこれら両方の形態のコレステロール流出を有意に増強させた(Figure 5G,H)。AMPK阻害剤であるdorsomorphinとの併用処理は、PFのこれらの効果をそれぞれ部分的に減弱させ、PF単独処理と比較して、脂質蓄積と前炎症性サイトカインレベルの増加、ならびにATP含有量とコレステロール流出の減少をもたらした(Figure 5B–H)。総合すると、これらの知見は、PFがRAW264.7細胞におけるox-LDL誘導性の脂質代謝、炎症反応、および細胞エネルギー恒常性の乱れを緩和し、AMPKシグナル伝達がこれらの協調的な保護効果に寄与している可能性を示唆している。
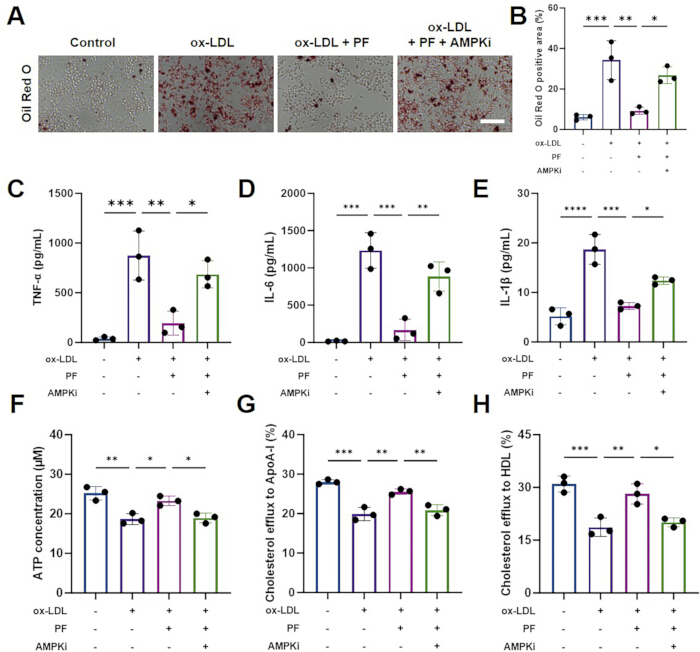
図 5. AMPK阻害は、パエオニフロリンによる炎症および脂質蓄積の抑制、ならびにATP含量およびコレステロール流出の改善を減弱させる。(A) RAW264.7細胞の代表的なオイルレッドO染色像。スケールバー = 100 µm。(B) オイルレッドO陽性領域の定量化(n = 3)。(C–E) ELISAにより測定した培養上清中のTNF-α、IL-6、およびIL-1β濃度(n = 3)。(F) 細胞内ATP濃度(n = 3)。(G) アポリポタンパク質A-I介在性コレステロール流出(n = 3)。(H) 高比重リポタンパク質介在性コレステロール流出(n = 3)。AMPKiはAMPK阻害剤であるドルソモルフィンを示す。データは3回の独立した実験の平均値 ± SDとして提示されている。統計的有意性は、*P < 0.05、**P < 0.01、***P < 0.001、****P < 0.0001で示されている。水平バーは、テストされたペア比較を示す。パネルB~Hにおいて、示された比較はControl対ox-LDL、ox-LDL対ox-LDL + PF、およびox-LDL + PF対ox-LDL + PF + AMPKiである。こちらのリンクから、この図の拡大版を表示してください。
PFはox-LDLにより誘発されるミトコンドリア機能不全、酸化ストレス、およびアポトーシスを減弱させる
TUNEL染色の結果、ox-LDLによってRAW264.7細胞のTUNEL蛍光が著しく増加し、アポトーシスの亢進が示されたが、PF処理はこのox-LDL誘発性のTUNEL蛍光を有意に減少させた。AMPK阻害剤であるdorsomorphinとの併用処理により、PFの抗アポトーシス効果は部分的に消失した(Figure 6A,B)。 同様に、DCFH-DA蛍光の増強が示す通り、ox-LDLは細胞内ROSレベルを著しく上昇させたが、PFはROSの蓄積を有意に抑制した。この抗酸化効果はdorsomorphinによって部分的に消失した(Figure 6C,D)。 さらにJC-1染色により、ox-LDL処理によって赤色のJC-1凝集体蛍光が減少し、緑色のJC-1モノマー蛍光が増加したため、緑色対赤色の蛍光比が有意に上昇し、ミトコンドリア膜電位の脱分極が示された。PF処理はこの緑色対赤色の蛍光比を著しく低下させたが、dorsomorphinとの併用処理によりこの効果は部分的に消失した (Figure 6E,F)。以上の結果から、PFはRAW264.7細胞におけるox-LDL誘発性のミトコンドリア膜脱分極、過剰なROS産生、およびアポトーシスを軽減し、その保護効果にはAMPKシグナル伝達が寄与している可能性が示唆された。
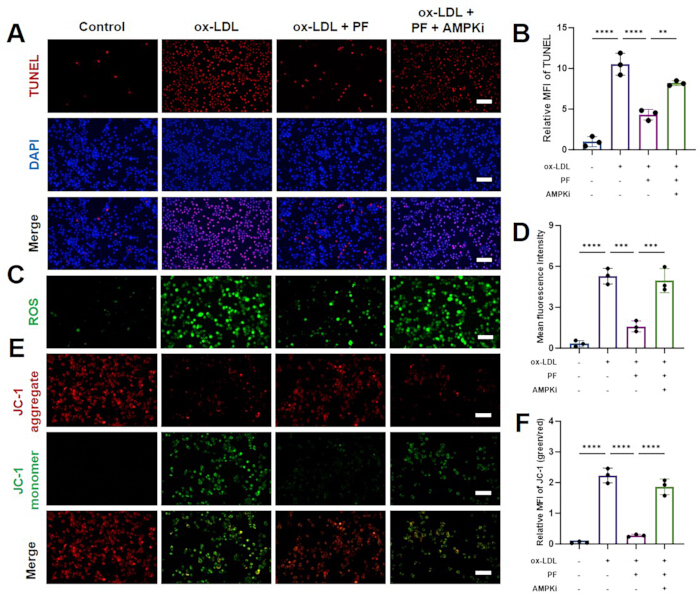
図 6AMPK阻害は、酸化低密度リポタンパク質が誘発するアポトーシス、酸化ストレス、およびミトコンドリア膜電位の喪失に対するペオニフロリンの効果を減弱させる。 (A) RAW264.7細胞におけるアポトーシス検出のためのTUNELアッセイ (スケールバー = 100 µm)および (B) 対応する定量解析 (n = 3)。 (C) RAW264.7細胞のROS染色(スケールバー = 100 μm)および (D) 定量結果 (n = 3)。(E) RAW264.7細胞のJC-1染色 (スケールバー = 100 μm) および (F) 対応する定量分析(n = 3)。 データは平均値として提示する ± 3回の独立した実験の標準偏差(SD)。統計的有意性は*で示す。P < 0.05, **P < 0.01, ***P < 0.001、および****P < 0.0001。水平バーは、検定したペアごとの比較を示している。パネルB、D、およびFにおいて、示された比較は、Control対ox-LDL、ox-LDL対ox-LDL + PF、およびox-LDL + PF対ox-LDL + PF + AMPKiである。 こちらの図の拡大版を表示するには、ここをクリックしてください。
AMPK阻害は、ABCA1およびアポトーシス関連タンパク質におけるPF随伴性変化を減弱させる
ウェスタンブロット解析の結果、全AMPKタンパク質の量は各処理群間で比較的安定していたのに対し、ox-LDLは対照群と比較してp-AMPK/AMPK比を有意に増加させ、ABCA1の発現を有意に減少させることが示された。PF処理は、ox-LDL群と比較してp-AMPK/AMPK比をさらに増加させ、ABCA1の発現を回復させた。AMPK阻害剤であるdorsomorphinの併用処理により、これらのPFに関連する変化が有意に減弱し、ox-LDL + PF群で観察されたものよりもp-AMPK/AMPK比が低下し、ABCA1の発現が減少した(Figure 7A,B)。アポトーシス関連タンパク質の解析では、ox-LDLは対照群と比較して、全caspase-3の発現を有意に増加させ、BCL-2/BAX比を有意に減少させることが示された。PF処理は、ox-LDL群と比較して全caspase-3の発現を有意に減少させ、BCL-2/BAX比を増加させた。Dorsomorphinの併用処理はこれらのPFに関連する変化を逆転させ、ox-LDL + PF群と比較して全caspase-3の発現が増加し、BCL-2/BAX比が減少した(Figure 7C,D)。これらの知見は、AMPKの阻害が、ox-LDL処理したRAW264.7細胞におけるABCA1発現およびアポトーシス関連タンパク質プロファイルに対するPFの効果を減弱させることを示している。
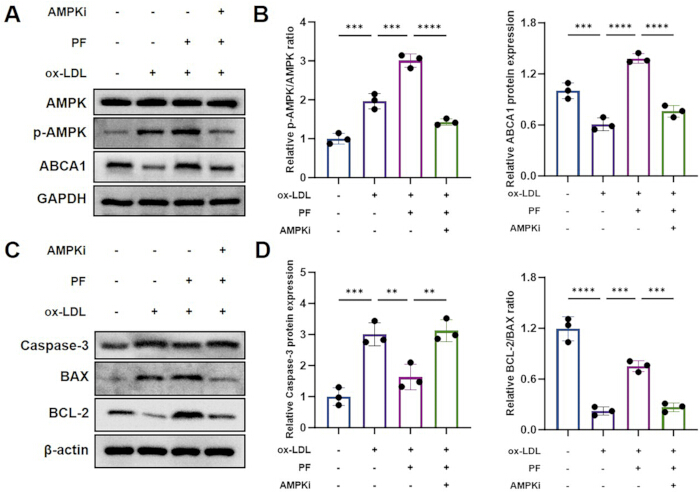
図7. AMPK阻害により、パエオニフロリンに伴うAMPKリン酸化、ABCA1発現およびアポトーシス関連タンパク質の変化が減弱する。(A) AMPK、p-AMPK、およびATP結合カセット輸送体A1 (ABCA1) の代表的なウェスタンブロット。GAPDHをローディングコントロールとして使用した。(B) p-AMPK/AMPK比およびABCA1タンパク質相対発現量の定量化 (n = 3)。(C) 合計caspase-3、BAX、およびBCL-2の代表的なウェスタンブロット。β-Actinをローディングコントロールとして使用した。(D) 合計caspase-3相対発現量およびBCL-2/BAX比の定量化 (n = 3)。AMPKiはAMPK阻害剤であるドルソモルフィンを示す。データは3回の独立した実験の平均値 ± SDで示されている。統計学的有意性は *P < 0.05、**P < 0.01、***P < 0.001、および ****P < 0.0001 として示される。水平バーはテストしたペア比較を示す。パネルBおよびDの両方の定量結果において、示された比較は、Control対ox-LDL、ox-LDL対ox-LDL + PF、およびox-LDL + PF対ox-LDL + PF + AMPKiである。こちらのリンクをクリックして、この図の拡大版を表示してください。
AMPKのサイレンシングは、ox-LDL処理したRAW264.7細胞において、PFに伴う核内LXRα量の増加およびNF-κBシグナルの抑制を減弱させる
PFの効果におけるAMPKの関与をさらに検討するため、siRNAを用いてAMPKの発現をサイレンシングした。si-AMPKを導入した細胞では、si-NC群と比較してAMPKのmRNAおよびタンパク質レベルの両方が有意に低下しており、効果的なノックダウンが確認された(Figure 8A,B)。ox-LDL処理細胞において、PFは核内LXRαの発現を増加させ、核内p-p65/p65比を低下させたが、AMPKのノックダウンによりこれらの効果は有意に減弱した(Figure 8C,D)。同様に、ox-LDLは細胞全体のp-p65/p65比を著しく増加させたが、これはPFによって抑制され、AMPKノックダウン後に部分的に回復した(Figure 8E)。また、PFはox-LDLによるIκB-α発現の減少およびp-IκB-α発現の増加を逆転させたが、これらの効果はsi-AMPKによって減弱した(Figure 8F)。以上の結果から、AMPKがPFによる核内LXRα量の増加およびNF-κBシグナリングの抑制に寄与していることが示唆された。
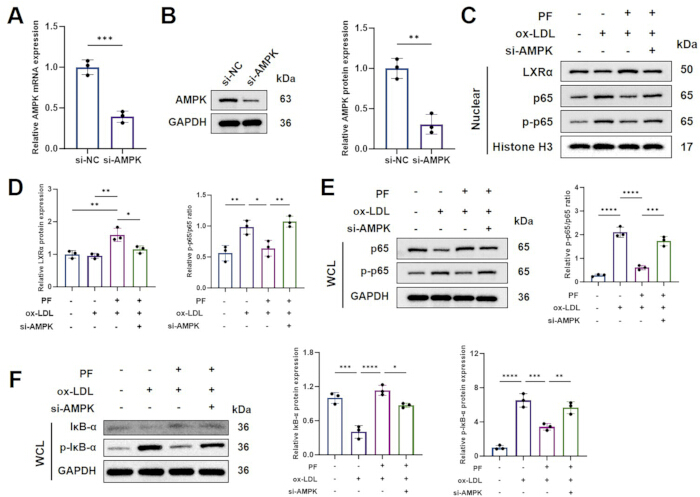
図8AMPKのサイレンシングにより、パエオニフロリンによる核内LXRの増加が減弱する。α NF-κBの存在量および抑制κBシグナリング (A) ネガティブコントロールsiRNAまたはAMPK標的siRNAのトランスフェクション後の相対的AMPK mRNA発現量(n = 3). (BsiRNAトランスフェクション後のAMPKタンパク質発現の代表的なウェスタンブロットおよび定量結果(n = 3)。GAPDHをローディングコントロールとして用いた。 (C) 核内LXRの代表的なウェスタンブロットα、p65、および p-p65。核のローディングコントロールとしてヒストンH3を使用した。(D核内LXRの相対定量α 発現および核内p-p65/p65比(n = 3). (E) 全細胞p65およびp-p65の代表的なウェスタンブロット、およびp-p65/p65比の定量(n = 3)。GAPDHをローディングコントロールとして使用した。(F) 全細胞溶解液の代表的なウェスタンブロットκB-α およびp-IκB-α および対応する定量分析(n = 3)。ローディングコントロールにはGAPDHを用いた。データは平均値として示した。 ± 3回の独立した実験の標準偏差(SD)。統計的有意性は*で示されている。P < 0.05, **P < 0.01, *** P < 0.001、および **** P < 0.0001。水平バーは、検定されたペアごとの比較を示している。パネルAおよびBでは、si-NCとsi-AMPKを比較した。核内LXRについてα パネルDにおける発現について、示された比較は、Control対ox-LDL + PF、ox-LDL対ox-LDL + PF、およびox-LDL + PF対ox-LDL + PF + si-AMPKであった。パネルDにおける核内p-p65/p65比、およびパネルEとFにおける定量解析について、示された比較は、Control対ox-LDL、ox-LDL対ox-LDL + PF、およびox-LDL + PF対ox-LDL + PF + si-AMPKであった。 この図を拡大して表示するには、ここをクリックしてください。
AMPKサイレンシングは、PFによるコレステロール流出およびマクロファージの表現型修飾を減衰させる
NF-κBの薬理学的阻害がPFに関連するものと同様の機能的変化をもたらすかどうかを判断するため、ABCA1の発現、コレステロール流出、脂質蓄積、およびマクロファージの表現型マーカーを評価した。PFはox-LDL処理細胞においてABCA1の発現を回復させ、ApoA-I介在性およびHDL介在性のコレステロール流出を増強させたが、AMPKのサイレンシングはこれらの効果を有意に減弱させた(Figure 9A–C)。同様に、PFは細胞内脂質蓄積を減少させたが、si-AMPKはこの効果を部分的に逆転させた(Figure 9D,E)。BAY 11-7082による処理は、ABCA1発現とコレステロール流出の増加、および細胞内脂質蓄積の減少を含む、PFによって誘導されたものと同様の変化をもたらした(Figure 9A–E)。フローサイトメトリー分析は、Figure 9Fに示すゲーティング戦略を用いて実施した。ox-LDLはCD86陽性マクロファージの割合を著しく増加させたが、PFはこの集団を減少させた。この効果はAMPKのサイレンシングによって減弱した(Figure 9G,H)。対照的に、PFはCD206陽性マクロファージの割合を増加させ、これはsi-AMPKによって部分的に逆転した(Figure 9I,J)。BAY 11-7082も同様に、CD86陽性マクロファージの割合を減少させ、CD206陽性マクロファージの割合を増加させた(Figure 9G–J)。これらの知見は、AMPKが、おそらくNF-κBシグナルの調節を通じて、コレステロール恒常性とマクロファージの表現型調節に対するPFの効果に寄与していることを示している。
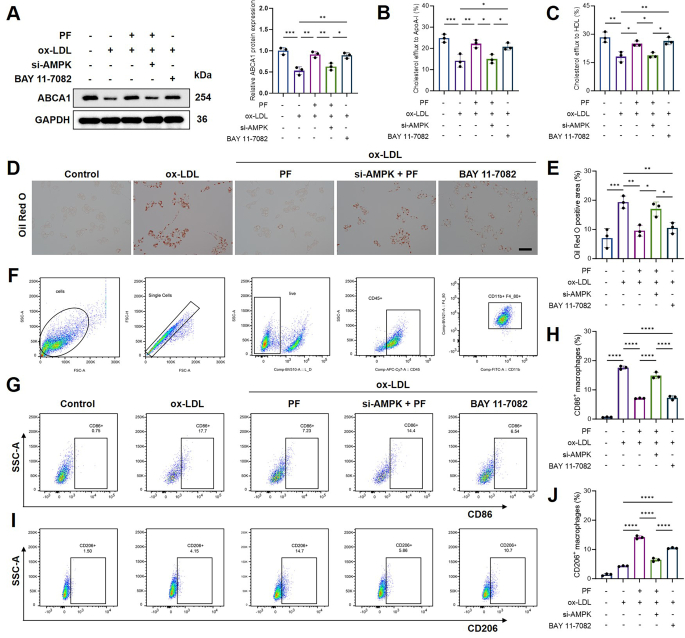
図 9. AMPKサイレンシングおよびNF-κB阻害による、パエオニフロリンに関連したコレステロール流出、脂質蓄積、およびマクロファージ表現型の調節。(A) ABCA1発現の代表的なウェスタンブロットおよび定量結果 (n = 3)。ローディングコントロールとしてGAPDHを使用した。 (B) アポリポタンパク質A-I介在性コレステロール流出 (n = 3)。 (C) 高密度リポタンパク質介在性コレステロール流出 (n = 3)。 (D) 代表的なオイルレッドO染色像。スケールバー = 100 µm。 (E) オイルレッドO陽性領域の定量結果 (n = 3)。 (F) 細胞、シングレット、生存CD45陽性細胞、およびCD11b陽性/F4/80陽性マクロファージを同定するために使用した連続的なフローサイトメトリーゲーティング戦略。 (G) CD86陽性マクロファージの代表的なフローサイトメトリープロット。 (H) CD86陽性マクロファージの定量結果 (n = 3)。 (I) CD206陽性マクロファージの代表的なフローサイトメトリープロット。 (J) CD206陽性マクロファージの定量結果 (n = 3)。NF-κB阻害剤としてBAY 11-7082を使用した。データは3回の独立した実験の平均値 ± SDとして示している。統計的有意性は *P < 0.05, **P < 0.01, ***P < 0.001, 以及 ****P < 0.0001 で示す。水平バーは、テストされたペアごとの比較を示す。パネルA~C、E、およびHにおいて、示された比較は、Control対ox-LDL、ox-LDL対ox-LDL + PF、ox-LDL + PF対ox-LDL + PF + si-AMPK、ox-LDL + PF + si-AMPK対ox-LDL + BAY 11-7082、およびox-LDL対ox-LDL + BAY 11-7082である。パネルJにおいて、示された比較は、ox-LDL対ox-LDL + PF、ox-LDL + PF対ox-LDL + PF + si-AMPK、ox-LDL + PF + si-AMPK対ox-LDL + BAY 11-7082、およびox-LDL対ox-LDL + BAY 11-7082である。こちらのリンクをクリックして、この図の拡大版を表示してください。
データの可用性:
本研究で解析した公開マイクロアレイデータセットは、国立生物工学情報センター(NCBI)のGene Expression Omnibus(GEO)より、アクセッション番号GSE100927で入手可能です。本研究で生成されたすべての生データおよび処理済みデータは、本論文の補足ファイルとして提供され、出版後は制限なく公開されます。補足データ1には、図4–9の根拠となる数値ソースデータおよび対応する統計解析結果が含まれています。補足データ2には、トリミング前のオリジナルのウェスタンブロットおよびCETSA画像が含まれています。補足データ3には、定量解析に使用したオリジナルのフル解像度顕微鏡画像が含まれています。補足データ4には、フローサイトメトリーの生FCSファイル、コントロールファイル、コンペンセーション情報、ゲーティング記録、およびFlowJoワークスペースが含まれています。補足データ5には、データの事前処理、発現変動解析、可視化、ターゲット統合、およびエンリッチメント解析を含む、ネットワーク薬理学およびトランスクリプトーム解析に使用した完全なRスクリプトが含まれています。
補足データ 1. 元数値データおよび統計解析。 元の数値データおよびそれに基づく統計解析を含むExcelワークブック 図4–9、図ごとに個別のワークシートに整理されています。このワークブックには、グラフ作成および統計比較に使用された定量的データが含まれています。こちらをクリックしてファイルをダウンロードしてください。
補足データ2. オリジナルの未クロップのウェスタンブロットおよびCETSA画像。 原稿に提示されたすべてのウェスタンブロットおよびCETSA実験のオリジナルの未クロップ画像を、画像作成および定量化に使用したソースデータを記録するために図とパネルごとに整理したPDFファイルです。こちらのリンクをクリックしてファイルをダウンロードしてください。
補足データ 3. オリジナルのフル解像度顕微鏡画像。 定性的提示および定量的解析に使用されたオリジナルのフル解像度顕微鏡画像を収録したPDF。論文中の図に対応する代表的な画像を含む。こちらのリンクからファイルをダウンロードしてください。
補足データ 4. 生のフローサイトメトリーデータ。 生のFCSファイル、コントロールファイル、コンペンセーション情報、ゲーティング記録、およびフローサイトメトリー解析に使用したFlowJoワークスペース。完全なデータセットは、Microsoft OneDriveから入手可能です:https://1drv.ms/f/c/8d1d81159583ae0f/IgA367Hi90R5CfjDR5uwoGARiUYsefUFv0_OKSUWT5jGY?e=caEpxo。また、バックアップとしてフローサイトメトリー解析のPDFサマリーも提供されています。こちらのファイルをクリックしてダウンロードしてください。
補完データ 5. ネットワーク薬理学およびトランスクリプトーム解析用Rスクリプト。 ネットワーク薬理学およびトランスクリプトーム解析に使用した完全な計算ワークフローを含む2つのRスクリプトファイル。これらのスクリプトには、パッケージのロードとインストール、データの前処理、差分的発現解析、ターゲットの統合、機能エンリッチメント解析、データの可視化、および報告された解析結果の生成が含まれています。こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
マクロファージの泡沫細胞形成は、修飾リポタンパク質の過剰な取り込みだけでなく、コレステロール輸出の障害や持続的な炎症活性化によっても促進されます。本研究では、AMPK関連シグナル伝達を、PFが脂質代謝、炎症反応、および細胞ストレスの同時変化に関連する潜在的なメカニズムとして特定することで、これらのプロセスを関連付けました。これらの変化のいくつかは、AMPKの阻害またはサイレンシングによって減弱しました。PFとHQTの広範に一致する効果は、PFがこの処方の生物学的に重要な構成成分であることをさらに示しています。とはいえ、HQTには相加的または相乗的に作用する可能性のある複数の活性化合物が含まれているため、これらの知見はPFを代表的な構成成分として支持するものであり、HQTの主活性物質として確定させるものではありません。
AMPKは、マクロファージの炎症性活性化を抑制できる代謝チェックポイントとして機能します。先行研究では、AMPKの活性化がIκBの分解を制限し、炎症性メディエーターの産生を減少させ、より低炎症性のマクロファージ表現型を促進することが示されています。また、AMPKの活性化は、PP2A/NF-κB/LOX-1経路の調節を通じてox-LDLの取り込みを抑制することも報告されています26,27。今回の薬理学的および遺伝学的知見は、コレステロール輸出および炎症性シグナリングに対するPFに関連するいくつかの効果にAMPKが必要であることを示すことで、これらの観察結果を拡張するものです。したがって、AMPKは単にPFに対する個別の応答を媒介するのではなく、マクロファージにおける代謝作用と免疫調節作用を統合している可能性があります。AMPK、LXRα、およびABCA1の関係は、観察されたコレステロール流出の改善に対する妥当な説明を与えます。LXRαはABCA1の中心的な転写調節因子であり、LXRα–ABCA1経路の活性化は、マクロファージからの過剰なコレステロールの除去を促進します28。ヒトマクロファージを用いた研究では、AMPKがLXRαおよびその下流のコレステロール輸送体を調節できることがさらに示されており、一方でLXR刺激によるコレステロール流出はABCA1に強く依存しています29,30。本研究において、AMPKのサイレンシングは、核内LXRα量、ABCA1発現、ならびにApoA-I介在性およびHDL介在性のコレステロール流出に対するPFの効果を減弱させました。これらの観察結果は、LXRα/ABCA1に関連する調節がAMPKの下流で起こるというモデルと一致しています。ただし、ABCA1を直接的にサイレンシングしたわけではないため、得られたデータはAMPK–LXRα–ABCA1の因果関係を支持してはいるものの、完全に立証したとは言えません。
これらの知見はまた、コレステロール恒常性と炎症性シグナル伝達の間の相互調節も示唆している。炎症はABCA1の発現とコレステロール流出を抑制し、それによってマクロファージ内での脂質保持を促進させ得る。逆に、NF-κBの阻害は、炎症性マクロファージにおけるABCA1の発現とコレステロール輸出を回復させることが示されている31。本研究においてPFとBAY 11-7082がもたらした同様の効果は、このようなクロストークを支持している。すなわち、NF-κBシグナリングの抑制に伴い、ABCA1発現の増加、コレステロール流出の亢進、および脂質蓄積の減少が認められた。AMPKのサイレンシングは、PFによる代謝的および炎症的な効果の両方を弱めており、これはAMPKがこれら2つの相互に関連するプロセスを独立して制御しているのではなく、協調的に調整している可能性を示唆している。先行研究では、PFがNF-κBシグナリングを阻害することにより、プロ炎症性マクロファージの活性化を抑制できることが実証されている。また、PFを含む治療により、ABCA1/ABCG1に関連するコレステロール輸出が強化され、泡沫細胞の形成が減少することも報告されている32,33。本研究は、これまでに記述されたこれらの脂質調節能および抗炎症特性をAMPKに結びつけることで、さらなるメカニズム的な背景を提供するものである。さらに、HQT調製物全体との比較により、PF単独を検討した研究と本研究との違いが明確になり、選択したマクロファージアッセイにおいてPFとHQTが部分的に重複する効果を及ぼしたことが示唆された。
AMPKに関連するメカニズムが、酸化ストレスおよびミトコンドリアの完全性に対するPFの効果に寄与している可能性があります。Ox-LDLによる脂質負荷はマクロファージに相当なエネルギー的および酸化的ストレスを与え、それがミトコンドリアの脱分極とアポトーシスを促進することがあります。したがって、PF投与後に観察されたATPレベル、ミトコンドリア膜電位、および抗酸化能の同時回復は、いくつかの無関係な効果ではなく、協調的な代謝保護と一致しています。以前のマクロファージ研究においても同様に、PFがROSの蓄積を減少させ、ミトコンドリア膜電位を維持し、ミトコンドリア品質管理の調節を通じて炎症表現型を変化させることが見出されています34。これらの知見は、AMPKの具体的な下流エフェクターはまだ特定されていませんが、ミトコンドリア機能の維持がPFの抗炎症および抗アポトーシス作用に寄与している可能性を示唆しています。CETSAの結果は、PFとAMPKを結びつけるさらなる証拠となります。CETSAは、リガンドに関連したタンパク質の熱安定性の変化を検出することにより、細胞内での薬物-標的結合を評価するために開発されました35。ライセートを用いたCETSAの結果は、細胞ライセートにおけるAMPKまたはAMPKを含むタンパク質複合体のPFに関連した安定化と矛盾しません。しかし、熱安定化だけでは、直接的なリガンド結合と、リン酸化の変化、タンパク質相互作用、あるいは細胞内環境に起因する間接的な安定化を区別することはできません。PFとAMPKの直接的な結合については、精製タンパク質を用いた手法やその他の生物物理学的アプローチによる確認が必要です。
PFはまた、CD86陽性細胞の割合を減少させ、CD206陽性細胞の割合を増加させたが、これらの変化はAMPKのサイレンシングによって減弱した。これらの知見は、PFがマクロファージの炎症性表現型を変化させることができるという以前の証拠32,34と一致している。それにもかかわらず、マクロファージの活性化は、固定された2つのM1およびM2状態としてではなく、多次元的なスペクトラムに沿って存在する36。したがって、CD86およびCD206は、完全なM1からM2への転換の決定的な証拠としてではなく、それぞれ炎症性および修復性プログラムに関連する表現型マーカーとして解釈されるべきである。マクロファージの表現型をより包括的に特徴づけるには、さらなる転写、分泌、および機能的マーカーが必要となるだろう。いくつかの限界を認める必要がある。第一に、本実験はRAW264.7細胞に限定されており、これらの知見を初代マクロファージやヒトマクロファージ、およびin vivoのASモデルで検証することが必要である。第二に、選択したPF濃度は非細胞毒性であり、AMPKのリン酸化を増加させたが、主要な機能的アウトカムに対する完全な濃度反応関係は確立されていない。第三に、ABCA1特異的な機能喪失およびレスキュー実験は行われておらず、提案されたAMPK–LXRα–ABCA1経路は、完全に確立された線形カスケードではなく、支持されたメカニズムモデルとみなされるべきである。第四に、PFとHQTは異なる濃度単位を用いて比較されており、HQT調製物のPF含有量およびフィトケミカルの一貫性は定量的に評価されていない。最後に、CETSAの結果は潜在的な細胞内標的への結合を示唆しているが、直接的な分子結合を独立して証明するものではない。
結論として、本知見は、PFがコレステロール輸出、炎症シグナル伝達、エネルギー代謝、およびミトコンドリア恒常性を調整することで、ox-LDL誘発性のマクロファージ機能不全を軽減することを示唆している。薬理学的阻害およびsiRNAによるAMPKサイレンシングは、PFによる複数の保護効果を減弱させ、それに伴い核内LXRα量、ABCA1発現、コレステロール流出、およびNF-κBシグナル伝達の変化が認められた。PFは、試験条件下でのHQT処理後に観察されたいくつかの効果と重複するマクロファージ保護効果を示した。HQTの全体的な活性に対するPFの寄与については、依然として解明されていない。
開示事項
利益相反:
著者らは、競合する利益がないことを宣言します。
謝辞
なし。
著者貢献:
Yunjie Zeng:アイデアの提案、方法論、調査、正式な分析、データ管理、可視化、執筆 – オリジナルドラフト
華英 王:方法論、調査、正式な分析、検証、データ管理、可視化、および執筆 – オリジナルドラフト
Dong Liu:方法論、調査、検証。
江 雲露:調査、データ管理、および形式的分析。
彭城 任:調査,形式的情報解析,および可視化.
Wenxin Song:リソース、検証、執筆 – レビュー & 編集。
黄国鹏:アイデアの立案、方法論、監督、プロジェクト管理、資金獲得、執筆 – レビュー & 編集。
Xiaojiao He:構想、資源提供、監督、プロジェクト管理、資金獲得、執筆 – レビュー & 編集。
曾雲傑と王華英は本研究に同等に貢献しており、共に筆頭著者である。黄国鵬と何小嬌は共に責任著者である。すべての著者は最終原稿を閲覧し、承認した。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 化学発光イメージングシステム | Thermo Fisher Scientific | iBright Imaging System | |
| フローサイトメーター | BD Biosciences | FACSCanto II | |
| 倒立蛍光顕微鏡 | Olympus | IX73 | |
| マイクロプレートリーダー | PerkinElmer | VICTOR X3 | |
| リアルタイムPCRシステム | Bio-Rad | CFX Opus 96 | |
| 分光光度計 | Thermo Fisher Scientific | NanoDrop 8000 |
参考文献
- Zysman M et al. Risk of cardiovascular events according to the severity of an exacerbation of chronic obstructive pulmonary disease. Eur J Prev Cardiol. 2025;32(15):1436-1444. doi:10.1093/eurjpc/zwaf086.
- Zvintzou E et al. Context-dependent effects of apolipoprotein A2 on lipid metabolism and atherogenesis. FASEB J. 2026;40(12):e72032. doi:10.1096/fj.202600765R.
- Zuriaga MA et al. Colchicine prevents accelerated atherosclerosis in TET2-mutant clonal haematopoiesis. Eur Heart J. 2024;45(43):4601-4615. doi:10.1093/eurheartj/ehae546.
- Zhang Y et al. Effects and mechanisms of Zhizi Chuanxiong herb pair against atherosclerosis: an integration of network pharmacology, molecular docking, and experimental validation. Chin Med. 2024;19(1):8. doi:10.1186/s13020-023-00874-x.
- Zysset D et al. TREM-1 links dyslipidemia to inflammation and lipid deposition in atherosclerosis. Nat Commun. 2016;7:13151. doi:10.1038/ncomms13151.
- Zou Z et al. Recent advances in nanozymes for the treatment of atherosclerosis. Int J Nanomedicine. 2025;20:9447-9472. doi:10.2147/IJN.S540010.
- Zoubdane N et al. High tyrosol and hydroxytyrosol intake reduces arterial inflammation and atherosclerotic lesion microcalcification in healthy older populations. Antioxidants (Basel). 2024;13(1):130. doi:10.3390/antiox13010130.
- Zhong T et al. Adaptation of endothelial cells to shear stress under atheroprone conditions by modulating internalization of vascular endothelial cadherin and vinculin. Ann Transl Med. 2020;8(21):1423. doi:10.21037/atm-20-3426.
- Zhuo S et al. Inflammatory corpuscle AIM2 facilitates macrophage foam cell formation by inhibiting cholesterol efflux protein ABCA1. Sci Rep. 2024;14(1):10782. doi:10.1038/s41598-024-61495-4.
- Zheng H et al. Lp-PLA2 silencing protects against ox-LDL-induced oxidative stress and cell apoptosis via Akt/mTOR signaling pathway in human THP-1 macrophages. Biochem Biophys Res Commun. 2016;477(4):1017-1023. doi:10.1016/j.bbrc.2016.07.022.
- Zhou Y et al. Asperlin inhibits LPS-evoked foam cell formation and prevents atherosclerosis in ApoE(-/-) mice. Mar Drugs. 2017;15(11):358. doi:10.3390/md15110358.
- Zhong Y, Liu C, Feng J, Li JF, Fan ZC. Curcumin affects ox-LDL-induced IL-6, TNF-α, MCP-1 secretion and cholesterol efflux in THP-1 cells by suppressing the TLR4/NF-κB/miR33a signaling pathway. Exp Ther Med. 2020;20(3):1856-1870. doi:10.3892/etm.2020.8915.
- Zhu C et al. TRIM64 promotes ox-LDL-induced foam cell formation, pyroptosis, and inflammation in THP-1-derived macrophages by activating a feedback loop with NF-κB via IκBα ubiquitination. Cell Biol Toxicol. 2023;39(3):607-620. doi:10.1007/s10565-022-09768-4.
- Zhang G et al. OxLDL/β2GPI/anti-β2GPI Ab complex induces inflammatory activation via the TLR4/NF-κB pathway in HUVECs. Mol Med Rep. 2021;23(2):148. doi:10.3892/mmr.2020.11787.
- Zu YX et al. Jiang Gui Fang activated interscapular brown adipose tissue and induced epididymal white adipose tissue browning through the PPARγ/SIRT1-PGC1α pathway. J Ethnopharmacol. 2020;248:112271. doi:10.1016/j.jep.2019.112271.
- Zu X et al. Antidepressant-like effect of Bacopaside I in mice exposed to chronic unpredictable mild stress by modulating the hypothalamic-pituitary-adrenal axis function and activating BDNF signaling pathway. Neurochem Res. 2017;42(11):3233-3244. doi:10.1007/s11064-017-2360-3.
- Zong K et al. Explorating the mechanism of Huangqin Tang against skin lipid accumulation through network pharmacology and experimental validation. J Ethnopharmacol. 2023;313:116581. doi:10.1016/j.jep.2023.116581.
- Zou Y et al. Huangqin Tang ameliorates dextran sodium sulphate-induced colitis by regulating intestinal epithelial cell homeostasis, inflammation and immune response. Sci Rep. 2016;6:39299. doi:10.1038/srep39299.
- Zou Y et al. Huangqin Tang ameliorates TNBS-induced colitis by regulating effector and regulatory CD4(+) T cells. Biomed Res Int. 2015;2015:102021. doi:10.1155/2015/102021.
- Wang D et al. Huangqin tang alleviates colitis-associated colorectal cancer via amino acid homeostasis and PI3K/AKT/mTOR pathway modulation. J Ethnopharmacol. 2024;334:118597. doi:10.1016/j.jep.2024.118597.
- Zhu X, Zhou Y, Cai W, Sun H, Qiu L. Salusin-β mediates high glucose-induced endothelial injury via disruption of AMPK signaling pathway. Biochem Biophys Res Commun. 2017;491(2):515-521. doi:10.1016/j.bbrc.2017.06.126.
- Zhu J, Chen H, Guo J, Zha C, Lu D. Sodium tanshinone IIA sulfonate inhibits vascular endothelial cell pyroptosis via the AMPK signaling pathway in atherosclerosis. J Inflamm Res. 2022;15:6293-6306. doi:10.2147/JIR.S386470.
- Kim J et al. Inhibition of Toll-like receptors alters macrophage cholesterol efflux and foam cell formation. Int J Mol Sci. 2024;25(12):6808. doi:10.3390/ijms25126808.
- Zuo J, Guo S, Qin X. Bisdemethoxycurcumin suppresses the progression of atherosclerosis and VSMC-derived foam cell formation by promoting lipophagy. Naunyn Schmiedebergs Arch Pharmacol. 2023;396(12):3659-3670. doi:10.1007/s00210-023-02558-7.
- Zong P et al. TRPM2 deficiency in mice protects against atherosclerosis by inhibiting TRPM2-CD36 inflammatory axis in macrophages. Nat Cardiovasc Res. 2022;1(4):344-360. doi:10.1038/s44161-022-00027-7.
- Sag D, Carling D, Stout RD, Suttles J. Adenosine 5'-monophosphate-activated protein kinase promotes macrophage polarization to an anti-inflammatory functional phenotype. J Immunol. 2008;181(12):8633-8641. doi:10.4049/jimmunol.181.12.8633.
- Chen B, Li J, Zhu H. AMP-activated protein kinase attenuates oxLDL uptake in macrophages through PP2A/NF-κB/LOX-1 pathway. Vascul Pharmacol. 2016;85:1-10. doi:10.1016/j.vph.2015.08.012.
- Chawla A et al. A PPARγ-LXR-ABCA1 pathway in macrophages is involved in cholesterol efflux and atherogenesis. Mol Cell. 2001;7(1):161-171. doi:10.1016/S1097-2765(01)00164-2.
- Saenz J et al. Grapefruit flavonoid naringenin regulates the expression of LXRα in THP-1 macrophages by modulating AMP-activated protein kinase. Mol Pharm. 2018;15(5):1735-1745. doi:10.1021/acs.molpharmaceut.7b00797.
- Larrede S et al. Stimulation of cholesterol efflux by LXR agonists in cholesterol-loaded human macrophages is ABCA1-dependent but ABCG1-independent. Arterioscler Thromb Vasc Biol. 2009;29(11):1930-1936. doi:10.1161/ATVBAHA.109.194548.
- Zhao GJ et al. Antagonism of betulinic acid on LPS-mediated inhibition of ABCA1 and cholesterol efflux through inhibiting nuclear factor-kappaB signaling pathway and miR-33 expression. PLoS One. 2013;8(9):e74782. doi:10.1371/journal.pone.0074782.
- Zhai T et al. Unique immunomodulatory effect of paeoniflorin on type I and II macrophages activities. J Pharmacol Sci. 2016;130(3):143-150. doi:10.1016/j.jphs.2015.12.007.
- Mei J et al. Tetramethylpyrazine and Paeoniflorin Synergistically Attenuate Cholesterol Efflux in Macrophage Cells via Enhancing ABCA1 and ABCG1 Expression. Evid Based Complement Alternat Med. 2022;2022:4304790. doi:10.1155/2022/4304790.
- Cao Y et al. Paeoniflorin suppresses kidney inflammation by regulating macrophage polarization via KLF4-mediated mitophagy. Phytomedicine. 2023;116:154901. doi:10.1016/j.phymed.2023.154901.
- Martinez Molina D et al. Monitoring drug target engagement in cells and tissues using the cellular thermal shift assay. Science. 2013;341(6141):84-87. doi:10.1126/science.1233606.
- Xue J et al. Transcriptome-based network analysis reveals a spectrum model of human macrophage activation. Immunity. 2014;40(2):274-288. doi:10.1016/j.immuni.2014.01.006.