本稿では、ヒト疾患の羊モデルを作製するために、CRISPR-Cas9遺伝子編集と体細胞核移植を用いて遺伝子改変胚を作製する方法について説明します。このアプローチは、ドナー細胞における精密な遺伝子編集を行い、遺伝的モザイク現象のないクローン胚を作製するのに最適です。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
大型動物モデルは、ヒトの疾患を研究するための貴重なツールです。羊、豚、山羊は、ヒトの臓器の解剖学的・生理学的構造や疾患の複雑さをより正確に再現することが多く、そのためげっ歯類に比べて臨床的妥当性が高まります。CRISPR-Cas9および体細胞核移植(SCNT)を用いることで、より高い精度、汎用性、および遺伝的一様性を持つ大型動物モデルの作製が可能になります。接合子へのマイクロインジェクションと比較した本アプローチの主な利点は、動物を個体として作製する前に、目的の遺伝子改変および潜在的なオフターゲット変異が遺伝子編集細胞に存在するかどうかをin vitroで確認できる点にあります。さらに、SCNTは、接合子へのマイクロインジェクションで頻繁に発生する遺伝的モザイク現象を排除できます。本稿では、非相同末端結合(NHEJ)および相同組換え修復(HDR)による遺伝子編集羊細胞の作製と、それに続く目的の変異を持つクローン胚の作製について説明します。遺伝子改変は、培養体細胞(通常は胎児線維芽細胞)にCRISPR-Cas9システムをトランスフェクションすることで導入されます。プールされた細胞における変異効率は、編集済み遺伝子のポリメラーゼ連鎖反応(PCR)およびサンガーシーケンシングによって評価し、Tracking of Indels by DEcomposition (TIDE) または Tracking of Insertions, Deletions, and Recombination events (TIDER) ソフトウェアを用いて解析します。プールされた細胞の限界希釈を行い、単一細胞由来のコロニーを得て、編集済み遺伝子のPCRおよびDNAシーケンシングによるスクリーニングを行います。目的の編集が導入されたドナー細胞をその後増殖させ、SCNTによる胚作製に使用します。限界希釈と細胞スクリーニングの結果、NHEJで改変されたコロニーの22/114(19.3%)にノックアウト(KO)変異が含まれ、HDRで改変されたコロニーの4/56(7.1%)にF508del変異が含まれていました。4つのコロニーから計370個の遺伝子改変胚が作製されました。これらの手法は、胎児線維芽細胞における精密な遺伝子編集および遺伝子組み換え胚の作製に成功しており、ヒト疾患の羊モデルの作製に活用されます。
概要
動物モデルは、ヒト疾患の生物学的メカニズムの解明および新しい治療法の開発において不可欠なツールです。細胞培養やオルガノイド培養などのin vitroモデルでは、器官内でin vivo に起こる細胞サブタイプや細胞間相互作用の複雑さを再現することはできません1,2。そのため、動物を用いることで、細胞レベルおよびシステムレベルの相互作用、疾患の進行、および治療法の安全性をより詳細に把握できる個体全体のモデルを得ることができます。げっ歯類は、低コストであること、世代交代が早いこと、および遺伝学的特性が包括的に解明されていることから、実用的なモデル生物となります。しかし、ヒト疾患に対するげっ歯類モデルは、ヒトとの生理学的および解剖学的な相違に加え、代謝が速く寿命が短いという点に制限があります3,4。これは、動物モデルで検証された治療法のうち、臨床試験で失敗する割合が高いことに裏付けられており、その大部分にげっ歯類が使用されています5,6,7,8。ヒツジ、ブタ、ヤギ、イヌ、および非ヒト霊長類は、多種多様なヒト疾患のモデル作成に使用されており、これにより新しい治療法や医薬品の臨床へのトランスレーション率を高めることができる可能性があります3,9,10,11,12。これらの種は、ヒトとの類似性が高いため、げっ歯類モデルに比べて多くの利点があります。したがって、ヒト疾患に対する大型動物モデルは、利用可能な中で最も正確なモデルを提供し、動物実験を臨床応用に橋渡しする上で極めて重要な役割を果たしています。
Clustered regularly interspaced short palindromic repeats (CRISPR)-Cas9は、動物細胞の遺伝子改変や、正確な疾患原因変異の導入に用いられる汎用性が高くプログラミング可能な手法である。CRISPR-Cas9による遺伝子編集では、標的部位に相補的なガイドRNA (gRNA) を用いることで、CRISPR関連タンパク質9 (Cas9) が標的部位に二本鎖切断 (DSB) を形成させる13。DSBの細胞内修復は、主に非相同末端結合 (NHEJ) と相同組換え修復 (HDR) という2つのメカニズムを通じて行われる。NHEJ経路はDNA末端を結合させることでDSBを修復するが、この機構はエラーが起こりやすく、切断部位にランダムな挿入または欠失 (indel) が形成されることがある14。これらの変異は、フレームシフト変異や早期終止コドンを生成して遺伝子の機能を破壊し、遺伝子をノックアウト (KO) する可能性がある。主に細胞周期のS期およびG2期に起こるHDRは、細胞が相同なアレルを修復テンプレートとして利用してDSBを修復する過程である15,16。目的の編集を含む合成一本鎖オリゴデオキシヌクレオチド (ssODN) またはその他のテンプレートDNAを導入し、細胞にそれを修復に利用させることで、ノックイン (KI) と呼ばれる特定の挿入、欠失、または置換を取り入れることが可能である。また、CRISPR-Cas9は、多遺伝子疾患のモデル化のために複数の変異を一度に導入するマルチプレックス編集にも利用できる3。ジンクフィンガーヌクレアーゼ (ZFN) や転写活性化因子様エフェクターヌクレアーゼ (TALEN) などの従来の遺伝子編集技術と比較して、CRISPR-Cas9は大動物の細胞においてより簡便でリソース効率が高く利用可能である17。新しいgRNAを設計することで異なる遺伝子座を容易に標的にできるため、CRISPR-Cas9を用いた新しい大動物モデルの導入が加速している3,13。しかしながら、種、細胞環境、および編集の内容によって大幅に変動しうるCRISPR-Cas9の編集効率など、いくつかの制限が依然として存在する18,19。特にHDRの効率はNHEJよりも低く、細胞種、ゲノム上の遺伝子座、および細胞周期の段階に大きく依存する20,21。さらに、オフターゲット部位、あるいはオンターゲット部位において意図しない編集が導入されることも課題となっている22。それでもなお、CRISPR-Cas9は遺伝子組換え大動物モデルを作製するための主要な遺伝子編集プラットフォームとなっている。
体細胞核移植(SCNT)は、高い精度と均質性を持った遺伝子改変胚の作製を可能にします。1997年に哺乳類で初めて成功したこのプロセスは、脱核した卵細胞に細胞核を移植するものです23。SCNTは、遺伝物質やDNA編集システムを接合子や初期胚に直接注入する接合子マイクロインジェクションなどの他の手法と比較して、多くの利点があります24,25,26。接合子マイクロインジェクションでは、遺伝子改変前にDNA複製や細胞分裂が起こると、胚内の細胞間に遺伝的な不均一性、すなわちモザイシズムが生じる固有のリスクがあります27,28,29。このようなモザイク胚は、ジェノタイピングや表現型解析が困難であるため、動物モデルとしての価値が低下します29。SCNTでは、遺伝子編集と胚の作製が切り離されています。各クローン胚は単一の細胞に由来するため、モザイシズムのリスクが排除され、胚が遺伝的に均質であることが保証されます30,31,32。さらに、ドナー細胞はSCNT処置の前にin vitroで編集され、クローナリティおよび目的の改変の有無が慎重にスクリーニングされるため、時間と資源を節約できます25,26。これは、特定のノックイン(KI)を導入する場合に特に重要です。また、細胞スクリーニングにより、オフターゲット部位における潜在的な変異を特定できるため、他の遺伝子座における遺伝子破壊のリスクを低減できます。これらの利点は、CRISPR-Cas9に関連する多くの懸念を解消します。したがって、SCNTは接合子マイクロインジェクションと比較して、得られる胚の遺伝学的制御能が高く、特にマルチプレックス編集、巨大挿入、ヒト化アレルなどの複雑な編集において有効です33。一方で、SCNTはクローニング効率の低さ、技術的要件、および異常なエピジェネティック再プログラミングという制約があります。後者はクローンにおける分子レベルおよび表現型の乱れを引き起こし、創始動物における遺伝子改変の影響を不明確にする可能性があります。しかし、これらのエピジェネティックな変化は次世代には継承されません32,33。これらの制限があるものの、SCNTとCRISPR-Cas9を組み合わせることで、胚の遺伝学を厳格に制御した精密なゲノムエンジニアリングが可能となり、モザイシズムのない大型動物疾患モデルの信頼性の高い作製がサポートされます。本稿では、NHEJまたはHDRを用いて羊胎児線維芽細胞(SFF)を遺伝子改変し、続いてSCNTによりクローン胚を作製して、最終的にヒト疾患の羊モデルを作製するための詳細なアプローチについて説明します。この手法は他の家畜種にも広く適用可能ですが、細胞型によって遺伝子編集の最適化が必要な場合があり、本プロトコルが有用な出発点となります。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
すべての動物実験は、ユタ州立大学の機関動物ケアおよび使用委員会(IACUC:#15508および#10089)の承認を受け、米国国立衛生研究所(NIH)のガイドラインに従って実施された。本研究では、家畜のロムニー種羊(Ovis aries)を用いて、羊胎児線維芽細胞を単離した(補足ファイル134)。参照してください。 図1 プロトコルの概要について。
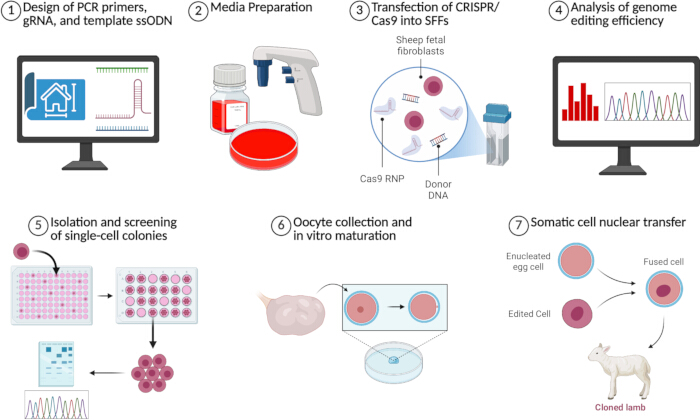
図1: 遺伝子改変胚の作製に使用されるCRISPR-Cas9およびSCNT法の概要。プロトコルの主要な7つのステップの要約が示されている。BioRenderで作成。Perisse, I. (2026). こちらのリンクからこの図の拡大版を表示できます。
1. PCRプライマー、gRNA、およびテンプレートssODNの設計
- Benchling (https://www.benchling.com/academic) で、編集対象となるゲノム領域を開きます。
- 目的のゲノム領域を増幅およびシーケンシングするためのPCRプライマーを設計する。
- 増幅対象となるターゲット領域に加え、その上流および下流に200塩基対をハイライトしてください。これにより、クオリティの高いトレースコールを確保し、TIDEソフトウェアを用いて変異効率を正確に解析するために十分な距離を確保できます。
- 右側のナビゲーションバーで、次をクリックします。 プライマー > プライマーの作製 > ウィザード.
- 下 領域、クリック 選択の使用の下で アンプリコン、調整する サイズ 適宜、必要に応じて他のパラメータを調整してください。
- クリック プライマーの設計ペナルティスコアの低いプライマーペアを1つ以上選択し、注文してください。
注:導入する編集内容によっては、陽性コロニーをより迅速にスクリーニングできるよう、正しく編集されたDNAにのみ結合するプライマーを設計することが推奨されます。
- CRISPR-Cas9を用いてDNAを編集するためのgRNAを設計する。
- Benchlingで編集対象の領域をハイライトし、右側のナビゲーションバーにある[クリック]を選択します。 CRISPR > ガイドの設計および解析.
- クリックして ゲノム ドロップダウンメニューからモデル生物のゲノムを選択またはインポートします。必要に応じて、その他のパラメータを調整してください。
- クリック 完了 > +.
- 下 ゲノム領域 クリック リージョン未設定 そして、ターゲットサイトを含むゲノム領域を選択または入力します。「Click」をクリックしてください。 ゲノム領域の設定.
- オンターゲットスコアとオフターゲットスコアがいずれも高いガイドを1つ以上選択し、注文してください。
- ノックイン(KI)編集を行う場合は、ssODNテンプレートを設計してください。
- 右側のナビゲーションバーにある[ ]をクリックします。 CRISPR > HRテンプレートのデザイン(ssODN)).
- ~をクリックしてください。 ゲノム ドロップダウンメニューからモデル生物のゲノムを選択またはインポートします。クリックして 作成.
- ~をクリックします。 シーケンスマップ タブを押し、編集する塩基をハイライトし、キーボードで希望の編集内容を入力して、修正後のDNA配列を作成します。元のページに HRテンプレートの設計 タブを選択してクリックします 次へ.
- 調整してください テンプレート領域 編集箇所の両側に少なくとも50塩基対のホモロジーアームを含めるようにし、その後、[クリック]してください。 次へ.
- ステップ1.3.5で選択したgRNAの配列を、以下に入力してください。 ガイド Protospacer Adjacent Motif (PAM)を破壊するサイレント変異を導入するためのボックス。クリック 次へ.
- クリック テンプレートをコピーする そして、作製したssODNテンプレートを注文する。
注:Benchlingを用いて設計され、ノックアウト(KO)変異またはF508del変異を導入した羊嚢胞性線維症モデルの作製に使用したPCRプライマー、CRISPR-Cas9 gRNA、およびテンプレートssODNの配列は、以下に示します。 表1.
2. 培地の調製
- Dulbecco's modified Eagle's medium (DMEM) high Glucoseに15% fetal bovine serum (FBS)および1% Penicillin-Streptomycin (Pen/Strep) (v/v)を添加して、細胞培養培地を調製する。使用前に37 °Cのウォーターバスで予熱しておく。
- DMEMに45% FBSおよび10% dimethyl sulfoxide (DMSO)を添加して、凍結培地を調製する。
- M199 mediumに1% Pen/Strep、0.3% bovine serum albumin (BSA) fraction V、1% FBS、および0.06% heparin sodium saltを添加して、卵母細胞回収培地を調製する。
- 市販されている、それぞれウシ卵母細胞の成熟および胚培養用に調製された無血清培地であるIn Vitro Maturation (IVM)培地およびIn Vitro Culture (IVC)培地を入手する。
注:融合後およびIVC用のディッシュは、IVC培地を40 µLずつ7滴滴下し、胚テスト済みミネラルオイルで被覆して準備する。 - DMEM high Glucoseに0.5% FBSおよび1% Pen/Strep (v/v)を添加して、細胞飢餓培地を調製する。使用前に37 °Cのウォーターバスで予熱しておく。
- 既報35に従い、HEPES添加合成卵管液 (HSOF)培地を調製する。
- 500 µLのHSOF培地に4.5 mM sucroseおよび10 µg/mL Cytochalasin B (CB)を添加して、脱核培地を調製する。
- 500 µLのHSOF培地に10 µg/mL Cytochalasin B (CB)を添加して、注入培地を調製する。
注:脱核培地および注入培地は、SCNTの当日に調製して使用する。各培地を1滴 (200 µL)ずつ100 mmディッシュに滴下し、胚テスト済みミネラルオイルで被覆する。 - 既報35に従い、融合培地を調製する。4 °Cで保存した融合培地を5–10 mL取り出し、使用時まで室温で保持する。
- IVC培地に10 µg/mL CBを添加して、CB培地を調製する。
注:CB用ディッシュは、CB培地を40 µLずつ7滴滴下し、胚テスト済みミネラルオイルで被覆して準備する。 - HSOF培地に5 µM ionomycin calcium saltを添加して、イオノマイシン培地を調製する。
- IVC培地に2 mM 6-Dimethylaminopurine (DMAP)および10 µg/mL Cycloheximide (CHX)を添加して、活性化培地を調製する。
注:活性化用ディッシュは、活性化培地を40 µLずつ7滴滴下し、胚テスト済みミネラルオイルで被覆して準備する。
3. SFFへのCRISPR-Cas9のトランスフェクション
- (条件)すべての細胞培養手順は、バイオセーフティキャビネットまたはラミナーフローフード内で行う。トランスフェクション前に、SFFをT-25フラスコを用い、細胞培養培地にて37 °C、5% CO2、5% O2、90% N2の条件下で、コンフルエンスが約70%–80%になるまで培養する。
- フラスコからすべての培地を除去し、5 mLのDulbecco'sリン酸緩衝生理食塩水(DPBS)で1回洗浄する。トリプシン様解離酵素1 mLを加え、細胞が解離するまで5–10分間インキュベートする。
- トリプシン様解離酵素を等量の細胞培養培地で希釈し、細胞を200 × gで5分間遠心分離する。
- (タイミング)100 µM gRNA 2.5 µLと5 µg/µL Cas9タンパク質 2.5 µLを混合し、室温で10分間インキュベートして、gRNA: Cas9リボ核タンパク質(RNP)複合体を調製する。
注意:Cas9 RNPとgRNAの比率は、細胞種、標的遺伝子、および標的数に応じて最適化が必要な場合がある。 - ニュークロフェクション溶液82 µLにサプリメント溶液18 µLを混合し、ニュークロフェクション溶液を調製する。
- ニュークロフェクション溶液とRNP複合体を混合し、ssODNを使用する場合は200 µM ssODN 2 µLを加え、ピペッティングにより穏やかに混合する。
- 遠心分離後、上清を慎重に除き、チューブを糸くずの出ないティッシュの上に逆さまに置いて、残存培地を除去する。
注意:残存する培養培地は、トランスフェクション効率と細胞生存率に影響を及ぼす可能性がある。細胞ペレットをニュークロフェクション溶液で再懸濁する前に、余分な液体が完全に除去されていることを確認すること。 - (重要)線維芽細胞をニュークロフェクション溶液に再懸濁し、気泡が形成されないように注意しながら、混合液を100 µLニュークロキュベットに移す。ニュークロキュベットを硬い表面で軽く叩き、混合液をキュベットの底に集める。
注意:ニュークロキュベット内の気泡は、エレクトロポレーションを妨げる可能性がある。 - (関連設定)プログラムEH-100を使用するか、または製造元の推奨に従って細胞にエレクトロポレーションを行う。室温で10分間、細胞を回復させる。
- エレクトロポレーションした細胞を移送ピペットを用いて、HDRエンハンサーを最終濃度1–2 µM(他の細胞種では最適化が必要な場合がある)になるように添加した、あらかじめ平衡化した5 mLの細胞培養培地に移す。
- (条件)ゲノムDNAの単離前に、細胞を細胞培養培地にて37 °C、5% CO2、5% O2、90% N2の条件下で48時間培養する。
- 細胞から培地を除去し、DPBSで1回洗浄した後、トリプシン様解離酵素1 mLを加える。
- 細胞が剥離した後、細胞培養培地1 mLを加えてトリプシン様解離酵素を希釈する。
- 細胞懸濁液の約3分の2を凍結保存用に、3分の1をゲノムDNA抽出用に、ラベル付きの1.5 mLチューブに分注する。すべてのチューブを200 × gで5分間遠心分離する。
- 凍結保存用の細胞ペレットを500 µLの凍結培地で再懸濁する。再懸濁した細胞をクライオバイアルに移し、-80 °Cのプログラム凍結容器に入れる。-80 °Cに移すまで、細胞が凍結培地にある時間を最小限にすること。
- DNA抽出用の細胞ペレットを200 µLのDPBSで再懸濁する。製造元の指示に従い、ゲノムDNA精製キットを用いてゲノムDNAを抽出する。
4. ゲノム編集効率の解析
- 高正確性DNAポリメラーゼと事前に設計したPCRプライマーを用いて、単離したDNAから標的遺伝子座を増幅させる。
- 1%アガロースゲル中でのアガロースゲル電気泳動を行い、1 kb DNAラダーを用いてPCR増幅を確認する。
- PCR精製キットを用いてPCR産物を精製し、サンガーシーケンシングに提出する。
- KO(ノックアウト)を行った場合は、TIDEソフトウェア(https://apps.datacurators.nl/tide)を使用して編集効率を評価する36。正確な編集効率分析を行うため、バックグラウンド信号が最小限の高品質なクロマトグラムを使用すること。
- TIDEを開き、Title plotボックスにサンプル名を記入する。Guide sequenceの欄に、使用したgRNAの配列を入力する。
- Control Sample Chromatogramの欄でBrowseをクリックし、未編集のコントロールサンプルのクロマトグラムをアップロードする。
- Test Sample Chromatogramの欄でBrowseをクリックし、編集したテストサンプルのクロマトグラムをアップロードする。
- Decompositionタブに移動し、indelスペクトルと変異効率を確認する。indelスペクトルの右上のR2値を確認する。
- R2値が0.9未満の場合は、Parametersの下にあるAdvanced settingsボックスにチェックを入れ、R2値が0.9を超え、適切なアライメントが得られるまで、アライメントウィンドウ、分解ウィンドウ、およびindelサイズのスライダーを調整する。
- KI(ノックイン)を行った場合は、TIDERソフトウェア(https://apps.datacurators.nl/tider)を使用して編集効率を評価する37。
- TIDERを開く。Title plotボックスにサンプル名を記入する。Guide sequenceの欄に、使用したgRNAの配列を入力する。
- Control Sample Chromatogramの欄でBrowseをクリックし、未編集のコントロールサンプルのクロマトグラムをアップロードする。
- Reference Chromatogramの欄でBrowseをクリックし、目的の編集を持つリファレンスサンプルのクロマトグラムをアップロードする。
注:そのような配列が存在しない場合は、DNA配列に変異を導入するために設計した追加プライマーを用いてPCR増幅させることで生成できる38。 - Test Sample Chromatogramの欄でBrowseをクリックし、編集したテストサンプルのクロマトグラムをアップロードする。
- Decompositionタブに移動し、indelスペクトル、変異効率、およびHDR効率を確認する。indelスペクトルの右上のR2値を確認する。
- R2値が0.9未満の場合は、Parametersの下にあるAdvanced settingsボックスにチェックを入れ、R2値が0.9を超え、適切なアライメントが得られるまで、アライメントウィンドウ、分解ウィンドウ、切断部位から上流への距離、およびindelサイズのスライダーを調整する。
注:(重要)シーケンシングファイルの品質が低い場合は、再シーケンシングが必要となることがある。
5. 単一細胞コロニーの分離およびスクリーニング
- (条件)トランスフェクションしたSFFをT-25フラスコに入れ、37 °C、5% CO2、5% O2、90% N2の条件下で、細胞が約80%コンフルエントになるまで一晩培養する。
- 培地を除去し、5 mLのDPBSで細胞を1回洗浄した後、1 mLのトリプシン様解離酵素を用いて細胞を解離させる。
- 細胞培養培地を加えてトリプシン様解離酵素を希釈し、細胞懸濁液を15 mLコニカルチューブに移す。細胞を200 × gで5分間遠心分離する。
- 上清を捨て、細胞ペレットを1 mLの細胞培養培地で再懸濁する。穏やかに、かつ十分に混合し、均一な単一細胞懸濁液を得る。
- (重要)細胞懸濁液を1:10に希釈し、Trypan blueを用いた血球計数計で細胞数を計測する。
- 1ウェルあたり約1細胞を播種するために必要な希釈細胞懸濁液の量を算出する。
注:96ウェルプレート5枚分の場合、約500個の細胞を準備する。 - 50 mLコニカルチューブに、96ウェルプレート1枚あたり10 mLの細胞培養培地を準備する。
- 算出した量の1:10希釈細胞懸濁液を培養培地に加え、穏やかなピペッティングと転倒混和によって十分に混ぜ合わせる。
- 希釈した細胞懸濁液を滅菌済みの試薬リザーバーに注ぐ。
- 96ウェルプレートの各ウェルに、細胞懸濁液を100 µLずつ分注する。
- (条件)プレートを37 °C、5% CO2、5% O2、90% N2の条件下で5日間インキュベートする。
- 顕微鏡で各ウェルを観察し、1つのコロニーが含まれるウェルに印をつける。2つ以上のコロニーが含まれるウェルは除外する。
注:単一細胞由来のコロニーは、通常、円形でコンパクトであり、形態的に均一である。 - プレートをインキュベーターに戻し、同条件でさらに2日間培養する。
- 96ウェルプレートで計7日間の培養後、単一の増殖コロニーが含まれるウェルから培地を除去する。選択した各ウェルをDPBSで1回洗浄する。
- 選択した各ウェルに100 µLのトリプシン様解離酵素を加え、細胞が剥離するまでインキュベートする。各ウェルに100 µLの細胞培養培地を加えて、トリプシン様解離酵素を希釈する。
- 各ウェルの全量を、24ウェルプレートの1つのウェルに移す。
- 元の96ウェルプレートをさらに細胞培養培地で洗浄し、細胞回収率を最大化するため、その洗浄液を対応する24ウェルプレートのウェルに移す。細胞培養培地を用いて、24ウェルプレートの各ウェルの最終容量を500 µLにする。
- (条件)24ウェルプレートを37 °C、5% CO2、5% O2、90% N2の条件下で3日間インキュベートする。
- 顕微鏡でウェルを観察し、コンフルエンスに近いコロニーを選択する。
- 回収用に選択したウェルから培地を除去し、DPBSで1回洗浄した後、500 µLのトリプシン様解離酵素を加える。
- 細胞が剥離した後、1 mLの細胞培養培地を加えてトリプシン様解離酵素を希釈する。
- ステップ3.14~3.16に従って細胞を凍結し、ゲノムDNAを単離する。
- PCRにより標的遺伝子座を増幅し、サンガーシーケンスによりジェノタイプを確認する。
- シーケンス結果に基づいて、野生型、KO、およびKIコロニーを同定する。正しい編集の検証および非単一細胞由来コロニーの同定のため、ステップ4.4および4.5に記載のTIDE/TIDER解析を用いて、HDR率およびindelスペクトラムを推定する。
注:このステップでオフターゲット解析を行う場合もある(Supplementary File 1)。 - 後続のSCNT実験のため、目的のジェノタイプを持ち、正常な細胞形態を示すコロニーのみを拡大培養する。
6. 羊卵母細胞の回収およびin vitro成熟
- 地元の屠畜場から羊の卵巣を回収し、回収後4時間以内に0.9%生理食塩水を用いて25 °Cで研究室まで輸送する。
- 卵母細胞をin vitroで成熟させる。
- 卵巣を卵母細胞回収培地の中に浸した状態で、メスを用いて卵巣表面を切り、卵丘細胞-卵母細胞複合体(COC)を回収する。
- (タイミング)IVMに使用するため、緻密な卵丘細胞が少なくとも1~3層あり、細胞質が均一なCOCを選択する。COCを新鮮な卵母細胞回収培地で洗浄し、あらかじめ平衡化したIVM培地で培養する。4ウェルディッシュの各ウェルにIVM培地500 µLを入れ、1ウェルあたり最大40個のCOCを加え、38.5 °C、5% CO2条件下で21~22時間インキュベートする。
- 卵母細胞の成熟状態を確認する。
- 200 µLピペットを用いて必要な数のCOCを1.5 mLマイクロ遠心チューブに移し、同量(1:1)の0.6 mg/mLヒアルロニダーゼをチューブに加える。
- すべての卵丘細胞が除去されるまで、混合溶液をピペッティングする。卵母細胞を1 mLのHSOF液滴に移し、さらに3つのHSOF液滴で洗浄する。
- マウスピペットまたは10 µLピペットとチップを用いて、実体顕微鏡下で卵母細胞を転がしながら、第一極体を呈しているものを選択する。許容される極体放出率は50%~80%とする。
7. 体細胞核移植
- SCNT前のドナー細胞の調製。
- SCNTの3~5日前に、凍結保存細胞を37 °Cの水槽で1~2分間、チューブ内に氷がなくなるまで解凍する。
- 細胞懸濁液を取り出し、等量の細胞培養液を15 mL遠心チューブに加え、406 x gで5分間遠心分離する。
- 上清を除去し、細胞ペレットを500 µLの細胞培養液で再懸濁する。
- (条件) 4ウェルディッシュに、1ウェルあたり最終容量500 µLとなるように様々な濃度の細胞を播種し、37 °C、5% CO2、5% O2、90% N2で培養する。
- 48時間ごとに細胞培養液を交換する。細胞が完全コンフルエントに達した後、SCNTの24~48時間前に細胞飢餓培地に交換する。
注:48時間を超える細胞飢餓は、アポトーシスの割合を増加させる可能性がある39,40。
- ドナー細胞の調製(SCNT当日)。
- ウェルから飢餓培地を除去し、500 µLのDPBS (-)で1回洗浄する。
- 250 µLのトリプシン様解離酵素を加え、37 °Cで5分間、または細胞がディッシュから剥離するまでインキュベートする。
- 500 µLの細胞培養液を加え、トリプシン様解離酵素を希釈する。
- 細胞を15 mL遠心チューブに移し、406 x g で5分間遠心分離する。
- 上清を除去し、細胞を60~80 µLのHSOF培地で再懸濁し、使用まで4 °Cで保存する。
- 卵母細胞の脱核。
- マイクロピペットプラーで薄壁ガラスキャピラリーを引き伸ばし、マイクロフォージで成形して、内径30 µm、外径100 µmの保持ピペットを作製する。
注:両方のピペットは市販のサプライヤーから購入することも可能である。 - マイクロピペットプラーで薄壁ガラスキャピラリーを引き伸ばし、マイクログラインダーで45°に面取りし、マイクロフォージで成形して、内径20~25 µmの注入ピペットを作製する。マイクロピペットプラー、マイクロフォージ、およびマイクログラインダーのパラメータは、以前の報告41に記載されている。
- 極体が見られる中期II(MII)期の卵母細胞を、脱核培地の液滴へ移動させる。極体が4~5時の位置にある状態で、保持ピペットを用いて卵母細胞を固定する。
注:マイクロマニピュレーションの標準操作手順については、以前の報告41を参照のこと。 - (重要) 先端の鋭い面取り済みの注入ピペットを使用して透明帯を貫通させ、極体およびその直下の細胞質の10%~20%を吸引する。
- 除去した細胞質を液滴に押し出し、保持ピペットから卵母細胞を離す。
- すべての卵母細胞の脱核が完了するまで、ステップ7.3.2~7.3.4を繰り返す。脱核した卵母細胞をIVM培地に戻し、38.5 °C、5% CO2で30分間インキュベートする。
- マイクロピペットプラーで薄壁ガラスキャピラリーを引き伸ばし、マイクロフォージで成形して、内径30 µm、外径100 µmの保持ピペットを作製する。
- 脱核卵母細胞へのドナー細胞の注入。
- 調製した細胞懸濁液を注入培地液滴の底に加え、脱核卵母細胞を同じ液滴へ移動させる。
- 円形で健全な細胞を1~10個選択し、注入ピペットで吸引する。
- 保持ピペットを用いて卵母細胞を固定し、注入ピペットで透明帯を貫通させ、透明帯と卵細胞質との間に細胞を1個入れる。
- すべての脱核卵母細胞についてステップ7.4.2~7.4.3を繰り返し、細胞融合前に35 mmディッシュ内の2~3 mLのHSOF培地へ移動させる。
- 脱核卵母細胞とドナー細胞の融合。
- 電気融合パルス発生器のケーブルをマイクロスライドチャンバー(0.5 mm)の電極に接続し、チャンバーを顕微鏡ステージ上に配置する。
- チャンバーに600 µLの融合培地を加える。
- (重要/関連設定) チャンバーの2本の電極間に、ドナー細胞が6時または12時の位置にくるように細胞質と細胞のペアを4~6組整列させる。2.0 kV/cmのDC電気融合パルスを40 µsで2回印加する。
- 細胞質と細胞のペアを融合チャンバーから取り出し、2~3 mLのHSOF培地を含む新しい35 mmディッシュに入れて保持する。
- (条件) すべての注入卵母細胞が融合プロセスを完了するまで、ステップ7.5.3~7.5.4を繰り返す。融合後のディッシュでカップレットを洗浄し、38.5 °C、5% CO2、5% O2、90% N2で30分間インキュベートする。チャンバー内の融合培地は15~20分ごとに交換する。
- 胚の活性化および培養。
- (条件) 融合の30分後、すべての融合胚をまずCB培地中で38.5 °C、5% CO2、5% O2、90% N2で45分間インキュベートする。
- その後、HSOFで希釈した5 µMイオノマイシン中でカップレットを5分間活性化し、続いて活性化培地で4時間インキュベートする。
注:イオノマイシン培地は使用直前に調製する。フルターム発育を改善するため、成熟後24~26時間に活性化することが推奨される。 - (Conditions) 活性化後、再構成胚を洗浄し、IVC培地中(40 µLの液滴あたり最大40胚)にて38.5 °C、5% CO2、5% O2、90% N2で、一晩または胚移植まで培養する。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
プロトコルの主要な手順は、以下にまとめられています。 図1CRISPR-Cas9および体細胞核移植(SCNT)を用いて、非相同末端結合(NHEJ)により導入されたノックアウト(KO)インデル変異、または相同組換え修復(HDR)により導入されたF508del変異のいずれかを有する嚢胞性線維症(CF)の羊モデルを作製した。これらの結果の一部は、既に発表されている。42,43私たちは、嚢胞性線維症膜貫通コンダクタンス調節因子(CFTR)のエクソン11を標的とするため、両方の戦略に基づいたgRNAおよびPCRプライマーを設計しました。CFTR羊のGenBank配列(NC_019461.2.0)に基づいた遺伝子。また、ヒト患者における嚢胞性線維症(CF)の原因として最も一般的な3塩基欠失であるF508del変異のノックイン(KI)用ssODNも設計した。 図2A の exon 11 を示している...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
本手順において、効果的なプライマー、gRNA、およびssODNの設計は、遺伝子編集を成功させるために極めて重要です。これらの分子の結合が不十分な場合、遺伝子編集や目的のコロニーの同定が妨げられ、SCNTへの移行が困難になります。単一細胞コロニーの分離に進む前に、テストと最適化のために各配列の複数のバリエーションを購入することを推奨します。線維芽細胞におけるKOのためのCas9プラスミドのトランスフェクションは、通常、編集効率が不十分となるため、より高い効率(70%–90%)を得るにはCas9 RNPの使用が推奨されます44,45,46。限界希釈が適切に行われれば、KOを持つコロニーの割合は同様になるはずです。KIの期待編集効率は、導入される編集の種類に大きく依存します。我々の経験では、欠失は通常、挿入や置換よりも効率的です。したがって、限界希釈後のKI変異を持つコロニーの割合も変動します。我々の結果では、F508del変異を含むコロニーの割合(7.1%...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者は、科学出版社によって認められている利用方法に基づき、原稿の言語および読みやすさを向上させるためにGrammarly (Grammarly Inc.) および ChatGPT (OpenAI) を使用しました。これらのツールは、本提案における独自のテキスト、研究コンセプト、データ、画像、または図の生成には使用されていません。これらのツールを使用した後、著者は必要に応じて内容をレビューおよび編集し、本内容について全責任を負います。
謝辞
本研究は、ユタ農業試験場(UTAO1328)および嚢胞性線維症財団(助成金 POLEJA23PO)から一部支援を受けています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1 kb DNAラダー | Thermo Fisher Scientific | SM0313 | DNAサイズマーカー |
| 15 mL遠心チューブ | Thermo Fisher Scientific | 12-565-269 | |
| 1.5 mLマイクロ遠心チューブ | Thermo Fisher Scientific | 05-408-129 | |
| 4D-Nucleofector Core Unit | Lonza | AAF-1003B | |
| 4D-Nucleofector X Unit | Lonza | AAF-1003X | |
| 4ウェルディッシュ | Nunc | 144444 | |
| 50 mL遠心チューブ | Thermo Fisher Scientific | 12-565-270 | |
| 6-DMAP | Sigma-Aldrich | D2629 | |
| 24ウェルプレート | Corning | 3524 | 細胞増殖 |
| 96ウェルプレート | Corning | 3596 | 単一細胞コロニー分離 |
| アガロース | Thermo Fisher Scientific | BP160-100 | アガロースゲル電気泳動 |
| ビーカー (250 mL) | Kimble | 14000-250 | |
| Benchlingソフトウェア | Benchling | https://www.benchling.com/academic | 配列アライメントおよび解析 |
| IVC培地 | IVF Bioscience | 71005 | |
| IVM培地 | IVF Bioscience | 71001 | |
| BSA | Gold Bio | A-421-250 | |
| BTX ECM | BTX | ECM-200 | 装置(製造中止) |
| BTXマイクロスライドチャンバー | BTX | 450103 | |
| Cas9タンパク質 | Integrated DNA Technologies | Custom | CRISPR-Cas9ゲノム編集 |
| グルコン酸クロルヘキシジン (2%) | Aspen Vet | 11584915 | |
| CHX | Sigma-Aldrich | C7698 | |
| CRISPORソフトウェア | CRISPOR | https://crispor.gi.ucsc.edu/ | オフターゲット予測ソフトウェア |
| クライオバイアル | Thermo Fisher Scientific | 12-565-163N | |
| サイトカラシン B | Sigma-Aldrich | C6762 | |
| ジメチルスルホキシド | Fisher Scientific | BP231-100 | 凍結保存試薬 |
| DMEM 高グルコース | Cytiva | SH30022 | 線維芽細胞培養培地 |
| DNA精製キット | Thermo Fisher Scientific | K0781 | 全血ゲノムDNA精製 |
| DPBS (Ca/Mg不含) | Cytiva | SH30256 | 細胞および組織の洗浄に使用 |
| エタノール | Pharco | 111000200CSGL | |
| 胎児牛血清 | Cytiva | SH30396 | 細胞培養サプリメント |
| ピンセット | Skylar | 66-6112 | |
| ゲノムDNA精製キット | Qiagen | 69504 | ゲノムDNA抽出 |
| ゲンタマイシン溶液 | Gibco | 15750-060 | リンス液に使用 |
| ガイドRNA | Integrated DNA Technologies | Custom | CRISPRガイドRNA |
| HDRエンハンサー | Integrated DNA Technologies | 10007921 | 相同組換え修復を促進 |
| 血球計数器 | Hausser Scientific | 02-671-10 | 細胞数計測 |
| 止血鉗子 | Roboz Surgical | RS-7884 | |
| ヘパリンナトリウム塩 | Sigma-Aldrich | H3149 | |
| ホットスタートDNAポリメラーゼ | Promega | M5123 | PCR増幅 |
| ヒアルロニダーゼ | Sigma-Aldrich | H3506 | |
| イオノマイシン | Sigma-Aldrich | I0634 | |
| M199培地 | Cytiva | SH30253.01 | |
| メッシュスクリーン (40メッシュ) | Sigma-Aldrich | S-0770 | 開口径 380 μm |
| マイクロフォージ | Narishige | MF-9 | |
| マイクログラインダー | Narishige | EG-4 | |
| マイクロピペットプラー | Sutter Instrument Co | P-87 | |
| ミネラルオイル | Kitazato/Dibimed | 96014 | |
| 口ピペット | Thermo Fisher Scientific | 13-678-20D | 使い捨てパステゥールピペット |
| Mr. Frosty 凍結容器 | Thermo Fisher Scientific | 15-350-50 | 徐冷容器 |
| ヌクレオキュベット | Lonza | V4XP-3032 | エレクトロポレーションキュベット |
| P3 Primary Cell 4D-Nucleofector X Kit L | Lonza | V4XP-3024 | ヌクレオフェクション溶液、サプリメント溶液、ヌクレオキュベット、転送ピペットを含む |
| PCR精製キット | Qiagen | 28006 | PCR産物精製 |
| ペニシリン-ストレプトマイシン | Gibco | 15070-063 | 抗生物質サプリメント |
| シャーレ (100 mm) | Nunc | 172958 | |
| シャーレ (35 mm) | Nunc | 150460 | |
| 試薬リザーバー | CELLTREAT | 3054-1003 | |
| メス | MedBlades | MB 2-22 | |
| はさみ | Roboz Surgical | RS-6802 | |
| 一本鎖オリゴデオキシヌクレオチドドナーテンプレート | Integrated DNA Technologies | Custom | HDRドナーテンプレート |
| 塩化ナトリウム | Thermo Fisher Scientific | BP358-212 | 生理食塩水の調製用 |
| スクロース | Sigma-Aldrich | S1888 | |
| 手術用トレイ | Approved Vendor | 74262 | |
| SYBR Safe DNAゲル染色剤 | Thermo Fisher Scientific | S33102 | DNAゲル染色剤 |
| T-25 フラスコ | Thermo Fisher Scientific | 156367 | 細胞培養フラスコ |
| T-75 フラスコ | Corning | 430641U | 細胞培養フラスコ |
| 薄壁ガラスキャピラリー | World Precision Instruments | TW100-6 | |
| TIDE/TIDERソフトウェア | TIDE/TIDER | https://tide.nki.nl/ | ゲノム編集解析ソフトウェア |
| トリパンブルー | Cytiva | SV30084 | |
| TrypLE Express | Gibco | 12605-010 | トリプシン様解離酵素 |
参考文献
- Chang MCJ, Grieder FB. The continued importance of animals in biomedical research. Lab Anim (NY). 2024;53(11):295-297.
- Bhaduri A, et al. Cell stress in cortical organoids impairs molecular subtype specification. Nature. 2020;578(7793):142-148.
- Lin Y, et al. Application of CRISPR/Cas9 system in establishing large animal models. Front Cell Dev Biol. 2022;10:919155.
- Seok J, et al. Genomic responses in mouse models poorly mimic human inflammatory diseases. Proc Natl Acad Sci U S A. 2013;110(9):3507-3512.
- Ineichen BV, et al. Analysis of animal-to-human translation shows that only 5% of animal-tested therapeutic interventions obtain regulatory approval for human applications. PLoS Biol. 2024;22(6):e3002667.
- Schuh JCL. Trials, tribulations, and trends in tumor modeling in mice. Toxicol Pathol. 2004;32(1):53-66.
- Mak IW, Evaniew N, Ghert M. Lost in translation: animal models and clinical trials in cancer treatment. Am J Transl Res. 2014;6(2):114-118.
- Domínguez-Oliva A, et al. The importance of animal models in biomedical research: current insights and applications. Animals (Basel). 2023;13(7):1223.
- Li XJ, Lai L. A booming field of large animal model research. Zool Res. 2024;45(2):311-313.
- Pinnapureddy AR, et al. Large animal models of rare genetic disorders: sheep as phenotypically relevant models of human genetic disease. Orphanet J Rare Dis. 2015;10(1):107.
- Polejaeva IA, Rutigliano HM, Wells KD. Livestock in biomedical research: history, current status and future prospective. Reprod Fertil Dev. 2015;28(2):112-124.
- Kelly OM, et al. Towards clinical translation of nanomedicines: formulation scale-up and model systems. Adv Drug Deliv Rev. 2026;234:115862.
- Jinek M, et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 2012;337(6096):816-821.
- Pfeiffer P, Vielmetter W. Joining of nonhomologous DNA double strand breaks in vitro. Nucleic Acids Res. 1988;16(3):907-924.
- Thomas KR, Capecchi MR. Site-directed mutagenesis by gene targeting in mouse embryo-derived stem cells. Cell. 1987;51:503-512.
- Takata M, et al. Homologous recombination and non-homologous end-joining pathways of DNA double-strand break repair have overlapping roles in the maintenance of chromosomal integrity in vertebrate cells. EMBO J. 1998;17(18):5497-5508.
- Jiang S, Shen QW. Principles of gene editing techniques and applications in animal husbandry. 3 Biotech. 2019;9(1):28.
- Javaid N, Choi S. CRISPR/Cas system and factors affecting its precision and efficiency. Front Cell Dev Biol. 2021;9:761709.
- Wang J, et al. Application of gene editing technology in livestock: progress, challenges, and future perspectives. Agriculture (Basel). 2025;15(20):2155.
- Saleh-Gohari N, Helleday T. Conservative homologous recombination preferentially repairs DNA double-strand breaks in the S phase of the cell cycle in human cells. Nucleic Acids Res. 2004;32(12):3683-3688.
- Miyaoka Y, et al. Systematic quantification of HDR and NHEJ reveals effects of locus, nuclease, and cell type on genome-editing. Sci Rep. 2016;6:23549.
- Wen W, Zhang XB. CRISPR-Cas9 gene editing induced complex on-target outcomes in human cells. Exp Hematol. 2022;110:13-19.
- Schnieke AE, et al. Human factor IX transgenic sheep produced by transfer of nuclei from transfected fetal fibroblasts. Science. 1997;278(5346):2130-2133.
- Tang L, González R, Dobrinski I. Germline modification of domestic animals. Anim Reprod. 2015;12(1):93-104.
- Perisse IV, et al. Improvements in gene editing technology boost its applications in livestock. Front Genet. 2021;11:614688.
- Kwon DH, Gim GM, Yum SY, Jang G. Current status and future of gene engineering in livestock. BMB Rep. 2024;57(1):50-59.
- Mehravar M, Shirazi A, Nazari M, Banan M. Mosaicism in CRISPR/Cas9-mediated genome editing. Dev Biol. 2019;445(2):156-162.
- Niu Y, et al. Generation of gene-modified cynomolgus monkey via Cas9/RNA-mediated gene targeting in one-cell embryos. Cell. 2014;156(4):836-843.
- Yen ST, et al. Somatic mosaicism and allele complexity induced by CRISPR/Cas9 RNA injections in mouse zygotes. Dev Biol. 2014;393(1):3-9.
- Ni W, et al. Efficient gene knockout in goats using CRISPR/Cas9 system. PLoS One. 2014;9(9):e106718.
- Polejaeva IA. 25th anniversary of cloning by somatic cell nuclear transfer: generation of genetically engineered livestock using somatic cell nuclear transfer. Reproduction. 2021;162(1):F11-F22.
- Hodges CA, Stice SL. Generation of bovine transgenics using somatic cell nuclear transfer. Reprod Biol Endocrinol. 2003;1:81.
- Galli C. Current techniques of gene editing in pigs for xenotransplantation. Transpl Int. 2025;38:13807.
- Concordet JP, Haeussler M. CRISPOR: intuitive guide selection for CRISPR/Cas9 genome editing experiments and screens. Nucleic Acids Res. 2018;46(W1):W242-W245.
- Liu Y, et al. A retrospective analysis of sheep generated by somatic cell nuclear transfer. Theriogenology. 2024;227:102-111.
- Brinkman EK, Chen T, Amendola M, van Steensel B. Easy quantitative assessment of genome editing by sequence trace decomposition. Nucleic Acids Res. 2014;42(22):e168.
- Brinkman EK, et al. Easy quantification of template-directed CRISPR/Cas9 editing. Nucleic Acids Res. 2018;46(10):e58.
- Brinkman EK, Van Steensel B. Rapid quantitative evaluation of CRISPR genome editing by TIDE and TIDER. Methods Mol Biol. 2019;1961:29-44.
- Dalman A, et al. Synchronizing cell cycle of goat fibroblasts by serum starvation causes apoptosis. Reprod Domest Anim. 2010;45(5):e46-e53.
- Sadeghian-Nodoushan F, et al. Mimosine as well as serum starvation can be used for cell cycle synchronization of sheep granulosa cells. Chin J Biol. 2014;2014(1):851736.
- Page RL, Malcuit CM. Micromanipulation techniques for cloning. In: Principles of Cloning. Elsevier; 2014. p. 39-51.
- Viotti Perisse I, et al. Sheep models of F508del and G542X cystic fibrosis mutations show cellular responses to human therapeutics. FASEB Bioadv. 2021;3(10):841-854.
- Fan Z, et al. A sheep model of cystic fibrosis generated by CRISPR/Cas9 disruption of the CFTR gene. JCI Insight. 2018;3(19).
- Berthault C, et al. Highly efficient ex vivo correction of COL7A1 through ribonucleoprotein-based CRISPR/Cas9 and homology-directed repair to treat recessive dystrophic epidermolysis bullosa. J Invest Dermatol. 2024;144(6):1322-1333.e13.
- Martufi M, et al. Single-step, high-efficiency CRISPR-Cas9 genome editing in primary human disease-derived fibroblasts. CRISPR J. 2019;2(1):31-40.
- Bloomer H, Khirallah J, Li Y, Xu Q. CRISPR/Cas9 ribonucleoprotein-mediated genome and epigenome editing in mammalian cells. Adv Drug Deliv Rev. 2022;181:114087.
- Blocher R, et al. Effect of laparoscopic ovum pick-up on ovine in vitro oocyte maturation and somatic cell nuclear transfer embryo development. Anim Reprod Sci. 2026;292:108251.
- Campbell KH, Loi P, Otaegui PJ, Wilmut I. Cell cycle co-ordination in embryo cloning by nuclear transfer. Rev Reprod. 1996;1(1):40-46.
- Chen Y, Niu Y, Ji W. Genome editing in nonhuman primates: approach to generating human disease models. J Intern Med. 2016;280(3):246-251.
- Liu D, Cao D, Han R. Recent advances in therapeutic gene-editing technologies. Mol Ther. 2025;33(6):2619-2644.
- Campbell K, Alberio R. Reprogramming the genome: role of the cell cycle. Biosci Proc. 2019.
- Chia G, et al. Genomic instability during reprogramming by nuclear transfer is DNA replication dependent. Nat Cell Biol. 2017;19(4):282-291.
- Wang X, et al. Epigenetic reprogramming during somatic cell nuclear transfer: recent progress and future directions. Front Genet. 2020;11:205.
- Loi P, Iuso D, Czernik M, Ogura A. A new, dynamic era for somatic cell nuclear transfer? Trends Biotechnol. 2016;34(10):791-797.
- Zhao J, et al. Histone deacetylase inhibitors improve in vitro and in vivo developmental competence of somatic cell nuclear transfer porcine embryos. Cell Reprogram. 2010;12(1):75-83.
- Huang J, et al. BIX-01294 increases pig cloning efficiency by improving epigenetic reprogramming of somatic cell nuclei. Reproduction. 2016;151(1):39-49.
- Han C, et al. Overexpression of TET3 in donor cells enhances goat somatic cell nuclear transfer efficiency. FEBS J. 2018;285(14):2708-2723.
- Wang S, et al. Application of gene editing technology in resistance breeding of livestock. Life (Basel). 2022;12(7):1070.
- Houdebine LM. Production of pharmaceutical proteins by transgenic animals. Comp Immunol Microbiol Infect Dis. 2009;32(2):107-121.
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
この記事は公開されました
動画は近日公開