血漿中LINC00707の発現は脊髄損傷において上昇しており、miR-145-5p/TRAF6シグナル伝達軸を介してミクログリアによる炎症と酸化ストレスを促進します。LINC00707をサイレンシングすることでこれらの病理学的反応が減弱することから、治療標的としての可能性が示唆されます。
研究記事
LINC00707のサイレンシングによる、LPS刺激BV2ミクログリアにおける炎症および酸化ストレスの軽減 経由で 脊髄損傷におけるmiR-145-5p/TRAF6軸
111 回視聴
⸱
2026年9月11日
* These authors contributed equally
この記事について
サマリー
要約
脊髄損傷(SCI)は生涯にわたる障害を引き起こし、QOLを著しく低下させ、多大な社会経済的負担を強います。本研究では、miR-145-5p/TRAF6シグナル伝達軸の調節を通じたSCIにおけるLINC00707の役割を調査しました。健康な被験者30名とSCI患者75名の血漿サンプルを用い、RT-qPCRによってLINC00707、miR-145-5p、およびTRAF6の発現を解析しました。SCI患者において、血漿LINC00707レベルと前炎症性因子の関連性を評価しました。BV2ミクログリア細胞に100 ng/mLのLPSを曝露させ、炎症および酸化ストレス関連因子を測定しました。分子間相互作用は、デュアルルシフェラーゼレポーターアッセイを用いて評価しました。LINC00707の発現に関連する因子を特定するために、ロジスティック回帰分析を用いました。SCI患者では血漿LINC00707およびTRAF6レベルが上昇していた一方、miR-145-5pレベルは低下していました。血漿LINC00707レベルは、血漿炎症因子レベルと正の相関を示しました。LINC00707はmiR-145-5pの分子スポンジとして機能し、TRAF6はmiR-145-5pの標的遺伝子でした。BV2細胞においてLINC00707を抑制すると、炎症因子、プロ酸化ストレス物質、およびTRAF6 mRNAレベルが減少しました。miR-145-5pの抑制は、これとは逆の効果をもたらしました。以上の結果は、LINC00707の発現上昇がSCIの重症度に関連していること、およびLINC00707のノックダウンがmiR-145-5p/TRAF6シグナル伝達軸を調節することで、ミクログリアを介した炎症および酸化ストレスを軽減させる可能性があることを示唆しています。
概要
脊髄損傷(SCI)は、中枢神経系の重要な構成要素である脊髄を損傷する外傷性疾患です。SCIは、脊髄と脳の間の神経伝導路を直接的に遮断し、運動機能、感覚機能、および自律神経機能に重大な障害を引き起こします1,2。疫学研究によると、年間発生率は人口10万人あたり約5例であり、疾患に関連する死亡率は最大16.7%に達すると報告されています3,4。カナダの調査では、SCI患者1人あたりの生涯リハビリテーション費用は、最大で336,000米ドルに及ぶと推定されています5。高い発生率、死亡率、そして診断、治療、リハビリテーションに伴う多額の費用により、SCIは治療戦略の改善が求められる重大な臨床的課題となっています。
脊髄損傷(SCI)の病理学的進行は、一次損傷と二次損傷の2つの段階で構成されます。一次損傷は、脊髄組織への外傷的な機械的圧縮または断裂によって生じますが、一方で二次損傷は、炎症や酸化ストレスを含む病理学的プロセスによって媒介されます6,7。生理学的条件下では、ミクログリアが媒介する神経炎症は中枢神経系の恒常性に寄与しています8,9,10。しかし、SCI後にはミクログリアが過剰に活性化され、大量の炎症性メディエーターを放出します11,12。これらのメディエーターは活性酸素種(ROS)の過剰産生を誘発し、神経細胞の損傷と死を引き起こして、二次的な脊髄損傷を悪化させます13,14。したがって、過剰なミクログリアの活性化を抑制し、炎症カスケードを遮断することは、SCI後の神経学的回復を促進し、転帰を改善するための有望な治療戦略となります。
長鎖非コードRNA(lncRNA)は、200ヌクレオチドよりも長く、タンパク質コード能を持たない非コードRNAの一種である15。当初は転写の「ノイズ」と見なされていたが、現在ではlncRNAは多様な生理学的および病理学的プロセスの重要な調節因子として認識されている16。近年の研究により、lncRNAが神経損傷において重要な役割を果たすことが示されている。長鎖遺伝子間非タンパク質コードRNA 707(LINC00707)は、神経系疾患の重要な調節因子として浮上している。先行研究では、LINC00707がミクログリア介在性炎症を増強させることで、外傷性脳損傷を悪化させることが報告されている17。さらに、Zhu et al. は、LINC00707をサイレンシングすることで、PC12細胞におけるリポポリサッカライド(LPS)誘発性の炎症およびアポトーシスが有意に減弱することを実証した18。これらの知見は、SCIにおけるLINC00707の関与を探索するための予備的な理論的根拠となる。しかし、SCIにおいてLINC00707がミクログリア介在性炎症を調節するかどうかは、依然として解明されていない。
LncRNAは、競合的内因性RNA(ceRNA)メカニズムを通じて分子スポンジとして機能し、microRNA(miRNA)を捕捉することで下流の標的遺伝子の発現を調節します19。この調節パターンは、さまざまな疾患の病態形成に広く関与しています。特に、miR-145-5pは脊髄損傷(SCI)組織20およびLPS誘発性傷害21において有意に発現が低下しており、その過剰発現はミクログリアの炎症反応および酸化ストレス応答を効果的に抑制します22。また、腫瘍壊死因子受容体関連因子6(TRAF6)もSCIの病理において重要な役割を果たしています23,24,25。しかしながら、LINC00707、miR-145-5p、およびTRAF6がSCIにおいて協調的な調節機能を果たすかどうかについては、まだ解明されていません。
本研究において、LPS刺激を受けたミクログリア細胞ではLINC00707の発現が有意に上昇していました。そこで私たちは、LINC00707がミクログリアにおいて炎症促進的な調節因子として機能し、そのノックダウンによって神経炎症反応が減弱し、その結果としてSCIの病理学的進行が改善されるのではないかという仮説を立てました。本研究では、LINC00707がミクログリアの炎症反応を調節し、SCIの病態形成に寄与しているかどうかを検討しました。
プロトコル
本研究は、張家口市第一病院の倫理委員会によって承認されました(承認番号:2024-KY-18)。すべての参加者は、登録前に研究目的および潜在的なリスクについて説明を受け、書面によるインフォームドコンセントを提供しました。静脈血サンプルは、健常対照群からは定期健康診断時に、脊髄損傷(SCI)患者からは入院直後に収集されました。臨床検査は、同病院の臨床検査室にて実施されました。本プロトコルで使用した研究ツールは、以下に記載されています。 材料一覧表.
1. 対象者
2023年1月から2025年1月の間に、張家口市第一病院からSCI患者計75名を募集した。組み入れ基準は、コンピュータ断層撮影(CT)または磁気共鳴画像法(MRI)によってSCIと診断され、受傷から入院までの時間が12 h以下であることとした。除外基準は、過去6か月以内に脊髄または脳の外傷または手術の既往があること、心筋梗塞や不整脈を含む重度の心血管疾患、妊娠または授乳中であること、および悪性腫瘍、肝機能または腎機能障害、重度の脳血管疾患、または感染性疾患があることとした。
米国脊髄損傷協会(ASIA)の神経学的分類基準26に基づき、SCI患者75名を、神経機能正常群(n = 21)、不完全SCI群(n = 36)、および完全SCI群(n = 18)に分類した。損傷部位の分布は、頸髄 36.0%、胸髄 30.7%、腰髄 33.3%であった。研究対象集団にマッチさせた健康成人30名を、対照群としてランダムに募集した。全参加者のベースライン臨床情報を収集した。健康成人の組み入れ基準は、脊髄または脳の外傷、手術、または神経疾患の既往がないこと、慢性炎症性疾患、自己免疫疾患、または悪性腫瘍の既往がないこと、重篤な心血管疾患、肝疾患、または腎疾患がないこと、過去4週間以内に急性または慢性の感染症がないこと、妊娠または授乳中でないこと、およびSCI群と年齢および性別が一致していることとした。
日常生活における機能的自立度を評価するために、機能的独立性評価法(FIM)を用いた。FIMの最大スコアは126である。感覚および運動機能を評価するために、触覚、acmesthesia、および運動スコアを用いた。触覚とacmesthesiaの最大スコアは112であり、運動スコアの最大値は100であった。スコアが低いほど、神経学的障害がより深刻であることを示す。
2. 細胞培養、モデル構築、およびトランスフェクション
不死化マウスミクログリアBV2細胞を上海生物技術研究所の細胞リソースセンターから入手した。細胞は、10%胎児牛血清(FBS)、ペニシリン(100 U/mL)、およびストレプトマイシン(100 U/mL)を添加した高グルコースDulbecco's Modified Eagle Medium(DMEM)で培養した。細胞は、5% CO₂を含む加湿インキュベーター内にて37 °Cで維持した。
モデル作製のため、BV2細胞を0, 10, 20, 50, 100, 150, または 200 ng/mLのリポ多糖 (LPS) で24時間刺激した。実験結果に基づいて、最適なLPS濃度を選択した。
トランスフェクションのため、BV2細胞を6ウェルプレートに播種し、適切なコンフルエンスに達した時点でトランスフェクションを行った。トランスフェクション試薬は、製造元の指示に従い1.5 µL/wellで使用した。6時間後、培地を新鮮な培地に交換し、さらに24時間培養した。LINC00707ノックダウンコンストラクト、対応するネガティブコントロール、miR-145-5pオリゴヌクレオチド、および対応するコントロールオリゴヌクレオチドを、それぞれ50 nM/wellの濃度で使用した。すべてのトランスフェクション実験は、1回の独立した実験につき3つのパラレルレプリケートを用いて、少なくとも5回独立して繰り返した。データは、少なくとも5回の独立した実験の結果を用いて統計的に分析した。
3. ELISA
トランスフェクションおよびLPS刺激を行ったBV2細胞の培養上清を、12,000 × gで10分間遠心分離して回収し、対応するELISAキットを用いてインターロイキン-1β (IL-1β)、IL-6、および腫瘍壊死因子-α (TNF-α) のレベルを測定した。簡潔に述べると、製造元の指示に従い、ビオチン化抗体、HRP-ストレプトアビジン複合体、およびTMB基質を順次インキュベートしてアッセイを行った。吸光度はマイクロプレートリーダーを用いて450 nmで記録した。サイトカインレベルは標準曲線から決定した。各サンプルは3連で測定し、6回の独立した実験を行った。
4. ROS測定
活性酸素種(ROS)アッセイキットを用いて、LPS刺激したBV2細胞内のROSレベルを測定した。簡潔に述べると、細胞を10 µmol/L DCFH-DAとともに37 °Cで20分間インキュベートした。インキュベート後、上清を除去し、細胞をリン酸緩衝生理食塩水(PBS)で3回洗浄して、過剰な細胞外プローブを除去した。蛍光強度は、マイクロプレートリーダーを用い、励起波長488 nm、蛍光波長525 nmで測定した。相対的なROSレベルは、蛍光強度に基づいて算出した。すべてのサンプルは3連(triplicate)で分析し、実験全体を少なくとも5回独立して繰り返した。
5. マロンジアルデヒド、スーパーオキシドディスムターゼ、およびグルタチオンの検出
処理したBV2細胞を回収し、細胞ホモジネートを調製した。サンプルを4 °Cで10分間、12,000 × gで遠心分離し、上清を回収した。市販のマロンジアルデヒド(MDA)、スーパーオキシドディスムターゼ(SOD)、およびグルタチオン(GSH)検出キットを用い、製造者の指示に従って細胞上清中の各レベルを測定した。すべてのサンプルは3連(triplicate)で分析し、実験全体を少なくとも5回独立して繰り返した。
6. デュアルルシフェラーゼレポーターアッセイ
miR-145-5p結合部位の予測配列を含むLINC00707およびTRAF6の3'非翻訳領域(3' UTR)断片と、それに対応する変異配列をpmirGLOルシフェラーゼレポーターベクターにクローニングし、野生型(WT-LINC00707およびWT-TRAF6)および変異型(MUT-LINC00707およびMUT-TRAF6)のレポーターコンストラクトを作製した。BV2細胞にレポーターコンストラクトとmiR-145-5pオリゴヌクレオチドを共導入し、24時間培養した。その後、細胞を回収し、マイクロプレートリーダーを用いてホタルルシフェラーゼおよびRenillaルシフェラーゼ活性を測定した。
7. RT-qPCR
RNA抽出試薬を用いて全RNAを抽出した。RNAの品質はOD₂₆₀/OD₂₈₀比を用いて評価し、1.8から2.0の間の値を許容範囲とした。逆転写キットを用い、約1 µgの全RNAをcDNAに逆転写した。SYBR Green PCRマスターミックスを用い、RT-qPCRにより遺伝子発現量を定量した。逆転写は42 °Cで15分間行い、続いて95 °Cで3分間逆転写酵素を不活化させた。合成したcDNAは分析まで−20 °Cで保存した。定量リアルタイムPCRは、95 °Cで1分間のプレ変性後、95 °Cで5秒間の変性と60 °Cで15秒間のアニーリングおよび伸長反応を40サイクル行い実施した。蛍光信号は、各アニーリングおよび伸長ステップの終了時に収集した。融解曲線分析は、95 °Cで15秒間、続いて60 °Cで1分間行った。相対的発現レベルは2⁻ΔΔCt法を用いて算出した。遺伝子発現の標準化のための内部参照にはGAPDHまたは5Sを用いた。プライマー配列は以下の通りであった:LINC00707、フォワード 5'-CCAACAGGGTATCAGAATTCTC-3' および リバース 5'-TGCTGACAATAGCCATTAGG-3';miR-145-5p、フォワード 5'-GCCGAGGTCCAGTTTTCCCA-3' および リバース 5'-CTCAACTGGTGTCGTGGA-3';TRAF6、フォワード 5'-ATTACAACTGAGGTGCTTCT-3' および リバース 5'-GCATCTGGTTCTGTTATAGGA-3';GAPDH、フォワード 5'-ATCCCATCACCATCTTCCAGG-3' および リバース 5'-CGCCCCACTTGATTTTGG-3';および5S、フォワード 5'-TCGTCTGATCTCGGAAGCTAA-3' および リバース 5'-AAGCCTACAGCACCCGGTAT-3'。
8. 統計解析
統計解析は統計ソフトを用いて行った。データ分布の正規性はShapiro-Wilk検定を用いて評価し、P > 0.05を正規分布とした。正規分布に従うデータは平均値 ± SDとして、非正規分布のデータは中央値(P25, P75)として示した。正規分布を示す連続変数について、2群間の比較にはStudent's t-testを用い、多群間の比較には一元配置分散分析(one-way ANOVA)およびTukeyのポストホック検定を用いた。非正規分布のデータについては、2群間比較にMann-Whitney U検定を、多群間比較にKruskal-Wallis検定を用いた。群間のカテゴリ変数の解析にはカイ二乗検定を用いた。LINC00707の発現に関連する臨床因子の評価には、単変量および多変量ロジスティック回帰分析を用いた。連続変数はコホートの中央値で二分化した(高値群 = 1、低値群 = 0)。単変量ロジスティック回帰分析でP < 0.05であった変数を、多変量ロジスティック回帰分析に投入した。結果はオッズ比(OR)および95%信頼区間(CI)として示し、OR > 1を正の相関、OR < 1を負の相関とした。すべての細胞表現型実験において、少なくとも4つの独立した生物学的反復を行い、各生物学的反復につき3つの技術的反復を行った。P < 0.05を統計学的に有意とみなした。
結果
SCI患者において血漿LINC0707レベルが上昇していた
健康な被験者30名およびSCI患者75名のベースラインの臨床的特性を分析した。健康な被験者と比較して、SCI患者は触覚、acmesthesia、運動能力、および機能的自立度評価法(FIM)のスコアが著しく低く、感覚および運動機能の障害が示された。さらに、前炎症性サイトカインの血清レベルは、健康な対照群よりもSCI患者で有意に高く(表 1、P < 0.001)、炎症反応の亢進が示唆された。
| 項目 | HS | SCI | P-値 |
| (n=30) | (n=75) | ||
| 年齢 (years) | 45.83±10.06 | 46.17±9.92 | 0.786 |
| BMI (kg/m2) | 2.82±1.57 | 23.94±1.29 | 0.69 |
| 性別 (男性, n) | 18 | 41 | 0.619 |
| 喫煙 (n) | 1 | 28 | 0.949 |
| 飲酒 (n) | 14 | 3 | 0.804 |
| SCIのASIA分類 (n) | / | ||
| 完全SCI | / | 18 | |
| 不全SCI | / | 36 | |
| 正常神経機能 | / | 21 | |
| SCI損傷レベル (n, %) | / | ||
| 頸椎 | / | 27 (36.0%) | |
| 胸椎 | / | 23 (30.7%) | |
| 腰椎 | / | 25 (33.3%) | |
| 触覚スコア | / | 53.42±2.12 | |
| 痛覚スコア | / | 53.39±24.68 | |
| 運動スコア | / | 49.07±18.74 | |
| 機能的独立度評価法 (FIM) スコア | / | 71.33±19.41 | |
| IL-1β (pg/mL) | 1.47±0.52 | 52.21±11.32 | <0.01 |
| IL-6 (pg/mL) | 2.14±0.97 | 8.47±23.52 | <0.01 |
| TNF-α (pg/mL) | 2.84±1.13 | 61.09±18.24 | <0.01 |
| CRP (mg/L) | 1.42±0.63 | 62.67±21.85 | <0.001 |
| 略語:HS, 健康被験者;SCI, 脊髄損傷;BMI, 体格指数;ASIA, 米国脊髄損傷協会;FIM, 機能的独立度評価法;IL, インターロイキン;TNF, 腫瘍壊死因子;CRP, C反応性蛋白。 | |||
表1:健常被験者と脊髄損傷患者におけるベースラインの臨床的特性の比較この表では、健常被験者と脊髄損傷患者の間で、人口統計学的特性、神経機能スコア、損傷関連変数、および炎症マーカー値を比較している。略語:HS、健常被験者;SCI、脊髄損傷;ASIA、米国脊髄損傷協会;FIM、機能的自立度評価法;IL、インターロイキン;TNF、腫瘍壊死因子;CRP、C反応性蛋白。
血漿中LINC0707の発現量をRT-qPCRを用いて定量した。健康な被験者と比較して、SCI患者では血漿中LINC0707の発現が有意に増加していた(図1A, P < 0.01)。受信者動作特性(ROC)曲線分析により、LINC0707の発現がSCI患者と健康な被験者を区別する上である程度の識別能を持つ可能性という予備的な証拠が得られた(図1B)。さらに、血漿中LINC0707の発現はSCIの臨床的重症度の増加に伴い上昇した(図1C, P < 0.01)。相関分析の結果、血漿中LINC0707の発現は、IL-1β (r = 0.635, P < 0.01)、IL-6 (r = 0.612, P < 0.01)、TNF-α (r = 0.675, P < 0.01)、およびC反応性蛋白(CRP; r = 0.61, P < 0.01)の濃度と正の相関を示した(図1D–G)。これらの知見は、LINC0707の発現上昇がSCI患者における炎症反応に関連していることを示唆している。
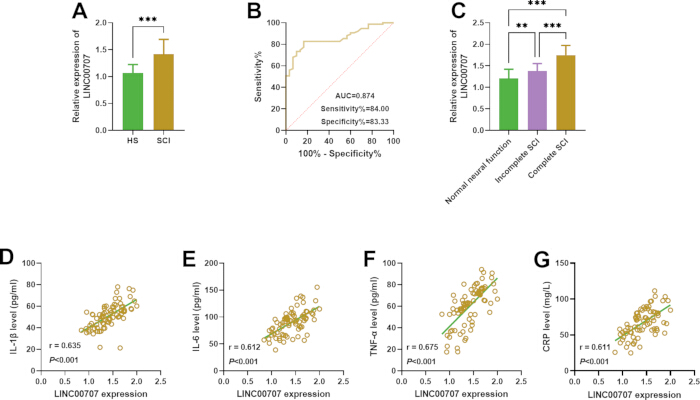
図1血漿中LINC00707の発現および血漿炎症因子との相関。 (A脊髄損傷(SCI)患者における血漿中LINC00707の発現量は、健康な被験者よりも高かった。統計解析には独立標本t検定を用いた。B受信者動作特性(ROC)曲線分析により、LINC0707の発現がSCI患者と健康な被験者を区別するのに有用である可能性が、初期的な指標として示された。C血漿中LINC00707の発現量は、米国脊髄損傷協会(ASIA)分類に基づく脊髄損傷(SCI)の重症度の増大に伴い増加した。統計解析は、一元配置分散分析(one-way ANOVA)およびそれに続くTukeyのHSDポストホックテストを用いて行った。D–G血漿中LINC0707の発現は、炎症因子のレベルと正の相関を示した。 統計解析にはピアソン相関分析を用いた。*P < 0.01 および **P < 0.01。健常被験者n = 30、脊髄損傷(SCI)患者n = 75。データは平均値 ± 標準偏差(SD)で示す。 この図の拡大版を表示するには、ここをクリックしてください。
単変量および多変量ロジスティック回帰を用いたLINC00707発現に関連する因子の解析
LINC0707の発現に関連する因子を特定するため、単変量および多変量ロジスティック回帰分析を行った。単変量解析の結果、SCIのASIA分類(OR = 3.912, 95% CI: 1.792–8.537, P < 0.01)、FIMスコア(OR = 0.281, 95% CI: 0.108–0.729, P = 0.09)、およびCRP値(OR = 4.60, 95% CI: 1.724–12.271, P = 0.02)がLINC0707の発現に関連していることが示された。潜在的な交絡変数を調整後、多変量ロジスティック回帰により、SCIのASIA分類(OR = 2.598, 95% CI: 1.08–6.203, P = 0.032)、FIMスコア(OR = 0.303, 95% CI: 0.102–0.902, P = 0.032)、およびCRP値(OR = 3.202, 95% CI: 1.024–10.015, P = 0.045)がLINC0707発現に関連する独立した因子であることが示された(Table 2)。ASIA分類の重症度が高くCRP値が上昇しているほどLINC0707の発現が高く、一方でFIMスコアが高いほどLINC0707の発現が低いことが認められた。これらの関連性は、LINC0707がSCIの病理学的プロセスに関与している可能性をさらに支持するものである。
| 項目 | 単変量回帰分析 | 多変量回帰分析 | ||||
| または | 95%信頼区間 | Pp値 | または | 95%信頼区間 | Pp値 | |
| 年齢 | 1.176 | 0.475-2.914 | 0.725 | |||
| 性別 | 1.303 | 0.524-3.240 | 0.57 | |||
| SCIのASIA分類 | 3.912 | 1.792-8.537 | <0.001 | 2.598 | 1.088-6.203 | 0.032 |
| 脊髄損傷(SCI)のASIA分類 | 0.588 | 0.497-1.480 | 0.582 | |||
| 触覚スコア | 0.85 | 0.343-2.105 | 0.725 | |||
| アクメスセシア・スコア | 0.854 | 0.345-2.119 | 0.734 | |||
| 運動スコア | 0.392 | 0.153-1.006 | 0.051 | |||
| FIMスコア | 0.281 | 0.108-0.729 | 0.009 | 0.303 | 0.102-0.902 | 0.032 |
| IL-1β | 1.181 | 0.475-2.935 | 0.72 | |||
| IL-6 | 1.453 | 0.585-3.608 | 0.42 | |||
| TNF-α | 1.304 | 0.526-3.233 | 0.567 | |||
| C反応性蛋白 | 4.6 | 1.724-12.271 | 0.002 | 3.202 | 1.024-10.015 | 0.045 |
| 略語:OR、オッズ比;CI、信頼区間;ASIA、アメリカ脊髄損傷協会;FIM、機能的独立度評価法;IL、インターロイキン;TNF、腫瘍壊死因子;CRP、C反応性蛋白。 | ||||||
表2:LINC0707発現に関連する因子のロジスティック回帰分析脊髄損傷患者におけるLINC0707発現に関連する臨床因子を特定するために用いられた単変量および多変量ロジスティック回帰分析の結果を示す。結果はオッズ比(95%信頼区間)および対応するP値として提示されている。略語:OR、オッズ比;CI、信頼区間;ASIA、アメリカ脊髄損傷協会;FIM、機能的自立度評価法;IL、インターロイキン;TNF、腫瘍壊死因子;CRP、C反応性蛋白。
LINC0707のノックダウンにより、LPS刺激したBV2細胞における炎症および酸化ストレスが軽減した
BV2細胞を、段階的に濃度を上げたLPS(0, 10, 20, 50, 10, 150, または 20 ng/mL)で処理した。RT-qPCR分析の結果、100, 150, および 20 ng/mLのLPS処理後にLINC00707の発現が有意に増加した(図 2A, P < 0.01, n = 6)。これらの結果および先行報告27˒28に基づき、in vitro SCIモデルの構築に 10 ng/mLのLPSを選択した。対照群と比較して、LPS刺激したBV2細胞ではLINC0707の発現が有意に上昇していた。si-LINC0707のトランスフェクションにより、LINC0707の発現が効果的に抑制された(図 2B, P < 0.001, n = 6)。
続いて、LINC0707のノックダウンが炎症および酸化ストレスに及ぼす影響を評価した。LPS刺激により、IL-1β (Figure 2C, P < 0.01, n = 5)、IL-6 (Figure 2D, P < 0.01, n = 5)、およびTNF-α (Figure 2E, P < 0.001, n = 5)の分泌が有意に増加し、細胞内ROSレベル (Figure 2F, P < 0.001, n = 6) およびMDA含量 (Figure 2G, P < 0.01, n = 5) も有意に上昇した。対照的に、LPS刺激は抗酸化マーカーであるSOD (Figure 2H, P < 0.01, n = 6) およびGSH (Figure 2I, P < 0.001, n = 5) のレベルを有意に低下させた。LINC0707をサイレンシングすると、LPS刺激したBV2細胞において、前炎症性サイトカインの分泌と前酸化ストレスマーカーのレベルが有意に減少し、一方で抗酸化レベルが回復した。これらの知見は、LINC0707のノックダウンがBV2細胞におけるLPS誘発性の炎症反応および酸化ストレスを減弱させることを示している。
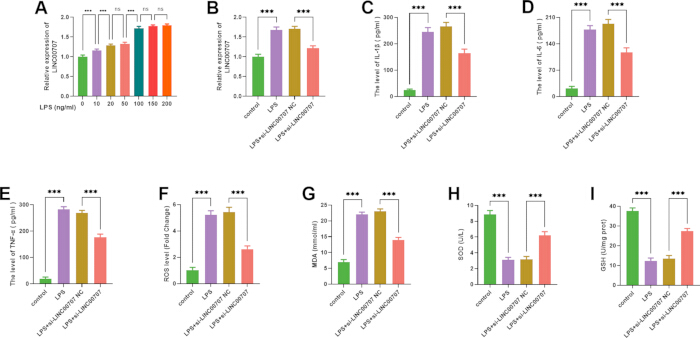
図2LPS刺激したBV2細胞における炎症および酸化ストレスに対するLINC0707ノックダウンの影響。 BV2細胞を10 ng/mLのリポポリサッカライド(LPS)で刺激した。A異なる濃度のLPSで処理したBV2細胞において、RT-qPCRによりLINC00707の発現量を測定した。BLINC0707の発現はLPS群で増加し、si-LINC0707の導入後は減少した。C–EELISAの結果、LPS群では前炎症性因子の分泌が増加し、LINC0707のノックダウン後は減少したことが示された。F–G活性酸素種(ROS)レベルおよびマロンジアルデヒド(MDA)含有量は、LPS群で増加し、LINC0707のノックダウン後に減少した。H–ILPS群ではスーパーオキシドディスムターゼ(SOD)活性および還元型グルタチオン(GSH)レベルが低下したが、LINC0707のノックダウン後に上昇した。 **P** < 0.01;ns:有意差なし。n ≥ 5。統計解析は、一元配置分散分析(one-way ANOVA)を行い、続いてTukeyのHSDポストホックテストを実施した。データは平均値 ± 標準偏差(SD)で示す。 この図の拡大版を表示するには、ここをクリックしてください。
LINC0707はmiR-145-5pの分子スポンジとして機能する
LINC0707の生物学的機能の根底にある分子メカニズムを調査するため、ENCORIデータベースを用いて潜在的な標的miRNAを予測した。バイオインフォマティクス解析により、LINC0707とmiR-145-5pの間に相補的な結合配列が同定された(図3A)。デュアルルシフェラーゼレポーターアッセイの結果、WT-LINC0707構築物におけるルシフェラーゼ活性は、miR-145-5pミミックによって有意に低下し、miR-145-5pインヒビターによって上昇した。対照的に、MUT-LINC0707構築物ではどちらの処理もルシフェラーゼ活性に影響を及ぼさず(図3B, P < 0.01, n = 4)、LINC0707とmiR-145-5pの直接的な相互作用が確認された。
RT-qPCR解析の結果、脊髄損傷(SCI)患者の血漿中miR-145-5p発現量は、健康な被験者と比較して有意に減少していた(図 3C, P < 0.01)。さらに、LINC0707の発現はmiR-145-5pの発現と負の相関を示し(図 3D, P < 0.01)、血漿中miR-145-5pレベルはSCIの重症度が増すにつれて段階的に減少した(図 3E, P < 0.01)。In vitroにおいて、LPS刺激したBV2細胞では対照細胞と比較してmiR-145-5pの発現が有意に低下したが、LINC0707をノックダウンさせることでmiR-145-5pの発現が回復した(図 3F, P < 0.01, n = 6)。これらの知見は、LINC0707がmiR-145-5pを捕捉することで競合的内因性RNA(ceRNA)として機能し、それによってSCIの病理学的進行過程におけるmiR-145-5pの発現を調節していることを示唆している。
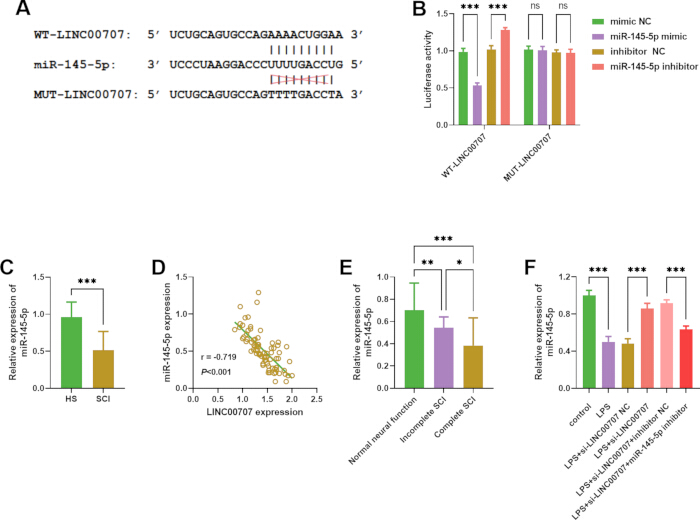
図3LINC0707はmiR-145-5pの分子スポンジとして機能する。(A) ENCORIデータベースにより、LINC0707とmiR-145-5pの間に相補的な結合配列が予測された。 (B) デュアルルシフェラーゼレポーターアッセイにより、LINC0707とmiR-145-5pの相互作用が確認された。統計解析には二元配置分散分析(two-way ANOVA)を用い、その後TukeyのHSD事後検定を行った。 (C) RT-qPCRにより、SCI患者において血漿中miR-145-5pの発現が低下していることが示された。統計解析には独立標本t検定を用いた。 (D) SCI患者において、LINC0707の発現はmiR-145-5pの発現と負の相関を示した。統計解析にはピアソン相関分析を用いた。 (E) ASIA分類に基づく脊髄損傷(SCI)の重症度が増加するにつれて、血漿中のmiR-145-5pの発現量は減少した。統計解析は、一元配置分散分析(one-way ANOVA)およびそれに続くTukeyのHSD事後検定を用いて行った。 (F) LPS群ではmiR-145-5pの発現が低下し、si-LINC00707の導入後は上昇し、miR-145-5pインヒビターの導入後は低下した。統計解析は 一元配置分散分析(one-way ANOVA)を行い、続いてTukeyのHSDポストホックテストを実施した。. P < 0.05, *P < 0.01、および **P < 0.01; ns:有意差なし。健康被験者、n = 30;SCI患者、n = 75;細胞実験、n ≥ 4。データは平均値 ± 標準偏差(SD)で示す。 この図の拡大版を表示するには、ここをクリックしてください。
miR-145-5pの抑制は、LPS刺激したBV2細胞における炎症および酸化ストレスを増強させた
miR-145-5pの役割を調べるため、BV2細胞にmiR-145-5p阻害剤または対応するネガティブコントロールをトランスフェクションした。その後、炎症性サイトカインおよび酸化ストレスマーカーのレベルを評価した。阻害剤ネガティブコントロール群と比較して、miR-145-5pの抑制により、IL-1β(Figure 4A, P < 0.01, n = 5)、IL-6(Figure 4B, P < 0.01, n = 5)、およびTNF-α(Figure 4C, P < 0.01, n = 5)の分泌が有意に増加した。さらに、細胞内ROSレベル(Figure 4D, P < 0.01, n = 6)およびMDA含有量(Figure 4E, P < 0.01, n = 5)が有意に増加した一方で、SOD(Figure 4F, P < 0.01, n = 6)およびGSH(Figure 4G, P < 0.01, n = 5)のレベルは有意に低下した。これらの結果は、miR-145-5pの抑制が、LINC0707のノックダウンによるBV2細胞でのLPS誘発性炎症および酸化ストレスに対する保護効果を消失させることを示している。
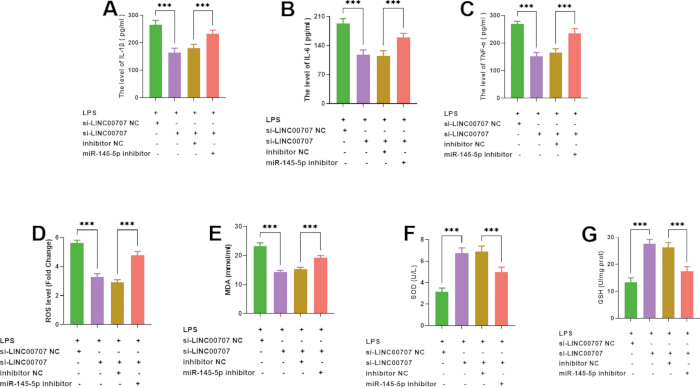
図4BV2細胞における炎症および酸化ストレスに対するmiR-145-5p抑制の効果。 (A–CELISAの結果、miR-145-5pインヒビターの導入後、前炎症性因子の分泌が有意に増加したことが示された。D–EmiR-145-5pインヒビターの導入後、活性酸素種(ROS)レベルおよびマロンジアルデヒド(MDA)含量が有意に増加した。F–GmiR-145-5pインヒビターの導入後、スーパーオキシドディスムターゼ(SOD)活性およびグルタチオン(GSH)レベルが有意に低下した。 **P < 0.01。n ≥ 5。統計解析は、一元配置分散分析(one-way ANOVA)の後、TukeyのHSD事後検定を用いて行った。データは平均値 ± 標準偏差(SD)で示す。 こちらの図の拡大版を表示するには、ここをクリックしてください。
TRAF6がmiR-145-5pの標的遺伝子として同定された
miRDBデータベースにより、TRAF6がmiR-145-5pの潜在的な標的であることが予測された。TRAF6の3′ UTRとmiR-145-5pとの間の相補的結合配列が同定された(図5A)。デュアルルシフェラーゼレポーターアッセイの結果、WT-TRAF6コンストラクトにおけるルシフェラーゼ活性は、miR-145-5p mimicによって有意に低下し、miR-145-5p inhibitorによって上昇した。対照的に、MUT-TRAF6コンストラクトではいずれの処理もルシフェラーゼ活性に影響を与えなかった(図5B, P < 0.01, n = 4)。これにより、TRAF6がmiR-145-5pの直接的な標的であることが確認された。
RT-qPCR解析により、SCI患者において血漿中のTRAF6 mRNA発現が有意に増加していることが示されました(図 5C, P < 0.001)。TRAF6の発現はmiR-145-5pの発現と負の相関を示し(図 5D, P < 0.01)、血漿中のTRAF6 mRNAレベルはSCIの重症度に伴って増加しました(図 5E, P < 0.01)。In vitroでは、LPS刺激したBV2細胞において、対照群と比較してTRAF6の発現が有意に増加しましたが、LINC0707のノックダウン後は有意に減少しました(図 5F, P < 0.01, n = 6)。逆に、miR-145-5pの阻害によりTRAF6の発現が回復しました(図 5G, P < 0.01, n = 6)。これらの知見は、LINC0707がmiR-145-5pシグナル伝達経路を介してTRAF6の発現を調節していることを示しています。
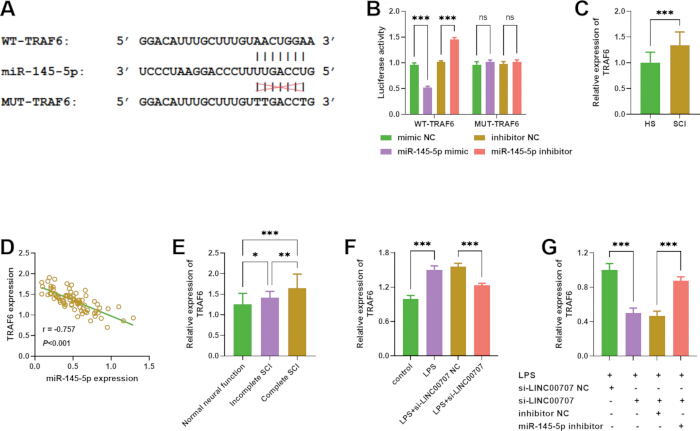
図5TRAF6はmiR-145-5pのターゲット遺伝子である。 (AmiRDBデータベースにより、TRAF6とmiR-145-5pの間に相補的な結合配列が存在することが予測された。Bデュアルルシフェラーゼレポーターアッセイにより、TRAF6とmiR-145-5pの標的関係を確認した。統計解析には、二元配置分散分析(two-way ANOVA)およびそれに続くTukeyのHSDポストホックテストを用いた。CRT-qPCRの結果、SCI患者において血漿中のTRAF6発現が上昇していることが示された。統計解析には独立標本t検定を用いた。DSCI患者において、TRAF6の発現は血漿中miR-145-5pの発現と負の相関を示した。統計解析にはピアソン相関分析を用いた。EASIA分類に基づく脊髄損傷(SCI)の重症度が増すにつれて、血漿中のTRAF6発現量が増加した。統計解析には一元配置分散分析(one-way ANOVA)を用い、続いてTukeyのHSDポストホック検定を行った。FTRAF6の発現は、LPS刺激したBV2細胞で増加し、LINC0707のノックダウンによって減少した。統計解析は、一元配置分散分析(one-way ANOVA)の後、TukeyのHSDポストホック検定を用いて行った。GmiR-145-5pの抑制に伴い、TRAF6の発現が増加した。統計解析には、一元配置分散分析(one-way ANOVA)およびそれに続くTukeyのHSDポストホックテストを用いた。 P < 0.05, *P < 0.01、および**P < 0.01; ns:有意差なし。健康被験者、n = 30;脊髄損傷(SCI)患者、n = 75;細胞実験、n ≥ 4。データは平均値 ± 標準偏差(SD)で示す。 この図の拡大版を表示するには、ここをクリックしてください。
データの可用性:
本研究で生成および/または解析されたデータセットは、Zenodoリポジトリ(https://doi.org/10.5281/zenodo.21470454)で利用可能です。
ディスカッション
脊髄損傷(SCI)は、脊髄を介した神経伝導の障害または完全な喪失をもたらす中枢神経系の深刻な外傷性疾患であり、生涯にわたる運動、感覚、および自律神経機能の障害とともに、深刻な生理学的および心理学的影響を引き起こします29˒30。これらの障害の重症度は、一般にSCIの範囲とともに増大します。本研究において、SCI患者では血漿中のLINC00707の発現が上昇しており、血中の炎症性サイトカインレベルと正の相関を示したことから、SCIに関連する炎症および酸化ストレスにおいてLINC00707が潜在的な役割を担っていることが示唆されました。これらの臨床所見に基づき、我々はSCIの病態形成という文脈において、LPS処理したBV2細胞における炎症および酸化ストレスに対するLINC00707の調節的役割をさらに調査しました。
LINC00707は、複数のシグナル伝達経路の制御を通じて、さまざまな生物学的プロセスに関与している31。細胞増殖、アポトーシス、遊走、浸潤の制御に加えて、LINC00707は炎症反応や酸化ストレスに関与することが示されている18˒32˒33。先行研究では、肺癌34、乳癌35、子宮頸癌36、および肝癌37においてLINC00707の発現上昇が報告されており、下流の分子標的を制御することで疾患の進行を促進させることが分かっている。さらに、LINC00707をサイレンシングすると、miR-103a-3pの制御を介して骨髄間葉性幹細胞の骨分化が促進される38。Zou et al.はさらに、LINC00707がMRC-5細胞におけるLPS誘導性の炎症反応を促進することを実証し、その炎症促進的な役割を裏付けた33。これらの知見と一致して、本研究では、LPS刺激したBV2細胞においてLINC00707の発現が有意に増加し、一方でLINC00707のノックダウンにより、前炎症性サイトカインの産生と酸化ストレスマーカーが減少したことを示した。これらの結果は、炎症および酸化ストレス反応におけるLINC00707の関与をさらに支持するものである。
LINC00707は、リウマチ性心疾患39、膀胱癌40、および骨分化41を含むいくつかの病理学的条件下において、miR-145-5pを調節することで競合的内在性RNA(ceRNA)として機能することが報告されています。先行研究により、miR-145-5pは炎症および酸化ストレスを抑制し42˒43、また血管新生および神経修復を促進することで44˒45、SCIにおいて保護効果を発揮することが示されています。これらの知見と一致して、本研究では、SCI患者およびLPS刺激したBV2細胞において血漿miR-145-5pの発現が低下していることが示されました。さらに、LINC00707がmiR-145-5pと直接相互作用することが確認され、LINC00707をサイレンシングすることでmiR-145-5pの発現が回復しました。さらに、miR-145-5pを抑制すると、LINC00707のノックダウンによる炎症反応および酸化ストレスへの保護効果が消失しました。これらの結果は、LINC00707がmiR-145-5pを介した炎症および酸化ストレス反応を調節することにより、SCIの進行に寄与している可能性を示唆しています。
先行研究により、TRAF6が中枢神経系の疾患において重要な役割を果たすことが示されている46。また、TRAF6の抑制がSCIを著しく改善させるという証拠も得られている47˒48。本研究では、さらにTRAF6がmiR-145-5pの直接的な標的であることを同定した。TRAF6の発現は、SCI患者およびLPS刺激したBV2細胞において有意に増加していた。加えて、LINC00707のノックダウンはTRAF6の発現を減少させたが、miR-145-5pの抑制はTRAF6の発現を回復させた。これらの知見は、SCIにおいてLINC00707がmiR-145-5pを介してTRAF6の発現を調節している可能性を示唆している。
本研究は、LINC00707がmiR-145-5p/TRAF6シグナル軸を調節することにより、SCIにおけるミクログリアを介した炎症反応および酸化ストレス傷害に影響を及ぼす可能性を示唆している。この知見は、LINC00707のノックダウンがPC-12細胞におけるLPS誘発性の炎症およびアポトーシスを軽減させたことを示したZhu et al.による先行報告と一致するが、彼らの研究における基礎的なメカニズムはmiR-30a-5p/Neurod1軸を介していた18。総合すると、これらの知見は、LINC00707が単一のmiRNA標的を通じてではなく、細胞型依存的な異なるmiRNAネットワークを通じて作用し、それによってSCIの病理学的プロセスに寄与している可能性を示唆している。
本研究にはいくつかの限界がある。第一に、TRAF6のmRNA発現のみを評価し、タンパク質発現は検討しなかった。LINC00707、miR-145-5p、およびTRAF6の間の調節関係をさらに詳細に明らかにするためには、今後の研究においてウェスタンブロット解析などのタンパク質レベルでの検証を行うべきである。第二に、本研究はLPS刺激したBV2ミクログリアモデルを用い、in vivoでの検証なしに細胞レベルのみで実施された。脊髄損傷(SCI)の微小環境は複雑であるため、今回の知見はin vivoにおける病態生理学的条件を完全に再現できていない可能性がある。LINC00707がSCIの動物モデルにおいて同様の炎症促進効果を発揮するかどうかは、依然として確認が必要である。今後の研究では、SCI動物モデルを構築し、LINC00707の調節的役割とその根底にある分子メカニズムを検証する予定である。第三に、我々の結果はLINC00707がmiR-145-5p/TRAF6シグナル伝達経路を介して炎症に影響を与えることを示唆しているが、LINC00707が特定のmiRNAのスポンジとしてのみ機能するのか、あるいは特定のタンパク質に直接結合するのかは不明なままである。これらのメカニズムの詳細を解明するには、さらなる研究が必要である。第四に、ROC曲線分析は単一の医療センターからのデータおよび比較的少数の患者に基づいて行われた。これによりバイアスが生じた可能性があり、得られた知見は予備的なものである。特定されたバイオマーカーの診断能を確認するには、より多くの患者を対象とした大規模な多施設共同研究が必要である。
本研究の結果は、LINC00707がSCIの潜在的な探索的血漿バイオマーカーおよび治療標的となる可能性を示唆しています。しかし、これらの知見を臨床応用へと繋げるには、さらにいくつかの段階が必要です。まず、血漿LINC00707の潜在的な識別能を、より大規模な多施設共同コホート、独立した検証コホート、および関連する外傷または炎症対照群において評価する必要があります。なお、SCIの診断には引き続き臨床評価および放射線学的検査が主要なアプローチとなります。次に、LINC00707を標的とした治療の潜在的な有効性と安全性を評価するために、動物モデルでの検討が必要です。最終的に、LINC00707/miR-145-5p/TRAF6シグナル伝達を調節することは、SCI患者における神経炎症および酸化ストレスを軽減するための新しいアプローチとなる可能性がありますが、基礎研究から臨床への橋渡しには依然として多大な取り組みが必要です。
全体として、SCI患者およびLPS刺激BV2細胞において、血漿中のLINC00707およびTRAF6の発現は増加し、一方でmiR-145-5pの発現は減少していた。LINC00707のノックダウンは、miR-145-5p/TRAF6シグナル伝達軸を介して炎症反応と酸化ストレスを軽減させており、この調節経路がSCIの潜在的な治療標的となる可能性が示唆された。
開示事項
著者らは、競合する利益がないことを宣言します。
謝辞
本研究は、河北省医学研究プロジェクト(助成金番号 20251479)の支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1.5 mL マイクロ遠心チューブ | KIRGEN | KG2211 | ポリプロピレン製スナップキャップチューブ、DNase/RNaseフリー、非発熱性、最大遠心力 20,000 x g × g、RNA/タンパク質サンプルの保存および遠心分離用。 |
| 6ウェル細胞培養プレート | Corning | 3516 | TC処理済みポリスチレンプレート、平底、滅菌済み、個包装。ウェル容量16.8 mL、培養面積9.5 cm² |
| 採血針 | Becton, Dickinson and Company | 367283 | BD Vacutainer 使い捨て採血針。両端に針がある設計で、一方の端を静脈穿刺に使用し、もう一方の端をホルダーおよび真空採血管に接続して複数本の採血管での採血を行う。挿入時の患者の不快感を最小限に抑えるため、シリコンコーティングが施されている。 |
| 採血管 | Becton, Dickinson and Company | 367605 | BD Vacutainer真空採血管。ストッパーの色分けにより、特定の検査項目に応じたさまざまな添加剤が区別されています。 |
| BV2不死化マウスミクログリア細胞株 | 中国科学院上海生物技术研究所細胞資源センター | RRID: CVCL_0182 | ミクログリア特異的マーカー(Iba1、CD11b、F4/80)を安定的に発現する不死化マウスミクログリア細胞株。LPS刺激により、BV2細胞は前炎症性サイトカイン(IL-1β, IL-6, TNF-αα)および細胞内ROS、MDAを蓄積させ、脊髄損傷後の生体内におけるミクログリアの炎症性活性化を模倣させる。細胞は、10% FBSおよび1を含む高グルコースDMEMで培養する。× ペニシリン・ストレプトマイシン、~で維持した 37 °C 5% CO含有2 加湿インキュベーター;70%に達した時点で継代–過剰な活性化を避けるため、コンフルエンス80%とする。 |
| 細胞マロンジアルデヒド(MDA)測定キット | 南京建誠生物工程研究所 | A003-4-2 | 脂質過酸化のマーカーである細胞内マロンジアルデヒドを定量的に検出するための、マイクロプレートベースの比色法キット。MDAは加熱条件下でチオバルビツール酸(TBA)と反応して赤色の付加体を形成し、その吸光度をマイクロプレート分光光度計を用いて532 nmで検出する。細胞溶解液サンプルに最適化されており、96ウェルによるハイスループット操作が可能で、直線的な定量範囲はミクログリアにおける低度から中程度の脂質酸化レベルをカバーしている。 |
| CO2 インキュベーター | Thermo Scientific | 3111 | 加湿済みウォータージャケット付きCO22 内部容量184 L、IR CO2センサー搭載インキュベーター2 センサー、微生物汚染を最小限に抑えるためのHEPA空気ろ過システム。以下の条件下で安定した培養環境を維持します。 37 °C, 5% CO22 および、長期的な付着細胞培養のための飽和湿度。 |
| デュアルルシフェラーゼレポーター遺伝子アッセイキット | Beyotime Biotechnology | RG028 | このデュアルルシフェラーゼキットにより、細胞溶解液中のホタルルシフェラーゼおよびRenillaルシフェラーゼの連続的な定量検出が可能です。まず、ルシフェリン基質を用いてホタルルシフェラーゼのシグナルを測定し、その後に添加するRenilla検出試薬に含まれる強力なクエンチャーが、[前段階のシグナルを]消去します。 >99.9%のホタルルシフェラーゼ残留発光を抑制することで、セレンテラジン基質を用いた純粋なRenilla信号の読み取りを保証します。本キットには、96ウェルマイクロプレートルミノメーターに対応した、接着細胞溶解用の専用細胞溶解バッファーが含まれています。ホタルルシフェラーゼ用試薬は、そのまま使用可能な調製済み液体です。ホタルルシフェラーゼとRenillaの発光値を順次記録し、正規化した相対ルシフェラーゼ活性(Firefly/Renilla比)を算出することで、ceRNAターゲットの検証を行います。 |
| ダルベッコ改変イーグル培地 | Gibco | 11995065 | DMEMは、多くの異なる哺乳類細胞の増殖を維持するために広く用いられている基礎培地です。この組成には、高濃度グルコース、L-グルタミン、フェノールレッド、およびピルビン酸ナトリウムが含まれています。通常、10%胎児ウシ血清(FBS)などの添加剤を補う必要があり、5–10% CO2 生理学的pHを維持するための環境。 |
| ウシ胎児血清 | エブリグリーン | 13011-8611 | プレミアムグレード FBS、低エンドトキシン、マイコプラズマフリー & バクテリオファージ不含であり、細胞増殖を維持するためDMEMに10% (v/v) の割合で添加した。 |
| GraphPad Prism バージョン 9 | GraphPad Software(米国カリフォルニア州サンディエゴ) | 該当なし | in vitro細胞実験データに特化した科学的グラフ作成および統計解析ソフトウェア。すべてのqPCR、ELISA、酸化ストレス、デュアルルシフェラーゼ発光の吸収値の生データをPrism 9に取り込み、正規性の検証、パラメトリック/ノンパラメトリックな群間比較を行い、すべての定量図を作成し、平均値を算出した。 ± SD、正確なP値および95%信頼区間(CI)を算出し、学術誌の出版基準を満たす高解像度(300 dpi)の図をエクスポートした。すべてのグラフの元の.prismプロジェクトソースファイルは、規定通り公開データリポジトリに保存されている。 |
| IBM SPSS Statistics Version 26.0 | IBM Corporation(米国ニューヨーク州アーモンク) | 該当なし | 臨床サンプルのベースラインデータの分類、正規性検定(シャピロ-ウィルク検定)、独立標本t検定(対応のないt検定)、およびTukey法を用いた一元配置分散分析(one-way ANOVA)に使用される包括的な統計ソフトウェアーパッケージ’多重比較補正、マン・ホイットニーのU非パラメトリック検定、およびすべてのヒトおよび細胞の定量データセットに対する正確なP値と95%信頼区間の算出を行った。すべての臨床患者のデモグラフィックデータおよび検査データは、本プラットフォーム内で処理および解析された。 |
| IL-1β SimpleStep ELISA キット | Abcam | ab255730 | この1回洗浄のサンドイッチ比色ELISAキットは、独自のSimpleStepテクノロジーを採用しており、全検出工程を90分以内に完了します。本キットは、ラットインターロイキン-1を定量的に測定します。β 細胞培養上清、血清、EDTA/クエン酸/ヘパリン血漿サンプルにおいて。検出感度は26.58 pg/mLに達し、定量直線性は54.69–3500 pg/mL。コーティング済みの分割可能な8ウェルストリップマイクロプレートが付属しています。マイクロプレートリーダーを用いて450 nmで吸光度信号を検出し、IL-1を算出します。β 濃度 |
| IL-6 SimpleStep ELISAキット | Abcam | ab234570 | 細胞培養上清、血清、クエン酸/EDTA/ヘパリン血漿サンプル中のラットインターロイキン-6(IL-6)を定量的に検出するために最適化された、サンドイッチ比色法SimpleStep ELISAキット。1ステップのインキュベーションと単回洗浄のワークフローを採用しており、総アッセイ時間を90分に短縮し、検出感度は43 pg/mL、直線的な定量範囲は125 pg/mLから8000 pg/mLである。あらかじめコーティングされた分離可能な8ウェルストリップマイクロプレートが付属しており、最終的なIL-6濃度の算出には、マイクロプレート分光光度計を用いて450 nmでの吸光度を測定する。 |
| LightCycler マルチウェルプレート 96、ホワイト | Roche LifeScience, Switzerland | 4729692001 | LightCycler 96 リアルタイムPCR装置に特化して最適化された、ハーフスカート付きの白色ポリプロピレン製96ウェル反応プレート。白色のウェル壁により背景蛍光の干渉が低減され、信号反射が強化されるため、低発現転写物の検出感度が向上します。均一な薄壁設計により、すべてのウェルで一貫した熱伝導性が保証されており、10から(以下略)の反応量に対応しています。 50 μL. RNA由来cDNA増幅アッセイ向けに、DNase/RNaseフリーおよびパイロジェンフリーであること。 |
| LipofectamineTM 3000 トランスフェクション試薬 | Thermo Fisher Scientific | L3000015 | P3000エンハンサーと併用する脂質ナノ粒子トランスフェクション試薬により、細胞毒性を低く抑えつつ、BV2ミクログリアにおいて高効率なsiRNAおよびプラスミドのトランスフェクションが可能になります。 |
| lnRcute lncRNA第一鎖cDNA合成キット | TIANGEN | KR202-02 | 本キットは、低発現でGC含有量が変動し、複雑な二次構造を持つ長鎖非翻訳RNA(lncRNA)の逆転写に特化して最適化されています。逆転写前のゲノムDNA混入を排除するための独立したgDNA除去バッファーと、全長lncRNAテンプレートを濃縮するための特殊なlnR-RTプライマーミックスが含まれています。改変型逆転写酵素により、10 ngから2 ngの範囲の全RNA入力から、長鎖cDNAを効率的に合成することが可能です。 |
| lnRcute lncRNA qPCR検出キット (SYBR Green) | TIANGEN | FP402 | lncRNA定量のためのSYBR Greenベースの専用定量PCRプレミックス。抗体介在性のホットスタートDNAポリメラーゼにより高い増幅特異性を確保し、H-competitor成分が高GC含有量のlncRNAテンプレートによる二次構造の干渉を緩和します。lnRcute lncRNA逆転写キットを用いて合成されたcDNAに対応しており、低発現のlncRNAの相対定量解析に適しています。 |
| miR-145-5p オリゴヌクレオチド | Generalbiol (中国、武漢) | 該当なし | BV2細胞におけるmiR-145-5p活性の調節に使用した合成miR-145-5pミミック、インヒビター、および対応するネガティブコントロールオリゴヌクレオチド。発現解析、炎症解析、酸化ストレス解析、およびデュアルルシフェラーゼレポーターアッセイに使用。 |
| miRcute Plus miRNA 第一鎖 cDNA 合成キット | TIANGEN | KR211-02 | ポリアデニル化(poly (A)-tailing)と逆転写を1本のチューブで反応させる複合反応を採用し、実験ワークフローを簡略化しています。酵素ミックスには、大腸菌(E. coli)由来のポリ(A)ポリメラーゼ、RNase H欠損逆転写酵素、およびRNase阻害剤が含まれており、成熟した一本鎖miRNAを特異的に標的とするため、ヘアピン構造を持つpre-miRNAによる増幅妨害を回避します。細胞溶解液、血漿、組織サンプルから抽出したmiRNAに適しています。 |
| miRcute Plus miRNA qPCR 検出キット (SYBR Green) | TIANGEN | FP411 | 成熟miRNAの定量用に最適化されたSYBR Greenプレミックスであり、miRcute逆転写産物と完全に適合します。バッファーシステムにより、短いmiRNAアンプリコンのプライマーアニーリング効率が向上し、安定した蛍光信号が得られるため、低発現のmiRNAに対しても高い検出感度を実現します。内部標準によるノーマライゼーションには、一般的にU6 snRNAが使用されます。 |
| ペニシリン-ストレプトマイシン溶液 (100×) | Beyotime Biotechnology | C0222 | 10,000 U/mLのペニシリンおよび10 mg/mLのストレプトマイシンを含む、滅菌フィルターろ過済み混合液。細菌汚染を防ぐため、培地で1:100に希釈して使用する。 |
| 希釈液入り活性酸素種アッセイキット | Beyotime Biotechnology | S0034M | 本キットは、DCFH-DA蛍光プローブを用いて細胞内活性酸素種(ROS)を定量します。DCFH-DAは細胞膜を透過し、細胞内エステラーゼによってDCFHに加水分解され、それがROSにより酸化されることで蛍光を発するDCFを生成します。96ウェルマイクロプレートおよび蛍光マイクロプレートリーダーに対応しており、ハイスループット検出(励起波長 Ex = 488 nm、蛍光波長 Em = 525 nm)が可能です。専用のプローブ希釈液とRosup陽性コントロール試薬が付属しており、染色信号を安定させることができるため、細胞溶解を行うことなく、接着性のBV2ミクログリアにおける酸化ストレス検出に適しています。 |
| 還元型グルタチオン(GSH)測定キット | 南京建誠生物工程研究所 | A006-1-2 | 主要な細胞内抗酸化物質である還元型グルタチオン(GSH)を検出するための比色法マイクロプレートキット。GSHがジチオニトロ安息香酸(DTNB)と反応して黄色い発色生成物を生成し、その吸光度をマイクロプレートリーダーを用いて405 nmで検出する。本キットは、標準的なチューブプロトコルを高スループットな96ウェルマイクロプレート検出に適応させたものであり、細胞溶解液の抗酸化分析に使用される。 |
| si-LINC00707 | GenePharma (中国、上海) | 該当なし | BV2細胞におけるLINC00707の発現を抑制するために設計された小干渉RNA。LINC00707のノックダウンが炎症反応、酸化ストレス、miR-145-5pの発現、およびTRAF6の発現に及ぼす影響を評価するための機能喪失実験に使用される。 |
| si-LINC00707 NC | GenePharma (中国、上海) | 該当なし | si-LINC00707導入のネガティブコントロールとして使用される、非標的型小分子干渉RNA。導入操作およびsiRNA曝露による非特異的な影響を制御するために使用される。 |
| SuperReal PreMix Plus (SYBR Green) | TIANGEN | 4992777 | mRNAの相対定量のためのユニバーサルSYBR Green定量PCRプレミックス。ホットスタートTaqポリメラーゼ、dNTPs、SYBR Green I、および蛍光標準化のためのROXリファレンス染料を含有している。非特異的増幅が少なく、増幅効率が安定しており、mRNA標的遺伝子(TRAF6、GAPDHなど)の定量に広く適用される。 |
| Thermo ScientificTM SorvallTM ST 8 小型ベンチトップ遠心機 | Thermo Scientific | 75200709 | 臨床検査室向けの定番の選択肢であり、最大24検体まで処理可能です。 × 一度に5/7 mLの採血管を処理できます。Rシリーズは冷却機能付きのモデルであり、低温遠心分離を必要とするサンプルの保護に最適です。 |
| TIANScript II 第一鎖cDNA合成キット | TIANGEN | GKR107-02 | 最大12 kbまでの長鎖cDNAを合成する、一般的なmRNA逆転写向けに設計されています。柔軟なプライミング戦略を可能にするため、Oligo (dT) 15プライマーとランダムヘキサマープライマーの両方を備えています。改変型M-MLV逆転写酵素は、GC含量の高い配列や複雑な二次構造を持つmRNAを効率的に読み取ることができ、その後のmRNA qPCR増幅に対しても幅広い互換性を有しています。 |
| TNF-α SimpleStep ELISAキット | Abcam | ab236712 | ラット腫瘍壊死因子(TNF)の定量検出に最適化された、迅速なシングルウォッシュSimpleStepサンドイッチELISAキットα (TNF-α)を、細胞培養上清、血清および各種血漿検体において測定します。総アッセイ時間は90分で、1.04 pg/mLという超高感度を備え、直線的な検出範囲は15.63 pg/mLから1000 pg/mLまでです。取り外し可能な8×12ウェル事前コーティングプレート。最終的なTNF-αのOD値を450 nmで測定する。α 定量計算 |
| 総スーパーオキシドディスムターゼ(T-SOD)アッセイキット | 南京建誠生物工程研究所 | A001-3-2 | 総SOD酵素活性を検出するためのWST-1発色マイクロプレートキット。SODはスーパーオキシドアニオンラジカルを消去し、WST-1の還元反応を抑制する。活性算出のため、マイクロプレートリーダーを用いて450 nmで吸光度を測定する。細胞ホモジネート、血清、組織サンプルに適しており、安定した発色と高い再現性により抗酸化能の評価が可能である。 |
| TRIzol試薬 | Thermo Fisher Scientific | 15596018 | 培養ミクログリア細胞から全RNAをワンステップで単離するための単相性フェノール・グアニジンイソチオシアネート試薬;同一サンプルからDNAおよびタンパク質を同時に抽出。 |
参考文献
- Trueblood CT, Singh A, Cusimano MA, Hou S. Autonomic dysreflexia in spinal cord injury: mechanisms and prospective therapeutic targets. Neuroscientist. 2024;30(5):597-611.
- Anderson MA, Squair JW, Gautier M, Hutson TH, Kathe C, Barraud Q, et al. Natural and targeted circuit reorganization after spinal cord injury. Nat Neurosci. 2022;25(12):1584-96.
- Liu Y, Yang X, He Z, Li J, Li Y, Wu Y, et al. Spinal cord injury: global burden from 1990 to 2019 and projections up to 2030 using Bayesian age-period-cohort analysis. Front Neurol. 2023;14:1304153. doi:10.3389/fneur.2023.1304153.
- Sekhon LH, Fehlings MG. Epidemiology, demographics, and pathophysiology of acute spinal cord injury. Spine (Phila Pa 1976). 2001;26(24 Suppl):S2-12.
- Chan BC, Cadarette SM, Wodchis WP, Krahn MD, Mittmann N. The lifetime cost of spinal cord injury in Ontario, Canada: a population-based study from the perspective of the public health care payer. J Spinal Cord Med. 2019;42(2):184-93.
- Van Broeckhoven J, Sommer D, Dooley D, Hendrix S, Franssen A. Macrophage phagocytosis after spinal cord injury: when friends become foes. Brain. 2021;144(10):2933-45.
- Xiao S, Zhong N, Yang Q, Li A, Tong W, Zhang Y, et al. Aucubin promoted neuron functional recovery by suppressing inflammation and neuronal apoptosis in a spinal cord injury model. Int Immunopharmacol. 2022;111:109163. doi:10.1016/j.intimp.2022.109163.
- Li F, Wang Y, Zheng K. Microglial mitophagy integrates the microbiota-gut-brain axis to restrain neuroinflammation during neurotropic herpesvirus infection. Autophagy. 2023;19(2):734-6.
- Beattie MS. Inflammation and apoptosis: linked therapeutic targets in spinal cord injury. Trends Mol Med. 2004;10(12):580-3.
- Brennan FH, Li Y, Wang C, Ma A, Guo Q, Li Y, et al. Microglia coordinate cellular interactions during spinal cord repair in mice. Nat Commun. 2022;13(1):4096. doi:10.1038/s41467-022-31797-0.
- Kwon HS, Koh SH. Neuroinflammation in neurodegenerative disorders: the roles of microglia and astrocytes. Transl Neurodegener. 2020;9(1):42. doi:10.1186/s40035-020-00221-2.
- Zhong J, Qiu X, Yu Q, Chen H, Yan C. A novel polysaccharide from Acorus tatarinowii protects against LPS-induced neuroinflammation and neurotoxicity by inhibiting TLR4-mediated MyD88/NF-κB and PI3K/Akt signaling pathways. Int J Biol Macromol. 2020;163:464-75.
- Han X, Xu T, Fang Q, Zhang H, Yue L, Hu G, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via .the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010. doi:10.1016/j.redox.2021.102010.
- Simpson DSA, Oliver PL. ROS generation in microglia: understanding oxidative stress and inflammation in neurodegenerative disease. Antioxidants (Basel). 2020;9(8):743. doi:10.3390/antiox9080743.
- Onoguchi-Mizutani R, Akimitsu N. Long noncoding RNA and phase separation in cellular stress response. J Biochem. 2022;171(3):269-76.
- Zhang Y. LncRNA-encoded peptides in cancer. J Hematol Oncol. 2024;17(1):66. doi:10.1186/s13045-024-01591-0.
- Hu W, Zhou J, Jiang Y, Bao Z, Hu X. Silencing of LINC00707 alleviates brain injury by targeting miR-30a-5p to regulate microglia inflammation and apoptosis. Neurochem Res. 2024;49(1):222-33.
- Zhu S, Zhou Z, Li Z, Shao J, Jiao G, Huang YE, et al. Suppression of LINC00707 alleviates lipopolysaccharide-induced inflammation and apoptosis in PC-12 cells by regulating miR-30a-5p/Neurod1. Biosci Biotechnol Biochem. 2019;83(11):2049-56.
- Long J, Lan W, Shen B, Liao F, Cai H, Li J, et al. LncRNA-miRNA-mRNA network in schizophrenia. J Mol Neurosci. 2025;75(3):104.
- De Gasperi R, Graham ZA, Harlow LM, Bauman WA, Qin W, Cardozo CP. The signature of microRNA dysregulation in muscle paralyzed by spinal cord injury includes downregulation of microRNAs that target myostatin signaling. PLoS One. 2016;11(12):e0166189.
- Lin Y, Liu L, Lin Y, Yang R, Liao S, Xu M, et al. MiR-145 alleviates sepsis-induced inflammatory responses and organ injury by targeting ADAM17. Front Biosci (Landmark Ed). 2024;29(1):44. doi:10.31083/j.fbl2901044.
- Wang C, Gu L, Yang Z, Su J, Wen X. Mume Fructus total flavonoids modulate miR-145-3p expression to inhibit lipopolysaccharide-induced inflammatory cytokine production in BV2 cells. Comb Chem High Throughput Screen. 2026;29. doi:http://dx.doi.org/10.2174/0113862073447531260414195911
- Chen S, Wei J, Huang L, Feng B, Guo W. MiRNA-194-5p inhibits inflammatory response after spinal cord injury via .regulating TRAF6. Minerva Med. 2020;111(6):603-6.
- Lu Y, Jiang BC, Cao DL, Zhang ZJ, Zhang X, Ji RR, et al. TRAF6 upregulation in spinal astrocytes maintains neuropathic pain by integrating TNF-α and IL-1β signaling. Pain. 2014;155(12):2618-29.
- Zhao Y, Li T, Zhang L, Yang J, Zhao F, Wang Y, et al. TRAF6 promotes spinal microglial M1 polarization to aggravate neuropathic pain by activating the c-JUN/NF-κB signaling pathway. Cell Biol Toxicol. 2024;40(1):54. doi:10.1007/s10565-024-09900-6.
- Kirshblum SC, Memmo P, Kim N, Campagnolo D, Millis S, American Spinal Injury Association. Comparison of the revised 2000 American Spinal Injury Association classification standards with the 1996 guidelines. Am J Phys Med Rehabil. 2002;81(7):502-5.
- Xue MT, Sheng WJ, Song X, Shi YJ, Geng ZJ, Shen L, et al. Atractylenolide III ameliorates spinal cord injury in rats by modulating microglial/macrophage polarization. CNS Neurosci Ther. 2022;28(7):1059-71.
- Zhang H, Xiang L, Yuan H, Yu H. PTPRO inhibition ameliorates spinal cord injury through shifting microglial M1/M2 polarization via .the NF-κB/STAT6 signaling pathway. Biochim Biophys Acta Mol Basis Dis. 2024;1870(5):167141. doi:10.1016/j.bbadis.2024.167141.
- Eli I, Lerner DP, Ghogawala Z. Acute traumatic spinal cord injury. Neurol Clin. 2021;39(2):471-88.
- Brouwers E, van der Meent H, Curt A, Maier DD, Abel RF, Weidner N, et al. Recovery after traumatic thoracic and lumbar spinal cord injury: the neurological level of injury matters. Spinal Cord. 2020;58(9):980-7.
- Yao Q, Li Z, Chen D. Review of LINC00707: a novel lncRNA and promising biomarker for human diseases. Front Cell Dev Biol. 2022;10:813963. doi:10.3389/fcell.2022.813963.
- Chen L, Chen Y, Huang J, Zhang J. LncRNA LINC00707 serves as a sponge of miR-382-5p to alleviate lipopolysaccharide-induced WI-38 cell injury through upregulating NKAP in infantile pneumonia. Autoimmunity. 2022;55(5):328-38.
- Zou X, Gao C, Shang R, Chen H, Wang B. Knockdown of lncRNA LINC00707 alleviates LPS-induced injury in MRC-5 cells by acting as a ceRNA of miR-223-5p. Biosci Biotechnol Biochem. 2021;85(2):315-23.
- Ma T, Ma H, Zou Z, He X, Liu Y, Shuai Y, et al. The long intergenic noncoding RNA 00707 promotes lung adenocarcinoma cell proliferation and migration by regulating Cdc42. Cell Physiol Biochem. 2018;45(4):1566-80.
- Li H, Liu Q, Hu Y, Yin C, Zhang Y, Gao P. LINC00707 regulates autophagy and promotes the progression of triple-negative breast cancer by activation of the PI3K/AKT/mTOR pathway. Cell Death Discov. 2024;10(1):138. doi:10.1038/s41420-024-01906-7.
- Fang F, Guo C, Zheng W, Li Q. LINC00707 promotes cell proliferation in cervical cancer via .the miR-374c-5p/SDC4 axis. Biomed Res Int. 2022;2022:5793912. doi:10.1155/2022/5793912.
- Wei M, Lu L, Ma J, Luo Z, Tan X, Wang J. LINC00707 impairs natural killer cell antitumor activity in hepatocellular carcinoma by decreasing YTHDF2 stability. J Cell Mol Med. 2024;28(5):e18106.
- Liu J, Wu M, Feng G, Li R, Wang Y, Jiao J. Downregulation of LINC00707 promotes osteogenic differentiation of human bone marrow-derived mesenchymal stem cells by regulating DKK1 via .targeting miR-103a-3p. Int J Mol Med. 2020;46(3):1029-38.
- Zhao W, Huang G, Ye J. LINC00707 inhibits myocardial fibrosis and immune disorder in rheumatic heart disease by regulating miR-145-5p/S1PR1. Biotechnol Genet Eng Rev. 2024;40(4):3073-86.
- Gao T, Ji Y. Long noncoding RNA LINC00707 accelerates tumorigenesis and progression of bladder cancer via .targeting the miR-145/CDCA3 regulatory loop. Urol Int. 2021;105(9–10):891-905.
- Cai WL, Zeng W, Liu HH, Zhu BY, Liu JL, Liu Y. LncRNA LINC00707 promotes osteogenic differentiation of hBMSCs through the Wnt/β-catenin pathway activated by the LINC00707/miR-145/LRP5 axis. Eur Rev Med Pharmacol Sci. 2020;24(1):18-28.
- Jiang L, Wei ZC, Xu LL, Yu SY, Li C. Inhibition of miR-145-5p reduces spinal cord injury-induced inflammatory and oxidative stress responses via .affecting the Nurr1-TNF-α signaling axis. Cell Biochem Biophys. 2021;79(4):791-9.
- Jiang Z, Zhang J. Mesenchymal stem cell-derived exosomes containing miR-145-5p reduce inflammation in spinal cord injury by regulating the TLR4/NF-κB signaling pathway. Cell Cycle. 2021;20(10):993-1009.
- Park AJ, Fandl HK, Garcia VP, Coombs GB, DeSouza NM, Greiner JJ, et al. Differential expression of vascular-related microRNA in circulating endothelial microvesicles in adults with spinal cord injury: a pilot study. Top Spinal Cord Inj Rehabil. 2023;29(2):34-42. doi:10.46292/sci22-00032.
- Gao C, Yin F, Li R, Ruan Q, Meng C, Zhao K, et al. MicroRNA-145-mediated KDM6A downregulation enhances neural repair after spinal cord injury via .the NOTCH2/Abcb1a axis. Oxid Med Cell Longev. 2021;2021:2580619. doi:10.1155/2021/2580619.
- Dou Y, Tian X, Zhang J, Wang Z, Chen G. Roles of TRAF6 in the central nervous system. Curr Neuropharmacol. 2018;16(9):1306-13.
- Huang T, Jia Z, Fang L, Cheng Z, Qian J, Xiong F, et al. Extracellular vesicle-derived miR-511-3p from hypoxia-preconditioned adipose mesenchymal stem cells ameliorates spinal cord injury through the TRAF6/S1P axis. Brain Res Bull. 2022;180:73-85.
- Wei J, Wang J, Zhou Y, Yan S, Li K, Lin H. MicroRNA-146a contributes to SCI recovery via .regulating TRAF6 and IRAK1 expression. Biomed Res Int. 2016;2016:4013487.