このプロトコルでは、Styphnolobium japonicumの芽抽出液におけるルチンとケルセチンの標的HPLC定量法について記述し、ミクログリア、ミクログリア-ニューロン共培養、および一酸化窒素欠乏性高血圧モデルを用いて当該抽出液を評価します。このワークフローは、抽出液の調製から、神経炎症、ニューロンストレス、血圧、および視床下部室傍核のエンドポイントまでを連携させています。
研究記事
HPLCで定量したStyphnolobium japonicum抽出物は、L-NAME投与ラットにおけるミクログリアの炎症および高血圧を軽減する
* These authors contributed equally
この記事について
サマリー
要約
視床下部室傍核(PVN)における神経炎症は、交感神経の興奮および高血圧に寄与する可能性があります。我々は、標的高効率液体クロマトグラフィー(HPLC)によりルチンおよびケルセチンの量を定量化したStyphnolobium japonicum(ク道端、旧称Sophora japonica)の蕾抽出物(SJBE)を評価しました。この抽出物を、アンジオテンシン II(Ang II)で刺激したBV-2ミクログリア、BV-2/mHypoA-2/10可溶性因子共培養系、in vitro高ナトリウム神経ストレス条件下、およびNω-ニトロ-L-アルギニンメチルエステル(L-NAME)誘発性一酸化窒素欠乏性高血圧ラットを用いて試験しました。細胞毒性のない作用濃度において、SJBEはBV-2細胞における炎症および酸化ストレスの指標を減少させ、アンジオテンシン変換酵素2(ACE2)、Mas受容体(MasR)、およびアンジオテンシン-(1-7) [Ang-(1-7)] マーカーの上昇と関連していました。共培養において、SJBEは炎症伝播と神経ストレスを減少させました。SJBEの経口投与は、テールカフ法による血圧測定値を低下させ、PVNにおけるACE2/MasRおよびAng-(1-7)の上昇、Iba-1およびc-Fos染色の低下、ならびに血中ノルエピネフリンおよびサイトカインの低下と関連していました。MLN-4760は、ACE2の関与をin vitroで機能的に支持しましたが、in vivoでの経路遮断や脳内曝露の薬物動態試験は行われませんでした。したがって、これらの結果は、SJBE投与、神経炎症シグナルの減少、および血圧低下の間の関連性を支持するものですが、中枢経路の因果関係を立証するものではありません。
概要
植物抽出物は、血管疾患および神経免疫疾患の多成分モジュレーターとして研究が進んでいます。それらの解釈は、明確な由来の特定、分析範囲、および化学的な一貫性に依存します。Styphnolobium japonicum (L.) Schott(歴史的にSophora japonica L.として知られる)からは、乾燥した花蕾材料であるFlos Sophorae Immaturus(槐米:Huai Mi)が得られます1,2。ルチンはこの材料の主要な品質指標であり、他にも生理活性を持つフラボノイドが含まれています3。抽出研究では、ルチンおよび関連フラボノイドを回収するための従来のアプローチおよび強化アプローチが評価されてきました4,5,6。また、最近の研究では S. japonicum のより環境負荷の低いルチン抽出ワークフローについても述べられています7。ターゲットHPLCは、定義済みの指標成分の効率的な定量を可能にしますが、より広範な化学的一貫性やロット間の一貫性を評価するには、クロマトグラフィーフィンガープリント法または多成分プロファイリングが必要です。したがって、本研究におけるルチンおよびクエルセチンの測定値は、完全な植物化学的プロファイルとして解釈されるべきではありません。
ルチンとクエルセチンは、神経血管炎症におけるS. japonicum由来抽出液の研究を行う上での妥当な薬理学的根拠となります。ルチンおよびS. japonicumの花の調製物は、NF-κB関連反応や神経炎症を含む炎症性シグナルの抑制に関連していることが報告されています8。さらに、実験モデルにおいて、ルチンは神経炎症およびNF-κB関連の組織損傷の軽減に関連していることが示されています9。また、クエルセチンは心血管系の生物活性および炎症・酸化還元バランスの改善に関連しています10,11。ミクログリアモデルにおいて、クエルセチンは活性化、酸化ストレス、およびToll様受容体4(TLR4)関連の炎症性シグナルを抑制することができます12,13。
高血圧は単なる血管疾患ではありません。中枢性の炎症回路もまた、交感神経駆動を維持させることがあります。視床下部室傍核(PVN)は、心血管緊張を調節する神経内分泌および自律神経信号を統合します。脳およびPVNのミクログリア由来サイトカインは神経原性高血圧に関連していることが示されており14、PVNのミクログリアは血行動態の乱れを感知し、交感神経興奮を促進させることができます15。これらの観察結果から、PVN内におけるミクログリアとニューロンのコミュニケーションは、神経原性の血圧上昇を抑制することを目的とした介入の重要な標的になると考えられます16。
レニン・アンジオテンシン系のACE2/Ang-(1-7)/Mas受容体(MasR)経路は、この中心的なネットワーク内において一つの保護的な経路を構成している。17,18PVNにおけるACE2の過剰発現は、アンジオテンシンII誘発性高血圧を軽減させ、神経炎症の抑制に関連している。19PVNにおける内因性Ang-(1-7)シグナリングもまた、交感神経流出を調節している。20Ang IIは視床下部室傍核(PVN)のミクログリアにおいて、アンジオテンシンII型1受容体(AT1)/TLR4関連のレドックス経路を活性化させ、レニン-アンジオテンシン系によるストレスと神経炎症を的に結びつけることができる。21高ナトリウム細胞条件は、単に〜としてのみ使用された。 in vitro ストレス負荷であり、L-NAME動物モデルの代用ではない。〜かどうか *S. japonicum* 標的HPLCによりルチンおよびクェルセチンの定量が行われた桑葉抽出物(SJBE)が、このミクログリア-ニューロン界面においてミクログリアの炎症を抑制できるかどうかは未解明である。本ワークフローでは、標的マーカーの定量と、ミクログリアおよび可溶性因子の共培養、ならびにL-NAME誘発性一酸化窒素欠乏性高血圧モデルを組み合わせている。これは、規定のSJBE調製の仮説に基づいた比較を目的としたものであり、包括的な植物化学的プロファイリングや脳への曝露を実証することを目的としたものではない。また、L-NAMEを用いた実験は、室傍核(PVN)主導の神経原性高血圧を特異的にモデル化したものではない。本研究では、SJBEがアンギオテンシンII(Ang II)誘発性のミクログリア炎症を抑制し、視床下部ニューロンにおける炎症性シグナル伝達を制限し、L-NAME投与ラットの血圧を低下させるかどうか、およびこれらの結果がACE2/Ang-(1-7)/MasRマーカーと関連しているかどうかを検証した。
プロトコル
すべての動物実験の手続きは、山西大同大学の生物医学研究倫理審査委員会によって承認され(承認番号:2021029、承認期間:2021年8月~2024年2月)、実験動物の飼育および使用に関する施設ガイドラインに従って実施されました。使用した試薬および機器は、以下の通りです。 材料表.
材料および試薬
乾燥させた未開封のStyphnolobium japonicum (L.) Schott(シノニム:Sophora japonica L.;マメ科;未熟槐花/Huai Mi)の花芽を使用した。抽出前に、中国北京の国家食品薬品監督管理局(NIFDC)による認定Sophorae Flos標準物質(Cat. No. 121270; Batch No. 121270-201403)との比較により、植物材料の同定確認を行った。参照標準物質として、ルチン(98%, HPLC)およびクエルシチン(98%, HPLC)を使用した。Ang II、MLN-4760、L-NAME、およびバルサルタンを適宜使用した。その他の試薬および機器は材料表に記載している。
S. japonicum 芽抽出物の調製および品質管理
花芽を80 °Cのオーブンで恒量になるまで乾燥させ、粉砕した後、85メッシュのふるいにかけた。この粉末を用い、85%エタノールで、材料対溶媒比1:20 (w/v)、80 °Cで1回あたり1.5時間、2回の還流抽出を行った。ろ液を合わせて60 °Cで減圧濃縮して濃厚抽出液とし、−80 °Cで予備凍結させた後、48~72時間凍結乾燥させた。抽出収率は、乾燥抽出物の質量を乾燥生薬の質量で除して算出した。分注したSJBE粉末は、凍結融解サイクルの繰り返しや湿気への曝露を防ぐ条件下で保存した。
UV-Visフォトダイオードアレイ検出器を備えた装置を用いて、高速液体クロマトグラフィー(HPLC)を行った。分析物はC18逆相カラム(250 mm × 4.6 mm, 5 µm)を用い、メタノール-水(65:35, v/v)を1.0 mL/minの流速でアイソクラティックに供給して分離した。カラム温度は35 °Cに維持し、検出波長は360 nmに設定し、注入量は20 µL、分析時間は20分とした。SJBEはメタノールを用いて1.0 mg/mLに調製した。ルチンの検量線用標準液を10 µg/mL、25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL, 300 µg/mL, 400 µg/mLの7段階で調製し、ケルセチンの検量線用標準液を0.5 µg/mL, 1 µg/mL, 2.5 µg/mL, 5 µg/mL, 10 µg/mL, 25 µg/mL, 50 µg/mLの7段階で調製した。標準品および試料を0.22 µmのポリテトラフルオロエチレン膜フィルターでろ過し、ろ液の最初の0.5 mLを廃棄した後、残りをHPLCバイアルに移した。各検量線レベルは2回ずつ、各SJBE調製液は3回ずつ注入した。ルチンおよびケルセチンの同定は、標準品の保持時間と±2%以内で一致すること、およびフォトダイオードアレイスペクトルが一致することによって行った。各マーカーは外標準法により定量し、検出器の応答が適用可能な検量線範囲外であった希釈試料については再分析を行った。
分析性能、システム適合性、およびバッチ評価
指定した7つの濃度レベルにおけるピーク面積対濃度の最小二乗回帰により、直線性を評価した。R2が0.999以上であり、かつ残差プロットに系統的な傾向が見られない場合に、検量線を承認とした。検出限界および定量限界は、それぞれS/N比がおよそ3および10となる点において決定した。特異性は、メタノールブランク、混合標準溶液、およびSJBE試料を用いて実証し、共溶出による妨害がないこと、および分析物のスペクトルが参照標準と一致することを確認した。
混合標準試料を6回連続で注入し、注入精度を評価した。日内精度は同日に行った6回の測定で評価し、日間精度は3日間連続して評価した。再現性は、独立して調製した6つのSJBE溶液を用いて評価し、オートサンプラーの安定性は0 h、4 h、8 h、12 h、24 hで評価した。回収率は、天然マーカーレベルの80%、100%、120%において、各レベルで3つの独立してスパイクした調製試料を用いて評価した。注入精度はピーク面積のRSD ≤2.0%で許容し、精度、再現性、および安定性はRSD ≤3.0%で許容し、平均回収率は95.0%–105.0%で回収率のRSD ≤3.0%を許容基準とした。
各分析シーケンスの前に、混合標準試料を6回注入した。保持時間のRSDが1.0%以下、ピーク面積のRSDが2.0%以下、分離度が1.5以上、テーリング係数が2.0以下、およびルチンのピークの理論段数が5,000段以上である場合に、システム適合性を認めた。いずれかの基準を満たさない場合は、カラムを再平衡化し、システム適合性試験を繰り返した。
3つの独立したSJBE抽出バッチを調製し、分析した。各バッチについて360 nmの全クロマトグラムを記録し、ルチンをリファレンスピークとして定義し、再現性のある共通ピークをアライメントさせ、相対保持時間、相対ピーク面積、およびプロファイル全体の類似度を算出した。バッチレベルのフィンガープリントの一貫性は、類似度 ≥0.90、共通ピークの相対保持時間のRSD ≤2.0%、および相対ピーク面積のRSD ≤5.0%を基準として許容した。ルチンおよびクエルシチンの含有量を、各バッチの数値とともに、全体の平均値、標準偏差、および変動係数として報告した。
細胞培養および処理
マウスBV-2ミクログリア細胞株およびマウスmHypoA-2/10視床下部神経細胞株を商用ソースから入手した。細胞はサプライヤーによって認証されたストックから解凍し、2代継代して拡大させ、種特異的PCR法を用いて種正体を検証した。また、実験前および新しいバイアルを解凍するたびに、マイコプラズマ陰性であることを確認した。継代数3代から20代までの細胞を使用した。
BV-2細胞およびmHypoA-2/10細胞は、10%胎児牛血清および1%ペニシリン-ストレプトマイシンを添加した高グルコースDMEMを用い、37 °C、5% CO₂の加湿インキュベーター内で培養した。培地は2日ごとに交換し、細胞が70%~80%コンフルエントに達した時点で0.25% trypsin-EDTAを用いて継代した。処理の24時間前に細胞を播種し、70%~80%コンフルエントの状態で実験を開始した。
生存率スクリーニングのため、BV-2細胞を0 µg/mL、25 µg/mL, 50 µg/mL、100 µg/mL、200 µg/mL、または400 µg/mLのSJBEに24時間s露光させた。炎症実験では、細胞を図に指定された濃度のSJBEまたはルチン(50 µmol/L)で1時間前培養した後、培地を交換せずにAng II(100 nmol/L)を添加し、さらに24時間作用させた。ACE2阻害実験では、SJBEの30分前にMLN-4760(10 µmol/L)を添加し、続いてSJBEの1時間後にAng IIを添加し、すべての薬剤を24時間の刺激期間中維持した。下流のメカニズム解析実験では、SJBEを100 µg/mLで使用した。Ang IIおよびSJBEは滅菌培養培地で調製し、MLN-4760およびルチンはジメチルスルホキシドストックとして調製した。溶媒コントロールを含むすべての該当グループにおいて、最終的なジメチルスルホキシド濃度を0.1% (v/v)に維持した。3回の独立した培養実験を行い、各実験内のテクニカルウェルの平均値を算出した。
細胞生存率アッセイ
BV-2細胞を96ウェルプレートに5 × 10³ cells/wellの密度で播種し、24時間培養した。培地を、0 µg/mL、25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL、または400 µg/mLのSJBEを含む新鮮な培地に交換した。24時間後、10 µLのCCK-8試薬を添加し、細胞を37 °Cで1時間インキュベートした。吸光度を450 nmで測定し、細胞生存率を未処理のコントロールウェルに対する相対値として算出した。独立した培養調製物を生物学的反復として使用し、テクニカルウェルは実験内の平均化のみに使用した。
ROSレベルの検出
処理後、BV-2細胞を10 µmol/L DCFH-DAを含む無血清培地とともに、37 °Cで暗所にて30分間インキュベートした。細胞をPBSで2回洗浄して剥離させ、40 µmのセルストレーナーに通した後、氷冷PBSに再懸濁した。フローサイトメーターを用い、励起波長488 nm、FITC/530 ± 15 nmの蛍光検出チャンネルにて、1サンプルあたり少なくとも10,000個のシングルイベントを収集した。前方散乱光(FSC)および側方散乱光(SSC)のエリアに基づいて主細胞集団をゲーティングし、FSCのエリア対高さを用いてダブレットを除外した。また、未染色コントロールを用いて蛍光境界を設定した。このシングルカラーアッセイでは、スペクトル補正は不要であった。すべてのコード済みサンプルに同一のゲートテンプレートを適用し、平均蛍光強度を算出した。
TUNEL染色
共培養後、下層チャンバーの神経細胞を4%パラホルムアルデヒドで30分間固定し、PBSで3回洗浄した後、0.3% Triton X-100含有PBSで5分間透過処理した。計 50 µL のTUNEL反応混合液を1ウェルあたりに加え、細胞を以下の条件でインキュベートした。 37 °C 暗所で60分間静置した。サンプルを3回洗浄し、核を~で対比染色した。 1 µg/mL DAPIで10分間染色し、サンプルを封入した。各群につき独立して調製した5つの共培養系について、あらかじめ選定した重複しない3つの視野を200倍で撮影した。× 同一の露光設定を用いて倍率を合わせた。ImageJを用いて固定しきい値で定量し、TUNEL陽性核をDAPI陽性核に対する割合(%)として算出した。統計解析の前に、3つの視野の平均値を算出し、1つの培養レベルの値とした。
ニューロン・ミクログリア共培養実験
可溶性因子によって媒介される非接触型コミュニケーションをモデル化するため、0.4 µmのポリカーボネート膜を備え、成長面積が約0.33 cm2の24ウェルTranswellインサートを使用した。下層ウェルにはmHypoA-2/10細胞を1 × 105 cells/600 µL培地で播種し、インサートにはBV-2細胞を2 × 10⁵ cells/100 µL培地で播種した。細胞をオーバーナイトで培養した後、アセンブルを行った。Ang II、SJBE、MLN-4760、rutin、およびそれぞれの対照溶媒を、上述の処理順序に従って上層のBV-2コンパートメントに添加した。さらに高ナトリウムストレス群については、下層の神経細胞コンパートメントにNaClを添加し、最終濃度を30 mmol/L増加させた。アセンブルした共培養系を24時間維持した。
ミクログリアのサイトカインおよびシグナル伝達解析のために上層チャンバーの培地とBV-2細胞を回収し、Ang-(1-7)、qPCR、イムノブロッティング、およびTUNEL解析のために下層チャンバーの培地と神経細胞を個別に回収した。組み立てられたインサートと下層ウェルの1ペアを1つの実験単位とし、3回の独立した共培養実験を行った。この構成により可溶性因子の交換を評価したが、SJBEの唯一の直接的な標的がミクログリアであると断定することはできなかった。また、等張コントロールが含まれていなかったため、NaCl条件下においてナトリウム特異的な影響と浸透圧の影響を区別することはできなかった。
高血圧動物モデル
市販の6~8週齢、体重180~220 gの特定病原体不在(SPF)雄性Wistarラットを入手した。1ケージあたり3匹を、温度22 °C ± 2 °C、相対湿度50%~60%、12時間の明暗サイクル条件下で飼育し、餌と水は自由摂取とした。敷材は週2回交換し、動物を7日間馴化させた。動物の状態を毎日観察し、体重を週2回記録した。L-NAME(0.5% CMC-Naに溶解し40 mg/kg/day、10 mL/kg)を3週間経口投与し、一酸化窒素欠乏誘発性高血圧を成立させた。ランダム化前のモデル適格性は、2回連続の測定で収縮期血圧が140 mmHg以上であることと定義した。このモデルは一酸化窒素欠乏誘発性高血圧を再現したが、神経性高血圧に特異的なものではなかった。
群分け、投与およびサンプル採取
ラットを正常対照群とL-NAME造モデル群に割り付けた。モデルの成立が確認された後、適格とされた高血圧ラットを、モデル溶媒群、SJBE 100 mg/kg/day群、200 mg/kg/day群、400 mg/kg/day群、またはバルサルタン 10 mg/kg/day群に割り付けた。すべての経口投与製剤は 10 mL/kg の用量で1日1回投与し、対照群には同量の 0.5% CMC-Na を投与した。1群あたり6匹(計36匹)を最終的な解析サンプルとした。初期登録数、死亡数、および除外数を、群ごとおよび理由別に報告した。1日1回の経口投与を6週間継続し、モデル由来の群はL-NAMEプロトコルを維持した。
終了時点で、ラットにペントバルビタールナトリウム(50 mg/kg、腹腔内投与)を投与して麻酔をかけ、足底逃避反射の消失を確認した。腹腔大動脈からEDTAチューブに血液(4–6 mL)を採取した。ラットは深い麻酔下で放血により安楽死させ、氷冷した0.9%生理食塩水約200 mLを用いて経心腔灌流を行った。血液サンプルを4 °Cで15分間、2,000 × gで遠心分離し、血漿を−80 °Cで保存した。直ちに脳を摘出した。ラット脳アトラスを用いて、ブレグマから約−1.3 mmから−2.1 mmにわたる冠状断ブロックを作成し、正中線から外側へ約0.3–0.6 mm、頭蓋表面から腹側へ7.4–8.2 mmの範囲にある両側の視床下部室傍核(PVN)をマイクロダイセクションにより採取した。組織は、RNAおよびタンパク質分析用に急速凍結するか、20 µmの凍結切片作成のために包埋した。
ランダム化、割付の隠蔽化、盲検化、および除外基準
適格な高血圧ラットを体重およびベースラインの収縮期血圧で層別化し、6個のブロックを用いたコンピュータ生成のブロックランダム化リストを用いて割り付けた。投与およびアウトカム評価を行わない研究者が、配列の生成、連続的なグループコードの作成、およびすべての動物が適格基準を満たすまで割り付けリストを秘匿した。血圧、分子、生化学、および組織学的なエンドポイントにおいて、個体(動物)を実験単位とした。
経口投与用製剤、サンプルチューブ、組織分取検体、切片、画像、およびアッセイプレートには、ランダム化した3桁の個体識別コードを付してラベルを貼付した。血圧測定、密度測定、ELISA、画像取得、および画像解析を行う研究者は、治療群の割り当てについて盲検化された。コードの解除は、事前に規定された品質チェックおよび主要解析の完了後のみに行った。治療とは無関係の死亡、重篤な疾患または外傷があった個体のみを除外した。 >体重の20%減少、経口投与の失敗、モデル誘導の失敗、再試行後のテールカフ測定値の不備、サンプルの紛失、または記録されたアッセイの失敗。すべての除外例について、群および理由を報告した。事前の検出力計算が行われていなかったため、n = 6/群を探索的なメカニズム解析サンプルとして扱った。
尾側カフによる血圧測定
血圧は、静かな部屋で09:00から12:00の間に、非侵襲的なテールカフシステムを用いて測定した。ラットを拘束装置に1日15分間、5日間連続で入れることで順化させた。各測定日に、動物を33 °C ± 1 °Cで10分間加温し、その後さらに拘束装置内で5分間保持した。最初の5回の加圧・減圧サイクルは除外し、さらに10~15回のサイクルを記録した。技術的に妥当な測定値が少なくとも5回得られ、かつ変動係数が10%以下である場合に、そのセッションを採択した。個体レベルの血圧値は、妥当な測定値の平均として算出した。この基準を満たさない場合は、動物を10分間休止させ、1セットのサイクルを繰り返した。それでも基準を満たさない場合は、翌日にセッションをやり直し、個別の測定値を個別に削除するのではなく、元のセッションを欠損値として記録した。テールカフによる測定は血圧の間欠的な推定値であり、連続的なテレメトリー測定ではない。
ELISA(酵素結合免疫吸着法)
細胞培養上清、PVNホモジネート上清、および血漿を、分析物および種が一致したアッセイキット(mouse TNF-α、mouse IL-1β、mouse IL-6、rat TNF-α、rat IL-1β、Ang-(1-7)、およびnorepinephrine)を用いて処理した。細胞上清は、4 °Cで1,000 × g、10分間遠心して清澄化した。PVN組織は、プロテアーゼ阻害剤を含む氷冷PBSで1:9 (w/v)にホモジナイズし、4 °Cで12,000 × g、15分間遠心分離した。血漿は氷上で一度だけ融解させた。試薬を30分間室温に戻した。標準試料およびサンプルを100 µLずつテクニカルデュプリケートで添加し、37 °Cで2時間インキュベートした後、300 µLの洗浄バッファーで5回洗浄した。続いて、100 µLのビオチン化検出抗体を添加し、37 °Cで1時間インキュベートした。プレートを5回洗浄し、100 µLの西洋ワサビペルオキシダーゼ共役体を添加して37 °Cで30分間インキュベートした。再度洗浄ステップを行った後、90 µLのTMB基質を添加し、暗所で15分間発色させた。その後、50 µLの停止液を添加し、マイクロプレートリーダーを用いて5分以内に450 nmで吸光度を測定した。濃度は4パラメータロジスティック標準曲線を用いて算出した。変動係数が15%以下の場合にデュプリケート測定値を採用し、校正範囲外のサンプルは希釈して再測定した。
定量リアルタイムPCR
TRIzol試薬を用いて、細胞またはPVN組織から全RNAを抽出した。A260/A280比を用いてRNA純度を評価し、Evo M-MLV reverse-transcription premixを用いてcDNA合成に1 µgのRNAを使用した。20 µLの各qPCR反応系には、10 µLの2× SYBR Green master mix、10 µmol/Lのフォワードおよびリバースプライマーを各0.4 µL、2 µLの希釈cDNA、および7.2 µLのヌクレアーゼフリー水を含めた。反応はリアルタイムPCR検出システムを用い、テクニカルトリプリケートで実施した。サイクル条件は、95 °Cで30 s、続いて95 °Cで5 sおよび60 °Cで30 sを40サイクル行った。その後、65 °Cから95 °Cまで0.5 °C刻みで融解曲線を生成した。コントロールとして、テンプレートなし(no-template)および逆転写なし(no-reverse-transcription)を設定した。単一の融解ピークが観察され、かつ標準曲線の効率が90%–110%であったアッセイのみを採用した。相対的な遺伝子発現量は、Gapdhをリファレンス遺伝子として2⁻ΔΔCt法を用いて算出した。本研究で使用したプライマー配列をTable 1に示す。
ウェスタンブロッティング
プロテアーゼおよびホスファターゼ阻害剤を含む氷冷RIPAバッファーを用いて、細胞またはPVN組織から全タンパク質を抽出した。溶解物を4 °Cで12,000 × g、15分間遠心して上清を回収し、BCAアッセイを用いてタンパク質濃度を測定した。標的タンパク質の分子量に応じて選択した8%–12% SDS-ポリアクリルアミドゲルに、1レーンあたり計30 µgのタンパク質をロードし、氷上で300 mA、90分間かけて0.45 µm PVDF膜に転写した。膜を室温で1時間、リン酸化タンパク質の場合は5%牛血清アルブミン、その他の標的タンパク質の場合は5%脱脂粉乳でブロッキングした。total CREB抗体を含む一次抗体を、Table of Materialsに指定された希釈倍率で4 °Cにて一晩インキュベートした。膜をTBSTで10分間、3回洗浄し、適切なホースラディッシュペルオキシダーゼ標識二次抗体(1:5,000)を用いて室温で1時間インキュベートした後、再度洗浄した。バンドは、飽和しない露光条件での強化化学発光法により検出した。バンド強度はImageJを用いて定量した。リン酸化タンパク質は対応する全タンパク質で、その他の標的タンパク質はGAPDHで正規化した。
免疫蛍光染色
ブレグマから相対的に約−1.3から−2.1 mmの位置にあるPVNを通る冠状断凍結切片(20 µm)を作製した。ラット1匹あたり、120 µm間隔で解剖学的に一致する3枚の切片を選択した。切片を室温で20分間平衡化し、PBSで3回洗浄した後、0.3% Triton X-100および5% goat serumを用いて1時間、ブロッキングおよび透過処理を行った。切片をIba-1またはc-Fos一次抗体と共に4 °Cで一晩インキュベートし、洗浄後、適切な蛍光二次抗体を用いて室温・暗所にて1時間インキュベートした。核をDAPIで10分間対比染色した。倒立蛍光顕微鏡を用い、同一の露光量およびゲイン設定を各マーカー内で維持し、200×倍率で両側PVNの画像を撮影した。コード化された画像に予め定義したImageJの閾値を適用し、Iba-1陽性面積またはc-Fos陽性核を定量化した。3枚の切片からの測定値を平均し、個体レベルの1つの値として算出した。
安全性と廃棄物処理
メタノール、エタノール、パラホルムアルデヒド、DCFH-DA、電気泳動試薬、および動物組織の取り扱いは、機関の化学およびバイオセーフティ手順に従って行いました。揮発性溶媒およびパラホルムアルデヒドは認定済みの化学薬品用フード内で取り扱い、適切な個人用保護具を着用しました。ハロゲンフリー有機溶媒廃棄物とホルムアルデヒド含有廃棄物は分別し、生物学的廃棄物は除染し、鋭利物および動物死骸は機関の承認済みルートを通じて廃棄しました。使用前に、地域の廃棄物区分および緊急時対応手順を確認しました。
統計解析
データは平均値 ± 標準偏差として提示し、統計およびグラフ作成ソフトウェアを用いて解析した。独立した培養準備物または個体を生物学的実験単位とし、統計的推論を行う前に、各単位内のテクニカルウェル、視野、または反復測定値を平均化した。パラメトリック解析を行う前に、分布の仮定と分散パターンを評価した。多群のエンドポイントデータセットは、一元配置分散分析を行い、続いてTukeyの多重比較補正を用いて解析した。縦断的な収縮期血圧は、平均値 ± 標準偏差として記述的に提示し、エンドポイントの血圧結果は、Tukey補正を用いた一元配置分散分析により解析した。補正後のp 値、平均差、および95%信頼区間を報告した。両側p < 0.05を統計的に有意とみなし、すべての除外例および欠損値を報告した。
結果
ターゲットHPLC定量を行ったSJBEは、Ang II誘発性のミクログリア炎症を抑制する
エタノール還流抽出により、出発物質の25.5 ± 0.7%の収率でSJBE粉末を得た(図1A)。標的HPLC分析により、rutinを276.1 mg/g ± 9.2 mg/g、quercetinを12.5 mg/g ± 0.9 mg/gと定量し(図1B)、生物学的実験全体で使用したSJBE調製物の定量的なマーカー特性を明らかにした。
SJBEは200 µg/mLまでの濃度においてBV-2細胞の生存率に検出可能な影響を及ぼさなかったが、400 µg/mLでは生存率の有意な低下が観察された(図 1C)。これらの結果に基づき、その後のメカニズム解析実験には100 µg/mLを選択した。Ang IIはBV-2細胞からのTNF-αおよびIL-1βの放出を著しく増加させたが、SJBEは試験した非細胞毒性濃度範囲において、これら両方の炎症性サイトカインを減少させた(図 1D,E)。これは、Ang II刺激下において濃度依存的な抗炎症効果があることを示している。
SJBEは、より高いACE2/MasRマーカーおよび、より低いNF-κBシグナル伝達と酸化ストレスに関連している
Ang II刺激により、タンパク質およびmRNAレベルの両方でACE2およびMasRの発現が減少し、それに伴いNF-κB p65のリン酸化が増加しました。SJBE処理によりこれらの変化が逆転し、p65のリン酸化が減少すると同時に、ACE2およびMasRの発現が増加しました(図 2A–E)。
これらの分子変化と一致して、SJBEはAng IIで刺激した培養上清中のTNF-α濃度を135 pg/mL ± 12 pg/mLから55 pg/mL ± 6 pg/mLに、またIL-1β濃度を102 pg/mL ± 10 pg/mLから42 pg/mL ± 5 pg/mLに減少させた。ACE2阻害剤MLN-4760の添加により、これらの効果は大幅に減弱し、TNF-αおよびIL-1βはそれぞれ125 pg/mL ± 11 pg/mLおよび95 pg/mL ± 9 pg/mLにまで増加した。ルチンによる処理では、完全抽出物で観察された抗炎症反応の一部が再現された(図2F)。
また、SJBEはAng II刺激後の細胞内DCFH-DA蛍光を有意に減少させ、細胞内活性酸素種の蓄積が抑制されたことを示した。この減少はMLN-4760によって減弱した(Figure 2G,H)。以上の結果から、Ang II刺激を受けたBV-2細胞におけるSJBEの抗炎症および抗酸化作用は、ACE2/MasRシグナリングの回復を伴っており、ACE2の薬理学的阻害に対して感受性を持つことが示唆された。
SJBEはミクログリアから視床下部ニューロンへの炎症性転移を抑制する
SJBEの抗炎症作用がミクログリアとニューロン間のコミュニケーションに影響を与えるかを調べるため、BV-2細胞とmHypoA-2/10視床下部ニューロンを非接触Transwellシステムで共培養した。Ang II刺激により、共培養システムにおけるTNF-αおよびIL-1βの濃度が上昇したが、SJBEはTNF-αを150 ± 15 pg/mLから65 ± 8 pg/mLへ、IL-1βを110 ± 12 pg/mLから48 ± 6 pg/mLへと減少させた(図3A)。また、Ang IIはAce2およびMas1の発現を低下させたが、SJBE処理により両者ともコントロールレベルまで回復した(図3B)。
下室で培養した視床下部ニューロンにおいても、同様の変化が観察された。Ang IIで刺激した共培養環境に曝露させることで、c-FosおよびCOX-2の発現が増加し、AvpおよびOxtrの発現が変化したが、SJBEはこれらの反応を減弱させた(Figure 3C–G)。この保護パターンはMLN-4760によって弱まったことから、ACE2活性が共培養システムで観察された効果に関連していることがさらに裏付けられた。
これらの知見は、SJBEがAng II刺激下で生成される炎症性環境を抑制し、それに伴いTranswellモデルにおける下流の視床下部ニューロン応答の活性化が減少することを示している。
SJBEは、高ナトリウム負荷とAng II負荷の併用ストレス下において、Ang-(1-7)シグナル伝達に関連し、神経損傷を軽減させる
Ang IIへの曝露により、共培養上清中のAng-(1-7)濃度が低下し、神経細胞におけるphospho-CREB/CREB比が上昇した。SJBE処理により、Ang-(1-7)が増加し、CREBのリン酸化がコントロールレベルまで低下した(図 4A–C)。これは、前述の実験で観察されたACE2/Ang-(1-7)/MasR関連シグナリングプロファイルの回復と一致している。
30 mmol/L NaClとAng IIの複合刺激下において、視床下部ニューロンではAvp発現の増加およびTUNEL陽性細胞の割合の上昇が認められた。SJBEはこれら両方の反応を有意に減弱させ(図 4D–F)、複合的な負荷条件下でのニューロンのストレスと損傷が軽減されたことが示された。TUNEL解析において、各値は独立して調製した共培養系を表しており、統計解析の前に各生物学的反復内で3つの顕微鏡視野を平均化した(各群 n = 5)。
SJBEは、L-NAME投与ラットにおいて尾側血圧を低下させ、PVNにおけるACE2/Ang-(1-7)/MasRマーカーの上昇と関連している
L-NAMEの連日投与により、モデル作製期間中に収縮期血圧の漸増が認められた。高血圧の確立後、6週間の介入期間においてSJBE投与により週ごとの尾筒法血圧が低下し、高用量群で最も顕著な反応が観察された(図 5A)。
研究の終点において、収縮期血圧はL-NAMEモデル群で165 ± 8 mmHgであったのに対し、対照ラットでは115 mmHg ± 5 mmHgであった。高用量のSJBEにより、収縮期血圧は130 mmHg ± 6 mmHgまで低下した。また、高用量SJBE投与後、拡張期血圧は110 mmHg ± 6 mmHgから85 mmHg ± 4 mmHgに、平均動脈圧は128 mmHg ± 7 mmHgから100 mmHg ± 5 mmHgに低下した(すべてモデル群と比較して調整済みp < 0.0001;図5B)。これらの結果は、介入期間中、SJBEに対して持続的な降圧反応が得られたことを示している。
PVN組織の解析により、並行した分子変化が明らかになりました。L-NAME処理により、ACE2およびMasRのタンパク質発現ならびにAng-(1-7)濃度が減少しましたが、SJBEはこれら3つのマーカーすべてを用量依存的に回復させました。高用量群では、モデル群と比較して、ACE2の相対発現量が0.40 ± 0.07倍から1.50 ± 0.18倍に、MasRは0.45 ± 0.08倍から1.35 ± 0.16倍に増加し、Ang-(1-7)は9 pg/mg ± 2 pg/mgから32 pg/mg ± 5 pg/mgタンパク質へと増加しました (Figure 5C–E)。したがって、SJBEによる血圧降下作用は、PVN内におけるACE2/Ang-(1-7)/MasR関連の分子プロファイルの回復を伴うものでした。
SJBEは、PVNの炎症性活性化および全身性交感神経出力マーカーの低下と関連している
L-NAME誘発性高血圧に伴い、PVN内で顕著な炎症活性化が認められた。モデル群のラットではTnfおよびIl1bのmRNAレベルが上昇していたが、高用量のSJBE投与により、Tnfの発現は4.5 ± 0.5倍から1.8 ± 0.2倍に、Il1bの発現は3.8 ± 0.4倍から1.6 ± 0.18倍に減少した(図 6A)。
免疫蛍光分析により、一致する細胞変化が示された。ミクログリアの活性化を示すIba-1染色は、L-NAME投与ラットのPVNにおいて増加し、SJBE投与後に減少した。c-Fos染色でも同様のパターンが認められ、未処理のモデル群と比較してSJBE処理後の神経細胞活性化は低かった(図6B–D)。
これらの中枢性の炎症性変化は、血中の炎症マーカーおよび交感神経マーカーの改善を伴っていた。モデルラットでは血漿中TNF-αおよびIL-1β濃度が上昇していたが、SJBE投与後に大幅に減少した。高用量群では、TNF-αが45 pg/mL ± 6 pg/mLから20 pg/mL ± 3 pg/mLへ、IL-1βが35 pg/mL ± 5 pg/mLから15 pg/mL ± 3 pg/mLへと減少した(図 6E)。同様に、血漿中ノルエピネフリンは400 pg/mL ± 45 pg/mLから180 pg/mL ± 25 pg/mLへと減少した(図 6F)。
総合すると、これらのin vivoでの知見は、SJBE処置が、PVNのACE2/Ang-(1-7)/MasR関連マーカーの回復、PVNにおける炎症性活性化の抑制、および血中の炎症性サイトカインとノルエピネフリンの減少と並行して、L-NAME処置ラットの血圧を低下させることを示している。
データの利用可能性:
図の根拠となる数値ソースデータおよび関連する統計出力は、補足ファイル 1に提供されています。
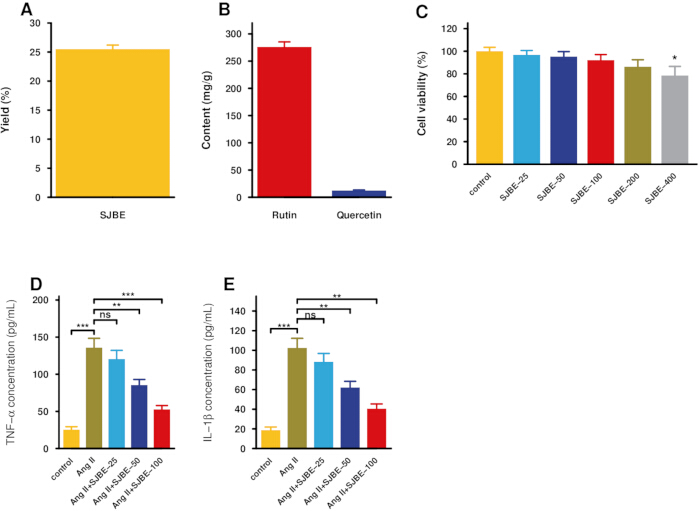
図 1: 標的HPLC定量およびBV-2を用いた初期実験. (A) 抽出収率。 (B) 標的HPLCにより定量したSJBE中のルチンおよびクエルシチン含有量。 (C) SJBEに24時間曝露させた後のBV-2の生存率。 (D,E) Ang IIで刺激したBV-2上清中のTNF-αおよびIL-1β。 データは平均値 ± SDであり、定量パネルについてはn = 3の独立した実験結果を示す。 Tukeyの多重比較検定を用いた一元配置分散分析(One-way ANOVA)を実施した。 略語:ns, 有意差なし; *p < 0.05, **p < 0.01, *** p < 0.001, **** p < 0.0001. ここをクリックして、この図の拡大版を表示してください。
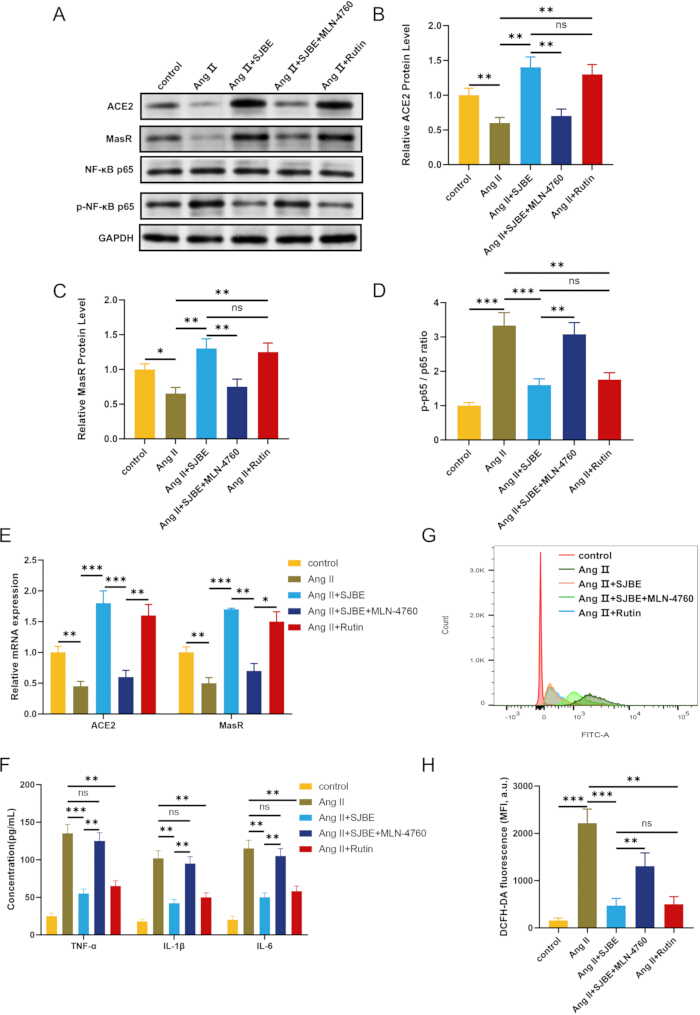
図 2: BV-2細胞において、SJBEはACE2/MasRマーカーの上昇、およびNF-κBシグナリングと酸化ストレスの低下に関連している. (A–D) ACE2、MasR、リン酸化p65、および総p65の免疫ブロットおよび定量結果。 (E) Ace2およびMas1のmRNAレベル。 (F) TNF-α、IL-1β、およびIL-6。 (G,H) ROSフローサイトメトリーの結果および蛍光定量。データは平均値 ± SDであり、n = 3回の独立した実験に基づいている。Tukey調整を用いた一元配置分散分析(One-way ANOVA)を使用した。ns: 有意差なし、*p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. こちらのリンクをクリックして、この図の拡大版を表示してください。
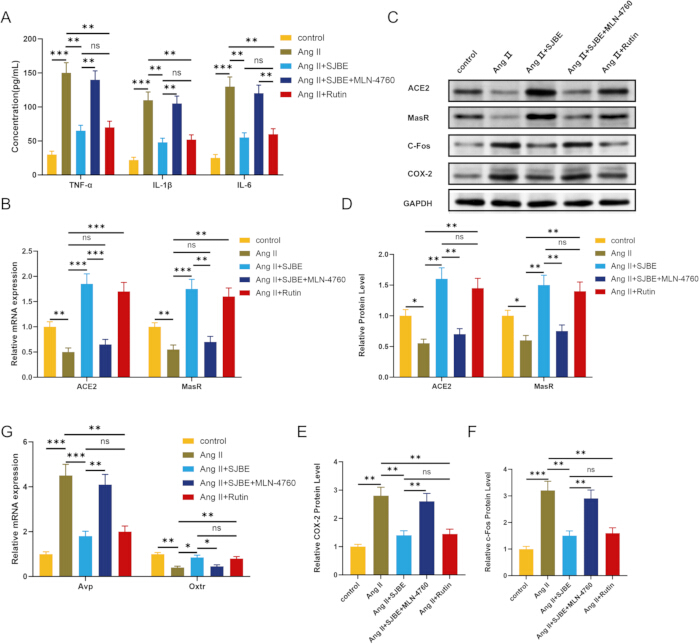
図3: BV-2/mHypoA-2/10可溶性因子共培養モデルにおいて、SJBEは炎症性シグナル伝達を抑制する。 (A) 共培養上清中のサイトカイン。 (B) Ace2およびMas1 mRNA。 (C–F) ACE2、MasR、c-Fos、およびCOX-2の免疫ブロットおよび定量。 (G) 下室ニューロンにおけるAvpおよびOxtrの発現。データは平均値 ± SDであり、n = 3 回の独立した実験結果である。Tukeyの補正を用いた一元配置分散分析(One-way ANOVA)を使用した。ns:有意差なし; *p < 0.05, **p < 0.01, ***p <0.001, ****p < 0.0001。 こちらのリンクをクリックして、この図の拡大版を表示してください。
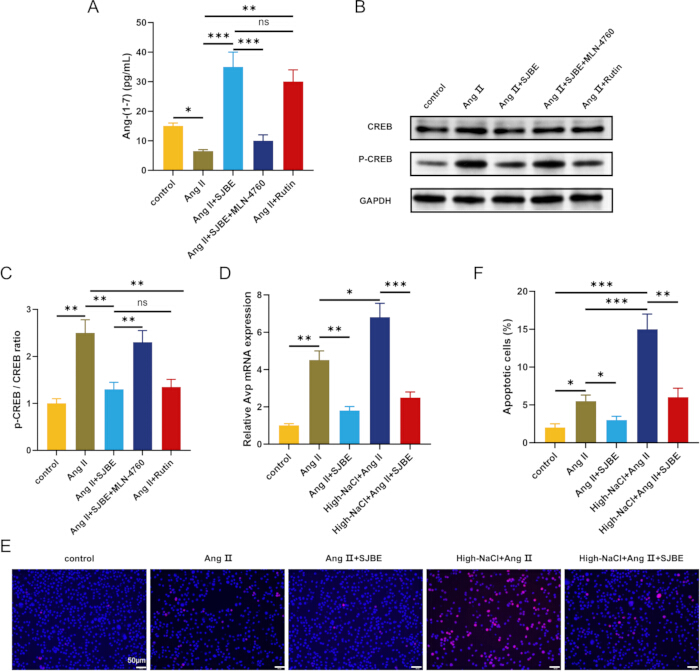
図4: SJBEはAng-(1-7)シグナル伝達およびストレス関連ニューロン損傷の軽減に関連している。 (A) 共培養上清中のAng-(1-7)。 (B,C) 下室ニューロンにおけるリン酸化CREBおよび総CREB。 (D) NaCl/Ang II複合ストレス条件下でのAvp。 (E,F) 代表的なTUNEL画像および定量化;スケールバー、50 µm。データは平均値 ± SD;パネル A、C、および D については n = 3 の独立した実験;パネル F については n = 5 の独立した共培養調製物であり、1調製物あたり3視野の平均値。Tukey補正を用いた一元配置分散分析(One-way ANOVA)を使用した。ns:有意差なし;*p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001。 こちらのリンクからこの図の拡大版を表示できます。
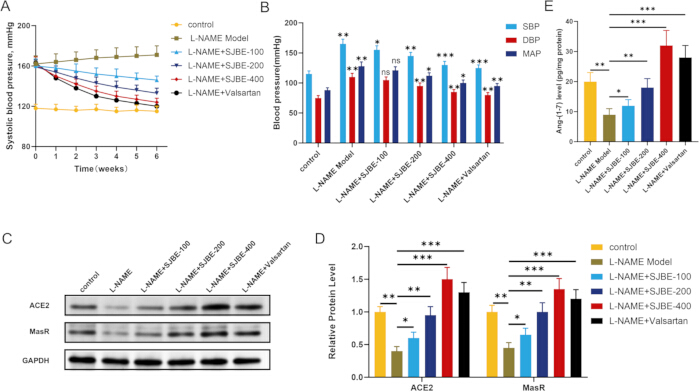
図5: L-NAME投与ラットにおいて、SJBEは尾側カフ血圧を低下させ、PVNにおけるACE2/Ang-(1-7)/MasRマーカーの上昇に関連している。 (A) 縦断的な収縮期血圧。 (B) 最終時点の収縮期、拡張期、および平均動脈圧。 (C,D) PVN組織におけるACE2およびMasRの免疫ブロットおよび定量化。 (E) PVNホモジネート中のAng-(1-7)。データは平均値 ± SD; n = 6 rats/group。縦断的なSBPは記述的に提示し、最終時点の結果にはTukey調整済み比較を用いた一元配置分散分析(one-way ANOVA)を使用した。ns: 有意差なし; *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001。 ここをクリックして、この図の拡大版を表示してください。
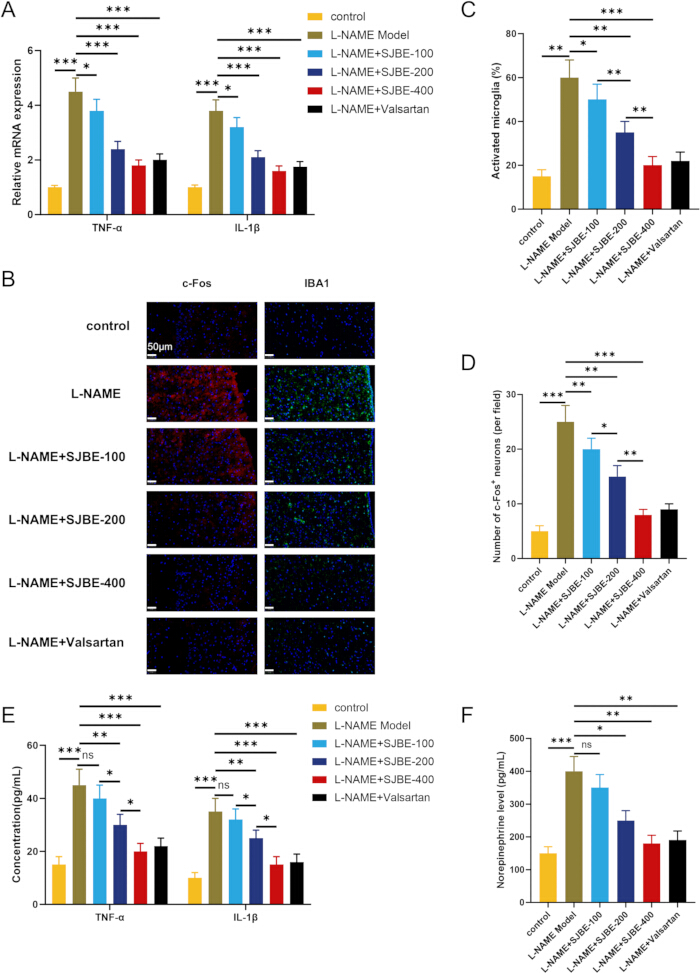
図6L-NAME投与ラットにおいて、SJBEはPVNの炎症性活性化および全身性交感神経出力マーカーの低下に関連している. (A) PVN組織におけるTnfおよびIl1b mRNA (B–DIba-1およびc-Fosの免疫蛍光染色および定量化、スケールバー 50 µm. (E) 血漿TNF-αα およびIL-1β. (F血漿ノルエピネフリン。データは平均値である ± SD;n = 6匹/群。Tukeyの補正を用いた一元配置分散分析(one-way ANOVA)により解析した。*p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. こちらの図を拡大して表示するには、ここをクリックしてください。
| 遺伝子 | フォワードプライマー (5'-3') | リバースプライマー (5'-3') |
| Gapdh | CACCCACTCCTCCACCTTTGAC | GTCCACCACCCTGTTGCTGTAG |
| Tnfα | CCTGCTGCACTTTGGAGTGA | GCTTGAGGGTTTGCTACAACA |
| Il1b | CAGTGAGGAGAATGACCTGTTC | CGAGATGCTGCTGTGAGATT |
| Ace2 | TCCATTGGTCTTCTGCCATCCG | AGACCATCCACCTCCACTTCTC |
| Mas1 | TCCACCATCAATAGCAGCG | AAGCCACCCACATTCAGGC |
| Avp | TCGCCATGATGCTCAACACTACGC | ACACTGTCTCAGCTCCATGTCGGATG |
| Oxtr | GTGTCGAGTTGGACCTCGGG | CCAGGAACAGAATGAGGCACAG |
表1:本研究で使用したプライマー配列.
補足ファイル1:図の根拠となる数値ソースデータおよび関連する統計出力. こちらのファイルをダウンロードするには、ここをクリックしてください。
ディスカッション
本研究では、HPLCで定量したS. japonicum芽抽出物を、ミクログリアと可溶性因子の共培養モデルにおける炎症シグナルの低下、およびL-NAME投与ラットにおける尾側血圧の低下に関連付けました。これらの実験系全体を通じて、SJBE処理は、ACE2/Ang-(1-7)/MasRマーカーの上昇、NF-κB活性化と酸化ストレスの低下、およびPVN炎症活性化マーカーの低下と一致していました。これらの収束的な観察結果は神経免疫仮説を支持するものですが、中枢経路が降圧効果を媒介することを立証するものではありません。
これらの結果は、S. japonicumの花の成分およびルチンが炎症性シグナリングと神経炎症を抑制するという報告8,9,22、およびケルセチンが心血管系の炎症トーンとミクログリアのレドックスシグナリングを調節するという証拠12,13と一致しています。本研究により、植物抽出物を用いた視床下部神経免疫モデルにおいて、これらの観察結果が拡張されました。MLN-4760がin vitroでのみ保護反応を弱めたことから、ACE2はin vivoでの血圧低下効果を確立する介在因子としてではなく、細胞内抗炎症反応への機能的な寄与因子として解釈するのが最適であると考えられます。
PVNにおける所見は、細胞レベルでの観察結果を心血管制御領域に関連づけるものである。先行研究では、ミクログリアと炎症性サイトカインが神経原性高血圧および交感神経興奮に寄与することが示されている23,24。PVN内でのAng-(1-7)シグナル伝達は交感神経流出を調節できる一方、Ang IIはAT1/TLR4依存的なミクログリアの酸化還元ストレスを誘導し得る20,21。したがって、SJBE投与後のIba-1、c-Fos、炎症性サイトカイン、および血漿ノルエピネフリンの減少は、PVNにおける炎症性活性化の低下と一致しているが、これらの変化が血圧低下の原因となったのか、あるいは全身状態の改善に伴って生じたのかについては、本データでは確定できていない。
Ang IIモデルとL-NAMEモデルは、同一の疾患メカニズムではなく、相補的なストレス状況を提供する。Ang II刺激はレニン・アンジオテンシン系によるミクログリアの炎症を誘導する一方、L-NAMEは血管機能不全と酸化ストレスを伴う一酸化窒素欠乏性高血圧をモデル化している25,26。他のモデルにおいても、交感神経調節におけるPVNミクログリアの活性化が関与していることが示唆されているが14,27、本L-NAME研究はPVN主導の神経性高血圧に特異的なものではない。高ナトリウム共培養条件は、等張コントロールを置かないin vitroでの神経ストレス負荷であり、in vivoでの食塩感受性高血圧モデルとして解釈すべきではない。
再現性のある適用において、最も重要な手順は、植物源の文書化、一貫した抽出および保存、標準化された細胞密度と処理タイミング、正確なTranswellコンパートメントの割り当て、テイルカフへの順化と加温、正確なPVNサンプリング、および盲検化したエンドポイント定量である。抽出収率に変動がある場合は、材料の水分量、溶媒比、還流条件、ろ過、および凍結乾燥を確認すべきである。HPLCの保持時間の変動がある場合は、標準品の調製、移動相、流速、温度、カラムの平衡化、およびシステム適合性を確認すべきである。共培養またはテイルカフの結果に不整合がある場合は、測定値を恣意的に除外するのではなく、インサートの完全性と処理位置を確認するか、標準化された順化を繰り返すことで対処すべきである。本プロトコルの範囲を超える疑問に対しては、クロマトグラフィーによるフィンガープリント分析またはLC-MS/MS、一次培養または細胞選択的共培養デザイン、テレメトリー、脳・血漿中の薬物動態、および中枢ACE2/MasRの機能喪失実験が適切な代替手段となる。ニューロンと微小環境のリモデリング、およびイメージングと人工知能の統合に関する最新の学際的研究は、複雑な生物学的システムを調査するためのより広範な手法の方向性を示している。28,29.
いくつかの制限事項が適用範囲を規定している。MLN-4760はin vitroでの機能的根拠のみを提供しており、in vivoでのACE2/MasR遮断、あるいは血漿、脳、またはPVNへの曝露量の測定は行われていない。したがって、100 µg/mLという濃度は、in vivo相当の曝露量ではなく、非細胞毒性を示すin vitroでの作動濃度である。Transwellのデザインではミクログリア特異的な作用を証明できず、また、前向きにパワー計算されていない小規模な動物コホートであるため、精度に限界がある。テールカフ法による測定は断続的であり、拘束による影響を受けやすい。最後に、標的としたルチン/ケルセチンの定量では、化学的フィンガープリント、完全な分析バリデーション、構成成分の特定、あるいは独立したバッチ間での一貫性は確立されていない。これらの制限範囲内において、本プロトコルは、SJBE、神経炎症シグナル伝達、および血圧調節に関する仮説の生成を支持するものであり、確定的な因果関係やトランスレーショナルな主張を行うものではない。
開示事項
著者らは、競合する利害関係がないことを宣言します。
謝辞
著者は、参加した研究室による組織的および技術的な支援に感謝いたします。
資金提供:
本研究は、中国国家自然科学基金 (No. 82600861)、山西省基礎研究プログラム青年プロジェクト(Nos. 202203021212491, 202303021222205)、山西省基礎研究プログラム一般プロジェクト(No. 202203021221210)、および山西大同大学博士研究スタートアッププロジェクト(No. 2018-B-36)の支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.4 µm トランスウェルインサート | コーニング社 | 3413 | BV-2/mHypoA-2/10非接触共培養用24ウェルポリカーボネートメンブレンインサート |
| ACE2抗体 | 細胞シグナル伝達技術 | 92485; RRID: AB_3741093 | ACE2 (E5O6J) ウサギモノクローナル抗体; WB 1:1,000; IHC/IF 1:100–1:200 |
| Alexa Fluor 488標識抗ウサギIgG | 細胞シグナル伝達技術 | 4412; RRID: AB_1904025 | 免疫蛍光染色用二次抗体;1:500 |
| Alexa Fluor 594 抗ウサギ IgG | Cell Signaling Technology | 8889; RRID: AB_2716249 | 免疫蛍光染色用二次抗体;1:500 |
| アンジオテンシンII | Sigma-Aldrich | A9525 | 合成Ang IIペプチド、ミクログリア刺激 |
| アンジオテンシン-(1-7)アッセイキット | Cloud-Clone Corp. | CES085Mi | Ang-(1-7)の定量 |
| BCAタンパク質定量キット | Beyotime Biotechnology | P0012 | タンパク質定量 |
| BV-2細胞 | Procell Life Science & テクノロジー株式会社 | CL-0493; RRID: CVCL_0182 | マウスミクログリア細胞株;継代数3–20 |
| C18 HPLCカラム | 株式会社島津製作所 | Shim-pack GIST C18; P/N 227-30017-08 | 250 × 4.6 mm, 5 µmメタノール–水(65:35, v/v)、1.0 mL/min、 35 °C |
| CCK-8試薬 | Beyotime Biotechnology | C0038 | 細胞生存率アッセイ |
| c-Fos抗体 | 細胞シグナル伝達技術 | 2250; RRID: AB_2247211 | c-Fos (9F6) ウサギモノクローナル抗体;WB 1:1,000;IF 1:200 |
| COX-2抗体 | セルシグナリングテクノロジー | 12282; RRID: AB_2571729 | COX-2 (D5H5) ウサギ mAb; WB 1:1,000; IHC/IF 1:200 |
| DCFH-DAプローブ | Beyotime Biotechnology | S0033S | フローサイトメトリーによるROS検出 |
| DMEM, 高グルコース | Gibco/Thermo Fisher Scientific | 11965092 | 細胞培養培地 |
| Evo M-MLV 逆転写プレミックスキット | 正確なバイオテクノロジー | AG11706 | qPCR用cDNA合成 |
| ウシ胎児血清 | Gibco/Thermo Fisher Scientific | 10099141 | 細胞培養サプリメント |
| フローサイトメーター | BD Biosciences | BD Accuri C6 Plus | ROS蛍光画像の取得 |
| 蛍光顕微鏡 | Olympus/Evident Scientific | IX73 | TUNELおよびPVNイメージング用倒立蛍光顕微鏡 |
| GAPDH抗体 | Cell Signaling Technology | 5174; RRID: AB_10622025 | GAPDH (D16H11) ウサギ mAb; WB 1:1,000–1:5,000 |
| ヤギ血清 | Beyotime Biotechnology | C0265 | 免疫蛍光染色ブロッキング剤 |
| HPLCシステム | 株式会社島津製作所(日本、京都) | Prominence LC-20A | 標的ルチン/ケルセチン品質管理アッセイ |
| HRP標識抗マウスIgG | 細胞シグナル伝達技術 | 7076; RRID: AB_330924 | ウェスタンブロット用二次抗体;1:3,000–1:5,000 |
| HRP標識抗ウサギIgG | Cell Signaling Technology | 7074; RRID: AB_2099233 | ウェスタンブロット二次抗体;1:3,000–1:5,000 |
| Iba-1/AIF-1抗体 | 細胞シグナル伝達技術 | 17198; RRID: AB_2820254 | Iba-1/AIF-1 (E4O4W) ウサギ mAb; WB 1:1,000; IHC/IF 1:200 |
| IL-6 ELISAキット | Beyotime Biotechnology | PY2782 | マウスIL-6の定量 |
| L-NAME | Beyotime Biotechnology | S0006 | 一酸化窒素欠乏性高血圧に対するNOS阻害剤 |
| 雄のWistarラット | Beijing HFK Bioscience Co., Ltd. | Wistar; SCXK (Jing) 2019-0008 | SPFオス、6匹–8週間、180–220 g |
| MasR抗体 | Alomone Labs | AAR-013; RRID: AB_2039972 | 抗Mas受容体抗体; WB 1:200; IHC/IF 1:100 |
| mHypoA-2/10細胞 | Cedarlane Laboratories Ltd. | CLU176; RRID: CVCL_D384 | マウス視床下部神経細胞株;継代数3–20 |
| マイクロプレートリーダー | Thermo Scientific | Multiskan FC; カタログ番号 51119000 | CCK-8およびELISAの吸光度測定 |
| MLN-4760 | Beyotime Biotechnology | SF1197 | ACE2阻害剤 10 µmol/L 細胞内実験 |
| マウスIL-1β ELISAキット | Invitrogen/Thermo Fisher Scientific | 88-7013A-88 | マウスIL-1β 定量化 |
| マウスTNF-αα ELISAキット | Beyotime Biotechnology | PT512 | マウスTNF-α 定量化 |
| NF-κB p65抗体 | Cell Signaling Technology | 8242; RRID: AB_10859369 | NF-κB p65 (D14E12) XP rabbit mAb; WB 1:1,000 |
| 非侵襲的テイルカフ血圧測定システム | Visitech Systems | BP-2000-R-4 | ラット尾部カフ血圧測定および保温システム |
| ノルエピネフリン測定キット | Cloud-Clone Corp. | HEA907Ge | ノルエピネフリン定量 |
| p-CREB抗体 | セルシグナリングテクノロジー | 9198; RRID: AB_2561044 | 抗Phospho-CREB (Ser133) (87G3) ウサギ mAb; WB 1:1,000 |
| ペニシリン–ストレプトマイシン | Gibco/Thermo Fisher Scientific | 15140122 | 細胞培養用抗生物質サプリメント |
| フォトダイオードアレイ検出器 | 株式会社島津製作所 | SPD-M20A | HPLC UV(高速液体クロマトグラフィー・紫外線検出)–360 nmにおける可視光/PDA検出 |
| p-NF-κp65抗体 | Cell Signaling Technology | 3031; RRID: AB_330559 | リン酸化NF-κB p65 (Ser536) 抗体; WB 1:1,000 |
| PVDF膜 | Beyotime Biotechnology | FFP77 | 0.45 µm ウェスタンブロット膜 |
| ケルセチン標準品 | Beyotime Biotechnology | SM2147 | ケルセチン標準物質;HPLC純度98% |
| ラットIL-1β ELISAキット | Elabscience Biotechnology Inc. | E-HSEL-R0002 | ラットIL-1β 定量化 |
| ラットTNF-αα ELISAキット | Elabscience Biotechnology Inc. | E-HSEL-R0001 | ラットTNF-αα 定量化 |
| リアルタイムPCRシステム | Bio-Rad Laboratories, Inc. | CFX96 Touch; カタログ番号 1855195 | リアルタイムqPCR増幅および融解曲線分析 |
| RIPA溶解バッファー | Beyotime Biotechnology | P0013B | タンパク質抽出 |
| ルチン標準品 | Beyotime Biotechnology | SM2159 | ルチン標準物質;HPLC純度98% |
| 槐花標準物質 | 国家食品薬品監督管理局 (NIFDC)、中国、北京 | 121270; バッチ番号 121270-201403 | S. japonicum花蕾の真正性評価のための認定植物標準物質 |
| エンジュの花芽 | 植物材料の検討 | 該当なし | NIFDCのクジンカ(Sophorae Flos)標準品を用いて認証された、未開封の乾燥花蕾 |
| 全CREB抗体 | Proteintech Group, Inc. | 12208-1-AP; RRID: AB_2245417 | リン酸化CREBの標準化のためのTotal CREBウサギポリクローナル抗体 |
| TRIzol試薬 | Invitrogen/Thermo Fisher Scientific | 15596026 | RNA抽出 |
| TUNELアポトーシス検出キット | Beyotime Biotechnology | C1086 | ニューロンアポトーシスの検出 |
| バルサルタン | Sigma-Aldrich | SML0142 | AT1受容体拮抗薬;血圧降下作用の陽性対照 |
参考文献
- He X, et al. Local and traditional uses, phytochemistry, and pharmacology of Sophora japonica L.: a review. J Ethnopharmacol. 2016;187:160-182.
- Madden E, McLachlan C, Oketch-Rabah H, Calderon AI. United States Pharmacopeia comprehensive safety review of Styphnolobium japonicum flower and flower bud. Phytother Res. 2022;36(5):2061-2071.
- Shi W, et al. Bioactive flavonoids from Flos Sophorae. J Nat Med. 2017;71(3):513-22.
- Paniwnyk L, Beaufoy E, Lorimer JP, Mason TJ. The extraction of rutin from flower buds of Sophora japonica. Ultrason Sonochem. 2001;8(3):299-301.
- Xie Z, et al. Extraction and isolation of flavonoid glycosides from Flos Sophorae Immaturus using ultrasonic-assisted extraction followed by high-speed countercurrent chromatography. J Sep Sci. 2014;37(8):957-965.
- Wang G, et al. Efficient extraction of flavonoids from Flos Sophorae Immaturus by tailored and sustainable deep eutectic solvent as green extraction media. J Pharm Biomed Anal. 2019;170:285-294.
- Le NT, Nguyen TPD, Ho DV, Phung HT, Nguyen HT. A green method to extract rutin from Sophora japonica L. MethodsX. 2023;11:102479.
- Liu Y, et al. Sophora japonica flowers and their main phytochemical, rutin, regulate chemically induced murine colitis in association with targeting the NF-kappaB signaling pathway and gut microbiota. Food Chem. 2022;393:133395.
- Hao G, et al. Rutin inhibits neuroinflammation and provides neuroprotection in an experimental rat model of subarachnoid hemorrhage, possibly through suppressing the RAGE-NF-kappaB inflammatory signaling pathway. Neurochem Res. 2016;41(6):1496-1504.
- Dabeek WM, Marra MV. Dietary quercetin and kaempferol: bioavailability and potential cardiovascular-related bioactivity in humans. Nutrients. 2019;11(10):2288.
- Patel RV, et al. Therapeutic potential of quercetin as a cardiovascular agent. Eur J Med Chem. 2018;155:889-904.
- Han X, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010.
- Le K, et al. Quercetin alleviates neonatal hypoxic-ischemic brain injury by inhibiting microglia-derived oxidative stress and TLR4-mediated inflammation. Inflamm Res. 2020;69(12):1201-1213.
- Mi Y, Wu Q, Yuan W, Chen F, Du D. Role of microglia M1/M2 polarisation in the paraventricular nucleus: new insight into the development of stress-induced hypertension in rats. Auton Neurosci. 2018;213:71-80.
- Wei B, et al. Microglia in the hypothalamic paraventricular nucleus sense hemodynamic disturbance and promote sympathetic excitation in hypertension. Immunity. 2024;57(9):2030-42.e8.
- Wang M, et al. Microglia-mediated neuroinflammation: a potential target for the treatment of cardiovascular diseases. J Inflamm Res. 2022;15:3083-3094.
- Xu P, Sriramula S, Lazartigues E. ACE2/ANG-(1-7)/Mas pathway in the brain: the axis of good. Am J Physiol Regul Integr Comp Physiol. 2011;300(4):R804-817.
- Bader M. ACE2, angiotensin-(1-7), and Mas: the other side of the coin. Pflugers Arch. 2013;465(1):79-85.
- Sriramula S, Cardinale JP, Lazartigues E, Francis J. ACE2 overexpression in the paraventricular nucleus attenuates angiotensin II-induced hypertension. Cardiovasc Res. 2011;92(3):401-408.
- Silva AQ, Santos RA, Fontes MA. Blockade of endogenous angiotensin-(1-7) in the hypothalamic paraventricular nucleus reduces renal sympathetic tone. Hypertension. 2005;46(2):341-348.
- Biancardi VC, Stranahan AM, Krause EG, de Kloet AD, Stern JE. Cross talk between AT1 receptors and Toll-like receptor 4 in microglia contributes to angiotensin II-derived ROS production in the hypothalamic paraventricular nucleus. Am J Physiol Heart Circ Physiol. 2016;310(3):H404-115.
- Sun XY, et al. Rutin prevents tau pathology and neuroinflammation in a mouse model of Alzheimer’s disease. J Neuroinflammation. 2021;18(1):131.
- Shi P, et al. Brain microglial cytokines in neurogenic hypertension. Hypertension. 2010;56(2):297-303.
- Shen XZ, et al. Microglia participate in neurogenic regulation of hypertension. Hypertension. 2015;66(2):309-316.
- Simko F, et al. Effect of melatonin on the renin-angiotensin-aldosterone system in L-NAME-induced hypertension. Molecules. 2018;23(2):265.
- Selamoglu Talas Z. Propolis reduces oxidative stress in L-NAME-induced hypertension rats. Cell Biochem Funct. 2014;32(2):150-154.
- Moreira JD, et al. Inhibition of microglial activation in rats attenuates paraventricular nucleus inflammation in Gαi2 protein-dependent, salt-sensitive hypertension. Exp Physiol. 2019;104(12):1892-910.
- Wu Y, Sun R, Ren S, Zengin G, Li M. Neuronal reshaping of the tumor microenvironment in tumorigenesis and metastasis: bench to clinic. Medicine Advances. 2025;3(4):364-371.
- Xu J et al. Advancements in imaging technologies and AI integration for neurodegenerative disease management: a narrative review. Mol Imaging. 2025;24:15353508251393056.