このin silico研究では、F7プロモーターにおけるHNF4α結合を回復させることで、遺伝性FVII欠乏症におけるモデル化されたF7転写を改善できるかどうかを検討しました。計算解析により、主要な調節モチーフと強い遺伝子発現相関が同定されました。シミュレーションの結果、CRISPRaによる標的化でF7転写を正常レベルの約87%まで回復できることが予測され、実験的な検証の妥当性が示されました。
この記事について
サマリー
要約
遺伝性第VII因子(FVII)欠乏症は、F7遺伝子の発現低下および凝固能の低下に関連していますが、F7の転写を制御する調節機構はまだ十分に解明されていません。本研究は、転写因子の調節、プロモーターモチーフの修正、またはCRISPR活性化(CRISPRa)を介したエピジェネティックな調節を通じて、F7プロモーターにおける予測されたHNF4α結合を回復させることが、理論的に遺伝性FVII欠乏症における予測F7転写を増強できるかどうかを計算科学的に探索することを目的としました。JASPAR、FIMO、およびUCSC Genome Browserのデータセットを用いて保存された転写因子結合モチーフを特定することにより、F7プロモーターの調節ランドスケープを特徴づける完全なin silicoパイプラインを構築しました。肝臓における発現相関はGTExトランスクリプトームデータを用いて評価し、クロマチンアクセシビリティおよび調節コンテキストはENCODEのChIP-seq、ATAC-seq、およびChromHMM/Segwayアノテーションを用いて評価しました。また、24時間にわたるHNF4αの消失がF7転写に及ぼす予測影響をシミュレートするため、CellDesignerを用いて肝臓調節ネットワークを構築しました。その結果、近接F7プロモーター内に6つの信頼性の高いHNF4α結合モチーフが特定され、そのうち3つの領域は既知の疾患関連バリアントと重複していました。肝臓の発現解析では、F7とHNF4A(r = 0.68)およびHNF1A(r = 0.61)の間に正の相関が認められました。計算モデリングにより、HNF4αに関連する調節領域を標的としたCRISPRaを用いることで、モデル条件下においてシミュレートされたF7転写を野生型の約87%まで増加させることができ、標的特異性も予測されました。全体として、この純粋に計算科学的な研究は、遺伝性FVII欠乏症におけるプロモーター標的の調節戦略に優先順位を付けるための統合的なマルチオミクスフレームワークを提示しています。転写因子モチーフ解析、クロマチンアノテーション、トランスクリプトーム相関、調節ネットワークモデリング、およびCRISPRガイドの優先順位付けを統合パイプライン内で組み合わせることで、本研究は、従来の単一バリアント解析や個別の実験的解析を超えた体系的なアプローチを提供し、実験的に検証可能な仮説を生成しました。
概要
第VII因子(FVII)は、外因性経路を通じて凝固カスケードを開始させるビタミンK依存性セリンプロテアーゼである。血管損傷後、活性型FVII(FVIIa)が組織因子と複合体を形成し、トロンビンの生成とフィブリン血栓の形成を誘発する。F7遺伝子は染色体13q34に位置し、FVIIをコードしており、主に肝細胞で発現している1。F7の病原性変異は、遺伝性第VII因子欠乏症を引き起こす。これは稀な常染色体劣性遺伝の出血性疾患であり、世界的な推定発症率は約500,000人に1人とされている2。臨床症状は多岐にわたり、一般的に血中に残存するFVII活性と相関する3。
ほとんどの症例はF7コード領域内のミスセンス、ナンセンス、またはスプライス部位の変異に起因していますが、タンパク質構造を変えずに遺伝子発現を低下させるプロモーター変異も報告されています4。例えば、c.-94C>Gプロモーター変異は、近位F7プロモーター内の重要なSp1結合部位を破壊し、転写因子の結合を妨げることで、F7の転写を著しく減少させます。さらに、HNF-4結合部位に影響を与えるプロモーター変異も、プロモーター活性を低下させることが示されており、正常なF7発現には転写因子結合部位が完全であることが重要であることが強調されています5。c.-61T>G変異はHNF4結合部位を破壊することが報告されており、異なるプロモーター変異が、それぞれ異なる転写因子依存的なメカニズムを通じてF7転写を阻害し得ることを示しています6。
F7の発現は、肝細胞に富む転写因子、特にHepatocyte Nuclear Factor 4 alpha (HNF4α) および Liver Factor A1 (HNF1α) によって厳密に制御されています7,8,9。HNF4αは、ホモ二量体としてDNAに結合し、代謝および凝固に関与する多数の肝遺伝子を調節する核内受容体です10。また、HNF4αは共役活性化因子やクロマチンリモデリング複合体との相互作用を通じて、肝特異的遺伝子を活性化させる核内転写因子でもあります11。マウスノックアウトモデルを含む実験的研究では、HNF4αの欠失が広範な肝機能不全と、FVIIを含む複数の凝固因子の発現低下を招くことが示されています12。さらに、HNF4αの協調的な活性が、肝臓で発現するいくつかの遺伝子のプロモーター活性を高めることが報告されています13。以上の観察結果から、転写因子の結合不全が、プロモーター変異キャリアにおけるF7発現の低下に寄与している可能性が示唆されます。
CRISPR活性化(CRISPRa)などのエピゲノム調節アプローチは、DNA配列を変更せずに内因性遺伝子の発現を上昇させるための潜在的なツールとして登場しています。CRISPRaは、配列特異的なガイドRNA(gRNA)を用いて、触媒活性のないCas9(dCas9)を選択したゲノム遺伝子座へと誘導します。dCas9タンパク質は、テトラマー形式の単純ヘルペスウイルスVP16活性化ドメインであるVP64や、クロマチンリモデリングを通じて転写を促進するヒストンアセチルトランスフェラーゼであるp300などの転写活性化ドメインに融合されています14。Belaliらによる研究を含む最近の報告は、凝固関連遺伝子ネットワークにおけるHNF4αの中枢的な調節的役割をさらに支持しており、転写因子主導の調節戦略への関心を高めています15。先行研究では、Transcription Activator-Like Effector(TALE)ベースの手法およびCRISPRaを介した、低下したF7プロモーター活性の回復が実証されています16,17,18。しかし、これらの研究では個別のプロモーター標的戦略が評価されていましたが、本研究では、モチーフ予測、クロマチンアノテーション、トランスクリプトーム相関、調節ネットワーク解析、およびgRNAの優先順位付けを、単一の仮説生成計算フレームワーク内に統合しています。それにもかかわらず、F7プロモーター調節におけるHNF4αの治療上の関連性は、特に統合的なシステム視点からは、まだ十分に解明されていません。
個別のプロモーター変異体や孤立した実験的観察に焦点を当てた先行研究とは異なり、本フレームワークは、転写因子のモチーフ予測、トランスクリプトーム相関、クロマチンアクセシビリティ、調節ネットワーク解析、CRISPRガイド設計、およびゲノムワイドな特異性評価を単一の計算ワークフロー内に統合しています。この統合的な戦略により、実験的検証の前に候補となる調節介入を体系的に優先順位付けすることが可能となり、単一のデータタイプのみに基づく解析よりも包括的な仮説生成プラットフォームを提供します。
プロトコル
使用したデータベースは、材料表に記載されています。
プロモーター配列の取得と計算機によるアノテーション
ヒトF7プロモーター領域(GenBankアクセッション番号:NG_009262.1)を、GRCh38/hg38リファレンスゲノムアセンブリを用いてNCBIから取得した。すべての解析は、再現可能な計算フレームワーク内においてin silicoで実施した。プロモーターは、UCSC Genome Browser(RefSeqアノテーション)から得られた注釈付き転写開始点(TSS)を基準として、−1000 bpから+100 bpまでと定義した。配列の抽出はFASTA形式で行い、座標の整合性を確認するためEnsemblリリース109と相互検証した。プロモーター配列に対し、カスタムPythonスクリプト(v3.10)およびBiopython(v1.81)を用いて、転写因子結合部位(TFBS)、既知のバリアント、CpG含有量、およびGC組成の計算アノテーションを行った。すべてのアノテーションは計算による予測であり、実験的な検証は行っていない。
転写因子結合部位(TFBS)解析
予測されるHNF4α およびHNF1α 結合モチーフの同定には、JASPAR 2022 CORE脊椎動物データベースと、位置荷重行列(PWM)MA0114.4 (HNF4A) および MA0046.2 (HNF1A) を使用した。モチーフスキャニングはFIMO (MEME Suite v5.5.0) を用いて実施した。ワークフローには、プロモーターのFASTAファイルのアップロード、PWMの選択、プロモーター特異的なヌクレオチド背景モデルの構築、およびDNA両鎖のスキャニングが含まれる。モチーフの有意性は、以下のしきい値を用いて評価した。 p ≤ 1 × 10⁻4、その後、ベンジャミーニ・ホッホベルグ補正を行った。FIMOの出力はTSVファイルとして書き出され、補正後のp値を用いて予測されたモチーフを q 値 <0.05以上のものが保持された。予測されたTFBS座標は、BEDTools (v2.30) を用いて、dbSNP build 155およびHGMD Professional (2023.2) の疾患関連バリアントと交差させた。疾患関連のc.-61T>Gプロモーター変異体について、報告されているHNF4への近接性の観点から評価を行った。α 結合部位であり、F7プロモーター活性における潜在的な調節的役割が示唆される。計算上のモチーフの重複は予測として解釈され、実験的に確認された転写因子(TF)の阻害の根拠とはみなされなかった。同定されたモチーフは、実験的に確認された占有ではなく、予測される転写因子結合能を表している。
進化的な保存性とエピジェネティックなアノテーション
予測された調節領域の進化的な保存性は、UCSCの100個の脊椎動物アラインメント(hg38)に基づくPhyloPおよびPhastConsスコアを用いて評価した。PhastConsスコアが0.7以上の領域を、保存された調節エレメントとして優先的に選出した。
調節領域のクロマチンコンテキストを、UCSC Genome BrowserおよびENCODEデータセットを用いて評価した。hg38アセンブリを使用し、ENCODE転写因子ChIP-seq、H3K27ac、H3K4me3、DNase I高感受性部位、ATAC-seq、ChromHMM、およびSegwayアノテーションを含む関連トラックグループを有効にした。シグナルトラックは、適宜BEDおよびbigWigファイルとしてエクスポートした。ENCODEのbigWigデータセットはdeepTools (v3.5.1)を用いて処理し、下流解析の前にレプリケートのシグナルを平均化した。予測されたTF結合部位を、±50 bpのオーバーラップウィンドウを用いて、利用可能なHNF4α/HNF1α ChIP-seqピークと比較した。これらの解析は調節能を推論するために行われたものであり、in vivoでの機能的結合を証明するものではない。
遺伝子発現相関分析
肝臓のRNA-seq発現データはGTEx v8(肝臓サンプル226検体)から取得した。F7、HNF4A、およびHNF1AのTPM正規化発現値について、log2(TPM+1)変換を行った。ピアソン相関分析は、R (v4.3.1) のcor.test関数を用いて両側検定で実施した。必要に応じて、Benjamini–Hochberg法を用いて多重比較の補正を行った。相関関係は関連性として解釈し、直接的な制御因果関係の証拠とはしていない。
調節ネットワークの構築
タンパク質相互作用および調節ネットワークの情報は、最小相互作用信頼度スコアを0.7としてSTRING v11.5から取得した。STRINGで生成されたTSV相互作用ファイルをCytoscape v3.9.1にインポートし、ネットワークの構築と可視化を行った。ネットワークモジュールは、MCODEプラグインを用い、以下のパラメータ(Degree cutoff = 2; Node score cutoff = 0.2; K-core = 2; Maximum depth = 100)を使用して同定した。
有意なクラスターを、後続の解析のためにエクスポートしました。機能濃縮解析は、偽発見率(FDR)<0.05としてSTRING濃縮解析を用いて行いました。ネットワーク解析は、予測およびキュレーションされた生物学的関係を示しており、仮説構築に使用されました。
転写活性化の計算モデリング
HNF4αの変調がF7の転写に及ぼす予測効果をシミュレートするため、CellDesigner v4.4を用いて動的調節モデルを構築した。モデルはSBML形式で表現し、決定論的な常微分方程式(ODE)ベースのソルバーを用いてシミュレーションを行った。モデルの入力項目は以下の通りである:(1) GTExの肝臓データから得られた正規化後のHNF4A、HNF1A、およびF7の発現値、(2) FIMOモチーフスコア(0~1にスケール化)から得られた転写因子の相対的結合親和性、(3) ENCODEのATAC-seqおよびDNase-seqのシグナル強度から得られたクロマチンアクセシビリティの重み、(4) H3K27acおよびH3K4me3のプロファイルを取り入れた活性クロマチンパラメータ。
シミュレーションは、適応数値積分を用いて24時間にわたって実施し、あらかじめ設定した間隔で出力を記録した。ノックアウト条件は、転写因子の活性を0%に設定することでモデル化した。出力変数には、正規化したF7転写産物量、相対的なプロモーター活性化状態、および転写因子活性を含めた。すべての発現出力は、摂動のないベースラインモデル(100%)に対して正規化した。公開データセットから入手できなかったパラメータは、感度解析に基づいたチューニングを用いて推定し、補足表1に示した。すべてのモデル出力は、定義された前提条件に基づく計算上の予測であり、実験的に測定された生物学的応答を示すものではない。
HNF4αモチーフに対するCRISPRa gRNAの設計
CRISPR活性化(CRISPRa)のターゲットは、Benchling(2024 build)およびCRISPORを用いて完全に計算機上で設計した。F7プロモーター領域(TSSに対して−500から+100 bp)において、信頼性の高いHNF4αモチーフの±200 bp以内に存在するSpCas9 NGG PAMサイトをスキャンした。候補となるガイドは、以下の基準に従ってフィルタリングした:(1) Doench 2016オンターゲットスコア ≥50、(2) CFDオフターゲットスコア ≥70、(3) GC含有量 40%–60%、(4) 4 bp以上のpoly-T配列が存在しないこと。
ATAC-seqから予測されたクロマチンアクセシビリティとNuPoPによるヌクレオソーム占有率の推定値を組み込み、アクセシブルな調節領域の優先順位付けを行いました。dCas9-VP64およびdCas9-p300アーキテクチャを用いた潜在的なCRISPRa応答を計算機的にモデリングし、これを予測された活性化ポテンシャルとしてのみ解釈しました。
モチーフ復元のためのCRISPR-Cas9編集設計
HNF4αの認識を阻害するプロモーター変異の修正に関する理論的な実現可能性を評価するため、HNF4αに関連する代表的な調節変異としてc.-61T>G変異を選択した。c.-61T>G変異を挟むようにgRNA-LおよびgRNA-Rと命名された2つのSpCas9ガイドRNAを設計し、それぞれ独立して、また複合的なデュアルガイド構成として評価した。変異部位に参照プロモーター配列を含む1本鎖HDR修復テンプレートを、100-bpのホモロジーアームを用いてモデル化した。候補となるガイドは、予測特異性についてCRISPORおよびCas-OFFinderを用いて計算的に評価し、予測切断活性の推定にはCRISPRscanを用いた。その後、ICEベースのモデリングを用いて、個別のガイド構成および複合的なガイド構成における理論的な編集結果を推定した。gRNA-L/gRNA-Rの複合構成は、3つ目の独立したガイドとしてではなく、デュアルガイド戦略として扱った。予測されたすべての編集効率および結果は計算による推定値であり、実験的なHDR効率、HNF4α結合の回復、細胞内でのプロモーター配列の修正、またはF7転写の回復を実証するものではない。
エピジェネティック編集シミュレーションとクロマチンアクセシビリティモデリング
候補となるCRISPRa部位周辺のクロマチンアクセシビリティを、HepG2細胞由来のENCODE ATAC-seqおよびDNase-seqデータセットを用いて評価した。シグナル強度は、各候補ガイド配列を中心とした100 bpのウィンドウ内で定量化した。局所的な調節クロマチン状態の分類には、ChromHMM(15状態モデル)およびSegwayのアノテーションを使用した。
候補となるCRISPRaターゲットの順位付けを行うため、(1) モチーフの近接性、(2) ATAC-seqアクセシビリティ、(3) DNase I高感受性、(4) H3K27ac濃縮、および (5) H3K4me3濃縮を統合した複合活性化スコアを算出した。予測される転写応答は、モデル化されたクロマチン条件下でシミュレーションされ、理論的な推定値として解釈された。
CRISPRaおよびHDR戦略におけるオフターゲットリスクの評価
CRISPOR CFDスコアリング、Cas-OFFinderによる列挙、およびCRISPRscanの予測を用いて、ゲノムワイドな特異性の評価を行った。予測されるオフターゲット相互作用、特に転写活性領域内での相互作用を最小限に抑えるように、候補ガイドをフィルタリングした。
追加の除外基準は以下の通りとした:(1) 注釈付きTSS領域の±1 kb以内に予測されるオフターゲット部位、(2) 共有プロモーター領域との重複、(3) エンハンサー要素との重複、(4) ChromHMMおよびSegwayの注釈に基づく、近接する肝臓発現遺伝子に関連する調節領域。
候補デザインの優先順位を決定するために、ガイド効率、予測されるオフターゲット負荷、およびクロマチンコンテキストを統合した複合特異性スコアを算出した。この多層的な計算スクリーニング戦略は理論的な特異性を推定するものであり、ゲノムワイドなオフターゲット検証という実験的評価に代わるものではない。入力データセット、解析ツール、フィルタリング基準、および出力チェックポイントを含む計算ワークフローの要約をSupplementary Table 2に記載している。
重要な計算パラメータ
計算パイプラインの信頼性の高いパフォーマンスは、いくつかの事前定義されたパラメータ設定に依存していました。モチーフ検出は、JASPARのHNF4AおよびHNF1Aポジションウェイトマトリックスを用い、FIMO(p < 1 × 10⁻4; q < 0.05)を使用して最適化しました。クロマチン統合には、一貫したhg38座標と、ENCODEのATAC-seq、DNase-seq、H3K27ac、およびH3K4me3データセットからの整合性のあるエビデンスが必要でした。制御ネットワークは、STRINGインタラクション(confidence ≥0.70)およびCytoscapeにおけるMCODEクラスタリングを用いて作成されました。動的シミュレーションは、GTEx由来の発現値、FIMOモチーフスコア、およびENCODEクロマチンアクセシビリティ重みを用い、決定論的ODEソルバーを使用してCellDesignerで実施されました。候補となるCRISPRaガイドRNA(gRNA)は、Doench 2016のオンターゲットスコア(≥50)、CFD特異性スコア(≥70)、GC含有量(40%–60%)、予測オフターゲットの最小化、およびアクセシブルなクロマチン内での局在に基づいて優先順位を付けられました。ワークフローの完了は、モチーフ同定、ネットワーク生成、クロマチンアノテーション、gRNA選択、および安定したシミュレーション出力の成功によって検証されました。
結果
F7プロモーターにおける機能的なHNF4αおよびHNF1α結合モチーフの予測
FIMOおよびJASPAR 2022データベースを用いたコンピューターによるモチーフスキャニングにより、F7遺伝子の1 kb上流プロモーター領域内に、信頼性の高いHNF4α結合モチーフ3箇所とHNF1α結合モチーフ3箇所が予測されました。予測されたモチーフは保存されたプロモーター領域内に位置し、肝細胞核因子認識配列に相当していました(p < 1 × 10⁻4)。注目すべき点として、これらの予測モチーフのうち2つは、遺伝性第VII因子欠乏症に関連して以前に報告された変異の近傍に位置していました。HNF4αに関連するモチーフは、c.-61T>Gプロモーター変異の近くに位置していました。ENCODE(HepG2)のChIP-seqトラックでは、これらのプロモーター領域においてHNF4αおよびHNF1αの結合シグナルの濃縮が示されており、このコンピューター解析の枠組みにおける推定的な調節的関連性が支持されました(図1)。
F7と肝転写因子発現の相関
GTExの肝臓組織サンプル(n = 226)から得られたトランスクリプトームデータにより、F7とHNF4Aの発現間に有意な正の相関(Pearson’s r = 0.68, p < 0.001)が、またF7とHNF1Aの発現間に正の相関(r = 0.61, p < 0.01)があることが明らかになった。これらの相関は、F7、HNF4α、およびHNF1Aの間に知られている調節関係を再現している17,18。計算フレームワークにおいて、これらは内部バリデーションステップとして機能し、パイプラインをプロモーター変異のコンテキストに拡張する前に、それが確立された生物学を反映していることを裏付けている(図 2)。
制御ネットワークおよびクロマチン景観解析
STRINGとCytoscapeを用いたネットワークモデリングにより、HNF4が予測された。α およびHNF1α 凝固因子遺伝子が集積する肝臓の転写ネットワーク内のセントラルノードとして機能する。ENCODEのエピゲノムデータにより、HepG2および一次肝細胞サンプルにおけるF7プロモーターが、活性化ヒストン修飾(H3K4me3、H3K27ac)およびオープンクロマチンによって標識された領域と重複していることが確認された(付随表3 および 図1)。比較トランスクリプトームデータセットにより、F7、HNF4A、およびHNF1AがHepG2、Huh7、およびHep3Bにおいて共発現していることが示されましたが、その発現レベルは細胞株によって異なっていました。利用可能なデータにおいて、Huh7およびHep3Bのプロモーターアクセシビリティとヒストンプロファイルは、概ねHepG2と一致しており、肝細胞由来の細胞株間において活性化プロモーターのクロマチン景観が一貫していることが裏付けられました(付随図 1)、一方で、非肝細胞株(K562、HeLaなど)ではクロマチンアクセシビリティが大幅に低下していた。これらの知見は、F7の肝臓特異的な調節を支持すると同時に、肝細胞モデル間での変動性を浮き彫りにしている(図3).
CRISPRa gRNAの設計および転写再活性化のシミュレーション
高スコアのHNF4αモチーフ近傍にあるプロキシマルF7プロモーターを標的とする4つのgRNAを設計した(Supplementary Table 4)。これらはすべて、高いオンターゲット活性(>60)および最小限の予測オフターゲット効果という事前定義済みの基準を満たしていた。シミュレーションでは、dCas9-VP64およびdCas9-p300を個別に用いた場合、予測されるF7発現量はそれぞれ野生型リファレンスの68%および76%まで増加し、dCas9-VP64+p300による複合的な活性化では予測発現量が野生型レベルの87%まで増加することが示された(Figure 4B、Supplementary Table 5)。ここで、野生型プロモーター活性を100%(1.0)と定義し、すべてのシミュレーション値をこのリファレンスで正規化した。これらの結果は、複合的なCRISPRa活性化がプロモーター変異による転写抑制を補完できる可能性を示唆しているが、これらの値は実験的に測定された発現量ではなく計算上の予測値である。重要な点として、CRISPRaによるF7回復の内因性HNF4A活性への依存性を、動的調節シミュレーションを通じて明確に評価した。CRISPRaはF7転写を増強したが、依然として機能的なHNF4Aに依存していた。したがって、HNF4Aの利用可能性または機能が損なわれている条件下では、予測される回復は大幅に減弱した(Figure 4)。
In silico CRISPR-Cas9 HDR戦略によるモチーフの復元
HNF4αの認識に影響を及ぼすと報告されているプロモーター変異のうち、c.-61T>G変異をHNF4α関連変異の代表として選択し、一方でc.-94C>Gは、確立されたHNF4α破壊変異ではなく、既知のSp1部位変異として個別に扱った。HNF4α関連変異に対して、CRISPR-Cas9 HDR補正戦略をin silicoでモデル化した。変異部位を挟むように設計した2つのgRNA(gRNA-LおよびgRNA-Rと命名)を選択し、単独および組み合わせで評価した。対応する単鎖HDR修復テンプレートには、標準的なHNF4α結合部位を含む参照プロモーター配列を組み込み、100-bpのホモロジーアームを設けた。ガイドの特異性と切断活性の予測評価にはCas-OFFinderおよびCRISPRscanを用いたin silicoアセスメントを行い、理論的な編集結果の推定にはICEベースのモデリングを用いた。予測される編集効率はガイドの構成によって異なり、gRNA-L/gRNA-Rの組み合わせ設計は、3つ目の独立したgRNAとしてではなく、デュアルガイド戦略として評価した。c.-94C>Gは、その調節上の重要性が確立されているため、広範なプロモーター解析には含めたが、HDRモデルにおいてHNF4αモチーフ破壊変異としては解釈しなかった。これらの結果はプロモーター配列補正の可能性に関する計算上の予測であり、実験的なHDR効率、HNF4α結合の回復、または野生型F7プロモーター活性の回復を立証するものではない(Figure 5)。
クロマチンのアクセシビリティとエピジェネティックな活性化能
HepG2細胞におけるATAC-seqおよびDNase I高感受性データの解析により、すべてのCRISPRa標的部位がクロマチンアクセシビリティの高い領域内に位置していることが予測されました。これらの知見をHNF4α ChIP-seqおよびH3K27ac濃縮の結果と統合したことで、これらの部位の活性化ポテンシャルがさらに裏付けられました。エピジェネティック編集のシミュレーションでは、良好なクロマチンリマデリングの結果が予測され、CRISPRa介在性の活性化による転写因子のリクルート促進が見込まれました(図 6)。
gRNA設計のゲノムワイドな特異性の評価
In silico CRISPRa gRNAスクリーニングにより、CRISPRaとHDRの両アプローチにおいて高い配列特異性が明らかになった(Supplementary Table 6)。CRISPORおよびBenchlingによる解析により、転写活性の高いプロモーター領域内にオフターゲットである可能性が高いgRNAはすべて除外した。CRISPRaの設計において、ENCODE由来のATAC-seqおよびH3K27acデータは、選択したすべての標的サイトがF7特異的なオープンクロマチン内に位置していることを示した。候補となるgRNAに、エンハンサー領域や共通のプロモーター要素との重複は認められなかった。ChromHMMおよびSegwayによるクロマチン状態アノテーションは、これらの領域が肝細胞特異的な活性プロモーターであるという分類をさらに裏付け、隣接する共調節遺伝子のプロモーターとの重複はなかった。オフターゲット配列の類似性、クロマチンアクセシビリティ、および制御アノテーションを統合した複合的な計算特異性スコアリングにより、選択したCRISPRaガイドによる意図しないトランス活性化の確率は低い(0.4%–0.6%)と予測された(Figure 7)。再現性と一貫した実施を容易にするため、一般的な計算ワークフローの問題、その考えられる原因、および推奨される修正措置をSupplementary Table 7にまとめた。
データの可用性:
著者は、本研究の結果を裏付けるすべてのデータが本文中に提供されており、Zenodo(https://doi.org/10.5281/zenodo.21735831)で利用可能であることを確認しています。
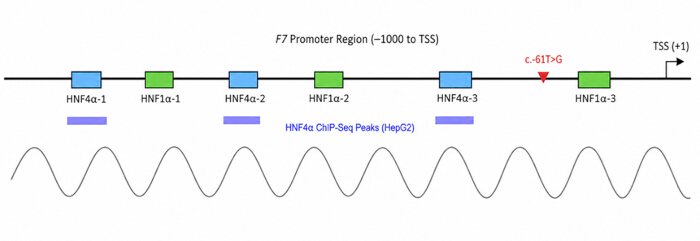
図 1: F7 プロモーターにおける HNF4α および HNF1α の予測結合モチーフ. F7 遺伝子の 1 kb 上流プロモーター領域の概略図であり、HNF4α および HNF1α の 6 つの予測結合モチーフ(色付きのボックス)を示している。これらは脊椎動物の保存スコア (PhyloP) と重ね合わせられており、病原性 c.-61T>G 変異を含む、既知の疾患関連バリアント(赤印)が付記されている。HepG2 細胞からの HNF4α ChIP-seq ピークは濃縮を示している。この図の拡大版を表示するには、こちらをクリックしてください。
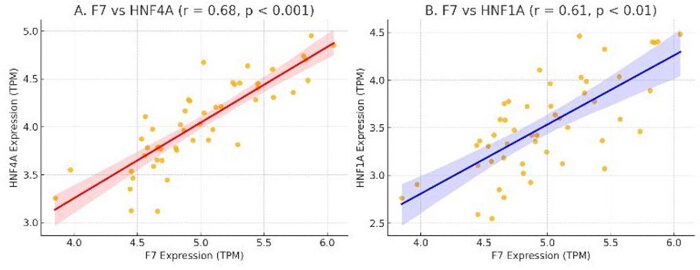
図 2: F7と肝臓転写因子の相関. (A) F7の発現はHNF4Aと強い正の相関を示す (r = 0.68, p < 0.001). (B) F7の発現はHNF1Aとも正の相関を示す (r = 0.61, p < 0.01). 各点はGTExデータセットの肝臓サンプルを表す。95%信頼区間を伴う回帰線を表示している。相関は関連性を示すものであり、直接的な調節因果関係を立証するものではない。こちらのリンクからこの図の拡大版をご覧いただけます。
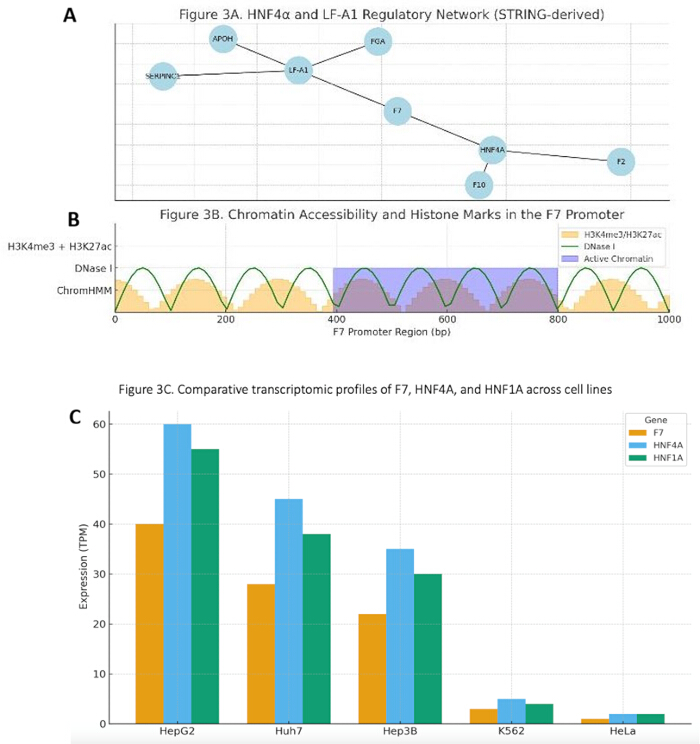
図3肝臓の制御ネットワーク濃縮度とクロマチンランドスケープ. (AHNF4を中心としたSTRING由来の転写ネットワークα ~との予測調節関連を示す F7 およびその他の凝固関連遺伝子。(BUCSC形式のブラウザトラックにより、DNase Iによるオープンクロマチン、ヒストン修飾(H3K4me3/H3K27ac)、およびChromHMMによるクロマチン状態のセグメンテーションが、〜の周囲に示されている。 F7 HepG2細胞におけるプロモーターであり、転写活性領域と一致している。C比較トランスクリプトーム解析により、〜の共発現が示されている F7、HNF4A、およびHNF1Aは、肝細胞株(HepG2、Huh7、Hep3B)において様々なレベルで発現している一方、非肝細胞株(K562、HeLa)では発現が低下している。Huh7およびHep3Bにおけるプロモーターのアクセシビリティとヒストンのプロファイルは、概ねHepG2と一致していた。 この図の拡大版を表示するには、こちらをクリックしてください。
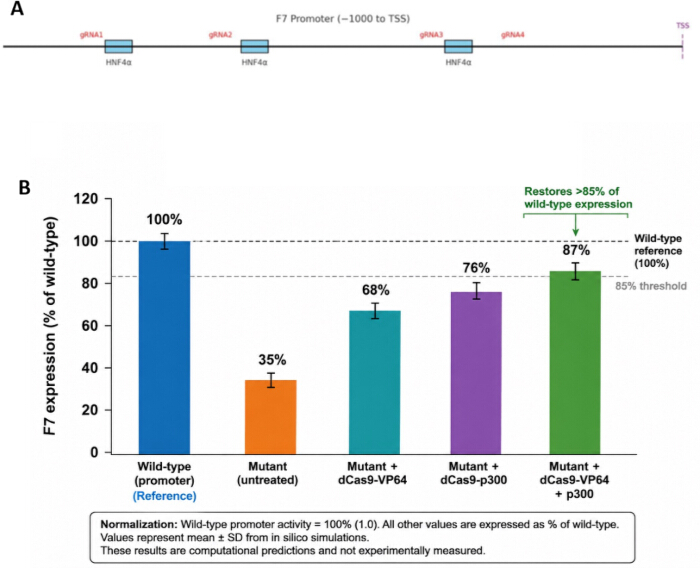
図 4: CRISPRa gRNAの設計および転写活性化シミュレーション. (A>) HNF4α結合モチーフおよびF7転写開始点 (TSS) に対するCRISPRaガイドRNA (gRNA1–gRNA4) の予測位置を示す図。(B>) 野生型および変異型プロモーター条件下における、異なるCRISPRa戦略下でのF7のシミュレーション転写出力。F7の発現は野生型プロモーターを100% (1.0) として正規化した。変異型プロモーターモデルにおいて、予測発現量は野生型の35%であったが、dCas9-VP64で68%、dCas9-p300で76%、dCas9-VP64+p300の併用活性化で87%まで増加し、これにより85%の閾値を超えた。このin silicoシミュレーションにはHepG2細胞のエピゲノムおよびトランスクリプトームの入力データが組み込まれており、実験的に測定された発現量ではなく計算による予測値である。ここをクリックして、この図の拡大版を表示してください。
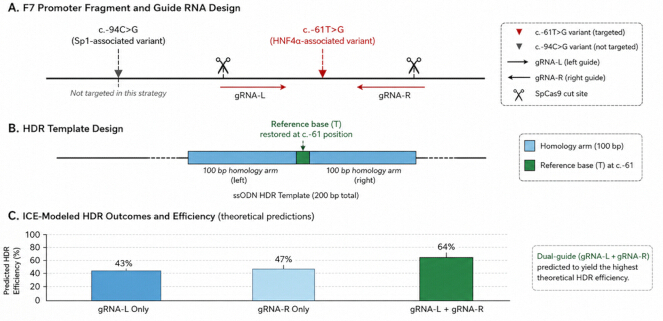
図5モチーフ修正のためのCRISPR-Cas9 HDR戦略. (A) c.-61Tを示すF7プロモーター領域の模式図>補正の標的となるGバリアント(HNF1$\alpha$関連)。c.-94C>Gバリアント(Sp1関連)はこの戦略での標的ではなかったため、参照用として示しています。c.-61Tの両端を挟むように、2つのSpCas9ガイドRNA(gRNA-LおよびgRNA-R)を設計しました。>Gサイト(Bc.-61位にリファレンス塩基(T)を含み、両端に100 bpのホモロジーアームを有する単鎖HDR(sODN)修復テンプレート。C) 個々のガイドおよびデュアルガイド(gRNA-L + gRNA-R)構成における編集効率のICEモデル予測。デュアルガイド戦略は、理論上のHDR効率が最も高くなることが予測されている。すべての結果は計算上の予測であり、HDRの成功、HNF4a結合の回復、またはF7転写の回復を実証するものではない。 この図の拡大版を表示するには、ここをクリックしてください。
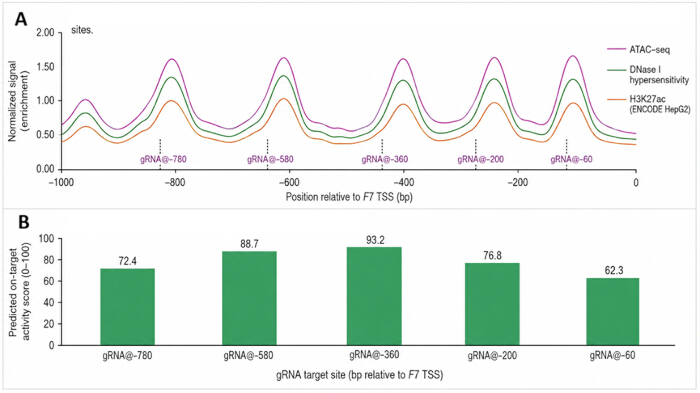
図6クロマチンのアクセシビリティおよびCRISPRa標的部位の活性化ポテンシャル. (A) 1-kb上流領域におけるATAC-seq、DNase I過敏性、およびH3K27ac濃縮のトラック F7 プロモーター領域におけるクロマチンアクセシビリティの亢進および活性化した制御クロマチン領域が示されている。垂直の破線は、5つのCRISPRa gRNAターゲット部位(gRNA@−780、gRNA@−740、gRNA@−580、gRNA@−360、およびgRNA@−200)の位置を示す。B) 各gRNAの予測転写活性化スコアは、アクセシブルでH3K27acが濃縮された領域を標的とすることで、より高い活性が得られる可能性を示唆している F7 活性化され、gRNA@−580で最高の予測活性を示した。 こちらの図の拡大版を表示するには、ここをクリックしてください。
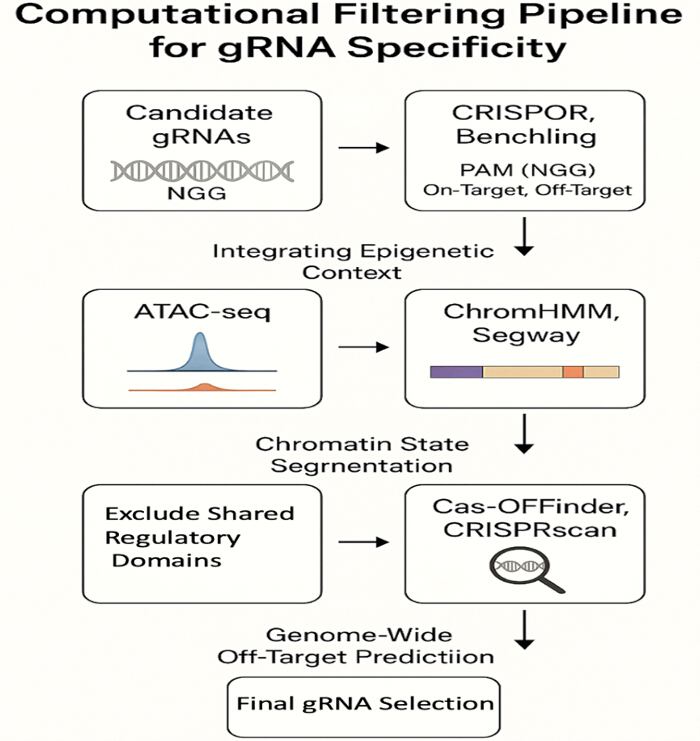
図 7: gRNA特異性のための計算フィルタリングパイプライン. 高い特異性を持つCRISPRaおよびHDR gRNAを同定するために用いられたin silicoパイプラインの概略図。このプロセスでは、予測されるトランス活性化および切断のリスクを最小限に抑えるため、配列ベースのフィルタリング(CRISPOR、Benchling)、エピジェネティックなコンテキスト(ATAC-seq、H3K27ac)、クロマチン状態のセグメンテーション(ChromHMM、Segway)、およびゲノムワイドなオフターゲット予測ツール(Cas-OFFinder、CRISPRscan)を統合している。こちらのリンクをクリックして、この図の拡大版を表示してください。
補足図1:HepG2、Huh7、およびHep3B細胞におけるF7プロモーターのクロマチンアクセシビリティおよびプロモーター関連ヒストン修飾プロファイルの比較。正規化したATAC-seq (A) のアクセシビリティ、ならびにH3K27ac (B) およびH3K4me3 (C) の濃縮度は、これら3つの肝細胞由来細胞株において概ね一貫した活性化プロモータークロマチンが存在することを示しており(D)、F7調節解析における計算モデルとしての有用性を裏付けている。こちらのリンクをクリックしてファイルをダウンロードしてください。
補足表1:計算転写モデルで使用したパラメーター。F7の転写調節に関するCellDesignerベースのシミュレーションで使用したパラメーター値の要約。パラメーターには、HNF4αおよびHNF1αの転写因子活性係数、ENCODEクロマチンデータセットから得られたプロモーターアクセシビリティ修飾因子、転写速度定数、およびmRNA分解パラメーターが含まれる。こちらのリンクからファイルをダウンロードしてください。
補足表2:計算ワークフローのチェックポイント。プロモーター注釈、転写因子結合部位予測、CRISPRaガイド選択、クロマチンアクセシビリティ評価、オフターゲット評価、およびシミュレーションゲノム編集解析の各段階における計算ツール、入力データセット、主要なフィルタリング基準、および期待される出力をまとめたin silico解析パイプラインの概要。こちらのリンクからファイルをダウンロードしてください。
補足表3:HepG2、Huh7、およびHep3B細胞におけるF7プロモーターのENCODE由来クロマチンアクセシビリティおよびプロモーター関連ヒストン修飾プロファイルの比較。正規化されたATAC-seqアクセシビリティ、H3K27acおよびH3K4me3の濃縮度、ならびにChromHMMプロモーター状態アノテーションは、これら3つの肝細胞由来細胞株間で概ね一貫した活性プロモーター構造であることを示している。数値は、比較in silico解析をサポートするために計算的に導出されたサマリーを表している。こちらのリンクからファイルをダウンロードしてください。
付録表4:F7プロモーターを標的とする候補CRISPRaガイドRNAの完全な特異性およびオフターゲット解析。本表は、ガイド配列、予測オンターゲット効率、特異性スコア、オフターゲット予測、クロマチンアクセシビリティ、制御アノテーション、および計算機的なガイド選択に使用された複合ランキングをまとめたものである。すべての値はin silico予測値である。こちらをクリックしてファイルをダウンロードしてください。
補足表5:プロモーターのアクセシビリティ、転写因子の占有率、およびCRISPRa活性化パラメータを統合した計算フレームワークを用いて、予測制御スコアを算出した。数値は、野生型F7プロモーター(1.0、発現率100%に設定)に対する正規化されたin silico推定値である。これらのシミュレーションは仮説を生成するためのものであり、実験的に測定されたF7の転写活性を示すものではない。こちらのリンクをクリックしてファイルをダウンロードしてください。
補足表6:F7プロモーターを標的とした選択的CRISPRaおよびHDRガイドRNAのゲノムワイドなオフターゲット解析および複合特異性スコアリング。本表は、ガイドの特異性を評価し、ゲノムワイドなトランス活性化リスクをin silicoで推定するために使用した、予測オンターゲット性能、特異性指標、オフターゲットプロファイル、クロマチンコンテキスト、および複合リスクスコアをまとめたものである。こちらのリンクからファイルをダウンロードしてください。
補足表7:F7プロモーター解析中に発生しやすい一般的な計算ワークフローの問題のまとめと、再現性、データの整合性、および信頼性の高いin silicoモデリング結果を確保するための推奨される修正措置。こちらのリンクをクリックしてファイルをダウンロードしてください。
ディスカッション
本研究では、転写制御を検討するための、純粋に計算に基づく仮説生成フレームワークを提示する F7 遺伝性FVII欠損症における候補プロモーター標的戦略の優先順位付けに向けた遺伝子の同定。モチーフ解析、トランスクリプトーム相関、クロマチン注釈およびgRNAの優先順位付けを統合することにより、本パイプラインは機能的回復を実証するものではなく、調節関係および介入の実現可能性を予測する。本研究の主な貢献は、実験的に検証可能な標的を体系的に絞り込むことにある。 F7 プロモーター
機構的には、この知見は、肝細胞に豊富に存在する転写因子HNF4α およびHNF1α 基底を維持するために協働する F7 転写。保存された高親和性HNF4の同定α 病原性プロモーター変異と重複するモチーフは、cis-制御的結合能の喪失が発現低下に寄与する可能性のあるメカニズムであることを示唆している F7 転写4,5,10肝臓の遺伝子ネットワークにおいて、HNF4α 開拓因子様の核内受容体として機能し、プロモーターのアクセス可能性を安定化して共活性化複合体をリクルートする一方、HNF1α 転写産出量を強化するために、しばしば相乗的に作用する7,11,12. 制約条件の範囲内で イン・シリコ モデル、モチーフ親和性の低下、または模擬的なTF枯渇は、予測される発現量の減少を引き起こした F7 転写は、この協同的制御構造と一致している。
F7、HNF4A、およびHNF1Aの発現間に観察された強い肝臓特異的な相関は、共通の制御プログラムの存在を裏付けるものであるが、これを証明するものではない。重要なことに、これらの相関関係は単なる連関であり、直接的な転写制御を立証することはできない。それにもかかわらず、ネットワークのトポロジーにおいてHNF4が上位に位置していることからαHNF1α 凝固関連モジュールの中核ノードにあることは、従来の実験文献と機械論的に整合性があり、今後の研究における優先順位付けを支持している19,20.
エピゲノム統合は、追加のメカニズム的階層を提供する。予測されたHNF4とのオーバーラップα モチーフと活性クロマチンマーカー(H3K4me3、H3K27ac)は、近位領域における転写開始の可能性を示唆している F7 プロモーターは肝細胞由来のデータセットにおいて許容的なクロマチン環境に存在する21,22計算論的文脈において、このアクセシビリティは、CRISPRaなどの転写上昇調節戦略がこの遺伝子座に作用し得るという理論的前提を支持する。しかしながら、クロマチン状態は細胞型に強く依存する– 状況に依存し、ENCODE由来のシグナルは患者由来の肝細胞や疾患状態を完全に再現していない可能性がある23,24.
CRISPRaおよびHDR戦略のモデル化は、潜在的な制御ポイントを予測するための知見を提供する。シミュレーションの結果、高親和性HNF4を標的とすることが有効であることが示唆されている。α モチーフはモデル化されたものを増加させる可能性がある F7 特定のパラメータ条件下での転写制御に対して、HDR法に基づくモチーフ補正は理論上、標準的な結合構造を回復できる可能性がある。機構的には、CRISPRaは転写共活性化因子(例:VP64またはp300)を局所的にリクルートすることにより機能すると予想されており、これが内因性の肝臓特異的転写因子と同時に存在する場合には相乗的に作用する可能性がある10,12,16.
モデルは、HNF4の発現低下によりCRISPRaの応答性が低下することを予測した。α 活性が低下しており、内因性の調節回路が intact であることに依存していることが示唆された。CRISPRa の効果は、肝臓の転写装置が intact であることに依存すると予測される。病原性の HNF4A 変異を持つ患者では、CRISPRa は内因性の転写を補強するものであって、それを置き換えるものではないため、反応が乏しい可能性がある。したがって、本フレームワークは、F7 プロモーター変異を有し、かつ HNF4A 活性が intact である患者に最も適用可能である。
モチーフ予測は確認されない 生体内 転写因子結合および公共データセットから得られたクロマチン注釈は、患者における制御状態を反映していない可能性がある F7 プロモーター変異体。同様に、相関解析では、直接的および間接的な制御関係を区別することはできない。
動的転写モデルは、転写因子の協同性、クロマチンの重み付け、および転写の力学に関するパラメータ推定と単純化された仮定に依存している。感度に基づく調整が行われたものの、このモデルは肝臓特異的遺伝子制御の抽象的な表現に過ぎず、非線形性や文脈依存的な制御行動を完全に捉えられない可能性がある。パラメータのわずかな変更により、予測される回復効果の大きさが変化する可能性がある。モデルのロバスト性を向上させるため、推定された転写因子活性係数およびクロマチン可及性の重みは、可能な限り公開されている生物学的データセットから選択し、精査した。 を介して 感度ガイド付きパラメータ調整。候補となる制御戦略の定性的なランキングは生物学的に妥当なパラメータ範囲全体で安定していたが、転写回復の定量的予測は依然としてモデルの仮定に依存するため、解釈には注意が必要である。したがって、予測される回復率は、生物学的有効性の正確な推定値というよりも、比較による優先順位付けを目的としている。
CRISPRガイドの優先順位付けは、以下の基準に基づいて行われた。 イン・シリコ 実世界での編集または活性化効率を完全に予測できないスコアリングアルゴリズム。オフターゲットリスク評価は多層的であるものの、GUIDE-seqやDigenome-seqなどの経験的なゲノムワイドアッセイに代わるものではない。25,26さらに、計算によるオフターゲット予測だけでは、臨床的ゲノム編集の生体安全性を確立するには不十分である。複数の予測ツールを統合してガイドRNAの優先順位付けを行ったものの、確実な生体安全性の確立には、全ゲノム規模でのオフターゲットアッセイ、トランスクリプトームプロファイリング、および長期的な機能的検証が必要である。今後の臨床応用に向けた開発では、一時的なCRISPR導入システム、用量の最適化、包括的な毒性評価をさらに組み込むべきであり、意図しないゲノムまたはエピゲノムへの影響を最小限に抑えることが求められる。同様に、肝細胞におけるHDR効率は一般的に低い in vivo、および現在のシミュレーションでは、DNA修復経路間の競合や細胞周期の影響をモデル化していない。
翻訳の実現可能性は依然として不確かである。CRISPRベースのシステムを肝細胞に効率的かつ安全に導入することは、引き続き主要な障壁となっている。AAVベクターは運搬能力と免疫原性の制約に直面している一方、脂質ナノ粒子システムは肝臓特異性と持続性に関してさらなる最適化を必要としている27,28これらの実用的な考慮事項は明示的にモデル化されておらず、実際の適用可能性に大きく影響する可能性がある。同様に、HDRに基づくプロモーター補正戦略は、臨床的に最適化された治療法というよりも、計算上の概念実証として捉えるべきである。予測される編集効率は45%であるが–65%は計算フレームワーク内で有望であるが、相同性指向修復は非分裂細胞では比較的効率が低いため、成熟肝細胞における実際のHDR効率は一般的に制限される。その結果、プライムエディティングやベースエディティングなどの新興技術は、プロモーター領域の変異を修正するためのより臨床的に実用的なアプローチを最終的に提供する可能性がある in vivoHepG2細胞由来のENCODEデータセットは包括的な肝細胞アノテーションを提供するが、一次ヒト肝細胞を完全に再現することはできない。したがって、本研究の解析は、臨床応用を検討する前に、一次肝細胞、肝臓オルガノイド、および適切な動物モデルを用いた検証を必要とする、初期的な計算による優先順位付けの枠組みとして考えるべきである。部分的な臨床的関連性 F7 この文脈における上昇調節は依然として推測の域を出ない。過去の臨床観察から、血中FVIIの軽度な増加が出血リスクを低下させる可能性が示唆されているが、本研究では予測された転写変化が機能的タンパク質の補正や臨床的な利益に結びつくことを示していない16,17.
これらの制限にもかかわらず、このフレームワークはより広範な概念的価値を持つ。統合的パイプラインは、非コーディングバリアントの影響を受ける肝臓発現遺伝子に対する制御介入を優先順位付けするために、プロモーター構造、転写因子依存性、およびクロマチン環境を共同で解析する方法を示している。29,30,31.
HNF4に加えてα およびHNF1α、SP1は、肝細胞に富む因子と協同して作用し、肝臓特異的なクロマチンのアクセシビリティーや転写活性の確立に重要な転写調節因子である。したがって、この調節活性は F7 プロモーターは、HNF4を含む調整された転写因子ネットワークによって制御されている可能性があるα、HNF1α、および個々の因子の結合事象単独ではなく、SP1を介してである。HNF4一方α関連する制御領域は以前に報告されているが、本計算フレームワークはこれらの制御要素を再同定し、CRISPRを用いた標的回復への応用可能性を評価する。
このフレームワークは、転写因子モチーフの予測とCRISPRを用いた標的化を統合することで、治療法の設計を導く。予測されたHNF4α 調節モチーフをCRISPR活性化(CRISPRa)用gRNA設計の候補領域として利用し、内因性遺伝子の発現増強を目的とした F7 ゲノム配列を変化させずに転写を制御する。さらに、機能不全または最適でない制御モチーフは、CRISPR-Cas9を用いた配列補正の優先対象とされ、予測される転写因子結合能を回復させることが可能である。これらの応用は、本モデルが精密なゲノム制御スクリーニングプラットフォームとして有用であることを示しているが、制御活性および治療への応用可能性を確認するためには、実験的な検証が依然として必要である。本パイプラインは、HNF4の結合能を損なうと予測されるF7プロモーター変異を対象として設計されている。α またはHNF1α 結合。このワークフローは、プロモーター配列を公開されているトランスクリプトーム、エピゲノム、およびChIP-seqデータセットと統合する。このフレームワークは肝臓特異的な制御構造に基づいているため、肝細胞または肝細胞由来の実験系に最も適用可能であり、非肝臓組織へ外挿すべきではない。さらに、このパイプラインの予測性能は利用可能な公開データセットの質に依存するため、患者固有のエピジェネティック変異や疾患関連のクロマチンリモデリングを完全に捉えることができない可能性がある。
今後の研究では、ChIP-qPCRまたはCUTを含めるべきである&HNF4の確認のためにRUNを実行するαHNF1α 優先されたモチーフにおける占有度、肝細胞由来細胞におけるCRISPRa機能解析、およびFVII活性のタンパク質レベルでの測定。さらに、c.-61Tなどのプロモーター変異のアレル別モデル>Gは、予測される制御機構が変異依存的な方法で機能するかどうかを判断するために必要となる。
従来の遺伝子置換戦略と比較して、外因性の導入に依存するこの手法は F7 コード領域、提案されたCRISPRaフレームワークは、内因性遺伝子の転写を増強することを目指している F7 遺伝子座を保持しつつ、天然のゲノム制御を維持すること。以前の研究では、TALEおよびCRISPRaによるF7プロモーター活性の回復が示された16,17一方、本研究は、実験的検証に先立ってプロモーターを標的とする戦略を優先順位付けするための統合的な計算フレームワークを提供している。HDR(相同性配向修復)を介したプロモーターの修正は理論的には元のDNA配列を回復するが、特に静止状態の肝細胞では比較的効率の低い相同性配向修復に依存する。このため、本計算フレームワークは、転写因子の結合を損なうと予測されるプロモーター変異に対して、恒久的なゲノム配列の改変を回避しつつ有利に機能する補完的な制御戦略としてCRISPRa(CRISPR活性化)を位置づけている。これらの比較は、治療法としての優位性を確立するものではなく、将来的な実験的評価のための候補アプローチを優先順位付けすることを目的としている。
これらのメカニズムに関する知見にもかかわらず、いくつかの重要な制限点を強調しておく必要がある。第一に、最も重要な点として、すべての知見は計算機解析およびシミュレーションモデルから得られたものであり、実験による検証は行われていない。実験的検証が存在しないことは、本研究の主要な制限点である。予測されたすべての転写因子の結合イベント、CRISPRaによる転写活性化、HDR効率、およびオフターゲット評価は計算機による予測にすぎず、実験的に検証された生物学的現象ではなく、検証可能な仮説として解釈されるべきである。今後の研究では、ルシフェラーゼプロモーター・レポーターアッセイ、ChIP-qPCR、またはCUT&HNF4の確認のためにRUN実験を行うα/HNF1α 占有率、肝細胞由来の細胞株または一次肝細胞におけるCRISPRa活性化研究、F7発現の定量的PCRおよびウエスタンブロット解析、および凝固機能検査による機能的FVII活性の回復の評価。
結論として、本研究は計算によって導き出され、メカニズムに基づいた枠組みを提示するものであり、HNF4の破壊がα/HNF1α 制御構造は、低下した要因に寄与する可能性がある F7 転写および標的プロモーター制御が理論的にはモデル化された遺伝子活性を高める可能性がある。しかし、すべての結論は予測に基づくものであり、実験による検証に依存している。本研究は、治療効果の証拠というよりも、体系的な仮説生成の試みとして解釈されるべきである。
開示事項
著者らは、利益相反がないことを宣言します。
謝辞
著者らは、ファストトラック研究支援プログラムを通じて本研究を支援したビシャ大学大学院研究・科学研究学部(Deanship of Graduate Studies and Scientific Research)に感謝いたします。さらに、本研究は 〜経由で Prince Sattam bin Abdulaziz Universityのプロジェクト番号(PSAU/2026/R/1448)による助成金
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Benchling | Benchling Inc. | Webプラットフォーム | CRISPRガイドRNAの設計およびプロモーター配列の解析に使用。 |
| Cas-OFFinder | Center for Genome Engineering | 最新バージョン | ゲノムワイドなCRISPR-Cas9オフターゲット切断部位の予測に使用。 |
| CellDesigner | Systems Biology Institute | v4.4 | 転写調節のin silicoモデリングおよびCRISPRaシミュレーションに使用。 |
| ChromHMM | Broad Institute | 最新バージョン | クロマチン状態のセグメンテーションおよびアノテーションに使用。 |
| CRISPOR | CRISPOR Team | 最新ウェブ版 | ガイドRNAの効率および予測されるオフターゲット活性の評価に使用。 |
| CRISPRscan | CRISPRscan Development Team | 最新バージョン | 予測されるCRISPR-Cas9切断効率の推定に使用。 |
| Cytoscape | Cytoscape Consortium | v3.9.1 | ネットワーク可視化および解析プラットフォーム。 |
| dbSNP Database | NCBI | 最新リリース | F7プロモーター内の既知の一塩基多型(SNP)の同定に使用。 |
| dCas9-p300 CRISPRa System (computational model) | 該当なし | 該当なし | シミュレーションのみに使用される計算モデル上のエピジェネティックアクティベーター。実験用試薬は使用していない。 |
| dCas9-VP64 CRISPRa System (computational model) | 該当なし | 該当なし | シミュレーションのみに使用される計算モデル上の転写アクティベーター。実験用試薬は使用していない。 |
| ENCODE Project Database | ENCODE Consortium | 最新リリース | ChIP-seq、ATAC-seq、DNase I 過剰感度、およびヒストン修飾データセットのソース。 |
| F7 promoter sequence (GenBank) | National Center for Biotechnology Information (NCBI) | NG_009262.1 | プロモーターの取得およびアノテーションに使用したヒトF7遺伝子のリファレンス配列。 |
| FIMO (Find Individual Motif Occurrences) | MEME Suite | v5.5.0 | F7プロモーター内の予測転写因子結合部位をスキャンするために使用した計算ツール。 |
| GTEx Portal | GTEx Consortium | Version 8 (v8) | 相関分析に使用した肝臓のトランスクリプトーム(TPM)データのソース。 |
| Human Gene Mutation Database (HGMD) | HGMD Professional | 最新リリース | 疾患に関連するプロモーター変異の同定に使用。 |
| ICE (Inference of CRISPR Edits) | Synthego Corporation | 最新ウェブ版 | 予測されるCRISPR編集結果の計算モデリングに使用。 |
| JASPAR Database | JASPAR Consortium | 2022 Release | HNF4αおよびHNF1A結合モチーフの同定に使用した転写因子結合プロファイルデータベース。 |
| MCODE Plugin | Cytoscape | 最新バージョン | 高度に連結した調節ネットワークモジュールの同定に使用。 |
| MEME Suite | MEME Suite Development Team | v5.5.0 | モチーフ探索およびモチーフ出現解析をサポートするソフトウェアパッケージ。 |
| Pearson Correlation Analysis | 統計アルゴリズム | 該当なし | F7、HNF4A、およびHNF1Aの発現間の関連性を評価するために使用。 |
| PhastCons Conservation Track | UCSC Genome Browser | 100-Vertebrate Alignment | 保存されたゲノム要素の評価に使用。 |
| PhyloP Conservation Track | UCSC Genome Browser | 100-Vertebrate Alignment | ヌクレオチドレベルの進化的な保存性の評価に使用。 |
| Segway | Hoffman Laboratory | 最新バージョン | ゲノムセグメンテーションおよび調節アノテーションに使用。 |
| Single-stranded HDR Repair Template (computational design) | 該当なし | 該当なし | プロモーターモチーフの復元のためにin silicoで設計。実験的に合成はしていない。 |
| SpCas9 (computational model) | 該当なし | 該当なし | HDRガイドRNAの設計および編集シミュレーションに使用した計算モデル。 |
| STRING Database | STRING Consortium | v11.5 | タンパク質–タンパク質相互作用および遺伝子調節ネットワークの構築に使用。 |
| UCSC Genome Browser | University of California, Santa Cruz | 最新リリース | プロモーターの保存性、ゲノムアノテーション、およびエピゲノムトラックの評価に使用。 |
参考文献
- Peyvandi F, Duga S, Akhavan S, Mannucci PM. Rare coagulation deficiencies. Haemophilia. 2002;8(3):308-321.
- Mariani G, Bernardi F. Factor VII deficiency. Semin Thromb Hemost. 2009;35(4):400-6. doi:10.1055/s-0029-1225762.
- Napolitano M, Siragusa S, Mariani G. Factor VII deficiency: clinical phenotype, genotype and therapy. J Clin Med. 2017;6(4):38.
- Tourbih H, Harrach A, Bencharef H, Dehbi H, Oukkache B. Molecular aspects of rare coagulation factor deficiencies. Cureus. 2025;17(7):e89102.
- Carew JA, Pollak ES, High KA, Bauer KA. Severe factor VII deficiency due to a mutation disrupting an Sp1 binding site in the factor VII promoter. Blood. 1998;92(5):1639-1645.
- Shahbazi S, Mahdian R. Factor VII Gene Defects: Review of Functional Studies and Their Clinical Implications. Iran Biomed J 2019 May;23(3):165–174.
- Sladek FM. What are nuclear receptor ligands? Mol Cell Endocrinol. 2011;334(1-2):3-13.
- Garrison WD, Battle MA, Yang C, Kaestner KH, Sladek FM, Duncan SA. Hepatocyte nuclear factor 4 alpha is essential for embryonic development of the mouse colon. Gastroenterology. 2006;130(4):1207-1220.
- Bolotin E et al. Integrated approach for the identification of human hepatocyte nuclear factor 4alpha target genes using protein binding microarrays. Hepatology. 2010;51(2):642-653.
- Walesky C, Apte U. Role of hepatocyte nuclear factor 4α (HNF4α) in cell proliferation and cancer. Gene Expr. 2015;16(3):101-108.
- Parviz F, Matullo C, Garrison WD, Savatski L, Adamson JW, Ning G, et al. Hepatocyte nuclear factor 4alpha controls the development of a hepatic epithelium and liver morphogenesis. Nat Genet. 2003;34(3):292-296.
- Odom DT et al. Control of pancreas and liver gene expression by HNF transcription factors. Science. 2004;303(5662):1378-1381.
- Rowley CW, Staloch LJ, Divine JK, McCaul SP, Simon TC. Mechanisms of mutual functional interactions between HNF-4alpha and HNF-1alpha revealed by mutations that cause maturity onset diabetes of the young. Am J Physiol Gastrointest Liver Physiol. 2006;290(3):G466-475.
- Hirakawa MP, Krishnakumar R, Timlin JA, Carney JP, Butler KS. Gene editing and CRISPR in the clinic: current and future perspectives. Biosci Rep. 2020;40(4):BSR20200127.
- Belali T, Abomughaid M, Alhujaily M. The transcription factor HNF-4α: a key player in haematological disorders. Arch Med Sci. 2021;19(6):1646-1652.
- Barbon E, Pignani S, Branchini A, Bernardi F, Pinotti M, Bovolenta M. An engineered TALE-transcription factor rescues transcription of factor VII impaired by promoter mutations and enhances its endogenous expression in hepatocytes. Sci Rep. 2016;6:28304.
- Pignani S et al. Tailoring the CRISPR system to transactivate coagulation gene promoters in normal and mutated contexts. Biochim Biophys Acta Gene Regul Mech. 2019;1862(6):619-624.
- Arbini AA, Pollak ES, Bayleran JK, High KA, Bauer KA. Severe factor VII deficiency due to a mutation disrupting a hepatocyte nuclear factor 4 binding site in the factor VII promoter. Blood. 1997;89(1):176-182.
- Greenberg D, Miao CH, Ho WT, Chung DW, Davie EW. Liver-specific expression of the human factor VII gene. Proc Natl Acad Sci U S A. 1995;92(26):12347-12351.
- Andersson R, Sandelin A. Determinants of enhancer and promoter activities of regulatory elements. Nat Rev Genet. 2020;21(2):71-87.
- Birnbaum RY, Clowney EJ, Agamy O, Kim MJ, Zhao J, Yamanaka T, et al. Coding exons function as tissue-specific enhancers of nearby genes. Genome Res. 2012;22(6):1059-1068.
- Fulco CP et al. Activity-by-contact model of enhancer-promoter regulation from thousands of CRISPR perturbations. Nat Genet. 2019;51(12):1664-1669.
- Yin H et al. Therapeutic genome editing by combined viral and non-viral delivery of CRISPR system components in vivo. Nat Biotechnol. 2016;34(3):328-333.
- Chen Y et al. Chromatin accessibility: biological functions, molecular mechanisms and therapeutic application. Signal Transduct Target Ther. 2024;9(1):340.
- Deans JR et al. HNF4α isoforms regulate the circadian balance between carbohydrate and lipid metabolism in the liver. Front Endocrinol (Lausanne). 2023;14:1266527.
- Jones C, Avino M, Giroux V, Boudreau F. HNF4α acts as upstream functional regulator of intestinal Wnt3 and Paneth cell fate. Cell Mol Gastroenterol Hepatol. 2023;15(3):593-612.
- Taha EA, Lee J, Hotta A. Delivery of CRISPR-Cas tools for in vivo genome editing therapy: trends and challenges. J Control Release. 2022;342:345-361.
- Qiu S, Pan Y, Cui Y, et al. HNF4α improves hepatocyte regeneration by upregulating PXR. FASEB J. 2024;38(14):e23830.
- Avsec Ž et al. Effective gene expression prediction from sequence by integrating long-range interactions. Nat Methods. 2021;18(10):1196-1203.
- Zahraei M et al. CRISPR/dCas9-TET1-mediated epigenetic editing reactivates miR-200c in breast cancer cells. Sci Rep. 2025;15(1):31739.
- Mariani G, Herrmann FH, Bernardi F, Schved JF, Auerswald G, Ingerslev J. Clinical manifestations, management, and molecular genetics in congenital factor VII deficiency: the International Registry on Congenital Factor VII Deficiency (IRF7). Blood. 2000;96(1):374.