本研究では、ウシの脱核卵細胞を用いて絶滅危惧種であるシカのクローン胚を得るためのプロトコルを提示します。ここでは、異種間体細胞核移植の詳細な手法と、透明帯除去卵細胞をサイトプラストとして利用する方法について解説します。さらに、得られた結果について詳細に考察します。
方法論記事
ウシ(Bos taurus)の透明帯除去卵母細胞およびシカ(Mazama americana)の線維芽細胞を用いた種間体細胞核移植
この記事について
サマリー
要約
動物に用いられる生殖バイオテクノロジーにより、遺伝的価値の高い個体群の増加が可能になります。さらに、これらの技術は、優れた特性を持つ個体の遺伝物質の保存、維持、および普及に寄与します。選別された個体の遺伝的救済は、家畜種における数多くの研究へとつながり、その知見を他の動物集団や特定の個体へ外挿することが目的とされています。そのようなアプローチの一つに、体細胞核移植(SCNT)、すなわちクローニングがあり、これは既存の個体と同一の遺伝物質を持つ胚を作製するために用いられます。この技術の制限の一つに、野生動物からの卵母細胞の入手可能性が限られていることが挙げられます。そこで代替案として、クローン化したい種の体細胞(核供与体/カリオプラスト)を核ドナーとして用い、それを異なる目やタクソンに属する種から得られた脱核卵母細胞(細胞質受容体/サイトプラスト)に導入する異種間体細胞核移植(iSCNT)が登場しました。このアプローチにより、生存可能なクローン胚を得ることが可能になります。ブラジルには9種のシカが存在しますが、その多くが無差別な狩猟や生息地の喪失などの原因で絶滅危惧種となっています。アメリカアカマサコ(Mazama americana)は、こうした状況下にある種の一つです。したがって、本研究では、iSCNT法を用いてアメリカアカマサコのクローン胚を作製するための手法を提示し、受容雌への移植に向けた胚バンクを構築することで、種の生存確保に寄与することを目的としています。
概要
シカ科(Cervidae)は現在、真の角を持つ55種の有蹄類哺乳類で構成されています。角とは、雄の頭蓋骨上部に露出した骨構造のことですが、雌雄ともに角を持つトナカイ(Rangifer tarandus)1と、雌雄ともに角を持たないチュウゴクミズシカ(Hydropotes inermis)2は例外です。シカ科は鯨偶蹄目(Cetartiodactyla)に属しており、この目にはアンテロープ科、ウシ科、ブタ科、ペッカリー科、ラクダ科、キリン科、カバ科なども含まれます。一般的に、シカ科は草食性の反芻動物であり、南極大陸を除く世界中の多様な環境に生息しています3。
現在、ブラジルではシカ科に属する9種が認められています:Odocoileus virginianus(オゴロシカ)、Blastocerus dichotomus(ヌマシカ)、Ozotoceros bezoarticus(パンパスシカ)、Mazama americana、Mazama rufa、Mazama jucunda, Mazama nana, Subulo gouazoubira、およびPassalites nemorivagus4。
この分類体系は、Mazama属が多系統であることを示す近年の分子研究5を反映しており、それによりSubulo6およびPassalites7が独立した有効な属として認識されるに至った。これらの新熱帯区のシカ類の多くは、生息地の喪失や景観の断片化、およびそれに伴う個体群の隔離に関連した遺伝的多様性の低下など、人為的な圧力による脅威にさらされている8。
過去100年間にわたり、生殖補助技術は、まず実験動物の哺乳類において導入され、その後、保全優先度の高い野生種へと徐々に適用されてきました9。その結果、生殖バイオテクノロジーの大部分は哺乳類モデルを用いて発展し、そのため、このグループが研究上の最大の注目を集めてきました。人工授精、胚移植、体外受精、配偶子および胚の性別判定、遺伝資源の凍結保存など、いくつかの生殖技術が哺乳類に適合し、成功を収めています10。しかし、なかでも体細胞核移植(SCNT)という技術は、その成果と絶滅危惧種に適用した際の潜在的な影響力により、他の技術とは一線を画しています11。
利用可能な生殖バイオテクノロジーの中で、クローニングはドナー動物と遺伝的に同一の個体を生成することを可能にします。クローニングに用いられる主な戦略は体細胞核移植(SCNT)であり、これは脱核した卵母細胞に体細胞核を導入する手法です。しかし、野生種においては、卵母細胞ドナーの不足や卵母細胞回収に伴う技術的な困難により、その適用が制限されることが頻繁にあります12。これらの制約から、保全プログラムにおける補完的なアプローチとして、種間体細胞核移植(iSCNT)が開発されました。iSCNTでは、家畜動物由来の卵母細胞を、絶滅危惧種由来の核を受け入れるレシピエント細胞質(サイトプラスト)として利用します(図1)。このアプローチの実現可能性は、iSCNTを用いていくつかの野生種から生存個体の産出に成功したことで実証されています13,14,15。
クローン胚の作製には、卵母細胞とドナー細胞の操作方法に応じて、さまざまな戦略が提案されています。従来のアプローチでは、透明帯が維持された卵母細胞から核を除去し、その後、ドナー細胞を卵周腔に導入して電気融合によって融合させます16。また、マイクロインジェクションなどのマイクロマニピュレーション技術を用いて、体細胞核を透明帯に包まれた卵母細胞に直接注入する方法もあります17。対照的に、透明帯除去(ZP-free)システムでは、複雑な装置を必要とせず、鈍端ピペットを用いて脱核が行えるため、いくつかのマイクロマニピュレーション工程を省略でき、クローン作製の手順を簡略化できます18。本アッセイでは、ウシのサイトプラストとシカのカリオプラストを用いてクローン胚を得るためのiSCNTにおいて、ZP-free卵母細胞をサイトプラストとして利用することを提案します。
プロトコル
ブラジルのセアラ州グアラミランガ(南緯 4°13'53.0''、西経 38°56'42.6'')において、環境当局により成熟したメスのアカブロケットジカが回収されました。この個体は死後、ブラジルのフォルタレザにあるセアラ州立大学(UECE)の新熱帯区シカ保存研究室(LACCERNE)に搬送されました。剖検の結果、死因は左背外側腹部から侵入した銃弾による多発性外傷であることが判明しました。本個体の使用は、セアラ州立大学動物実験倫理委員会(CEUA-UECE、プロトコル番号 450620/2022)およびブラジル環境・再生可能天然資源院(IBAMA、プロトコル番号 02027.014734/99-34)によって承認されました。さらに、ウシ卵巣の使用はCEUA/UECE(プロトコル番号 31032.004671/2024-81)によって承認されました。使用したすべての試薬および装置の詳細は材料表に記載されています。本研究を裏付けるデータは、DOI番号 10.5281/zenodo.22129414 のZenodoから入手可能です。
1. 溶液および培地
注意:すべてのろ過操作は0.22 µmの滅菌フィルターを用いて行い、ろ液は4 °Cで最大1週間保存してください。ストック溶液は-20 °Cで保存してください。
- 輸送媒質:8.1 gのNaClと0.045 gのペンタバイオティックを加え、蒸留水で900 mLにする。
- リン酸緩衝生理食塩水 (PBS):0.4 gのNaCl、0.01 gのKCl、0.077 gのNaH2PO4、0.01 gのKH2PO4を加え、超純水で50 mLにする。
- 細胞培養培地:Dulbecco's Modified Eagle Medium (DMEM)に、10% (v/v) 胎牛血清 (FBS)および1.0% (v/v) ペニシリン・ストレプトマイシン・アンホテリシンB溶液 (ATB)を添加したもの。
- 線維芽細胞凍結保存液:DMEMに、10% (v/v) FBS、10% (v/v) ジメチルスルホキシド (DMSO)、および2.0% (v/v) ATB溶液を添加したもの。
- Trypsin-EDTA (0.25%)。
- 操作用培地:アルブミン、乳酸、ピルビン酸を含むHEPES緩衝Tyrode液 (H-TALP)。インキュベーター外で行うすべての手順でこの培地を使用する。1 Lの調製には、981.86 mLの滅菌胚テスト水に、6.763 gのNaCl、0.239 gのKCl、0.294 gのCaCl2·2H2O、0.048 gのMgCl2、0.168 gのNaHCO3、および3.575 gのHEPESを加える。攪拌後、10 mLの抗生物質・抗真菌剤、1 mLのフェノールレッド、1.44 mLの乳酸ナトリウム、1 mLの100 mMピルビン酸ナトリウムストック液、および3 gのウシ血清アルブミン (BSA)を加える。浸透圧を280 mOsmに、pHを7.2から7.4の範囲に調整する。50-mL分注して4 °Cで1ヶ月間保存する。
- in vitro 成熟培地:Medium 199 (TCM-199)に、10% (v/v) FBS、10 ng/mL 上皮成長因子 (EGF)、1 mM ピルビン酸ナトリウム、100 µM システアミン、10 µg/mL 卵胞刺激ホルモン (FSH)、1 µg/mL エストラジオール、および1% (v/v) ATBを添加したもの。pHを7.2–7.4に調整する。
- ヒアルロニダーゼ溶液(最終濃度:1 mg/mL):10 mgのヒアルロニダーゼを10 mLのH-TALPに溶解する。1.5-mLチューブに200 µLずつ分注し、使用可能な状態で準備する。
- プロナーゼ溶液(最終濃度:1.5 mg/mL):15 mgのプロナーゼを10 mLのH-TALPに溶解する。1.5-mLチューブに200 µLずつ分注し、使用可能な状態で準備する。
- デメコルシン(最終濃度:0.4 µg/mL):5 mgのデメコルシン (DMC)を125 µLのDMSOに溶解し、5 µLずつ分注する(ストック溶液)。使用時まで分注液を冷凍保存する。ストック溶液2 µLをTCM 1998 µLと混合して希釈し、調製用ストック溶液とする。使用直前に、調製用ストック溶液5 µLを合成卵管液 (SOF) 495 µLに加える。
- Hoechst(最終濃度:10 µg/mL):1 mg/mLのHoechst 33342をH-TALPに溶解する。5 µLずつ分注し、SOF培地で1:100に希釈したものを用意する。
注意:UV光下で核DNAを可視化するために使用するHoechst 33342は、インターカレーション剤であり強力な変異原である。適切な個人用保護具を用いて取り扱うこと。 - フィトヘマグルチニン(最終濃度:1 mg/mL):5 mgのフィトヘマグルチニン (PHA)を500 µLのH-TALPに溶解する。200 µLチューブに10 µLずつ分注する。使用時は、H-TALP 90 µLを加える。
- 細胞融合培地:0.3 M マンニトール、0.1 mM MgSO4、0.05 mM CaCl2、0.5 mM HEPES、および1 mg/mL ポリビニルアルコール (PVA)を超純水で調製したもの。調製した当日に使用すること。
- イオノマイシン(最終濃度:5 µM):イオノマイシンのバイアル(1 mg/バイアル)にDMSO 1 mLを加える。TCM-199 1.67 mLを加える。1.5 mLチューブに10 µLずつ分注し、-20 °Cで冷凍保存する。使用時は、各1.5 mLチューブの内容物にH-TALP 990 µLを加える。遮光保存すること。
- 6-ジメチルアミノプリン(最終濃度:2 mM):10 mgの6-ジメチルアミノプリン (6-DMAP)を溶解する。1.5-mLチューブに50 µLずつ分注し、-20 °Cで冷凍保存する。使用時は、各1.5 mLチューブの内容物にSOF 950 µLを加える。
- 胚培養培地:0.2 mM L-グルタミン、0.2 mM ピルビン酸ナトリウム、2% 必須アミノ酸含有Basal Medium Eagle (BME)、1% 非必須アミノ酸 MEM 100×、1.0% (v/v) ATB溶液、2.77 mM myo-イノシトール、2.5% (v/v) FBS、10 µL/mL ITS(インスリン、ヒトトランスフェリン、亜セレン酸ナトリウムの混合物)、および3 g/L BSA。
2. ドナー組織サンプルの採取および操作
- ドナー雌の耳の表面を石鹸と水で洗浄し、剃毛した後、アルコール(70%)で当該部位を消毒する。
- メスを用いて耳の一部(1 × 2 cm)を採取し、4% ATBを含むPBS溶液に入れ、4 °Cに維持したまま研究室まで運搬する。
- 生検検体をメスで細かく切断し、培地を満たした35 mmペトリ皿に入れる。飽和湿度、5% CO₂、38.5 °Cで培養する。
- コンタミネーションを防ぐため、細胞がコンフルエントになるまで48時間ごとに培地を交換する。
- コンフルエントになったプレートから培地を除去し、0.25% trypsin-EDTA 1 mLを35 mmペトリ皿に加えて2分間置く。
- トリプシンを不活化させるため、細胞培養培地 2 mLを加える。細胞懸濁液を15 mLチューブに移し、室温(≈ 25 °C)で200 x g、10分間遠心分離する。
- 上清を除去し、細胞ペレットを10 mLの培地で再懸濁する。線維芽細胞の培養は5日ごとに継代する。
- 細胞ペレットを1 mLの凍結保存液で再懸濁し、線維芽細胞を凍結保存する。細胞懸濁液をクライオバイアルに移し、プログラムフリーザーを用いて-80 °Cで18時間保持した後、使用時まで液体窒素タンク(-196 °C)に保存する。線維芽細胞の凍結保存後、細胞操作を一時停止し、細胞周期同期化のタイミングで再開することができる。
- iSCNTに使用する1〜2週間前に、線維芽細胞を融解し培養する。
3. 細胞周期の同期化
- コンフルエンスにより、細胞周期をG0/G1期で同期させる。
- コンフルエントなプレートから培地を除去し、0.25% trypsin-EDTA 1 mLを35 mmペトリ皿に加え、38.5 °CのCO₂インキュベーター内で2分間置く。培地2 mLを加えてトリプシンを不活化させる。
- 細胞懸濁液を15 mLチューブに移し、200 x gで10分間遠心分離する。
- 上清を除去し、細胞沈殿をiSCNT用細胞培養培地1-3 mLで再懸濁する。
4. 卵細胞の回収
- 屠畜直後に、未経産牛または成牛から卵巣を採取し、輸送培地を入れたサーモスに入れ、25-30 °Cの温度を維持して研究室まで運搬する。
- 卵巣を培養液で2回洗浄し、38.5 °Cのウォーターバス内のビーカーに入れる。
- H-TALP培地を入れた10 mLシリンジに装着した18ゲージ針を用いて、直径2-8 mmの卵胞から卵胞液を吸引する。
- 吸引した卵胞液を50-mLコニカルチューブに移し、38.5 °Cのウォーターバス内で少なくとも15分間静置する。
5. 卵母細胞の成熟化および除細胞
- 15分後、プラスチック製パストゥールピペットを用いて、ペレット全体を慎重にペトリ皿(100 × 15 mm)に移す。
- 実体顕微鏡を用いて、少なくとも3層の緻密な顆粒層を持ち、グレードIからIII(表1)19に相当する卵丘細胞-卵母細胞複合体(COC)を選別する。
- COCを0.5×H-TALPで3回洗浄し、その後、体外成熟培地で2回洗浄する。
- ミネラルオイルで被覆した100 µLの体外成熟培地ドロップに、COCを20-25個ずつ移す。これを38.5 °C、5% CO₂含有、飽和湿度の条件下で20-22時間インキュベートする。
- 200 µLのヒアルロニダーゼ溶液中で2分間、穏やかにピペッティングしてCOCクラスターから細胞を除去する。
- 2 mLのH-TALP培地で卵母細胞を洗浄し、顆粒細胞を取り除く。
- 実体顕微鏡下で、第1極体が放出されている卵母細胞(第二減数分裂中期 - MII)を選別し、以降の工程に使用する。
6. 透明帯の除去、脱核、および透明帯除去卵細胞の再構成
- MII期の卵母細胞を、38.5 °Cで1-2分間、100-µLのプロナーゼ溶液滴中でインキュベートする。透明帯が薄くなり始めるまで実体顕微鏡下で観察する。
- 直ちに卵母細胞を回収し、プロナーゼを不活化させるため、20% FBSを添加した培養液に置く。
- 透明帯を除去した卵母細胞を、0.4 µg/mLのデメコルシンを含むSOF培地で20分間インキュベートし、DNAを含む細胞質突出を誘導する。その後、10 µg/mLのHoechstを添加した同培地でさらに20分間インキュベートする。
- 透明帯除去済みの卵母細胞をH-TALP滴に移し、倒立顕微鏡に装着したミクロマニピュレーターを用いて脱核を行う。
- 保持ピペットの隣に卵母細胞を配置する。
- 突出部が3時の位置に来るまで卵母細胞を回転させ、25 µmの鈍端注入ピペットを用いて、突出部とともに細胞質の5-10%を吸引する。
- 吸引した細胞質を紫外線下で観察し、脱核が成功したことを確認する(図2)。
注意:卵母細胞をDNA染色剤や紫外線にさらすと、遺伝物質が損傷し、酸化ストレスが誘導される。照射時間は最小限に抑えること。
7. 細胞融合
- 実体顕微鏡下で融合チャンバーを組み立て、pH 7の融合培地を2 mL充填する。
- 60 mmのペトリ皿に、H-TALPを5滴(各100 µL)と1滴(30 µL)準備し、PHAを50 µL添加する。
- 30 µLのH-TALP滴に線維芽細胞を5 µL添加し、均一で屈折性の高い細胞を選択して、 H-TALPの100 µL滴に移す。
- 脱核した卵母細胞を、 H-TALPの100 µL滴に移す。
- 卵母細胞をPHA滴に4 s間さらし、細胞の上に配置して、両者が付着したことを確認する。その後、この複合体を何も入っていないTALP-H滴に移す。
- 卵母細胞と細胞が付着した後、それらを2 mLの融合培地を含むプレートに移して静置させる。次に、複合体を融合チャンバーの電極間に配置し、細胞を6時または12時の方向に位置させる。
注意:電気融合に使用される活性化バッファーには、細胞のカルシウム恒常性を乱すイオノマイシンが含まれている。高電圧電界は、装置が濡れている場合や取り扱いを誤った場合に、感電やアーク放電のリスクがある。 - 電極間隙0.2 mmのマイクロ融合チャンバーを用いて融合を行う。エレクトロポレーターを使用し、0.72 kV/cmの単方向直流パルス2回からなるシングルパルストレインを印加する。各パルス幅は30 µsとし、パルス間隔は0.1 sとする。
- パルス印加後、各卵母細胞-細胞ペアを、2.5% FBSを添加したSOFの5 µLマイクロ滴に個別に移し、38.5 °C、5% CO₂雰囲気下で培養する。
- 30分後、実体顕微鏡下で個々に融合状態を評価する。
- 融合しなかった構造体については、2回目の融合を行う。
- 融合した複合体を透明帯のない再構成胚として扱い、活性化まで2時間インキュベートする(リプログラミング時間)。
8. 卵母細胞の活性化と胚培養
- 再構成した構造体を、5 µM ionomycinを含む100 µLのH-TALP培地の液滴中で4分間インキュベートする。
- 再構成した構造体を、100 µLのH-TALP培地の液滴で4回洗浄する。
- 再構成した構造体を、2 mM 6-DMAPを含む100 µLのSOF培地の液滴中で3時間インキュベートする。
- 再構成した構造体を、100 µLのSOF培地の液滴で4回洗浄する。
- 加熱したガラスキャピラリーを35 × 10 mmのペトリ皿の底に軽く押し当て、マイクロウェルプレートを作成する。直径500 µm、深さ250 µmのマイクロウェルを20から25個作成する20。
- 再構成した胚を個別に модиfied microplateウェルに配置し、100 µLのSOF培地で満たした後、最終的に3 mLのミネラルオイルで被覆する。マイクロプレートを、5% CO₂、5% O₂、90% N₂の三ガスインキュベーターに入れ、7日間培養する。
結果
結果はRソフトウェア(v.4.5.2)を用いて解析した。卵割率および胚盤胞形成率は、フィッシャーの正確確率検定を用いて、ペア間(シカ/ウシ vs ウシ/ウシ)で比較した。再現実験を10回行い、そのうちシカ/ウシペアを4回、ウシ/ウシペアを6回とした。さらに、すべての解析において、有意水準を5%に設定した。
本アッセイでは、地元の屠殺場から得られた472個のウシ卵母細胞をサイトプラスト受容体として使用した。しかし、体外成熟およびその後の電気融合の後、73個の構造体は融合に失敗したため以降のステップから除外され、最終的に399個の核プラスト/サイトプラスト融合構造体が得られた。この総数から、以下のペア(核プラスト/サイトプラスト)を用いた:シカ/ウシ(n = 175)を4反復、およびウシ/ウシ(n = 224)を6反復(表2)。
iSCNTの影響を評価するため、透明帯を除去した再構成胚をマイクロウェル内で7日目まで培養した。透明帯のない桑実胚および胚盤胞の代表的な顕微鏡写真は図3に示されている。
表 2に、本実験で得られた卵割率および胚盤胞形成率を示す。卵割率については、群間(シカ/ウシおよびウシ/ウシのペア)で有意な差は認められなかった(P = 0.74)。一方で、胚盤胞形成率に関しては統計的な有意差(P=0.02)が観察され、種内クローニング群でより高い割合を示した。しかしながら、種間クローンの数が一般的に少ないこの種の実験における、検出力の限界を強調しておくことが重要である。
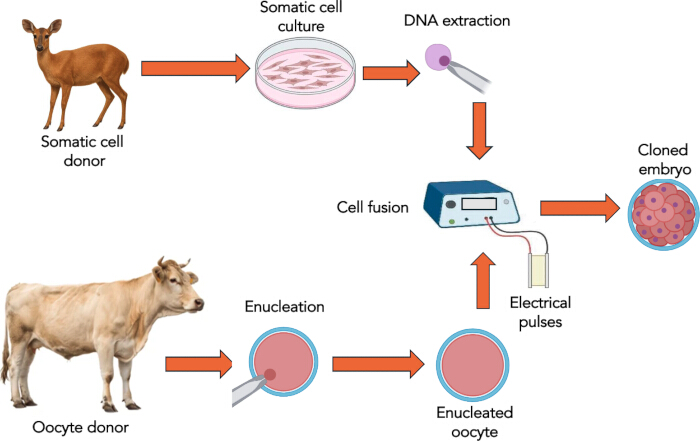
図1: 種間体細胞核移植の概略段階。 牛をサイトプラストドナーとして、シカをカリオプラストドナーとして使用する。クローン胚を得た後、受容雌への移植または将来の移植に向けた凍結保存が可能である。こちらのリンクから、この図の拡大版を表示してください。
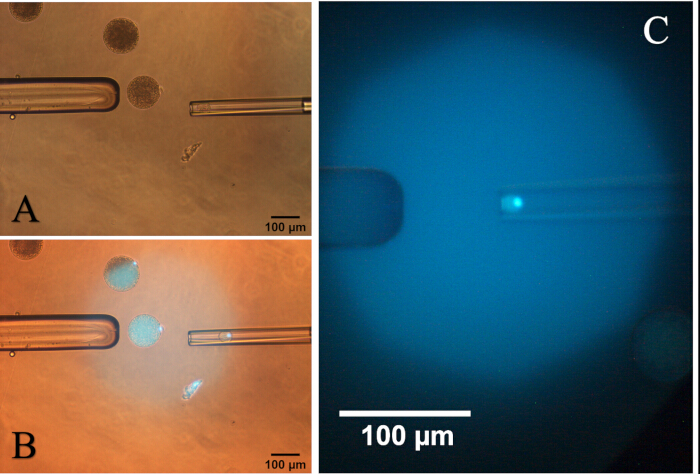
図 2: 細胞質突出を伴う活性化卵細胞の顕微鏡写真。(A>) 突出部を3時の位置に配置するための卵細胞の回転。(B>) 紫外線照射下での、細胞質の5-10%を含む突出部の吸引。(C>) 紫外線照射下、吸引ピペット内にある細胞質およびその突出部。こちらのリンクをクリックして、この図の拡大版を表示してください。
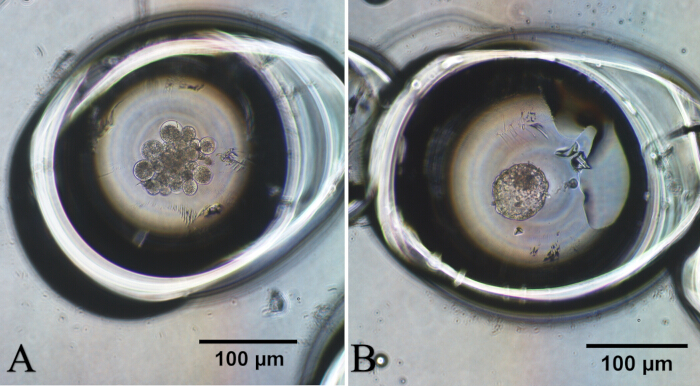
図3異種間体細胞核移植により作製したシカ胚のフォトマイクログラフィー。 (A) 桑実胚期におけるクローン胚。(B) 胚盤胞期のクローン胚。 こちらの図の拡大版を表示するには、ここをクリックしてください。
| グレード | 卵丘細胞層数 | 卵丘細胞の拡張 |
| I | > 3 | 完全な積雲覆いであり、いくつかの緻密な層とわずかに緩やかな細胞状層を伴う |
| II | 2 - 3 | 外層細胞のわずかな拡張 |
| III | 1 | 部分的な卵丘細胞被覆および緩い細胞層 |
| 静脈内投与 | 0 | 積雲なし |
表 1:種間体細胞核移植において、その後脱核されサイトプラストとして使用されるウシ卵母細胞の分類(Aguila et al.より改変)19。
| 群(カリオプラスト/サイトプラスト) | 反復回数 | 再構築胚数 | 切断数 (%) | 胚盤胞数 (%) |
| シカ/ウシ | 4 | 175 | 122 (69.7)a | 8 (4.6)a |
| 牛/牛 | 6 | 224 | 160 (71.4)a | 24 (10.7)b |
| 同一列内で異なる文字が付されている場合は、統計的な有意差があることを示す。 | ||||
| 劈開率:P = 0.74 | ||||
| 胚盤胞形成率:P = 0.02 | ||||
表2:ウシサイトプラストを用いたベンナ(red brocket deer)クローン胚のin vitro発育。10回の繰り返し実験が行われ、4回がシカ/ウシペア、6回がウシ/ウシペアであった。卵割率および胚盤胞形成率は、再構成胚数を分母として算出した。
ディスカッション
絶滅危惧種のゲノムは、家畜、特にサイトプラズマの最大の供給源であるウシやブタの卵ocyteを用いてリプログラミングできることがすでに十分に文書化されています21。iSCNTで達成された最大の進展の一つに、最後の個体の死後に絶滅した亜種であるピレネーアイベックス(Capra pyrenaica pyrenaica)のクローン作成があります。再構成胚は、アイベックスの上皮細胞とヤギ(Capra hircus)の卵ocyteを融合させることで得られました。著者らは、外見上の形態的異常のない雌の誕生に成功しました。しかし、その個体は重度の呼吸不全を呈し、出生後数分で死亡しました22。
「復活」の有力な候補の一つがケナガマンモス(Mammuthus primigenius)。クローニングを可能にするには、核が確認できる生存可能な組織が利用可能であることが不可欠であるが、約1万年前に絶滅した種においてこれを実現することは困難である。それでもなお、凍土層から発見されたマンモスの死体は、iSCNTの最低要件を満たしている。23しかしながら、本手法の活用による恩恵を受ける候補としては、絶滅危惧種の方がより適している可能性があります。
本研究で観察された分割率は、活性化および胚の初回分裂が、核と細胞質の種間組み合わせによる影響を受けないことを示しました。再構成段階において、構造体(カリオプラスト/サイトプラスト)の操作および融合は両グループで同様に容易であり、種間の構造的適合性が示唆されました。胚盤胞率に関しては、iSCNT胚の再構成および初期活性化は制限要因ではないものの、発達の後期段階において核・細胞質不適合が生じることが結果から示唆されます。これは、不完全なエピジェネティックなリプログラミング、またはハイブリッド胚が胚盤胞段階に達する能力に影響を及ぼす母性・接合子移行に関連している可能性があります24。iSCNTの効率は、カリオプラストとサイトプラストが系統的に近い種に由来する場合に高くなる傾向があります。これは、生存可能なハイブリッド子孫の自然発生が、2種間のある程度の核・細胞質適合性を示しているためです23。したがって、亜種間SCNTによって健康な子孫が誕生することは既に示されています。ある著者らは、雌犬のサイトプラストとオオカミの線維芽細胞を用い、胚を12匹の雌に移植して、1匹の子孫を誕生させました25。
iSCNTの使用には、生物学的および発生効率における大きな「能力の限界」という課題があり、ドナー核とレシピエント卵細胞の間の進化的な距離が離れるにつれて、この効率は劇的に低下します。近縁種間(例:家畜牛とガウル)では成功していますが26、より遠い分類学的境界を越えようとする場合には、生存可能な子孫や安定した胚性細胞株を産生することに概して失敗します。
クローニングは、遺伝的に優れた個体の増殖を可能にし、トランスジェニック動物の作製を支援し、また遺伝子バンクを通じて貴重な遺伝資源の長期保存に寄与するため、動物の育種および保存プログラムにおける重要なツールとなります。それにもかかわらず、家畜の育種プログラムにおけるクローニングの導入は、移植胚数に対する生体動物の産出率が低いという点によって依然として制限されています18。クローン胚作製の現在のアプローチは、一般的に従来法によるクローニングとZPフリークローニングの2つのカテゴリーに分けられます。従来法では、卵母細胞の核を除去し、ドナー体細胞を受容細胞質へと導入するためにマイクロマニピュレーターが必要です26。従来法とは異なり、ZPフリー法はマイクロマニピュレーションなしで実施されます27。本研究で得られた結果は、卵割率および胚盤胞の産出率のいずれにおいても、iSCNTを用いて確認された結果と非常に類似していました20,21
最後に、本手順の各工程を踏まえ、重要なポイントと実践的なトラブルシューティングについて強調しておく。ZP除去に関して、ZPフリークローニングは、操作の簡便さ、費用対効果、および胚移植あたりの生後生存率の相対的な向上28など、いくつかの利点がある。致命的なサイトプラスト損傷を誘発することなく、核が完全に除去(脱核)されたことを確認することが、再構成された構造体がクローン胚を正常に維持できるかどうかを決定づける。UV照射は有害な影響を及ぼすことが知られているが29、大多数のクローニング研究室で日常的に使用されている。最後に、ZPフリー胚培養では保護外殻である糖タンパク質層が欠如しているため、取り扱い時の物理的な脆弱性の高さや、胚盤胞細胞の解離30といった重大な問題が生じる。
結論として、本研究で得られた結果は、シカとウシの組み合わせにおけるiSCNTプロトコルの技術的な実現可能性を示す予備的な証拠として解釈されるべきであり、その生産的有効性の決定的な証明として捉えるべきではありません。したがって、これらの知見を確認するためには、より多くの反復回数を用いた追加の研究が必要です。
開示事項
著者は開示すべき利益相反はありません。
謝辞
本研究は、セアラ科学技術開発支援財団(FUNCAP、ブラジル、フォルタレザ、助成番号 11212233/2022)および国立科学技術研究所(INCT/CNPq、助成番号 406866/2022-8)の支援を受けました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 吸引針 (18G) | LABIMPORT | 353601 | 使い捨て針、ショートカット |
| 6-ジメチルアミノプリン (6-DMAP) | Sigma-Aldrich | D2629 | |
| 抗生物質–抗真菌薬 | Gibco, Thermo Fisher Scientific | 15240062 | |
| ウシ血清アルブミン | Sigma-Aldrich | A9647 | |
| 塩化カルシウム二水和物 (CaCl2·2H2O)·2H2O) | Sigma-Aldrich | C7902 | |
| T-25細胞培養フラスコ | Corning | 430639 | |
| CellTram マイクロインジェクター | Eppendorf | 5196 000.021 | |
| 遠心分離機 | Eppendorf | 5702 | 細胞を200gで遠心分離するために使用する × 核移植の手順に先立ち、サンプルをペレット化して洗浄するため、10分間遠心分離を行う。 |
| 遠心チューブ (50mL) | Corning | CLS430291 | |
| クライオバイアル(1.8 mL) | Nunc / Thermo Fisher | 368632 | |
| システアミン | Sigma-Aldrich | M9768 | |
| デメコルシン | Sigma-Aldrich | D1925 | |
| 蒸留水 | _ | _ | |
| DMSO(細胞凍結用) | Sigma-Aldrich | D2650 | ドナー細胞凍結保存用10%凍結保護剤 |
| ダルベッコ改変イーグル培地 (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| 核抜きピペット (20–25 µm ID) | ナリシゲ | GD-1 | |
| 上皮成長因子 (EGF) | Sigma-Aldrich | E4127 | |
| 必須アミノ酸 BME | Sigma-Aldrich | M5550 | |
| エストラジオール | Sigma-Aldrich | E8875 | |
| EVE インキュベーター (5% O2)2, 5% CO₂2, 90% N2) | WTA医学 | 参照番号 23578 | |
| ウシ胎児血清 (FBS) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| フィラメント付きガラスキャピラリー | ナリシゲ | GD-1 | このガラスキャピラリーは、ペトリ皿にマイクロウェルを作成するために使用されます。 |
| 加熱プレート | WTA医療 | 17656 | |
| HEPES | Sigma-Aldrich | H6147 | |
| Hoechst 33342(DNA染色剤) | Sigma-Aldrich | B2261 | |
| 保持用ピペット(120 μm OD) | ナリシゲ | GD-1 | |
| ヒアルロニダーゼ | Sigma-Aldrich | H4272 | |
| 倒立顕微鏡 ECLIPSE | ニコン | TE2000-U | |
| イオノマイシン(カルシウム・イオノフォア A23187) | Sigma-Aldrich | I0634 | |
| 内部転写スペーサー (Internal Transcribed Spacer) | Sigma-Aldrich | I2771 | |
| 塩化カリウム | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Laminar Flow Cabinet Isocide | Esco | 2120765 | 胚および細胞培養の手順に無菌的な作業環境を提供する層流キャビネット。 |
| L-グルタミン | Sigma-Aldrich | G8540 | |
| 液体窒素保存用デュワー瓶 | Nitroagro | 変動あり | |
| 硫酸マグネシウム (MgSO4) | Sigma-Aldrich | M2643 | |
| マンニトール融合培地 (0.3M) | Sigma-Aldrich | M9546 | |
| 塩化マグネシウム | Sigma-Aldrich | M8266 | |
| Microforge MF-900 | ナリシゲ | MF-900 | |
| マイクロマニピュレーターシステム | ナリシゲ | MM-89 / TransferMan 4r | |
| マイクロピペットプラー | ナリシゲ | Narishige PC-100 | |
| マイクロピペット(10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | リサーチ・プラス・シリーズ | |
| マイクロフュージョンチャンバー | Eppendorf | 12816532 | エレクトロポレーション用途に設計された、専用の0.2 mmギャップアクセサリーです。 |
| ミネラルオイル(胚テスト済み) | Sigma-Aldrich | M8410 | |
| マルチポレーター | Eppendorf | 4308 000.015 | |
| ミオイノシトール | Sigma-Aldrich | I7508 | |
| 塩化ナトリウム | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| 非必須アミノ酸含有MEM | Sigma-Aldrich | M7145 | |
| ペンタバイオティクス | Zoetis | 10005048 | 2,400,000 IUバイアル。 |
| ペトリ皿 35mm(胚テスト済み) | Corning | 430165 | |
| ペトリ皿 60mm(胚テスト済み) | Corning | 430196 | |
| フェノールレッド | Sigma-Aldrich | P0290 | |
| ピペットチップ 1000 µL | Eppendorf | 9401030 | |
| ピペットチップ 200 µL | Eppendorf | 94052300 | |
| フィルターなしピペットチップ (0.5–10 µL) | Axygen | T-300 | |
| ポリビニルアルコール (PVA) | Sigma-Aldrich | P8136 | |
| プロナーゼ(S. griseus由来プロテアーゼ) | Sigma-Aldrich | P8811 | |
| 乳酸ナトリウム | Sigma-Aldrich | L7900 | |
| ピルビン酸ナトリウム | Sigma-Aldrich | P4562 | |
| 実体顕微鏡 | ニコン | SMZ800 | |
| 滅菌胚試験水 | Sigma-Aldrich | W3500 | |
| 滅菌フィルター(0.22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| 3ガスインキュベーター (5% O2)2、5% CO22, 90% N2) | WTA医療 | 参照番号 23578 | |
| トリプシン-EDTA (0.25%) | Gibco / Thermo Fisher | 25200056 | |
| 超純水áter | Sigma-Aldrich | W3500 | |
| UVランプ / 蛍光モジュール | Leica / Olympus | 様々 | 脱核を確認するための短時間のUV照射。光毒性を最小限に抑える。 |
参考文献
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
再版と許可
この記事は公開されました
動画は近日公開