本研究では、ネットワーク薬理学、検証済み分子ドッキング、およびin vitro実験を統合し、Cordyceps sinensisの構成成分と慢性糸球体腎炎に関連するプロセスの間の候補化合物と標的の相互関係を評価した。化合物レベルの検証のためにβ-Sitosterolが選定され、メサンギウム細胞モデルにおいて炎症および線維化促進性の活性化を減弱させることが明らかになった。
方法論記事
慢性糸球腎炎に関連する炎症および線維化メサンギウム細胞モデルにおけるβ-シトステロールのネットワークガイド評価
* These authors contributed equally
この記事について
サマリー
要約
慢性糸球体腎炎(CGN)は、持続的な炎症性損傷と進行性の線維化リモデリングを特徴としていますが、天然物ベースの介入の根拠となる化合物-標的関係はまだ十分に定義されていません。本研究では、ネットワーク薬理学、検証済みの分子ドッキング、およびin vitro 実験を統合し、CGN関連の病理学的プロセスにおける冬虫夏草(Cordyceps sinensis、C. sinensis)の候補成分を評価しました。C. sinensisの候補成分をスクリーニングし、Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platformから得られた化合物関連標的とCGN関連遺伝子の共通項目を抽出しました。機能濃縮分析およびタンパク質-タンパク質相互作用分析を用いて、生物学的プロセスとハブ標的を優先順位付けしました。その結果、PTGS2が重要な共通標的として同定されました。分子ドッキングは、セレコキシブが結合したCOX-2構造を用いて行われました。共結晶化したセレコキシブリガンドの再ドッキングでは、RMSD 0.876 Åで結晶学的ポーズが再現され、ドッキングプロトコルの妥当性が支持されました。β-シトステロールとリノレイル酢酸は、それぞれ−7.2および−7.5 kcal/molの結合親和性を示し、COX-2ドッキング領域との適合性が予測されました。HBZY-1ラット糸球体メサンギウム細胞における化合物レベルの検証には、β-シトステロールが選択されました。0.5–10 µMの濃度において、β-シトステロールは細胞生存能を著しく低下させませんでした。リポ多糖(LPS)刺激細胞において、β-シトステロールはTnf、Il6、およびPtgs2の発現を抑制し、プロスタグランジンE2(PGE2)の産生を減少させ、シクロオキシゲナーゼ-2(COX-2)タンパク質の存在量を減少させました。形質転換増殖因子β1(TGF-β1)処理細胞において、β-シトステロールはCol1a1およびActa2の発現を抑制し、α-スムーズムスリンアクチン(α-SMA)タンパク質の存在量を減少させました。これらの知見は、β-シトステロールがメサンギウム細胞モデルにおける炎症性および前線維化性の活性化を調節するという仮説を生成する根拠を提供しますが、COX-2の直接的な酵素阻害やCGNにおける治療有効性を立証するものではありません。
概要
慢性糸球体腎炎(CGN)は、慢性腎臓病および末期腎不全へと進行し得る、不均一な糸球体疾患のグループで構成されています1。それは、持続的な糸球体損傷、炎症性活性化、および進行性の線維化リモデリングを特徴とします2,3。選択された患者には副腎皮質ステロイドや免疫抑制剤が使用されますが、多くの場合で長期的な疾患コントロールは困難であり、治療に関連する副作用も一般的です1,4,5。CGNの進行には、免疫活性化、内皮機能不全、酸化ストレス、および細胞外マトリックスの蓄積を含む、相互に作用する病理学的プロセスが関与しています3,6,7。したがって、炎症反応と前線維化反応をつなぐ分子ノードを特定することは、疾患に関連する介入戦略のための検証可能な仮説を構築するのに役立つ可能性があります。
Cordyceps sinensis (C. sinensis) は、腎臓に関連する臨床および実験的な文脈で使用されており、いくつかの疾患モデルにおいて抗炎症作用、抗アポトーシス作用、および細胞保護作用を及ぼすことが報告されている8,9,10。しかし、その候補成分が糸球体腎炎に関連する標的とどのように相互作用するかという分子基盤は、まだ十分に定義されていない11。C. sinensisの多成分的な性質とCGNのメカニズム的な不均一性を考慮すると、ネットワーク薬理学は、候補となる化合物・標的・パスウェイの関係を優先順位付けするための有用な枠組みを提供する12,13。
本研究では、化合物スクリーニング、ターゲット抽出、疾患・遺伝子交差分析、機能濃縮分析、タンパク質間相互作用ネットワーク分析、分子ドッキング、およびin vitro検証を統合し、C. sinensisの候補成分とCGNに関連する病理学的プロセスとの間の潜在的な分子関係を探索した。化合物-疾患ネットワークからハブターゲットとして優先的に選択されたプロスタグランジン・エンドペルオキシダーゼ合成酵素2(PTGS2)について、セレコキシブが結合したシクロオキシゲナーゼ-2(COX-2)構造を用いた分子ドッキングおよびリドッキング検証により評価を行った。ネットワーク解析の結果、ドッキング分析、および抗炎症・抗線維化活性に関する先行知見に基づき、下流の検証における代表的な候補化合物としてβ-シトステロールを選択した14,15,16。炎症性活性化およびCOX-2/プロスタグランジンE2(PGE2)関連反応を評価するためにリポ多糖(LPS)刺激メサンギウム細胞を用い、線維化促進マーカーの発現を評価するためにトランスフォーミング増殖因子β1(TGF-β1)誘導モデルを用いた。
プロトコル
ネットワーク薬理学およびバイオインフォマティクス解析は、公開データベースに基づいて行われ、ヒト参加者または動物は関与していません。in vitro実験は、既知の細胞株を用いて実施され、施設上の要件に従い、倫理委員会の承認は必要ありませんでした。
候補成分のスクリーニングおよび標的の回収
2025年7月13日に、Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP)において、検索キーワード「dongchongxiacao」を用いて候補成分およびそれらに対応する標的を抽出した。予測経口バイオアベイラビリティが30%以上、かつドラッグライクネスが0.18以上の化合物を保持した。その結果、7つの候補成分が両方のスクリーニング基準を満たした。記述的な比較を行うため、分子量、経口バイオアベイラビリティ、ドラッグライクネス、およびその他の利用可能な薬物動態記述子をTCMSPから記録した。
抽出された成分に関連する化合物-ターゲット情報は、TCMSPから直接ダウンロードした。非冗長なターゲットセットを構築する際、重複するターゲットエントリを手動で削除したが、その後のネットワーク構築のために元の化合物-ターゲット関係は保持した。TCMSPではターゲット名が標準化された遺伝子シンボルではなくフルネームで提供されていたため、各ターゲットをUniProtデータベース(2025年7月14日にアクセス)で検索した。対応するヒトのエントリを選択し、ターゲット名を公式の遺伝子シンボルに変換した。この標準化された化合物-ターゲットデータセットを、疾患-ターゲットの共通項抽出および化合物-ターゲットネットワーク解析に使用した。
糸球体腎炎関連遺伝子の収集およびターゲットの交差解析
2025年7月14日に、検索ワードとして「glomerulonephritis」を用い、GeneCards、DisGeNET、PharmGKB、およびTherapeutic Target Databaseから疾患関連遺伝子を抽出した。GeneCardsについては、レリバンススコアが中央値である10を超えるエントリーを保持した。その他のデータベースからは、キュレーション済みの疾患標的アノテーションに基づき、適格なエントリーを抽出した。遺伝子名はヒトの公式遺伝子シンボルに統一し、重複するエントリーを削除した。この手順により、1,134個の固有の糸球体腎炎関連遺伝子が得られた。検索に「glomerulonephritis」という広義の用語を使用したため、得られたデータセットは、特定の組織病理学的亜型ではなく、慢性糸球体腎炎に関連する分子プロセスに関連するものと見なした。
TCMSP由来の化合物関連ターゲットを、Rを用いて疾患関連遺伝子セットと交差させました。その結果、23個の共通ターゲットが同定されました。ベン図はRパッケージのvennを用いて作成し、化合物と共通ターゲットのネットワークはCytoscapeを用いて構築および可視化しました。候補成分と共通ターゲットの関係を表1にまとめています。
機能濃縮分析およびタンパク質間相互作用解析
Gene Ontology (GO) および Kyoto Encyclopedia of Genes and Genomes (KEGG) の濃縮分析を、R の clusterProfiler および org.Hs.eg.db を用いて実施した。Gene Ontology タームについては、「生物学的プロセス」、「細胞成分」、「分子機能」のカテゴリーで分析を行った。P 値は Benjamini-Hochberg 法を用いて多重検定補正を行い、補正後 P 値が 0.05 未満のタームまたはパスウェイを抽出した。濃縮されたタームおよびパスウェイは、個別に作成した棒グラフおよびドットプロットを用いて表示した。
重複する23個のターゲットをSTRINGに投入し、生物種としてHomo sapiensを選択し、最小相互作用スコアを0.4より大きく設定した。得られたタンパク質-タンパク質相互作用ネットワークをCytoscapeにインポートした。ネットワークトポロジーは、次数、介在中心性、近接中心性、固有ベクトル中心性、局所平均接続度、およびネットワーク中心性に基づき、CytoNCAを用いて評価した。ハブターゲットは、次数、介在中心性、近接中心性、固有ベクトル中心性、局所平均接続度、およびネットワーク中心性の値がいずれもネットワークの対応する中央値を上回るノードとして定義した。この解析により、その後の解釈に向けて9つのハブターゲットを優先的に抽出した。
分子ドッキングおよびリドッキングによる検証
セレコキシブが結合したシクロオキシゲナーゼ-2の構造(PDB ID 3LN1)を用いて分子ドッキングを実施しました。受容体の調製において、チェーンAおよびそれに付随するヘム群を保持し、結晶学的水分子および共結晶化したセレコキシブリガンドは除去しました。リドッキングによる検証のため、チェーンAから天然のセレコキシブ配座を別途抽出しました。AutoDockToolsを用いて極性水素原子とGasteiger電荷を付加し、受容体をPDBQT形式で保存しました。PDB ID 3LN1は、セレコキシブが結合したマウスCOX-2の2.40 Å分解能構造です。β-シトステロールおよびリノレイル酢酸の構造はPubChemから取得し、Open Babelを用いて調製しました。水素原子とGasteiger部分電荷を付加し、回転可能結合を割り当てた後、各リガンドをPDBQT形式に変換しました。セレコキシブ、β-シトステロール、およびリノレイル酢酸を、同一の受容体および探索パラメータを用いてAutoDock Vinaによりドッキングさせました。
ドッキングボックスは、以下の座標を用いて天然のセレコキシブ結合領域を中心として設定した:center_x = 30.9886 center_y = -22.2836 center_z = -16.5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å。exhaustive値は16、出力モード数は10、エネルギー範囲は3 kcal/molに設定した。予測結合エネルギーが最も低い、上位のポーズを可視化のために保持した。プロトコルの妥当性確認のため、天然のセレコキシブを同一条件下で再ドッキングし、結晶構造のポーズと再ドッキングされたポーズ間の重原子二乗平均平方根偏差(RMSD)をPyMOLを用いて算出した。RMSDが2 Å未満であれば、参照ポーズの許容可能な再現とみなした。各ドッキングリガンドから4 Å以内に位置する残基をPyMOLで特定した。ドッキングスコアおよびポーズは、構造的な適合性の推定値として解釈し、標的結合または酵素阻害の直接的な証拠とはみなさなかった。
細胞培養および化合物の調製
HBZY-1ラット糸球体メサンギウム細胞を、10%胎児牛血清および1%ペニシリン-ストレプトマイシンを添加した高グルコースDulbecco’s modified Eagle mediumを用い、37 °C、5% CO₂の加湿条件下で培養した。すべての実験には継代数2~7の細胞を使用し、使用前にマイコプラズマ陰性であることを確認した。化学的に定義された化合物として、β-Sitosterolおよびcelecoxibを使用した。β-Sitosterolは、絶対エタノールに溶解して10 mMのストック溶液(約4.15 mg/mL)を調製した。必要に応じて、短時間の超音波処理および50–60 °Cへの加温を行い、視覚的に透明な溶液とした。Celecoxibは、ジメチルスルホキシドに溶解して10 mMのストック溶液(約3.81 mg/mL)を調製した。ストック溶液は分注し、−20 °Cで保存した。 処理直前に、ストック溶液をあらかじめ加温した培地で直接希釈し、直ちに混合した。
溶媒濃度は各実験内で一致させた。細胞生存率アッセイでは、テストしたβ-sitosterolの最高濃度が20 µMであったため、すべての群で最終エタノール濃度を0.2% v/vに調整した。LPS誘導性炎症実験では、すべての群でエタノールおよびジメチルスルホキシドの最終濃度を、それぞれ0.1%および0.01% v/vに調整した。TGF-β1誘導性線維化実験では、すべての群で最終エタノール濃度を0.1% v/vに調整した。コントロール群、LPS群、およびTGF-β1群には、対応する溶媒を同量添加した。
細胞生存率アッセイ
細胞を96ウェルプレートに、完全培地100 µLを用いて1ウェルあたり5 × 10³ cellsの密度で播種し、24時間かけて接着させた。β-sitosterolsの濃度範囲を評価するため、細胞を0.5、1、5、10、または20 µMのβ-sitosterolとともに24時間インキュベートした。LPS関連の細胞生存率アッセイでは、細胞を1、5、または10 µMのβ-sitosterolで2時間前処理し、続いて1 µg/mLのリポポリサッカライドにさらに24時間曝露させた。
処理群は、コントロール、0.5 µM β-sitosterol、1 µM β-sitosterol、5 µM β-sitosterol、10 µM β-sitosterol、20 µM β-sitosterol、LPS、LPSおよび1 µM β-sitosterol、LPSおよび5 µM β-sitosterol、およびLPSおよび10 µM β-sitosterolとした。Cell Counting Kit-8試薬を1ウェルあたり10 µL添加し、プレートを2時間インキュベートした。その後、450 nmで吸光度を測定した。細胞不含のブランク値を差し引いて細胞生存率を決定し、コントロール群に対する相対値として算出した。各条件において、6回の独立した生物学的実験を行い、それぞれ6つのテクニカルウェルを用いた。各実験のテクニカルウェルの値を平均し、統計分析用の1つの生物学的レプリケート値とした。
LPS誘発性炎症活性化
炎症性活性化実験では、HBZY-1細胞を6ウェルプレートに1ウェルあたり2 × 10⁵ cellsの密度で播種し、コンフルエンシーが約70%~80%に達した後に処理を行った。細胞は処理前の12時間、1%胎児牛血清を添加した培地で維持した。LPS刺激の2時間前に、β-Sitosterolまたはセレコキシブを投与した。その後、細胞を1 µg/mL LPSに24時間曝露させた。
実験群は、コントロール群、10 µMのβ-sitosterol投与群、LPS投与群、LPSおよび1 µMのβ-sitosterol投与群、LPSおよび5 µMのβ-sitosterol投与群、LPSおよび10 µMのβ-sitosterol投与群、ならびにLPSおよび1 µMのcelecoxib投与群とした。Celecoxibは、COX-2依存的なプロスタグランジン産生抑制の機能的陽性対照として導入した。処理終了後、PGE2測定のために培養上清を回収した。また、Tnf、Il6、Ptgs2の定量リアルタイムPCR分析およびCOX-2のウェスタンブロット分析のため、細胞を別途回収した。
TGF-β1誘導性線維化促進活性化
線維化促進活性を評価するために、別のTGF-β1誘導モデルを用いた。HBZY-1細胞を6ウェルプレートに1ウェルあたり2 × 10⁵ cellsの密度で播種し、処置前の12時間、1%胎児牛血清を添加した培地で維持した。細胞をβ-sitosterolで2時間前処理した後、10 ng/mLのリコンビナントTGF-β1で48時間刺激した。
処理群は、コントロール、β-シトステロール (10 µM)、TGF-β1、TGF-β1 + β-シトステロール (5 µM)、および TGF-β1 + β-シトステロール (10 µM) とした。処理期間の終了後、細胞を回収し、Col1a1 および Acta2 の定量的リアルタイムPCR解析、ならびにα-平滑筋アクチン (α-SMA) のウェスタンブロット解析に用いた。
定量リアルタイムPCR
製造元のプロトコルに従い、フェノール・グアニジニウムベースのRNA抽出試薬を用いて、処理済み細胞から全RNAを単離した。分光光度計を用いてRNAの濃度と純度を測定した。A260/A280比が1.8–2.0のサンプルのみを逆転写に使用した。各サンプルについて、1 µgの全RNAを最終反応量20 µLで相補的DNAへと逆転写した。得られた相補的DNAは、定量PCRの前にヌクリーゼフリー水で5倍に希釈した。定量PCRは、10 µLの2× SYBR Greenマスターミックス、各10 µMのフォワードおよびリバースプライマーを0.4 µLずつ、2 µLの希釈済み相補的DNA、および7.2 µLのヌクリーゼフリー水を含む、合計20 µLの容量で実施した。増幅条件は、95 °Cで30 sの初期変性後、95 °Cで5 sの変性と60 °Cで30 sのアニーリング・伸長を40サイクル繰り返した。その後、増幅の特異性を確認するため、65 °Cから95 °Cまでの融解曲線分析を行った。
測定した遺伝子は、Tnf、Il6、Ptgs2、Col1a1、Acta2、およびGapdhである。Gapdhを内部参照遺伝子として用いた。相対的な遺伝子発現量は、Control群を校正用サンプルとして2−ΔΔCt法を用いて算出した。プライマー配列は付録表1に記載している。各サンプルについてテクニカルレプリケートを3回ずつ解析し、独立した生物学的実験を6回行った。統計解析の前に、テクニカルレプリケートから得られた値を平均した。
酵素結合免疫吸着法(ELISA)によるPGE2の測定
LPS刺激から24時間後に培養上清を回収し、4 °Cで1,000 × g、10分間遠心分離して細胞残渣を除去した。PGE2濃度は、市販の酵素免疫測定法(ELISA)キットを用い、製造元の指示に従って測定した。
標準試料とサンプルをアッセイプレートに二連で分注した。抗体結合および呈色ステップの完了後、マイクロプレートリーダーを用いて450 nmにおける吸光度を測定した。PGE2濃度は、4パラメータロジスティック標準曲線から決定し、pg/mLとして算出した。6つの独立した細胞実験から得られた上清を解析した。統計解析の前に、各生物学的サンプルの二連測定値の平均を算出した。
ウェスタンブロッティング
処理した細胞を、プロテアーゼ阻害剤混合物を添加した放射免疫沈降アッセイ(RIPA)バッファーで溶解させた。溶解物を氷上で30分間インキュベートし、4 °Cで12,000 × gで15分間遠心分離した。上清中のタンパク質濃度をビシンコニン酸(BCA)タンパク質定量法を用いて決定した。等量(1レーンあたり30 µg)のタンパク質をローディングバッファーと混合し、95 °Cで5分間変性させた。LPS実験のタンパク質は10% SDS-ポリアクリルアミドゲルで、TGF-β1実験のタンパク質は12%ゲルで分離した。分離したタンパク質をその後、ポリフッ化ビニリデン(PVDF)膜に転写した。
メンブレンを0.1% Tween 20を含むTris緩衝生理食塩水で調製した5%脱脂粉乳で室温にて1時間ブロッキングし、その後、COX-2(1:1000)、α-SMA(1:1000)、およびGAPDH(1:5000)に対する一次抗体とともに4 °Cで一晩インキュベートした。COX-2はLPS実験のサンプルで分析し、α-SMAはTGF-β1実験のサンプルで分析した。洗浄後、メンブレンを西洋ワサビペルオキシダーゼ標識二次抗体(1:5000)とともに室温で1時間インキュベートした。タンパク質バンドを強化化学発光基質を用いて可視化し、化学発光イメージングシステムでキャプチャした。露光時間はCOX-2で約10 s、α-SMAで10 s、GAPDHで2 sとした。
バンド強度はImageJを用いて定量化した。COX-2およびα-SMAのシグナルは、対応するGAPDHのシグナルで標準化した。ウェスタンブロッティングは、6回の独立した細胞培養および処理実験から得られたタンパク質サンプルを用いて実施した。
統計解析
統計解析にはGraphPad Prismを使用しました。データは平均値 ± 標準偏差で的に示しています。定量的な分析ごとに6回の独立した細胞培養および処理実験を行い、各独立実験を1つの生物学的レプリケートとしました。同一の生物学的実験から得られたテクニカルレプリケートの測定値は、統計解析の前に平均化し、独立した観察値としてはカウントしていません。
細胞生存率アッセイでは、各生物学的実験において条件ごとに6つのテクニカルウェルを用いました。定量PCR反応は各生物学的サンプルについてテクニカルトリプリケート(3連)で実施し、PGE2の測定はデュプリケート(2連)で実施しました。ウェスタンブロットの定量は、独立して調製した6つのタンパク質サンプルに基づいて行いました。したがって、各定量バーには6つの個別の生物学的レプリケート値が含まれています。
多群間の差異は、一元配置分散分析後、Tukeyの多重比較検定を用いて解析した。両側 P 値 < p < 0.05を統計学的に有意であるとみなした。個々の生物学的反復値は、平均値および標準偏差とともに示した。
結果
候補成分のスクリーニング、ターゲットの抽出、およびターゲットの共通項の特定
候補となる化合物と疾患の共通ターゲットを特定するためのワークフローをFigure 1Aにまとめる。OB ≥30%およびDL ≥0.18という事前定義されたスクリーニング基準を満たしたC. sinensisの7つの候補化合物は、アラキドン酸、リノレイル酢酸、β-シトステロール、ペロキシエルゴステロール、セレビステロール、パルミチン酸コレステリル、およびCLRであった(Table 2)。並行して、GeneCards、DisGeNET、PharmGKB、およびTTDから1,134個の糸球体腎炎関連遺伝子を取得し、4つのデータベースにおけるそれらの分布をFigure 1Bに示す。化合物関連ターゲットセットと疾患関連遺伝子セットの交差分析により、23個の共通ターゲットが特定された(Table 1, Figure 1C)。対応する化合物と共通ターゲットのネットワークをFigure 1Dに示し、代表的な候補化合物、共通ターゲット、およびCGNの間の関係を明らかにしている。これらの共通ターゲットには、PTGS2、CASP3、MAPK1、PPARG、TNFRSF1A、およびNOS3など、炎症調節、アポトーシス、および血管関連シグナル伝達に関連する複数の遺伝子が含まれていた。
機能濃縮解析およびタンパク質間相互作用解析
23個の重複ターゲットの生物学的意義を調べるため、GOおよびKEGGパスウェイ濃縮分析を行った。その結果、これらのターゲットは、炎症および代謝に関連する複数のパスウェイにおいて有意に濃縮されていることが明らかになった。
GO解析により、ターゲットを生物学的プロセス(BP)、細胞成分(CC)、および分子機能(MF)のカテゴリーに分類しました。最も有意に濃縮されたBP項には、リポ多糖への応答、細菌由来分子への応答、および筋系プロセスの調節が含まれていました。細胞レベルでは、ターゲットは膜ラフト、カベオラ、および血小板α顆粒コンパートメントに濃縮されており、一方で酸化還元酵素活性や核受容体結合などのMF項は、酸化ストレスおよび転写調節における役割をさらに示唆していました(図 2A)。
KEGG解析により、脂質および動脈硬化経路(hsa05417)が最も有意に濃縮されており(q-value < 1 × 10⁻⁶)、それに加えて糖尿病合併症におけるAGE-RAGEシグナリング、TNFシグナリング、IL-17シグナリング、およびHIF-1シグナリングなどの経路も認められました(図2B)。特に、脂質および動脈硬化経路には、CASP3、MAPK1、PPARG、NOS3、TNFRSF1Aを含む23個のターゲットのうち10個が含まれていました。
総合すると、これらの濃縮分析の結果は、重複するターゲットがCGNに関連する炎症、ストレス応答、および内皮関連の生物学的プロセスと機能的に関連していることを示しています。
タンパク質間相互作用ネットワーク解析
STRINGを用いて、重複する23個のターゲットについてタンパク質-タンパク質相互作用(PPI)ネットワークを構築した結果、23個のノードと102個のエッジを含むネットワークが得られた(図3A)。CytoNCAを用いたトポロジー解析により、高度に連結した9つのハブターゲット(PTGS2、MAPK1、PPARG、CASP3、EGF、JUN、PECAM1、BCL2、およびPRKCA)が同定された(図3B)。これらのターゲットの中で、PTGS2は顕著なネットワーク中心性を示したため、その後の分子ドッキング解析の対象として選択された。これらの結果は、化合物と疾患の接点に関連している可能性が高い、ネットワーク的に優先順位付けされた候補調節因子のサブセットを明らかにしている。
分子ドッキングおよび再ドッキングによる検証
ネットワーク解析によって特定されたPTGS2に関連する候補関係の構造的な妥当性をさらに評価するため、セレコキシブが結合したCOX-2構造を用いて分子ドッキングを実施した。結晶構造PDB ID 3LN1は、COX-2の活性部位にセレコキシブが結合しており、ドッキングバリデーションのための実験的に定義されたリガンド結合ポケットを提供するため、これを選択した。まず、共結晶化したセレコキシブリガンドを抽出し、同じ結合ポケットに再ドッキングさせた。再ドッキングされたセレコキシブのポーズは結晶構造上のポーズを忠実に再現し、再ドッキングの平均二乗平方根偏差(RMSD)は0.876 Å、予測結合親和性は-12.3 kcal/molであった(図 4A)。この結果は、選択したドッキング条件下において、本ドッキングプロトコルが既知のリガンド結合ポーズを再現可能であることを示した。
同一の受容体、グリッドボックス、およびドッキングパラメータを用いて、β-sitosterolをセレコキシブで定義したCOX-2結合領域にドッキングさせた。β-sitosterolの予測結合親和性は-7.2 kcal/molであった(図 4B)。ドッキングポーズは事前定義されたCOX-2ドッキング領域内に位置しており、ドッキングしたβ-sitosterolポーズの周囲の残基には、ASN567、ASP333、GLN178、GLN336、GLY340、HIS337、HIS80、PRO500、THR79、およびTYR341が含まれていた。
リノレイル酢酸は、候補成分リストに残っていたこと、およびネットワーク解析においてPTGS2と関連していたことから、二次的な計算上の候補として評価されました。同一のドッキング条件下において、リノレイル酢酸は-7.5 kcal/molの予測結合親和性を示し、これはβ-シトステロールよりもわずかに良好な値でした(図 4C)。予測されたポーズは、ドッキング領域内のセレコキシブ参照リガンドの近傍に位置していました。リノレイル酢酸の周囲にある残基には、ALA502、ALA513、ARG106、ARG499、GLN178、GLY512、HIS75、ILE503、LEU338、LEU345、LEU517、MET508、PHE504、SER339、SER516、TRP373、TYR371、VAL102、VAL335、およびVAL509が含まれていました。
細胞生存率、炎症性活性化、および前線維化活性化
ネットワーク解析においてPTGS2関連の候補として同定され、抗炎症および抗線維化活性に関する先行の実験的根拠があったため、化合物レベルの検証にはβ-sitosterolを選択した。まず、その後の実験に適した濃度範囲を決定するために、細胞生存率を評価した。0.5、1、5、および10 µMのβ-sitosterolでの処理では、対照群と比較して細胞生存率は著しく低下しなかったが、20 µMのβ-sitosterolではわずかな低下が認められた。LPS曝露により細胞生存率は低下したが、β-sitosterolとの併用処理によりLPS刺激下での細胞生存率が部分的に改善し、最も顕著な効果は10 µMで観察された(図 5A)。これらの結果に基づき、以降のLPS誘発炎症活性化実験では、1、5、および10 µMのβ-sitosterolを用いた。
LPS刺激により、HBZY-1細胞における炎症性遺伝子のmRNA発現が著しく増加しました。対照群と比較して、LPS投与群ではTnf、Il6、およびPtgs2の発現レベルが高くなりました(Figure 5B-D)。β-シトステロールの処理は、これらの遺伝子のLPS誘導性の上昇を濃度依存的に抑制しました。この抑制傾向は、LPSに10 µMのβ-シトステロールを併用した群で最も顕著でした。機能的なCOX-2阻害剤の対照として導入したセレコキシブも、炎症性遺伝子の発現をある程度減少させましたが、いくつかの転写マーカーにおいて、その効果は10 µMのβ-シトステロールで観察されたものよりも限定的でした(Figure 5B-D)。
Ptgs2はCOX-2をコードしており、PGE2はCOX-2活性の主要な下流プロスタグランジン産物であるため、ELISAを用いてPGE2分泌量を測定した。LPS処理により、対照群と比較して培養上清中のPGE2濃度が増加した。β-sitosterolは、濃度依存的にLPS誘発性のPGE2産生を減少させた。セレコキシブもまたPGE2産生を抑制し、COX-2/PGE2軸の機能的阻害のポジティブコントロールとして機能した(図 5E)。ウェスタンブロット解析の結果、LPSによってCOX-2タンパク質の発現量が増加することがさらに示された。β-sitosterol処理は、LPS刺激下でのCOX-2タンパク質レベルを減少させ、高濃度であるほどより強い減少が観察された。対照的に、セレコキシブはPGE2産生を減少させたが、COX-2タンパク質の発現量への影響は限定的であった(図 5F)。
LPS誘発炎症モデルを補完するため、β-シトステロールがメサンギウム細胞における線維化マーカーの発現に影響を与えるか評価するために、TGF-β1誘発前線維化活性化モデルを用いた。TGF-β1は、対照群と比較してCol1a1およびActa2のmRNA発現を著しく増加させた(Figure 6A,B)。β-シトステロールは、これら両マーカーのTGF-β1誘発性増加を抑制し、その抑制効果は5 µMよりも10 µMにおいてより顕著であった(Figure 6A,B)。ウェスタンブロット分析では、TGF-β1刺激後にα-SMAタンパク質発現の対応する増加が認められたが、β-シトステロール処理により、TGF-β1処理細胞におけるα-SMAタンパク質の発現量が減少した(Figure 6C)。
データの利用可能性:
本研究を支持する生データおよび処理済みデータは、DOI: https://zenodo.org/records/21649482 としてZenodoに寄託されています。ウェスタンブロットのフルスキャン画像は、補足ファイル1に提供されています。
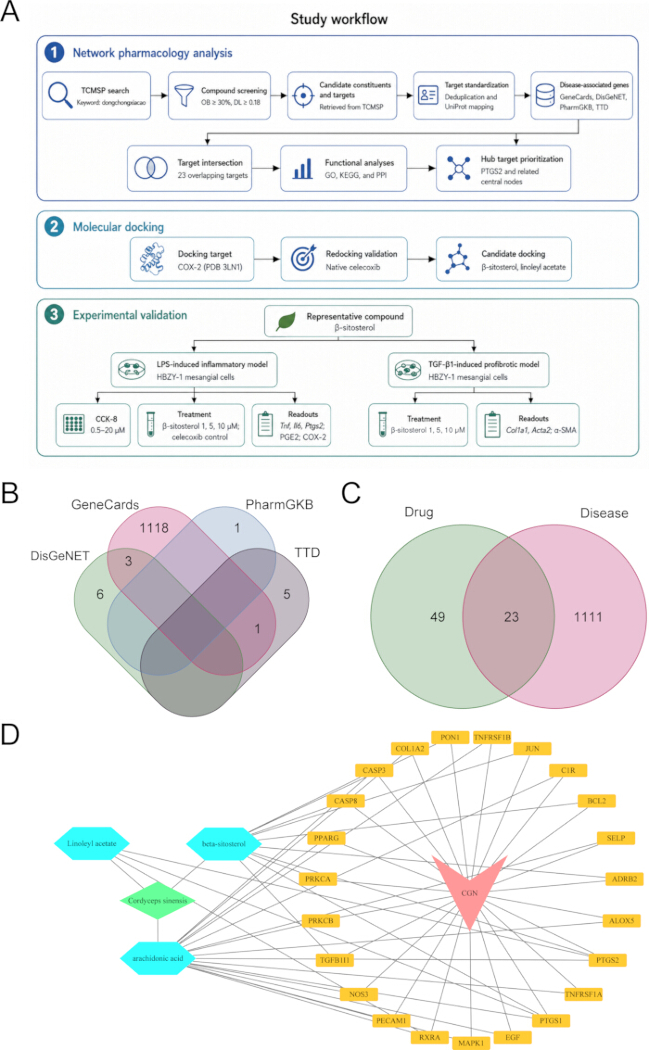
図 1. 糸球体腎炎におけるC. sinensisの候補化合物および疾患の共通ターゲットのワークフローおよびネットワークベースの同定。(A) 候補化合物の同定、化合物関連ターゲットの取得と標準化、糸球体腎炎関連遺伝子の取得、共通項分析、および化合物・共通ターゲットネットワークの構築を示す概略的なワークフロー。 (B) GeneCards、DisGeNET、PharmGKB、およびTTDから取得した糸球体腎炎関連遺伝子の分布を示すベン図。 (C) TCMSP由来の化合物関連ターゲットと疾患関連遺伝子の重複を示すベン図。これにより23個の共通ターゲットが同定された。 (D) 化合物・共通ターゲットネットワーク。緑色のひし形はC. sinensis、青色の六角形は候補化合物、黄色の円は共通ターゲット、および桃色の三角形はCGNを表す。エッジは対応する化合物-ターゲットまたは疾患-ターゲットの関係を示す。 この図の拡大版を表示するには、ここをクリックしてください。
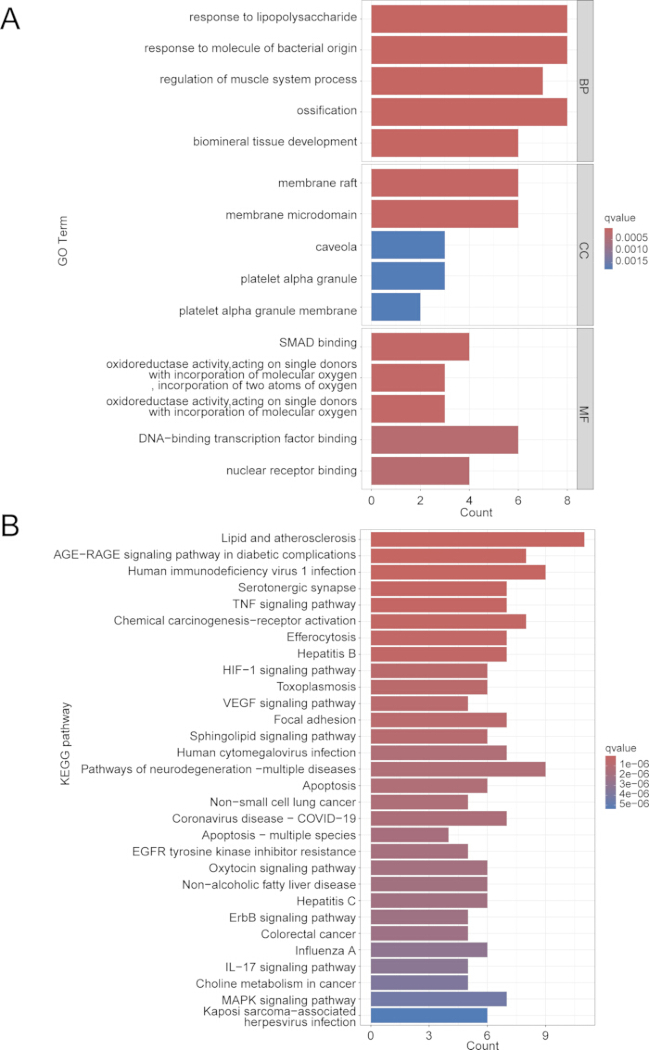
図2重複ターゲットの機能濃縮解析。 (A23個の重複ターゲットのGO機能濃縮分析。上位のBP、CC、およびMF用語を特定した。バーの長さは遺伝子数を示し、色のグラデーションはq値を表している。B) 23個の共通ターゲットのKEGG濃縮分析。パスウェイは遺伝子数と統計的有意性によって順位付けされている。 こちらの図の拡大表示をご覧になるには、ここをクリックしてください。
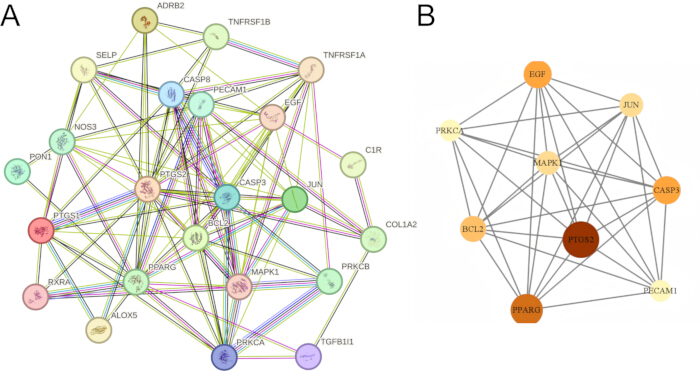
図3. タンパク質-タンパク質相互作用ネットワークおよび重複ターゲットにおけるハブターゲットの優先順位付け。 (A) インタラクションスコアの閾値を設定し、STRINGを用いて23個の重複ターゲットから構築したPPIネットワーク >0.4. (B) CytoNCAに基づくネットワークトポロジー解析により、上位9つのハブターゲットが優先順位付けされる。 PTGS2 顕著なネットワーク中心性を示したため、その後の分子ドッキング解析の対象として選択された。 こちらの図の拡大版を表示するには、ここをクリックしてください。
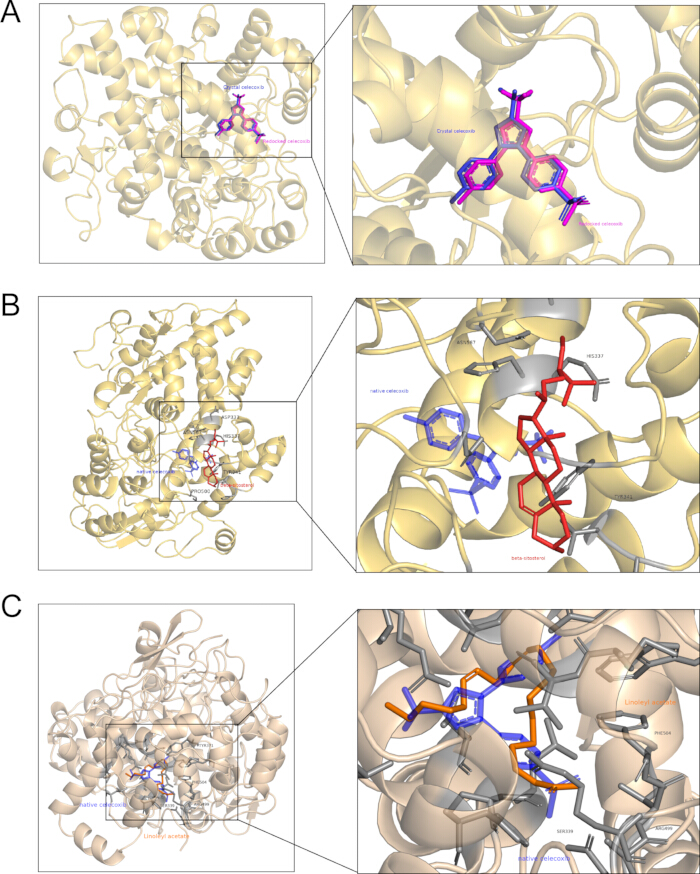
図4. 選択された候補化合物とCOX-2との分子ドッキングおよびリドッキング検証。 (Acelecoxib結合マウスCOX-2構造(PDB ID 3LN1)における、結晶構造解析によるcelecoxibのポーズと、再ドッキングで最上位にランク付けされたポーズの重ね合わせ。再ドッキングにより、実験的な結合配向が再現された。B) のトップランクのドッキングポーズ βセレコキシブによって定義されるCOX-2ドッキング領域内の-シトステロール。空間的な参照として、結晶構造解析によるセレコキシブのポーズが含まれている。(C同一ドッキング領域内におけるリノレイル酢酸のドッキングポーズのトップランク。 この図の拡大版を表示するには、こちらをクリックしてください。
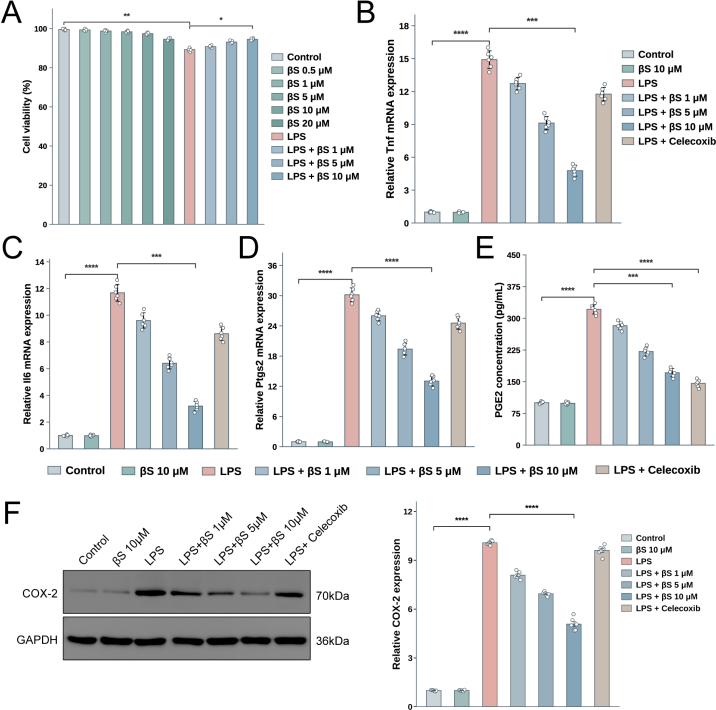
図 5. β-シトステロールは、HBZY-1メサンギウム細胞におけるLPS誘発性の炎症活性化およびPGE2産生を減弱させる。(A) Cell Counting Kit-8アッセイを用いて細胞生存率を測定した。細胞を0.5, 1, 5, 10, または 20 µMのβ-シトステロールで24時間処理した。LPS刺激群では、1 µg/mLのLPSに24時間曝露させる前に、1, 5, または 10 µMのβ-シトステロールで2時間前処理した。細胞生存率はコントロール群に対する相対値として的に示した。(B–D) Tnf (B), Il6 (C), および Ptgs2 (D) のmRNA発現の定量リアルタイムPCR分析。遺伝子発現はGapdhで標準化し、コントロール群に対する相対値として的に示した。(E) 酵素結合免疫吸着法(ELISA)により測定した培養上清中のPGE2濃度。COX-2依存的なプロスタグランジン産生の抑制に関する機能的な陽性対照としてセレコキシブを含めた。(F) 指定された処理群におけるCOX-2およびGAPDHの代表的なウェスタンブロット画像。データは6回の独立した生物学的実験の平均 ± SDとして示し、個々の生物学的反復値を併記した。テクニカルレプリケートの値は解析前に平均化した。比較は一元配置分散分析(one-way ANOVA)の後、Tukeyの多重比較検定を用いて行った。有意性は個々のパネル内の括弧で示している:*P < 0.05, **P < 0.01, ***P < 0.001, および ****P < 0.0001。こちらのリンクをクリックして、この図の拡大版を表示してください。
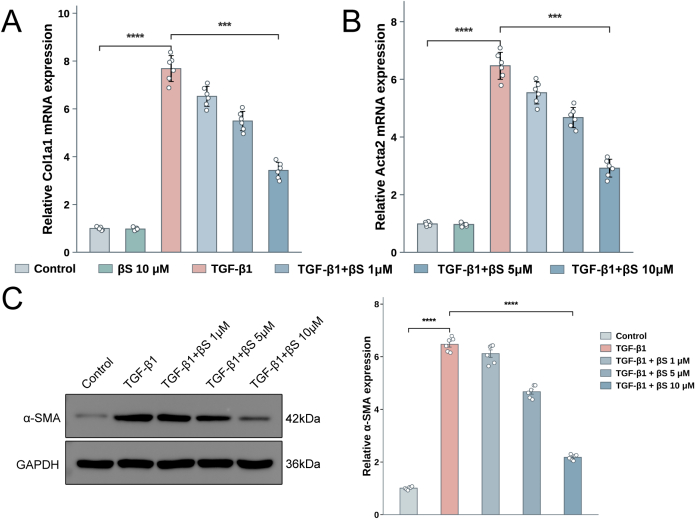
図6. β-シトステロールは、HBZY-1メサンギウム細胞におけるTGF-β1誘導性の線維化マーカー発現を抑制する。 (A–B) Col1a1 (A) および Acta2 (B) mRNA発現の定量的リアルタイムPCR解析。遺伝子発現はGapdhで標準化し、コントロール群に対する相対値として示した。 (C) 指定された処理群におけるα-SMAおよびGAPDHの代表的なウェスタンブロット画像。データは6回の独立した生物学的実験の平均値 ± SDとして示し、個々の生物学的レプリケート値を併記した。テクニカルレプリケート値は解析前に平均化した。比較には一元配置分散分析(one-way ANOVA)およびTukeyの多重比較検定を用いた。有意性は各パネル内のブラケットで示している:*P < 0.05, **P < 0.01, ***P < 0.001, ****P < 0.0001。この図の拡大版を表示するには、ここをクリックしてください。
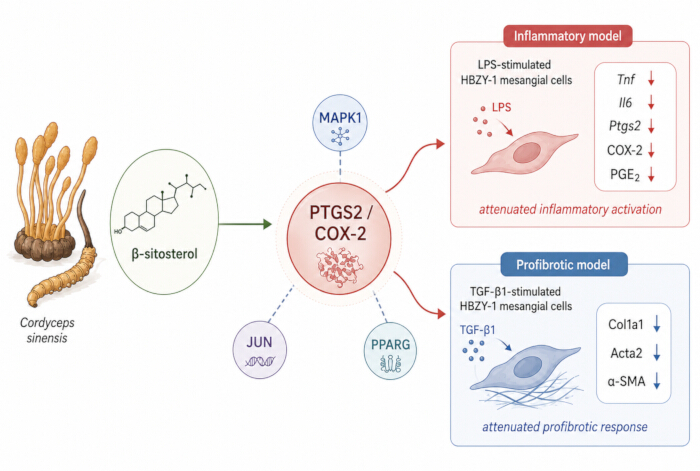
図 7の統合的解釈 βHBZY-1細胞における$\beta$-シトステロール関連の炎症および前線維化反応。 ネットワーク解析およびドッキング解析による優先順位付け PTGS2〜を含むより広範な文脈におけるCOX-2 MAPK1, JUNおよび PPARG. β-シトステロール処理により、LPS誘発性の低下が認められた Tnf, Il6、および Ptgs2 発現、COX-2タンパク質量およびPGE2産生、ならびにTGF-の減少β1誘導の Col1a1, Acta2、および α-SMA発現。 この図の拡大版を表示するには、ここをクリックしてください。
| 番号 | 重複ターゲット | ターゲットに関連する候補化合物 |
| 1 | PTGS1 | β-sitosterol; linoleyl acetate; arachidonic acid |
| 2 | PTGS2 | β-sitosterol; linoleyl acetate; arachidonic acid |
| 3 | CASP3 | β-sitosterol; arachidonic acid |
| 4 | CASP8 | β-sitosterol |
| 5 | BCL2 | β-sitosterol |
| 6 | JUN | β-sitosterol |
| 7 | PON1 | β-sitosterol |
| 8 | PRKCA | β-sitosterol |
| 9 | TGFB1I1 | β-sitosterol |
| 10 | ADRB2 | β-sitosterol |
| 11 | RXRA | linoleyl acetate; arachidonic acid |
| 12 | TNFRSF1A | arachidonic acid |
| 13 | TNFRSF1B | arachidonic acid |
| 14 | ALOX5 | arachidonic acid |
| 15 | SELP | arachidonic acid |
| 16 | C1R | arachidonic acid |
| 17 | COL1A2 | arachidonic acid |
| 18 | PPARG | arachidonic acid |
| 19 | PRKCB | arachidonic acid |
| 20 | NOS3 | arachidonic acid |
| 21 | PECAM1 | arachidonic acid |
| 22 | MAPK1 | arachidonic acid |
| 23 | EGF | arachidonic acid |
表1: TCMSP由来の化合物関連ターゲットと糸球体腎炎関連遺伝子の重複ターゲット。化合物とターゲットの記録をTCMSPから取得し、手作業で重複を排除した後、UniProtを用いて公式のヒト遺伝子シンボルに標準化した。
| 分子名 | 分子量 | AlogP | OB (%) | Caco-2 | 血液脳関門 | 深層学習 | FASA | HL |
| アラキドン酸 | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| リノレイル酢酸エステル | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| ββ-シトステロール | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| ペルオキシエルゴステロール | 428.72 | 6.73 | 44.39 | 0.86 | 0.43 | 0.82 | 0.24 | 4.06 |
| セレビステロール | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| コレステリルパルミテート | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| コレステロール (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
表2: 経口バイオアベイラビリティおよび薬物様性のスクリーニング基準を用いてTCMSPから抽出されたC. sinensisの候補成分。経口バイオアベイラビリティが30%以上、かつ薬物様性が0.18以上の化合物を保持した。MW:分子量、ALogP:予測オクタノール・水分配係数、OB:経口バイオアベイラビリティ、Caco-2:予測Caco-2透過性、BBB:血液脳関門透過性、DL:薬物様性、FASA:分画負アクセス可能表面積、HL:半減期。
付随表1. HBZY-1ラット糸球体メサンギウム細胞における定量リアルタイムPCRに使用したプライマー配列。 すべての配列は5′から3′方向に示されている。こちらをクリックしてファイルをダウンロードしてください。
補足ファイル 1. ウェスタンブロットのフルスキャン画像。こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
本研究では、ネットワーク薬理学、リファレンドリガンドで検証した分子ドッキング、および化合物レベルの実験を統合し、C. sinensisの候補成分から導出されたPTGS2関連の仮説を検討した。7つの成分が事前に定義されたTCMSPスクリーニング基準を満たし、23個のターゲットが糸球腎炎関連の遺伝子セットと重複した。タンパク質相互作用解析により9つの中心的なターゲットが優先的に抽出され、その中からPTGS2がドッキングおよび実験的評価の対象として選定された。セレコキシブの再ドッキングにより結晶構造上のポーズが再現された一方、β-シトステロールとリノレイル酢酸は、COX-2ドッキング領域に対して中程度の予測適合性を示した。HBZY-1メサンギウム細胞において、β-シトステロールはLPS誘発性の炎症性遺伝子発現、COX-2量、およびPGE2産生を抑制し、さらにTGF-β1誘発性の線維化促進マーカーの発現を抑制した。これらの知見は、計算機による優先順位付けと細胞表現型を結びつけるものであるが、確定的な治療メカニズムではなく、候補となる調節関係を支持するものである。
濃縮解析の結果、重複するターゲットは、炎症刺激、細胞ストレス、脂質調節、血管機能、および組織リモデリングに関連する生物学的プロセスに分類されました。リポポリサッカライドおよび細菌産物に対する応答の濃縮は、実験的検証に用いられた炎症モデルと一致していました。また、TNF、IL-17、AGE-RAGE、およびHIF-1に関連するパスウェイも、糸球体炎症および不適応なリモデリングに対する妥当な機能的背景を示唆していました6,17,18,19。しかしながら、パスウェイの濃縮はアノテーションされた遺伝子の統計的な集中を反映しているだけであり、β-sitosterolによるパスウェイの活性化または抑制を立証するものではありません12。したがって、顕著な脂質および動脈硬化のアノテーションは、動脈硬化がCGNにおける主要な疾患メカニズムであるという証拠としてではなく、共通の炎症、アポトーシス、および血管生物学として解釈されるべきです。同様に、TCMSPに基づく経口バイオアベイラビリティ、ドラッグライクネス、およびターゲットの記録を用いて、候補物質の優先順位付けが行われました。
PTGS2は、化合物と疾患の交差領域に存在し、高いネットワーク中心性を示し、さらにPtgs2の転写、COX-2タンパク質の量、およびPGE2産生の変動と実験的に関連していたため、重要なノードとして浮上しました。計算レベルと細胞レベルでのこの一致は、PTGS2に関連する応答を検討する根拠を強化するものです。しかし、これはPTGS2が腎臓において一様に病原性であることを意味するものではありません。COX由来のプロスタノイドは、腎血流量、塩分調節、および適応的恒常性に関与しており、細胞型、受容体分布、疾患の段階、および局所濃度に応じて、保護的または有害な効果を及ぼす可能性があります20,21。実験的腎炎において、セレコキシブはPGE2関連の出力を減少させた一方で、PGE2自体はメサンギウム細胞におけるプロスタグランジン受容体の発現に影響を及ぼしました22。これらの観察結果は、COX-2およびPGE2の生物学的影響が、単純な線形の炎症促進経路にとどまらないことを示しています20,23。セレコキシブとの比較は、標的の発現と酵素機能の区別を助けます。セレコキシブは、機能的なCOX-2阻害剤としての役割と一致して、PGE2の最も明確な減少をもたらしましたが、Ptgs2の発現およびCOX-2タンパク質の量に及ぼす影響は限定的でした22。β-シトステロールは、Tnf、Il6、Ptgs2、COX-2、およびPGE2の低下を含む、より広範なパターンを示しました。この違いは、COX-2阻害能が優れていることを示すものではありません。むしろ、セレコキシブが主に触媒活性の阻害を通じてプロスタグランジン合成を制限するのに対し、β-シトステロールはPTGS2が誘導される炎症状態そのものを変化させている可能性を示唆しています。β-シトステロールがCOX-2と機能的に相互作用するかどうかを判断するには、直接的な酵素アッセイ、ターゲットエンゲージメント研究、およびPTGS2の摂動実験が必要となります。
ネットワーク解析の結果は、PTGS2を単一の分子ノードとして解釈すべきではないことも示唆している。タンパク質相互作用ネットワークにおいてMAPK1、JUN、およびPPARGが共に優先順位高く抽出されており、プロスタノイド合成がより広範なシグナル伝達および転写のコンテキストの中に位置づけられている。腎メサンギウム細胞において、スフィンゴシン-1-リン酸はS1P受容体2依存的なp42/p44 MAPKシグナリングを介してCOX-2の発現とPGE2の生成を増加させており、この細胞種においてMAPK活性がCOX-2/PGE2応答の上流に位置し得ることの直接的な証拠となっている24。JUNはAP-1転写因子複合体の主要構成要素であるため、AP-1がMAPK活性化とPTGS2転写との間のインターフェースの一つとして機能している可能性がある。この可能性と一致して、培養メサンギウム細胞において15-deoxy-Δ12,14-prostaglandin J2は、AP-1活性とともにIL-1β誘発性のCOX-2発現を抑制した25。非腎細胞モデルでは、β-シトステロールがLPS曝露後のERKおよびp38の活性化、NF-κBシグナリング、COX-2発現、および炎症性サイトカイン産生を減少させた14,15。これらの観察結果は、本研究で認められたTnf、Il6、Ptgs2、COX-2、およびPGE2の協調的な減少について、妥当な背景を提示している。しかし、引用したβ-シトステロールの研究は腎メサンギウム細胞ではなくミクログリアまたは血管内皮細胞で実施されており、MAPK1のリン酸化およびJUNの活性は測定されていない。したがって、本結果は、β-シトステロールによるPTGS2調節のMAPK1依存的またはJUN依存的なメカニズムを立証するものではない。PPARGは、単なるPTGS2の下流の線形エフェクターとしてではなく、脂質感受性転写調節および抗線維化メサンギウム細胞表現型の変調を通じて、PTGS2を中心としたネットワークと交差している可能性がある。糸球体メサンギウム細胞において、天然および合成のPPARγリガンドはTGF-β1誘発性のフィブロネクチン発現を抑制し、また別の研究では、PPARγアゴニストがPKAおよびCREBシグナリングの減弱を通じて、TGF-β誘発性のメサンギウム細胞活性化、α-SMA発現、およびコラーゲンIVの蓄積を減少させたことが示されている26,27。糖尿病マウスおよび高グルコース刺激糸球体メサンギウム細胞を用いたより最近の研究では、NF-κB/COX-2およびPPARγ/UCP2が、腎炎症および線維化に関連する並行的な調節軸として位置づけられており、直接的なPTGS2-PPARG結合を証明することなく、潜在的な機能的収束を支持している28。これらの知見は、本TGF-β1モデルで観察されたCol1a1、Acta2、およびα-SMAの減少について、生物学的に妥当な背景を提供する。しかし、PPARGの発現、転写活性、およびリガンド結合は評価されていない。したがって、現在のデータでは、観察された抗線維化応答をPPARG活性化に帰属させることや、逐次的なMAPK1-PTGS2-PPARGシグナル伝達経路を定義することはできない。重要な点として、MAPK1およびPPARGは統合化合物-疾患ネットワークのレベルで優先順位付けされたものであり、現在の解析に基づき、これらを直接的なβ-シトステロールの標的として解釈すべきではない。
ドッキング解析は、同一の証拠境界内で解釈されるべきである。リドッキングのRMSDが0.876 Åであったことは、選択したドッキングプロトコルが3LN1構造における既知のセレコキシブの配向を再現できることを示していた。β-シトステロールおよびリノレイル酢酸の予測親和性がセレコキシブに比べて大幅に低かったことは、あらかじめ定義された領域内への空間的な収容は可能であるものの、同等の結合強度や薬理作用は持たないことを裏付けていた29,30。リノレイル酢酸とβ-シトステロールの間の0.3 kcal/molという差は、単独で生物学的なランキングを正当化するには小さすぎる。β-シトステロールが後続の試験に選択されたのは、そのネットワークへの関連性が、炎症および線維化に関するより広範な実験文献と結びついていたためである14,15,16。先行研究では、LPSに曝露させたミクログリアおよび内皮細胞において、MAPKおよびNF-κBシグナルの変化とともに、TNF-α、IL-6、およびCOX-2の減少が報告されていた14,15。アラキドン酸は内因性のCOX基質であるため、異なる解釈が必要となる21。TCMSP由来のネットワークにこれが存在することは、抗炎症抑制作用を示すものではなく、データベースに基づく化合物とターゲットの関係だけでは方向性が定義できないことを例証している。HBZY-1細胞で観察された炎症マーカーの濃度依存的な減少は、これら以前の細胞レベルでの知見と一致しており、同時にその証拠を糸球体メサンギウムの文脈へと拡張したものである14,15。TGF-β1モデルは、疾患プロセスの別の側面を扱ったものである31。β-シトステロールは、TGF-β1刺激後においてCol1a1およびActa2の転写を抑制し、α-SMAの発現量を減少させた。ヒト肺胞上皮細胞を用いた先行研究においても、同様にβ-シトステロールがTGF-β1誘発性のコラーゲン、フィブロネクチン、およびα-SMAの発現を抑制することが見出されているが、その研究は異なる組織および細胞プロセスに関するものであった16。したがって、本知見はメサンギウム細胞における前線維化表現型に対する活性を支持するものであるが、特定のTGF-β受容体やSMAD依存的メカニズムの抑制を立証するものではない31。
解釈の範囲を限定するいくつかの限界がある。疾患遺伝子セットは「糸球体腎炎(glomerulonephritis)」という広範な用語を用いて作成されており、特定の臨床的または組織学的なCGNサブタイプに特化したものではない。計算解析にはヒトのアノテーションを使用し、ドッキングにはマウスのCOX-2構造を用い、実験はラットHBZY-1細胞で実施した。オーソログ関係により比較は支持されるが、調節やリガンド認識における種依存的な差異が生じている可能性がある。単一の不死化メサンギウム細胞株では、メサンギウム細胞、ポドサイト、内皮細胞、浸潤免疫細胞、および尿細管間質コンパートメント間の相互作用を代表させることはできない。また本研究では、直接的な結合、COX-2酵素活性、PTGS2依存性、ヒト初代腎細胞での検証、in vivoでの有効性、薬物動態、または腎臓への曝露について評価していない。最後に、定義されたβ-sitosterol調製物を用いて試験したことで、予測成分と未特性の抽出物との間の以前の不一致は解消されたが、β-sitosterolがC. sinensis全体の効果を説明することや、他の成分が不活性であることを立証するものではない。
以上のネットワーク解析、ドッキングシミュレーション、および細胞ベースの知見を総合すると、β-sitosterolはHBZY-1細胞における炎症および線維化促進活性の抑制に関連する代表的な候補物質であることが支持されます。これらの結果はPTGS2/COX-2/PGE2に関連する反応の調節と一致していますが、COX-2への直接的な結合やPTGS2依存的な因果関係、あるいはCGNにおける治療 efficacy は立証されていません。さらなるターゲットエンゲージメント試験、遺伝子摂動、初代細胞を用いた研究、およびin vivo研究が必要です(図7)。
開示事項
著者は、競合する利益がないことを宣言します。言語編集および概略図の予備設計の補助として、人工知能ベースのツール(ChatGPT, OpenAI)が使用されました。図1Aおよび図7の予備的なグラフィカルドラフトの作成に生成AIが使用され、その後、報告された方法および結果との整合性を確保するために著者によってレビューおよび修正が行われました。AIによるすべての出力は、著者によって厳格に評価され、承認されました。著者は最終的な図の内容を確認し、原稿の完全性と正確性について全責任を負います。
謝辞
本研究は、中西医結合腎病特性専門科(ZYTSZK2-3)および、慢性疾患管理の視点から見た慢性腎臓病に対する中医学的介入戦略の研究(202240169)からの支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Absolute ethanol | Sigma-Aldrich/Merck | E7023 | 200 proof, non-denatured molecular biology-grade ethanol; solvent for β-sitosterol stock. |
| AutoDock Vina | Scripps Research | Version 1.1.2 | Molecular docking simulation |
| Biosafety cabinet | Thermo Fisher Scientific | 1300 Series A2 | Sterile cell culture operations |
| Celecoxib | MedChemExpress | HY-14398 | Selective COX-2 inhibitor used as the positive control; 10 mM stock in DMSO. |
| Cell Counting Kit-8 | Dojindo Molecular Technologies, Inc. | CK04 | WST-8 colorimetric assay for cell viability; absorbance measured at 450 nm. |
| Chemiluminescence imaging system | Bio-Rad Laboratories | ChemiDoc MP | Western blot image acquisition |
| clusterProfiler R package | Bioconductor | Version 4.10.0 | GO and KEGG enrichment analysis |
| CO2 cell culture incubator | Thermo Fisher Scientific | Forma Series II 3111 | Cell culture incubation at 37 °C and 5% CO2 |
| COX-2 (D5H5) Rabbit Monoclonal Antibody | Cell Signaling Technology | 12282 | Western blot validated for human, mouse, and rat COX-2; used at 1:1,000. |
| CytoNCA plugin | Cytoscape App Store | Version 2.1.6 | Hub target topological analysis |
| Cytoscape software | Cytoscape Consortium | Version 3.8.0 | Network visualization and analysis |
| Dimethyl sulfoxide | Sigma-Aldrich/Merck | D2650 | Sterile-filtered BioReagent, ≥99.7%; solvent for celecoxib stock. |
| DisGeNET database | Integrative Biomedical Informatics Group | Not applicable | Disease-gene retrieval for glomerulonephritis |
| Dulbecco's Modified Eagle Medium (DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | Basal medium for HBZY-1 cell culture |
| Enhanced chemiluminescence substrate | Beyotime Biotechnology | P0018S | Western blot band visualization |
| Fetal bovine serum | Gibco/Thermo Fisher Scientific | 10099-141C | Cell culture serum supplement |
| GAPDH (D16H11) Rabbit Monoclonal Antibody | Cell Signaling Technology | 5174 | Western blot loading control; reactive with human, mouse, and rat GAPDH; used at 1:5,000 after in-house optimization. |
| GeneCards database | Weizmann Institute of Science | NA | Retrieval of glomerulonephritis-associated genes |
| GraphPad Prism | GraphPad Software | Version 9.0.0.121 | Statistical analysis of in vitro experimental data |
| HRP-conjugated goat anti-rabbit IgG | Proteintech Group | SA00001-2 | Secondary antibody for rabbit primary antibodies |
| ImageJ software | National Institutes of Health | Version 1.54 | Western blot densitometric analysis |
| Inverted phase-contrast microscope | Olympus | CKX53 | Cell morphology observation |
| org.Hs.eg.db R package | Bioconductor | Version 3.18.0 | Human gene annotation for enrichment analysis |
| Penicillin-Streptomycin solution | Gibco/Thermo Fisher Scientific | 15140122 | Antibiotic supplement for cell culture |
| PGE2 Parameter Assay Kit | R&D Systems, a Bio-Techne brand | KGE004B | Multi-species competitive ELISA for cell culture supernatants; assay range 39–2,500 pg/mL; colorimetric detection at 450 nm. |
| PharmGKB database | Pharmacogenomics Knowledgebase | NA | Disease-related target retrieval |
| PubChem database | National Center for Biotechnology Information | NA | Retrieval of ligand structures |
| PVDF membrane | Millipore/Merck | IPVH00010 | Protein transfer membrane for western blotting |
| PyMOL molecular graphics system | Schrödinger, LLC | Version 2.6.2 | Docking pose visualization |
| R software | R Foundation for Statistical Computing | Version 4.3.2 | Target intersection and enrichment analysis |
| Rat glomerular mesangial cell line (HBZY-1) | Procell Life Science & Technology Co., Ltd. | CL-0117 | In vitro mesangial cell validation model |
| RCSB Protein Data Bank | Research Collaboratory for Structural Bioinformatics | PDB ID: 3LN1 | Retrieval of PTGS2/COX2 crystal structure |
| Recombinant human TGF-β1 protein | PeproTech, a Thermo Fisher Scientific brand | 100-21-10UG | HEK293-derived recombinant human TGF-β1; profibrotic stimulation at 10 ng/mL. |
| SDS-PAGE electrophoresis system | Bio-Rad Laboratories | Mini-PROTEAN Tetra | Protein separation by SDS-PAGE |
| STRING database | ELIXIR/STRING Consortium | Version 12.0 | Protein-protein interaction network construction |
| TCMSP database | Traditional Chinese Medicine Systems Pharmacology Database | NA | Screening of Cordyceps sinensis candidate compounds |
| Therapeutic Target Database | Innovative Drug Research and Bioinformatics Group | NA | Therapeutic target retrieval |
| α-SMA primary antibody | Proteintech Group | 14395-1-AP | Detection of α-SMA protein expression |
| β-Sitosterol (purity >98%) | MedChemExpress | HY-N0171A | CAS 83-46-5; defined compound used for cell treatment; 10 mM stock in absolute ethanol. |
参考文献
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).