バルク、シングルセル、および空間トランスクリプトーム解析を、機械学習ベースの生存率モデリングおよび実験的検証と併せて用いることで、本研究ではPPARGを骨肉腫における老化関連の予後候補遺伝子として指名し、その発現低下がTARGET-OSにおける不良な生存率、ならびに血管および微小環境の特徴と関連していることを明らかにしました。
研究記事
統合的なバルク、シングルセル、および空間的トランスクリプトーム解析により、骨肉腫における老化関連予後因子の候補遺伝子としてPPARGが特定された
* These authors contributed equally
この記事について
サマリー
要約
骨肉腫は、転移性、再発性、または治療抵抗性の疾患において依然として困難な課題となっています。本研究は、老化関連の予後遺伝子を同定し、その空間的コンテキストを明らかにすることを目的としました。GSE99671を用いてDESeq2によるペア差分発現解析を行い、次にCellAge老化遺伝子セットとの交差解析を実施しました。TARGET-OSコホートのトランスクリプトームデータはUCSC Xenaから取得しました。候補遺伝子は、単変量Cox回帰、カプランマイヤー分析、時間依存性受信者動作特性(ROC)分析、LASSO Cox回帰、反復LASSO分析、およびランダム生存フォレストモデリングを用いて評価し、臨床共変量を調整Coxモデルに組み込みました。機能濃縮解析、免疫微小環境分析、シングルセル・トランスクリプトミクス、SP_BS3空間トランスクリプトミクス、GSE36001による発現検証、および骨肉腫143B細胞と骨芽細胞におけるqRT-PCRおよびウェスタンブロット検証を用いて、その特性を明らかにしました。GSE99671では、調整済みP < 0.05で2,248個の遺伝子が差分発現しており、これらと866個のCellAge遺伝子との交差により、105個の老化関連差分発現遺伝子が得られました。TARGET-OSにおいて、PPARGの発現低下は死亡リスクの上昇と関連していました(単変量HR = 0.603, 95% CI = 0.454–0.802, P = 0.000494; 調整後HR = 0.224, 95% CI = 0.085–0.589, P = 0.00241)。臨床モデルにPPARGを加えることで、C-indexは0.707から0.829に上昇しました。PPARGはGSE99671およびGSE36001の両方で発現が低下しており、qRT-PCRおよびウェスタンブロッティングにより、骨肉腫143B細胞におけるPPARGのmRNAおよびタンパク質発現が骨芽細胞よりも低いことが確認されました。シングルセル分析により、PPARGは内皮細胞、ペリサイト、マクロファージ/単球、および腫瘍関連基質細胞に局在していることが分かりました。空間トランスクリプトーム解析では、PPARG発現とCellAge老化スコア、内皮関連スコア、およびペリサイト関連スコアとの間に、弱いが有意な正の相関が示されました。これらの知見は、PPARGが骨肉腫における不良な生存および血管微小環境の特徴に関連する、CellAge由来の候補予後バイオマーカーであることを示唆しており、リスク層別化および老化関連腫瘍微小環境への潜在的な関連性の研究を支持するものです。なお、GSE36001は外部発現検証のみに使用され、独立した生存検証は行われませんでした。
概要
骨肉腫は、小児、青年、および若年成人における最も一般的な原発性悪性骨腫瘍です1。局所疾患に対しては、手術を併用した多剤併用化学療法によって転帰が改善していますが2,3、転移性、再発性、または治療抵抗性の骨肉腫患者の長期生存率は依然として低いままです3,4。酸化ストレスによるエピジェネティックなリモデリングが転移への適応と腫瘍の進行を促進し得ることが明らかになってきており、攻撃的な癌表現型の根底にある複雑な分子可塑性が浮き彫りになっています5。臨床的に解釈可能で、かつ生物学的に有用な堅牢なバイオマーカーは依然として限られています。したがって、多層的なデータにわたって骨肉腫の異質性と予後リスクを捉える分子特徴を特定することが重要です。
細胞老化は、テロメア機能不全、DNA損傷、酸化ストレス、オンコジーンの活性化、および治療圧によって誘導される安定的な細胞周期停止プログラムである6。老化は異常な増殖を抑制し得るが、一方で老化細胞は、炎症性サイトカイン、ケモカイン、成長因子、および細胞外マトリックスのリモデリングプログラムを通じて腫瘍微小環境を再構築することもある7,8。骨肉腫において、老化関連遺伝子は腫瘍細胞固有のストレス状態と非悪性微小環境区画の両方を反映している可能性があるが、それらの予後との関連性および空間的組織化については体系的に評価されていない。
PPARGは、脂質代謝、炎症調節、細胞分化、および免疫調節に関与するリガンド活性化核受容体であるペルキシソーム増殖剤活性化受容体ガンマをコードしています9。がんにおけるPPARGの役割は、状況によって異なります10。ある状況では、PPARGは分化および抗炎症状態に関連していますが、別の状況では、適応的な腫瘍またはストローマプログラムをサポートすることがあります。しかし、骨肉腫におけるその発現パターン、予後的価値、および細胞内・空間的な局在については、まだ十分に解明されていません。
本研究では、GSE99671における発現変動遺伝子を同定し、CellAge老化遺伝子セットとの交差分析を行うことで、105個の老化関連発現変動遺伝子を抽出しました。次に、TARGET-OSの生存データ、複数の機械学習および生存モデルアプローチ、ならびに臨床的調整を用いて、PPARGをコア遺伝子として指名しました。さらに、バルク解析による機能および免疫微小環境解析、シングルセル転写体解析、空間転写体解析、GSE36001を用いた外部発現検証、および骨肉腫細胞株143Bとヒト骨芽細胞におけるqRT-PCRおよびウェスタンブロットによる検証を用いて、PPARGの特性評価を行いました。
プロトコル
本研究では、解析および検証に公開データセットおよび細胞株を使用したため、ヒト参加者や臨床組織サンプルは含まれておらず、したがって倫理委員会の承認は不要であった。
GSE99671およびCellAge交差集団における差分的発現解析
GSE99671のリードカウントデータおよびサンプルグループ情報は、GEOから取得した11,12。骨肉腫と対応する正常サンプルの18ペアを解析した。ペア解析としての差分的発現解析は、DESeq2を用い、設計式を ~ pair_id + condition として実施した。ここで、pair_idはペア個体間の影響を、conditionは腫瘍組織と正常組織の比較をそれぞれ表している13。少なくとも3つのサンプルにおいてリードカウントが10以上の遺伝子を抽出した。差分的発現は、補正後P < 0.05と定義し、可視化には、補正後P < 0.05かつ|log2FC| ≥ 1というより厳格な閾値を適用した。遺伝子シンボルを大文字に変換した後、差分的発現遺伝子と866個のCellAge老化遺伝子の交差集団を抽出した14。差分的発現解析は、R(バージョン 4.3.2)およびDESeq2(バージョン 1.40.2)を用いて行い、補正後P値はBenjamini-Hochberg法により算出した。
TARGET-OSコホートおよび予後モデリング
TARGET-OSのトランスクリプトームおよび臨床データをUCSC Xenaから取得した15。105個の細胞老化関連差分的発現遺伝子の発現値を抽出した。生存期間、生存ステータス、および候補遺伝子の発現データがすべて揃っている85人の患者(死亡イベント27件を含む)を対象とした。標準化された遺伝子発現値を、単変量Cox回帰16、カプランマイヤー生存分析、および時間依存性受信者動作特性(ROC)分析17を用いて解析した。選択の安定性と変数の重要性を評価するため、LASSO Cox回帰18、反復LASSO安定性分析、およびランダム生存フォレストモデリングを用いた19。統合ハブスコアおよび臨床統合ランキングは、以下に詳述する明示的なバイナリ基準を用いて算出した。生存分析はRを用い、survival(バージョン3.5-7)、timeROC(バージョン0.4)、glmnet(バージョン4.1-8)、およびrandomForestSRC(バージョン3.2.2)パッケージを使用して実施した。105個の候補遺伝子の単変量Coxスクリーニングでは、Benjamini-Hochberg偽発見率(FDR)補正を適用し、FDR < 0.05の遺伝子を統計的に有意とみなした。
モデルの前処理、PPARGのグループ分け、および時間依存性ROC解析
27例の死亡例を含む85人の患者において、分散がゼロの遺伝子を除外し、欠損している候補遺伝子の発現値は中央値で補完し、各候補遺伝子をzスコアで標準化した。Kaplan-Meier解析では、発現量をコホートの中央値で二分し、中央値を厳格に上回る値を高発現群に、中央値以下の値を低発現群に割り当てた(PPARG:高発現群 n = 42、低発現群 n = 43)。ログランク検定は両側検定とした。時間依存性ROC解析では、timeROCを用い、event cause = 1、周辺逆検閲確率重み付け(marginal inverse-probability-of-censoring weighting)、評価時間を365日、1,095日、1,825日とし、iid = FALSEに設定して解析を行った。マーカー値が大きいほど一貫してリスクが高いことを示すため、正のCox係数を持つ遺伝子には標準化された発現値をそのまま使用し、負の係数を持つ保護的遺伝子には-1を乗じた値を使用した。
LASSOおよび繰り返しLASSO
Cox LASSOは、glmnetを用い、family = "cox"、alpha = 1、事前のzスコア標準化(したがってstandardize = FALSE)、5分割交差検証、type.measure = "deviance"、および乱数シード123で適合させた。主要な係数解にはlambda.minを使用した。安定性解析では、同一の5分割交差検証を300回繰り返した。繰り返しbにはシード1000 + b(b = 1,...,300)を使用した。各遺伝子について、選択頻度をlambda.minにおいて係数が非ゼロであった繰り返しの割合とし、lambda.1seにおける非ゼロ選択についても記録した。
ランダム生存フォレスト
randomForestSRC(バージョン 3.2.2)を用い、seed 123、ntree = 1,000、importance = TRUE、および na.action = "na.impute"として、標準化された105個の候補遺伝子すべてに対して生存フォレストを適合させた。生存データに関してはパッケージのデフォルト設定を維持した。具体的には、ログランク分割、mtry = 11(105個の予測因子の平方根の切り上げ)、最小末端ノードサイズ = 15、nsplit = 10のランダム分割点、サンプリング比分 0.632による非復元抽出、およびアンチスプリット変数重要性を適用した。
統合ハブスコア
CellAgeに関連する105個の差分発現候補遺伝子のそれぞれに対し、以下の6つの二値基準ごとに1点を付与した:(1) 差分発現/CellAgeの交差メンバーシップ(スコアリングの前に補正後 P < 0.05 が要求されていたため、すべての候補にこの点が付与された)、(2) 名目上の単変量Cox P < 0.05、(3) カプラン・マイヤーのログランク P < 0.05、(4) 3年および5年の平均時間依存性AUC ≥ 0.65、(5) lambda.min repeated-LASSOの選択頻度が候補遺伝子全体の中で70パーセンタイル以上かつ > 0、(6) random-survival-forestの重要度が候補遺伝子全体の中で70パーセンタイル以上かつ > 0。すべての基準に均等な単位重みを設定し、0から6までのハブスコアを算出した。スコアが 4 以上の遺伝子(18遺伝子)を臨床的調整へと進めた。単変量CoxのFDR値も報告し、多重検定の有意性を示すためにFDR < 0.05 を用いたが、事前に指定したスコアリング指標には名目上の P < 0.05 を用いた。
臨床統合ランキング
発現データと臨床記録を統合した後、調整解析には共変量記録が完全な40名の患者(うち死亡13名)が含まれた。最終スコアは、初期ハブスコアに、以下の7つの基準ごとに1点を加算して算出した:調整Cox P < 0.05、調整Cox P < 0.10、根治手術除外後の感度Cox P < 0.05、感度Cox P < 0.10、平均3年および5年AUC ≥ 0.65、「臨床+遺伝子モデル」対「臨床のみモデル」の尤度比検定 P < 0.10、およびdelta AIC < 0。0.05と0.10の閾値は入れ子になっていたため、P < 0.05の場合は2点が加算され、これにより明らかに有意な調整Coxおよび感度Coxのエビデンスに大きな重み付けを行った。合計範囲は0から13点とし、同点の場合は調整Cox P 値が小さい方を優先し、次いで平均3/5年AUCが大きい方を優先して解決した。PPARGは初期スコア6点すべてと臨床統合ポイント7点すべてを獲得し(13/13)、第1位となった。C-indexの改善については記述的に報告し、スコアは割り当てなかった。
臨床的調整
候補となるハブ遺伝子を、性別、年齢、診断時の疾患状態、原発腫瘍部位、特定の腫瘍領域、および根治手術を含むTARGET-OSの臨床変数と統合した。発現データおよび臨床記録が完全に揃っている患者40例(うち死亡例13例)を、臨床的調整解析の対象とした。臨床変数のみを含むCoxモデルと、臨床変数に遺伝子発現を加えたモデルを比較した。モデルの改善を評価するために、C-index、赤池情報量基準(AIC)、および尤度比検定のP値を用いた。手術の変数を除外した後に感度分析を行った。
機能エンリッチメントおよび免疫微小環境解析
TARGET-OSサンプルをPPARG発現量に基づいて層別化した。PPARG高発現群とPPARG低発現群の間の差分的発現を用いて、遺伝子セットエンリッチメント解析(GSEA)20のためのランク付けされた遺伝子リストを作成した。表示されたパスウェイは、Nemeth Inflammatory Response LPS Up、Burton Adipogenesis 5、Burton Adipogenesis 6、Krieg KDM3A Targets Not Hypoxia、Reactome: Transcriptional Regulation By TP53、Fulcher Inflammatory Response Lectin Vs LPS Dn、Hollmann Apoptosis Via CD40 Dn、Zhou Inflammatory Response Live Dn、WP: Fatty Acids And Lipoproteins Transport In Hepatocytes、Sweet Lung Cancer KRAS Up、KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway、およびReactome: Fatty Acidsである。バルクのCellAge細胞老化スコアを算出し、Spearman相関解析を用いてPPARGと老化遺伝子または免疫微小環境シグネチャーとの関連性を評価した21。PPARG高発現群とPPARG低発現群の間の微小環境スコアの差は、多重検定補正を用いた非パラメトリック検定により評価した。
単一細胞トランスクリプトーム解析
公開されているヒト骨肉腫の単一細胞トランスクリプトームデータセットを用い、品質管理、次元削減、クラスタリング、および手動アノテーションが完了済みの前処理済みオブジェクトを使用して解析を行った22,23,24。合計68,336個の細胞と32,297個の遺伝子が解析対象に含まれた。本文中の解釈にあたり、アノテーションをB細胞、CAF、増殖期細胞、内皮細胞、赤芽球系細胞、マクロファージ/単球、悪性骨肉腫細胞、筋原性細胞、好中球、破骨細胞様細胞、ペリサイト、T/NK細胞、および腫瘍関連ストローマ細胞の13の主要な細胞型に簡略化した。PPARGの局在を可視化するために、次元削減プロット、フィーチャー発現プロット、ドットプロット、およびバイオリンプロットを用いた。PPARG陽性細胞は、発現量が0より大きい細胞と定義した。細胞型間の差異は、Benjamini-Hochberg補正を用いたKruskal-Wallis検定およびWilcoxon順位和検定により評価した。単一細胞解析は、RのSeurat(バージョン 5.0.1)を用いて実施した。
空間的トランスクリプトーム解析
SP_BS3空間的トランスクリプトームサンプルを用いて、空間発現オブジェクトを構築した25,26。品質管理のしきい値をnFeature_Spatial ≥ 200およびpercent.mt ≤ 30とし、解析対象として4,572スポットを残した。データの正規化を行い、3,000個の高変動遺伝子を選択し、データのスケーリング、主成分分析、近傍グラフの構築、空間的なスポットのクラスタリング、および次元圧縮を実施した。循環相関を避けるため、遺伝子セットからPPARGを除去した後、空間的なCellAge細胞老化スコアを算出した。内皮細胞、ペリサイト、マクロファージ/単球、腫瘍関連ストローマ、悪性骨肉腫、および破骨細胞様シグネチャーを構築し、スコアリングを行った。PPARGの発現と空間スコアとの関連性を評価するために、スピアマン相関分析を用いた。シングルセルデータセットをリファレンス、空間データセットをクエリとしてラベル転送を行い、各スポットの予測細胞型スコアを推定した23,24。空間的トランスクリプトーム解析は、RのSeurat(バージョン 5.0.1)を用いて行い、すべての空間相関P値にBenjamini-Hochberg法によるFDR補正を適用した。
GSE36001における外部発現検証
GEOデータセットGSE36001は、独立した発現検証コホートとしてのみ使用されました。生存転帰のデータが得られなかったため、予後検証には使用していません11,27。このデータセットには、19例の骨肉腫サンプルと6例の正常対照サンプルが含まれていました。プローブ識別子を遺伝子シンボルに変換するために、GPL6102プラットフォームのアノテーションを使用しました。複数のプローブが同一の遺伝子にマッピングされた場合は、平均発現量が最も高いプローブを採用しました。腫瘍群と正常群の間の差異発現は、limmaを用いて評価しました28。解析はR(limma バージョン 3.56.2)を用いて行い、補正P値はBenjamini-Hochberg法を用いて算出しました。
qRT-PCRおよびウェスタンブロットによる検証
実験的検証は、ヒト骨肉腫細胞株143Bおよびヒト骨芽細胞を用いて行われた。骨肉腫細胞は、10%胎牛血清および1%ペニシリン-ストレプトマイシンを添加したDulbecco's modified Eagle's mediumを用い、5% CO₂を含む加湿雰囲気下、37 °Cで培養し、コンフルエンスが80%–90%に達した時点で0.25% trypsin-EDTAを用いて継代した。ヒト骨芽細胞は、推奨される培養条件下で維持した。すべての細胞株においてマイコプラズマ汚染がないことを確認した。qRT-PCRでは、フェノール-グアニジニウムベースのRNA抽出試薬を用いて全RNAを抽出し、分光光度計を用いてRNA濃度と純度を評価した。1 µgの全RNAを、推奨プロトコルに従い逆転写試薬を用いて逆転写した。qRT-PCRは、蛍光DNA結合色素ベースの化学反応を用い、以下のサイクル条件で実施した:初期変性 95 °Cで30 s、続いて 95 °Cで5 sおよび 60 °Cで30 sを40サイクル行い、融解曲線分析により増幅の特異性を確認した。各反応はテクニカルトリプリケートで行い、3回の独立した生物学的実験を実施した。内部標準としてGAPDHを用い、相対的なPPARG発現量を2-ΔΔCt法29を用いて算出した。PPARGのフォワードプライマーは 5'-CGAAGACATTCCATTCACAAGAACAG-3'、リバースプライマーは 5'-AGATGCAGGCTCCACTTTGATTG-3' を使用した。
PPARGタンパク質の発現を調べるため、ウェスタンブロッティングを行った。プロテアーゼ阻害剤を添加した放射免疫沈降アッセイ(RIPA)バッファーを用いて細胞を溶解し、ビシンコニン酸(BCA)アッセイを用いてタンパク質濃度を測定した。等量(30 µg (1レーンあたり)を10% SDS-PAGE(ドデシル硫酸ナトリウム-ポリアクリルアミドゲル電気泳動)で分離し、PVDF(ポリビニリデンフルオリド)膜に転写した。5%脱脂粉乳を用いて室温で1時間ブロッキングした後、膜を以下の条件で一晩インキュベートした。 4 °C PPARG(1:1,000)およびGAPDH(1:5,000)に対する一次抗体を用いて反応させた後、西洋ワサビペルオキシダーゼ結合二次抗体(1:5,000)で室温にて1時間インキュベートした。タンパク質バンドは化学発光検出により可視化し、3回の独立した実験を行った。バンド強度は画像解析ソフトを用いて定量した。30群間差は、両側t検定(Student's unpaired t-test)を用いて分析した。 t 検定を行った。データは平均値として示した。 ± 3回の独立した実験からの標準偏差(SD)、および P < 0.05を統計的有意差ありと見なした。実験データの統計解析は、統計解析ソフトウェア(バージョン9.0)を用いて行った。
統計解析
特に指定のない限り、すべてのバイオインフォマティクス解析はR(バージョン4.3.2)を用いて実施した。両側 P 値 < 0.05未満を統計的に有意と見なした。相関は、スピアマンの順位相関係数を用いて評価した(ρ)。適用可能な場合は、Benjamini-Hochberg FDR法を用いて多重検定補正を行った。実験データは平均値として提示した。 ± SDを用い、2標本t検定(両側検定)により比較した。 t 検定を行った。実験的な統計解析には、統計解析ソフトウェア(バージョン9.0)を使用した。
結果
GSE99671により105個のCellAge細胞老化関連差分発現遺伝子が同定された
GSE99671には、18組のペア組織から得られた36個のサンプルが含まれていた。低カウントフィルタリング後、16,683個の遺伝子が保持された。補正P < 0.05において、2,248個の遺伝子が差分発現していた。より厳格な閾値である補正P < 0.05および|log2FC| ≥ 1の下では、594個の遺伝子が有意であり、そのうち腫瘍において102個の遺伝子が発現上昇し、492個の遺伝子が発現低下していた(Figure 1A,B)。2,248個の差分発現遺伝子と866個のCellAge遺伝子の積集合をとった結果、105個の老化関連差分発現遺伝子が得られた(Figure 1C)。GSE99671においてPPARGは発現低下しており、log2FC = -0.644、P = 0.00451、補正P値 = 0.0309であった。18組中13組のペアにおいて、PPARGの発現は腫瘍組織よりも正常組織で高く、ペア検定のWilcoxon P = 0.0294であった(Figure 1D)。
マルチモデル予後スクリーニングにより、PPARGが中核となる候補遺伝子として選出された
TARGET-OSにおいて、27件の死亡イベントを含む85人の患者が解析対象となった。単変量Cox回帰、カプラン=マイヤー分析、生存ROC分析、LASSO、反復LASSO、およびランダムサバイバルフォレストモデリングを用いて、105個の老化関連差分発現遺伝子の統合的スクリーニングを行った結果、臨床的調整前に18個の候補ハブ遺伝子が同定された(図 2A)。単変量Cox分析において、PPARGは全生存期間と関連しており(HR = 0.603, 95% CI = 0.454–0.802, P = 0.000494, FDR = 0.0447)、PPARGの発現量が高いほど死亡リスクが低いことが示された。高発現群と低発現群を比較したカプラン=マイヤー分析では、P = 0.00784であった(図 2B)。1年、3年、および5年時点の時間依存性AUCは、それぞれ0.603、0.760、0.776であった(図 2C)。PPARGは、反復LASSO選択頻度が0.920、ランダムサバイバルフォレストの重要度が0.0398であった(図 2D–F)。PPARGは、あらかじめ設定した6つのスクリーニング基準をすべて満たしたため、初期ハブスコアは6/6となった。
臨床的調整によりPPARGの予後との関連性が支持された
臨床共変量を組み込んだ後も、PPARGは全生存期間と有意に相関していた(調整後HR = 0.224, 95% CI = 0.085–0.589, P = 0.00241; Figure 2G)。臨床因子のみのモデルでは、C-indexは0.707、AICは89.921であった(Supplementary Table 1)。PPARGを追加したところ、C-indexは0.829に上昇し、AICは78.466に低下し、尤度比検定においてモデルの適合度が有意に改善した(P = 0.000244; Supplementary Table 2, Figure 2H,I)。根治手術を除外した感度分析においても、PPARGの保護的な関連性は維持された(HR = 0.249, P = 0.00185; Supplementary Table 3, Figure 2J)。PPARGは最高の臨床統合スコア13(初期ハブスコア6に臨床統合ポイント7を加算)に達し、最終的な3年および5年のAUCはそれぞれ0.770および0.813であった(Figure 2K)。
PPARGに関連する機能的および免疫的微小環境の特徴
PPARG高発現群とPPARG低発現群を比較したGSEAでは、Nemeth Inflammatory Response LPS Up、Burton Adipogenesis 5、Burton Adipogenesis 6、Krieg KDM3A Targets Not Hypoxia、Reactome: Transcriptional Regulation By TP53、Fulcher Inflammatory Response Lectin Vs LPS Dn、Hollmann Apoptosis Via CD40 Dn、Zhou Inflammatory Response Live Dn、WP: Fatty Acids And Lipoproteins Transport In Hepatocytes、Sweet Lung Cancer KRAS Up、KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway、およびReactome: Fatty Acidsが示されました(図 3A)。バルクTARGET-OSデータにおいて、PPARGは全体のCellAge老化スコアとは有意な相関を示しませんでしたが(Spearman ρ = 0.022, P = 0.837; 図 3B)、いくつかの個別のCellAge遺伝子とは相関していました(図 3C)。免疫微小環境解析により、PPARGとマクロファージ(ρ = 0.485, FDR = 2.7 × 10⁻⁵)、CD8 T細胞(ρ = 0.410, FDR = 5.88 × 10⁻⁴)、破骨細胞様シグネチャー(ρ = 0.383, FDR = 0.00120)、好中球(ρ = 0.376, FDR = 0.00120)、および樹状細胞(ρ = 0.370, FDR = 0.00123)との間に正の相関があることが示されました。FDR補正後、PPARG高発現腫瘍では、破骨細胞様、マクロファージ、CD8 T細胞、樹状細胞、単球、好中球、NK細胞、および内皮細胞のシグネチャーがより高い値を示しました(補足表 4, 図 3D, E)。
単一細胞トランスクリプトーム解析により、PPARGが血管および微小環境コンパートメントに局在することが明らかになった
単一細胞データセットには68,336個の細胞と32,297個の遺伝子が含まれていた。PPARGの発現は細胞型間で有意に異なっていた(図 4A)。平均発現が最も高かったのは、血管内皮細胞(平均発現 = 0.540、陽性率 = 44.33%)、ペリサイト(平均発現 = 0.439、陽性率 = 41.61%)、マクロファージ/単球(平均発現 = 0.363、陽性率 = 31.62%)、および腫瘍関連ストローマ細胞(平均発現 = 0.361、陽性率 = 44.10%;図 4B–E)であった。悪性骨肉腫細胞の一部でもPPARGが発現していたが(平均発現 = 0.163、陽性率 = 16.70%)、悪性骨肉腫細胞における発現は他の細胞よりも有意に高くはなかった(FDR = 0.151)。これらの結果は、骨肉腫におけるPPARGの発現が、悪性細胞に限定されているのではなく、主に血管、骨髄系、およびストローマの微小環境状態を反映していることを示唆していた(図 4F)。
空間トランスクリプトーム解析により、PPARGが老化関連の空間的状態および血管ニッチに関連していることが示された
品質管理後、4,572個のSP_BS3空間スポットが保持され、7つの空間クラスターに分類された(Figure 5A)。Figure 5Bは、nFeature_Spatial(スポットあたりの検出遺伝子数)の空間分布を示している。別途、866個のCellAge遺伝子のうち、845個が空間発現マトリックスに一致していた(97.58%)。PPARGは局所的な空間発現を示した(Figure 5C)。PPARGを除外して算出したCellAge空間老化スコアは、PPARGの発現と弱いが統計的に有意な正の相関を示した(ρ = 0.0692, P = 3.0 × 10⁻⁶, FDR = 1.9 × 10⁻⁵; Figure 5D)。空間ニッチスコアリングでは、PPARGは内皮細胞スコア(ρ = 0.0433, FDR = 0.00592)およびペリサイトスコア(ρ = 0.0367, FDR = 0.0181)と正の相関を示した一方、悪性骨肉腫スコア(ρ = -0.0592, FDR = 0.000219)および腫瘍間質スコア(ρ = -0.0531, FDR = 0.000774)とは負の相関を示した(Supplementary Table 5, Figure 5E)。ラベル転送解析においても同様に、内皮細胞予測スコア(ρ = 0.0507, FDR = 0.00120)およびペリサイト予測スコア(ρ = 0.0394, FDR = 0.0123)と正の相関を示し、悪性骨肉腫細胞予測スコアとは負の相関を示した(ρ = -0.0699, FDR = 1.1 × 10⁻⁵; Figure 5F–H)。
外部データセットによる発現解析と実験的検証によりPPARGのダウンレギュレーションが支持された
GSE36001には、19件の骨肉腫サンプルと6件の正常対照群が含まれていた。骨肉腫においてPPARGは有意にダウンレギュレートされていた(logFC = -1.429, P = 0.00730, 補正P値 = 0.0435; Figure 6A)。細胞ベースの検証では、qRT-PCRにより、骨肉腫143B細胞におけるPPARG mRNA発現はヒト骨芽細胞よりも有意に低かった(P < 0.001; Figure 6B)。また、ウェスタンブロッティングにより、143B細胞におけるPPARGタンパク質発現も有意に低下していた(P < 0.01; Figure 6C,D)。これらの外部コホート、mRNA、およびタンパク質レベルでの知見は、骨肉腫におけるPPARG発現の低下を一貫して支持していた。GSE36001には生存期間の結果が含まれていなかったため、外部的な発現の検証のみであり、独立した予後検証には至らなかった。
データ可用性:
本研究で使用したすべてのデータセットは公開されています。GSE99671およびGSE36001は、Gene Expression Omnibusデータベース(https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE99671; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE36001)から取得しました。TARGET-OSのトランスクリプトームおよび臨床データは、UCSC Xena(https://xena.ucsc.edu/)からダウンロードしました。細胞老化関連遺伝子は、Human Ageing Genomic Resourcesの一部であるCellAge: The Database of Cell Senescence Genes(https://genomics.senescence.info/cells/)から取得しました。ヒト骨肉腫のシングルセルおよび空間トランスクリプトームデータセットは、公開済みのアトラスおよび関連するGitHubリポジトリ(https://github.com/zhengxj1/A-Single-Cell-and-Spatially-Resolved-Atlas-of-Human-Osteosarcomas)から取得しました。濃縮解析用の遺伝子セットは、MSigDB(https://www.gsea-msigdb.org/gsea/msigdb/)から取得しました。本研究で生成された処理済みデータおよび報告された結果を再現するために使用した解析スクリプトは、補完ファイル 1としてまとめ、提出しました。
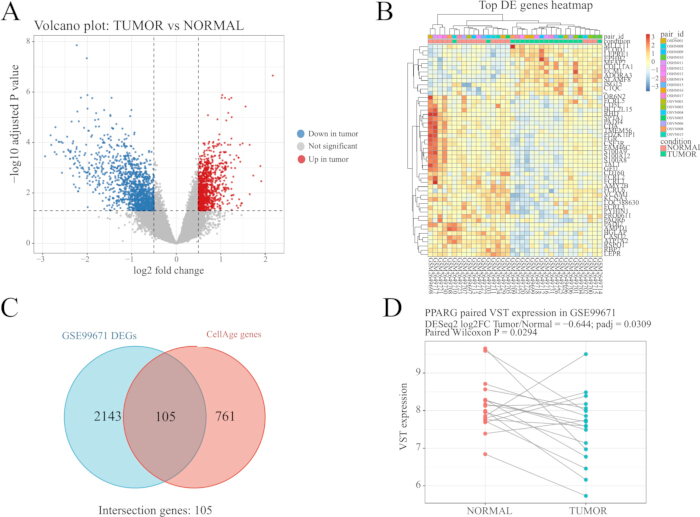
図1骨肉腫における発現変動遺伝子およびCellAge由来の老化関連候補遺伝子の同定。 (A) GSE99671データセットにおける、骨肉腫組織と対照となる非腫瘍組織間の変動発現遺伝子を示すボルケーノプロット。事前に定義したカットオフ基準に基づき、有意に発現上昇および低下した遺伝子がハイライトされている。(B) GSE99671における、骨肉腫サンプルおよび対照ペアサンプル間での代表的な変動遺伝子の発現パターンを示すヒートマップ。 (C) GSE99671の発現変動遺伝子とCellAgeの老化関連遺伝子の交差を示すベン図。 (DGSE99671における、骨肉腫組織と対照となる非腫瘍組織におけるPPARGのペア解析による発現比較。 この図の拡大版を表示するには、ここをクリックしてください。
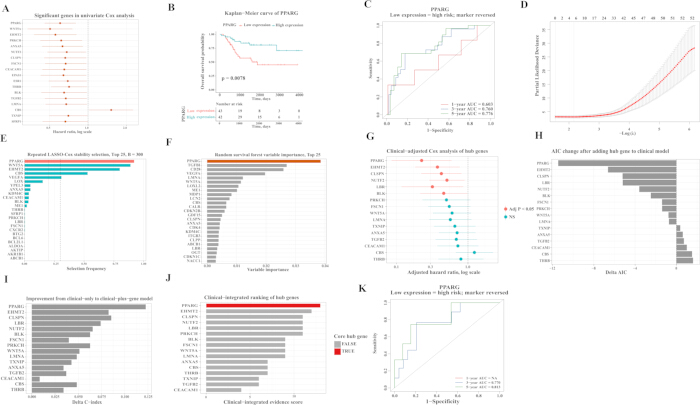
図 2: 機械学習および臨床調整済み生存分析により、骨肉腫における老化関連の中核的な予後ハブ遺伝子として PPARG が同定された。 (A) TARGET-OSコホートにおける老化関連候補遺伝子の単変量Cox回帰分析の結果を示すフォレストプロット。(B) PPARG高発現群と低発現群の患者における全生存期間を比較したカプランマイヤー生存曲線。(C) 全生存期間に対する PPARG の予測能を評価した時間依存性ROC曲線。(D) 予後候補遺伝子を選定するためのLASSO Cox回帰のクロスバリデーション曲線。(E) 300回の5分割反復における lambda.min の選択頻度を示す反復LASSO安定性分析。(F) 1,000本の決定木から得られた変数重要度スコアを示すランダム生存フォレスト分析。(G) 候補ハブ遺伝子の臨床調整済みCox回帰分析の結果を示すフォレストプロット。(H) 臨床モデルに個々のハブ遺伝子を追加した後のAICの変化。(I) 臨床モデルに個々のハブ遺伝子を追加した後のC-indexの改善。(J) 候補ハブ遺伝子の最終的な臨床統合スコア(範囲 0–13)によるランキング。(K) 40名の患者からなる臨床分析サブセットにおける PPARG の時間依存性ROC曲線。3年および5年のAUCを示す。なお、1年のAUCは推定不能であった。こちらのリンクをクリックして、この図の拡大版を表示してください。
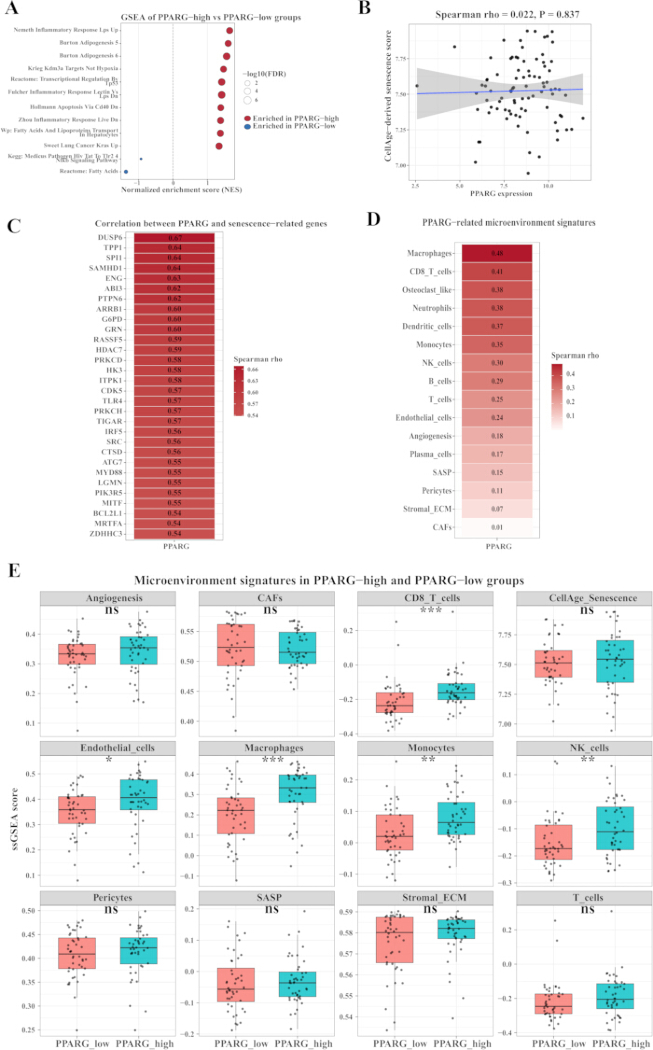
図 3: PPARGに関連する機能エンリッチメントおよび免疫微小環境解析。 (A) PPARG高発現群とPPARG低発現群を比較したGSEAバブルプロット。Nemeth Inflammatory Response LPS Up、Burton Adipogenesis 5、Burton Adipogenesis 6、Krieg KDM3A Targets Not Hypoxia、Reactome: Transcriptional Regulation By TP53、Fulcher Inflammatory Response Lectin Vs LPS Dn、Hollmann Apoptosis Via CD40 Dn、Zhou Inflammatory Response Live Dn、WP: Fatty Acids And Lipoproteins Transport In Hepatocytes、Sweet Lung Cancer KRAS Up、KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway、およびReactome: Fatty Acidsを表示している。 (B) バルクTARGET-OSデータにおけるPPARGとCellAge細胞老化スコア全体の相関。 (C) PPARGと個々のCellAge遺伝子との相関。 (D) PPARGと免疫微小環境シグネチャーとの相関。 (E) PPARG高発現群とPPARG低発現群における微小環境スコアの差。相関はSpearmanの順位相関係数(ρ)を用いて評価し、補正後P値はBenjamini-Hochberg法を用いて算出した。略語:GSEA = 遺伝子セット濃縮解析、NF-κB = 核内因子カッパB、JAK-STAT = Janusキナーゼ-信号伝達・転写活性化因子、IL-12 = インターロイキン-12、FDR = 偽発見率。 この図の拡大版を表示するには、ここをクリックしてください。
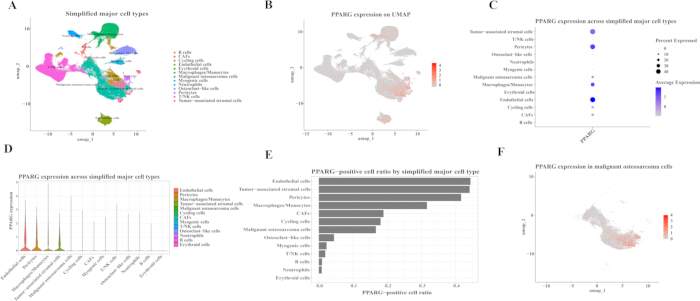
図4骨肉腫のシングルセル転写・転写産物データにおける細胞コンパートメント間のPPARG局在。 (A簡略化した手動アノテーション後の、ヒト骨肉種シングルセル転写解析データセットにおける主要細胞型のUMAP可視化。B) 単一細胞におけるPPARG発現の全般的分布を示すFeaturePlot。(C) 主要な細胞型における PPARG 発現を示すドットプロット。 (D) 異なる細胞型におけるPPARGの発現レベルを示すバイオリンプロット。 (E) 各主要細胞タイプにおける PPARG 陽性細胞の割合を示す棒グラフ。(F悪性骨肉腫細胞におけるPPARG発現を示すUMAP可視化図。略語:UMAP = 一様多様体近似および投影。 この図の拡大版を表示するには、ここをクリックしてください。
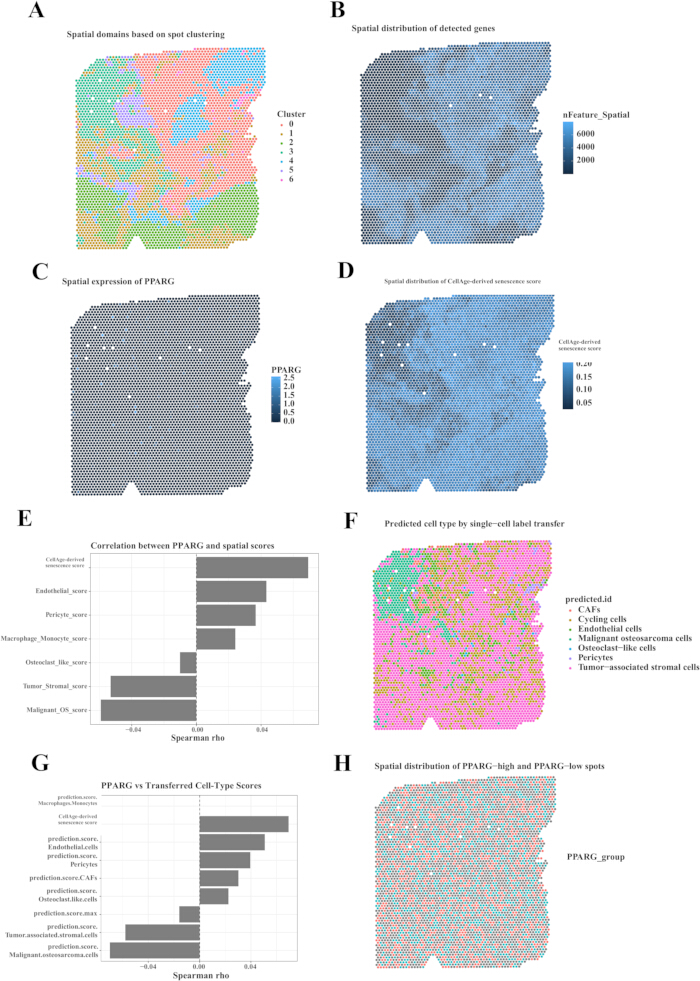
図 5: 骨肉腫における PPARG の空間的トランスクリプトーム局在および老化に関連する空間的特徴。 (A) SP_BS3 骨肉腫空間的トランスクリプトーム切片における、トランスクリプトーム定義クラスターの空間分布。 (B) 1スポットあたりの検出遺伝子数の空間分布(nFeature_Spatial で表示)。 (C) SP_BS3 スポットにおける PPARG の空間的発現パターン。 (D) CellAge 派生老化スコアの空間分布。 (E) PPARG 発現と、空間的 CellAge 派生老化スコアまたは細胞生態学的ニッチスコアとの相関分析。 (F) 各空間スポットにおける支配的な単一細胞派生細胞型を示すラベル転送予測マップ。 (G) PPARG 発現、CellAge 派生老化スコア、およびラベル転送派生細胞型予測スコアの相関分析。 (H) PPARG 高発現スポットおよび PPARG 低発現スポットの空間分布。 こちらのリンクをクリックして、この図の拡大版を表示してください。
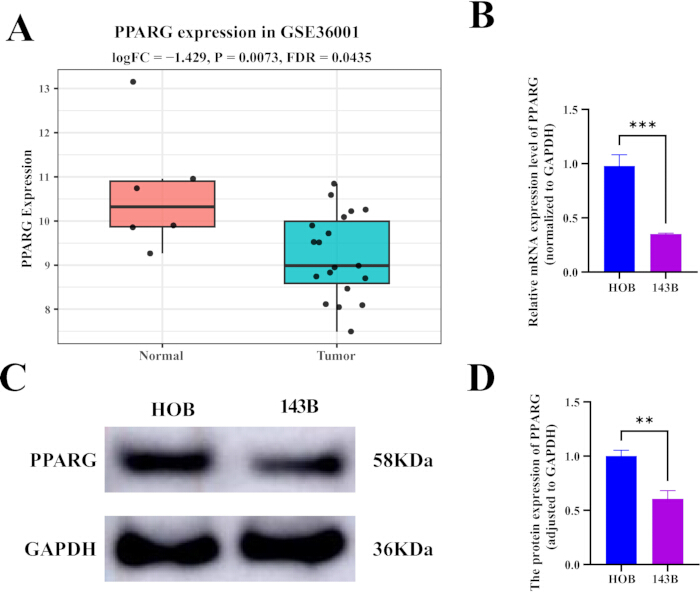
図6: 骨肉腫におけるPPARGダウンレギュレーションの外因性発現および実験的検証 (A) GSE36001データセットにおける、骨肉腫サンプル(n = 19)および正常対照サンプル(n = 6)のPPARG発現レベルを示すボックスプロット。 (B) ヒト骨肉腫143B細胞およびヒト骨芽細胞コントロール細胞におけるPPARG mRNA発現のqRT-PCR解析(C) ヒト骨芽細胞コントロール細胞および骨肉腫143B細胞におけるPPARGおよびGAPDHのタンパク質発現を示す代表的なウェスタンブロット。GAPDHをローディングコントロールとして使用した。 (DGAPDHで標準化したPPARGタンパク質の相対量を示すウェスタンブロットバンドのデンシトメトリー定量。 (B)および(D)、データは平均値として示されています ± 3回の独立した実験における標準偏差(SD)。 P < 0.01および P < 両側非対応Studentのt検定で決定された、ヒト骨芽細胞コントロール群に対する0.001 t-試験。略語:qRT-PCR = 定量的逆転写ポリメラーゼ連鎖反応、GAPDH = グリセルアルデヒド-3-リン酸デヒドロゲナーゼ、SD = 標準偏差。 この図の拡大版を表示するには、ここをクリックしてください。
補足表1:TARGET-OSコホートにおける臨床指標のみを用いたCoxモデルの性能。性別、年齢、診断時の疾患状態、原発腫瘍部位、特定の腫瘍領域、および根治手術の有無などの臨床変数のみを用いて構築したCoxモデルのC-index、AIC、およびモデルサマリー。略称:AIC = 赤池情報量基準。 こちらのリンクからファイルをダウンロードしてください。
補足表2:臨床指標のみのCoxモデルと、臨床指標に遺伝子を加えたCoxモデルの比較。臨床モデルに個々の候補ハブ遺伝子を追加した後のモデル比較結果。C-index、AIC、尤度比検定統計量、およびモデル改善指標を含む。略語:AIC = 赤池情報量基準。 こちらをクリックしてファイルをダウンロードしてください。
補完表3:根治手術変数を除外した後の感度分析。根治手術変数を調整臨床モデルから除外した後でも、候補ハブ遺伝子(特にPPARG)の予後との関連性が安定しているかどうかを評価した感度Cox回帰分析の結果。 こちらのリンクをクリックしてファイルをダウンロードしてください。
補足表4:TARGET-OSにおけるPPARG関連の免疫およびストローマクロ環境シグネチャー。 PPARG発現量と、免疫、ストロマ、血管、炎症、およびSASP関連のssGSEAシグネチャーとの相関および群間比較の結果。Spearman相関係数、P値、補正済みP値、およびPPARG高発現群対PPARG低発現群の比較を含む。略語:SASP = 衰老関連分泌表現型、ssGSEA = シングルサンプル遺伝子セット濃縮解析。 こちらのリンクからファイルをダウンロードしてください。
補足表5:SP_BS3におけるPPARGの空間トランスクリプトーム相関分析。SP_BS3骨肉腫空間トランスクリプトーム切片における、PPARGの発現と、空間CellAge由来の老化スコア、細胞生態学的ニッチスコア、およびラベル転移由来の細胞型予測スコアとの相関結果。 こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
本研究では、差分的発現解析、CellAge遺伝子の共通項抽出、TARGET-OS生存モデル構築、臨床的調整、マルチオミクス局在化、および実験的検証を統合することにより、骨肉腫における老化関連予後遺伝子の候補としてPPARGを指名しました。この解析フレームワークは、分子情報に基づいた骨肉腫研究および、老化関連の生物学を解釈するために精選された老化遺伝子リソースに重点を置く現在の傾向と一致しています14,31。PPARGは正常組織と比較して骨肉腫で発現が低下しており、TARGET-OSにおいてPPARGの発現低下は全生存期間の悪化と関連していました。これらの知見は、PPARGが骨肉腫において転写レベルで変化しているだけでなく、臨床的に関連のある予後情報を持っている可能性を示唆しています。しかし、候補の選定とモデルの評価が同一のTARGET-OSコホート(患者85名、死亡イベント27件)で実施されたため、観察されたモデル性能の向上は楽観的バイアスや過学習の影響を受けやすいと考えられます。したがって、PPARGの予後価値は、独立した骨肉腫生存コホートで検証されるまで、仮説生成段階のものとして扱うべきです。それにもかかわらず、実験的な骨肉腫研究において、PPAR-γ/核内受容体調節による抗腫瘍効果と、疾患の進行を促進する可能性のあるPPARG関連の破骨細胞プログラムの両方が報告されているため、PPARGの生物学的機能はコンテキスト依存的に解釈されるべきです32,33,34。
重要なニュアンスとして、PPARGをCellAgeスコア全体の単純な代用指標として解釈すべきではないことが挙げられます。バルクTARGET-OSデータでは、PPARGは全般的なCellAge老化スコアと有意な相関を示しませんでしたが、空間トランスクリプトーム解析では、PPARGを除外して算出したCellAgeスコアと、PPARGとの間に弱いが有意な相関が認められました。この相違は、バルクデータにおける細胞組成の影響や、老化遺伝子セットの多機能性、および空間スポットにおける微小環境ニッチの局所的な濃縮を反映している可能性があります。コンセンサスおよびトランスクリプトーム研究では、細胞老化が不均一で動的であり、細胞型、ストレス要因、および組織学的コンテキストに依存すること、またSASPプログラムががんの進行過程で相反する影響を及ぼし得ることが強調されています25,35,36,37。したがって、PPARGは老化の実証されたドライバーではなく、CellAge由来の老化関連予後遺伝子として保守的に定義されました。それに伴い、PPARGの老化関連という指定は、老化へのメカニズム的な関与が実証されたことではなく、CellAge遺伝子セットのメンバーであることに基づくものであり、PPARGを全体の老化活性の定量的代用指標として使用すべきではありません。
より一般的に、これらの空間的解析結果は、統計学的有意性と生物学的関連性の違いを浮き彫りにしました。4,572箇所の空間スポットがある場合、非常に弱い相関であっても、従来の有意性閾値を上回る可能性があります。例えば、PPARGと空間的なCellAge老化スコアとの相関(ρ = 0.0692)は、分散の約0.48%しか説明していませんでしたが、スポット数が多いために十分な統計学的検出力が得られ、P値は3.0 × 10⁻⁶に達しました。したがって、このようなスポットレベルの関連性は、統計的に検出可能ではあるものの、生物学的な影響は限定的であり、仮説を生成するためのシグナルであると見なすべきです。また、生物学的な解釈を行う際は、P値のみではなく、エフェクトサイズを指標とするべきです。大規模なスポットレベルのデータセットにおける統計学的有意性は、必ずしも強力な生物学的効果と同義ではないことに留意する必要があります。
単一細胞および空間解析により、PPARGの生物学的なコンテキストが明らかになりました。PPARGは、血管内皮細胞、ペリサイト、マクロファージ/単球、および腫瘍関連間質細胞に濃縮されており、空間的に血管内皮およびペリサイトのスコアと関連していました。これらの結果は、PPARGが持つ予後情報が、骨肉腫における血管および微小環境コンパートメントに関連している可能性を示唆しています。この解釈は、最近の骨肉腫の単一細胞/空間アトラス、および免疫、血管、間質ニッチが腫瘍の不均一性、治療反応、および進行を形成するというより広範な証拠と一致していました25,38,39。悪性骨肉腫細胞では、一部の細胞サブセットにおいてのみPPARGが発現しており、他の細胞よりも有意に高い発現を示さなかったため、腫瘍細胞のみに基づいた解釈では不十分であったと考えられます。逆に、GSE99671およびGSE36001で観察されたバルクレベルでのPPARGのダウンレギュレーションは、悪性骨肉腫細胞における真のダウンレギュレーションではなく、腫瘍組織と正常組織の間での間質、血管、骨髄、脂肪分化、または免疫細胞の組成の違いを部分的に反映していた可能性があります。バルク解析において腫瘍純度および細胞型の存在量が明示的に調整されていなかったため、この可能性を排除することはできず、標的を絞った調査が必要となりました。
機能的および免疫的な微小環境解析の結果は、この解釈と一致していた。PPARGはマクロファージ、CD8 T細胞、樹状細胞、好中球、NK細胞、および内皮細胞のシグネチャーと相関しており、GSEAでは炎症、NF-κB、JAK-STAT/IL-12シグナリング、TP53制御、およびDNA損傷チェックポイントに関連するパスウェイが強調された。以上の結果を総合すると、PPARGは、細胞老化に関連するストレス、免疫浸潤、および血管・間質コンパートメントを含む複合的な微小環境状態の指標となっている可能性が示唆された。PPARG(PPAR-γ)は、AP-1、STAT、およびNF-κBに関連する転写プログラムへの影響を含む、マクロファージ/単球の炎症性活性化を抑制する確立された役割を持っており、また骨肉腫の免疫微小環境には、腫瘍促進的および腫瘍抑制的な機能の両方を持つ骨髄系、リンパ系、および血管系要素が含まれているため、この解釈は生物学的に妥当である38,40,41。これらのシングルセル解析および空間的な観察結果は記述的なものであり、仮説を生成するものであった。したがって、これらのみで血管ニッチのメカニズム、老化プログラム、または予後パスウェイを確定させるものではない。
いくつかの限界を認めるべきである。第一に、主要な予後解析は、サンプルサイズとイベント数が限られているレトロスペクティブなTARGET-OS公開コホートに基づいている。したがって、認められている腫瘍マーカーの報告および検証原則に従い、独立したコホートにおいてPPARGの予後価値を検証する必要がある42。具体的には、候補スクリーニングは27例の死亡を含むTARGET-OS患者85例で実施されたが、臨床調整モデルの評価では、13例の死亡を含む重複した40例のサブセットが使用された。両解析が同一のソースコホートから派生しているため、報告されたC-indexの改善(0.707から0.829)およびAICの減少は、楽観的な数値である可能性が高い。PPARGの予後価値を外部的に検証するための独立した生存コホートは利用できず、GSE36001は腫瘍対正常組織の発現検証にのみ使用された。さらに、統合ハブスコアは、検証済みの予後診断ツールではなく、探索的な内部ランキングヒューリスティックであった。第二に、空間的トランスクリプトーム解析は単一のSP_BS3サンプルに基づいている。相関は統計的に有意であったが、効果量は小さく、追加の空間的サンプルでの検証が必要である。特に、独立した患者からの空間的トランスクリプトームサンプルの数を増やすことは、これらの弱い関連性のより堅牢な推定値を得るために不可欠であり、より大規模な空間的コホートに基づいた研究が求められる。空間的トランスクリプトームは貴重なin situ分子コンテキストを提供するが、その解釈はプラットフォームの解像度、サンプリング戦略、組織の質、および計算上の統合手法の影響を受ける43。さらに、空間的解析は、簡略化されたアノテーションを持つ前処理済みの公開シングルセルオブジェクトと、計算によるスコアリングおよびラベル転送に依拠していた。効果量が最小限であることを踏まえると、これらのデータは血管ニッチや老化プログラムに関するメカニズム的な主張ではなく、記述的な局在化の記述を支持するものである。第三に、実験的検証は骨肉腫細胞株143Bおよびヒト骨芽細胞に基づいている。追加の骨肉腫細胞株および臨床検体が必要であり、単一の細胞株での検証では、細胞型の特異性、臨床的な予後への関連性、または老化生物学を確立することはできない。第四に、本研究は因果関係ではなく関連性を示したものである。PPARGが老化関連プログラム、血管ニッチ、または腫瘍進展を直接制御しているかどうかを判断するには、骨肉腫細胞および微小環境モデルにおけるPPARGの機能的摂動が必要となる。第五に、老化との関連性はCellAge遺伝子セットとの重複によって定義されており、TARGET-OSにおいてPPARGはバルクのCellAge老化スコアと相関していなかった。さらに、バルクの腫瘍対正常組織の比較は、腫瘍の純度や細胞型の組成について調整されていなかったため、観察されたダウンレギュレーションは、悪性細胞固有の変化ではなく、微小環境の組成の違いを一部反映している可能性がある。
PPARGはCellAge由来の遺伝子であり、TARGET-OSコホートにおいて、その低発現は不良な全生存期間と関連しています。バルクの骨肉腫比較におけるPPARGのダウンレギュレーションは、血管、骨髄、および間質コンパートメントでの濃縮と共に、バルクのPPARGレベルが、悪性細胞固有の発現よりもむしろ微小環境の細胞組成を部分的に反映している可能性を示唆しています。シングルセルおよび空間的な知見は記述的なものであり、予後との関連は生存期間について独立して検証されておらず、生存転帰を含む外部コホートでの検証が必要です。これらの知見は、外部検証および機能研究を待つ必要がありますが、PPARGを骨肉腫における予後評価の候補バイオマーカー、および老化関連微小環境の研究対象として提示するものです。空間トランスクリプトーム解析において、PPARGと老化関連または血管ニッチスコアとの相関は、空間スポット数が多いために統計的に有意ではありましたが、効果量は小さく、したがって解釈には注意が必要です。
開示事項
著者は、競合する利益がないことを宣言します。
著者貢献:
Yongwen LiとWentao Qinが研究を構想し、設計した。Yongwen Liがバイオインフォマティクス解析および計算解析を行った。Tuo Liangが実験的検証を行った。Rubiao QiuとZide Zhangが図の作成に寄与した。Rubiao QiuとZide Zhangが研究を監督し、原稿を批判的に校閲した。全著者が最終原稿を確認し、承認した。
謝辞
著者らは、本研究を可能にした公開データセットおよびリソースを提供してくださったGEO、TARGET-OS、UCSC Xena、CellAge、MSigDB、およびヒト骨肉腫シングルセル・空間トランスクリプトームアトラスプロジェクトの研究者および貢献者に深く感謝いたします。本研究は、広西自然科学基金(No. 2023GXNSFAA026111)の支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 抗GAPDH一次抗体 | Proteintech Group、中国、武漢 | 10494-1-AP | ウェスタンブロッティングにおいてローディングコントロールとしてGAPDHを検出するために使用した一次抗体。希釈倍率1:5,000。 |
| 抗PPARG一次抗体 | Proteintech Group、中国、武漢 | 16643-1-AP | ウェスタンブロッティングによるPPARGタンパク質の検出に使用した一次抗体;希釈倍率1:1,000。 |
| BCAタンパク質定量キット | Beijing Solarbio Science & テクノロジー株式会社、中国、北京 | PC0020 | 電気泳動前に全タンパク質濃度を決定するために用いられる比色分析法。 |
| DESeq2 | Bioconductor | バージョン 1.40.2 | カウントベースのトランスクリプトームデータの差分的遺伝子発現解析に使用されるRパッケージ。 |
| ダルベッコ改変イーグル培地 (DMEM) | Beijing Solarbio Science & Technology Co., Ltd.、中国、北京 | 11995 | 143B骨肉腫細胞の維持に使用される基礎培地。 |
| ECL検出試薬 | 北京 Solarbio Science & Technology Co., Ltd.、中国、北京 | PE0010 | ウェスタンブロッティングにおけるHRP結合抗体の検出に使用される化学発光基質。 |
| ウシ胎児血清 (FBS) | 浙江天航生物科技有限公司(四季青)、中国浙江省湖州市 | 11011-8611 | 細胞の増殖および生存能を維持するために、培地に添加される血清サプリメント。 |
| glmnet | CRAN | バージョン 4.1-8 | LASSOおよびエラスティックネットモデリングを含む、罰則付き回帰分析に使用されるRパッケージ。 |
| GraphPad Prism | GraphPad Software、米国カリフォルニア州サンディエゴ | バージョン 9.0 | 統計解析、グラフ作成、および実験データの可視化に使用されるソフトウェア。 |
| HRP標識二次抗体 | Proteintech Group、中国、武漢 | SA00001-2 | ウェスタンブロット検出に使用する西洋わさびペルオキシダーゼ標識二次抗体;希釈倍率 1:5,000。 |
| ヒト骨芽細胞 | Cell Applications, Inc.、米国カリフォルニア州サンディエゴ | 406-05A | 非悪性比較・対照細胞種として使用されるヒト初代骨芽細胞。 |
| ヒト骨肉腫143B細胞株 | American Type Culture Collection (ATCC)、米国バージニア州マナサス | CRL-8303 | in vitro検証実験および分子アッセイに使用されたヒト骨肉腫細胞株。 |
| ImageJ | 米国国立衛生研究所 (NIH) | バージョン 1.53 | 実験画像の定量分析に使用される画像解析ソフトウェア。 |
| 線形モデルを用いた差分的発現解析(limma) | Bioconductor | バージョン 3.56.2 | 差発現解析および線形モデルに基づく統計検定に使用されるRパッケージ。 |
| ペニシリン・ストレプトマイシン | 北京 Solarbio Science & Technology Co., Ltd.、中国、北京 | P1400 | 細菌汚染を減少させるために細胞培養培地に使用される抗生物質サプリメント。 |
| PPARGおよびGAPDHプライマー | Sangon Biotech (Shanghai) Co., Ltd.、中国、上海 | カスタム合成;配列はメソッドに記載 | PPARGおよびGAPDHの発現のqPCR解析に使用したカスタムオリゴヌクレオチドプライマー。 |
| PVDF膜、 0.45 µm | 北京Solarbio Science & Technology Co., Ltd.、中国、北京 | YA1701 | ウェスタンブロッティングにおけるタンパク質転写に使用されるメンブレン。 |
| R統計ソフトウェア | R Foundation for Statistical Computing, オーストリア、ウィーン | バージョン 4.3.2 | バイオインフォマティクス解析、モデル構築、および可視化に使用された統計計算環境。 |
| randomForestSRC | CRAN | バージョン 3.2.2 | ランダム生存フォレストモデリングおよび特徴量の重要度解析に使用されるRパッケージ。 |
| 逆転写キット | Beyotime Biotech Inc.、中国、上海 | D7168M | 定量PCRに先立ち、単離したRNAから相補的DNA(cDNA)を合成するために使用される。 |
| RIPA溶解バッファー | 北京Solarbio Science & テクノロジー株式会社、中国、北京 | R0010 | ウェスタンブロット解析のために細胞を溶解させるために使用されるタンパク質抽出バッファー。 |
| Seurat | Satija研究室 | バージョン 5.0.1 | 単一細胞RNAシーケンシングデータの処理、統合、クラスタリング、および可視化に使用されるRパッケージ。 |
| 生存率 | CRAN | バージョン 3.5-7 | Cox比例ハザードモデルを含む、生存分析に使用されるRパッケージ。 |
| SYBR Green qPCRマスターミックス | Beijing Solarbio Science & Technology Co., Ltd.、中国、北京 | SR1110 | 定量リアルタイムPCR増幅に使用される蛍光マスターミックス。 |
| timeROC | CRAN | バージョン 0.4 | 時間依存性受信者動作特性曲線を生成し、時間経過に伴う予測能を算出するために使用されるRパッケージ。 |
| TRIzol試薬 | Invitrogen, Thermo Fisher Scientific, Waltham, MA, USA | 15596026CN | 培養細胞から全RNAを抽出するために使用される試薬。 |
| 0.25% トリプシン-EDTA | 北京 Solarbio Science & Technology Co., Ltd.、中国、北京 | T1300 | 接着細胞の継代および回収に使用される細胞解離試薬。 |
参考文献
- Mirabello L, Troisi RJ, Savage SA. Osteosarcoma incidence and survival rates from 1973 to 2004: data from the Surveillance, Epidemiology, and End Results Program. Cancer. 2009;115:1531-1543.
- Bielack SS, et al. Prognostic factors in high-grade osteosarcoma of the extremities or trunk: an analysis of 1,702 patients treated on neoadjuvant cooperative osteosarcoma study group protocols. J Clin Oncol. 2002;20:776-790.
- Isakoff MS, Bielack SS, Meltzer P, Gorlick R. Osteosarcoma: Current Treatment and a Collaborative Pathway to Success. J Clin Oncol. 2015;33:3029-3035.
- Kansara M, Teng MW, Smyth MJ, Thomas DM. Translational biology of osteosarcoma. Nat Rev Cancer. 2014;14:722-735.
- Peng P, et al. Epigenetic remodeling under oxidative stress: Mechanisms driving tumor metastasis. MedComm - Oncology. 2024;3.
- Muñoz-Espín D, Serrano M. Cellular senescence: from physiology to pathology. Nat Rev Mol Cell Biol. 2014;15:482-496.
- Coppé JP, Desprez PY, Krtolica A, Campisi J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annu Rev Pathol. 2010;5:99-118.
- Collado M, Serrano M. Senescence in tumours: evidence from mice and humans. Nat Rev Cancer. 2010;10:51-57.
- Lehrke M, Lazar MA. The many faces of PPARgamma. Cell. 2005;123:993-999.
- Peters JM, Shah YM, Gonzalez FJ. The role of peroxisome proliferator-activated receptors in carcinogenesis and chemoprevention. Nat Rev Cancer. 2012;12:181-195.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets--update. Nucleic Acids Res. 2013;41.
- Ho XD, et al. Whole transcriptome analysis identifies differentially regulated networks between osteosarcoma and normal bone samples. Exp Biol Med (Maywood). 2017;242:1802-1811.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Avelar RA, et al. A multidimensional systems biology analysis of cellular senescence in aging and disease. Genome Biol. 2020;21:91.
- Goldman MJ, et al. Visualizing and interpreting cancer genomics data via the Xena platform. Nat Biotechnol. 2020;38:675-678.
- Prentice RL, Zhao S. Regression Models and Multivariate Life Tables. J Am Stat Assoc. 2021;116:1330-1345.
- Heagerty PJ, Lumley T, Pepe MS. Time-dependent ROC curves for censored survival data and a diagnostic marker. Biometrics. 2000;56:337-344.
- Tibshirani R. The lasso method for variable selection in the Cox model. Stat Med. 1997;16:385-395.
- Jaeger BC, et al. OBLIQUE RANDOM SURVIVAL FORESTS. Ann Appl Stat. 2019;13:1847-1883.
- Subramanian A, et al. Gene set enrichment analysis: a knowledge-based approach for interpreting genome-wide expression profiles. Proc Natl Acad Sci U S A. 2005;102:15545-15550.
- Newman AM, et al. Robust enumeration of cell subsets from tissue expression profiles. Nat Methods. 2015;12:453-457.
- Zhou Y, et al. Single-cell RNA landscape of intratumoral heterogeneity and immunosuppressive microenvironment in advanced osteosarcoma. Nat Commun. 2020;11:6322.
- Stuart T, et al. Comprehensive Integration of Single-Cell Data. Cell. 2019;177:1888-1902.e21.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184:3573-3587.e29.
- Zheng X, et al. A single-cell and spatially resolved atlas of human osteosarcomas. J Hematol Oncol. 2024;17:71.
- Ståhl PL, et al. Visualization and analysis of gene expression in tissue sections by spatial transcriptomics. Science. 2016;353:78-82.
- Kresse SH, et al. Integrative analysis reveals relationships of genetic and epigenetic alterations in osteosarcoma. PLoS One. 2012;7.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 2001;25:402-408.
- Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012;9:671-675.
- Gill J, Gorlick R. Advancing therapy for osteosarcoma. Nat Rev Clin Oncol. 2021;18:609-624.
- Sun L, et al. Single-cell RNA sequencing revealed PPARG promoted osteosarcoma progression: based on osteoclast proliferation. Front Immunol. 2024;15:1506225.
- Yuan B, et al. Nuclear receptor modulators inhibit osteosarcoma cell proliferation and tumour growth by regulating the mTOR signaling pathway. Cell Death Dis. 2023;14:51.
- Lu Y, et al. Oridonin exerts anticancer effect on osteosarcoma by activating PPAR-γ and inhibiting Nrf2 pathway. Cell Death Dis. 2018;9:15.
- Gorgoulis V, et al. Cellular Senescence: Defining a Path Forward. Cell. 2019;179:813-827.
- Faget DV, Ren Q, Stewart SA. Unmasking senescence: context-dependent effects of SASP in cancer. Nat Rev Cancer. 2019;19:439-453.
- Hernandez-Segura A, et al. Unmasking Transcriptional Heterogeneity in Senescent Cells. Curr Biol. 2017;27:2652-2660.e4.
- Tian H, et al. Managing the immune microenvironment of osteosarcoma: the outlook for osteosarcoma treatment. Bone Res. 2023;11:11.
- Hanahan D. Hallmarks of Cancer: New Dimensions. Cancer Discov. 2022;12:31-46.
- Ricote M, Li AC, Willson TM, Kelly CJ, Glass CK. The peroxisome proliferator-activated receptor-gamma is a negative regulator of macrophage activation. Nature. 1998;391:79-82.
- Jiang C, Ting AT, Seed B. PPAR-gamma agonists inhibit production of monocyte inflammatory cytokines. Nature. 1998;391:82-86.
- McShane LM, et al. REporting recommendations for tumour MARKer prognostic studies (REMARK). Br J Cancer. 2005;93:387-391.
- Moses L, Pachter L. Publisher Correction: Museum of spatial transcriptomics. Nat Methods. 2022;19:628.