本研究では、シクロホスファミドによって誘発されたマウスの精子形成不全に対する養精カプセル(Yangjing Capsule)の保護効果を評価し、lncRNA NONMMUT031883.2/QKI-5/p38 MAPKシグナル伝達経路の関与について検討します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
研究記事
Yangjingカプセルは、lncRNA NONMMUT031883.2の上方制御を介してQKI-5/p38 MAPK経路を抑制することにより、マウスの精子形成不全を改善する
この記事について
サマリー
要約
精子形成不全は男性不妊の重要な原因であり、シクロホスファミド(CP)は異常な精原細胞のアポトーシスを誘導することで精子形成を損なう可能性がある。養精 capsule(YC)は生殖機能の改善に用いられてきたが、その基礎となる分子メカニズムは依然として不明である。本研究では、CP誘導性の精子形成不全マウスモデルおよびGC-1精原細胞におけるYCの保護効果を調査した。精子数と運動率、男性の繁殖能、血清性ホルモン値、ならびに精巣および精巣上体の組織病理学的変化を評価した。GC-1細胞においては、細胞生存率、乳酸脱水素酵素の放出、アポトーシス、およびアポトーシス関連タンパク質を評価した。定量逆転写ポリメラーゼ連鎖反応、RNAプルダウンアッセイ、免疫蛍光染色、およびウェスタンブロッティングを用いて、lncRNA NONMMUT031883.2、Quaking-5(QKI-5)、およびp38ミトゲン活性化プロテインキナーゼ(MAPK)シグナル伝達を検討した。CP投与マウスにおいて、YCは用量依存的に精子の質、血清性ホルモン値、生殖器官の形態、精巣の組織病理、および繁殖能を改善した。GC-1細胞において、YCは細胞生存率を上昇させ、細胞損傷とアポトーシスを減少させた。lncRNA NONMMUT031883.2はQKI-5と物理的に相互作用しており、YC処理はlncRNA NONMMUT031883.2の発現を増加させる一方で、QKI-5の発現とp38のリン酸化を減少させた。YC処理は、GC-1細胞におけるlncRNA NONMMUT031883.2のノックダウンによって誘導されるアポトーシスを抑制したが、QKI-5の過剰発現はYCの抗アポトーシス効果を減弱させた。これらの知見は、YCがCP誘導性の精子形成不全を軽減し、その保護効果がlncRNA NONMMUT031883.2/QKI-5/p38 MAPK経路の調節によって媒介されることを示唆している。
概要
精子形成不全とは、男性生殖器における精子の産生、成熟、または機能の異常によって引き起こされる生殖能の低下を指します。これは、精子数の減少、運動率の低下、および精子形態異常率の上昇によって特徴付けられます1,2。精子形成不全の病態は複雑であり、遺伝的要因、自己免疫疾患、環境毒素、化学療法による損傷、および生殖器の病変に関連しています3-5。シクロホスファミド (CP) などの化学療法剤は、精巣の精細管に直接損傷を与え、精原細胞のアポトーシスを誘導し、それによって男性の精子形成不全に寄与します6,7。現在は、ホルモン補充療法、抗酸化剤の投与、および生殖補助医療が臨床的介入として用いられています。しかし、これらのアプローチは有効性が一定ではなく、重大な副作用を伴います8,9,10。したがって、安全で効果的な介入策を特定し、その分子標的を明らかにすることは、精子形成不全患者の妊孕性結果を改善するために臨床的に重要です。
漢方薬は、マルチターゲット特性と比較的低い毒性を持つため、男性生殖機能の保護および精子形成不全の治療において可能性を示しています11,12。養精カプセル(Yangjing Capsule; YC)は、Rehmannia glutinosa、Epimedium、胎盤、Polygonatum sibiricum、Angelica sinensis、およびその他の漢方薬で構成される中国の伝統的な特許薬です。これは、腎と精を補い、血と髄を養い、生殖機能を調節するために用いられます13。先行研究では、YCが雄動物の性ホルモンレベルを調節し、精子の質を改善し、精巣組織の損傷を修復し、化学物質によって誘発される生殖器損傷を保護できることが示されています14,15。精原細胞は精子形成の基礎であり、異常な精原細胞のアポトーシスは精子形成不全の発症における中心的なイベントです16。YCは、精原細胞の生存率を改善し、S期の細胞割合を増加させ、アポトーシスを抑制することも報告されています17。しかし、CP誘発性精子形成不全におけるその保護効果と具体的な分子メカニズムは依然として不明です。
長鎖非翻訳RNA(lncRNA)は、タンパク質コード能を持たない200ヌクレオチド以上の長さを持つRNA分子である18。lncRNAは、染色体サイレンシング、クロマチン修飾、ゲノム印字、転写活性化などのメカニズムを通じて遺伝子発現を調節することができる19,20。RNA結合タンパク質であるQuaking-5(QKI-5)は、下流遺伝子の選択的スプライシングを調節することにより、細胞増殖やアポトーシスを含む生理的および病理的プロセスに関与している21。p38ミトゲン活性化プロテインキナーゼ(MAPK)経路は、アポトーシスの調節に関与しており、男性の生殖能および精巣の発達においても重要な役割を果たしている22,23。先行研究では、肝細胞癌細胞においてQKI-5の過剰発現がp38 MAPK経路を活性化することが示されている24。さらに、lncRNA NONMMUT074098.2が精原細胞においてQKI-5に結合することが示されており、一方でQKI-5のノックダウンはp38 MAPK経路を抑制し、精原細胞のアポトーシスを減少させた25。本研究では、CP誘導マウス精子形成不全モデルを用い、YCがlncRNA NONMMUT031883.2の発現およびQKI-5/p38 MAPKシグナル伝達軸を調節し、それによって精原細胞の異常なアポトーシスを減少させ、CP誘導性の精子形成不全を軽減するかどうかを検討した(Figure 1)。その目的は、精子形成に対するYCの保護効果の根底にある分子メカニズムを解明し、男性生殖機能の保護におけるその薬理学的役割についての理解を深めることであった。
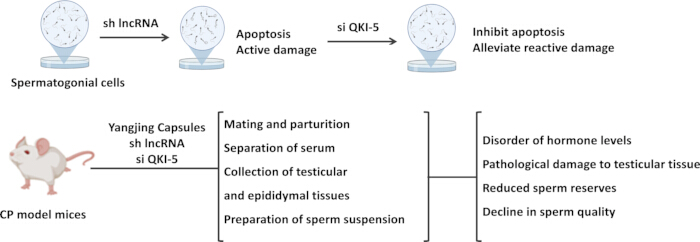
図1: 実験デザインの概略図。上段のパネルは、GC-1精原細胞を用いたin vitro 実験をまとめたものである。lncRNA NONMMUT031883.2のノックダウンによりアポトーシスと細胞損傷を誘導し、続いてQKI-5のノックダウンを行い、アポトーシスおよび細胞損傷への影響を評価した。下段のパネルは、シクロホスファミド(CP)誘発マウス精子形成不全モデルを用いたin vivo実験をまとめたものである。マウスに養精 capsule(Yangjing Capsule)投与、および/またはlncRNA NONMMUT031883.2またはQKI-5による介入を行った。その後、妊孕性、血清ホルモンレベル、精巣および精巣上体組織、精子懸濁液、精子貯蔵量、精子品質、および精巣の組織病理学的損傷を評価した。こちらのリンクをクリックして、この図の拡大版を表示してください。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
すべての動物実験は、ARRIVEガイドラインおよび米国国立衛生研究所(NIH)の実験動物の飼育および使用に関するガイドラインに従って実施されました。すべての実験プロトコルは、東南大学動物倫理委員会の審査および承認を受けました(承認番号:20230216022)。
1. YC含有血清の調製
Yangjing Capsule(YC; 0.5 g/カプセル)2粒を開封し、カプセル内容物を0.8 g量り取った。最終容量が10 mLになるまで生理食塩水を加え、混合物を十分にボルテックスして80 mg/mLの懸濁液を調製した。体重22–25 g、週齢8週のSPF(特定病原体フリー)雄性BALB/cマウスを、温度22 °C、湿度55%–60%、12時間明暗サイクルの条件下で飼育し、餌と水を自由摂取(ad libitum)させた。1週間の順化後、マウスにYCを800 mg/kg(投与量10 mL/kg)で1日1回、5日間連続して経口投与した。最終投与の2時間後、マウスを1%ペントバルビタールナトリウムの腹腔内投与で麻酔し、血清を採取してYC含有血清を調製した。血清を56 °Cで30分間不活化し、0.22 µmメンブレンフィルターでろ過した後、使用時まで−80 °Cで保存した。
2. 細胞培養およびトランスフェクション
マウスGC-1精原細胞を、1%ペニシリン-ストレプトマイシンおよび10%胎児牛血清を含むDMEMで維持した。すべての培養は、5% CO₂ (v/v) 含有雰囲気下の37 °Cで維持した。
LncRNA特異的ショートヘアピンRNA(sh-lncRNA)、QKI-5過剰発現プラスミド(OE-QKI-5)、QKI-5小干渉RNA(si-QKI-5)、およびそれらに対応するネガティブコントロール(sh-NC、OE-NC、およびsi-NC)を合成および構築した。GC-1細胞に、トランスフェクション試薬の説明書に従って、sh-lncRNAまたはsh-NC、si-QKI-5またはsi-NC、あるいはOE-QKI-5またはOE-NCをトランスフェクションした。48時間のインキュベーション後、lncRNA NONMMUT031883.2またはQKI-5の発現量を測定することで、トランスフェクション効率を評価した。
sh-lncRNA + si-QKI-5 + エトポシド群では、GC-1細胞にsh-lncRNAおよびsi-QKI-5をトランスフェクションし、続いて100 µMのエトポシドで12時間処理した26。その後の細胞生存率アッセイでは、GC-1細胞を5%、10%、または20%のYC含有血清を添加した培地で培養し、それぞれ低用量YC(L-YC)、中用量YC(M-YC)、および高用量YC(H-YC)群とした。YC含有血清の濃度(5%、10%、および20% YC)は、予備的な濃度勾配実験の結果に基づいて決定した。sh-lncRNA + H-YC + OE-NC群およびsh-lncRNA + H-YC + OE-QKI-5群では、GC-1細胞にsh-lncRNAとOE-NC、またはsh-lncRNAとOE-QKI-5をトランスフェクションして48時間後、20% YC含有血清に24時間曝露させた。
3. Cell Counting Kit-8 アッセイ
GC-1細胞を96ウェルプレートに 5 × 10³ cells/well の密度で播種し、24時間培養した。細胞の接着後、元の培地をYC含有血清を添加した完全培地 100 µL に交換し、細胞を6、12、または24時間インキュベートした。インキュベーション後、各ウェルに Cell Counting Kit-8 試薬 10 µL を添加し、37 °C の暗所で2時間インキュベートした。マイクロプレートリーダーを用いて 450 nm における吸光度を測定した。
4. 乳酸脱水素酵素(LDH)アッセイ
sh-NCまたはsh-lncRNAを導入して48時間後、GC-1細胞の培養液を回収し、遠心分離によって上清を得た。乳酸脱水素酵素アッセイキットの説明書に従い、上清を検出用作動液で穏やかに混合し、96ウェルプレートに移した。プレートを25 °Cの暗所で30分間インキュベートした。マイクロプレートリーダーを用いて490 nmにおける吸光度を測定し、細胞損傷を評価するために乳酸脱水素酵素の放出量を算出した。
5. Calcein AM/プロピジウムイオダイド染色
sh-NCまたはsh-lncRNAをトランスフェクションして48時間後、Calcein AM/プロピジウムイオダイド(PI)染色を用いてGC-1細胞の生存率を評価した。細胞を12ウェルプレートに5 × 104 cells/wellで播種し、コンフルエンスが60%–70%になるまで培養した。細胞をリン酸緩衝生理食塩水で穏やかに洗浄し、各ウェルに500 µLのCalcein AM/PI染色液を加えた。細胞を37 °Cの暗所で30分間インキュベートし、蛍光顕微鏡で観察した。画像解析ソフトを用いて生存細胞と死細胞をカウントし、生存細胞の割合を算出した。
6. フローサイトメトリー
GC-1細胞を遠心分離によって回収し、リン酸緩衝生理食塩水で穏やかに洗浄した。細胞ペレットを500 µLの結合バッファーに懸濁し、細胞密度を5 × 10⁵ cells/mLに調整した。次に、Annexin V-APCとPIをそれぞれ5 µLずつ加え、懸濁液を十分に混合した後、25 °Cの暗所で10分間インキュベートした。アポトーシスの解析はフローサイトメトリーを用いて行い、励起/蛍光波長はAPCで633/660 nm、PIで488/630 nmとした。アポトーシス率はフローサイトメトリー解析ソフトウェアを用いて算出した。
7. カスパーゼ-3活性測定
規定の処理後、約1 × 10⁶ 個のGC-1細胞を回収し、リン酸緩衝生理食塩水で洗浄して再懸濁した。細胞をカスパーゼ-3活性測定キットの試薬II 100 µLと混合し、氷上で15分間溶解させた。遠心分離後、溶解液の上清 50 µLを回収し、試薬I 40 µLおよび試薬III 10 µLと混合した。この混合液を37 °Cで2時間インキュベートした。マイクロプレートリーダーを用いて405 nmにおける吸光度を測定し、キットの説明書に従ってカスパーゼ-3活性を評価した。
8. RNAプルダウンアッセイ
lncRNA NONMMUT031883.2のセンス鎖およびアンチセンス鎖を、対応する配列に従って合成し、ビオチンで標識した。細胞を免疫沈降用細胞溶解バッファー中で氷上30分間溶解させ、遠心分離によりタンパク質を含む上清を回収した。ストレプトアビジン磁気ビーズをRNA結合バッファーで3回洗浄し、1%牛血清アルブミンを含む結合バッファー中で30分間インキュベートした。
前処理済みのビーズをビオチン標識プローブと混合し、25 °Cで30分間インキュベートした。未結合のプローブを磁気分離により除去した。その後、細胞ライセート上清を加え、混合物を4 °Cで4時間インキュベートして、磁気ビーズ-RNA-タンパク質複合体を形成させた。非特異的に結合したタンパク質を除去するため、磁気ビーズを洗浄バッファーで3回洗浄した。磁気分離により洗浄バッファーを除去し、2× SDSサンプルローディングバッファーを加えた。サンプルを95 °Cで10分間加熱し、その後のウェスタンブロット解析のために、磁気分離により上清を回収した。
9. 精子形成不全マウスモデルの作製
5日間の馴化後、体重22–25 g、8週齢の特定病原体未導入(SPF)雄性BALB/cマウスに、精子形成不全モデルを確立するため、シクロホスファミド(CP)を50 mg/kgで1日1回、7日間腹腔内投与した14,27。モデル作製に成功したマウスを乱数表を用いて、CP群、200 mg/kg YC群、400 mg/kg YC群、800 mg/kg YC群、800 mg/kg YC + sh-NC群、および800 mg/kg YC + sh-lncRNA群にランダムに割り付け、各群6匹とした。
YC投与群のマウスには、YCの対応する用量を1日1回、30日間経口投与した13。800 mg/kg YC + sh-NC群および800 mg/kg YC + sh-lncRNA群では、モデルの構築に成功した後、マウスを2%イソフルランの吸入により麻酔した。各マウスに足退避反射が見られないこと、および呼吸数が安定していることを確認した後、手術部位を剃毛し、ポビドンヨードで消毒した。無菌条件下で、生殖器の前方から皮膚および体壁を通して腹側正中切開を行った。血管損傷を避けるよう注意しながら、精巣上体脂肪組織を慎重に操作して精巣を露出させた。マイクロマニピュレーターを用いて精細管を可視化し、マイクロインジェクションニードルを用いてアデノウイルス懸濁液(1 × 10¹⁰ TU/mL)1 µLをゆっくりと注入した28。注入後、ニードルを5分間留置してからゆっくりと引き抜き、滅菌綿棒で止血した。その後、対側の精巣にも同様の手順を行った。切開部を縫合し、術後のマウスをウォーミングパッドの上で回復させた。対照群のマウスには、毎日同量の生理食塩水を経口投与および注入した。
10. 生殖能の評価
薬剤投与の完了後、各群の雄マウスをBALB/c雌マウスと1:2の比率で7日間自由交配させた。雌マウスの腟栓形成を毎日モニタリングし、記録した。交配の成功が確認された後、雄マウスを取り除き、雌マウスを自然分娩まで個別に飼育した。各群から9匹の妊娠雌マウスを得て、解析に含めた。各群の雄の生殖能を評価するため、平均産子数を記録した。
実験期間の終了後、マウスをペントバルビタールナトリウム 100 mg/kg の腹腔内投与により安楽死させた。この安楽死方法は、東南大学動物倫理委員会によって承認された(承認番号:20230216022)。精巣および精巣上体を慎重に分離し、写真撮影および重量測定を行った。精巣指数および精巣上体指数は、臓器重量/体重として算出した。各マウスから片側の精巣上体を採取して切断し、予め加温したリン酸緩衝生理食塩水 1 mL(37 °C)に入れ、精子が遊出するように 20 分間インキュベートした29。精子懸濁液を緩やかに混合し、その 10 µL を予熱した血球計算盤に滴下した。光学顕微鏡を用いて 200× 倍率で精子数を手動でカウントし、結果を 106/L として表記した。さらに、全精子数に対する前進運動精子の割合を精子運動率として算出した13。
11. 性ホルモン濃度の測定
各群のマウスの眼窩静脈から血液を採取し、25 °Cで30分間静置した。その後、3,000 × gで10分間遠心分離を行い、血清を回収した30。血清中のテストステロン、黄体形成ホルモン(LH)、および卵胞刺激ホルモン(FSH)の濃度を、それぞれの酵素結合免疫吸着測定(ELISA)キットを用いて測定した。
12. RNA安定性アッセイ
GC-1細胞を96ウェル培養プレートに播種し、si-QKI-5またはsi-NCをトランスフェクションして48時間培養した。その後、Actinomycin Dを5 µg/mL添加し、0、3、6、および9時間後に細胞を回収した。全RNAを単離し、逆転写後の定量逆転写ポリメラーゼ連鎖反応(qRT-PCR)によりlncRNA NONMMUT031883.2の相対的な発現レベルを決定した。各時点における相対的なRNAレベルは、0時間の発現レベルを100%として算出した。
13. 定量的逆転写ポリメラーゼ連鎖反応
GC-1細胞およびマウス精巣組織をリン酸緩衝生理食塩水で洗浄し、全RNA抽出のために溶解した。AMV逆転写酵素を用いた逆転写により相補的DNAを合成した。リアルタイムPCRシステムと定量PCRキットを用い、相補的DNAを増幅テンプレートとしてポリメラーゼ連鎖反応による増幅を行った。lncRNA NONMMUT031883.2の内部標準としてU6を、QKI-5の 内部標準としてGAPDHを用いた。標的遺伝子の相対的な発現量は2−ΔΔCt法を用いて算出した25。また、lncRNA NONMMUT031883.2の細胞内局在を決定するため、細胞質画分および核画分から個別にRNAを抽出した。プライマー配列は表1に記載している。
| 遺伝子 | フォワードプライマー (5'から3') | リバースプライマー (5'から3') |
| QKI-5 | CTGTCATGCCAAACGGAAC | GATGGACACGCATATCGTG |
| GAPDH | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| lncRNA NONMMUT031883.2 | CCACTGTGGCACATTGAAGTA | TTAAGTTAATGGGTGCTGTGTT |
| U6 RNA | CTCGCTTCGGCAGCACA | AACGCTTCACGAATTTGCGT |
表1:定量逆転写ポリメラーゼ連鎖反応に使用したプライマー配列。lncRNA NONMMUT031883.2、QKI-5、U6、およびGAPDHのフォワードおよびリバースプライマー配列を5′–3′方向に記載している。
14. ヘマトキシリン・エオジン染色
マウスの精巣および精管組織を4%パラホルムアルデヒドに浸し、4 °Cで24時間固定した。リン酸緩衝生理食塩水で洗浄後、段階的なエタノール系列を用いて組織を脱水し、パラフィンに包埋して5 µmの厚さで切片を作成した。切片を60 °Cで60分間加熱し、キシレン中で30分間脱パラフィン処理を行った。
段階的なエタノール系列による親水化後、切片をヘマトキシリンで5分間染色し、塩酸エタノール分化液で10秒間処理し、水道水で洗浄して青染させた後、1%エオジンで2分間染色した。次に、切片を95%エタノールおよび無水エタノールで脱水し、キシレンで30分間透徹させた。風乾後、切片を中性樹脂で封入した。精巣および精巣上体の形態学的変化を顕微鏡下で観察した。
15. 免疫蛍光染色
マウス精巣のパラフィン切片を段階的なエタノール系列で脱パラフィンおよび親水化し、続いてpH 6.0のクエン酸緩衝液を用いてマイクロ波による抗原賦活化を行った。室温まで自然冷却した後、切片を0.3% Triton X-100で10分間インキュベートした。切片を5% 牛血清アルブミンで25 °Cにて60分間ブロッキングし、リン酸緩衝生理食塩水で洗浄した後、Ki67に対する一次抗体とともに4 °Cで一晩インキュベートした。翌日、蛍光色素標識二次免疫グロブリンG抗体を適用し、切片を37 °Cの暗所にて60分間インキュベートした。リン酸緩衝生理食塩水で洗浄後、切片をDAPIで10分間対比染色し、蛍光顕微鏡下で観察した。蛍光強度は画像解析ソフトウェアを用いて分析した。
GC-1細胞の免疫蛍光染色では、細胞を12ウェルプレートに1 × 10⁵ cells/wellの密度で播種し、24時間インキュベートした。細胞を4%パラホルムアルデヒドで30分間固定し、0.3% Triton X-100で10分間透過処理した後、5%牛血清アルブミンでブロッキングを行い、QKI-5に対する一次抗体とともに4 °Cで一晩インキュベートした。以降の手順は、精巣組織切片について述べた方法と同様に実施した。
16. TUNEL染色
マウス精巣のパラフィン切片を脱パラフィンし、段階的なエタノール系列で親水化した後、細胞膜透過性を高めるために0.1% Triton X-100で5分間インキュベートした。DNaseを含まない20 µg/mLのProteinase K調製液を切片に均一に塗布し、37 °Cで15分間インキュベートした。次にTUNEL検出溶液を加え、暗所で37 °Cにて90分間インキュベートした。DAPIで10分間インキュベートした後、抗退色封入剤を塗布し、蛍光顕微鏡下で精巣組織を観察した。
GC-1細胞を12ウェルプレートに播種し、4%パラホルムアルデヒドで30分間固定した。0.1% Triton X-100で5分間透過処理を行った後、TUNEL検出溶液を細胞に添加し、暗所で60分間インキュベートした。次いで、細胞をDAPIで10分間染色し、蛍光顕微鏡下で観察した。
17. ウェスタンブロッティング
マウス精巣組織およびGC-1細胞を免疫沈降用細胞溶解バッファー中で氷上30分間溶解させ、超音波破砕を行った。遠心分離後、タンパク質を含む上清を回収し、bicinchoninic acidアッセイキットを用いてタンパク質濃度を測定した。タンパク質上清にSDSローディングバッファーを混合し、沸騰水中で10分間加熱した。ゲル電気泳動による分離後、タンパク質をポリビニリデンフルオリド膜に転写し、5%牛血清アルブミンで2時間ブロッキングした31。
メンブレンを、切断型caspase-3 (1:500)、Bcl-2 (1:1000)、caspase-3 (1:2000)、Bax (1:500)、QKI-5 (1:1000)、リン酸化p38 (1:1000)、またはp38 (1:500)に対する一次抗体とともに4 °Cで一晩インキュベートした。翌日、メンブレンをTween 20含有Tris緩衝生理食塩水で洗浄し、ヤギ抗ウサギ免疫グロブリンG (1:10000)とともに25 °Cで2時間インキュベートした。メンブレン表面に化学発光増強基質溶液を塗布し、ゲルイメージングシステムを用いてタンパク質バンドを撮影した。バンド強度は画像解析ソフトを用いて解析し、相対的なタンパク質発現量はGAPDH (1:3000)で標準化した。
タンパク質合成を阻害するために、50 µg/mLのシクロヘキシミドを使用した。QKI-5の半減期を決定するために、0、3、6、および9時間に細胞を回収し、その後、ウェスタンブロッティングによりQKI-5タンパク質レベルを測定した25。
18. 統計解析
すべてのデータは、統計、グラフ作成、および画像解析ソフトウェアを用いて統計的に解析し、プロットした。データの正規性はShapiro-Wilk検定を用いて評価した。実験データは平均値 ± 標準偏差で示した。群間の差の評価には一元配置分散分析を用いた。分散が均一な場合の事後ペア比較にはLSD-t検定を、分散が不均一な場合にはDunnett’s T3検定を用いた。p < 0.05を統計的に有意とみなした。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
lncRNA NONMMUT031883.2のノックダウンによる精原細胞のアポトーシス誘導
GC-1細胞にsh-lncRNAを導入し、lncRNA NONMMUT031883.2の発現をノックダウンした。sh-NCを導入した細胞と比較して、sh-lncRNAの導入後、lncRNA NONMMUT031883.2の転写レベルは著しく低下しており、ノックダウンの成功が確認された(図2A)。lncRNA NONMMUT031883.2のノックダウン後、GC-1細胞の生存率は有意に低下し(図2B)、LDH放出量は有意に増加したことから、細胞損傷の増大が示された(図2C)。Calcein-AM/PI染色では、sh-lncRNA群においてPI陽性GC-1細胞数が増加し、生存細胞の割合が減少した(図2D, E)。lncRNA NONMM...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
化学療法による後天的な精子形成不全は、男性不妊の重要な原因である32,33,34。しかし、その具体的な分子メカニズムは十分に解明されていない。本研究の結果は、Yangjing Capsule (YC) が、シクロホスファミド (CP) によって誘発された雄マウスの性ホルモン異常、精巣の組織病理学的損傷、および生殖能低下を用量依存的に改善することを示している。これらの改善は、lncRNA NONMMUT031883.2 のアップレギュレーションおよび QKI-5/p38 MAPK パスウェイの抑制に関連しており、YC がこの軸を介して精原細胞の異常なアポトーシスを減少させる可能性が示唆された。
CPの生殖毒性は広く報告されている。その代謝物であるアクロレインは精巣組織に蓄積し、酸化ストレスやDNA損傷などの経路を通じて生殖細胞のアポトーシスを誘導する。精子形成の初期細胞である精原細胞は、CPの細胞毒...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者らは、金銭的または非金銭的な利益相反がないことを宣言します。
謝辞
本研究は、中国国家自然科学基金(grant no. 82374257)、江蘇省中医院の第4回ピーク学術人材育成プログラム(grant no. k2026yrc74)、および江蘇省の中医学・中西医結合科学研究プロジェクト(grant no. CYTF2026019)の支援を受けて行われました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Actinomycin D | MedChemExpress, Monmouth Junction, NJ, USA | HY-17559 | RNA安定性アッセイに使用する転写阻害剤 |
| AMV逆転写酵素 | Takara, Tokyo, Japan | 2621 | 相補的DNA合成用酵素 |
| Annexin V-APC/PI検出キット | BioLab Technology, Beijing, China | KFS191 | アポトーシスのフローサイトメトリー解析用キット |
| 抗退色封入剤 | MedChemExpress, Monmouth Junction, NJ, USA | HY-K1042 | 蛍光保存用封入剤 |
| Bax一次抗体 | Affinity Biosciences, OH, USA | AF0120 | Bax検出用一次抗体 |
| BCAキット | Macklin, Shanghai, China | B917925 | タンパク質濃度決定用キット |
| Bcl-2一次抗体 | Affinity Biosciences, OH, USA | AF0769 | Bcl-2検出用一次抗体 |
| 牛血清アルブミン | BioLab Technology, Beijing, China | BTN131070 | ブロッキング剤 |
| Calcein/PI検出キット | Beyotime, Shanghai, China | C2015M | 生死細胞染色用キット |
| Caspase-3活性測定キット | BioLab Technology, Beijing, China | QN2866 | caspase-3活性測定用キット |
| Caspase-3一次抗体 | Abcam, MA, USA | ab184787 | caspase-3検出用一次抗体 |
| CCK-8試薬 | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0301 | 細胞生存率評価用試薬 |
| 切断型caspase-3一次抗体 | Abcam, MA, USA | ab32042 | 切断型caspase-3検出用一次抗体 |
| シクロヘキシミド | Macklin, Shanghai, China | H823111 | タンパク質安定性アッセイに使用するタンパク質合成阻害剤 |
| シクロホスファミド | MedChemExpress, Monmouth Junction, NJ, USA | HY-17420 | 精子形成不全の誘導に使用 |
| DAPI試薬 | Beyotime, Shanghai, China | C1006 | 核対比染色剤 |
| DMEM培地 | Wuhan Sunncell Biotechnology, Hubei, China | SNLM-302 | GC-1細胞用細胞培養培地 |
| ECL作業溶液 | Solarbio, Beijing, China | SW2030 | タンパク質バンド検出用化学発光基質 |
| エトポシド | MedChemExpress, Monmouth Junction, NJ, USA | HY-13629 | アポトーシス誘導剤 |
| フローサイトメーター | BD Biosciences, CA, USA | BD FACSCalibur | アポトーシス解析用装置 |
| FlowJoソフトウェア | BD Biosciences, CA, USA | v10.8 | フローサイトメトリーデータ解析用ソフトウェア |
| 蛍光顕微鏡 | Leica, Heidelberg, Germany | DM3000 | 蛍光イメージング用装置 |
| 蛍光標識二次抗体IgG | Servicebio, Wuhan, China | GB22303 | 免疫蛍光検出用二次抗体 |
| 卵胞刺激ホルモンELISAキット | Huamei Biotech, Wuhan, China | CSB-E06871m | 血清卵胞刺激ホルモン測定用キット |
| GAPDH一次抗体 | Affinity Biosciences, OH, USA | T0004 | ウェスタンブロッティング用ローディングコントロール抗体 |
| GC-1細胞 | Wuhan Sunncell Biotechnology, Hubei, China | SNL-302 | マウス精原細胞株 |
| ゲルイメージングシステム | Jinpeng Analysis Instrument, Shanghai, China | JP-2880 | ゲルおよびブロット可視化用イメージングシステム |
| ゲルイメージングシステム | Invitrogen, Carlsbad, CA, USA | iBright CL1500 | ウェスタンブロット用化学発光イメージングシステム |
| ヤギ抗ウサギIgG | Servicebio, Wuhan, China | GB23303 | ウェスタンブロッティング用二次抗体 |
| ヘマトキシリン溶液 | BioLab Technology, Beijing, China | YT165 | 組織学的解析用核染色剤 |
| 塩酸エタノール分化溶液 | Beyotime, Shanghai, China | C0163S | ヘマトキシリン染色用分化試薬 |
| ImageJソフトウェア | National Institutes of Health, USA | 1.54h | 画像定量化用ソフトウェア |
| IP細胞溶解バッファー | Beyotime, Shanghai, China | P0013 | 免疫沈降およびタンパク質抽出用溶解バッファー |
| Ki67一次抗体 | Affinity Biosciences, OH, USA | AF0198 | Ki67検出用一次抗体 |
| LDH細胞毒性アッセイキット | Beyotime, Shanghai, China | C0016 | 乳酸脱水素酵素放出および細胞損傷測定用キット |
| 光学顕微鏡 | Olympus, Tokyo, Japan | CKX53 | 精子数計測および形態観察に使用 |
| Lipofectamine 3000 | Invitrogen, Carlsbad, CA, USA | L3000001 | トランスフェクション試薬 |
| マイクロプレートリーダー | Molecular Devices, CA, USA | SpectraMax Mini | 吸光度測定用装置 |
| マウス黄体形成ホルモンELISAキット | Huamei Biotech, Wuhan, China | CSB-E12770m | 血清黄体形成ホルモン測定用キット |
| マウステストステロンELISAキット | Huamei Biotech, Wuhan, China | CSB-E05101m | 血清テストステロン測定用キット |
| 中性ゴム | BioLab Technology, Beijing, China | QN1253 | 組織切片用封入剤 |
| p38一次抗体 | Affinity Biosciences, OH, USA | AF6456 | 全p38検出用一次抗体 |
| パラホルムアルデヒド | MedChemExpress, Monmouth Junction, NJ, USA | HY-Y0333 | 細胞および組織用固定剤 |
| PARISキット | Invitrogen, Carlsbad, CA, USA | AM1921 | 核および細胞質RNA分画用キット |
| PCRシステム | ABI, CA, USA | ABI PRISM 7300 | リアルタイムPCR装置 |
| p-p38一次抗体 | Affinity Biosciences, OH, USA | AF3455 | リン酸化p38検出用一次抗体 |
| プロテイナーゼK溶液 | Beyotime, Shanghai, China | ST532 | TUNEL染色前の組織透過処理用試薬 |
| PVDF膜 | Millipore, MA, USA | ISEQ00010 | ウェスタンブロッティング用タンパク質転写膜 |
| QKI-5一次抗体 | Abcam, MA, USA | ab126742 | QKI-5検出用一次抗体 |
| RNA結合バッファー | Invitrogen, Carlsbad, CA, USA | 65040D | RNA-タンパク質結合反応用バッファー |
| SDSローディングバッファー | Beyotime, Shanghai, China | P0286 | SDS-PAGE用試料負荷バッファー |
| ストレプトアビジン磁気ビーズ | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0208 | ビオチン標識RNAプローブ捕捉用磁気ビーズ |
| TB Green FAST qPCRキット | Takara, Tokyo, Japan | CN830S | 定量PCR用試薬キット |
| Triton X-100 | Macklin, Shanghai, China | T824275 | 透過処理試薬 |
| TRIzol試薬 | Invitrogen, Carlsbad, CA, USA | 15596018CN | 全RNA抽出用試薬 |
| TUNEL検出溶液 | Beyotime, Shanghai, China | C1086 | DNA断片化検出用試薬 |
| キシレン | Macklin, Shanghai, China | X821391 | パラフィン除去および組織透明化用試薬 |
参考文献
- Bhattacharya I, Sharma SS, Majumdar SS. Etiology of male infertility: an update. Reprod Sci. 2024;31(4):942-965.
- Dong S, et al. Testicular aging, male fertility and beyond. Front Endocrinol (Lausanne). 2022;13:1012119.
- Wang X, et al. Decoding the pathogenesis of spermatogenic failure in cryptorchidism through single-cell transcriptomic profiling. Cell Rep Med. 2024;5(9):101709.
- Stallmeyer B, et al. Inherited defects of piRNA biogenesis cause transposon de-repression, impaired spermatogenesis, and human male infertility. Nat Commun. 2024;15(1):6637.
- Szlachcikowska D, Koszła O, Sołek P, Tabęcka-Łonczyńska A. Non-canonical apoptosis mediates oxaliplatin-induced disruption of spermatogenic cells: implications for male fertility. Chem Biol Interact. 2026;431:112009.
- Chi YN, et al. Geniposide attenuates spermatogenic dysfunction via .inhibition of endoplasmic reticulum stress in male mice. Chem Biol Interact. 2022;366:110144.
- Guo XB, et al. Protective effect of bone marrow mesenchymal stem cell-derived exosomes against the reproductive toxicity of cyclophosphamide is associated with the p38 MAPK/ERK and AKT signaling pathways. Asian J Androl. 2021;23(4):386-391.
- Lamb DJ. Chromosome defects and male factor infertility. Fertil Steril. 2025;123(6):933-942.
- Kathrins M, Niederberger C. Diagnosis and treatment of infertility-related male hormonal dysfunction. Nat Rev Urol. 2016;13(6):309-323.
- Piechka A, et al. Molecular mechanisms of cellular dysfunction in testes from men with non-obstructive azoospermia. Nat Rev Urol. 2024;21(2):67-90.
- Li Z, et al. The role of Cistanches Herba and its ingredients in improving reproductive outcomes: a comprehensive review. Phytomedicine. 2024;129:155681.
- Jiang X, et al. Shenling Baizhu San improves spermatogenic dysfunction in hyperuricemia mice by regulating Sirt3/Nrf2 to inhibit testicular ferroptosis. J Ethnopharmacol. 2025;340:119310.
- Deng W, Sun D, Cai B, Jin B. Yangjing capsule improves oligoasthenozoospermia by promoting nitric oxide production through the PLCγ1/AKT/eNOS pathway. Front Pharmacol. 2023;14:1056091.
- Zhao H, et al. Yangjing Capsule ameliorates spermatogenesis in male mice exposed to cyclophosphamide. Evid Based Complement Alternat Med. 2015;2015:980583.
- Jin B, et al. Yangjing Capsule improves testicular angiogenesis by activating the VEGFA/eNOS signaling pathway. Evid Based Complement Alternat Med. 2020;2020:1957267.
- Guo W, et al. Chlorocholine chloride exposure induced spermatogenic dysfunction via .iron overload caused by AhR/PERK axis-dependent ferritinophagy activation. Ecotoxicol Environ Saf. 2024;274:116193.
- Wang Z, et al. Yangjing Capsule extract promotes proliferation of GC-1 Spg cells. Evid Based Complement Alternat Med. 2014;2014:640857.
- Zhang P, et al. LncRNA-mediated adipogenesis in different adipocytes. Int J Mol Sci. 2022;23(13).
- Núñez-Martínez HN, Recillas-Targa F. Emerging functions of lncRNA loci beyond the transcript itself. Int J Mol Sci. 2022;23(11).
- Herman AB, Tsitsipatis D, Gorospe M. Integrated lncRNA function upon genomic and epigenomic regulation. Mol Cell. 2022;82(12):2252-2266.
- Wang JZ, et al. QKI-5 regulates the alternative splicing of the cytoskeletal gene ADD3 in lung cancer. J Mol Cell Biol. 2021;13(5):347-360.
- Zeng Y, et al. Nickel induces blood-testis barrier damage through ROS-mediated p38 MAPK pathways in mice. Redox Biol. 2023;67:102886.
- Luo D, He Z, Yu C, Guan Q. Role of p38 MAPK signaling in testis development and male fertility. Oxid Med Cell Longev. 2022;2022:6891897.
- Xia C, et al. LncRNA CCAT1 enhances chemoresistance in hepatocellular carcinoma by targeting QKI-5. Sci Rep. 2022;12(1):7826.
- Li K, et al. A long noncoding RNA binding to QKI-5 regulates germ cell apoptosis via .the p38 MAPK signaling pathway. Cell Death Dis. 2019;10(10):699.
- Zhou X, et al. ANKRD49 inhibits etoposide-induced intrinsic apoptosis of GC-1 cells by modulating NF-κB signaling. Mol Cell Biochem. 2019;457(1-2):21-29.
- Fang C, et al. Integrative proteomics and metabolomics approach to identify the key roles of icariin-mediated protective effects against cyclophosphamide-induced spermatogenesis dysfunction in mice. Front Pharmacol. 2022;13:1040544.
- Li K, et al. Adeno-associated-virus-mediated delivery of CRISPR-CasRx induces efficient RNA knockdown in the mouse testis. Theranostics. 2024;14(10):3827-3842.
- Yi H, et al. Retinoic acid mitigates NSC319726-induced spermatogenesis dysfunction through cuproptosis-independent mechanisms. Cell Biol Toxicol. 2024;40(1):26.
- Guo Y, Wang A, Liu X, Li E. Effects of resveratrol on reducing spermatogenic dysfunction caused by high-intensity exercise. Reprod Biol Endocrinol. 2019;17(1):42.
- Beeraka NM, et al. Ginsenoside Rh4 suppresses Notch3 and PI3K/Akt signaling to inhibit the growth and metastasis of gastric cancer cells. J Cancer Biomol Ther. 2025;2(1):145-156.
- Li P, et al. Proteomic analysis of cisplatin-induced spermatogenesis defects in mice. Ann Med. 2026;58(1):2612816.
- Wang Z, et al. Melatonin ameliorates paclitaxel-induced spermatogenesis and fertility defects in mice. J Cell Mol Med. 2022;26(4):1219-1228.
- Abdi M, et al. Cyclophosphamide-induced infertility and the impact of antioxidants. Am J Reprod Immunol. 2024;92(6):e70014.
- Özbilgin MK, Demirören S, Üçöz M, Oztatlici M. Cyclophosphamide suppresses spermatogenesis in the testes of mice through downregulation of miR-34b and miR-34c. Andrologia. 2021;53(7):e14071.
- Poojary KK, et al. Curcumin nanocrystals attenuate cyclophosphamide-induced testicular toxicity in mice. Toxicol Appl Pharmacol. 2021;433:115772.
- Cao J, et al. Single-cell map of human azoospermic testes caused by cyclophosphamide chemotherapy. Sci Data. 2024;11(1):163.
- Dong Y, et al. New insights into polycyclic aromatic hydrocarbons: Phenanthrene targets ribosomes to induce neuronal apoptosis. Aquat. Toxicol. 2026;298:107884.
- Wang Y, et al. Interplay between elemental imbalance-related PI3K/Akt/mTOR-regulated apoptosis and autophagy in arsenic (III)-induced jejunum toxicity of chicken. Environ. Sci. Pollut. Res. Int. 2018;25(19):18662-18672.
- Liu H, et al. Integrating network toxicology, transcriptomics and experimental validation to elucidate the potential mechanisms of fluoride-induced neurotoxicity in zebrafish. Comp. Biochem. Physiol. C Toxicol. Pharmacol. 2026;306:110549.
- Saleh DO, et al. Cyclophosphamide-induced testicular injury: the role of chrysin in mitigating iron overload and ferroptosis. Naunyn Schmiedebergs Arch Pharmacol. 2025;398(5):5475-5489.
- Dong S, et al. Loss of lncRNAs 1700101O22Rik and 1700027A15Rik causes sperm malformation and subfertility. Andrology. 2025;13(5):1223-1235.
- Liu W, et al. A novel meiosis-related lncRNA, Rbakdn, contributes to spermatogenesis by stabilizing Ptbp2. Front Genet. 2021;12:752495.
- Sun TC, et al. LncRNAs induce oxidative stress and spermatogenesis by regulating endoplasmic reticulum genes and pathways. Aging (Albany NY). 2021;13(10):13764-13787.
- Hua R, et al. DNM3OS enhances the apoptosis and senescence of spermatogonia associated with nonobstructive azoospermia by providing miR-214-5p and decreasing E2F2 expression. Anal Cell Pathol (Amst). 2023;2023:1477658.
- Wang S, et al. Quaking 5 suppresses TGF-β-induced epithelial-mesenchymal transition and cell invasion in lung adenocarcinoma. EMBO Rep. 2021;22(6):e52079.
- Chen X, et al. The emerging roles of the RNA-binding protein QKI in cardiovascular development and function. Front Cell Dev Biol. 2021;9:668659.
- Li J, et al. Qiangjing tablets repair blood-testis barrier dysfunction in rats by regulating oxidative stress and the p38 MAPK pathway. BMC Complement Med Ther. 2022;22(1):133.
- Tang Z, et al. MRE11 is essential for the long-term viability of undifferentiated spermatogonia. Cell Prolif. 2024;57(9):e13685.
- Jiao Y, Feng Z, Zhang T, Chen X. Impact of Vitamin D(3) Supplementation on Androgens and Semen Parameters in Infertile Men: A Systematic Review and Meta-Analysis Based on Prospective Randomised Controlled Trials. Arch. Esp. 2025;78(6):772-781.
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。