本プロトコルでは、結膜下へのTGF-β2投与によって誘発される、ゴーグル装着や眼瞼縫合を必要としない近視のげっ歯類モデルについて解説します。このモデルでは、NLRP3/IL-1β-MMP2軸が駆動して眼軸延長が引き起こされます。また、分割バイオメトリ記録法を用いることで、麻酔によるアーチファクトを最小限に抑え、高精度なデータを取得することが可能です。
この記事について
サマリー
要約
近視は、過剰な眼軸長の伸長と強膜細胞外マトリックス(ECM)のリモデリングを特徴とする、世界的な公衆衛生上の重大な懸念事項である。これらのメカニズムを調査するには実験モデルが不可欠であるが、小型齧歯類における従来の光学的な defocus 法には技術的な限界がある。本研究では、形質転換増殖因子ベータ(TGF-β)の反復的な結膜下注射により、標準化可能な薬理学的近視モデルを確立し、評価した。標的への送達を実現するため、上眼瞼を反転させ、33ゲージの針を用いて眼瞼結膜を20°~30°の浅い角度で標的にする、両手による外科的安定化手技を開発した。ラットを用いた in vivo スクリーニングを通じて、TGF-β2(500 pg/eye)が眼球後方の成長を促進する主要な因子であることが特定された。その後、マウスにおける用量反応タイトレーションにより、逆U字型のプロファイルが明らかになった。主要な検証コホートにおいて、最低用量(250 pg/eye)で顕著な眼軸長の伸長(0.197 ± 0.012 mm)と近視性の屈折変化(−1.58 ± 0.63 D)が誘導された。分子レベルでは、反復的な TGF-β2 の投与により、両種の動物において網膜の NOD 様受容体ファミリーピリン領域含有 3(NLRP3)/ インターロイキン-1β(IL-1β)インフラマソームカスケードが活性化し、マトリックスメタロプロテアーゼ 2(MMP2)の発現が上昇した。麻酔に伴うアーティファクトを最小限に抑える2日間の分割バイオメトリ記録レジメンと組み合わせることで、本プロトコルは抗近視介入を評価するための信頼性と拡張性のあるプラットフォームを提供する。
概要
近視は世界的な公衆衛生上の大きな懸念事項となっており、2050年までに世界人口の約50%に影響が及ぶと予測されています1,2。進行性近視の主要な病理学的要因は眼球の過剰な軸方向への伸長であり、これにより細胞外マトリックスの能動的なリモデリングと組織変性が引き起こされ、眼球後極部の構造的な薄層化につながります3。これらの動的な変化には、構造的リモデリング(強膜ECMの分解、コラーゲンの喪失、後極層の薄層化を特徴とする)と機能的リモデリング(生物力学的剛性の低下、脈絡膜血流の変動、異常な網膜-RPE炎症シグナリングを特徴とする)の両方が含まれます。これらが複合的に作用することで、近視性黄斑症、網膜剥離、緑内障、早期白内障など、視力に深刻な影響を及ぼす合併症や不可逆的な視力障害の生涯リスクが増大します4,5,6,7。この疾患による臨床的および社会経済的な負担は甚大であるにもかかわらず、異常な眼球成長を制御する正確な上流の分子メカニズムはまだ完全には解明されていません。したがって、軸方向の伸長を促進するシグナル伝達経路を解明し、再現性のある標準的な動物モデルを構築することは、新たな治療標的を特定し、世界的な近視の流行に対処するための極めて重要なステップとなります。
形態遮断近視(FDM)およびレンズ誘発近視(LIM)は、光学的なデフォーカスおよび正視化を研究するためのゴールドスタンダードとして機能していますが8,9,10,11、これらの光学デフォーカスモデルを小型齧歯類、特にマウスに適用することは、技術的に大きな困難を伴います。マウスの活発なグルーミング行動により、ゴーグルが脱落することが頻繁にあり、保護カラーのようなストレスフルな対策が必要となります12。さらに、機械的な摩擦、眼瞼縫合、および遮蔽物下の微小環境の変化により、角膜混濁や角膜潰瘍などの二次的な角膜合併症が日常的に発生します13,14,15。FDMおよびLIMは視覚的デフォーカスを研究するための基礎的なパラダイムであり続けていますが、角膜混濁、機械的摩擦、または眼瞼縫合による刺激などの二次的な眼表面の合併症が、光学的なバイオメトリ測定を妨げる可能性があります15。これらの処置上のアーティファクトは、涙液層の安定性と角膜の透明性を損ない、実験的な除外率の上昇や測定ノイズの増加につながります13,16。対照的に、薬理学的な誘発は物理的な遮蔽物を介さないため、角膜の透明性が維持され、信頼性と再現性のある光学および超音波バイオメトリが可能になります。近視において、過剰な眼軸長の伸長は、後部強膜の細胞外マトリックス(ECM)リモデリングの変化によって引き起こされ17、そこではTGF-β(transforming growth factor-beta)アイソフォームがコラーゲンおよびプロテオグリカン合成の主要な調節因子として機能します18,19。新たな知見により、TGF-βシグナル伝達が、低グレードの眼内炎症およびMMP2(matrix metalloproteinase 2)を介したマトリックス分解と交差する可能性が示唆されており20、これが強膜のリモデリングと眼軸長の伸長に寄与している可能性があります21,22,23,24。これは、近視眼の房水においてTGF-β2(transforming growth factor-beta 2)、IL-6(interleukin-6)、およびMMP2のレベルが上昇していることが報告されていること25,26,27、および実験モデルにおいてTGF-β / NF-κB(nuclear factor kappa B) / MMP2軸が活性化されることによって支持されています20,21。これらの所見は、近視進行中の動的な眼内分子シグナル伝達を反映していますが、房水マーカーに対する相対的な解剖学的寄与(局所的な前方分泌、結膜下デポからの流出、または後方硝子体からの拡散のいずれか)については、まだ十分に解明されていません。しかし、この薬理学的モデルの範囲と固有の限界を認識する必要があります。結膜下へのTGF-β投与は、光学的なデフォーカスおよび視覚処理経路をバイパスするため、本モデルは下流の生化学的カスケード、特にTGF-β2 / NLRP3(NOD-like receptor family pyrin domain-containing 3) / IL-1β(interleukin-1β) / MMP2を介した強膜ECMリモデリングの解析や、炎症またはマトリックス分解経路を標的とする候補治療薬のスクリーニングに最も適しています。逆に、上流の視覚信号伝達、網膜から強膜への光学シグナル伝達、または環境光による正視化メカニズムの調査には適しておらず、それらについては従来のFDMまたはLIMモデルが不可欠なままです。
これらの手法的な欠点を解消するため、ラットおよびマウスにおいてTGF-βの結膜下への反復投与を用いた近視モデルを確立し、検証した。本手法は、機械的な外傷や眼表面への刺激を最小限に抑える洗練されたアプローチである。物理的な遮蔽物(オクルーダー)を必要としないため、本プロトコルでは薬理学的投与量と実験スケジュールを精密に制御でき、同時にヘッドマウントハードウェアに伴う潜在的な行動学的攪乱要因を大幅に削減できる。本研究では、3種類の組換えヒトTGF-βアイソフォーム(配列保存性によって齧歯類組織における機能的な交叉反応性が検証済みである28)の効力をラットで評価し、マウスにおけるTGF-β2の非線形な用量反応キネティクスをマッピングした。重要な点として、この標準化されたレジメンは、眼軸長の延長と近視的な屈折変化を伴う表現型近視を効率的に誘導し、網膜のNOD様受容体ファミリーピリンドメイン含有3(NLRP3)/インターロイキン-1β(IL-1β)インフラマソームおよびMMP2軸を活性化した。最終的に、本プロトコルは、具体的な運用の限界を詳述しつつ、下流の強膜リモデリングを標的とするための実行可能で分子的に定義された枠組みを提供する。
プロトコル
すべての動物実験は中国医科大学(China Medical University, CMU)の機関動物ケア・使用委員会(Institutional Animal Care and Use Committee: IACUC)のガイドラインおよび規則に従って実施された。すべての手順は、眼科学および視覚研究における動物の使用に関する視覚研究協会(Association for Research in Vision and Ophthalmology: ARVO)声明に準拠している。すべての実験開始前に、CMU-IACUCによる完全な承認を得ていた。実験終了時の動物の安楽死は、中国医科大学(CMU)の機関動物ケア・使用委員会(IACUC)および地域の動物福祉に関する規則のガイドラインに厳密に従って行われた。
1. 動物および倫理的承認
- 雄のブラウン・ノルウェー(BN)ラット(3–4週齢、60–80 g)および雄のC57BL/6(B6)マウス(3–4週齢、15匹–適切な実験動物供給業者から20 g)
- 動物は制御された環境下(12時間明暗サイクル、22℃)で飼育する。 °C ± 2 °C、50% ± 10%の相対湿度)で、標準飼料と水を自由摂取可能にした。
- 実験手順を開始する前に、少なくとも3日間の適応期間を設けること。
- ラットまたはマウスを無作為に処置群に割り付ける:対照群(キャリア群)およびTGF-β2つの注射群。適切な統計的検出力を持つように、各群で最低N = 5匹の動物を使用する。
注:被験者間要因のデザインを採用した。個々の動物の両眼には同一の処置を施した(両眼にビークル対照[1–2 µL BSS] または両側性活性化rhTGF-β2).- 各動物について左右の眼球パラメータ(眼軸長および屈折異常)を測定する。
注意:CMU-IACUCの書面による承認を確実に取得し、すべての手順を実施する担当者が適切に訓練され、認定されていることを確認すること。
- 各動物について左右の眼球パラメータ(眼軸長および屈折異常)を測定する。
2. TGF-の調製β2つの溶液
注:すべての再構成および希釈操作は、認定されたバイオセーフティキャビネット内で、厳密な無菌技術を用いて行うこと。
- 凍結乾燥した組換えヒトTGF-βを再構成するβ滅菌済みの50%グリセロール(0.1%ウシ血清アルブミン(BSA)含有)2本を用いて、100を調製する µg/mLのストック溶液
- ステリールな平衡塩溶液(BSS)を用いて原液を連続希釈し、作業溶液を調製する。
- ラット群(500 pg投与量)の場合、原液を最終濃度250 ng/mL(250 pg/µL)は2のため µ眼あたり100 µLの注入量。
- マウスの用量反応コホート用に、250 ng/mL、375 ng/mL、および500 ng/mL(250、375、および500 pg/µL)は1に対して µ眼あたり100 µLの注入量。
- 1回使い切りの15 mL–20 µLのアリコートを滅菌済みマイクロ遠心チューブ中に採取し、液体窒素で急速凍結後、-20℃で保存する °C. 使用直前に、氷上ですばやく解凍する。
注意:液体窒素は重度の凍傷を引き起こす可能性があり、窒息の危険性もあります。機関の安全手順に従い、適切な低温用個人保護具(PPE)を着用し、換気の良好な場所で取り扱ってください。 - 同時に、滅菌BSSに50%グリセロールおよび0.1% BSAを同様の組成で添加して、ビークル対照溶液を調製する。
3. 球結膜下注射手技
- 動物を、3%のイソフルランを含む誘導チャンバーに入れる–4%のイソフルランを用いて麻酔導入を行う。その後、動物を1.5%のイソフルランを供給する鼻面体へ移す。–2%イソフルランを麻酔維持に使用。
注意:イソフルランは揮発性麻酔薬である。適切なガス回収装置を使用し、機関の職業衛生・安全手順に従って取り扱うこと。 - つま先のつまみ刺激に対する引き抜き反射が消失していることを確認し、適切な麻酔深度を確認する。
- 動物をうつぶせに光ファイバースポットライトの下に固定する。細頭マイクロフォースを用いて上眼瞼を優しく把持し、持ち上げてわずかに外反させ、瞼結膜および結膜穹窿を完全に露出させる。図1B).
- 10の予備湿潤を行う µL型ガラス製マイクロシリンジおよび33ゲージ針2本–3回、作業溶液でデッドスペースを除去する。目的の体積(2 µラットの場合はLまたは1 µL(マウス用)にし、すべての微小気泡を除去する。
注意:針およびその他の鋭利な器具は慎重に取り扱い、機関の規定に従って承認された鋭利物用容器に廃棄してください。 - 33Gの針をベベル面が上向き(ベベルアップ)になるように向きを合わせ、露出した瞼結膜面の所定の挿入部位をターゲットとする。図1B、C).
- 結膜上皮に浅い20度の角度で針先を挿入する°–30° 角度(図1C).
- 狭い粘膜下隙間を通じて、結膜穹窿部を越えて眼瞼結膜下領域へ向けて、そっと針を前進させる。図1C).
重要ステップ(回避すべき構造):下位のマイボーム腺に貫通したり、眼球のより深い構造を誤って穿孔したりしないように厳密に注意する。針の斜面が半透明の結膜表面の下で常に視認可能であることを確認し、前進中を通して照明下で適切な表層的な位置に針が留まっていることを視覚的に検証する。 - 5分間かけてゆっくりと溶液を注入する–10秒間保持した後、逆流を防ぐため、さらに5秒間針をそのままの状態で保持してから、ゆっくりと抜去する。
注:結膜下投与が適切に行われたことは、直ちに局所的な結膜の隆起と蒼白化(ブレブ形成)によって確認される。- しこぶが形成されない場合や著しい漏出が生じた場合は、下眼瞼結膜腔に再度1回注射を行い、実験記録にその逸脱を記載する。
注:再注射は1回のセッションで片眼につき1回までに厳密に制限すること。持続的な投与に失敗した動物は、縦断的解析から除外すること。
- しこぶが形成されない場合や著しい漏出が生じた場合は、下眼瞼結膜腔に再度1回注射を行い、実験記録にその逸脱を記載する。
- 同じ群の個体間でマイクロシリンジの内腔を消毒するには、滅菌した70%エタノールで3回、次に滅菌生理食塩水で5回フラッシングする。
- 33Gニードルの先端を拡大して点検する–5回の注入を行い、針の先端が鈍化または湾曲した場合は直ちに針を交換する。
- すべてのビークル対照群の動物を、処置群に操作または投与を行う前にまず投与することにより、薬理学的交叉汚染のリスクを排除する。処置群に移行する前に、シリンジの消毒手順を繰り返す。
- 各実験終了後、シリンジバレルおよびプランジャーを専用のマイクロシリンジ洗浄液で洗浄し、続いて超純水および無水エタノールで rinse した後、乾燥して保存する。
- 結膜下注射を週1回、連続3週間繰り返す(第0日、第7日、第14日)。基準値として、縦断的バイオメトリック評価をベースライン時(第0日、第7日、第14日)に実施する。 −1および0)および最終点(20日目および21日目)を、セクション4に詳述するように実施する。
- 注射後は、動物をペーパータオルを敷いた温かい回復ケージに入れる。胸臥位が完全に回復し、通常の歩行活動が再開されるまで、動物を継続的に観察する。
- 回収後は立体顕微鏡を用いて眼を検査し、眼内出血、角膜混濁、急性の機械的損傷を除外する。動物の苦痛や局所感染の兆候については、毎日観察を行う。
4. モデル検証手法
- 眼球の屈折異常評価
- マウスやラットを恒温制御された加熱パッドの上に置き、生理的な体温を維持して麻酔性白内障を予防する。動物は軽度のイソフルラン麻酔(1–1.5%)を鼻面体を通して投与し、麻酔の深さを一定に保つ。
- 両眼にマイドリンP(0.5%トロピカミドおよび0.5%フェニレフリン塩酸塩)をそれぞれ1滴点眼する–測定の15分前に点眼し、完全な調節麻痺および瞳孔散大を誘導する。
- 動物を腹臥位にし、間接的で弱い環境照明の下に配置する。角膜の透明性を維持するため、光学取得の直前まで連続的に滅菌BSSを投与する。
- 厳密な5分以内に、自動赤外線フォトレフラクトメーターを用いて眼球屈折を測定する–麻酔導入後10分間の時間枠内において。BNラットの場合は、取得中に散大した瞳孔を完全に露出させるために、まぶたを手動で優しく引き開けること。
- 眼ごとに3回の独立した光学的測定値を取得し、それらの平均値を算出して、基準値または最終時点の屈折誤差を決定する。
重要ステップ(所要時間 & (評価シークエンスの1日目(Day 1)にフォトレフラクションを実施する) –1日目はベースライン、20日目は最終評価日)の接触処置前に、薄暗い照明下で実施する。接触型超音波検査や音響ゲルの塗布後に光屈折検査を行うと、角膜光学系が著しく乱れ、赤外線が散乱されるため、自動屈折測定値は無効となる。
- 高周波Bスキャン超音波検査による眼軸長の測定
- 翌日(ベースライン測定の場合は第0日、またはエンドポイントの場合は第21日)、軽度のイソフルラン麻酔下で眼軸長を評価する(1–1.5%)を使用して、ラット組織の音響速度(1532)に較正された携帯型16MHz線形超音波プローブにより–1550 m/s
- B6マウス(角膜直接接触法)の場合:角膜に直接ジンポールカルボマー ゲル(0.2%)をベースライン保護層として塗布し、その上から標準的なアコースティック ゲルを重ね塗りする。
注意:空気の気泡が残らないようにし、角膜表面をゲル層が完全に覆っていることを確認すること。気泡は音響減衰を引き起こす。 - BNラット(経瞼的インターフェース)の場合:まぶたを閉じた状態で動物を固定し、外側のまぶた表面に超音波ゲルを塗布して、経瞼的に測定を行う。
注:眼瞼経由の測定法は角膜への直接的な接触を排除するため、大きな齧歯類の眼球における角膜擦過のリスクを著しく低減する。
- B6マウス(角膜直接接触法)の場合:角膜に直接ジンポールカルボマー ゲル(0.2%)をベースライン保護層として塗布し、その上から標準的なアコースティック ゲルを重ね塗りする。
- 超音波プローブを整列させ、眼前方界面から後部強膜エコー壁までの中央光学軸に沿って眼軸長を測定する。
- 眼あたり10回の独立した反復測定によるBスキャン波形を取得し、平均軸長を算出する。
- 手順終了後、残存するアコースティックゲルを眼から洗い流すため、直ちに滅菌BSSで眼を優しくすすぎ、術後の角膜刺激を予防する。
重要ステップ(無圧触接):超音波プローブをゲル界面に極めて軽い、圧力をかけない触接で置くこと。角膜頂点に物理的な下向きの圧力を加えると、前房深度が人工的に圧縮され、軸長の短縮誤差が生じる。 - 平均化された眼軸長および屈折誤差の測定値を、後続の解析のために記録する。
- 翌日(ベースライン測定の場合は第0日、またはエンドポイントの場合は第21日)、軽度のイソフルラン麻酔下で眼軸長を評価する(1–1.5%)を使用して、ラット組織の音響速度(1532)に較正された携帯型16MHz線形超音波プローブにより–1550 m/s
結果
結膜下注射モデルの確立および解剖学的検証
光学的なゴーグル装着や眼瞼縫合に伴う技術的なばらつきを解消するため、標的となる局所的な薬物リザーバーとして、眼瞼結膜と球結膜の間の結膜下腔を検証した(Figure 1A)。上眼瞼穹窿を介した解剖学的アプローチにより、眼表面の完全性を維持しつつ、標的部位への一貫した露出が可能となった(Figure 1B)。モデルの確立が成功したかは、特定の操作的およびバイオメトリックな基準によって確認した。これには、強膜穿孔、組織出血、またはマイボーム腺への損傷を伴わずに、標的とする眼瞼結膜下腔に局所的な液体充填粘膜下水腫(chemosis)が形成されたことを透過照明で直ちに確認すること(Figure 1C)、および、対照群と比較して21日目に近視性の屈折変化(Δ Refraction < −1.0 D)を伴う軸性長の伸長(Δ AL > 0.15 mm(マウス)、> 0.40 mm(ラット))が同時に起こっていることを経時的なバイオメトリック測定で検証することが含まれる。逆に、不成功または不十分な結果は、特定の技術的および生理的な不全モードによって識別した。針の抜去時の早期の液体逆流や、不注意な眼瞼・眼窩深部組織への貫通などの技術的失敗は、水腫形成が最小限または消失し、薬物保持が不十分となり、近視変化が誘導されない結果となった。持続的な漏出が見られた動物は記録し、プロトコルステップ3.8.1に従って除外した。さらに、針の誤挿入や過度な機械的牽引による眼表面の合併症は、局所的な結膜下出血や角膜外傷を引き起こし、混絡要因となる炎症反応を誘発した。また、用量反応評価において、閾値を超える濃度(例:マウスで500 pg/eye)を投与した場合、軸性長の伸長が抑制される減衰したU字型反応が観察され、厳格な用量最適化という生理学的必要性が強調された。これらの標準化された基準の下で検証された局所的な薬物保持により、その後のバイオメトリックおよび分子解析に向けた高精度な組織標的化が確保された。
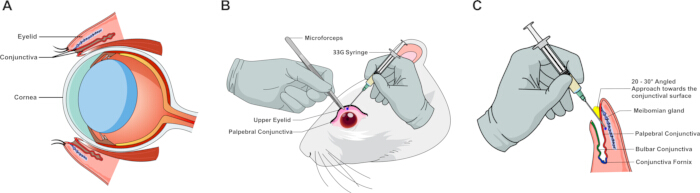
図1: げっ歯類における結膜下注射手技の解剖学的指標および概略図。(A>) まぶたと角膜、結膜嚢、および標的となる結膜下腔を含む、げっ歯類の眼の正中断面図。(B>) マイクロ鉗子を用いた組織の固定および眼瞼結膜の露出の外科的実演。青い点は、33ゲージのシリンジを用いたマイクロインジェクションの針挿入部位を示す。(C>) 眼瞼結膜表面、結膜穹窿、および下層の眼構造に対する針の方向と挿入経路を示す高倍率概略図。こちらのリンクをクリックして、この図の拡大版を表示してください。
ラットにおけるTGF-βアイソフォームのスクリーニングおよびマウスにおける軸性伸長に対するTGF-β2の用量反応滴定
実験は、用量スクリーニングコホート(図 2)および一次検証コホート(図 3)からなる連続した独立した実験コホートで実施した。各コホートにおいて両眼のパラメータを測定し、個々の動物(N)を一次生物学的反復とした。眼間の依存性(同一動物内の右眼対左眼)は、必要に応じて二元配置反復測定分散分析(two-way repeated-measures ANOVA)または混合効果モデルを用いて処理した。連続データは平均値 ± SDで示した。対照群と治療群の間の差は、必要に応じて、両側Studentのt検定、一元配置分散分析(one-way ANOVA)、または二元配置反復測定分散分析を用いて評価した。p値 < 0.05を統計的に有意とみなした。
最も強力なトランスフォーミング増殖因子-β(TGF-β)アイソフォームを決定し、軸性伸長を誘導するための最適な投与レジメンを確立するため、ベースライン(0日目)から21日目まで(図2)のラットおよびマウスコホートにおける反復結膜下注射の効果を評価した。麻酔によるアーティファクトを防止するため、2日間に分ける分割レジメンを用いてバイオメトリック測定を行った。
まず、3種類の組換えヒトTGF-βアイソフォーム(TGF-β1、TGF-β2、およびTGF-β3)を、500 pg/eyeの標準濃度でラットコホートにおいてスクリーニングした(図 2A)。一元配置分散分析(one-way ANOVA)およびその後のポストホック多重比較により、21日間の期間において、3つのアイソフォームすべてが溶媒投与コントロール群と比較して眼球後極の成長を有意に刺激したことが明らかになった。TGF-β1(0.444 ± 0.042 mm)とTGF-β3(0.454 ± 0.049 mm)はいずれも有意な眼軸長の延長を促進したが(コントロールの0.328 ± 0.071 mmに対し、それぞれp < 0.05およびp < 0.01)、TGF-β2が最大の眼軸長増加(0.486 ± 0.074 mm)を誘導し、最も高い統計的有意性(p < 0.001)を示したことから、近視表現型の最も効果的な誘導剤であることが確認された。
ラットでのスクリーニング結果に基づき、マウス群においてTGF-β2の用量反応タイトレーションを行い、250、375、および500 pg/eyeの3つの濃度を試験しました(図 2B)。結膜下へのTGF-β2投与は、逆U字型の用量反応プロファイルを示しました。最も低い用量(250 pg/eye)では、溶媒対照群と比較して眼軸長伸長の最も有意な加速が認められました(0.177 ± 0.038 mm 対 0.044 ± 0.011 mm;p < 0.0001)。より高い用量(375および500 pg/eye)では、眼軸長変化の程度は漸次的に減少しましたが、対照群よりは依然として有意に高い値を示しました(それぞれ0.123 ± 0.029 mm;p < 0.001、および0.095 ± 0.024 mm;p < 0.01)。
以上のデータにより、ラットでは1眼あたり 500 pg、マウスでは1眼あたり 250 pg を週1回結膜下投与する投与計画が、その後の構造的および分子的な調査における最適パラメータであることが確立されました。
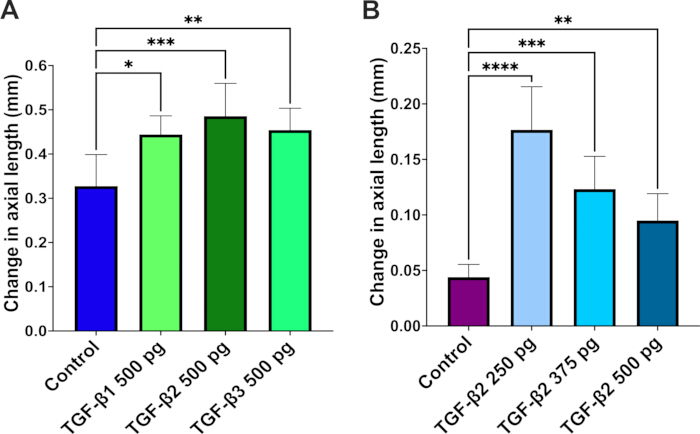
図 2: ラットおよびマウスの眼における眼軸長に対するトランスフォーミング増殖因子-β (TGF-β) アイソフォームおよび濃度の用量選択スクリーニング。 (A) ラット(初期スクリーニングコホート)における眼軸長の変化。TGF-β1、TGF-β2、またはTGF-β3(0日、7日、14日に500 pg/eyeを投与)を3回連続で結膜下注射した後、ベースライン(0日目、初回注射前)と最終エンドポイント(21日目)の差として算出し、溶媒投与コントロール群と比較した。 (B) マウス(用量スクリーニングコホート)における眼軸長の変化。3つの異なる濃度(0日、7日、14日に250、375、または500 pg/eyeを投与)のTGF-β2を3回連続で結膜下注射した後、ベースライン(0日目)と21日目の差として算出し、溶媒投与コントロール群と比較した。データは平均値 ± SDで示されている(N = 5匹/群、1群あたり10眼に相当)。統計学的有意性は、一元配置分散分析 (one-way ANOVA) に続き、ポストホック多重比較法により評価した。*p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001 は溶媒コントロール群に対する値である。 こちらのリンクをクリックして、この図の拡大版を表示してください。
ラットおよびマウスにおける反復的な結膜下TGF-β2注射は、眼軸長の延長と近視化を誘導する
反復的な結膜下TGF-β2投与(週1回、計3回注射)が生体計測に及ぼす影響を評価するため、ラットおよびマウスの両モデルにおいて、ベースラインから3週目までの眼軸長および屈折異常の経時的変化をモニタリングした(図3)。2日間に分けたプロトコル(20日目に屈折状態を測定し、翌21日目にBモード超音波検査を実施)により、麻酔によるアーティファクトや眼へのストレスの可能性を最小限に抑えた。両種において、この多回投与レジメン後、実験的近視の発症と一致する表現型的な変化が認められた。
ラットコホートにおいて、TGF-β2を500 pg/眼で繰り返し結膜下注射した動物は、溶媒対照群と比較して、21日間の期間における眼軸長の増加が有意に大きかった(0.466 ± 0.045 mm 対 0.388 ± 0.032 mm; p < 0.01; Figure 3A)。この伸長に伴い、屈折誤差に有意な近視化が認められた(p < 0.05; Figure 3B)。溶媒対照群の眼では予想通りのわずかな遠視方向へのドリフト(+0.31 ± 0.93 D)が見られたのに対し、TGF-β2投与群の眼は近視の屈折状態(−1.38 ± 0.91 D)へと移行した。
ラットのデータと同様に、250 pg/eyeのTGF-β2で処理したマウスにおいても、明確な構造的および屈折的な変化が認められた。TGF-β2処理マウスでは、溶媒対照群と比較して眼軸長が有意に伸長した(0.197 ± 0.012 mm 対 0.110 ± 0.014 mm; p < 0.0001; Figure 3C)。さらに、この構造的な伸長により有意な近視化が引き起こされ(p < 0.05; Figure 3D)、対照マウスで見られた自然な遠視屈折(+2.25 ± 1.77 D)が、近視プロファイル(−1.58 ± 0.63 D)へと効果的に反転した。
眼球間の反応の対称性を検証し、両眼の測定値を統合しても統計的なバイアスが生じないことを確認するため、各群において左眼(OS, n = 5)と右眼(OD, n = 5)の眼軸延長ダイナミクスを個別に評価した(Supplementary Figure 1)。ラット(Supplementary Figure 1A)およびマウス(Supplementary Figure 1B)のいずれにおいても、ビークル対照群またはTGF-β2処置群のいずれのコホート内でも、OSとODの間で統計的に有意な差は見られず、眼球間で対称的な反応ダイナミクスが確認された。さらに、TGF-β2処置動物のOSおよびODの両眼において、対応するビークル対照群と比較して一貫した強力な眼軸延長が認められた(ラットでp < 0.05、マウスでp < 0.0001)。この結果は、主要なバイオメトリック分析において両眼の測定値を考慮することの妥当性を裏付けるものである。
総合的に、これらの知見は、TGF-β2の反復的な結膜下投与が、両方のげっ歯類モデルにおいて眼球後極の成長およびそれに伴う近視性屈折変化を効果的に誘導することを実証している(図3 および付録図1)。
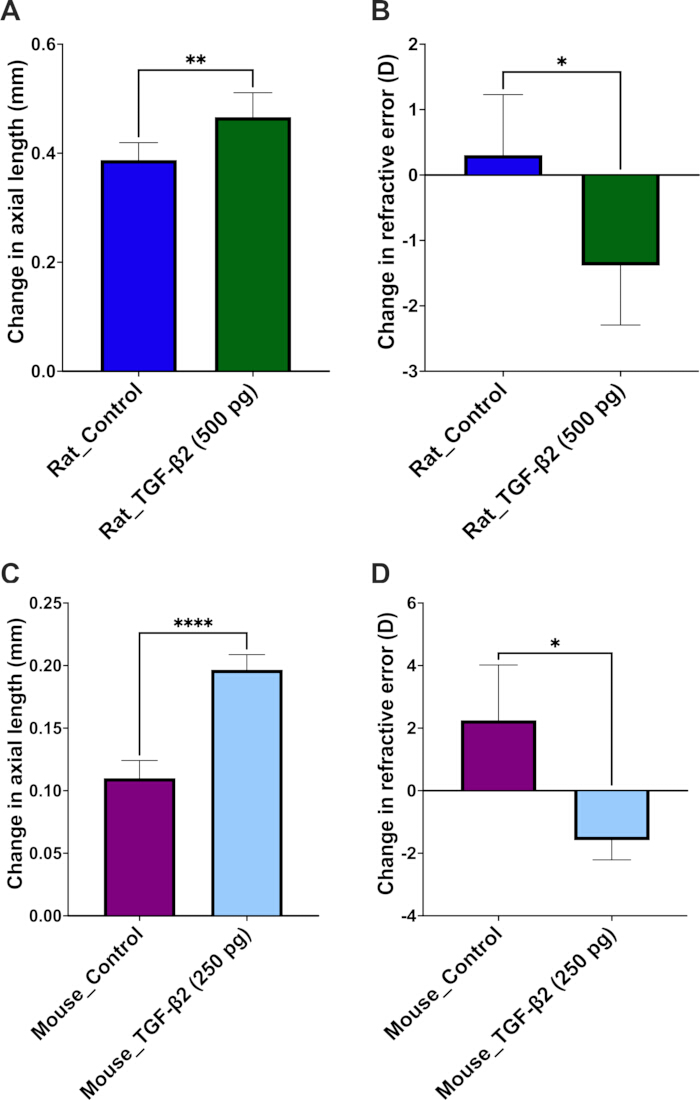
図3: TGF-βの一次バリデーションβ独立したラットおよびマウスのコホートにおける、眼軸長延長および屈折異常への2つの影響。 (Aラットにおける眼軸長の変動(結膜下TGF-βを投与した眼における、ベースラインと第3週の最終エンドポイントとの差として算出)β2 (0日目、7日目、14日目に、1眼あたり500 pgを順次投与) またはビークル対照。 (B同一ラット眼における屈折誤差の変化。TGF-において有意な近視化が示されている。βビークル対照群と比較した2処置群。C) マウスにおける眼軸長の変化(独立した一次検証コホート)。TGF-βを結膜下投与した眼において、ベースラインと第3週の最終エンドポイントとの差として算出した。β2(0日目、7日目、14日目に1眼あたり250 pgを投与)またはビークル対照。D) 同一マウス眼における屈折度数の変化。最適なTGF-β条件下で、対応する負のジオプトリーシフト(近視化)が認められた。β2 誘導。データは平均値として提示されている。 ± SD (N =5匹/群(1群あたり10眼に相当)。統計学的有意性は、非ペアの両側検定を用いて厳格に評価した。 t-試験;*p < 0.05, **p < 0.01, ****p < 対応するビヒクル対照群に対して0.0001。 この図の拡大版を表示するには、ここをクリックしてください。
結膜下TGF-β2投与は、実験的近視の進行過程において強膜のMMP2発現を上昇させる
網膜-強膜軸に沿った下流の組織リモデリングを評価するため、結膜下TGF-β2投与後の強膜横断面におけるマトリックスメタロプロテアーゼ2(MMP2)の発現を評価した(図4)。ラットモデルの後眼切片の定量的免疫蛍光解析により、TGF-β2投与群(500 pg/眼)では、対照群と比較して21日目に強膜実質内でのMMP2タンパク質レベルが有意に上昇していることが示された(p < 0.0001; 図4A, B)。
網膜色素上皮(RPE)および脈絡膜層の下にある強膜マトリックス全体に顕著なMMP2の蛍光シグナルが局在しており、実験的近視の発現過程において、眼球外層でMMP2に関連した細胞外マトリックス(ECM)のリモデリングが局所的に起こっていることが確認された。強膜におけるこれらの構造変化を受け、隣接する網膜内での上流の分子変化についてさらなる検討を行った。
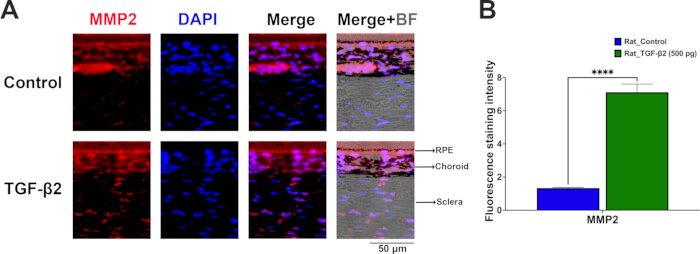
図4結膜下TGF-β2の投与により、ラット強膜におけるMMP2の発現が上昇する。 (A) 担体対照群およびTGF-β投与群における強膜のMMP2発現(赤色)を示す眼球後部の横断面の代表的な免疫蛍光画像β21日目の2処理(眼あたり500 pg)ラット。細胞核はDAPI(青)で対比染色した。明視野重ね合わせ(Merge+BF)により、網膜色素上皮(RPE)、脈絡膜、および強膜の解剖学的境界を記述している。スケールバー = 50 µm. (B蛍光染色の強度を定量的に解析し、TGF-βによって強膜のMMP2発現が有意に増加することを確認した。β2処理したラットの眼。データは平均値として提示されている。 ± SD(各群 N = 3の独立した生物学的反復、1動物あたり1眼)。統計学的有意性は、非対応の両側検定を用いて評価した。 t-テスト; ****p < ビークル対照群に対して0.0001。略語:RPE、網膜色素上皮;BF、明視野。 この図の拡大版を表示するには、ここをクリックしてください。
TGF-β2の誘導により、ラットおよびマウスの網膜においてMMP2およびインフラマソーム関連タンパク質がアップレギュレートされる
反復的な結膜下注射によって誘導される下流の分子変化を調査するため、21日目におけるBrown NorwayラットおよびC57BL/6マウスの眼球後極切片の免疫蛍光染色を実施した(図 5A–D)。一貫した空間的方向性を確保するため、すべての評価は視神経乳頭に厳密に沿った網膜の矢状切片を用いて行った。定量分析の結果、週1回のTGF-β2投与により、対照群(vehicle)と比較して、両種の網膜層における特定のタンパク質発現プロファイルが有意に変化したことが明らかになった(図 5E,F)。
ラットモデルにおいて、500 pg/eyeのTGF-β2を投与したところ、網膜のTGF-β2レベルが有意に上昇しました(p < 0.0001; Figure 5A,E)。このアップレギュレーションに伴い、マトリックスメタロプロテイナーゼ2(MMP2)の発現も上昇し(p < 0.0001; Figure 5B,E)、細胞外マトリックスの能動的なリモデリングが示されました。さらに、TGF-β2処理によって網膜の炎症カスケードが活性化され、インフラマソームセンサーであるNLRP3(p < 0.0001; Figure 5C,E)および前炎症性サイトカインであるIL-1β(p < 0.0001; Figure 5D,E)のアップレギュレーションが認められました。
同様に、250 pg/eyeのTGF-β2を投与したマウスにおいて、これらのバイオマーカーに一貫した上昇傾向が認められました(図5F)。網膜におけるTGF-β2(p < 0.01; 図5A,F)およびMMP2(p < 0.001; 図5B,F)の発現は有意に上昇していました。また、マウスの網膜ではインフラマソーム経路も活性化しており、NLRP3の発現が有意に増加し(p < 0.01; 図5C,F)、対照群ではほぼ検出不能であったベースラインレベルと比較して、IL-1βの顕著なアップレギュレーションが認められました(p < 0.0001; 図5D,F)。
以上の結果から、結膜下へのTGF-β2投与が、両齧歯類において網膜のMMP2介在性マトリックス再構築ドライバーを促進し、後方網膜におけるNLRP3/IL-1βインフラマソーム経路を活性化することが示されました。
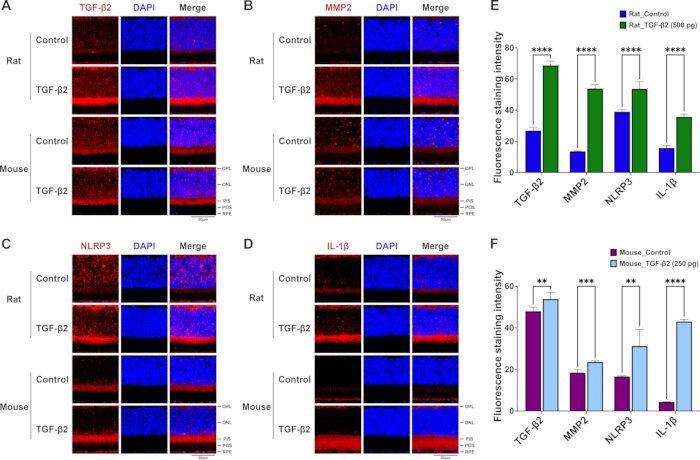
図 5: ラットおよびマウスの後部網膜において、反復的な結膜下 TGF-β2 投与が MMP2 およびインフラマソーム関連タンパク質の発現を上昇させる。 (A–D) ラット(上段)およびマウス(下段)の対照群と TGF-β2 投与群における網膜矢状断の代表的な免疫蛍光画像。染色対象は (A) TGF-β2、(B) MMP2、(C) NLRP3、および (D) IL-1β(赤)であり、核を DAPI(青)で対比染色した。スケールバー = 50 µm。代表的な視野では、外網膜層内の変化を選択的に示しており、外網状層(OPL)から基底網膜色素上皮(RPE)複合体にわたる顕著なタンパク質発現を強調している。(E) 対照群および TGF-β2 投与群(500 pg)のラット網膜における TGF-β2、MMP2、NLRP3、および IL-1β の蛍光染色強度の定量化。(F) 対照群および TGF-β2 投与群(250 pg)のマウス網膜における TGF-β2、MMP2、NLRP3、および IL-1β の蛍光染色強度の定量化。データは平均値 ± SD(1群あたり N = 3 の独立した生物学的反復、1動物あたり1眼)で示している。統計学的有意性は、非ペアの2検定(two-tailed t-test)を用いて厳密に評価した。**p < 0.01, ***p < 0.001, ****p < 0.0001(それぞれの溶媒対照群と比較)。略語:OPL、外網状層;ONL、外核層;PIS、視細胞内節;POS、視細胞外節;RPE、網膜色素上皮。 この図の拡大版を表示するには、ここをクリックしてください。
補完図1:結膜下TGF-β2投与後の眼間対称性および両眼データの統合評価。(A) 車両対照群または両眼結膜下TGF-β2(500 pg/眼)投与群のラットにおける、左眼(OS, n = 5)と右眼(OD, n = 5)の眼軸長変化の比較分析。(B) 車両対照群または両眼TGF-β2投与(250 pg/眼)群のマウスにおける、OS(n = 5)とOD(n = 5)の対応する眼間比較。統計検定の結果、同一治療コホート内においてOSとODの間に有意差は認められず、両眼の測定データを統合しても眼間のバイアスは導入されないことが検証された。同時に、TGF-β2投与動物のOSおよびODの両眼において、それぞれの車両対照群と比較して有意な眼軸延長が認められた。データは平均値 ± SDとして提示(1群あたりN = 5匹、すなわち1群あたり5つのOSおよび5つのOD眼に相当)。統計的有意性は、二元配置反復測定ANOVAおよびその後のSidakのポストホック検定を用いて評価した。*p < 0.05, ****p < 0.0001(対応する車両対照群と比較)。略語:OS, oculus sinister(左眼);OD, oculus dexter(右眼)。 こちらをクリックしてファイルをダウンロードしてください。
補足図2:結膜下TGF-β投与後の網膜構造の整合性および電気生理学的機能に関する安全性評価β2 管理 (A) 代表的なヘマトキシリン・エオシン(H&コントロール群およびTGF-β処理群の、(#38;E)-染色した網膜矢状断切片βDay 21における投与マウス(250 pg/眼)およびラット(500 pg/眼)において、種を越えて網膜層構造が維持されていることが示されている(N = 各群3つの独立した生物学的反復)。スケールバー = 20 µm. (B21日目にマウスから記録した代表的な暗所網膜電図(ERG)波形。溶媒対照眼(灰色線)とTGF-βを比較している。β2処理群の眼(赤線)。a波およびb波の応答ダイナミクスが同等であることは、網膜の光応答性が維持されており、電気生理学的に安全であることを裏付けている(各群N = 3匹のマウス、計6眼に相当)。略語:GCL、神経節細胞層;INL、内顆粒層;ONL、外顆粒層。 こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
本研究における顕著な発見は、TGF-βにより誘導される非線形の逆U字型の用量反応プロファイルであるβマウス群では、最も低い投与用量(250 pg/眼)が最も顕著な軸性伸長を誘導した図2B)。この二相性の現象は、TGF-を含む多くの強力なサイトカインシグナル伝達経路に共通する特徴であるβ スーパーファミリー29,30. 外因性TGF-の濃度が高すぎるとβ2は受容体の飽和を引き起こすか、または細胞内での負のフィードバックループを誘発する可能性がある—阻害性SMADファミリー構成員7(Smad7)の発現上昇や受容体媒介性エンドサイトーシスなど—これにより、下流の生物学的応答が減弱する31,32免疫蛍光データはこの薬理学的ウインドウをさらに裏付けている。マウスでは250 pg、ラットでは500 pgの用量により、網膜におけるTGF-βのレベルが中程度上昇したが、β2の保持を妨げると同時に、強力な下流の炎症カスケードを引き起こした(図5F)。これは、最適化された低用量の閾値が極めて感受性の高い生理的ウィンドウ内に存在し、リガンド誘導性の感作低下や局所的な抑制を回避しつつ、標的組織における効果を最大限に高めていることを示唆している。33したがって、これらの知見は、化学誘導性近視の再現性のある齧歯類モデルを確立する際に、厳密な用量滴定が必要であることを強調している。
従来の形態剥奪近視(FDM)モデルや遠視性離焦レンズ誘導近視(LIM)モデルと比較して—カスタムハードウェアを必要とし、レンズのずれやグルーミングによる脱落、角膜合併症が生じやすい—結膜下投与法は、直接的な薬理学的制御が可能であり、機器費用が最小限に抑えられる。13,34. これまでの研究と一致して、眼周囲投与は強膜および網膜のTGF-β シグナル伝達35これらのデータは、前部の結膜下にTGFを投与した後に後部眼底で生じる生物学的反応を示している。β2回投与(図4 および 図5)。この効率的な後眼部への標的化は、小型げっ歯類特有の眼瞼および眼内流体動態に起因している。げっ歯類の眼の軸長が短いため(マウスで約3 mm、ラットで約6 mm)、結膜下投与は比較的広範な強膜上領域に薬剤を供給することになる。強膜の高い透過性とTenon膜下腔の解剖学的な連続性により、投与された製剤は強膜および脈絡膜を通過して後極部へと拡散する可能性がある。重要なことに、この投与経路は、小型げっ歯類において深部後方Tenon膜下または硝子体内注射に伴う眼球穿孔や視神経損傷といった重篤なリスクを回避しつつ、後眼部組織における生物学的効果と関連している。この手法は、頭部装着型レンズによる機械的および行動学的干渉を回避することができる。13,36、および硝子体注射に伴う網膜剥離や硝子体炎のリスクが十分に文書化されていること37,38さらに、生体計測を2回の短時間セッションに分けることで、従来の単一セッション方式を改善できる。長時間の麻酔曝露は頻繁に眼の障害を引き起こす—マウスにおける麻酔性白内障やラットにおける自発的眼瞼閉鎖など—屈折および軸長測定の精度を損なう39,40.屈折誤差を分離することにより(日数 –1および20日目)および眼軸長(0および21日目)の評価において、本プロトコルは、累積的な眼へのストレスを最小限に抑え、一貫した画像取得条件を維持するように設計されており、これにより実験内の変動性を低減できる可能性がある。全身性の交差汚染に起因する潜在的な交絡因子をさらに排除するために—全身性の血管吸収やリンパ管輸送による非標的組織への影響など—対側の交感神経反応も評価するため、厳密な被験者間デザインを採用した。両側に車両対照または両側に活性型rhTGF-β個体ごとの左右の眼内での差を2以内に保つことで、このパラダイムは眼間汚染を防ぎつつ、信頼性の高い薬理学的評価を保証する。一貫して、対となった左右の眼について個別に生体計測分析を行った結果、高い眼間対称性が確認され、治療群間で左右のデータを統合しても、統計的あるいは生理学的なバイアスは生じないことが検証された(補足図1).
この齧歯類モデルは、TGF-β2–著者らの先行研究で明らかにされた、炎症およびマトリックスリモデリングを駆動する軸 ツリーハクビシンおよびブラウン・ノルウェー・ラットにおいて21,41. 著者らの以前の研究により、外部からのTGF-β またはTGF-β2 増強された眼内炎症—NF-κBを介して特異的にκB細胞およびIL-1β 活性化—MMP2の発現を上昇させ、強膜のコラーゲンIを減少させ、軸性伸長を促進する一方で42,43逆に、補体分解促進因子(CD55)を介して補体およびインフラマソーム活性を抑制すると、局所的な炎症および近視の進行の両方が抑制された。41,44同様の慢性炎症サインは、MMP2の活性化の上昇およびそれに続くコラーゲンIの喪失によって特徴づけられ、古典的な形態剥奪モデルおよび病的近視の患者においても明確に認められる。42,43,45,46重要なことに、TGF-βは、すべての組織で均一に作用する孤立した普遍的な主要誘導因子として機能するのではなく、β (特にTGF-)β2アイソフォーム)は、状況依存的なシグナル伝達の中継点として機能する。これは、初期段階の網膜/網膜色素上皮(RPE)における炎症性シグナル伝達を連結する—NLRP3インフラマソームおよび補体活性化を介して特異的に—後流の強膜細胞外マトリックス(ECM)への作用21,41この時空間的遷移を認識することは、TGFに関する文献上の見かけ上の矛盾を解決するβ 発現は、網膜/RPEにおける初期の局所的な炎症増幅から、後期のMMPを介した強膜のマトリックス分解へとその動態が変化するため47,48。具体的には、強膜ECMの分解という構造的な過程が最終的に眼球の物理的な伸長を決定づける一方で(図4)、分子的知見は、外層網膜および網色素上皮(RPE)が主要な上流シグナル発生源であることを示している(図5)。ここで、本研究ではこれらのマーカーの生体内における空間的分布および層特異的な発現上昇をマッピングするために定量化免疫蛍光法(IF)のみを用いたが、網膜におけるリン酸化核内因子カッパB(p-NF-κB)の全体的な遺伝子およびタンパク質動態(それぞれRT-qPCRおよびウエスタンブロット法により評価)についても検討した。κB)/IL-1β腫瘍壊死因子α(TNF-α)/NLRP3 カスケードは、同一の TGF-βこれまでの研究で、著者らによって2つの誘導パラダイムが独立に確立されている46,49. 球結膜下TGF-β2はNLRP3/IL-1を活性化するβ–網膜/RPE内におけるMMP2カスケードは、網脈絡膜強膜軸に沿って伝播し、下流の強膜におけるMMP2発現およびマトリックスリモデリングを誘導する。これらの類似性は、軽度の炎症およびMMPを介した強膜細胞外マトリックス(ECM)のリモデリングが、眼の急速な成長において中心的な役割を果たしていることを強く支持している。
これらの手順上の利点がある一方で、本プロトコルにはいくつかの制限点が存在し、検討に値する。第一に、本手法は外因性サイトカインの投与によって駆動される純粋な薬理学的モデルであるため、従来の形態剥奪近視(FDM)やレンズ誘導性近視(LIM)モデルに特徴的な、光学的非焦点および網膜から強膜への光信号伝達経路を回避している。16,50したがって、下流の生化学的カスケードを標的とするには極めて適しているが—特に炎症性MMP2リモデリング軸—上流の視覚処理や光学的操作を研究するモデルを補完するものであり、それらを置き換えるものではない51第二に、結膜下注射は全身性の毒性や硝子体内投与に伴うリスクを回避できるものの、週1回、3週間にわたる反復的な微小注射が必要となるため、一時的ではあるが局所的な機械的攪乱および短時間の麻酔薬暴露が生じる。これらの影響は、厳密な手技が行われない場合、眼球表面の恒常性にわずかに影響を及ぼす可能性がある。38,52.この経路による実験性近視の再現性ある誘導は、結膜下投与時の正確な技術的実行に大きく依存している。成功の主な技術的要因は、眼瞼結膜下に浅い斜面をなして正確に挿入し、局所的で明確に境界の定まった粘膜下水疱(化学性浮腫)を形成することである。即時の透過照明による確認により、液体が組織面内に留まり、不意の強膜穿孔、深部眼窩への液漏れ、または微小血管の裂傷を防ぐことができる。注射後の液体の逆流や能動的な漏出を防ぐためには—効果的な薬理学的投与を損なう一般的な故障モード—投与後は、マイクロニードルを5秒間その場に留め、その後、視覚的に制御しながらゆっくりと一定の速度で引き抜くこと。引き抜き時に即時逆流、十分でないブレブ高さ、または偶発的な組織内出血が生じた場合には、あらかじめ設定された基準に従って動物を記録し除外することで、混同要因となる変動を回避すべきである。これらの厳格な技術的基準を遵守することで、高い再現性をもった標的部位への後眼部薬物保持が可能となり、眼表面への損傷を最小限に抑えることができる。さらに、げっ歯類モデルにおける絶対的な屈折状態(マウスで-1.58 D、ラットで-1.38 D)は、その高い基礎屈折力と比較すると控えめに見えるかもしれないが、対照群(ビークル投与群)に対する正味の近視化シフトは有意に大きい(マウスで+3.83 D、ラットで+1.69 D;いずれもp<0.05)。 < 0.05)であり、両種にわたり、構造的な軸性伸展および下流の強膜MMP2の発現上昇と厳密に一致していた。重要なことに、安全性および生理的耐容性の評価から、この低用量の結膜下投与法は非細胞毒性であることが確認された。組織学的横断面(H&E)は、マウスおよびラットの両方において良好に保存された網膜層構造を示したのに対し、21日目の暗順応電気視覚検査(ERG)では、潜時遅延や振幅低下を伴わずに、a波およびb波の応答が保たれていることが確認された(補足図2)、局所的なTGF-ββ2回目の投与は、構造的な網膜症や電気生理学的障害を引き起こすことなく、標的化された軸性伸長を誘導する。第三に、3週目におけるエンドポイント評価では、急性から亜急性の炎症反応およびマトリックスのリモデリングが捉えられているが、これらの形質的変化が治療後も持続するか、あるいは洗い出し後に回復動態を示すかについては、長期的研究が必要である。41,53最後に、外来性TGF-の薬物動態および眼組織への浸透に関する直接的な解析はβ2は本モデル検証研究の範囲外であるが、著者らの以前の研究で明らかにされた特異的な網膜/色素上皮(RPE)分子活性化に加え、安定かつ一貫したバイオメトリックの変化(眼軸長の延長および屈折異常の変化)46,49、後眼部の構造において効果的な生物学的機能を支持する。今後の研究では、さらなるタンパク質発現プロファイリング(例:ウエスタンブロット法)、RT-qPCR、または蛍光標識TGF-β2の追跡は、その正確な組織分布および除去動態をさらに明確にするだろう。これらの限界を認識することは、研究者が適切な治療スクリーニングおよび機構的検証のためにこのモデルを選択する際の指針となる。
結膜下のTGF-β投与がβ2はNLRP3/IL-1を活性化するβ–MMP2軸がブラウン・ノルウェー ratおよびC57BL/6マウスの外層網膜および網膜色素上皮(RPE)に存在することから、本プロトコルは薬理学的に定義された枠組みを提供し、これらの炎症性およびマトリックスリモデリング経路が齧歯類種にわたり保存されていることを検証する。その結果、TGF-β2–誘導モデルは、軸性伸長の誘導を標準化し、網膜-強膜シグナル伝達カスケードを解析し、TGF-βを標的とする前臨床的介入をスクリーニングするための信頼性の高いプラットフォームとなる。β2、補体成分、インフラマソーム、またはMMP2。
開示事項
著者らに本研究に関連して開示すべき事項や利益相反はありません。原稿作成における英文法および構文の推敲のみにAI支援言語ツールを利用しました。データの取得、画像処理、定量分析、または図の作成に生成AIツールは使用していません。
謝辞
Experiments and data analysis were performed in part through the use of the Medical Research Core Facilities, Office of Research & Development, at China Medical University, Taichung, Taiwan, R.O.C. The authors sincerely thank the National Center for Biomodels (NCB, NIAR, Taiwan) and BioLASCO Taiwan Co., Ltd. for their exceptional technical support in contract breeding and animal supply services. Additionally, the schematic architecture and microsurgical procedures illustrated in Figure 1 were designed and custom-tailored using high-resolution vector assets from Mind the Graph (mindthegraph.com, Premium License) and were professionally compiled and refined utilizing Affinity Designer (Serif Europe Ltd.). Research funding was provided in part by the National Science and Technology Council, Taiwan, R.O.C. (NSTC-112-2314-B-039-029; 115-2320-B-039-056), China Medical University Hospital, Taichung, Taiwan (DMR-114-091; DMR-115-117), and China Medical University, Taichung, Taiwan (CMU114-MF-78; CMU-114-ASIA-10). The funders had no role in the study design, data collection and analysis, the decision to publish, or preparation of the manuscript. The sponsor or funding organization had no role in the design or conduct of this research.
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 自動赤外線フォトリフラクタ | StriaTech GmbH (Tüビンゲン、ドイツ) | ST-PR.01 | マウス/ラット種特異的なプリセットを用いて |
| 平衡塩溶液 (BSS) | Alcon Laboratories, Inc. (米国フォートワース) | 該当なし | 滅菌眼内灌流液 |
| ウシ血清アルブミン (BSA) | Sigma-Aldrich (米国ミズーリ州セントルイス) | A3059 | 凍結乾燥粉末、0.1% 分画 V |
| Brown Norway (BN) ラット | BioLASCO Taiwan Co., Ltd. および/または国立バイオモデルセンター | ブラウンノルウェーラット | |
| C57BL/6 (B6) マウス | BioLASCO Taiwan Co., Ltd. および/または国立バイオモデルセンター | 動物実験センター 動物実験施設 動物実験センターは、実験動物の供給、管理、および研究者に適切な動物実験環境を提供することを目的として設置されています。本センターでは、動物福祉の原則に基づき、動物実験の3R(代替、削減、精緻化)を推進し、倫理的な研究遂行を支援しています。 主要サービス ・実験動物の供給および管理 ・飼育環境の維持管理(温度、湿度、換気、照明の制御) ・動物実験技術の指導およびサポート ・施設利用の申請および承認手続きの管理 利用規定 本施設を利用する全ての研究者は、動物実験委員会の承認を得た計画書に従って実験を行う必要があります。また、施設内の安全管理および衛生管理規定を厳守し、動物への苦痛を最小限に抑える措置を講じなければなりません。 施設設備 ・SPF(特定病原体未導入)飼育室 ・手術室および処置室 ・検体採取・解析室 ・飼料および敷材保管庫 お問い合わせ 動物実験センター事務局までご連絡ください。&nid=3&ページ=0&タイプ=1 | |
| DAPI溶液 (1 mg/mL) | Thermo Scientific (Thermo Fisher Scientific, アメリカ合衆国ウォルサム) | 62248 | 免疫蛍光染色には、1:500の作動希釈倍率で使用した。 |
| 無水エタノール (≥99.5%) | J.T.Baker (Avantor Performance Materials, ラドナー, 米国) | 該当なし | 試薬グレード、洗浄用 75%、20%–脱水用100% |
| Fiber-Lite 照明装置 (150W, デュアルグースネック) | Stoelting Co. (米国ウッドデール) | 該当なし | 高輝度光源 |
| 極細マイクロピンセット | Stephens Instruments (米国レキシントン) | S5-1375 | 直線型、鋸歯状、ガイドピン付き |
| ギンポル眼科用ゲル | Winston Medical Supply Co., Ltd. (台湾、台南) | 該当なし | カルボマー 0.2%、角膜保護 |
| グリセロール(分子生物学、 ≥99.0%) | Sigma-Aldrich (米国セントルイス) | G5516 | 試薬グレード、50%使用マトリックス |
| ヤギ抗ウサギIgG (H+L) 二次抗体、Alexa Fluor Plus 555 | Invitrogen (Thermo Fisher Scientific, Waltham, USA) | A32732 | 免疫蛍光染色において、1:800の希釈倍率で使用した。 |
| 携帯型多種適用網膜電図システム (HMSERG) | OcuScience (米国ヘンダーソン) | Model 2000 (HMsERG-2000)、ERGViewソフトウェア搭載のげっ歯類用全視野フラッシュERGシステム。 | |
| ハートマン′固定液(デイビッドソン固定液) | Sigma-Aldrich (米国ミズーリ州セントルイス) | H0290 | 眼球ジオメトリのための迅速固定カクテル |
| 高周波超音波プローブ | ASUSTeK Computer Inc. (台湾、台北) | LU710LH | 携帯型、周波数16 MHz |
| マイクロインジェクション針 (33-G) | Hamilton Company (米国リノ) | 7803-05 | ポイントスタイル4、浅いベベル角 |
| マイクロインジェクションシリンジ (10 µL) | Hamilton Company (米国リノ) | 80014 (#1701) | 気密式マイクロリットルシリンジ |
| マイドリン-P点眼液 | 参天製薬株式会社(日本、大阪) | 該当なし | 0.5% トロピカミド / 0.5% フェニレフリン |
| 正常ヤギ血清 | Jackson ImmunoResearch Laboratories, Inc. (米国ウェストグローブ) | 005-000-121 | 免疫蛍光染色用の10%ブロッキング液として使用。 |
| フォトリフラクターデータ収集ソフトウェア | StriaTech GmbH (Tüビンゲン、ドイツ) | 該当なし | 自動化平均球等価処理 |
| ウサギ抗IL1βモノクローナル抗体 (HL1421) | GeneTex, Inc. (米国アーバイン) | GTX636887 | 免疫蛍光染色において、1:500の希釈倍率で使用した。 |
| ウサギ抗MMP2ポリクローナル抗体 | GeneTex, Inc. (アメリカ合衆国、アーバイン) | GTX104577 | 免疫蛍光染色のために、1:500の希釈倍率で使用した。 |
| ウサギ抗NLRP3ポリクローナル抗体 | Abcam (英国ケンブリッジ) | ab214185 | 免疫蛍光染色において1:400の希釈倍率で使用した。 |
| ウサギ抗TGF-beta 2ポリクローナル抗体 | AbboMax, Inc. (米国サンノゼ) | 500-3784 | 免疫蛍光染色において、1:250の希釈倍率で使用した。 |
| リコンビナントヒトTGF-β1 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-21 | 凍結乾燥粉末、高純度 |
| 組換えヒトTGF-β2 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-35 | 凍結乾燥粉末、高純度 |
| 組換えヒトTGF-β3 | PeproTech (Thermo Fisher Scientific, 米国クランベリー) | 100-36 | 凍結乾燥粉末、高純度 |
| 滅菌済みAquasonic 100超音波ジェルの | Parker Laboratories, Inc. (米国フェアフィールド) | 該当なし | 標準音響結合マトリクス |
| 超音波イメージングソフトウェア | ASUSTeK Computer Inc. (台湾、台北) | 該当なし | ライブBスキャン可視化およびキャリパー用 |
参考文献
- Holden BA, et al. Myopia: a growing global problem with sight-threatening complications. Community eye health. 2015;28(90):35.
- Holden BA, et al. Global prevalence of myopia and high myopia and temporal trends from 2000 through 2050. Ophthalmology. 2016;123(5):1036-42.
- McMonnies CW. An examination of the relation between intraocular pressure, fundal stretching, and myopic pathology. Clinical and Experimental Optometry. 2016;99(2):113-9.
- Fledelius HC. Myopia and significant visual impairment: global aspects [Presentation]. Presented at: 7th International Conference on Myopia; Taipei, Taiwan; 1998.
- Park SC, Liebmann JM, Ritch R. Glaucoma in myopia. Pathologic Myopia: Springer; 2013. p. 283-92.
- Gale J, Ikuno Y. Ii. B. Myopic Vitreopathy. Vitreous: In Health and Disease: Springer; 2014. p. 113-29.
- Saw SM, Gazzard G, Shih-Yen EC, Chua WH. Myopia and associated pathological complications. Ophthalmic and Physiological Optics. 2005;25(5):381-91.
- Tkatchenko TV, Shen Y, Tkatchenko AV. Mouse Experimental Myopia Has Features of Primate Myopia. Investigative Ophthalmology & Visual Science. 2010;51(3):1297-303.
- Morgan IG, Ashby RS, Nickla DL. Form deprivation and lens-induced myopia: are they different? Ophthalmic Physiol Opt. 2013;33(3):355-61.
- Barathi VA, Boopathi VG, Yap EP, Beuerman RW. Two models of experimental myopia in the mouse. Vision Res. 2008;48(7):904-16.
- Zhao HL, Wang RQ, Wu MQ, Jiang J. Dynamic changes of ocular biometric parameters: a modified form-deprivation myopia model of young guinea pigs. Int J Ophthalmol. 2011;4(5):484-8.
- Wu XH, et al. Unaltered retinal dopamine levels in a C57BL/6 mouse model of form-deprivation myopia. Invest Ophthalmol Vis Sci. 2015;56(2):967-77.
- Faulkner AE, Kim MK, Iuvone PM, Pardue MT. Head-mounted goggles for murine form deprivation myopia. J Neurosci Methods. 2007;161(1):96-100.
- Wang Y, Zhang Y, Tian N. Cause and Management of Suture-related Ocular Complications after Buried-suture Double-eyelid Blepharoplasty. J Plast Reconstr Aesthet Surg. 2021;74(12):3431-6.
- Pang K, Lennikov A, Yang M. Hypoxia adaptation in the cornea: Current animal models and underlying mechanisms. Animal Model Exp Med. 2021;4(4):300-10.
- Schaeffel F, Feldkaemper M. Animal models in myopia research. Clinical and Experimental Optometry. 2015;98(6):507-17.
- Harper AR, Summers JA. The dynamic sclera: extracellular matrix remodeling in normal ocular growth and myopia development. Exp Eye Res. 2015;133:100-11.
- Jobling AI, Nguyen M, Gentle A, McBrien NA. Isoform-specific changes in scleral transforming growth factor-beta expression and the regulation of collagen synthesis during myopia progression. J Biol Chem. 2004;279(18):18121-6.
- Vranka JA, Kelley MJ, Acott TS, Keller KE. Extracellular matrix in the trabecular meshwork: intraocular pressure regulation and dysregulation in glaucoma. Exp Eye Res. 2015;133:112-25.
- Tien P-T, et al. Diacerein inhibits myopia progression through lowering inflammation in retinal pigment epithelial cell. Mediators of Inflammation. 2021;2021(1):6660640.
- Ku H, et al. The role of transforming growth factor beta in myopia development. Molecular immunology. 2024;167:34-42.
- Yin X, Ge J. The role of scleral changes in the progression of myopia: a review and future directions. Clinical Ophthalmology. 2025:1699-707.
- Schippert R, Brand C, Schaeffel F, Feldkaemper MP. Changes in scleral MMP-2, TIMP-2 and TGFβ-2 mRNA expression after imposed myopic and hyperopic defocus in chickens. Experimental eye research. 2006;82(4):710-9.
- Xin J, et al. Crosstalk between myopia and inflammation: a mini review. International journal of medical sciences. 2024;21(9):1589.
- Zhang K, et al. Elevated Transforming Growth Factor-β2 in the Aqueous Humor: A Possible Explanation for High Rate of Capsular Contraction Syndrome in High Myopia. Journal of Ophthalmology. 2016;2016(1):5438676.
- Zhang M, et al. Complement and local ocular inflammatory response: Chronic immune factors in myopia. Science Progress. 2025;108(3):00368504251383046.
- Meng L, et al. Aqueous Humour Cytokines as Predictors of Axial Elongation in High Myopia: A 2-Year Longitudinal Cohort Study. Clinical & Experimental Ophthalmology. 2026;54(6):756-768.
- Miller DA, et al. Murine transforming growth factor-β2 cDNA sequence and expression in adult tissues and embryos. Molecular Endocrinology. 1989;3(7):1108-14.
- Langer JC, Henckaerts E, Orenstein J, Snoeck HW. Quantitative trait analysis reveals transforming growth factor-beta2 as a positive regulator of early hematopoietic progenitor and stem cell function. J Exp Med. 2004;199(1):5-14.
- Shinar DM, Rodan GA. Biphasic effects of transforming growth factor-beta on the production of osteoclast-like cells in mouse bone marrow cultures: the role of prostaglandins in the generation of these cells. Endocrinology. 1990;126(6):3153-8.
- Heldin CH, Moustakas A. Signaling Receptors for TGF-β Family Members. Cold Spring Harb Perspect Biol. 2016;8(8).
- Zhao B, Chen YG. Regulation of TGF-β Signal Transduction. Scientifica (Cairo). 2014;2014:874065.
- Akhurst RJ. Targeting TGF-β Signaling for Therapeutic Gain. Cold Spring Harb Perspect Biol. 2017;9(10).
- Pardue MT, Stone RA, Iuvone PM. Investigating mechanisms of myopia in mice. Exp Eye Res. 2013;114:96-105.
- Cordeiro MF, Gay JA, Khaw PT. Human Anti-Transforming Growth Factor-β2 Antibody: A New Glaucoma Anti-Scarring Agent. Investigative Ophthalmology & Visual Science. 1999;40(10):2225-34.
- Guo ZV, et al. Procedures for Behavioral Experiments in Head-Fixed Mice. PLOS ONE. 2014;9(2):e88678.
- Jager RD, Aiello LP, Patel SC, Cunningham ET, Jr. Risks of intravitreous injection: a comprehensive review. Retina. 2004;24(5):676-98.
- Lommatzsch AP, et al. Endophthalmitis als schwere Komplikation der intravitrealen Medikamentengabe. Klin Monbl Augenheilkd. 2013;230(11):1130-4.
- Li XT, Qin Y, Zhao JY, Zhang JS. Acute lens opacity induced by different kinds of anesthetic drugs in mice. Int J Ophthalmol. 2019;12(6):904-8.
- Tkatchenko TV, Tkatchenko AV. Ketamine-xylazine anesthesia causes hyperopic refractive shift in mice. J Neurosci Methods. 2010;193(1):67-71.
- Lin S-C, et al. The Function of Transforming Growth Factor 2 in Facilitating Inflammas ome Activation to Enhance the Development of Myopia via Complement Sys tem. Cells. 2025;14(16):1295.
- Wei CC, et al. Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression. EBioMedicine. 2018;28:274-86.
- Wei CC, et al. Corrigendum to "Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression" [EBioMedicine 28 (2018) 274-286]. EBioMedicine. 2019;41:717-8.
- Lin HJ, et al. Role of Chronic Inflammation in Myopia Progression: Clinical Evidence and Experimental Validation. EBioMedicine. 2016;10:269-81.
- Lin HJ, et al. Sclera-related gene polymorphisms in high myopia. Mol Vis. 2009;15:1655-63.
- Lin CF, et al. Harnessing Lactiplantibacillus plantarum EP21 and its membrane vesicles to inhibit myopia development. Gut Microbes. 2025;17(1):2534677.
- Chou Y-L, et al. Complement decay-accelerating factor inhibits inflammation-induced myopia development. Molecular Immunology. 2024;171:47-55.
- Ku H, et al. Myopia development in tree shrew is associated with chronic inflammatory reactions. Current Issues in Molecular Biology. 2022;44(9):4303-13.
- Chou Y-L, et al. Vitamin D3 Reshapes Gut Microbiota and Metabolite Profiles in a Rat Model of Inflammation-Induced Myopia. Biomolecules. 2026;16(7):939.
- Wallman J, Winawer J. Homeostasis of eye growth and the question of myopia. Neuron. 2004;43(4):447-68.
- Morgan IG, et al. IMI Risk Factors for Myopia. Investigative Ophthalmology & Visual Science. 2021;62(5).
- Wildsoet C, et al. IMI-interventions for controlling myopia onset and progression report. Investigative Ophthalmology and Visual Science. 2019;60(3):M106-M31.
- Rada JAS, Shelton S, Norton TT. The sclera and myopia. Experimental eye research. 2006;82(2):185-200.
再版と許可
この記事は公開されました
動画は近日公開