本研究は、miR-1298がCRCにおける浸潤および遊走に密接に関連しており、CRCの進行を抑制することで腫瘍抑制因子として機能する可能性があることを示しており、CRC治療のための新たな治療標的としての潜在性を強調している。
研究記事
大腸がんにおけるmiR-1298/骨形態形成タンパク質7軸の役割
* These authors contributed equally
この記事について
サマリー
要約
近年、大腸がん(CRC)の発症率が上昇しています。本研究では、CRCにおけるmiR-1298の臨床的意義および分子メカニズムを検討しました。合計85名のCRC患者を登録し、すべての遺伝子レベルをRT-qPCRで評価しました。CRC細胞において、miR-1298および骨形成タンパク質7(BMP7)のレベルを細胞導入を用いて調節しました。miR-1298の標的はバイオインフォマティクス解析を用いて予測し、デュアルルシフェラーゼレポーターシステムにより同定しました。CRC細胞の機能は、CCK-8アッセイ、Transwellアッセイ、およびフローサイトメトリーを用いて評価しました。CRC組織におけるmiR-1298とBMP7の相関性は、ピアソンの相関係数を用いて分析しました。その結果、miR-1298はCRCにおいて著しく発現低下しており、悪性な臨床病理学的特徴と関連していました。CRC細胞において、miR-1298は増殖、遊走、浸潤を抑制し、アポトーシスを促進しました。BMP7はmiR-1298の下流標的であり、miR-1298と負の相関を示しました。BMP7の過剰発現は、CRC細胞におけるmiR-1298の増殖、遊走、浸潤への抑制効果およびアポトーシス促進効果を部分的に消失させました。miR-1298は浸潤および遊走に関連しており、CRCの進行を抑制する可能性があります。BMP7は、CRCにおけるmiR-1298の潜在的な機能的介在因子であると考えられます。
概要
大腸がん(CRC)は世界的に重大な健康被害をもたらしており、がんに関連する死亡原因の主要な要因となっています1。CRCは結腸・直腸の上皮細胞から発生し、通常は「腺腫-がん進展」として知られる多段階のプロセスを経て数年かけて徐々に進行します2。CRCがもたらす影響は広範囲かつ多岐にわたります。死亡リスクに加え、CRCは患者の日常生活に深刻な影響を及ぼす可能性があります。治療には通常、大規模な手術が必要であり、その結果、永久的なコロストミー、腸機能障害、あるいは性機能や排尿機能の障害などの合併症が生じる場合があります3。さらに、化学療法、標的療法、および長期的なモニタリングによる経済的負担は、患者と医療制度の両方に大きな負荷を与えます。したがって、CRCの根底にある分子メカニズムを解明することは、公衆衛生の分野において引き続き最優先課題となっています。
大腸癌(CRC)において、特定のマイクロRNA(miRNA)の調節不全は腫瘍形成の顕著な特徴であり、重要なプロセスに影響を及ぼします4。これらの発現変動miRNAを同定することは、CRCの病態生理の理解を深めるだけでなく、新たな診断バイオマーカーや治療標的への潜在的な道を開くことになります。多くのがん関連miRNAの中で、miR-1298が主要な研究対象として浮上しています。現在の知見では、miR-1298はさまざまな癌においてしばしば腫瘍抑制因子として機能することが示唆されています。例えば、非小細胞肺癌(NSCLC)では、主要な癌遺伝子経路を標的とすることで細胞の増殖と浸潤を抑制します5。同様に、脳腫瘍では、その発現低下が腫瘍の発達に関連しており、一方でその回復は腫瘍の進行を抑制します6。他の癌における腫瘍抑制的な役割が確立している一方で、大腸癌の発生におけるmiR-1298の具体的な役割、特にCRCにおける下流標的および機能的影響については、ほとんど解明されていません。CRCは他の悪性腫瘍とは異なる分子学的背景を持つため、この知見の欠如は重要な課題となっています。
BMP7は、トランスフォーミング増殖因子-β (TGF-β) スーパーファミリーに属する、分泌型の機能的に多才なサイトカインである7。CRCにおいて、BMP7は主に腫瘍促進的な役割を果たす。BMP7は、CRCの組織および細胞で一般的に発現が上昇している8。BMP7は、おそらく浸潤促進的なシグナル伝達カスケードを活性化し、遊走を促進するように腫瘍微小環境を調節することにより、がん細胞の浸潤、遊走、および幹細胞様特性を高める9。さまざまな種類のがんにおいて、特定のmiRNAがBMP7の直接的な転写後抑制因子として同定されている。例えば、miR-137はNSCLCにおいてBMP7を標的とし、細胞増殖を抑制する10。これらの知見を踏まえ、我々はBMP7がCRCに関与しているのではないかと仮説を立てた。しかし、CRCにおいてmiR-1298がBMP7を直接的に標的とするかどうかは、実験的に検証されていない。さらに、メカニズムの検証、機能的な表現型解析、および臨床的相関を統合して、CRCにおけるmiR-1298/BMP7軸を包括的に特性化した研究は存在しない。
したがって、本研究では以下のことを目的としました:(1) CRCにおけるmiR-1298の調節パターンおよびその臨床病理学的特徴との関連を調査すること、(2) CRCの増殖、アポトーシス、浸潤、および遊走に対するmiR-1298の影響を機能的に解析すること、(3) CRCにおいてBMP7がmiR-1298の標的であることを実験的に検証すること、(4) CRC患者におけるmiR-1298の診断的および予後的な価値を評価すること。これらの相補的なアプローチを統合することで、CRCにおけるmiR-1298/BMP7軸に関する包括的な理解を得るとともに、本疾患に対する新たなバイオマーカーおよび治療標的を見出すことを目指しました。
プロトコル
本研究は、武漢脳病院倫理委員会の承認を得て実施されました(承認番号:20220826)。すべての参加者は、登録前に書面によるインフォームドコンセントを提供しました。本研究はヘルシンキ宣言に準拠して行われました。データに含まれるすべての参加者から出版への同意を得ています。本研究で使用した試薬、キット、抗体、細胞株、プラスミド、および機器の詳細(製造元およびカタログ情報を含む)は、材料表に記載されています。
患者および検体
2022年5月から2024年8月まで、CRC患者85名から、がん組織と隣接する非がん組織のペアサンプルを収集しました。参加者にがん、化学療法、または放射線療法の既往歴はありませんでした。さらに、健康診断を受けていた健康な被験者71名を本研究に含めました。
予後
miR-1298の高発現群および低発現群の閾値は、CRC組織サンプルの発現レベルの中央値に基づいて決定した。追跡期間は12ヶ月とし、電話または再診による追跡調査を行った。エンドポイントは死亡とした。85人の患者のうち、追跡期間中に14人の死亡が記録され、打ち切り例はなかった。
細胞培養および細胞 transfection
正常ヒト結腸細胞株FHC、およびヒト大腸がん(CRC)細胞株SW480およびHCT-116を入手した。細胞は、10%胎児ウシ血清(FBS)を添加したダルベッコ改変イーグル培地(DMEM)中で培養した。Lipofectamine 3000を用いて、miR-1298ミミックまたはインヒビターをSW480およびHCT-116細胞にトランスフェクションした。次いで、miR-1298ミミックとpcDNA3.1-BMP7(OE-BMP7)またはpcDNA3.1ベクター(OE-NC)を、SW480細胞およびHCT-116細胞に共トランスフェクションした。具体的な手順は以下の通りである。細胞を~で培養した。 37 °C 5% CO含有₂ コンフルエンスが70%~80%に達するまで培養した。細胞を5 x 10⁴ 24ウェルプレートの1ウェルあたり〇〇個の細胞を播種し、一晩インキュベートした。以下を含むトランスフェクション混合液を 250 µL Opti-MEMの 1.25 µL Lipofectamine 3000の 1.5 µL P3000、50 nMのmiRNA、および 1 µg プラスミドを調製し、15分間インキュベートした後、細胞に添加した。6時間後に培地を完全DMEMに交換し、48時間後にサンプルを回収した。
バイオインフォマティクス解析
TargetScan 8.0 データベース (https://www.targetscan.org/vert_80/) を用いて miR-1298 の標的を予測した。次いで、miR-1298 と BMP7 の間の予測結合部位を特定した。
デュアルルシフェラーゼレポーターアッセイ
野生型および変異型3′予測されるmiR-1298結合部位を含むBMP7の-UTR配列をpmirGLOデュアルルシフェラーゼレポーターベクターにクローニングし、それぞれBMP7 WtおよびBMP7 Mutレポータープラスミドを作製した。ルシフェラーゼアッセイでは、SW480細胞およびHCT-116細胞に、BMP7 WtまたはBMP7 Mutプラスミドを、miR-1298ミミック、インヒビター、またはそれらに対応するネガティブコントロールとともに共導入した。具体的な手順は以下の通りである。細胞を24ウェルプレートに4 x 10⁴ ウェルあたりの細胞数。各ウェルに以下を共導入した。 0.8 µg レポータープラスミド、50 nMのmiR-1298 mimic、インヒビター、または対応するネガティブコントロール、およびLipofectamine 3000を添加した。8時間後、培地を吸引除去し、以下を添加して細胞を溶解した。 100 µL パッシブ溶解バッファー(PLB)を用いて15分間。 20 µL ライセートの一分量を白色アッセイプレートに移し、 50 µL LAR IIを添加し、ホタルルシフェラーゼ活性を測定した。さらに別の 50 µL 停止&Renillaを測定するためにGlo試薬を添加した。最後に、データの正規化を行った。
RT-qPCR
TRIzol試薬を用いて、培養細胞、血清、および凍結CRC組織からRNAを抽出した。簡潔に述べると、細胞は10 cmディッシュあたり1 mLのTRIzolで直接溶解し、組織片は氷上でTRIzolを用いてホモジナイズした。クロロホルムによる相分離とイソプロパノール沈殿の後、RNAペレットを75%エタノールで洗浄して風乾させ、RNase-free waterに溶解した。RNAの純度と濃度は、マイクロボリューム分光光度計を用いて測定した(A260/A280 = 1.8–2.1, A260/A230 > 2.0)。mRNA解析では、gDNA Eraserを用いて残留ゲノムDNAを除去し、PrimeScript RT Reagent Kit、oligo(dT)およびランダムヘキサマーを用いて500 ngのRNAを逆転写した(37 °Cで15 min、85 °Cで5 s)。miRNA解析では、Mir-X miRNA First-Strand Synthesis Kitを用い、miR-1298-5pまたはU6に特異的なステムループプライマーを用いて100 ngのRNAを逆転写した(16 °Cで30 min、42 °Cで30 min、85 °Cで5 s)。すべてのランにNo-RTコントロールおよびno-templateコントロールを含めた。cDNAを適切に希釈し、qPCRまで−80 °Cで保存した。miR-1298およびBMP7のレベルはSYBR Green法を用いて定量した。miRNAおよびmRNAの正規化のための内因性コントロールとして、それぞれU6およびGAPDHを用いた。相対発現量は比較2−ΔΔCt法を用いて算出した。プライマー配列(5′–3′)は以下の通りである:miR-1298-forward: TCGGCAGGTTCATTCGGCTGTC, reverse: CTCAACTGGTGTCGTGGA; U6-forward: CTCGCTTCGGCAGCACA, reverse: AACGCTTCACGAATTTGCGT; BMP7-forward: CAAGAACCAGGAAGCCCTGC, reverse: TTCTTACAGGCCTGCCTCTGG; GAPDH-forward: GACATGCCGCCTGGAGAAAC, reverse: AGCCCAGGATGCCCTTTAGT。qPCRの反応条件は以下の通りとした:95 °Cで2 min、さらに95 °Cで30 s、60 °Cで30 s、72 °Cで60 sを35サイクル。cDNAテンプレートを段階的に希釈(5倍)して標準曲線を 작성した。増幅効率Eは、式 E = (10-1/slope-1) x 100%を用いて算出した。プライマーの増幅効率は以下の通りであった:EmiR-1298 = 102.1%, EBMP7 = 96.3%, EGAPDH = 100.3%, EU6 = 99.8%。すべてのプライマーが許容効率範囲である90–110%を満たしていた。すべてのRT-qPCR実験では、3つの独立した生物学的反復を行い、それぞれについて3つのテクニカルリプリケートを設けた。U6およびGAPDHの安定性はgeNormアルゴリズムを用いて評価した。両遺伝子のM値は推奨しきい値の1.5を下回っており、適切であることが確認された。
Cell counting kit-8 (CCK-8) アッセイ
SW480およびHCT-116細胞を、100 µLの完全DMEMを用いて96ウェルプレートに2 x 10³ cells/wellの密度で播種し、24時間培養した。トランスフェクションの48時間後、プレートを37 °Cで1時間インキュベートした。マイクロプレートリーダーを用いて450 nmにおける吸光度を測定した。1群あたり6つのウェルを繰り返しに使用し、細胞を含まない培地とCCK-8を含むブランク値を差し引いた。
フローサイトメトリー
アポトーシスは、Annexin V-FITC/PI Apoptosis Detection Kitを用いたフローサイトメトリーにより評価した。トランスフェクションの48時間後に、SW480細胞およびHCT-116細胞をトリプシン処理により回収し、冷PBSで2回洗浄した後、1xバインディングバッファーを用いて1 x 10⁶ cells/mL。1 x 10的分注量5 細胞をFACSチューブに移し、〜で染色した。 5 µL Annexin V-FITCおよび 5 µL 室温・暗所にてPIで15分間処理し、〜で希釈した。 400 µL データ取得前にバインディングバッファーで洗浄した。補正およびゲート設定のため、未染色、単染色、およびスタウロスポリン処理した陽性コントロールを含めた。データ解析にはFlowJoソフトウェア(FlowJo 10.2)を使用した。
細胞遊走および浸潤
細胞の遊走および浸潤は、孔径 8 µm の PET メンブレンを備えた 24 ウェル Transwell チェンバーを用いて評価した。浸潤アッセイでは、播種前に上部メンブレンを 50 µL の Matrigel で 37 °C、2 時間前コートし、無血清 DMEM で 30 分間再水和させた。遊走アッセイでは、このコート工程を省略した。トランスフェクション後の SW480 および HCT-116 細胞を無血清 DMEM で 12 時間飢餓状態にした後、0.1% BSA 含有無血清 DMEM 100 µL に懸濁した 2 x 10⁴ 個の細胞を上部チェンバーに播種した。下部チェンバーには、化学誘引物質として 10% FBS 含有 DMEM 600 µL を満たした。37 °C で 24 時間(遊走)または 48 時間(浸潤)培養後、上表面に残った未遊走細胞を綿棒で除去した。下表面の細胞を 4% パラホルムアルデヒドで 15 分間固定し、0.1% クリスタルバイオレットで 20 分間染色し、洗浄して風乾させた。メンブレンあたり 5 つのランダムな視野を倒立顕微鏡を用いて 200 倍で撮影し、2 人の独立した観察者が手動で計数した。
ウェスタンブロット
プロテアーゼ阻害剤カクテルを添加したRIPA溶解バッファー中で細胞をホモジナイズし、全細胞タンパク質を抽出した。タンパク質濃度はBCA Protein Assay Kitを用いて測定した。等量のタンパク質ライセート(50 µg)を10% SDS-PAGEで分離し、その後PVDFメンブレンに転写した。2% BSAで非特異的結合部位をブロッキングした後、BMP7(1:1,000)およびGAPDH(1:2,000)に対する一次抗体を用いて、37 °Cで90分間反応させた。PBSTで3回洗浄した後、メンブレンを西洋わさびペルオキシダーゼ(HRP)標識二次抗体でインキュベートした。タンパク質バンドはECL化学発光試薬を用いて可視化した。
統計解析
データはSPSS 27.0を用いて解析した。特に断りのない限り、すべての値は平均値 ± 標準偏差(SD)として表記した。正規分布の確認にはShapiro-Wilk検定を適用した。2群間の群間差は、対応のない両側Student's t-検定を用いて決定した。CRC腫瘍組織と隣接する非癌組織におけるmiR-1298の発現比較は、対応のあるStudent's t-検定を用いて行った。パラメトリック検定を実施する前に、Levene検定を用いて分散の均一性を評価した。多群間比較については、パラメトリックデータを一元配置分散分析(one-way ANOVA)により解析し、事後のペア比較にはTukey's HSD検定を用いた。CRC組織におけるmiR-1298とBMP7の相関性は、ピアソンの相関分析を用いて評価した。p < 0.05を統計的に有意と見なした。
結果
CRCにおいてmiR-1298は大幅に減少していた
CRC組織におけるmiR-1298レベルは、隣接する非癌組織よりも低かった(図1A)。リンパ節転移の解析により、リンパ節転移を有する患者では、転移のない患者よりもmiR-1298レベルが低いことが明らかになった(図1B)。腫瘍サイズが[以下]であった大腸がん(CRC)患者において、 > 5 cmを超えていた患者におけるmiR-1298は、腫瘍サイズが5 cm以下の患者よりも有意に低かった(p = 0.017; 図1C)。miR-1298は腫瘍ステージの進行に伴い減少し、ステージ1とステージ3の間で有意な差が認められた(p = 0.047) およびステージ1とステージ4の間(p = 0.009; 図1D)。大腸がん(CRC)患者の血清において、miR-1298は著しく減少していた(図1E)、またROC曲線分析ではAUC 0.889、感度 78.82%、特異度 83.10%を示した(図1F).
miR-1298の発現量の中央値に基づき、CRC患者を低発現群と高発現群に分けた。CRC患者において、miR-1298はTNM病期と密接に関連していた(p < 0.001)、腫瘍サイズ(p = 0.003)、リンパ節転移(p = 0.003)、および腫瘍分化度(p = 0.035)。しかしながら、miR-1298は年齢との関連は認められなかった(p = 0.832) または性別 (p = 0.165) (表1)。カプラン・マイヤー解析の結果、miR-1298の発現量が低い大腸がん(CRC)患者は、発現量が高い患者よりも全生存期間が短いことが示された(ログランク p = 0.039; 図1G)。Cox回帰分析により、miR-1298の発現低下がCRC患者における潜在的な予後指標となる可能性が示された。 (p = 0.035, 表2).
miR-1298はCRC細胞の増殖を抑制し、アポトーシスを促進した
SW480細胞において、miR-1298 mimicまたはinhibitorの導入により、miR-1298の発現が効果的に変化し、inhibitor NC群とmiR-1298 inhibitor群との間に有意な差が認められた(p = 0.005; Figure 2A)。miR-1298の過剰発現は細胞生存率を低下させアポトーシスを促進したが、一方でmiR-1298の抑制は細胞生存率を上昇させアポトーシスを減少させた。アポトーシスに関しては、inhibitor NC群とmiR-1298 inhibitor群の間で有意な差が認められた(p = 0.008; Figure 2B,C)。HCT-116細胞においても、導入により同様にmiR-1298の発現が変化し(p = 0.002; Figure 2D)、inhibitor NC群とmiR-1298 inhibitor群との間で、細胞生存率(p = 0.007; Figure 2E)およびアポトーシス(p = 0.005; Figure 2F)について有意な差が観察された。
miR-1298はCRC細胞の遊走および浸潤を抑制した
miR-1298を過剰発現させると、SW480およびHCT-116細胞の遊走および浸潤細胞数が減少したが、miR-1298を阻害すると細胞の遊走および浸潤が増加した(Figure 3A–D)。SW480細胞において、浸潤細胞数はmimic NC群よりもmiR-1298 mimic群で大幅に低かった(p = 0.004; Figure 3B)。
BMP7はCRCにおけるmiR-1298の標的であった
TargetScanにより、BMP7がmiR-1298の標的である可能性が示された(図 4A)。SW480細胞およびHCT-116細胞を用いたデュアルルシフェラーゼレポーターアッセイの結果、miR-1298の過剰発現または抑制により、BMP7 Wtレポーターのルシフェラーゼ活性は変化したが、BMP7 Mutレポーターの活性は変化しなかった(図 4B,C)。HCT-116細胞において、BMP7 Wtレポーターのルシフェラーゼ活性は、mimic NC群と比較してmiR-1298 mimic群で有意に低かった(p = 0.002; 図 4C)。CRC組織において、BMP7は大幅に上昇していた(図 4D)。さらに、BMP7とmiR-1298は負の相関を示した(図 4E)。SW480細胞およびHCT-116細胞において、miR-1298の過剰発現はRNAおよびタンパク質レベルの両方でBMP7を抑制し、一方でmiR-1298の抑制はBMP7を増加させた(図 4F,G)。
miR-1298はBMP7の調節を介してCRCにおいて腫瘍抑制効果を及ぼす可能性がある
SW480細胞において、BMP7発現の調節が成功したことが確認された(Figure 5A)。BMP7の過剰発現は、miR-1298の過剰発現によって誘導された細胞生存率の低下およびアポトーシスの増加を部分的に回復させたが、一方でBMP7のノックダウンは細胞生存率をさらに低下させ、アポトーシスを増加させた(Figure 5B,C)。HCT-116細胞においても、BMP7発現の調節が成功したことが確認され(Figure 5D)、細胞生存率およびアポトーシスに対しても同様の効果が認められた(Figure 5E,F)。SW480細胞では、miR-1298 mimic + si-BMP7群はmiR-1298 mimic + si-NC群よりもBMP7発現および細胞生存率が有意に低かった(それぞれ p = 0.002およびp = 0.005;Figure 5A,B)。アポトーシスは、miR-1298 mimic + OE-BMP7群とmiR-1298 mimic + OE-NC群の間で有意な差が認められた(p = 0.001;Figure 5C)。HCT-116細胞では、miR-1298 mimic + si-BMP7群の細胞生存率はmiR-1298 mimic + si-NC群よりも有意に低かった(p = 0.002;Figure 5E)。高発現したBMP7は、CRC細胞の遊走および浸潤に対するmiR-1298の抑制効果を部分的に回復させたが、BMP7のノックダウンはこれらの抑制効果を増強させた(Figure 6A–D)。SW480細胞では、BMP7のノックダウンにより、si-NC群と比較して遊走細胞数および浸潤細胞数が有意に減少した(それぞれ p = 0.003およびp = 0.020;Figure 6A,B)。HCT-116細胞では、BMP7の過剰発現によりOE-NC群と比較して遊走細胞数が有意に変化し(p = 0.030;Figure 6C)、一方でBMP7のノックダウンによりsi-NC群と比較して浸潤細胞数が有意に減少した(p = 0.007;Figure 6D)。
データの可用性:
本研究の結果を裏付けるデータは、補足ファイルとして提供されています。
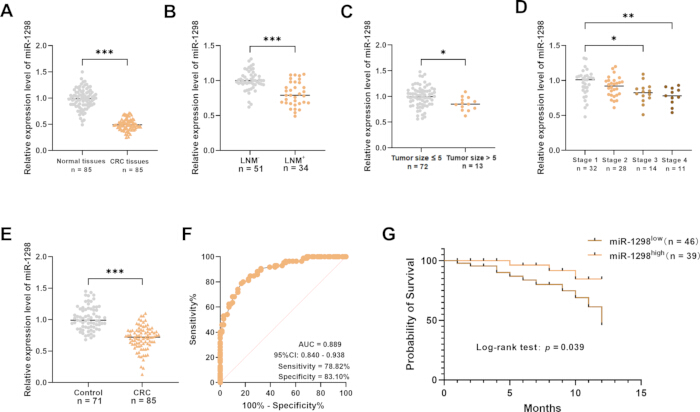
図1: CRC組織におけるmiR-1298の発現。 (A) CRC組織および隣接する非癌組織におけるmiR-1298の相対的発現量。 (B) リンパ節転移あり(LNM+)およびなし(LNM−)の患者のCRC組織におけるmiR-1298の相対的発現量。 (C) 腫瘍サイズ別のCRC組織におけるmiR-1298の相対的発現量。 (D) 腫瘍ステージ別のCRC組織におけるmiR-1298の相対的発現量。 (E) CRC患者および健康なコントロールにおける血清miR-1298の相対的発現量。 (F) CRC患者を健康なコントロールから区別するための血清miR-1298の受信者動作特性(ROC)曲線。 (G) miR-1298の発現量(低・高)によるCRC患者のカプランマイヤー全生存曲線。 *p < 0.05; **p < 0.01; ***p < 0.001. こちらのリンクをクリックして、この図の拡大版を表示してください。
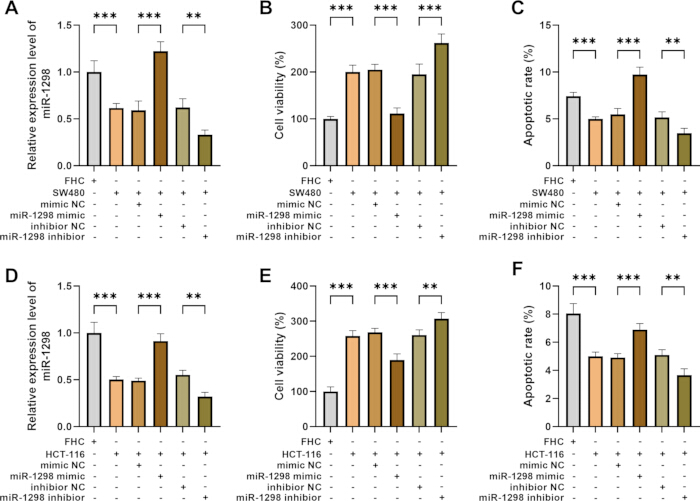
図 2: CRC細胞の増殖およびアポトーシスに対するmiR-1298の影響。 (A) miR-1298 mimic、mimic NC、miR-1298 inhibitor、またはinhibitor NCを導入した後のFHC細胞およびSW480細胞におけるmiR-1298の相対的発現量。 (B) miR-1298の過剰発現または抑制後のSW480細胞の細胞生存率。 (C) miR-1298の過剰発現または抑制後のSW480細胞のアポトーシス。 (D) miR-1298 mimic、mimic NC、miR-1298 inhibitor、またはinhibitor NCを導入した後のFHC細胞およびHCT-116細胞におけるmiR-1298の相対的発現量。 (E) miR-1298の過剰発現または抑制後のHCT-116細胞の細胞生存率。 (F) miR-1298の過剰発現または抑制後のHCT-116細胞のアポトーシス。データは平均値 ± SDで示されている。エラーバーはSDを表す。 **p < 0.01; ***p < 0.001. この図の拡大版を表示するには、ここをクリックしてください。
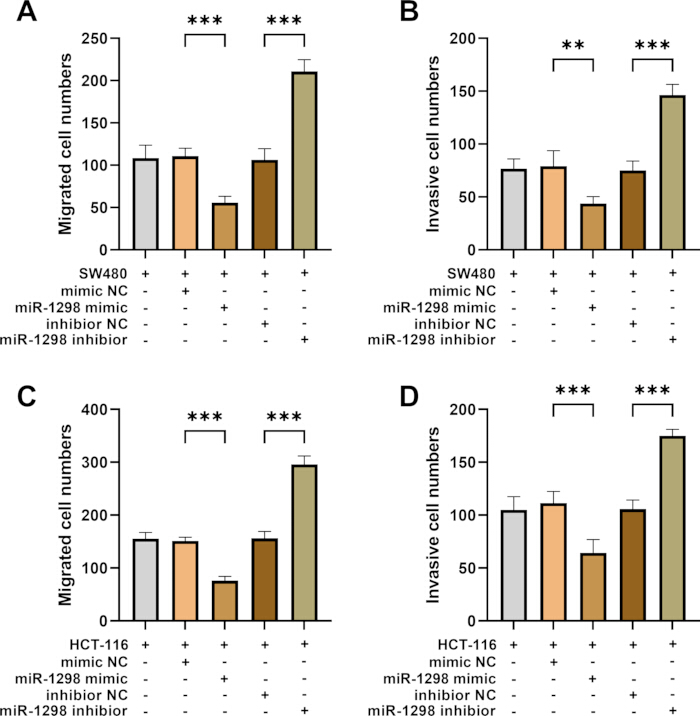
図3: miR-1298が〜の遊走および浸潤に及ぼす影響 大腸がん 細胞 (AmiR-1298 mimic、mimic NC、miR-1298 inhibitor、またはinhibitor NCをトランスフェクションした後のSW480細胞における細胞遊走数。BmiR-1298 mimic、mimic NC、miR-1298 inhibitor、または inhibitor NCを導入した後のSW480細胞における浸潤細胞数。CmiR-1298 mimic、mimic NC、miR-1298 inhibitor、またはinhibitor NCをトランスフェクションした後のHCT-116細胞における遊走細胞数。DmiR-1298 mimic、mimic NC、miR-1298 inhibitor、またはinhibitor NCをトランスフェクションした後のHCT-116細胞における浸潤細胞数。データは平均値として提示されている。 ± 標準偏差。エラーバーは標準偏差を表す。**p < 0.01; ***p < 0.001. この図の拡大版を表示するには、こちらをクリックしてください。
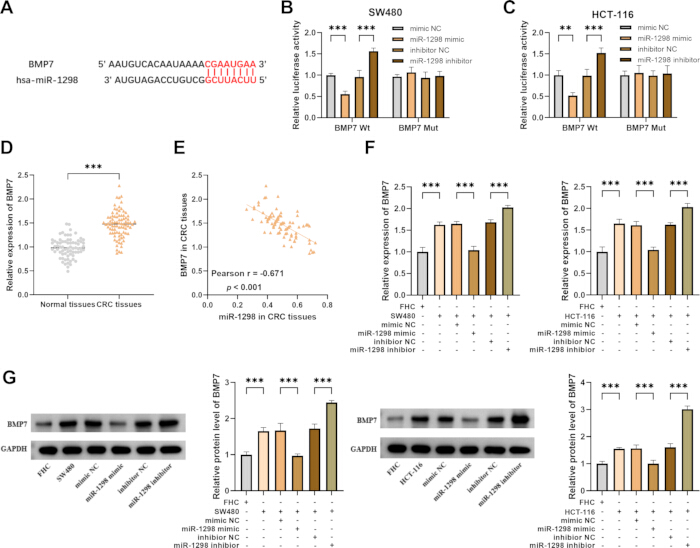
図 4: miR-1298とBMP7の標的関係。 (A) miR-1298とBMP7 3′ UTRの間の予測結合部位。 (B) SW480細胞におけるmiR-1298の過剰発現または抑制後の、BMP7 WtおよびBMP7 Mutレポーターの相対的ルシフェラーゼ活性。 (C) HCT-116細胞におけるmiR-1298の過剰発現または抑制後の、BMP7 WtおよびBMP7 Mutレポーターの相対的ルシフェラーゼ活性。 (D) CRC組織および隣接非癌組織におけるBMP7の相対的発現量。 (E) CRC組織におけるmiR-1298とBMP7発現の相関。 (F) miR-1298 mimic、mimic NC、miR-1298 inhibitor、またはinhibitor NCをトランスフェクションした後の、SW480およびHCT-116細胞における相対的BMP7発現量。 (G) miR-1298 mimic、mimic NC、miR-1298 inhibitor、またはinhibitor NCをトランスフェクションした後の、SW480およびHCT-116細胞における相対的BMP7タンパク質レベル。 **p < 0.01; ***p < 0.001. こちらのリンクをクリックして、この図の拡大版を表示してください。
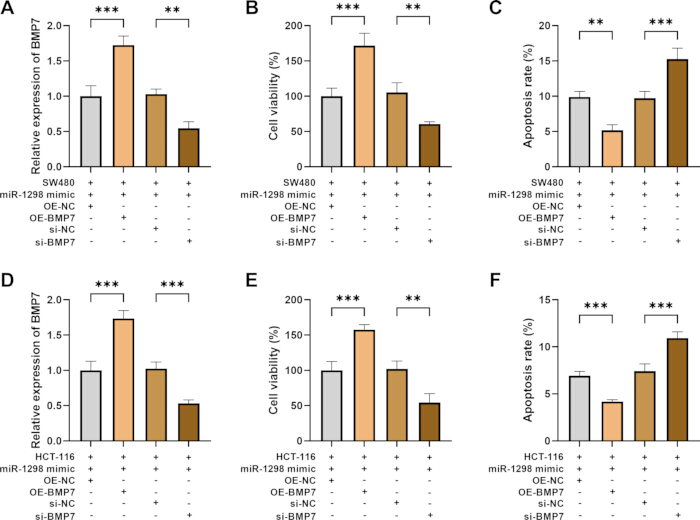
図 5: CRC細胞における増殖およびアポトーシスに対するmiR-1298とBMP7の共調節。 SW480細胞およびHCT-116細胞に、miR-1298 mimicとOE-NC、OE-BMP7、si-NC、またはsi-BMP7を共導入した。(A)SW480細胞におけるBMP7の相対的発現量。(B)SW480細胞における細胞生存率。(C)SW480細胞におけるアポトーシス。(D)HCT-116細胞におけるBMP7の相対的発現量。(E)HCT-116細胞における細胞生存率。(F)HCT-116細胞におけるアポトーシス。データは平均値 ± SDで示す。エラーバーはSDを表す。**p < 0.01; ***p < 0.001。略語:OE-NC = 過剰発現ネガティブコントロール、OE-BMP7 = BMP7過剰発現、si-NC = 小分子干渉RNAネガティブコントロール、si-BMP7 = BMP7標的小分子干渉RNA。こちらをクリックして、この図の拡大版を表示してください。
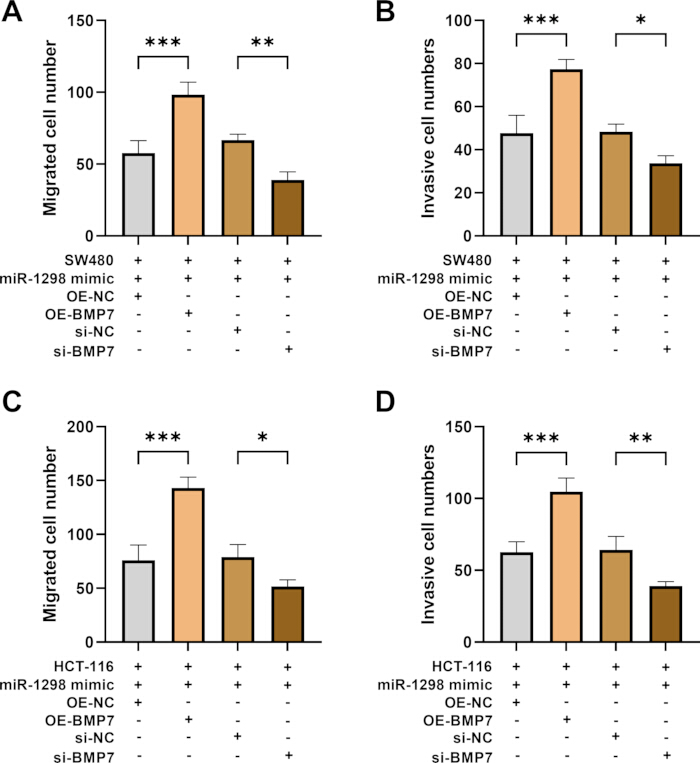
図 6: CRC細胞の遊走および浸潤に対するmiR-1298とBMP7の共調節。 SW480細胞およびHCT-116細胞に、miR-1298 mimicとOE-NC、OE-BMP7、si-NC、またはsi-BMP7を共導入した。 (A) SW480細胞における遊走細胞数。 (B) SW480細胞における浸潤細胞数。 (C) HCT-116細胞における遊走細胞数。 (D) HCT-116細胞における浸潤細胞数。 データは平均値 ± SDで表示されている。 エラーバーはSDを示す。 *p < 0.05; **p < 0.01; ***p < 0.001。 略語:OE-NC = 過剰発現ネガティブコントロール、OE-BMP7 = BMP7過剰発現、si-NC = 小分子干渉RNAネガティブコントロール、si-BMP7 = BMP7標的小分子干渉RNA。 ここをクリックして、この図の拡大版を表示してください。
| 変数 | 合計 | miR-1298 | p 値 | |
| (n = 85) | 低(n = 46) | 高(n = 39) | ||
| 年齢(歳) | ||||
| ≤50 | 49 | 27 | 22 | 0.832 |
| >50 | 36 | 19 | 17 | |
| 性別(オス/メス) | ||||
| オス | 44 | 27 | 17 | 0.165 |
| 雌性 | 41 | 19 | 22 | |
| TNM病期 | ||||
| 1–2 | 60 | 41 | 19 | <0.001*** |
| 3–4 | 25 | 5 | 20 | |
| 腫瘍サイズ (cm) | ||||
| ≤5 | 72 | 34 | 38 | 0.003** |
| >5 | 13 | 12 | 1 | |
| リンパ節転移 | ||||
| はい | 34 | 25 | 9 | 0.003** |
| いいえ | 51 | 21 | 30 | |
| 腫瘍分化 | ||||
| 低悪性度 | 53 | 24 | 29 | 0.035* |
| 高悪性度 | 32 | 22 | 10 | |
表1:CRC患者におけるクリニック病理学的特徴とmiR-1298発現レベルの関連。患者をmiR-1298低発現群(n = 46)と高発現群(n = 39)に分類し、miR-1298の発現とクリニック病理学的特性との関連を評価した。 *p < 0.05; **p < 0.01; ***p < 0.001。略語:CRC = 大腸がん; TNM = 腫瘍・リンパ節・転移。
| 変数 | ハザード比 | 95%信頼区間 | p 値 | |
| 下げる | 上部 | |||
| 年齢 | 0.776 | 0.186 | 3.242 | 0.728 |
| 性別 | 0.614 | 0.152 | 2.474 | 0.492 |
| TNM分類ステージ | 4.62 | 1.181 | 18.078 | 0.028* |
| 腫瘍サイズ | 8.078 | 1.833 | 35.587 | 0.006** |
| リンパ節転移 | 6.584 | 1.134 | 38.245 | 0.036* |
| 腫瘍分化 | 6.392 | 1.748 | 23.377 | 0.005** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
表 2: CRC患者における予後因子のCox回帰分析。CRC患者における臨床病理学的特性およびmiR-1298発現と予後との関連を評価するため、Cox回帰分析を行った。*p < 0.05; **p< 0.01。略語:CI = 信頼区間、CRC = 大腸がん、TNM = 腫瘍・リンパ節・遠隔転移。
補足ファイル。 こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
CRCは、発症率と死亡率が高いため、個人および社会に大きな負担を強いています。大腸内視鏡検査などのスクリーニングプログラムがあるにもかかわらず、依然として多くのCRC患者が進行した段階で診断されており、早期発見のためのより効果的な非侵襲的バイオマーカーが急務となっています11。さらに、転移性CRCの予後は依然として不良であり、薬剤耐性や疾患の再発が比較的多く見られます12。したがって、CRCの発症、進行、および転移の根底にある分子メカニズムを十分に理解することは、新しい標的療法の開発および治療耐性の克服に不可欠です。CRCは極めて不均一であり、同様に見える腫瘍であっても、その挙動に大きな差異がある場合があります13。そのため、早期発見の向上、個別化医療の推進、そして最終的にはCRC患者の生存率を向上させるための継続的な研究が重要です。
miRNAの異常は、大腸癌(CRC)の発症、病期、および予後に関与している14。miRNAは体液中での安定性が高いため、非侵襲的な診断および予後予測バイオマーカーとして大きな可能性を秘めている15。本研究において、miR-1298はCRC組織で発現低下しており、その発現はTNM病期およびリンパ節転移と関連していたことから、CRCの進行において潜在的な役割を担っていることが示唆された。特筆すべきは、本研究が臨床的なCRCコホートにおいてmiR-1298の発現を包括的に特性解析し、TNM病期、リンパ節転移、腫瘍分化度を含む主要な臨床病理学的パラメータとの関連を実証した初の研究である点である。
増殖、アポトーシス、遊走、浸潤などの主要な細胞プロセスの調節不全は、がんの発生と死亡率の根本的な要因である16。制御不能な増殖により、腫瘍細胞は初期のクローン増殖が可能になる。同時に、アポトーシスの回避によって、これらの細胞は内部損傷や外部ストレスに直面しても生存し、蓄積することができる。この組み合わせが原発腫瘍の成長につながる17,18。したがって、これらの特性の分子的な駆動因子に対処する標的療法は、大腸がん(CRC)の効果的な治療法を開発するための鍵となる。miRNAは、がん細胞の悪性表現型を調節することで腫瘍の発生に寄与している19。miR-1298はそのようなmiRNAの一つである。例えば、miR-1298-5pのダウンレギュレーションは胃がんの進行を促進する20。アップレギュレートされたmiR-1298は、乳がん細胞の増殖を抑制し、アポトーシスを誘導し、細胞周期停止を引き起こす21。さらに、miR-1298-5pは膀胱がんにおいても腫瘍抑制因子として作用する22。本研究の結果は、miR-1298の過剰発現が増殖、遊走、浸潤を抑制し、アポトーシスを亢進させたことを示しており、CRCの悪性表現型を抑制する可能性が示唆された。重要な点として、本研究はCRC細胞における主要な悪性表現型を体系的に評価することで、従来の報告を拡張し、この特定のがん種におけるmiR-1298のより完全な機能特性を明らかにした。
腫瘍促進効果に関して、BMP7はPI3K/AKTなどのシグナル伝達経路を調節することで、がん細胞の増殖を促進し得ます23。また、Bcl-2などの抗アポトーシス因子のレベルを調節することにより、BMP7はがん細胞にアポトーシス耐性を付与します24。さらに、BMP7は主に上皮間葉転換(EMT)を誘導することで、がん細胞の遊走および浸潤を増強させます25。がん促進におけるBMP7の関与は、CRC組織においてBMP7が高発現していたという我々の知見と一致しています。バイオインフォマティクス解析により、BMP7はmiR-1298の標的である可能性が示唆され、miR-1298とBMP7の間に予測結合部位が同定されました。さらに、レスキュー実験により、BMP7がCRCにおけるmiR-1298の機能的メディエーターとして作用している可能性が示されました。がんにおけるBMP7に関連するシグナル伝達経路を考慮し、我々はさらに、miR-1298/BMP7軸がCRC細胞の挙動を制御する下流のシグナル伝達経路(SMAD、PI3K/AKT、EMT)を調節するという仮説を立てました。極めて重要な点として、我々はルシフェラーゼレポーターアッセイを通じてこの予測を実験的に検証し、miR-1298がBMP7の3′ UTRに直接結合することを確認しました。さらに、レスキュー実験により、BMP7の回復がmiR-1298の過剰発現による腫瘍抑制効果を部分的に反転させることが実証され、BMP7がCRCにおけるmiR-1298の下流メディエーターであるという機能的根拠が得られました。我々の知る限り、本研究は大腸がんにおけるmiR-1298/BMP7調節軸を確立した初めての研究です。
メカニズムに関する知見に加え、本研究ではmiR-1298の臨床的有用性を支持するトランスレーショナルな根拠を提示した。ROC曲線分析により、miR-1298がCRCにおいて診断的価値を持つ可能性が示された。さらに生存分析により、miR-1298の低発現が予後不良と関連していることが明らかになり、Cox回帰分析ではmiR-1298の減少がCRCの予後因子となり得ることが示された。これらの結果は、CRCの診断および予後バイオマーカーとしてのmiR-1298の潜在的な価値を支持するものである。
本研究にはいくつかの限界がある。臨床検体に関しては、本研究では主に単一センターのデータを用いたため、CRCにおけるmiR-1298の腫瘍抑制的な役割をより強固に確認するには、今後の多施設共同検証研究が必要である。本研究はin vitroの細胞実験に焦点を当てており、in vivoの腫瘍微小環境の複雑さを完全には捉えていない。異種移植腫瘍モデルを用いていないことが、本研究の限界の一つであった。今後は、腫瘍微小環境におけるmiR-1298/BMP7軸の役割をさらに解明するために、in vivoでの検証を含めるべきである。さらに、今後の実験では、バイオインフォマティクスによる予測およびin vitroおよびin vivoの実験を通じて、miR-1298/BMP7軸の上流および下流の経路をさらに検証することが考えられる。追跡期間が比較的短かったため、長期生存率の推定の成熟度に制限があった。Kaplan–Meier法およびCox回帰分析を行ったが、結果は比較的短い追跡期間の影響を受けている可能性がある。現在、CRCにおけるmiR-1298の予後予測能を検証するために、追跡期間の延長を行っている。さらに、CRC細胞の挙動制御においてmiR-1298/BMP7軸によって調節される下流のシグナル伝達経路(SMAD、PI3K/AKT、EMT)は、本研究では実験的に検証されておらず、さらなる探索が必要である。本研究では、逆レスキュー実験(miR-1298阻害剤 + BMP7 siRNA)は実施しなかった。このような実験を行えば、BMP7のノックダウンがmiR-1298抑制による腫瘍促進効果を逆転させることができるかについて、補完的な証拠が得られたであろう。この種のレスキュー実験を欠いていることは、メカニズムに関する結論を弱めるものである。CRCにおけるmiR-1298/BMP7軸の機能を完全に確立するためには、この逆レスキュー実験デザインとin vivo検証を組み込んだ今後の研究が必要である。
要約すると、miR-1298はCRCの進行に関連している可能性があります。機能面では、miR-1298はCRC細胞の増殖、浸潤、および遊走を抑制すると考えられます。BMP7は、CRCにおけるmiR-1298の潜在的な機能的メディエーターである可能性があります。
開示事項
著者らに開示すべき関連する金銭的または非金銭的利益はありません。
謝辞
著者らは、本原稿の作成にあたり、資金、助成金、またはその他の支援を受けていないことを宣言します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.1% crystal violet solution | Sigma-Aldrich | C0775 | |
| 10% SDS-PAGE Kit | Epizyme | PG112 | |
| 4% paraformaldehyde | Sigma-Aldrich | P6148 | |
| 6-well cell culture plate | Corning | 3516 | |
| 96-well cell culture plate | Corning | 3599 | |
| Annexin V-FITC/PI Apoptosis Detection Kit | Various (e.g., Elabscience, BD Biosciences) | E-CK-A211 (Elabscience) or 556547 (BD) | |
| Anti-BMP7 | Abcam | ab176707 | |
| Anti-GAPDH | Abcam | ab181602 | |
| BCA Kit | Sangon | C503021 | |
| BMP7 Mutant 3‘-UTR reporter plasmid | Custom constructed (cloned into pmirGLO) | Custom | |
| BMP7 primers | Sangon Biotech (Shanghai, China) | Custom synthesis | |
| BMP7 Wild-type 3‘-UTR reporter plasmid | Custom constructed (cloned into pmirGLO) | Custom | |
| Cell Counting Kit-8 (CCK-8) | Dojindo (Japan) | CK04 | |
| Cell culture flask (T-25) | Corning | 430639 | |
| DMEM (Dulbecco‘s Modified Eagle Medium) | Invitrogen (Thermo Fisher Scientific) | 11995065 | |
| Fetal Bovine Serum (FBS) | Invitrogen (Thermo Fisher Scientific) | 16140071 | |
| FHC cell line (normal human colon epithelial) | ATCC | CRL-1831 | |
| Flow cytometer | BD Biosciences | FACSCanto™ II | |
| FlowJo V10 software | FlowJo, LLC | — | |
| GAPDH primers (endogenous control for mRNA) | Sangon Biotech (Shanghai, China) | Custom synthesis | |
| HCT-116 cell line (human colorectal carcinoma) | ATCC | CCL-247 | |
| HRP-conjugated secondary antibody | Beyotime | A0208 | |
| Inverted microscope | Nikon (or equivalent) | Eclipse Ts2 | |
| Lipofectamin 3000 Transfection Reagent | Invitrogen (Thermo Fisher Scientific) | L3000015 | |
| Luciferase Assay System | Promega | E1500 | |
| Matrigel Basement Membrane Matrix | Corning | 354230 | |
| Microplate reader | BioTek (Agilent) | Synergy H1 | |
| miR-1298 inhibitor | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| miR-1298 mimic | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| miR-1298 primers | Sangon Biotech (Shanghai, China) | Custom synthesis | |
| Mir-X miRNA First-Strand Synthesis Kit | Takara Bio | 638313 | |
| OE-NC | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| Opti-MEM | Gibco | 31985070 | |
| Passive Lysis Buffer | Promega | E194A | |
| pcDNA3.1 vector (empty vector control) | Invitrogen (Thermo Fisher Scientific) | V79020 | |
| pcDNA3.1-BMP7 (OE-BMP7 overexpression plasmid) | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| pmirGLO Dual-Luciferase miRNA Target Expression Vector | Promega | E1330 | |
| PMSF | Beyotime | ST506 | |
| PrimeScript RT Reagent Kit (Perfect Real Time) | Takara (Japan) | RR037A | |
| PrimeScript RT reagent Kit with gDNA Eraser | Takara Bio | RR047A | |
| Protease inhibitor cocktail | Thermo | 78429 | |
| PVDF | Absin | abs935 | |
| RIPA | Abcam | ab156034 | |
| RNase-free microcentrifuge tubes (1.5 mL) | Axygen (Corning) | MCT-150-C | |
| RNase-free pipette tips | Axygen (Corning) | T-300 (10 µL), T-200-Y (200 µL), T-1000-B (1000 µL) | |
| si-BMP7 | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| si-NC | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| Staurosporine (apoptosis positive control) | Sigma-Aldrich | S5921 | |
| SW480 cell line (human colorectal adenocarcinoma) | ATCC | CCL-228 | |
| SYBR Green qPCR Master Mix | Takara (Japan) | RR036A | |
| Transwell chamber (24-well, 8.0 µm pore size) | Corning (Costar) | 3422 | |
| TRIzol Reagent | Invitrogen (Thermo Fisher Scientific) | 15596026 | |
| U6 primers (endogenous control for miRNA) | Sangon Biotech (Shanghai, China) | Custom synthesis |
参考文献
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.