このプロトコルでは、アルファルファ(Medicago sativa L.)茎の横断面におけるリグニンおよびペクチン細胞壁成分の沈着を可視化します。その目的は、望ましい茎の消化性特性を持つ新しいアルファルファ系統を開発するために標的となり得る茎の特定の組織を特定することです。
方法論記事
アルファルファ(Medicago sativa L.)茎におけるルーメン液を用いたin vitro培養および特定細胞壁成分の組織学的染色
この記事について
サマリー
要約
植物の成長に伴う細胞壁成分の蓄積は、反芻動物にとっての飼料栄養価を制限します。特に、植物組織へのリグニンの沈着は、細胞壁炭水化物であるセルロースとヘミセルロースの分解を妨げ、その結果、飼料から得られるエネルギー量を減少させます。一方で、細胞壁の成分である消化性の高いペクチンは、容易に分解されます。さまざまな茎の細胞タイプにおけるリグニンとペクチンの沈着に関する情報は、アルファルファ系統間での茎の消化率の変動の根底にある要因について、メカニズム的な知見を与える可能性があります。茎の横断面をルーメン液中でin vitro培養することで、茎組織がルーメン内で経るプロセスをシミュレートできます。この手法を組織染色および顕微鏡観察と組み合わせることで、組織分解の経時的な変化や、茎におけるリグニンとペクチンの位置を可視化することが可能になります。ヴィースナー染色(Wiesner stain)は、リグニンのグアイアシル(G)アルデヒド単位と反応し、それらをフューシャ色に染色します。同様に、ルテニウムレッドはペクチンのカルボキシ基と相互作用し、茎中のペクチンをピンクからオレンジ、褐色までの色調に染色します。本プロトコルでは、ルーメン微生物に曝露させた後のアルファルファ茎横断面の消化と、それに続く染色による細胞壁内のリグニンおよびペクチンのパターンの可視化について記述します。この方法は、リグニンとペクチンが存在するかしないかを茎組織ごとに特定するのに有用であり、アルファルファ系統間の比較を容易にします。
概要
すべての植物細胞は細胞壁に囲まれています。セルロース、ヘミセルロース、リグニン、およびペクチンは細胞壁の構成成分であり、反芻動物の飼料に不可欠な植物繊維を形成しています。ペクチンは消化性の高い(水溶性の)多糖類である一方1、リグニンは消化不可能なポリマーであり、繊維の分解を制限します2。したがって、リグニンは植物の消化率を低下させ、最終的に粗飼料から反芻動物が利用できるエネルギーを減少させます。しかし、リグニンは仮道管要素を補強することで植物全体に水を輸送するなど、重要な植物生理機能も担っています3。先行研究では、リグニンの減少またはペクチンの増加といった茎繊維の変化が、茎の消化率および粗飼料の栄養価を向上させ得ることが示されています4。そこで、本プロトコルではこれら2つの細胞壁成分に焦点を当てます。茎の細胞壁におけるリグニンとペクチンの総濃度だけでは、茎繊維の消化率の根底にあるメカニズムを説明するには不十分です5。ルーメン液を用いたin vitroでの培養と組織学的染色を行うことで、茎繊維の消化率が異なる植物間での細胞壁成分の違いを可視化し、細胞レベルでの知見を得ることができます4,6。本プロトコルでは、一般的な多年生飼料用legumeであるアルファルファ(Medicago sativa L.)をモデル種として用い、葉よりもリグニンが多くペクチンが少ない茎組織におけるリグニンとペクチンの分布パターンを明らかにします。
In vitroでのルーメン液を用いた培養は、反芻動物の胃における粗飼料の消化をシミュレートし、粗飼料の解剖学的構造が消化率に及ぼす影響の観察を可能にします。試験管内でルーメン内に近い条件を作り出すことで、ガラススライドに接着させた茎の横断面を様々な時点で回収し、ルーメン液への曝露後の組織分解度を評価することができます6。この手法は、アルファルファ茎の解剖学的構造を可視化し7 、茎の消化に伴い異なる細胞壁成分を含む細胞型がどのように変化するかを調べるための、比較的簡便で迅速、かつ低コストなアプローチを提供します。
茎の横断面を組織学的に染色することで、細胞壁成分を可視化できます。フロログルシノールと塩酸(HCl)を組み合わせたウィズナー(Wiesner)染色は、G C6C3 アルデヒド(コニフェラールデヒド)モノマー9と反応することで、グアイアシルリッチなリグニン単位を含む茎組織を強調します8。リグニンは複数のモノマーサブユニットから構成されていますが、本記事では、ウィズナー染色と反応し10、本プロトコルを用いて可視化されるモノマーであるため、「リグニン」という用語はGユニットモノマーのみを指します。道管などの一部の組織は常にリグニン化しています6。それ以外では、アルファルファの茎組織におけるリグニン沈着は、二次(形成層)成長が開始したときに始まり、茎の節間伸長の停止と一致します6。ルテニウムレッドは、時にエステル化され、一部の側鎖を共有するカルボキシル基を含むペクチン物質に結合します11。中層および一次細胞壁に存在するペクチンのカルボキシル基がルテニウムレッドと相互作用します11。ペクチンは細胞伸長に関与しているため、一次成長中の細胞に存在します。本稿を通じて、「ペクチン」という用語は、一般に存在する可能性のある一連のペクチン類を指します。組織学的染色とルーメン in vitro 培養を組み合わせることで、茎における細胞壁成分の位置の観察が容易になり、ルーメン内消化中に異なる細胞タイプがどのように変化するかが明確になります。最終的に、このプロトコルは、リグニンおよびペクチンを含む茎細胞を特定し、アルファルファの系統間や培養時間におけるパターンを特性評価するために利用可能です。
プロトコル
本研究は、動物実験に関する機関ガイドライン(IACUC 2301-40689B)に従って実施されました。
1. サンプルチューブへのラベル貼付
- インキュベーション、保存、および染色のためのサンプルチューブの準備とラベル貼付
- 各サンプルに対し、使い捨てのねじ蓋付き50 mLコニカル遠心チューブを5セットずつ用意し、あらかじめラベルを貼る。以下に述べる用途に合わせて、各チューブにサンプル識別子とインキュベーション時間を記入する。
- 前インキュベーション保持用チューブにラベルを貼り、35 mLの超純水を加える。
- セクション3および4で使用するインキュベーション用チューブにラベルを貼る。チューブをインキュベーション時間(0、4、8、24、48、または96 h)ごとに別々のラックに整理する。
注:ウォーターバス内でラベルが消えないよう、工業用耐水性マジックを使用すること。 - インキュベーション後保存用チューブにラベルを貼り、100%グリセロールと超純水を50:50で混合した液を35 mL加える。これらのチューブを用いて、染色までスライド上の消化済み横断面を保存する。
- 前染色用チューブにラベルを貼り、200プルーフエタノールと超純水を50:50で混合した液を35 mL加える。これらのチューブを用いて、染色の前に横断面からグリセロールを抽出する。
- 水和用チューブにラベルを貼り、35 mLの超純水を加える。
2. 茎の横断切片作成とスライドへの封入
- ピンセットを用いて、サンプル茎から茎セグメントを1つずつ選択し、セグメントの中央部分を切り出します。
注:各生物学的反復につき、テクニカルリプリケートとしてサンプルあたり4本の茎を使用してください。各サンプルの利用可能なすべての茎から、4本の茎をランダムに選択します。すべての培養ランにおけるコントロールとして、別途標準茎のセットを使用してください。 - 押し出し法ポリスチレン硬質フォーム断熱材を、長さ約2.5 cm、厚さ0.6 cmの長方形に2枚切り出します。各ピースの長手方向に沿って小さな楔形に切り込みを入れ、茎の節間が2枚のフォームの間にぴったりと収まるようにします。
- 100 μm厚の切片を作成可能なスライディングマイクロトームのステージに、茎を「サンドイッチ」状に固定します。細い筆を用いて、茎とマイクロトームの刃に水を1滴垂らし、切断をスムーズにします。
- 茎の横断面を100 μmの厚さに切断します。筆を用いて、各横断面を一時保存用の超純水が入ったラベル付け済みのペトリ皿に移し、皿からフォームを取り除きます。
注:フォームに裂け目が入った場合は、刃が鈍くなっている可能性があるため、マイクロトームの刃を交換してください。 - 各培養時間の各サンプルについて、標準的な25 mm × 75 mmのガラススライドを2枚、手書きでラベル付けします(2種類の染色 × 6つの時間点 = 各生物学的反復につきサンプルあたり12枚のスライド)。各ラベルにサンプル識別子、培養時間、および染色法を記載します。
- 幅2 mmの両面テープを2.5 cmの長さに切り出します。テープの短辺をスライドの下端から0.5 cmの位置に配置し、粘着面を下に向けて、手袋を着用した状態でテープの剥離紙側をしっかりと押し付けて密着させます。
注:ガラススライドの破損を防ぐため、この操作は平らな表面で行ってください。 - 解剖顕微鏡を使用して、すべての横断面を同じ方向に向けて配置します。両面テープから剥離紙を取り除き、横断面の向きを維持したまま、濡らした細い筆を用いてラベル付け済みのガラススライド上のテープに移します。横断面はわずかに湿った状態に保ちます。
- 横断面の上に剥離紙を置き、筆で軽く転がして横断面を両面テープにしっかりと固定します。剥離紙を取り除き、4つの横断面を固定したスライドを、ステップ1.1.2で述べたラベル付け済みの保持チューブに入れ、超純水が固定した横断面を覆っていることを確認します。
- ルテニウムレッド染色とWiesner染色の両方を行う場合は、両面テープを外側に向けて、2枚のスライドを背中合わせに各保持チューブに入れます。
注:すべてのスライドを固定し、超純水を含むチューブに入れた後、必要に応じて室温で一晩保存してください。
3. 茎横断面のin vitro培養の準備
- インキュベーション用に準備した使い捨てのスクリューキャップ付き50 mL遠心チューブ(1.1.3参照)を使用する。各インキュベーション間隔のすべてのサンプルチューブを、1つのプラスチックラックにまとめておく。
- 小数点以下4桁まで測定可能な分析天秤を使用して、1 mmに粉砕したトウモロコシ茎の標準物質0.2 gを計量紙に量り取り、非インキュベート対照となる0 hのチューブを除く各インキュベーションチューブに慎重に移す。チューブにキャップをし、使用するまで置いておく。
注:茎の横断面のバイオマス量では微生物活性を維持するのに不十分であるため、トウモロコシ茎の標準物質を用いて、インキュベーション中のルーメン微生物を維持するためのエネルギーを供給する。 - 循環水槽に十分な量の水を満たし、インキュベーションを開始する前に39 °Cに温度を等しくする。水深を50 mLチューブの35 mLの標線まで浸かるように調整し、必要に応じてエアレーターを使用して、均一な水の循環と温度を維持する。
- 接種液用McDougall緩衝液の調製
- インキュベーション開始の2日前までにMcDougall緩衝液を調製する。
注:McDougall緩衝液とルーメン液を4:1の比率で混合して接種液を調製する。サンプル数に合わせて緩衝液の量を調整し、1本あたり30 mLとなるように十分な量の接種液を調製する。 - 超純水1,600 mLを計量する。1 Lを3 Lの平底エルレンマイヤーフラスコに移し、残りの600 mLは試薬の移送および洗浄用ににとっておく。
- エルレンマイヤーフラスコにマグネチックスターラーバーを入れ、フラスコをスターラープレートの上に設置する。
- エルレンマイヤーフラスコにプラスチック製漏斗を設置する。15.7 gの炭酸水素ナトリウム (NaHCO₃)、5.9 gの無水リン酸水素ナトリウム (Na₂HPO₄)、0.91 gの塩化カリウム (KCl)、0.75 gの塩化ナトリウム (NaCl)、0.19 gの硫酸マグネシウム七水和物 (MgSO₄·7H₂O)、0.06 gの塩化カルシウム二水和物 (CaCl₂)を順に加える。各試薬を1つずつ加え、次の試薬を加える前にそれぞれ完全に溶解させる。試薬を加えるたびに、にとっておいた600 mLの超純水の一部を用いて漏斗を洗浄する。
- 塩化カルシウム二水和物を加えた後、溶解を促進させるためにCO₂ディフューザーを挿入し、溶液をスパージングする。溶液が透明になった後、さらに10–15分間スパージングを継続する。
- 緩衝液を加熱すると容器内が加圧される可能性があるため、フラスコをしっかりと密栓し、栓をマスキングテープで固定する。
- 溶液を20 °Cで最大2日間保存する。使用前日に39 °Cの水槽に入れるか、翌日使用する場合は直接39 °Cの水槽に入れる。
- インキュベーション開始の2日前までにMcDougall緩衝液を調製する。
4. 茎横断切片のin vitro培養
- 培養当日、ドラフトチャンバー内で100 mLビーカーに47 mLの水と4 mLの1 N NaOHを入れ、0.625 gのシステイン-HClを加える。別の100 mLビーカーに、47 mLの水と0.625 gの硫化ナトリウムを加え、接種液が準備できるまでこれら2つの溶液を分けておく。
- 牛から研究室までルーメン微生物を輸送するための温暖な環境を維持するため、断熱魔法瓶に熱湯を満たします。また、魔法瓶から熱湯を移し替えるための5ガロンバケツを用意してください。
- 畜舎へ向かい、畜舎管理者に実験用として割り当てられたキャニュラ装着牛からルーメン液を採取します。
注:個体差による変動を最小限に抑えるため、実験期間中は、同一の牛から、かつ一日のうちほぼ同じ時間帯にルーメン液を採取してください。ルーメン液を採取するために畜舎に赴く際は、事前に畜舎の管理者に通知し、調整を行ってください。 - 実験に使用する牛を特定し、白衣、保護メガネ、シューズカバー、肩までの長さの手袋を含む適切な個人用保護具を着用してください。
注:ステップ4.4~4.8の手順は、該当するIACUCプロトコルに基づき権限を与えられた職員のみに制限してください。 - 魔法瓶から温水を5ガロンバケツに移します。ルーメン内容物をろ過するため、50メッシュのガーゼ(チーズクロス)を2層に準備します。
- カニューレ装着牛からのルーメン液の採取
- カニューレを慎重に開き、ストッパーが汚染されないよう、温水を入れた5ガロンバケツの中にストッパーを置く。手袋を着用した手で、ルーメンの固液界面に到達するまで十分な量の内容物を除去する。
- 固液界面に達したら、材料を数回分手で採取し、約45 cm四方のグレード50ガーゼを2層に重ねて、あらかじめ温めておいたスクリューキャップ付きの魔法瓶の中に絞り出します。ガーゼを通してルーメン液を絞り出した後、残った不要な材料は廃棄してください。
- 接種チューブ60本1セットにつき、魔法瓶の中に1 Lのルーメン液が溜まるまでステップ4.6.2を繰り返します。その際、培養するサンプル数に応じて液量を調整してください。
注意:カニュレートされた牛から1週間に採取できるルーメン液の量には制限があります。採取量が牛ごとの制限量を超えないよう、畜舎管理者と連携してください。
- 十分な量のルーメン液を採取した後、温度を維持するために魔法瓶の蓋をしっかりと閉める。カニューレを再装着し、5ガロンバケツ内の温水を使用して洗浄を行う。
- 畜舎を出る際、汚れたブーツカバー、手袋、およびガーゼを適切な廃棄容器に捨ててください。ルーメン液の温度と無酸素状態を維持するため、速やかに研究室に戻ってください。
- 研究室に戻ったら、ドラフトチャンバー内で2つの還元剤溶液(4.1参照)を合わせ、混合して還元溶液を調製します。
- 大型の撹拌子を入れた容量2 L以上のガラス製ビーカーを、以下の設定にした加熱撹拌プレート上に置きます。 <30 °C、そしてCOを配置します。₂ 液面の上にディフューザーを配置する。1,600 mLのマクドゥーガル緩衝液を加え、CO2が流入しないようにゆっくりと撹拌する。₂ ディフューザーが液体に接触するようにします。
注:この低温条件下では、必要に応じてポリプロピレン製ビーカーを使用してください。COを使用します。₂ Oを置換するために₂ および、無酸素状態の維持を助けます。 - 大型の漏斗に50メッシュのガーゼを2層に重ねて敷き、それを2 Lメスシリンダーの上に設置する。ルーメン液400 mLをろ過し、McDougall緩衝液(3.4.7参照)に加えて接種液を調製する。
- 還元溶液(4.9参照)80 mLを接種溶液に加え、ゆっくりと混ぜ合わせる。CO₂を保持し...₂ ディフューザーが液体に接触するのを防ぎます。
- ドラフト内で、インキュベーションチューブのキャップを取り外し、インキュベーション時間ごとに別々のラックに整理します。スライドを転送する準備として(1.1.2参照)、プリインキュベーション保持チューブのキャップを開けておきます。
- プリインキュベーション保持チューブを1本ずつランダムに選び、ピンセットを用いて、スライドが装着されたガラススライドを対応するインキュベーションチューブへ移します(1.1.3参照)。装着済みスライドが入った各インキュベーションチューブを小型サンプルラックに配置し、プリインキュベーション保持チューブは脇に置いておきます。
注:ステップ4.14から4.15の操作は2名で実施してください。可能な限り、ルーメン液と緩衝液の混合液の冷却を最小限に抑えてください。 - 鈍端の太ゲージ針を装着した60 mLシリンジに、接種液30 mLを吸い込む。培養チューブの壁面に沿ってゆっくりと溶液を注入し、チューブ内をCO2でパージする。₂ 約20秒間行い、チューブにキャップをしてラックに戻します。
- 接種したチューブが入ったラックを、~に設置します。 39 °C ウォーターバスに入れます。不均一な加熱を最小限に抑えるため、少なくとも1日1回チューブを軽く振り混ぜ、ラックの配置を毎日変更してください。
注:チューブ内に気泡が形成されたことは、活発な発酵が行われていることを示します。 - 各インキュベーション期間の終了時に、対応するラックをウォーターバスから取り出します。チューブを1本ずつ開封してスライドを取り出し、超純水で固形物と残留接種液を穏やかに洗い流します。
- 洗浄したスライドを、ステップ1.1.4で記述したグリセロール水混合液を含むインキュベーション後の保存チューブに入れる。
5. リグニンの横断面染色
- スライドを50:50のグリセロール-水混合液で保存していた場合は、横断切片を封入した両方のスライドを、エタノール-超純水溶液(1.1.5を参照)を含む染色前リンスチューブに移す。染色の前に、グリセロールを除去するため、チューブを冷蔵庫に一晩保存する。
- 光感受性試薬を光から保護するため、アルミホイルで包んだ25 mLエルレンマイヤーフラスコ内で、0.3 gのフロログルシノール(PG)を10 mLの無水エタノールに溶解し、3% PG溶液を調製する。フラスコに栓をし、溶液名、調製日、調製者名を記載したラベルを貼り、20 °Cで保存する。
- 冷蔵保存していたチューブからスライドを取り出し、ステップ1.1.6で説明した100%超純水を含む親水化チューブに一時的に移す。
注:切片の損傷やその後のイメージングへの影響を及ぼす酸化を最小限に抑えるため、取り扱い中は横断切片を親水状態に保つ。 - ドラフトチャンバー内でピペッターを使用し、50 μLの3% PGエタノール溶液(5.2を参照)と25 μLの塩酸(HCl)を50 mLビーカーに混ぜ合わせて、ウィズナー(Wiesner)染色液を調製する。
注:PGとHClの比率を2:1に維持しながら、スライドの枚数に合わせて分量を調整する。
注意:塩酸は金属を腐食させ、激しい皮膚炎症および眼の損傷を引き起こし、呼吸器への刺激を誘発する可能性があるため、ドラフトチャンバー内で取り扱うこと。蒸気やエアロゾルの吸引を避け、適切な保護手袋、保護衣、眼の保護具および顔面保護具を着用し、取り扱い後は露出した皮膚を十分に洗浄すること。 - チューブからスライドを1枚取り出し、染色液がテープから流れ出さないよう、低リントティッシュで両面テープ周囲のガラス面を軽く拭き取る。スライドを小型プラスチックトレイに置き、ピペットを使用してウィズナー染色液を横断切片の上に数滴滴下する。
- タイマーを12分に設定し、光から保護するためスライドをアルミホイルで覆う。染色中に横断切片を確認し、乾燥を防ぐために必要に応じて染色液を塗り直す。
注:酸化によって組織が損傷し、その後のイメージングに影響が出る可能性があるため、横断切片を乾燥させないこと。 - 12分後、低リントティッシュで過剰なウィズナー染色液を静かに除去する。腐食性のあるHCl蒸気に顕微鏡の対物レンズがさらされるのを最小限にするため、封入前に組織を洗浄する。
- 各横断切片の上に50%グリセロール-超純水を1~2滴滴下し、24 mm × 30 mmのカバーガラス(厚さNo. 1.5)で覆う。直ちに顕微鏡分析およびイメージングを行う。
注:ウィズナー染色は時間経過に伴い黄色に変化し、横断切片から拡散する可能性があるため、6~8時間以内に画像を撮影すること。
6. ペクチンの横断染色
- 染色前に、ステップ5.1に従って保存済みスライドからグリセロール・超純水混合液を除去する。
- 光感受性試薬を光から保護するため、アルミホイルで包んだ125 mLエルレンマイヤーフラスコ内で、0.02 gのルテニウムレッドを100 mLの超純水に溶解させ、0.02%ルテニウムレッド溶液を調製する。フラスコに栓をし、溶液名、調製日、調製者名を記載したラベルを貼り、20 °Cで保存する。
- 冷蔵保存したエタノール・超純水チューブからスライドを取り出し、切片が封入され適切にラベル付けされたスライドを、一時保持用の100%超純水(1.1.6参照)が入ったチューブに移す。
注:ステップ5.3に記載されている水和時の注意事項に従うこと。 - ピンセットを用いて超純水からスライドを1枚取り出し、染料がガラス部分に流れないよう、テープ周囲の水分を低リンターティッシュで吸い取る。スライドを小型プラスチックトレーに置く。
- 横断切片を均一に覆うように、ルテニウムレッド溶液(6.2参照)を数滴滴下する。光から保護するため、スライドをアルミホイルで10分間覆い、その後、超純水で2分間静かにすすいで染料を落とす。
- スライド上の余分な水分を吸い取り、各横断切片の上に50%グリセロール・超純水を1~2滴滴下する。24 mm × 30 mmのカバーガラス(厚さNo. 1.5)で横断切片を覆い、顕微鏡分析およびイメージングに進む。
注:最良の結果を得るため、顕微鏡分析は同日中に実施すること。
7. 明視野イメージング
- 顕微鏡を用い、明視野照明下で10倍の倍率で断面を観察する。×, 20×、および40× 倍率。参照 表1 画像取得のパラメータおよび設定について。
結果
遠心チューブを用いてルーメン条件を模倣することで、Medicago sativaの茎の横断面を、比較的迅速かつ安価にin vitro消化させることが可能となった。スライディングマイクロトームを用いて、厚さ100 μmのM. sativa茎の横断面を調製した(図1A)。茎の横断面を両面テープでガラススライドに固定し(図1B)、4時間から96時間の範囲のインキュベーション期間でルーメン液接種溶液に浸漬させた(図1C)。in vitroインキュベーションには、蓋付きの使い捨て50 mL遠心チューブをインキュベーション容器として使用し、インキュベーション期間を通じてルーメン微生物を維持させるため、1 mmに粉砕したトウモロコシ茎基質0.2 gを添加した。チューブを39 °Cに維持したウォーターバスでインキュベートした(図1D)。ルーメン微生物による活発な発酵は、接種溶液中に形成される気泡によって視覚的に確認した。本プロトコルに必要な材料は、一般的な湿式化学実験室で入手可能である。両面テープは、ルーメン液にさらされた際の組織分解を妨げなかったが、消化後に残った茎の部分を保持したため、その後の染色および顕微鏡観察が可能となった。
in vitro培養を行わなかった茎の横断面(0 h)により、さまざまな茎組織における初期の細胞壁構成要素の可視化が可能となった。ヴィスナー染色の施された横断面では、リグニンに関連する染色を示す組織が特定され(Figure 2A–E)、ルテニウムレッド染色の施された横断面では、ペクチンに関連する染色を示す組織が強調された(Figure 3A–E)。ヴィスナー染色の切片において、成熟した一次師部繊維はフクシア色の染色を示した(Figure 2B–E)。道管および維管束間 xylem も同様にフクシア色の染色を示した(Figure 2B–D)。ルテニウムレッド染色は、表皮、厚壁組織、葉肉組織、二次師部(Figure 3B–E)、および髄(Figure 3B–D)で観察された。一部の維管束間 xylem および一次師部繊維もルテニウムレッドで染色された(Figure 3B–E)。茎の全横断面は、10×倍率で取得した画像の5 × 5グリッドを繋ぎ合わせることで可視化した(Figure 2AおよびFigure 3A)。茎の横断面の同一領域について、10×(Figure 2BおよびFigure 3B)、20×(Figure 2CおよびFigure 3C)、および40×倍率で、維管束形成層の上側(Figure 2DおよびFigure 3D)と下側(Figure 2EおよびFigure 3E)の追加画像を撮影した。
〜のウィズナー染色組織 *M. sativa* すべての試料において、茎の横断面が確認された。 in vitro 0時間から96時間までのインキュベーション(図4A–F)。0時間において、すべての細胞は明瞭な境界を有している(図4A). 後で 8時間後、薄く木化していない(すなわち、染色されていない)細胞壁を持つ細胞(例:厚角組織)の縁のぼやけや、細胞(例:二次篩部)の消失から、組織の分解が認められた。24時間後には、周囲の組織が分解されるにつれて、道管のらせん状の三次元構造がより明確になった(図4D). 24時間を経過すると、未染色の細胞は徐々に分解され、消失した(図4D–F)。これらの組織が分解されるにつれて、解剖学的支持が失われたことで、染色されていない表皮が側方に崩壊し、24時間、48時間、および96時間において、薄い透明な細胞の帯のような外観を呈した(図4D–F).
M. sativa茎の横断切片をin vitroでインキュベートし、ルテニウムレッド染色を行ったことで、ルーメン液に0~96 h曝露させた後の茎組織におけるペクチン関連染色の可視化が可能となった(Figure 5A–F)。0~4 hでは、すべての細胞の周囲に明確な縁が見られ、細胞が完全な状態であることが示された(Figure 5A,B)。インキュベーション時間が8 hに達すると、厚壁組織、葉緑組織、および二次師管を含む皮層の薄い非木化細胞壁を持つ組織が漸次的に構造的完全性を失い、その結果、細胞の縁が不鮮明になった(Figure 5C)。24、48、および96 hでは、周囲の皮層組織の大部分が消失したが、表皮、束間木部、髄、および維管束組織の一部は依然として視認できた(Figure 5D–F)。周囲の解剖学的構造の消失に伴い、表皮領域の側方向への崩壊が起こった。96 hまでには、それ以前のインキュベーション時間よりもルテニウムレッドで染色された組織が大幅に減少していた(Figure 5F)。全体として、インキュベーション中の茎組織の漸次的な消失は、ルテニウムレッド陽性に染色される細胞の減少を伴っていた。ペクチンは時間の経過とともに容易に分解されるため、薄く非木化されたペクチン関連細胞の分解および消失は予想された結果であった。
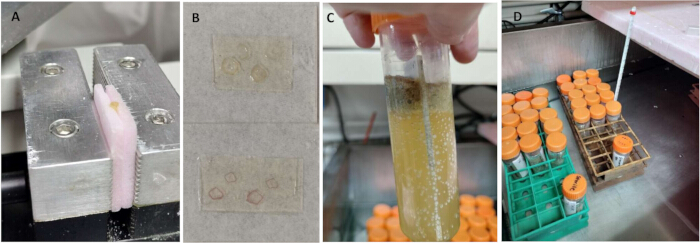
図1: アルファルファ茎横断面のin vitroインキュベーション。 (A) アルファルファ茎のセグメントを2枚の発泡スチロール硬質断熱材で挟み、横断面を作成するためにスライド式ミクロトームステージに固定した。(B) 厚さ100 μmの横断面4枚を、in vitroインキュベーションおよび組織学的染色のために両面テープでガラススライドに固定した。(C) 30 mLのルーメン液緩衝接種液と0.2 gの1 mm粉砕トウモロコシ茎を含む50 mLチューブに、両面テープを外側に向けて2枚のガラススライドを背中合わせに配置した。チューブ内をCO₂でパージし、キャップを閉じてインキュベートした。インキュベーション中、チューブの側面に沿って気泡が発生したことは、ルーメン微生物による活発な発酵を示している。(D) 50 mLチューブを保持するラックを、インキュベーション期間中ずっと39 °Cの恒温水槽に維持した。水位は接種液を覆うように設定したが、チューブの開口部より低く保ち、チューブ内に水が入るのを防いだ。こちらのリンクをクリックして、この図の拡大版を表示してください。
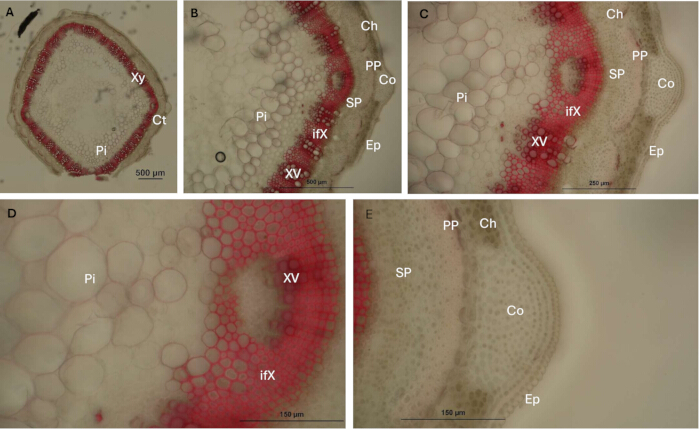
図 2: アルファルファ茎組織のWiesner染色は、リグニン化した細胞壁成分の分布を示す。 (A–E>) 未消化のアルファルファ茎横断面(インキュベーション時間 = 0 h)を、Wiesner染色を示す茎組織を特定するための初期参照とした。道管 (XV)、束間木部 (ifX)、および成熟一次師部繊維 (PP) がフクシア色に染色されている。倍率およびスケールバー: (A>) 10×倍率で取得した画像の5 × 5グリッド接合画像、スケールバー = 500 μm; (B>) 10×, スケールバー = 500 μm; (C>) 20×, スケールバー = 250 μm; (D, E>) 40×, スケールバー = 150 μm。略語: Xy = 木部; Ct = 皮層; Pi = 髄; Ep = 表皮; Co = 組織; Ch = 葉緑組織; SP = 二次師部; XV = 道管; ifX = 束間木部; PP = 成熟一次師部繊維。こちらのリンクをクリックして、この図の拡大版を表示してください。
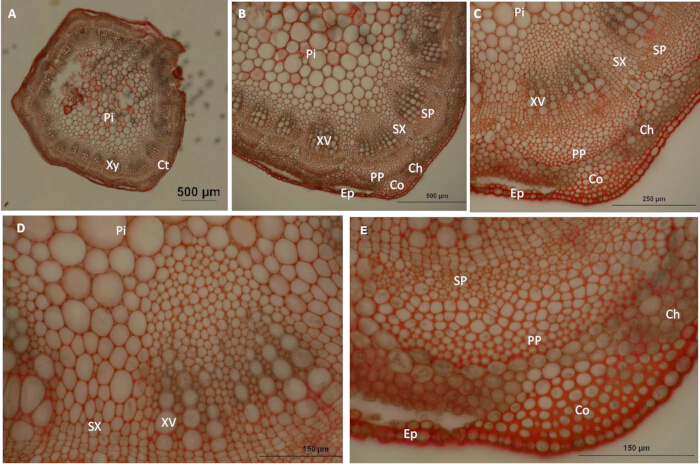
図 3: アルファルファ茎組織のルテニウムレッド染色は、細胞壁におけるペクチン多糖類の分布を示す。(A–E>) 未消化のアルファルファ茎横断面(インキュベーション時間 = 0 h)を、ルテニウムレッド染色を示す茎組織を特定するための初期リファレンスとして使用した。表皮 (Ep)、厚角組織 (Co)、葉緑組織 (Ch)、二次師管 (SP)、および髄 (Pi) が赤色の染色を示した。二次道管 (SX) および成熟一次師管 (PP) も染色を示したが、道管元素 (XV) は比較的未染色のままであった。倍率およびスケールバー:(A>) 10倍で撮影した画像を5 × 5に繋ぎ合わせたグリッド画像、スケールバー = 500 μm;(B>) 10倍、スケールバー = 500 μm;(C>) 20倍、スケールバー = 250 μm;(D, E>) 40倍、スケールバー = 150 μm。略称:Xy = 道管;Ct = 皮層;Pi = 髄;Ep = 表皮;Co = 厚角組織;Ch = 葉緑組織;SP = 二次師管;XV = 道管元素;SX = 二次道管;PP = 成熟一次師管。こちらのリンクをクリックして、この図の拡大版を表示してください。
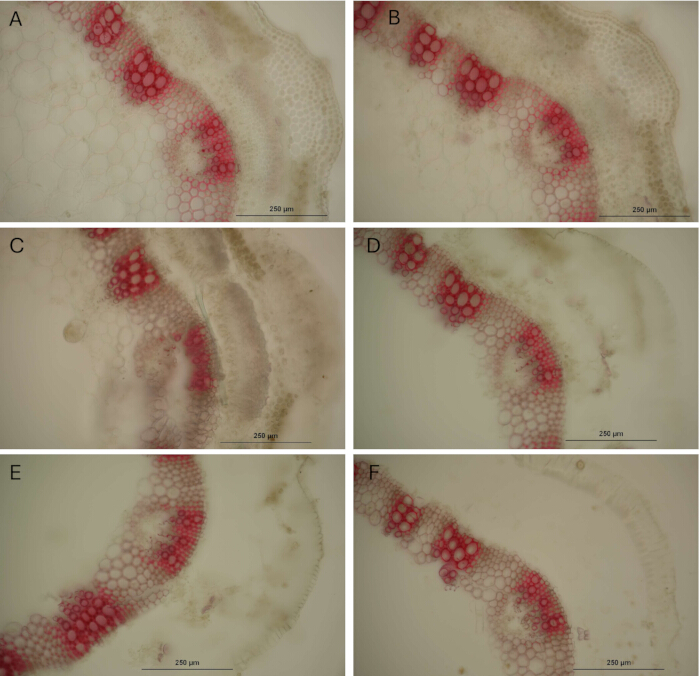
図 4: in vitroでの培養およびWiesner染色の後のアルファルファ茎組織の変化。 同一節間からのアルファルファ茎横断面を、ルーメン液を用いて(A) 0 h, (B) 4 h, (C) 8 h, (D) 24 h, (E) 48 h, および (F) 96 hの間、in vitroで培養した。道管(XV)、束間道管(ifX)、および成熟一次師部繊維(PP)は、培養期間を通じてWiesner染色を保持していた。未成熟な茎組織では、ifXの染色は淡かった。培養時間が長くなるにつれて、周囲の組織は漸次的に構造的完全性を失い、残存する染色された維管束構造がより顕著になった。スケールバー = 250 μm。この図の拡大版を表示するには、ここをクリックしてください。
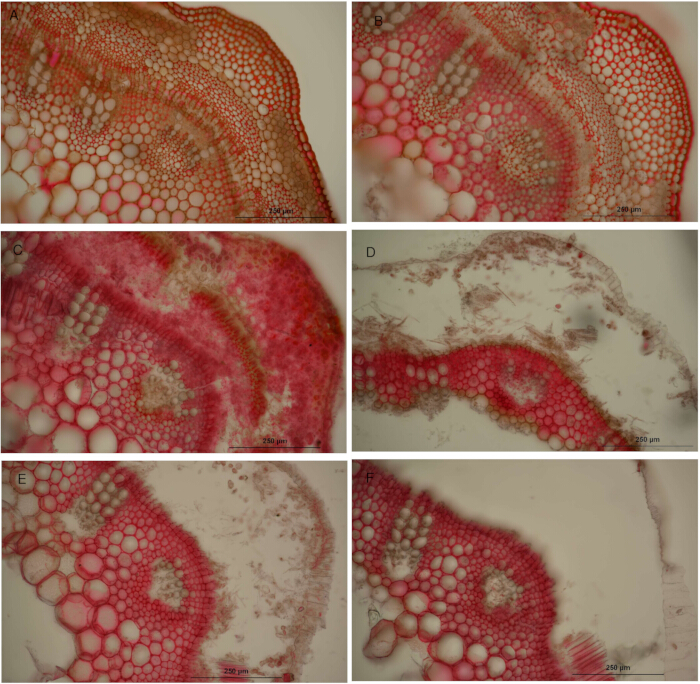
図 5: in vitroでの培養およびルテニウムレッド染色後のアルファルファ茎組織の変化。 同一節間のアルファルファ茎横断面を、ルーメン液を用いて(A) 0 h、(B) 4 h、(C) 8 h、(D) 24 h、(E) 48 h、および(F) 96 hの間、in vitroで培養した。ルテニウムレッド染色は多くの茎組織で観察されたが、道管(XV)は比較的染まっていない状態であった。培養時間の経過に伴い、組織構造の漸進的な消失とルテニウムレッド染色の減少が観察された。培養時間が経過した後も、道管の一部、節間木部(ifX)、および表皮領域(Ep)は視認可能であった。スケールバー = 250 μm。ここをクリックして、この図の拡大版を表示してください。
| パラメータ | 設定 |
| 高速(フォーカス) | 2000 × 1328 |
| 品質(キャプチャ) | 2000 × 1328 |
| カラーモード | RGBカラー |
| ビット深度 | チャンネルあたり8ビット |
| 有効色深度 | 24ビットRGB(8ビットR + 8ビットG + 8ビットB) |
| ゲイン | 2 |
| 10倍倍率における露光時間 (ms) | 30 |
| 20倍倍率における露光時間 (ms) | 50 |
| 150倍倍率における露光時間 (ms) | 150 |
表1:イメージングのための顕微鏡およびカメラの設定 デジタルカラーカメラとイメージングソフトウェアを備えた正立顕微鏡を用いた明視野イメージングに使用した顕微鏡、カメラ、および画像取得の設定。
ディスカッション
本研究で使用したアルファルファ材料は、5つのアルファルファ系統のクローンで構成された。2つの実験系統は、2サイクルの方向性選択を経て選定された。 in vitro 16時間IVNDFDおよび96時間IVNDFDがともに低い母植物、または16時間IVNDFDおよび96時間IVNDFDがともに高い母植物における中性洗剤不溶性繊維消化率(IVNDFD)12. また、遺伝的背景が不明な3つの市販系統も本研究に含まれ、近赤外分光分析に基づいて、(a)リグニン含量が最大、(b)リグニン含量が最小、および(c)中性デタージェント繊維(NDF)および酸性デタージェント繊維(ADF)が最小である個体を母株として選定した。これら5つのアルファルファ系統を、2021年5月に温室から米国ミネソタ州の2か所の反復圃場試験区へ移植した。各生育期の1回目および2回目の刈り取りにおいて、植物の成熟段階である栄養成長期、初期蕾期、初期開花期、開花期、および緑莢期のそれぞれで、各系統から10本の茎を採取した。各茎の基部から7番目の節間を切り出し、横断面のインキュベーションまで保存するため、200プルーフのエタノールと超純水を50:50で混合した溶液を含む50 mLチューブに入れた。この手法は、7番目の節間を研究単位として選択した、当研究グループが1990年代に実施した先行研究に基づいて開発されたものである。4,6.
In vitroでのルーメン液を用いた培養とアルファルファ茎の組織学的染色は、分解した茎組織における細胞壁成分の沈着パターンの知見を得るために行われた。in vitro培養により、アルファルファの茎がルーメン内で受ける分解の程度をシミュレートし、その後の組織学的染色によって、一定時間の微生物消化後も検出可能であった細胞内のリグニンとペクチンを可視化した。スライディングミクロトームを使用することで、断面の厚さを標準化し、結果に影響を及ぼす可能性のある切片作製時のアーティファクトを最小限に抑えた13。本プロトコルではリグニンとペクチンのみを検討したが、トルイジンブルー、アストラブルー、Direct Red 23などの代替染色剤を用いて、これらおよびその他の細胞壁成分の組織学的染色を行うことも可能である14,15,16。さらに、偏光を用いて細胞壁内のセルロースを検出したり、サフラニンOなどの蛍光試薬を用いてリグニン17や細胞壁多糖類を可視化したりすることもできる。加えて、抗体を用いて特定のペクチンを標識することも可能である18。本プロトコルは、アルファルファ以外の他の種にも適用できる。ただし、染色の反応性は、種、遺伝子型、発育段階、および環境条件によって異なる可能性がある19。
低コストの両面テープを用いて茎の横断面をガラススライドに接着する方法は、以前に報告されている6,20。このin vitro培養プロトコルを開始する前に、数日間の液体浸漬に耐え、かつ容易に入手可能な両面テープを特定する必要があった。用途や厚さが異なる数種類のテープを評価した。簡潔に述べると、1インチの長さの両面テープと茎の横断面をガラススライドに貼付し、1週間にわたり様々な期間、水に浸漬させて、スライドへの接着性が維持されるかを確認した。一部の両面テープはガラススライドから剥離し、また別のテープは液体に長時間さらされることで不透明になった。テープの透明性が失われると、顕微鏡観察の妨げとなり、茎の横断面の高画質な画像を取得できなくなった。試験した接着剤の中では、ビニール製両面テープが最も優れた性能を示した。元の実験で使用されたテープは1990年代に購入されたものであり、効果は維持されていたが、その後の実験で同一製品を入手することはできなかった。したがって、選択したテープは、使用前に、テープと横断面の両方が培養期間を通じて接着したままであることを確認するためのテストを行うべきである。また、高画質な画像を取得できるよう、テープは透明性を維持している必要がある。
本プロトコルのin vitro培養工程には、綿密な計画と調整を必要とする、時間に制約のある複数のステップが含まれています。in vitro培養手順に要する合計時間は、実験の規模によって異なります。例えば、茎の横断面の堅牢なデータセットを作成するために、各サンプル × in vitro培養時間間隔 × 染色法の組み合わせにつき、4つの異なるアルファルファの茎を各スライドにマウントしました。16サンプル、6つの培養時間間隔、2種類の染色法の場合、1回のin vitro培養ランにつき計768個の茎の横断面が必要となります。768個の横断面の作製に約8時間を要し、作製後の断面は超純水を入れたペトリ皿で一晩保存し、翌日にマウントすることが可能です。マウント前に、192枚のガラススライドと96本の遠心チューブ(50 mL)にラベルを貼る必要があります。断面のマウントにはさらに8時間を要しました。これは、茎組織間の比較を容易にするため、培養時間間隔および染色法間で断面の向きを一定に揃えたためです。この手法は、断面をランダムにマウントする方法よりも時間を要します。マウントしたスライドは、翌日のin vitro培養の開始まで、超純水中で一晩保存しました。アルファルファ茎の横断面の作製とマウントを行っている間に、McDougall緩衝液の調製も行う必要があります。この緩衝液は、in vitro培養開始の2日前までに調製し、マウントした断面に接種する前に39 °Cまで加温する必要があります。したがって、本プロトコルを完遂するためには、慎重な計画と準備が不可欠です。
Wiesner染色は、植物組織におけるリグニン関連構造を可視化するために一般的に用いられます。この染色法は比較的簡便で21 適度な特異性を持っていますが22、グアイアシル(G)リグニン単位に関連するシンナムアルデヒド末端基を染色します13。アルファルファのような双子葉被子植物では、G単位およびシリンギル(S)単位がリグニンポリマーの主要構成成分であり、H環サブユニットも存在します。したがって、Wiesner染色はSリグニンと反応しないため、茎中の総リグニン量を過小評価する可能性があります。G単位とS単位の両方が束間 xylem(木部)および一次 phloem(師部)繊維(すなわち、厚壁組織)に存在し得るため、S単位がWiesner染色に反応しない場合でも、G単位の染色によってこれらの組織におけるリグニン関連構造の存在を示すことができます。S単位を可視化し、茎中のリグニン単位をより完全に的に表現するには、Mäule染色を使用することが可能です13。また、ペクチンのルテニウムレッド染色の強度は、ペクチン酸のエステル化または脱エステル化の状態によって変動することがあります23。染色の色は、黄橙色から鮮やかな赤色まで及びます。ルテニウムレッドは複数の炭水化物と相互作用するため、この染色の使用により、組織中のペクチン量が過大評価される可能性があります11。アルファルファの茎が成熟するにつれてリグニンの割合が増加するため、古い茎ではリグニンがペクチン染色を妨げることもあります。特定の染色の色調の違いを視覚的に判別することは困難な場合がありますが、画像解析技術を用いることでこの制限を克服できる可能性があります。
ルーメン液を用いたin vitroでの培養および組織学的染色後、茎の横断面を顕微鏡下で観察し、その後の解析のために画像を撮影します。Wiesner染色は24時間以内に退色するため9、画像間で色調の一貫性を確保するために、リグニンを染色した茎の明視野顕微鏡解析は、染色当日、理想的には6~8時間以内に完了させる必要があります。ルテニウムレッド染色は時間の経過後も強度が維持されるため、当日中の撮影の重要性は低くなります。それでも、一貫性を保つためにルテニウムレッドで染色した画像も6~8時間以内に取得しました。画像は、大形式CMOSイメージセンサーを搭載した高精細・高解像度のデジタルカラー顕微鏡カメラを使用して取得しました。画像間の比較可能性を確保し、取得設定の違いによる変動を最小限に抑えるため、同一の露光量、アナログゲイン、ビット深度、画質、およびフォーカス設定を使用しました。露光不足や過剰露光を防ぎ、高品質な画像を得るために、倍率(10×、20×、40×)に応じて露光時間を調整しました。したがって、異なる露光設定に伴う変動を最小限にするため、比較は同一倍率で取得した画像間で行う必要があります。撮影設定は、使用する顕微鏡およびカメラによって調整が必要な場合があります(Table 1)。本プロトコルでは明視野顕微鏡を使用しましたが、細胞壁構成成分の可視化には、走査電子顕微鏡6,20 や蛍光顕微鏡14,15,17などの他の顕微鏡技術も用いられています。
このプロトコルにより、茎の横断面画像の膨大なデータセットが生成されました(>15,000枚)であり、これを活用することで、本プロトコルで得られた組織染色による定性的情報を、機械学習技術を用いた定量分析へと拡張することが可能である。効率的な画像解析パイプラインを構築すれば、画像からの定量データの抽出を自動化し、加速させることができる。計算機科学者と連携することで、画像の前処理、不要なノイズの除去、および複数の仮説を検証するための関心のある特徴量の抽出を行うツールの開発が促進される。機械学習の手法では、堅牢なモデル性能を確保するために、十分なサイズの適切な訓練データセットおよびテストデータセットが必要となる。より小規模なデータセットの場合は、ImageJなどの画像解析ソフトウェアを用いて関心のある形質を手動で測定するなど、より簡便な画像解析手法で分析することが可能である。24 または、顕微鏡に付随する画像解析ソフトウェアを使用して25したがって、画像の想定されるダウンストリームでの用途を検討することで、取得すべき画像の種類や枚数、およびその後の解析手法を決定する際の効率を向上させることができます。
開示事項
著者らは、潜在的な利益相反と解釈され得る商業的または財務的な関係なく本研究が実施されたことを宣言します。本出版物における商標名または市販製品への言及は、具体的な情報を提供することを唯一の目的としており、米国農務省(USDA)による推奨または承認を意味するものではありません。USDAは、機会均等を推進する提供者および雇用主です。すべての実験は、実施国である米国の現行法を遵守して行われました。
謝辞
著者は、過去の関連研究に関する知見を提供してくださったR. Ted Jeo氏に感謝いたします。また、出版用の画像作成にあたり、顕微鏡画像取得および解析ソフトウェアへのアクセスを提供してくださったミネソタ大学ツインシティズ校のUniversity Imaging Centerに感謝いたします。本研究は、米国農務省農業研究局 [062-21500-001-000D] および非援助協力協定(No. 58-5062-2-016)の支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| アルミホイル | ボードウォーク | 7106BW | 18インチ × 1,000フィート。光に敏感な染色液を遮光するために使用される。 |
| 塩化カルシウム二水和物、純度99%以上 | Sigma Life Science | C7902-500G | CAS番号 10035-04-8;McDougall用試薬’Sバッファー |
| カメラソフトウェア | Nikon | NIS-Elements AR 5.42.04 | 画像取得および解析に使用される64ビットイメージングソフトウェア |
| 二酸化炭素ガス | Matheson | UN1013 | ユーティリティグレード。調製およびインキュベーション中の無酸素状態を維持するために使用する。 |
| 循環式恒温水槽 | 精度 | — | サンプルを一定の温度に維持するために使用される、温度制御機能付き循環水槽 39 °C |
| トウモロコシ茎標準物質 | ミネソタ大学 | 該当なし | 2023年秋に米国ミネソタ州セントポールで収穫し、1 mmに粉砕して微生物基質として使用した。 |
| カバーガラス | Thermo Scientific | 3419 | 24 mm × 30 mm、厚さNo. 1.5、1 oz |
| FX大フォーマットCMOSイメージセンサー搭載のDigital Sight 10カラー顕微鏡カメラ | Nikon | MQA20000 | 明視野顕微鏡画像を取得するために使用したデジタルカラーカメラ |
| 解剖顕微鏡 | ニコン | SMZ18 | 茎の横断切片の向きと位置を調整するために使用した実体顕微鏡 |
| 両面テープ | SelloTape Office Vinyl 両面テープ | 4270 | 2 mm × 53 m;茎の横断切片をガラススライドに固定するために使用 |
| 電子天秤 | および | GH-202 | 小数点以下4桁まで読み取り可能な分析天秤 |
| 三角フラスコ (125 mL) | Kimax | 25600 | 125 mLフラスコ;5番栓適合 |
| 三角フラスコ(25 mL) | Pyrex | 4980 | 25 mLフラスコ;ゴム栓0号対応 |
| エタノール(200プルーフ) | Fisher Scientific | 04-355-720 | 染色液の調製および染色前洗浄に使用する無水エタノール |
| 押出法ポリスチレン硬質フォーム断熱材 | Owens Corning | 1407788 | 1 インチ × 2フィート × 2フィート、R-5、15 PSI フォームボード;切片作成時に茎の節間を支持するために使用 |
| ピンセット | Fisher Scientific | 10-316A | 茎節、スライド、および封入切片の操作に使用する実験用ピンセット |
| ガラススライド | FisherBrand | 125503 | 25 mm × 75 mm × 1 mm;茎の横断面の固定に使用 |
| 球形フラスコ (6 L) | Pyrex | CLS43205L-4EA | より大量の溶液の調製または取り扱いに使用する6 Lガラスフラスコ |
| グリセリン、ラボグレード液体 | Fisher Science Education | 525342C | CAS No. 56-81-5;封入剤および保存液に使用されるグリセロール |
| 50メッシュ2重ガーゼ | JINIOHEE Shop | B0FL27KXRN | 100% コットン、漂白白;ルーメン内容物およびルーメン液のろ過に使用 |
| メスシリンダー (10 mL) | Pyrex | 700024 | 液量を測定するための10 mLメスシリンダー |
| 塩酸 | Fisher | A1445-500 | CAS番号 7647-01-0。フロログルシノールと共にウィズナー染色液の調製に使用される。 |
| 工業用超強力油性マジック | シャーピー | 13601 | 極細チップ;インキュベーションチューブに耐水性標識を付けるために使用 |
| L-システイン塩酸塩水和物 | Sigma-Aldrich | C121800-10G | CAS No. 345909-32-2; インキュベーション溶液の調製に使用される還元剤 |
| 低リンターティッシュ | Kimberly-Clark | 34155 | 4.5 インチ × 8.5インチ。スライド上の余剰な液体を、繊維を残さずに吸い取るために使用する。 |
| 低プロファイルマイクロトームブレード | Leica 819 | 63065-LP | 均一な茎の横断面を作成するために使用する低プロファイル交換用ブレード |
| 硫酸マグネシウム七水和物 | Fisher Chemical | M80-500 | CAS番号 10034-99-8; McDougall用試薬’S緩衝液 |
| マグネティックスターラーバー | Fisher Scientific | 03-411-783 | 76 mm × 12 mm;緩衝液および接種溶液の混合に使用 |
| 郵送先住所ラベル | エイブリー | 5167 | 1/2 インチ × 1 3/4 インチ。サンプルおよびスライドの識別に使用。 |
| ペイントブラシ | ロー・コーネル | — | シリーズ7000、No.3 ラウンド;茎の横断切片の転送および操作に使用する細筆 |
| 蓋付きペトリ皿 | Becton Dickinson ラボウェア | 81731119 | 60 mm × 15 mm;超純水中での茎横断面の一時的な保存に使用する |
| フロログルシノール、1,3,5-トリヒドロキシベンゼン | Sigma-Aldrich | P3502-25G | CAS No. 108-73-6; Wiesner染色の調製に使用される試薬 |
| ピペット (100 μL) | Gilson | P 1000; 767547M | 染色液の分注に使用する可変容量ピペット |
| プラスチック製汎用漏斗 | Nalgene | 10-437-23E | 150 mm;試薬の転移およびろ過に使用 |
| ポリプロピレン製ビーカー(4 L) | Nalgene | 1201-4000 | 接種液の調製および混合に使用する4 L耐化学薬品性ビーカー |
| 塩化カリウム | Fisher Chemical | P217-500 | CAS番号 7447-40-7; McDougall用試薬’sバッファー |
| カミソリ | ペルソナ | 66-0089 | 厚さ0.009インチ。茎材料の手動トリミングに使用。 |
| ルテニウムレッド、アンモニア化ルテニウムオキシクロライド | シグマ | R-2751 | CAS番号 11103-72-3; ペクチン質を可視化するために使用される組織学的染色剤 |
| はさみ | Fiskars | 1063071 | テープ、フォーム、その他の消耗品の切断に使用する汎用はさみ |
| スクリューキャップ式コニカル遠心チューブ(50 mL) | Corning | 430828 | ポリプロピレン製、非発熱性。サンプルの保持、インキュベーション、洗浄、および保存に使用。 |
| スレッジマイクロトーム | Leica | 2000R | 作製に使用したスライディング/スレッジマイクロトーム 100 μm-厚い茎の横断面 |
| 炭酸水素ナトリウム、ACSグレード | Fisher Chemical | S233-3 | CAS番号 144-55-8; McDougall用試薬’s緩衝液 |
| 塩化ナトリウム | Fisher Chemical | — | CAS番号 7647-14-5;マクドゥガルの試薬’Sバッファー |
| 水酸化ナトリウム | Fisher Chemical | S318-500 | CAS番号 1310-73-2;還元液の調製に使用 |
| リン酸二ナトリウム 無水物 (Na2HPO4)2高次調和振動(HPO)4) | Sigma Aldrich | S-9763 | CAS 7558-79-4 |
| 無水硫化ナトリウム, ACS, 98.0%以上 | Oakwood Chemicals | 245960 | CAS No. 1313-84-4; インキュベーション溶液の調製に使用される還元剤 |
| スプーンラ(laboratory spoon) | Fisher Scientific | 14-375-10 | 粉末試薬の移送に使用する実験用スパチュラ |
| スターラー | Sybron製Thermolyne | 7200 | 緩衝液および接種液の混合に使用するマグネチックスターラー |
| 太い針付きシリンジ(60 mL) | Monoject | 935401028 | 接種液の分注に使用する、大口径針付き60 mLシリンジ |
| 試験管ラック | Thermo Scientific | 14-809-44 | 50 mLインキュベーションチューブの整理および保持に使用するラック |
| 温度計 | FisherBrand | 13201663 | 溶液およびウォーターバスの温度を確認するために使用する実験室用温度計 |
| 正立顕微鏡 | Nikon | Eclipse Ni | 染色した茎の横断面の可視化およびイメージングに使用する正立明視野顕微鏡 |
| ユーティリティポンプ | Little Giant Pump Co. | 502203 | モデル 2E-38N; 115 VAC, 60 Hz, 1.7 A; 水を循環させ、バスの温度を均一に維持するために使用 |
| 量量紙 | VWR Scientific Products | 12578-165 | 固体試薬およびトウモロコシ茎基質の秤量および移送に使用される使い捨て秤量紙 |
参考文献
- Cosgrove DJ. Growth of the plant cell wall. Nature Reviews Molecular Cell Biology. 2005;6(11):850-861.
- Moore KJ, Jung H-JG. Lignin and fiber digestion. Journal of Range Management. 2001;54(4):420-430.
- Barros J, Serk H, Granlund I, Pesquet E. The cell biology of lignification in higher plants. Annals of Botany. 2015;115(7):1053-1074.
- Jung HG, Engels FM. Alfalfa stem tissues: cell wall deposition, composition, and degradability. Crop Science. 2002;42(2):524-534.
- Jung HG, Lamb JFS. Stem morphological and cell wall traits associated with divergent in vitro neutral detergent fiber digestibility in alfalfa clones. Crop Science. 2006;46(5):2054-2061.
- Engels FM, Jung HG. Alfalfa stem tissues: cell-wall development and lignification. Annals of Botany. 1998;82(5):561-568.
- Akin DE. Section to slide technique for study of forage anatomy and digestion. Crop Science. 1982;22(2):444-446.
- Jung HG, Deetz DA. Cell wall lignification and degradability. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:315-346.
- Blaschek L, et al. Cellular and genetic regulation of coniferaldehyde incorporation in lignin of herbaceous and woody plants by quantitative Wiesner staining. Frontiers in Plant Science. 2020;11:109.
- Blaschek L, et al. Different combinations of laccase paralogs nonredundantly control the amount and composition of lignin in specific cell types and cell wall layers in Arabidopsis. The Plant Cell. 2023;35(2):889-909.
- Nevins DJ. Analysis of forage cell wall polysaccharides. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:105-132.
- Xu Z, Heuschele DJ, Lamb JFS, Jung H-JG, Samac DA. Improved forage quality in alfalfa (Medicago sativa L.) via selection for increased stem fiber digestibility. Agronomy. 2023;13(3):770.
- Pradhan Mitra P, Loqué D. Histochemical staining of Arabidopsis thaliana secondary cell wall elements. Journal of Visualized Experiments. 2014;(87):51381.
- De Micco V, Aronne G. Combined histochemistry and autofluorescence for identifying lignin distribution in cell walls. Biotechnic & Histochemistry. 2007;82(4–5):209-216.
- Kraus JE, et al. Astra Blue and Basic Fuchsin double staining of plant materials. Biotechnic & Histochemistry. 1998;73(5):235-243.
- Ursache R, Andersen TG, Marhavý P, Geldner N. A protocol for combining fluorescent proteins with histological stains for diverse cell wall components. The Plant Journal. 2018;93(2):399-412.
- Baldacci-Cresp F, et al. A rapid and quantitative safranin-based fluorescent microscopy method to evaluate cell wall lignification. The Plant Journal. 2020;102(5):1074-1089.
- Casero PJ, Knox JP. The monoclonal antibody JIM5 indicates patterns of pectin deposition in relation to pit fields at the plasma-membrane-face of tomato pericarp cell walls. Protoplasma. 1995;188(1-2):133-137.
- Pesquet E, Cesarino I, Kajita S, Pawlowski K. Physiological roles of lignins – tuning cell wall hygroscopy and biomechanics. New Phytologist. 2025;248(6):2674-2706.
- Jung HG, Engels FM. Alfalfa stem tissues: rate and extent of cell-wall thinning during ruminal degradation. NJAS: Wageningen Journal of Life Sciences. 2001;49(1):3-13.
- Yeung EC. A beginner’s guide to the study of plant structure. Tested Studies for Laboratory Teaching. 1998;19:125-142.
- Jensen, W.A. Botanical Histochemistry: Principles and Practice. Freeman W.H. & Co. San Francisco, CA. (1962).
- Ruzin, SE. Plant Microtechnique and Microscopy. Oxford University Press; New York, NY; 1999.
- Gronwald JW, Bucciarelli B. Comparison of stem morphology and anatomy of two alfalfa clonal lines exhibiting divergent cell wall composition. Journal of the Science of Food and Agriculture. 2013;93(11):2858-2863.
- Dai R, et al. Overexpression MsJAR1 gene increased lateral branches and plant height in alfalfa (Medicago sativa L.). Scientific Reports. 2025;15(1):16956.
再版と許可
この記事は公開されました
動画は近日公開