このプロトコルでは、胸部および腹部領域からマウス初代大動脈平滑筋細胞を単離し、培養するための再現性のある手法について説明します。この手法により、血管リモデリングや動脈瘤に関連する生物学のin vitro研究に適した生存細胞を得ることができます。
この記事について
サマリー
要約
初代大動脈平滑筋細胞(SMC)の単離および培養は、大動脈瘤を含む血管疾患の根底にある細胞メカニズムを調査するための有用なアプローチとなります。本記事では、胸部および腹部大動脈セグメントからのマウス大動脈SMCの単離および培養のための、詳細かつ最適化されたプロトコルについて説明します。本手順には、慎重な大動脈の解剖、周囲組織の除去、ならびにコラゲナーゼ、エラスターゼ、および大豆トリプシンインヒビターを用いた2段階の酵素消化が含まれ、それに続いて機械的な分散および規定の培養条件下での細胞増殖が行われます。外膜の除去や消化時間の制御など、細胞の収量、純度、および再現性を向上させるステップに特に重点を置いています。このアプローチを用いることで、初代SMCを正常に単離および増殖させることができ、特徴的な形態と増殖パターンを示すことが確認されています。本プロトコルは、初代大動脈SMCを作製するための再現可能かつ適応可能なアプローチを提供し、血管リモデリングおよび大動脈瘤の生物学に関連するin vitro研究のプラットフォームとして役立ちます。
概要
大動脈平滑筋細胞(SMCs)は血管壁の不可欠な構成要素であり、大動脈の構造的な完全性と機能的な調節の両方に寄与している。健康な血管において、SMCsはα-smooth muscle actin(α-SMA)やsmooth muscle myosin heavy chain(MYH11)などの収縮性タンパク質の発現を特徴とする収縮型表現型を維持している1,2,3。この表現型は血管緊張を維持し、細胞外マトリックスの組織化を保持する。しかし、腹部大動脈瘤(AAA)などの病理学的条件下では、SMCsは合成型および炎症促進的な状態へと表現型変容を起こす1,2,3。この移行は、増殖の亢進、サイトカインの分泌、およびマトリックス分解酵素の産生に関連しており、最終的に大動脈壁の脆弱化に寄与する4,5。
アンジオテンシンII(Ang II)誘発性大動脈瘤形成を含む動物モデルは、AAAの病態生理の解明を大きく前進させてきました1,6,7,8,9,10,11。しかしながら、これらのモデルでは、細胞経路の精密な操作や、SMC特異的なメカニズムの直接的な観察を行うことは困難です。初代培養SMCを用いたin vitroシステムは補完的なアプローチとなり、制御された条件下でのシグナル伝達経路、遺伝子調節、および細胞応答の詳細な調査を可能にします12。
その有用性にもかかわらず、マウス初代大動脈平滑筋細胞(SMC)の単離は技術的に困難です。マウス大動脈のサイズの小ささ、周囲の脂肪組織および結合組織の存在、そして外膜線維芽細胞による汚染の可能性が、いずれも細胞の純度を損なう要因となります。さらに、組織の解離と細胞生存率の維持を両立させるため、酵素消化を慎重に制御する必要があります。これらの工程における変動により、実験間や研究室間で結果に不一致が生じることがしばしばあります。
マウスの一次大動脈平滑筋細胞の単離および培養に関するプロトコルはいくつか報告されているが、その多くは酵素消化前の外膜の完全な機械的除去に依存しており、主に大動脈全体または胸部大動脈セグメントに焦点を当てている13,14。本プロトコルは、これらの手法をベースとしつつ、いくつかの技術的な改良を加えている。具体的には、組織を完全に分散させる前に外膜と中膜の分離を容易にするための短時間の酵素的前消化ステップ、断続的な緩やかな機械的分散を伴う標準化された消化条件、および胸部(THX)と腹部(ABD)の大動脈平滑筋細胞を個別に単離・培養するためのワークフローを導入している。これらの改良は、組織処理の一貫性と再現性を向上させると同時に、血管リモデリングおよび動脈瘤生物学に関する領域特異的な研究を容易にすることを目的としている。得られたSMC培養細胞は、ジーンサイレンシング、薬理学的研究、および血管リモデリングや動脈瘤生物学に関連するメカニズムの調査など、幅広いダウンストリームアプリケーションに適している。非疾患の大動脈から単離された一次SMCは、本質的に動脈瘤の表現型を再現するわけではないが、標的とした実験的操作後における動脈瘤形成に関与する細胞経路を調査するための、制御されたin vitroシステムを提供する。
プロトコル
以下に述べる手順では、体重 18–20 g の 8~10 週齢の成熟 C57BL/6J メスマウスを使用した。1 回の分離につき 2 匹のマウスを用いた。すべての動物実験は、ケンタッキー大学の施設動物ケアおよび使用委員会(IACUC)のガイドラインに従って実施され、プロトコル番号 2022-4153 の下で承認された。使用したすべての試薬および機器の詳細は、材料表に記載されている。分離および培養ワークフロー全体の概略図を 図 1に示す。
注意:ケタミンおよびキシラジンは規制物質であり、施設のポリシーおよび適用される規制に従って取り扱い、保管および廃棄してください。コラゲナーゼ type II およびエラスターゼはタンパク質分解酵素であり、皮膚、目、および呼吸器への刺激を引き起こす可能性があります。トリパンブルーは有害な染料であるため、皮膚や目への接触を避け、適切な個人用保護具を着用して取り扱ってください。すべての有害試薬は、施設の安全ガイドラインおよび製造元の指示に従って取り扱い、廃棄してください。
1. 試薬および培養培地の調製
- 分離当日に、滅菌済みの15 mLコニカルチューブを用いて、酵素消化液10 mLを調製する:
- コラゲナーゼ type II 10 mg(最終濃度 1 mg/mL)を添加する(材料表を参照)。
- 大豆トリプシンインヒビター 10 mg(最終濃度 1 mg/mL)を添加する(材料表を参照)。
- エラスターゼ懸濁液 71 µL(最終濃度 0.744 U/mL)を添加する(材料表を参照)。
- フェノールレッド不含のカルシウムおよびマグネシウム含有HBSSを用いて溶液を調製する(材料表を参照)。
- ペニシリン/ストレプトマイシン 100 µL(最終容量の1%)を添加する(材料表を参照)。
- 溶液を十分に混合し、0.2 µmナイロンシリンジフィルターを用いてろ過滅菌する(材料表を参照)。
- SMC完全培地(500 mL)を調製する。
- ベース培地として、フェノールレッド不含のDulbecco’s Modified Eagle Medium/Nutrient Mixture F-12 (DMEM/F12) 385 mLを添加する(材料表を参照)。
- チャコール/デキストラン処理済み胎児牛血清 100 mL(最終容量の20%)を添加する(材料表を参照)。
- ペニシリン/ストレプトマイシン 10 mL(最終容量の2%)を添加する(材料表を参照)。
- アムホテリシンB 5 mL(最終容量の1%)を添加する(材料表を参照)。
- 培地をろ過滅菌し、4 °Cで保存する。
- 使用前にすべての試薬を37 °Cに予熱する。
2. 組織処理の準備
- 組織処理の前に、酵素消化液を6ウェル培養プレートの4つのウェルに等量(各2.5 mL)ずつ分注し、37 °C、5% CO₂のインキュベーター内で予熱しておく。大動脈セグメント用に、2つのウェルを「THX」、2つのウェルを「ABD」として指定する。 同一の解剖学的領域からの複数のセグメントは、1つのウェルで処理することができる。
- 完全SMC培養液を入れた2つの独立した培養皿(材料表を参照)を準備し、それぞれTHXおよびABDとラベルを貼る。
- 培地を入れた培養皿を、加湿インキュベーター内で予熱する。
- 血管灌流および組織操作用に、滅菌済みHBSS 20 mLをあらかじめ準備しておく。
- 分離した大動脈の連続洗浄用に、HBSSを3 mLずつ入れた培養皿をさらに2つ準備する。
- THXおよびABD大動脈セグメントの一時保存および分離用に、HBSSを5 mLずつ入れたラベル付きの15 mLコニカルチューブ(材料表を参照)を準備する。
- 個体間の手術器具の滅菌は、洗剤による洗浄、蒸留水でのすすぎ、70%エタノールによる消毒、およびビーズ滅菌器(材料表を参照)による滅菌を行うことで実施する。
3. 動物の準備および大動脈の解剖
- ケンタッキー大学IACUCプロトコル2022-4153で承認された最終処置に従い、ケタミン(300 mg/kg)およびキシラジン(30 mg/kg)(材料表を参照)を腹腔内(IP)投与してマウスを麻酔します。
- 足指を挟んで反射反応がないことを確認し、麻酔深度が十分であることを確かめます。
- 70%エタノールを用いて手術部位を滅菌します。
- 深い外科的麻酔下で、施設およびAVMAのガイドラインに従い、心穿刺による放血後、HBSSによる経心灌流を行い、マウスを安楽死させます。
- 胸腔を開き、心穿刺を行って血液を採取します。
- 25ゲージの針を装着した10 mLシリンジを用いて、10 mLの滅菌HBSSをゆっくりと注入し、左心室から血管系を灌流します。残留血液を効率的に除去するため、灌流速度は約0.5 mL/sにすることを推奨します。
- 周囲の臓器(肝臓、肺、脾臓、胃腸管、腎臓)を慎重に取り除きます。 横隔膜の一部は大動脈に接続したまま残します。
- 横隔膜を保持したまま、大動脈根部から腸骨動脈分岐部まで大動脈を単離します。この横隔膜が、THX領域とABD領域の解剖学的境界となります (図2B)。
- 大動脈を直ちに滅菌HBSSに移します(図2A)。
4. 大動脈の洗浄および分節化
- 大動脈を入れた滅菌カルチャーディッシュを解剖顕微鏡の下に配置します(材料表を参照)。
- 微細ピンセットを用いて、脂肪組織および結合組織を慎重に取り除きます(材料表を参照)。
- 大動脈をTHXセグメントとABDセグメントに分離します。
注: THXセグメントは横隔膜直上の大動脈領域から大動脈根までであり、ABDセグメントは横隔膜直下の大動脈領域から腸骨動脈分岐部までです(図 2B)。 - 洗浄したセグメントを、後続の処理のために新鮮なHBSSが入った別々の15 mLコニカルチューブに移します。
5. 酵素消化および細胞分離
- 大動脈切片を酵素溶液中で、以下の条件でインキュベートする。 37 °C 8〜10分間。
- 酵素溶液から大動脈セグメントを取り出す。
- 指定された完全SMC培地を含む個別の培養皿に、セグメントを移送する。 THXおよびABDサンプル用。
- 粗いピンセットと精密ピンセットを用いて、大動脈から外膜層を除去する。大動脈の外表面が滑らかで半透明になり、結合組織や脂肪組織の残渣が見られなくなった時点で、外膜の除去が完了したことを確認する(図2C).
- 大動脈セグメントを新鮮な酵素溶液に移し、溶液中で直接、中膜を小さな断片に細切する(図3A).
- 組織片を〜でインキュベートする 37 °C 5% CO2濃度の加湿インキュベーター内にて₂ 1時間。
- 細胞の遊離を促進するため、ピペッティングで10〜15回ほどゆっくりと上下に動かし、緩やかな機械的解離を行います(図3B).
- 継続的にインキュベーションを行いながら、30~60分間隔で機械的解離ステップを繰り返し、全消化時間が2~3時間になるか、あるいは均一な細胞懸濁液が得られるまで行う。
6. 細胞の回収、洗浄、播種および初期培養
- 解離した細胞を含む酵素消化液を、THXおよびABDサンプル用に指定した個別の15 mLコニカルチューブ(材料表を参照)に移します。
- 各消化ウェルを5 mLの培地で洗浄し、対応するチューブに合わせます。
- 細胞懸濁液を室温で400 × gで5分間遠心分離します。
- ペレットの形成が不十分な場合は、遠心分離を繰り返します。
- 細胞ペレットを乱さないように上清を除去します(図 3C)。
- 5 mLの新鮮な培地で細胞を再懸濁し、追加の洗浄ステップを行い、その後同じ条件で遠心分離します。
- 上清を除去し、最終的な細胞ペレットを適切な量(通常は6 mL)の完全SMC培地で再懸濁します。
- 胸部または腹部大動脈セグメントから得られた細胞懸濁液の全量を、6ウェル培養プレートの2つのウェルに播種し(1ウェルあたり3 mL の懸濁培地)、37 °C、5.0% CO₂でインキュベートします。細胞は単離直後に、事前の細胞計数を行わずに播種するため、この段階での目標播種密度は設定しません。
- 細胞の接着と初期増殖を促すため、5〜7日間は培養物を undisturbed(刺激を与えない状態)で維持します。
一時停止ポイント:播種後、セクション7の細胞維持および増殖ステップに進むまで、培養物をインキュベーター内で5〜7日間維持することができます。
7. 細胞の維持および拡大
- 3~4日ごとに培地を交換する。
- 細胞の形態およびコンフルエンスを定期的に観察する。
- コンフルエンスが約80~90%に達した時点で細胞を継代する。
- 培地を吸引し、あらかじめ加温したリン酸緩衝生理食塩水(PBS)(材料表を参照)で細胞を洗浄する。
- 0.05% trypsin-EDTAを加え、37 °Cで5~10分間インキュベートする。
- 細胞の80%~90%が剥離したら次の工程に進む。
- 培養プレートを軽く叩いて剥離を促進させる。
- trypsinを中和するため、等量の完全培地を加える。
- ピペッティングを穏やかに行い、残りの細胞を剥離させる。
- 細胞懸濁液をコニカルチューブに移し、400 × gで5分間遠心分離する。
- 上清を除去し、新鮮な培地で細胞ペレットを再懸濁する。
- 細胞を1:2の分割比(または目的の実験密度)で播種し、37 °C、5% CO₂条件下でインキュベートする。細胞が接着するまで24~48時間静置する。
注:後続の実験では、培養による表現型のドリフトを最小限に抑えるため、継代数3回から7回(P3~P7)の細胞を使用すること。継代7回以降の細胞は表現型のドリフトが起こりやすく、形態や機能が変化する可能性がある。
8. α-SMA免疫蛍光染色による検証
- 蛍光顕微鏡観察に適した基材上で細胞を培養する。
- 96ウェル光学底プレートに、1ウェルあたり15,000個の細胞を播種する。目的のコンフルエンシーに達するまで培養する。
- 固定前の細胞調製
- 接着細胞から培地を吸引除去する。0.1% Tween 20含有Tris緩衝生理食塩水(TBS-T) を1ウェルあたり200 µL用い、1回5分間で3回洗浄し、バイオフードのバキュームで吸引する。
- 細胞の固定
- 1x PBSで調製した4%パラホルムアルデヒド(PFA)を1ウェルあたり200 µL添加する。室温で10–20分間インキュベートし、その後吸引除去する。
- 透過処理
- 1x PBSで調製した0.1% Triton X-100を1ウェルあたり200 µL添加する。室温で10–15分間インキュベートし、その後吸引除去する。
- 非特異的結合のブロッキング
- TBS-Tを1ウェルあたり200 µL用い、1回5分間で3回細胞を洗浄する。TBS-Tで調製した5%牛血清アルブミン(BSA)を1ウェルあたり200 µL添加する。
- プレートをオービタルシェーカーに設置し、室温で約200 rpmにて1時間振とうする。
- 一次抗体染色
- 5% BSA含有TBS-Tを用いて、一次α-SMA抗体を1:1,000に希釈して調製する。
- プレートをオービタルシェーカーから取り出し、α-SMA染色の指定ウェルからブロッキング溶液を吸引除去する。二次抗体のみのコントロールについては、一次抗体の添加を省略し、コントロールウェルを5% BSA含有TBS-Tのまま保持する。
- 希釈した一次α-SMA抗体を実験ウェルに1ウェルあたり200 µL添加する。実験ウェルおよび二次抗体のみのコントロールウェルを、緩やかなオービタルシェーカーを用いて4 °Cで一晩インキュベートする。
- 二次抗体染色
- 0.1% Tween 20含有TBS-Tを用いて、蛍光二次抗体を1:2,500に希釈して調製する。
- プレートをオービタルシェーカーから取り出し、すべてのウェルから溶液を吸引除去する。
- TBS-Tを1ウェルあたり200 µL用い、1回5分間で3回すべてのウェルを洗浄し、その後吸引する。
- 二次抗体のみのコントロールを含むすべてのウェルに、希釈した蛍光二次抗体を1ウェルあたり200 µL添加する。
- プレートを遮光し、オービタルシェーカーを用いて室温で約200 rpmにて1時間インキュベートする。
- 核染色および蛍光イメージング
- 2 µg/mLのHoechst 33342溶液を調製する。
- TBS-Tを1ウェルあたり200 µL用い、1回5分間で3回細胞を洗浄する。細胞が十分に浸る量のHoechst 33342染色液を添加し、遮光下、室温で10分間インキュベートする。
- 倒立蛍光顕微鏡を用い、α-SMA染色したTHXおよびABD培養は20倍の倍率で、二次抗体のみのコントロールは10倍の倍率で蛍光画像を撮影する。励起波長はHoechst 33342に385 nm、蛍光色素標識二次抗体に475 nmを使用する。二次抗体のみのコントロールを10倍で撮影したのは、視野内に十分な数の核を含めるためである。
- α-SMA陽性細胞の定量
- 明瞭なα-SMA陽性の紡錘形細胞質染色を示す細胞に随伴するHoechst陽性核をカウントし、α-SMA陽性性を評価する。蛍光信号が曖昧または不鮮明な細胞は、保守的にα-SMA陰性と判定する。
- 評価した顕微鏡視野全体でカウントしたHoechst陽性核の総数に対するα-SMA陽性細胞数の割合を算出し、100を乗じてα-SMA陽性率(%)を求める。
結果
分離後24~48時間以内に、細胞の一部が培養表面に接着して広がり始め、当初は円形の形態を示します。初期段階では細胞の接着状況にばらつきが見られる場合があり、また、初期分離時に回収された生存細胞数が限られているため、培養密度が低く見えることがあります。3~5日目までに、接着細胞は血管平滑筋細胞(SMCs)に特有の紡錘形で細長い形態へと徐々に変化し、増殖を開始して小さなクラスターを形成します。大動脈の分離、分節化、酵素消化、機械的解離、および細胞播種を含む実験ワークフローの概略図を図1に示します。
大動脈の摘出、THX領域およびABD領域への解剖学的分画、および外膜層の除去の代表的な画像を図2に示す。THXおよびABDの大動脈領域は、図2Bに示すように、横隔膜に対する解剖学的な位置に基づいて区別した。酵素消化、機械的解離、および遠心分離後の可視的な細胞ペレット形成の代表的な画像を図3に示す。
細胞数および生存率は、継代3回目でトリパンブルー排除法(1:1)および Countess Automated Cell Counterを用いて評価した。データは、計6匹のマウス(1回の分離につき2匹)を用いた3回の独立した分離から得られた。THX培養液の平均細胞数は5.10 × 10⁵ ± 7.81 × 10⁴ cells(範囲:4.20 × 10⁵–5.60 × 10⁵)、生存率は66.33 ± 18.18%(範囲:46–81%)であった。ABD培養液の平均細胞数は4.63 × 10⁵ ± 2.31 × 10⁴ cells(範囲:4.50 × 10⁵–4.90 × 10⁵)、生存率は61.66% ± 12.01%(範囲:50%–74%)であった(表1)。
5〜7日目までには、培養細胞は通常、約70%〜90%のコンフルエンスに達し、緻密で比較的均一な単層を形成します。細胞は一般的に平行に配向して並びますが、これはその収縮細胞としての系統を反映しています。THXとABDのSMCの間で増殖速度や細胞密度に差が見られることがあり、これは大動脈の既知の領域的不均一性と一致しています。THXおよびABD大動脈セグメント由来の初代SMC形態の代表的な位相差顕微鏡像(低倍率 10x および高倍率 20x)を図4に示します。
SMCは、特徴的な細長い紡錘形の形態、コンフルエンス時の平行な配列、および均一な増殖パターンを示した。一方、線維芽細胞様細胞は、一般的により扁平で不規則な形態を示し、配向性は低く、不均一に展展する。これらの形態学的および増殖的特性は、分子生物学的な検証がない場合でも、初代培養におけるSMC集団を同定するための実用的かつ再現可能なアプローチとなる。分離が成功したかは、24–48 h以内の早期の細胞接着、紡錘形形態への漸進的な移行、および5–7日目までのコンフルエントな単層形成によって判断される。細胞は通常、コンフルエンスが高くなると平行な配列に並び、これは平滑筋表現型と一致する。不十分な結果としては、細胞接着の不良、細胞収量の低下、または扁平で不規則な形状の細胞の存在などが挙げられ、これらは不完全な消化、過剰な酵素処理、または非平滑筋細胞集団の混入を示唆している可能性がある。
一貫した細胞生存率と線維芽細胞様汚染の最小化により、単離が成功したことがさらに裏付けられました。SMCの同一性をさらに検証するため、セクション8で説明した手順を用いて、代表的な一次培養細胞をα-SMAで免疫染色しました(図5)。THXおよびABDの両方の培養細胞において、血管SMCに期待される特徴的な線維状のα-SMA染色パターンが認められました。4つの顕微鏡視野にわたる定量解析の結果、評価した72個のHoechst陽性細胞のうち69個がα-SMA陽性であり、全体のα-SMA陽性率は95.8%(95% CI, 88.5%–98.9%)でした。具体的には、THX細胞は20/20個、ABD細胞は49/52個がα-SMA陽性でした。図5に、評価した視野の代表例を示します。
初期継代において、細胞は安定した形態と増殖能を維持します。しかし、長期培養を行うと、細胞の広がり(スプレッディング)の増大、配向性の低下、増殖パターンの変化など、表現型変調の特徴が徐々に現れることがあります。
これらの条件下において、初代SMC培養は、遺伝子ノックダウン、薬理学的処理、ならびに血管リモデリングおよび大動脈瘤形成に関与するパスウェイのメカニズム研究を含む、下流のアプリケーションに適しています。
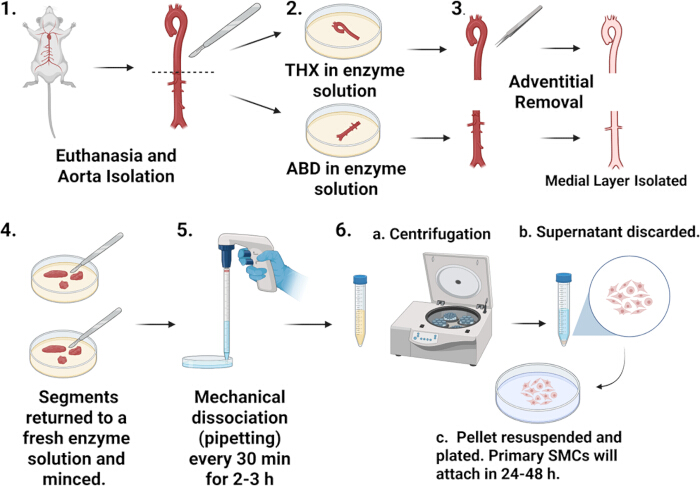
図1ワークフローの概略図。 マウス大動脈平滑筋細胞の一次分離ワークフローの概略図。 パネル 1 安楽死および大動脈の単離を示します。 パネル 2 THXおよびABD大動脈セグメントを酵素消化液へと分離させる様子を示している。 パネル3 外膜の除去と中膜層の単離を示す。 パネル 4 組織片を新鮮な酵素溶液に戻し、細切的にすることを(映像で)示しています。 パネル 5 30分ごとにピペッティングを行い、2~3時間かけて機械的に解離させる様子を示します。 パネル 6 細胞の回収と播種を示しており、6a遠心分離、6b上清の除去、および6cペレットの再懸濁と播種が含まれる。 この図の拡大版を表示するには、ここをクリックしてください。
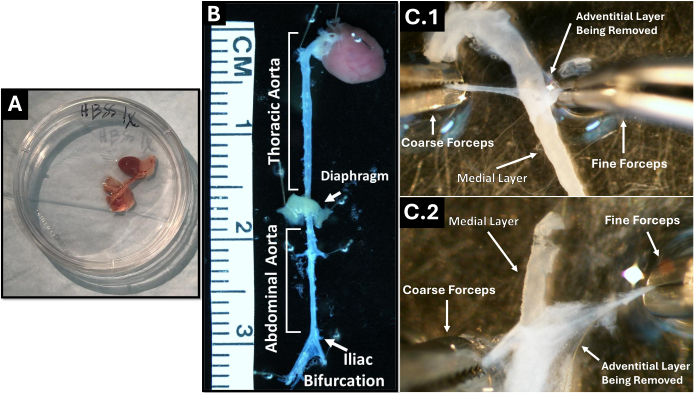
図2: マウス大動脈セグメントの単離と調製。 (A) 単離し、培養皿に配置した大動脈全体。 (B) 横隔膜および腸骨分岐部を含む、THX領域およびABD領域を示す解剖学的指標を確認し、清浄化した大動脈。 (C) 精密ピンセットおよび粗いピンセットを用いてTHX(上)およびABD(下)セグメントから外膜を除去した代表的な画像。平滑筋細胞の単離に不可欠な下層の中膜が露出している。 こちらのリンクから、この図の拡大版を表示してください。
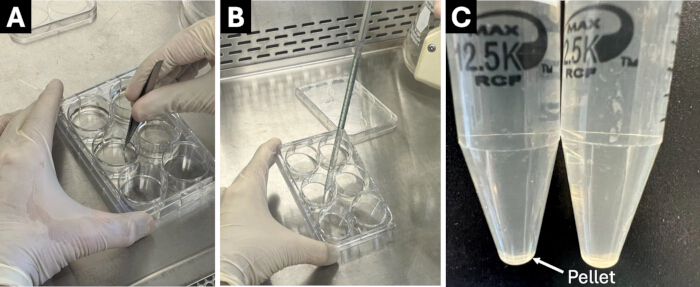
図3: 大動脈組織の酵素消化および機械的解離。 (A>) 外膜層を除去した後、中膜層を新鮮な酵素溶液に移し、小さな鋏で細切にする。 (B>) ジェントルピペッティングによる大動脈断片の機械的解離の例。 (C>) 酵素消化と遠心分離後、細胞ペレットが確認できる。 こちらのリンクをクリックして、この図の拡大版を表示してください。
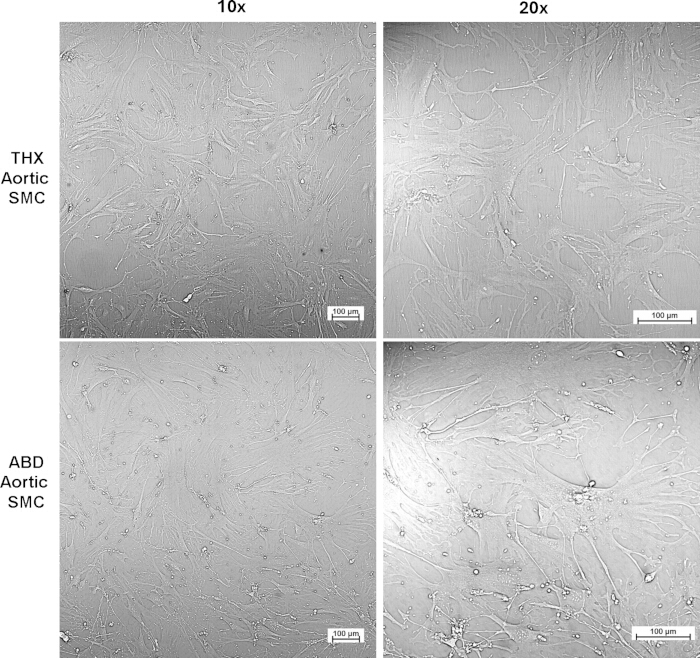
図4: マウス初代大動脈平滑筋細胞(SMC)の代表的な形態。 胸部および腹部大動脈セグメントから単離した初代SMCを標準条件で培養し、継代4回目で撮影した。代表的な位相差画像を低倍率(10x)および高倍率(20x)で示す。細胞は、収縮型SMC表現型と一致する特徴的な紡錘形で細長い形態および配列を示している。THX由来およびABD由来のSMC間で細胞密度や組織化に差異が見られる場合があり、これは領域的な不均一性を反映している。スケールバー = 100 µm。こちらのリンクをクリックして、この図の拡大版を表示してください。
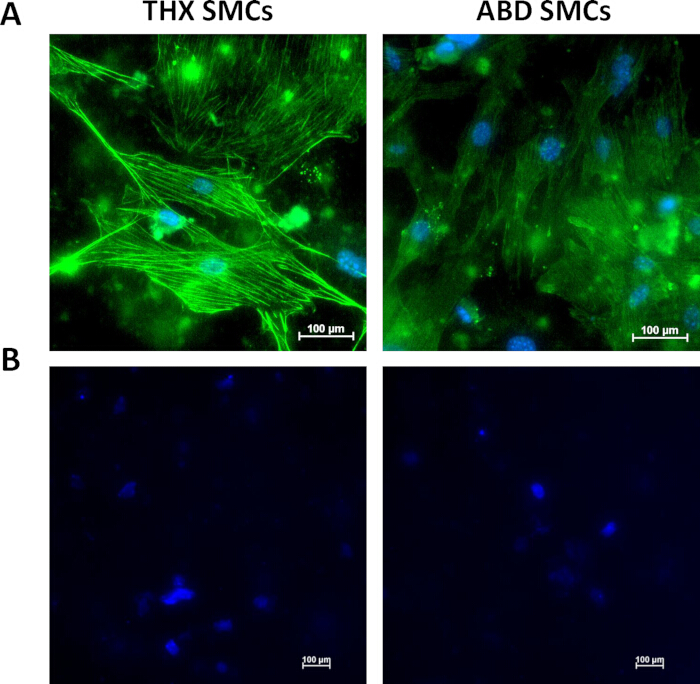
図5マウス初代大動脈平滑筋細胞の免疫蛍光染色による検証。 (A)THX(左)およびABD(右)の大動脈から単離し、~で染色した一次平滑筋細胞(SMC)の代表的な免疫蛍光画像 α-SMA(緑)。核はHoechst 33342(青)で対比染色した。画像は20倍の倍率で取得した。(B) THX(左)およびABD(右)の一次平滑筋細胞(SMC)において、一次抗体を除いて処理した代表的な二次抗体のみのコントロール画像 α-SMA一次抗体を用い、Hoechst 33342(青色)で対比染色を行った。画像は10倍の倍率で取得した。4つの顕微鏡視野にわたる定量解析により、72細胞中69細胞が~であると特定された。 α-SMA陽性(95.8%)。スケールバー = 100 µm. この図の拡大表示をご覧になるには、ここをクリックしてください。
| 初代マウス大動脈平滑筋細胞培養における細胞数および生存率の測定 | |||
| 大動脈セグメント | 独立した分離数、n | 細胞数(平均) ± 標準偏差(SD)* | 細胞生存率(平均値 ± 標準偏差(SD)† |
| THX | 3 | 5.10 x 10⁵ ± 7.81 x 10⁴ 細胞 | 66.33 ± 18.18 % |
| ABD | 3 | 4.63 x 10⁵ ± 2.31 x 10⁴ 細胞 | 61.66 ± 12.01 % |
| 細胞数は、3回の独立した分離から得られた継代3代の細胞を用いて算出した。 | |||
| †細胞数および生存率は、Countess Automated Cell Counterを用い、トリパンブルー染色液を1:1で混和して測定した。 | |||
表1:マウス初代大動脈平滑筋細胞培養物の細胞数および生存率
| ステップ | 問題 | 考えられる原因 | 推奨溶液 |
| 大動脈解離 | 細胞回収率の低下 | 大動脈の回収不十分、または剥離中の組織損傷 | 大動脈根部から腸骨動脈分岐部まで完全に分離させてください。組織の損傷を防ぐため、慎重に取り扱ってください。 |
| 大動脈の洗浄 | 線維芽細胞汚染 | 外膜組織の不完全な除去 | 初回消化後、外膜を慎重に取り除いてください。これはSMCの純度を確保するために極めて重要です。 |
| 初回消化 | 外膜除去の困難さ | 酵素による弛緩の不足 | メカニカルストリッピングを行う前に、適切にインキュベート(8〜10分間)してください。 |
| 酵素消化 | 細胞収率の低下 | 組織の消化不足 | 消化時間をわずかに延長するか、機械的解離の回数を増やす。 |
| 酵素消化 | 低い細胞生存率 | 過剰消化または過度な酵素曝露 | 分解時間を短縮し、長時間のインキュベーションを避ける。 |
| 機械的解離 | 不十分な細胞回収 | 不適切なピペッティング | 30~60分ごとに、優しく繰り返しピペッティングを行ってください。 |
| 細胞接着 | プレートへの接着不良 | 細胞損傷または冷たい培地 | あらかじめ加温した培地を使用し、ハンドリングによるストレスを最小限に抑える。 |
| 初期培養 | 細胞増殖なし | 生存率の低下またはコンタミネーション | 消化条件および無菌性を確認し、必要に応じて分離を繰り返す |
| 細胞形態 | 非紡錘形(円形または扁平な細胞が持続) | コンタミネーションまたは表現型のドリフト | 外膜が除去されていることを確認し、過剰増殖および長期培養を避ける。 |
| 細胞増殖 | 緩徐な増殖 | 不十分な血清濃度 | 初期増殖期には20% FBSを使用してください。 |
| コンフルエンス | 過剰にコンフルエントになり継代が困難な細胞 | 遅延播種 | 細胞が80-90%コンフルエントになった時点で継代する |
| 継代 | 剥離不十分 | 細胞が過剰にコンフルエントであるか、またはトリプシン処理が不十分である | トリプシンへの曝露時間をわずかに延長し、機械的に剥離を促進する |
| 長期培養 | SMC表現型の喪失 | 高継代数または長期培養 | 継代数3~7回の細胞を使用してください。 |
| 再現性 | 分離株間の変動性 | 手技の相違または生物学的変動 | 実験間での酵素調製、タイミング、および取り扱いを標準化する |
表2:マウス大動脈平滑筋細胞の単離および培養におけるトラブルシューティングガイド マウス初代大動脈平滑筋細胞の単離、消化、および培養中に遭遇する一般的な技術的問題のまとめ。潜在的な原因および再現性を向上させるための推奨される解決策を含む。
ディスカッション
本プロトコルでは、in vitro 研究に向けて、マウスの大動脈一次平滑筋細胞(SMC)を単離および培養するための、堅牢で再現性の高い手法を提供します。本アプローチは技術的な有用性に加え、血管リモデリングおよび大動脈瘤形成の根底にあるメカニズムを調査する上で極めて重要です。血管炎症および動脈瘤形成におけるレニン・アンジオテンシン系(RAS)およびAng IIの既知の役割15,16を考慮すると、一次大動脈SMCの単離は、これらの経路を細胞レベルで検証するための有用な手法となります。
成功の重要な決定要因は、外膜組織を徹底的に除去することです。外膜には線維芽細胞やその他の非SMC集団が含まれており、適切に除去されない場合、培養過程でSMCよりも増殖してしまう可能性があります。最初の短時間の酵素消化ステップにより、外膜と中膜の機械的な分離が促進され、より精密な解剖が可能になります。このステップを効果的に行えないことは、SMC分離プロトコルにおけるコンタミネーションやばらつきの最も一般的な原因の一つです。
酵素消化条件についても、慎重に最適化する必要があります。コラゲナーゼ type II、エラスターゼ、および大豆トリプシンインヒビターを組み合わせることで、細胞生存能を維持しながら細胞外マトリックス成分を効率的に分解できます。ただし、消化の状態は注意深く監視しなければなりません。消化が不十分な場合は、組織の解離が不完全となり細胞回収量が低下し、一方で過剰に消化すると細胞が損傷し、接着能が損なわれ、生存率が低下します。したがって、穏やかに繰り返しピペッティングを行う機械的解離が不可欠な補完的ステップとなり、酵素への過剰曝露を最小限に抑えつつ細胞の遊離を促進します。これらのステップは、細胞回収量と生存率の両方を最適化するために、酵素的処理と機械的処理のバランスを取ることの重要性を示しています。また、分離間の再現性を向上させるためには、手順全体を通じて消化時間、組織の取り扱い、および機械的解離を一定に維持することが同様に重要です。
培養条件は、SMCの表現型と機能の維持において中心的な役割を果たします。高血清培地(20% fetal bovine serum)は、単離後の初代細胞の初期接着および増殖を促進します。標準的な血清調製物に含まれるホルモンや脂質成分によるばらつきを抑えるため、チャコール/デキストラン処理済みの血清を使用しました。しかし、高血清への長期的な曝露や培養期間の延長は、合成型または線維芽細胞様状態への表現型ドリフトを促進する可能性があります。これらの影響を最小限に抑えるため、細胞は初期から中期の継代数(P3–P7)で使用し、形態の変化や増殖能の低下を招く過剰コンフルエントな状態を避けることが推奨されます。
単離された細胞の形態は、培養品質を判断するための重要な初期指標となります。健全なSMCは、特徴的な紡錘形で細長い形態を示し、コンフルエンスが高くなると平行に配列します。細胞の扁平化や不規則な形状など、この形態からの逸脱は、コンタミネーション、不適切な培養条件、または表現型のドリフトを示唆している可能性があります。収縮型から合成型への表現型スイッチングを示唆する形態学的特徴としては、細胞の展延の増加、紡錘形形態の減少、平行配列の消失、およびより不均一な増殖パターンなどが挙げられます。
形態学的評価は有用であるものの、平滑筋細胞(SMC)の表現型を確定的に判断するには不十分であり、以下のようなマーカーを用いた分子生物学的な検証によって補完されるべきである。 α-用途に応じて、SMAまたはMYH11を使用します。本研究では、 α-SMA免疫蛍光染色により、単離した細胞の同一性を確認し、高い割合の αTHXおよびABDの両方の培養におけるSMA陽性細胞(図5本プロトコルの主な利点は、胸部下降大動脈(THX)および腹部大動脈(ABD)セグメントを含む、大動脈の異なる領域から平滑筋細胞(SMC)を単離できる点にあります。これらの領域は、細胞外マトリックスの組成、胚発生学的起源、および疾患への感受性の変動など、固有の生物学的差異を示します。領域特異的なSMCを単離することで、血管生物学における空間的不均一性の調査が可能となり、動脈瘤形成に対する領域特異的な脆弱性についての知見が得られると考えられます。16,17,18既存のマウス大動脈血管平滑筋細胞(VSMC)の単離法では、一晩のコラゲナーゼ消化か、13 酵素消化を4~6時間行い、5~6時間で行うことでより良好な回収率が得られることが報告されている。14本プロトコルで用いた8〜10分間の予備消化後の2〜3時間の消化と比較すると、安楽死から細胞播種までの総処理時間は約4時間である。Adhikariらは25〜35 × 103 5日間の培養後の生存細胞数/mL、およびsm22に対する97%~99%の陽性率α およびActa2であったのに対し、本プロトコルでは継代3回目における細胞数が5.10となった。 × 105 ± 7.81 × 10⁴ THXおよび4.63用細胞 × 105 ± 2.31 × 10⁴ ABD用細胞、および全体的な α-SMA陽性率は95.8%であった。Hubertらは一晩の消化処理を用いたが、定量的な細胞収量や純度(%)については報告していない。13,14対照的に、McMurrayらによる外植体ベースの手法では、正常大動脈外植体から平滑筋細胞(SMC)が伸展し始めるまでに、平均約7.6日のラグタイムを必要とした。 >10日目までに外植片の90%に成長が見られ、 >12日目までに95%に達するが、本酵素法では単離当日に単離細胞を直接播種することが可能である18本プロトコルでは、外膜の除去を容易にする簡便な前消化ステップを、標準化された消化および機械的解離条件と組み合わせることで、一貫した組織処理と細胞回収を促進します。胸部(THX)および腹部(ABD)の平滑筋細胞(SMC)の領域特異的な単離に加え、処理時間の短縮、および細胞回収率の定量的特性評価と α-SMA陽性は、再現性のための実用的な利点をもたらします。 in vitro 研究
この手法は、遺伝学的および薬理学的操作を含むメカニズム研究に適しています。初代SMC培養は、siRNAによるノックダウンを含む遺伝子サイレンシング手法や、過剰発現研究、薬剤処理に使用できます。これらのアプローチにより、大動脈瘤の発生と進行の中心となるプロセスである、SMCの表現型転換、炎症、および細胞外マトリックスリモデリングに関与するシグナル伝達経路を直接的に検証することが可能になります1,5。
疾患モデリングの文脈において、本プロトコルの限界を考慮することが重要です。本プロトコルで用いる平滑筋細胞は、非疾患マウスの大動脈から単離されるため、本質的に動脈瘤関連の表現型は示しません。そのため、炎症性活性化、細胞外マトリックスのリモデリング、表現型スイッチングなどの疾患関連プロセスを再現するには、薬理学的刺激、遺伝子操作、またはin vivoモデルとの統合を含む、追加の実験的アプローチが必要です。上記の検討事項に加えて、本プロトコルにはいくつかの限界があります。個体間の生物学的な差や、手技のわずかな変動により、単離ごとの細胞回収量や増殖速度にばらつきが生じる可能性があります。さらに、酵素消化による単離は、細胞表面受容体の発現やシグナル伝達経路に影響を及ぼす可能性があり、下流の機能研究を解釈する際に考慮する必要があります。また、初代SMCは継代回数が増えるにつれて収縮性表現型を徐々に失うため、実験結果に影響を与える可能性があります。手順を慎重に標準化し、低継代の細胞を使用することで、これらの限界を軽減できます。本プロトコルにおける一般的な技術的課題と推奨される解決策を表2にまとめます。
要約すると、本プロトコルは、マウス大動脈一次平滑筋細胞(SMC)の単離および培養のための、信頼性が高く適応可能な枠組みを提供するものである。このアプローチをin vivoモデルと組み合わせることで、血管リモデリングおよび大動脈瘤の病態生理の根底にある細胞・分子メカニズムを包括的に調査することが可能となる。
開示事項
著者らは、競合する利益がないことを宣言します。言語編集および文法修正にはGrammarlyが使用されましたが、すべての科学的な内容および解釈は著者らによって作成されました。
謝辞
資金提供の一部は、ケンタッキー大学医学部から行われました。グラフィカルアブストラクト(図1)は、学術出版ライセンス(出版合意番号 GI2A3W9TY8)に基づき、BioRender.com を使用して作成されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.2 μm ナイロン製シリンジフィルター | VWR | 76439-080 | 滅菌ろ過 |
| 15 mL コニカルチューブ | VWR | — | 洗浄後の大動脈の移送および細胞回収用 |
| 6ウェル / 12ウェル 培養プレート(未処理) | Corning | — | 細胞培養 |
| 50 mL コニカルチューブ | VWR | — | 細胞回収 |
| 96ウェル 光学底マイクロプレート | Thermo Fisher Scientific | 165305 | SMCバリデーション用 |
| α-平滑筋アクチン抗体(モノクローナル) | Cell Signaling Technology | 19245S | SMCバリデーション用;作動希釈倍率 1:1000 |
| Alexa Fluor 488 IgG 二次抗体(ポリクローナル) | Invitrogen | A-11008 | SMCバリデーション用;作動希釈倍率 1:2500 |
| アンフォテリシンB | Thermo Fisher Scientific | 15290018 | 抗真菌剤 |
| ウシ血清アルブミン | Sigma-Aldrich | A7906 | SMCバリデーション用 |
| CO2 インキュベーター (37 °C) | Various | — | 細胞培養条件 |
| コラゲナーゼ Type II | Worthington Biochemical | LS004174 | 酵素消化用;260 U/mgを使用 |
| Countess 自動細胞カウンター | Invitrogen | C10281 | 細胞計数用 |
| 解剖顕微鏡 | Various | — | 組織の洗浄 |
| DMEM/F12 培地 | Thermo Fisher Scientific | 21041-025 | ベース培養培地 |
| エラスターゼ | Worthington Biochemical | LS002279 | マトリックス分解用;タンパク質 1 mgあたり 4.17 Uを使用 |
| 胎児ウシ血清(チャコール/デキストラン処理済み) | Cytiva (Hyclone) | SH30068.03 | 培養に20%で使用 |
| HBSS (Ca2+およびMg2+含有) | Thermo Fisher Scientific | 14025-092 | 消化バッファーとして使用 |
| Hoechst 33342 溶液 | BD Pharmingen | 561908 | SMCバリデーション用 |
| ホットビード滅菌器 | Fine Science Tools | 18000-45 | 大動脈の摘出用 |
| ケタミン | Dechra | — | マウス麻酔用 |
| ペニシリン/ストレプトマイシン | Thermo Fisher Scientific | 15140122 | 抗生物質 |
| リン酸緩衝生理食塩水 (PBS) | Thermo Fisher Scientific | 20012-027 | 洗浄バッファー |
| 塩化ナトリウム | Fisher Scientific | BDH9286 | SMCバリデーション用;作動濃度 150 mM (1 Lあたり 8.8 g) |
| 大豆トリプシンインヒビター | Worthington Biochemical | LS003570 | 過剰消化の防止 |
| Tris Base | Fisher Scientific | BP152 | SMCバリデーション用;作動濃度 20 mM (1 Lあたり 2.4 g) |
| Triton X-100 | Fisher Scientific | BP151 | SMCバリデーション用;作動濃度 0.1% |
| トリパンブルー染色液 | Thermo Fisher Scientific | T10282 | 細胞計数用 |
| Trypsin-EDTA (0.05%) | Thermo Fisher Scientific | 15400054 | 継代用 |
| Tween 20 | Fisher Scientific | BP337 | SMCバリデーション用;作動濃度 0.1% |
| キシラジン | Covetrus | 61035 | マウス麻酔用 |
| オプション材料(使用する場合) | |||
| 培養フラスコ (T25/T75) | Corning | — | 細胞拡大 |
参考文献
- Ensor M, et al. Nicotine promotes Ang II-induced abdominal aortic aortopathies in female and male mice: role of sex hormones. Clin Sci (Lond). 2025;139(8):411-429.
- Ailawadi G, et al. Smooth muscle phenotypic modulation is an early event in aortic aneurysms. J Thorac Cardiovasc Surg. 2009;138(6):1392-1399.
- Frismantiene A, Philippova M, Erne P, Resink TJ. Smooth muscle cell-driven vascular diseases and molecular mechanisms of VSMC plasticity. Cell Signal. 2018;52:48-64.
- Alsiraj Y, et al. Female mice with an XY sex chromosome complement develop severe angiotensin II-induced abdominal aortic aneurysms. Circulation. 2017;135(4):379-391.
- Thatcher SE, et al. Exogenous 17-β estradiol administration blunts progression of established angiotensin II-induced abdominal aortic aneurysms in female ovariectomized mice. Biol Sex Differ. 2015;6:12.
- Daugherty A, Manning MW, Cassis LA. Angiotensin II promotes atherosclerotic lesions and aneurysms in apolipoprotein E-deficient mice. J Clin Invest. 2000;105(11):1605-1612.
- AlSiraj Y, et al. Monosomy X in female mice influences the regional formation and augments the severity of angiotensin II-induced aortopathies. Arterioscler Thromb Vasc Biol. 2021;41(1):269-283.
- Alsiraj Y, et al. Sex chromosome complement defines diffuse versus focal angiotensin II-induced aortic pathology. Arterioscler Thromb Vasc Biol. 2018;38(1):143-153.
- Alsiraj Y, et al. Therapeutic assessment of combination therapy with a neprilysin inhibitor and angiotensin type 1 receptor antagonist on angiotensin II-induced atherosclerosis, abdominal aortic aneurysms, and hypertension. J Pharmacol Exp Ther. 2021;377(3):326-335.
- AlSiraj Y, et al. Serotonin 3 receptor antagonism reduces angiotensin II-induced abdominal aortic aneurysms: contribution of periaortic fat-derived serotonin. J Pharmacol Exp Ther. 2025;392(2):100533.
- AlSiraj Y et al. Role of adipocyte angiotensinogen or angiotensin type 1A receptors in the development of diet-induced atherosclerosis or angiotensin II-induced abdominal aortic aneurysms. JVS Vasc Sci. 2025;7:100397.
- Alexander MR, Owens GK. Epigenetic control of smooth muscle cell differentiation and phenotypic switching in vascular development and disease. Annu Rev Physiol. 2012;74:13-40.
- Hubert MO, Rodriguez-Vita J, Wiedmann L, Fischer A. Isolation of murine primary aortic smooth muscle cells. Bio Protoc. 2021;11(3):e3907.
- Adhikari N, et al. Guidelines for the isolation and characterization of murine vascular smooth muscle cells. A report from the International Society of Cardiovascular Translational Research. J Cardiovasc Transl Res. 2015;8(3):158-163.
- AlSiraj Y, Woolley C, Thatcher SE, Cassis LA. Sex differences and the role of the renin-angiotensin system in atherosclerosis and abdominal aortic aneurysms. In: Sex Differences in Cardiovascular Physiology and Pathophysiology. Academic Press; 2019:167-184.
- Boese AC, et al. Sex differences in vascular physiology and pathophysiology: estrogen and androgen signaling in health and disease. Am J Physiol Heart Circ Physiol. 2017;313(3):H524-H545.
- Majesky MW. Developmental basis of vascular smooth muscle diversity. Arterioscler Thromb Vasc Biol. 2007;27(6):1248-1258.
- McMurray HF, Parrott DP, Bowyer DE. A standardised method of culturing aortic explants, suitable for the study of factors affecting the phenotypic modulation, migration and proliferation of aortic smooth muscle cells. Atherosclerosis. 1991;86(2-3):227-237.
再版と許可
この記事は公開されました
動画は近日公開