本記事では、公開トランスクリプトームデータセット、機械学習、外部バリデーション、定量逆転写PCR、Connectivity Mapスクリーニング、および分子ドッキングを統合し、肺高血圧症のバイオマーカーおよび候補治療化合物を特定するための再現可能なバイオインフォマティクスワークフローを提示します。
この記事について
サマリー
要約
本研究は、公開トランスクリプトームデータおよび独立した検証リソースを用いて、肺高血圧症(PH)に関連する分子バイオマーカーおよび候補低分子化合物を特定することを目的とした。正規化、プローブアノテーション、およびComBatによるバッチ効果補正後、3つのGene Expression Omnibusデータセット(GSE22356、GSE33463、GSE48149)を統合した。コアとなる特徴遺伝子を特定するために、差分的発現解析、加重遺伝子共発現ネットワーク解析、機能濃縮解析、タンパク質相互作用ネットワーク解析、および3つの機械学習アルゴリズムを用いた。診断性能は、受信者動作特性曲線を用いて評価した。外部検証には、独立した肺組織コホート(GSE117261)、肺動脈単一細胞RNAシーケンシングデータセット(GSE210248)、および独立した肺組織サンプルにおける定量逆転写PCR検証を含めた。候補化合物のスクリーニングには、Connectivity Mapに基づくドラッグリポジショニングおよび分子ドッキングを用いた。78個の差分的発現遺伝子が同定され、CXCL10、JUN、IFIH1、MX1、TLR7がコア特徴遺伝子として選出された。独立したGSE117261肺組織コホートでは、JUNが最も強い外部支持を示したが、他の遺伝子の再現性は様々であった。20個の生物学的に独立した肺動脈性肺高血圧症サンプルおよび20個の対照サンプルを用いた定量逆転写PCRにより、5つの遺伝子すべての発現上昇が確認された。明らかな5遺伝子qRT-PCRモデルおよび100回の反復層化5分割交差検証解析はいずれも曲線下面積1.000を示したが、コホート規模が小さいため慎重な解釈と独立した前向き検証が必要である。GSE210248の単一細胞解析により、免疫細胞と構造細胞間のコミュニケーションの変化、および平滑筋細胞の表現型スイッチングが支持された。Connectivity Mapスクリーニングでは、BRD-K91900765/VX-745が最高位にランクされた。その既知の薬理学的標的であるMAPK14/p38αをポジティブリファレンスドッキングタンパク質として含め、5つのバイオマーカー関連タンパク質に対するドッキングは探索的に実施した。これらの知見は、これら5つの遺伝子がPHの候補バイオマーカーであり、VX-745が実験的検証を必要とする計算上のドラッグリポジショニング仮説であることを支持している。
概要
肺高血圧症(PH)は、持続的な肺動脈圧の上昇、肺血管抵抗の増大、そして最終的な右心不全を特徴とする進行性の心肺症候群である。現在の血行動態基準では、安静時の平均肺動脈圧が以下の値である場合にPHと定義される。 >右心カテーテル検査で測定された20 mmHg1さまざまな臨床的サブタイプの中でも、肺動脈性肺高血圧症(PAH)は最も重篤な形態の一つであり、進行性の肺血管リモデリングを特徴とする。その病理学的特徴には、内皮機能不全、肺動脈平滑筋細胞の異常な増殖および遊走、外膜線維芽細胞の活性化、細胞外マトリックスの沈着、炎症細胞の浸潤、および末梢肺動脈の狭窄または閉塞が含まれる。2これらの変化は、PH/PAHが単なる血管収縮の疾患ではなく、協調的な分子、細胞、および免疫炎症メカニズムによって引き起こされる複雑な血管リモデリング疾患であることを示している。
現在のPAH治療は、主にプロスタサイクリン、エンドセリン、一酸化窒素–可溶性グアニル酸シクラーゼ、およびホスホジエステラーゼ5型経路を標的としています3˒4。これらの治療法は症状、運動耐能、および血行動態パラメータを改善させますが、その効果は大部分が血管拡張および血行動態的なものに留まっています。既に形成された肺血管リモデリングを改善させる能力は限定的であり、併用療法を行っているにもかかわらず、多くの患者で疾患の進行が続いています。したがって、リモデリングプロセスを反映する新規の分子バイオマーカーや治療候補を特定することは、重要な未充足のニーズとなっています。特に、免疫炎症活性化、インターフェロン関連シグナル伝達、Toll様受容体経路、ケモカイン介在性免疫細胞リクルート、および平滑筋細胞の表現型スイッチングが、PH/PAH進行の潜在的な寄与因子として浮上しています5˒6。
ハイスループットなトランスクリプトームデータセットは、PH/PAHにおける疾患関連の分子シグネチャーを特定するための貴重なリソースとなります。しかし、単一のデータセットに基づく研究は、サンプルサイズの小ささ、バッチ効果、プラットフォームの不均一性、および検証不足によって制限されることが多々あります。発現変動解析では発現が変化した遺伝子を特定できますが、疾患に関連する共発現モジュールやネットワークレベルの相互作用を十分に捉えられない可能性があります。加重遺伝子共発現ネットワーク解析(WGCNA)では疾患形質に関連する遺伝子モジュールを特定でき、タンパク質相互作用(PPI)ネットワーク解析では生物学的ネットワーク内で高度に連結した遺伝子を明らかにできます。また、機械学習の手法を用いることで、診断的価値や分類価値の高い遺伝子を優先的に抽出することが可能です。しかし、単一のアルゴリズムに依存すると、モデル固有のバイアスが導入される恐れがあります。したがって、発現変動解析、WGCNA、PPIネットワーク解析、および複数の機械学習アルゴリズムを統合することで、バイオマーカー探索の堅牢性を向上させることができると考えられます。
トランスクリプトームによるバイオマーカー研究におけるもう一つの大きな課題は、生物学的な解釈です。バルク組織のシグナルは、常在する血管細胞内の遺伝子発現の変化、免疫細胞の浸潤、あるいは複数の細胞集団の割合の変化を反映している可能性があります。シングルセルRNAシーケンシングは、バルク解析から得られた候補遺伝子を細胞レベルの文脈で捉える機会を提供します。PH/PAHにおいて、肺血管リモデリングには、内皮細胞、平滑筋細胞、線維芽細胞、単球/マクロファージ、リンパ球、およびその他の免疫細胞や構造細胞が関与しています。また、疾患の進行は、細胞間コミュニケーションの変化や平滑筋細胞の表現型スイッチングとも関連しています。したがって、バルクのトランスクリプトームスクリーニングとシングルセルによる検証を組み合わせることで、候補バイオマーカーが免疫活性化、血管構造リモデリング、または多細胞間コミュニケーションの不均衡のいずれに関連しているかを判断するのに役立つと考えられます。
バイオマーカーの探索に加え、トランスクリプトーム・シグネチャーは計算論的なドラッグリポジショニングに利用することが可能です。Connectivity Map (CMap) は、疾患に関連する遺伝子発現プロファイルと、それらのシグネチャーを反転または調節させる可能性のある低分子化合物を結びつけます7。化合物のキュレーションおよび分子ドッキングと組み合わせることで、この戦略から実験的に検証可能な治療仮説を導き出すことができます。CMapによる予測と分子ドッキングだけでは薬効を立証することはできませんが、今後のターゲット結合アッセイ、細胞ベースの実験、および動物モデルによる検証に向けた候補化合物の優先順位付けを行うことができます。
PH/PAHのバイオマーカーおよび候補治療化合物を同定するための、統合的かつ再現可能なワークフローを構築した。正規化およびバッチ効果補正後、3つの公開Gene Expression Omnibusトランスクリプトームデータセットを統合した。堅牢な特徴遺伝子をスクリーニングするために、差異発現解析、WGCNA、機能エンリッチメント解析、PPIネットワーク解析、および3つの機械学習アルゴリズムを用いた。選択した遺伝子をさらに評価するため、受信者動作特性(ROC)解析、独立した肺組織バリデーションコホート、肺動脈シングルセルRNAシーケンシングによるエビデンス、および独立サンプルを用いた定量逆転写PCR(qRT-PCR)による検証を行った。最終的に、CMapに基づくドラッグリポジショニングおよび分子ドッキングを適用し、候補化合物を同定した。本研究の新規性は、バルクトランスクリプトームによる発見、機械学習による優先順位付け、独立したバリデーション、実験的なqRT-PCRによる確認、シングルセルによるメカニズム解釈、および計算による化合物スクリーニングを連結させた多層的な検証フレームワークにある。本研究の仮説は、PH/PAHが協調的な免疫炎症および血管リモデリングプログラムによって駆動されており、このプログラム内の堅牢な遺伝子が候補バイオマーカーとして機能し、ドラッグリポジショニングの機会を提供し得るというものである。
プロトコル
本研究で解析した公共のGene Expression Omnibus (GEO) データセットには、以前に発表された研究からの匿名化されたトランスクリプトームデータが含まれており、追加の倫理承認は必要ありませんでした。淮化大学の倫理委員会は、独立したヒト肺組織定量逆転写PCR (qRT-PCR) 検証研究を承認しました(承認番号:2024(A05112))。サンプル採取前に、すべての参加者またはその法定代理人から書面によるインフォームドコンセントを得ました。承認および同意の手続きは、qRT-PCR検証に含まれる20例の肺動脈性肺高血圧症 (PAH) および20例の対照肺組織サンプルのすべてに適用されました。本プロトコルで使用した研究ツールは、材料表に記載されています。
1. 公開トランスクリプトームデータセットの収集および前処理
肺高血圧症(PH)に関連するマイクロアレイデータセットGSE22356、GSE33463、およびGSE48149をGEOデータベースから取得した。元の表現型アノテーションに従って、PH/肺動脈性肺高血圧症(PAH)およびコントロールのサンプルを抽出した。発現マトリックスおよびプラットフォームアノテーションファイルは、再現可能なRスクリプトとGEOqueryパッケージを用いてダウンロードした。
プローブのアノテーションおよび遺伝子シンボルへのマッピングは、すべてのデータセットにおいて一貫して行いました。複数のプローブが同一の遺伝子にマッピングされた場合は、平均発現値を算出しました。分位正規化を適用し、発現量または分散が低い遺伝子を除外しました。データセットを統合し、svaパッケージ8のComBatアルゴリズムを用いてバッチ効果を補正しました。この補正の効果は、ボックスプロットおよび主成分分析を用いて評価しました。
2. 発現変動遺伝子の同定
バッチ補正済みの発現行列において、PHサンプルとコントロールサンプルの間の発現レベルを比較するためにlimmaパッケージを使用した9。線形モデルを適合させ、経験的ベイズ統計を適用した。調整済みP値 <0.05かつ絶対log2 fold change > 0.585を基準として、差分的発現遺伝子を定義した。結果はボルケーノプロットおよびヒートマップを用いて可視化した。
3. 加重遺伝子共発現ネットワークの構築
WGCNAパッケージ10を用いて重み付き遺伝子共発現ネットワークを構築した。外れ値を検出するためにサンプルのクラスタリングを行った。ソフトしきい値パワーは、スケールフリートポロジー適合指数に基づいて選択した。ダイナミックツリーカット法を用いて遺伝子モジュールを同定した。モジュール固有遺伝子(eigengene)とPH表現型との相関を解析し、最も強い相関を示した疾患関連モジュールを選択した。この主要モジュールに含まれる遺伝子と差発現遺伝子との積集合を求め、コンセンサス遺伝子を抽出した。
4. 機能濃縮分析
clusterProfiler11を用いて、Gene Ontologyの生物学的プロセス、細胞成分、および分子機能カテゴリーの解析を行った。シグナル伝達経路を特定するために、Kyoto Encyclopedia of Genes and Genomesのパスウェイ濃縮解析を実施した12。濃縮のしきい値としてP値 < 0.05およびq値 < 0.2を用い、濃縮された用語をバブルプロットで可視化した11。
5. タンパク質相互作用ネットワークの構築およびハブ遺伝子の同定
コンセンサス遺伝子リストをSTRINGデータベースに投入し、 Homo sapiens 種として選択され、相互作用の信頼度しきい値が設定された > 0.413相互作用ファイルをCytoscapeにインポートし、CytoHubbaプラグインを用いてノード次数による遺伝子のランキングを行った。接続性の高い遺伝子をハブ遺伝子として定義した。
6. 機械学習を用いた診断的特徴遺伝子の選択
3つの独立した特徴量選択アルゴリズムを適用した。まず、glmnetパッケージを用いて、10分割交差検証によるLASSO(least absolute shrinkage and selection operator)ロジスティック回帰を行い、係数がゼロではない遺伝子を特定した14。次に、サポートベクターマシンを用いた再帰的特徴消去(recursive feature elimination)を適用し、冗長な特徴量を除去して、交差検証精度が最も高くなった特徴量サブセットを選択した15。3つ目に、ランダムフォレストモデルを構築し、ジニ不純度の平均減少量によって特徴量をランク付けした16。これら3つのアルゴリズムから得られた遺伝子セットの積集合を用いて、最終的なコア特徴量遺伝子のセットを定義した。pROCパッケージを用いて、受信者動作特性(ROC)曲線の作成および曲線下面積(AUC)値の算出を行った17。
7. 独立したバルクおよびシングルセルデータセットを用いたコア遺伝子の検証
58例のPAHサンプルと25例の不適格ドナーコントロールサンプルを含むGSE117261を、独立した外部肺組織検証コホートとして使用した18。このデータセットは、特異的発現解析による発見、加重遺伝子共発現ネットワークの構築、または機械学習による特徴量選択には使用されなかった。発現マトリックスを正規化およびアノテーションし、limma v3.68.0を用いて差分的発現を解析した。アノテーションされたトランスクリプトーム全体にBenjamini-Hochberg偽発見率補正を適用した。単一遺伝子の受信者動作特性(ROC)曲線は、pROC v1.19.0.1、DeLong 95%信頼区間、およびYouden指数カットオフを用いて算出した。GSE117261において探索的な5遺伝子ロジスティック回帰モデルを適合させ、その内部性能を反復入れ子状交差検証を用いてさらに評価した。
PAH患者3名および健常ドナー3名のサンプルを含む単一細胞肺動脈バリデーションデータセットとして、GSE210248(表1)を使用した19。データの処理にはSeurat v5.5.1を用い、品質管理、正規化、次元圧縮、クラスタリング、および細胞アノテーションを行った20。内皮細胞、平滑筋細胞、線維芽細胞、単球/マクロファージ、およびT細胞/ナチュラルキラー細胞を含む主要な細胞集団を同定した。細胞間コミュニケーションの解析には、CellChat v2.1.2およびCellChatDB.humanリガンド受容体データベースを使用した21。正規化されたSeurat発現マトリックスと細胞型メタデータからCellChatオブジェクトを作成した。過剰発現遺伝子とリガンド受容体相互作用を同定し、コミュニケーション確率を算出し、細胞数が10細胞未満の細胞グループに関与する相互作用を除外した後、パスウェイレベルのコミュニケーションネットワークを推論し、集約した。このデータセットは外部メカニズムバリデーションにのみ使用し、モデルの学習には使用しなかった。
| 項目 | 概要 |
| データセット | GSE210248 |
| データ型 | 10x Genomics/ドロップレットベースの単一細胞RNAシーケンシング、ハイスループットトランスクリプトームプロファイリング |
| ヒト試料 | PAH肺動脈検体3例および健康ドナー肺動脈検体3例 |
| 組織源 | 肺動脈組織の外植体(ex vivo)であり、主に肺血管壁の細胞生態および血管リモデリングプロセスを反映している |
| 主な分析目的 | 細胞型の局在、平滑筋細胞の表現型スイッチング、免疫細胞・構造細胞間コミュニケーション、および候補遺伝子のメカニズムの一貫性検証 |
表1:GSE210248シングルセル検証データセットの基本情報。 この表は、肺動脈シングルセル検証解析のデータセットアクセッション番号、シーケンシングプラットフォーム、組織源、サンプルの組成、および解析目的をまとめたものである。
8. qRT-PCRによる遺伝子発現の検証
qRT-PCRによる検証には、PH/PAH患者由来の生物学的に独立したPAH肺組織サンプル20検体と、生物学的に独立した対照肺組織サンプル20検体を用いた。全RNAはTotal RNA Extraction Kitを用いて抽出した。RNAの濃度と純度は分光光度計を用いて測定し、RNAの完全性はアガロースゲル電気泳動により評価した。A260/280値が1.8から2.1の間であり、かつ分解が認められないRNAサンプルのみを解析対象とした。
等量のRNAを、Solarbio Universal RT-PCR Kit (AMV; カタログ番号 RP1200) を用いて相補的DNAに逆転写した。CXCL10、JUN、IFIH1、MX1、および TLR7 の定量PCRを、Real-Time PCR System 上で SYBR Green PCR Master Mix を用いて実施した。各生物学的サンプルは、テンプレートなしおよび逆転写なしのコントロールとともに、3回のテクニカルレプリケートで解析した。解析には3回のテクニカルレプリケートの平均 Ct 値を用い、テクニカルレプリケートを独立した観察値としては扱わなかった。エクソン-エクソン接合部をまたぎ、80–200 bp のアンプリコンを生成するプライマーを使用した(表 2)。プライマーの特異性は、NCBI Primer-BLAST および融解曲線分析を用いて検証した22。
標的遺伝子の発現レベルを標準化するための内部参照遺伝子として、β-actin (ACTB) を用いた。相対的発現量は 2-ΔΔCt法23を用いて算出した。データの分布に基づき、群間比較には両側Mann-Whitney U検定を用い、5つの遺伝子全体にBenjamini-Hochberg偽発見率補正を適用した。単一遺伝子のROC曲線はDeLong 95%信頼区間を用いて作成し、最適なカットオフ値はYouden indexを用いて選択した。5遺伝子ロジスティック回帰モデルは、まず同一の40の生物学的サンプルを用いて適合および評価を行った。したがって、この推定値は見かけ上のサンプル内性能(apparent in-sample performance)として定義した。潜在的な過適合(overfitting)を評価するため、L2正則化ロジスティック回帰モデルを用いて層化5分割交差検証を100回繰り返し、統合されたアウトオブフォールド(out-of-fold)のROC性能を算出した。
| 遺伝子 | RefSeqアクセッション番号 | フォワードプライマー(5'′–3′) | リバースプライマー (5′–3′) | 産物サイズ (bp) | Tm (°C) | エクソン跨ぎの |
| CXCL10 | NM_001565.4 | GTCAAGCCAT AATTGTTC | ATAGTGCCAG GGTAGAGT | 141 | 46.1 | はい |
| JUN | NM_002228.4 | ACAAGTGGCA GAGTCCCG | CGCCCAAGTT CAACAACC | 152 | 54.5 | はい |
| IFIH1 | NM_022168 | GCACAGAGCG GTAGACCCT | GCCCTGAAGC ACGAGATG | 182 | 54.7 | はい |
| MX1 | NM_002462.5 | TTAGCCGTGG TGATTTAGC | CAAGGTGGAG CGATTCTG | 156 | 52.3 | はい |
| TLR7 | NM_016562.4 | ATTGCCCTCGT TGTTATA | TTCCTGGAGTT TGTTGAT | 179 | 48.1 | はい |
| ACTB | NM_001101.3 | CTCACCATGGAT GATGATATCGC | AGGAATCCTTCT GACCCATGC | 194 | 56.2 | はい |
表2:定量逆転写PCRに使用したプライマー配列。本表に、qRT-PCRに使用したプライマーのターゲット遺伝子、RefSeqアクセッション番号、フォワードおよびリバースプライマー配列、産物サイズ、融解温度、およびエキソン跨ぎの状態を記載する。
9. 化合物候補のスクリーニングおよび分子ドッキング
PHに関連する発現プロファイルを反転させると予測される低分子化合物を特定するため、アップレギュレートおよびダウンレギュレートされたコア遺伝子のシグネチャーをConnectivity Mapデータベースに提出した7。候補化合物は、Logitスコアおよび予測確率によってランク付けされた。
BRD-K91900765/VX-745の三次元構造は、PubChemのCID 3038525から取得した24。化合物に関連する薬理学的情報は公開薬物データベースからキュレーションし、構造記述子はDrugBankおよびSwissADMEを用いて算出した25,26。タンパク質構造は、以下のPDB IDを用いてRCSB Protein Data Bankから取得した:CXCL10は1LV9、JUNは1JUN、IFIH1は3B6E、MX1は5GTM、TLR7は7CYN、そしてMAPK14/p38αは1OUKである27。ブラインドキャビティ検出および分子ドッキングは、AutoDock Vina v1.2.0スコアリングエンジンを搭載したCB-Dock2 v2.0を用いて行った28,29。タンパク質およびリガンドファイルをCB-Dock2にアップロードし、候補となるキャビティを自動的に検出させ、サーバーによって生成されたキャビティ固有のボックス内でドッキングを実施した。各タンパク質について、キャビティ識別子、Vinaスコア、キャビティ体積、ドッキングボックスの中心、ドッキングボックスの寸法、およびタンパク質-リガンド複合体ファイルを記録した。最も負の値を示すVinaスコアを持つポーズを、最上位にランク付けされた予測コンフォメーションとして選択した。MAPK14/p38αは、VX-745の既知の薬理学的ターゲットおよびポジティブリファレンスとしてのドッキングタンパク質として含めた。CXCL10、JUN、IFIH1、MX1、およびTLR7に対するドッキングは探索的なものであり、直接的な薬理学的ターゲット、結合、阻害、または有効性の根拠として解釈したものではない。
10. 統計解析および再現性の管理
特に断りのない限り、すべての統計解析はRを用いて行った。両側P値 < 0.05を統計的に有意と見なした。上述の通り、差分的発現解析、濃縮解析、外部バリデーション解析、およびqRT-PCR解析に対して多重検定補正を適用した。機械学習モデルおよび統合qRT-PCRモデルの安定性を評価するために、クロスバリデーションを用いた。
結果
公開トランスクリプトームデータのプレプロセッシングおよび変動遺伝子の同定
GSE22356、GSE33463、およびGSE48149の統合とComBat補正により、データセット間の系統的な差異が低減しました。ボックスプロットにより、補正後でサンプルの発現分布がより一貫したものになったことが示されました。主成分分析の結果、補正前はサンプルが主にデータセットのソースに従ってクラスター化していましたが、補正後はより混在するようになり、バッチ効果が効果的に低減されたことが示されました(図1)。
絶対値のlog2 fold change >0.585および補正後P値 < 0.05を閾値として、44個の発現上昇遺伝子と34個の発現低下遺伝子を含む、計78個の変動発現遺伝子が同定された(図 2A)。ヒートマップにより、XAF1、MX1、IFI44L、EPSTI1、PARP9、IFIH1、CXCL10、GBP1、STAT1、SAMHD1、TNFSF10、およびTLR7を含むインターフェロン関連遺伝子が、PH関連サンプルで概して発現上昇していることが示された。対照的に、HBG1、HBD、ALAS2、CA1、およびSLC4A1を含む赤血球系関連遺伝子は、発現低下する傾向にあった(図 2B)。
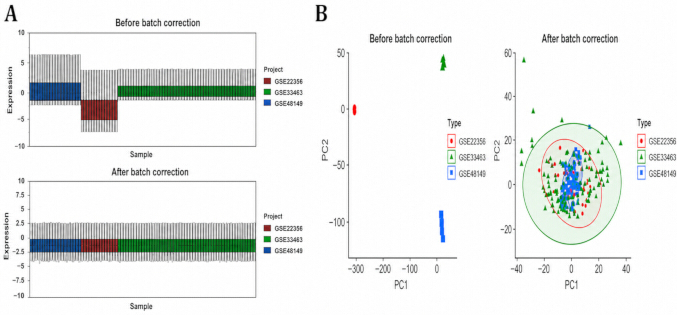
図 1: バッチ効果の補正。(A) ComBat補正前後の統合発現マトリックスのボックスプロット。(B) バッチ効果補正前後のサンプル分布を示す主成分分析(PCA)プロット。こちらのリンクをクリックして、この図の拡大版を表示してください。
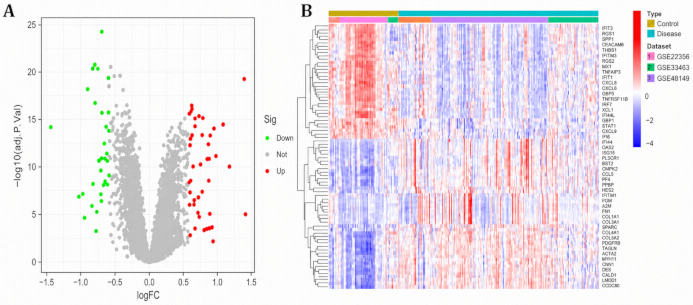
図 2: 発現変動遺伝子。 (A) PH関連サンプルにおける発現上昇遺伝子および発現低下遺伝子を示すボルケーノプロット。(B) 対照群と疾患群の間で発現変動している遺伝子を示すヒートマップ。こちらをクリックして、この図の拡大版を表示してください。
加重遺伝子共発現ネットワークの構築と機能濃縮解析
サンプルのクラスタリングにより、明らかな外れ値のない安定した全体的なクラスタリングが示された(図 3A)。スケールフリートポロジー適合指数は、パワー 9 で 0.8 に近づいたため、ネットワーク構築には β = 9 が選択された(図 3B)。遺伝子クラスタリングおよびダイナミックモジュールの同定により、複数の共発現モジュールが得られた(図 3C)。ブルーモジュールは PH 状態と最も強い関連を示したが(r = 0.55, P = 1 × 10⁻¹⁹)、ターコイズおよびグレーのモジュールも PH との相関を示した(図 3D)。
加重遺伝子共発現ネットワーク解析(WGCNA)の主要モジュール遺伝子と差分的発現遺伝子との積集合から得られたコンセンサス遺伝子は、抗ウイルス免疫防御、NF-κBおよびJAK-STAT調節、炎症因子応答、サイトカインおよびケモカイン受容体結合、および転写調節に濃縮されていた(図4A)。京都遺伝子・ゲノム百科事典(KEGG)の濃縮解析により、サイトカイン-サイトカイン受容体相互作用、ケモカインシグナリング、NOD様受容体シグナリング、Toll様受容体シグナリング、腫瘍壊死因子シグナリング、およびインターロイキン-17シグナリングが同定され(図4B)、免疫炎症性の調節不全が肺血管リモデリングの分子基盤であることが支持された。
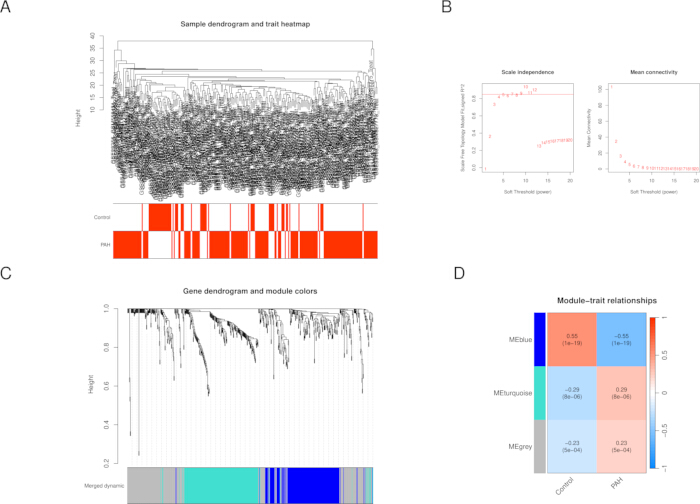
図 3: 加重遺伝子共発現ネットワーク解析(WGCNA)。 (A) サンプルのクラスタリングツリーおよび形質のヒートマップ。 (B) ソフトしきい値選択プロット。 (C) 遺伝子デンドログラムおよびモジュールの色。 (D) モジュールと形質の関係を示すヒートマップ。 こちらのリンクをクリックして、この図の拡大版を表示してください。
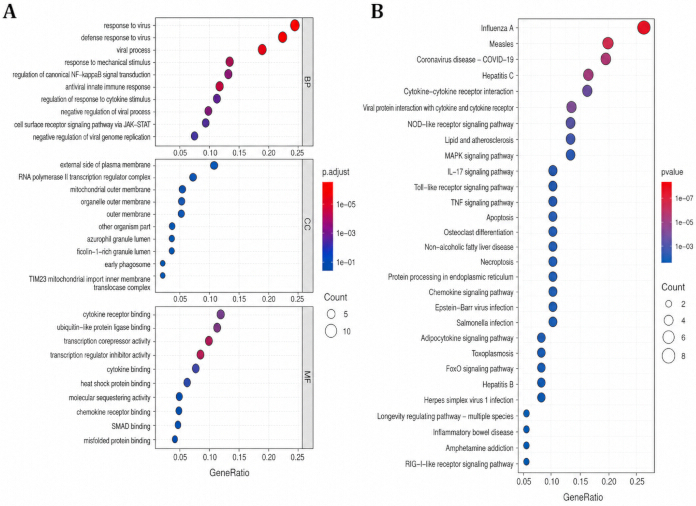
図 4: 機能濃縮解析。 (A) コンセンサス遺伝子のGene Ontology濃縮結果。 (B) コンセンサス遺伝子のKyoto Encyclopedia of Genes and Genomesパスウェイ濃縮結果。こちらのリンクをクリックして、この図の拡大版を表示してください。
タンパク質相互作用ネットワークおよびハブ遺伝子のスクリーニング
コンセンサス遺伝子から構築されたSTRINGタンパク質相互作用ネットワークにより、相互に連結した免疫炎症ネットワークが明らかになった(図 5A)。次数ベースのCytoHubbaランキングでは、FN1、CD44、JUN、TGFB1、CXCL8、およびBCL2が高い連結性を示すことが示された(図 5B)。これらのハブ遺伝子は、炎症シグナル伝達、細胞接着、細胞外マトリックスのリモデリング、および肺血管の構造的リモデリングに関与している可能性がある。
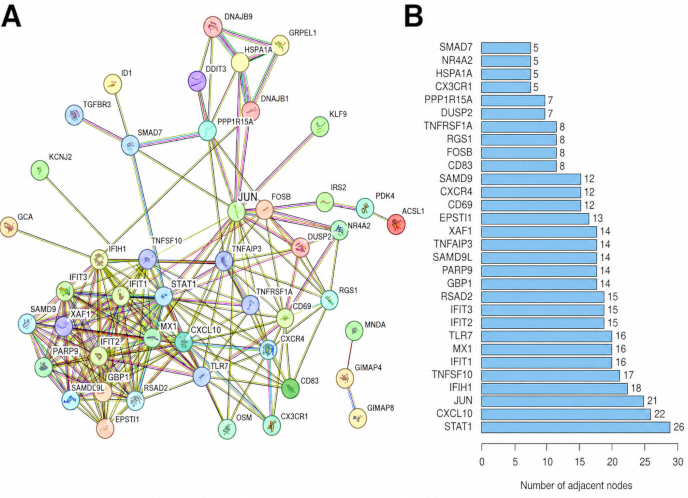
図 5: タンパク質-タンパク質相互作用ネットワークおよびハブ遺伝子。 (A) コンセンサス遺伝子のSTRINGタンパク質-タンパク質相互作用ネットワーク。 (B) CytoHubbaを用いて特定された次数順のハブ遺伝子。こちらのリンクから、この図の拡大版を表示してください。
機械学習による特徴量選択と診断性能
交差検証後、Least absolute shrinkage and selection operator回帰により、係数が非ゼロである6つの候補遺伝子が特定されました(Figure 6A, B)。サポートベクターマシン再帰的特徴消去では8つの遺伝子が保持され、交差検証における正解率は0.883、誤差は0.117となりました(Figure 7A)。ランダムフォレストのout-of-bag誤差は決定木の数が100本以上で安定し、重要度スコアに基づくとIFIH1、JUN、TLR7が上位の遺伝子にランクされました(Figure 7B)。
LASSO(least absolute shrinkage and selection operator)、SVM-RFE(support vector machine-recursive feature elimination)、およびランダムフォレストの結果の交差により、CXCL10、JUN、IFIH1、MX1、TLR7の5つのコア遺伝子が特定された(図8A)。単一遺伝子の受信者動作特性分析では、曲線下面積(AUC)の値がIFIH1で0.842、JUNで0.833、TLR7で0.827、CXCL10で0.814、MX1で0.759となり、中程度から良好な診断識別能が示された(図8B).
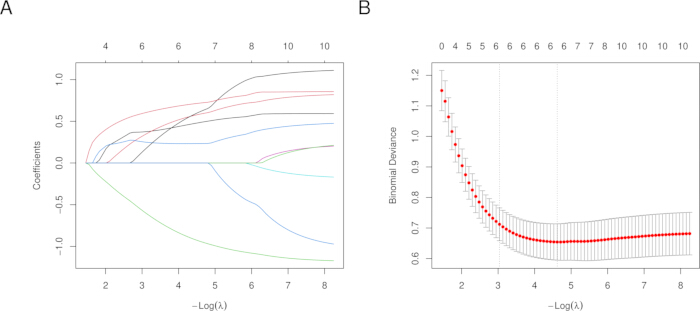
図 6: Lasso(Least absolute shrinkage and selection operator)回帰分析。 (A) Lasso回帰によって生成された係数パス。 (B) 交差検証誤差プロット。こちらのリンクをクリックして、この図の拡大版を表示してください。
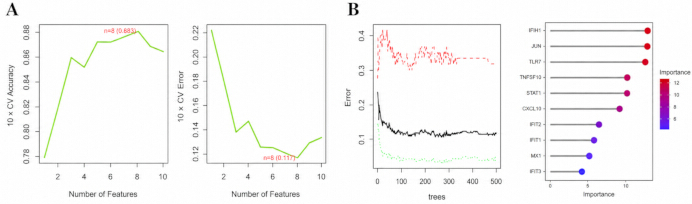
Figure 7: サポートベクターマシン-再帰的特徴消去法およびランダムフォレスト解析。 (A) サポートベクターマシン-再帰的特徴消去法による特徴量選択プロット。 (B) ランダムフォレストモデルおよび遺伝子重要度ランキング。 こちらをクリックして、この図の拡大版を表示してください。
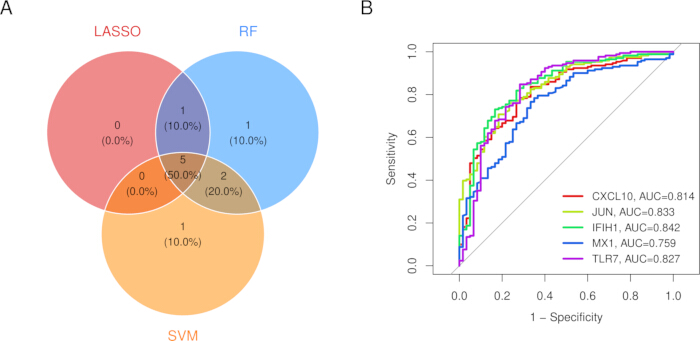
図 8: 機械学習のまとめ。 (A) 3つの特徴量選択アルゴリズムの共通部分を示すベン図。 (B) 5つのコア遺伝子の受信者動作特性(ROC)曲線。こちらのリンクをクリックして、この図の拡大版を表示してください。
GSE117261における外部妥当性検証
GSE117261を独立した肺組織バリデーションコホートとして使用し、発現変動スクリーニング、加重遺伝子共発現ネットワーク構築、および機械学習による特徴量選択には含めなかった(表3)。完了したバリデーション結果では、5つの遺伝子間で不均一な再現性が示された(表4)。CXCL10は上昇しており(log₂ fold change = 0.677; P = 0.0410; FDR = 0.144)、カットオフ値6.245、感度0.724、特異度0.600で、AUC 0.639(95% CI, 0.491–0.786)であった。JUNは上昇しており(log₂ fold change = 0.463; P = 0.00248; FDR = 0.0194)、カットオフ値8.708、感度0.707、特異度0.720で、AUC 0.714(95% CI, 0.593–0.835)であった。
IFIH1 (log2 fold change = 0.107; P = 0.371; FDR = 0.591; AUC = 0.543, 95% CI, 0.398–0.687)、MX1 (log2 fold change = 0.109; P = 0.488; FDR = 0.690; AUC = 0.475, 95% CI, 0.337–0.614)、および TLR7 (log2 fold change = -0.050; P = 0.543; FDR = 0.733; AUC = 0.546, 95% CI, 0.414–0.679) は、事前設定された外部支持基準を満たしませんでした。また、TLR7 は qRT-PCR の結果とは逆の方向性を示しました。GSE117261 内で適合および評価を行った探索的な5遺伝子モデルでは、見かけ上の AUC は 0.740 でしたが、反復ネステッド交差検証による AUC は 0.656 でした。したがって、JUN が最も強力な独立した支持を受け、CXCL10 は方向性の一致した限定的な証拠を示し、IFIH1、MX1、および TLR7 の再現性は低いか、あるいは不一致でした。
| 項目 | 概要 |
| データセットアクセッション番号 | GSE117261 |
| データソース | Gene Expression Omnibus (GEO) |
| 試料タイプ | ヒト肺組織トランスクリプトームマイクロアレイデータ |
| サンプルサイズ | PAH検体58例およびドナー不適格コントロール検体25例 |
| プラットフォーム | GPL6244 / Affymetrix Human Gene 1.0 ST Array |
| バリデーションの目的 | CXCL10、JUN、IFIH1、MX1、およびTLR7における発現差、単一遺伝子ROC解析、および探索的な5遺伝子複合ROCモデリング |
| 本研究における役割 | 独立した外部検証データセット;元のトレーニング、WGCNA、または特徴量選択解析には含まれていない |
表3:GSE117261独立外部検証データセットの基本情報。 この表は、データセットのソース、サンプルタイプ、サンプルサイズ、プラットフォーム、検証目的、および本研究におけるGSE117261の役割をまとめたものである。
| 遺伝子/モデル | 多環芳香族炭化水素 | コントロールn | log2フォールドチェンジ | p値 | 偽発見率 | AUC(曲線下面積) | AUC 95%信頼区間 | ヨーデン指数によるカットオフ値 | 感度 | 特異性 |
| CXCL10 | 58 | 25 | 0.677 | 0.041 | 0.144 | 0.639 | 0.491–0.786 | 6.245 | 0.724 | 0.6 |
| JUN | 58 | 25 | 0.463 | 0.00248 | 0.019 | 0.714 | 0.593–0.835 | 8.708 | 0.707 | 0.72 |
| IFIH1 | 58 | 25 | 0.107 | 0.371 | 0.591 | 0.543 | 0.398–0.687 | 5.3 | 0.759 | 0.44 |
| MX1 | 58 | 25 | 0.109 | 0.488 | 0.69 | 0.475 | 0.337–0.614 | 6.833 | 0.724 | 0.4 |
| TLR7 | 58 | 25 | -0.05 | 0.543 | 0.733 | 0.546 | 0.414–0.679 | 4.065 | 0.138 | 1 |
| 5遺伝子モデル(見かけ上/サンプル内) | 58 | 25 | / | / | / | 0.74 | 0.621–0.859 | 0.613 | 0.845 | 0.6 |
| 5遺伝子モデル(反復入れ子状交差検証) | 58 | 25 | / | / | / | 0.656 | 0.517–0.795 | 0.655 | 0.845 | 0.52 |
表4:GSE117261における実際の発現差およびROC検証結果。 本表は、PAH群とコントロール群のサンプルサイズ、log₂ fold change、P値、偽発見率(FDR)調整後の値、AUC、95%信頼区間、Youden指数によるカットオフ値、感度、特異度、および5つの遺伝子と探索的な複合モデルに関する解釈を報告している。
定量逆転写PCRによる検証
定量逆転写PCRによるバリデーションには、20検体の生物学的に独立したPAH肺組織サンプルと20検体の生物学的に独立したコントロールサンプルを用い、各生物学的サンプルについて3回のテクニカルレプリケートの平均値を算出しました。CXCL10、JUN、IFIH1、MX1、およびTLR7は、PAHにおいて有意に発現上昇していました(表5、図9A)。平均相対発現値は、CXCL10で約3.470、JUNで2.560、IFIH1で2.760、MX1で2.650、TLR7で2.580でした。対応するP値/FDR値は、それぞれ1.43 × 10⁻7/7.15 × 10⁻7、4.17 × 10⁻5/4.17 × 10⁻5、1.10 × 10⁻5/1.38 × 10⁻5、1.58 × 10⁻6/2.63 × 10⁻6、および1.37 × 10⁻6/2.63 × 10⁻6でした。
qRT-PCR発現に基づく単一遺伝子のROC解析では、AUCはCXCL10で0.988(95% CI, 0.961–1.000)、JUNで0.880(95% CI, 0.758–1.000)、IFIH1で0.908(95% CI, 0.820–0.995)、MX1で0.945(95% CI, 0.874–1.000)、TLR7で0.948(95% CI, 0.886–1.000)であった(Figure 9B; Table 5)。5遺伝子のロジスティック回帰モデルでは、感度および特異度が1.000であり、見かけのAUC 1.000(DeLong 95% CI: 1.000–1.000)を達成した(Figure 9C)。定量逆転写PCRによる検証とGSE117261との間の発現方向の一致性をヒートマップを用いて視覚化した(Figure 9D)。同一の40サンプルをフィッティングと評価の両方に使用したため、これは見かけ上のサンプル内性能を反映したものである。L2正則化ロジスティック回帰モデルを用いた層化5分割交差検証を100回繰り返したところ、プールしたout-of-fold AUCも1.000(95% CI, 1.000–1.000)にとどまり、すべての反復でAUC 1.000が得られた。このような内部的な安定性はあるものの、コホート規模が小さいため、独立した前向き検証が依然として必要である。GSE117261との方向性の比較では、CXCL10、JUN、IFIH1、MX1で一致した上昇が見られたが、TLR7では方向性が不一致であった(Figure 9D)。
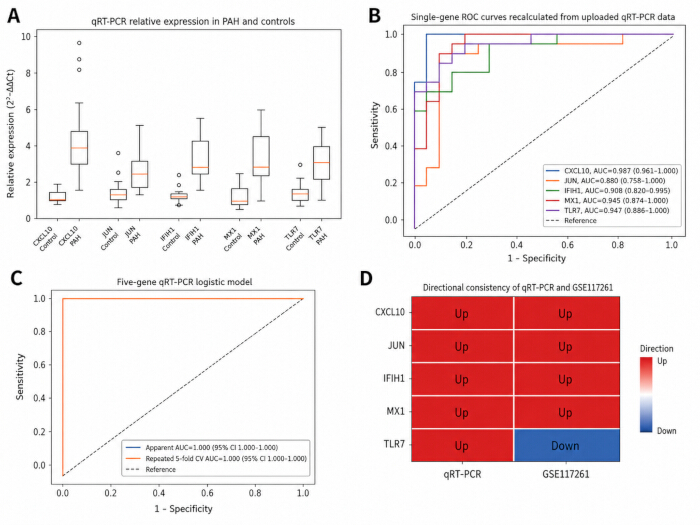
図9定量逆転写PCRバリデーション (A) 20例の生物学的に独立したPAH肺組織サンプルおよび20例の生物学的に独立した対照サンプルにおけるCXCL10、JUN、IFIH1、MX1、およびTLR7の相対的発現量を示すボックスプロット。各生物学的サンプルについて3回のテクニカルリプリケートで測定し、平均Ct値を解析に使用した。各ボックスプロットにおいて、中央の線は中央値を、ボックスは四分位範囲を示し、ひげは四分位範囲の1.5倍まで延びており、ひげの外側にある個々の点は外れ値を示す。(B) qRT-PCR発現値に基づく単一遺伝子のROC曲線。AUCおよびDeLong法による95%信頼区間を示す。 (C) 5つの遺伝子を用いたロジスティック回帰モデルのROC曲線。見かけ上の(サンプル内での)性能と、100回繰り返した層化5分割交差検証解析による統合アウトオブフォールド性能の両方を示す。(D) qRT-PCRとGSE117261の間で発現方向の一致を示すヒートマップ。CXCL10、JUN、IFIH1、およびMX1は一致して上昇したが、TLR7は不一致であった。 この図の拡大版を表示するには、ここをクリックしてください。
| 遺伝子/モデル | 多環芳香族炭化水素 | コントロール n | コントロール 2^-ΔΔCt, 平均値 ± 標準偏差 | PAH 2^-ΔΔCt, 平均値 ± 標準偏差 | 方向 | P値 | 偽発見率 | AUC(曲線下面積) | AUC 95%信頼区間 | Youden指数によるカットオフ値 | 感度- 活性 | 特異的- 都市 | バリデーションの種類 | ||||
| CXCL10 | 20 | 20 | 1.099 ± 0.502 | 3.470 ± 1.043 | 発現上昇した | 1.43E-07 | 7.15E-07 | 0.987 | 0.961–1.000 | 2.028 | 1 | 0.95 | 単一遺伝子のqRT-PCR解析 | ||||
| JUN | 20 | 20 | 1.158 ± 0.738 | 2.560 ± 1.609 | 発現上昇した | 4.17E-05 | 4.17E-05 | 0.88 | 0.758–1.000 | 1.423 | 0.85 | 0.9 | 単一遺伝子のqRT-PCR解析 | ||||
| IFIH1 | 20 | 20 | 1.091 ± 0.440 | 2.760 ± 1.398 | 発現上昇した | 1.10E-05 | 1.38E-05 | 0.908 | 0.820–0.995 | 1.579 | 0.8 | 0.85 | 単一遺伝子qRT-PCR解析 | ||||
| MX1 | 20 | 20 | 1.132 ± 0.582 | 2.650 ± 1.085 | 上方制御された | 1.58E-06 | 2.63E-06 | 0.945 | 0.874–1.000 | 1.779 | 0.9 | 0.9 | 単一遺伝子qRT-PCR解析 | ||||
| TLR7 | 20 | 20 | 1.080 ± 0.444 | 2.580 ± 1.284 | アップレギュレートされた | 1.37E-06 | 2.63E-06 | 0.947 | 0.886–1.000 | 1.764 | 0.85 | 0.9 | 単一遺伝子qRT-PCR解析 | ||||
| 5遺伝子モデル(見かけの/サンプル内) | 20 | 20 | 適用不可 ケーブル | 該当なし ケーブル | 該当なし | / | / | 1 | 1.000–1.000 | 0.998 | 1 | 1 | モデルのフィッティングおよび評価に使用したものと同じ40個の生物学的試料 | ||||
| 5遺伝子モデル(100回繰り返し5分割交差検証) | 20 | 20 | 該当なし ケーブル | 該当なし ケーブル | 該当なし | / | / | 1 | 1.000–1.000 | 0.716 | 1 | 1 | L2正則化ロジスティック回帰を用いた内部交差検証 | ||||
表5:CXCL10、JUN、IFIH1、MX1、およびTLR7に関する完全なqRT-PCR発現およびROC結果(5遺伝子の複合モデル解析を含む)。本表は、PAHおよび対照群のサンプルサイズ、相対発現値、発現方向、P値、偽発見率(FDR)調整値、AUC、95%信頼区間、Youden指数カットオフ値、感度、特異度、および個々の遺伝子と複合モデルのバリデーション形式を報告している。
GSE210248におけるシングルセル・トランスクリプトーム解析による検証
GSE210248は、PAHの肺動脈リモデリングに、免疫細胞と血管構造細胞間のコミュニケーションの変化が伴っていることを示すことで、細胞レベルでのメカニズム的な裏付けを提供しました。この観察結果は、炎症反応、ケモカインシグナリング、Toll様受容体シグナリング、および腫瘍壊死因子シグナリングに関するバルクトランスクリプトームの濃縮結果と一致していました。
単一細胞レベルのエビデンスにより、PAHの肺動脈シグナリングネットワークが、平滑筋細胞や線維芽細胞を含む構造細胞へとシフトしていることが示唆されました。平滑筋細胞は、酸素感知/ペリサイト様、収縮型、合成型、および線維芽細胞様を含む複数の状態を示しました。これらの結果は、免疫炎症活性化と血管構造細胞のリモデリングが共同してPH/PAHの進行を駆動するという疾患モデルを支持するものです。
候補化合物のスクリーニングおよび分子ドッキング
Connectivity Mapスクリーニングにより、Logitスコア10.13、予測確率0.085で、上位10個のヒット化合物の中でBRD-K91900765が最高ランクの候補化合物として同定されました(図10)。化合物のキュレーションの結果、BRD-K91900765は、PubChem化合物識別番号3038525、分子量436.27 g/molの選択的p38α/MAPK14阻害剤であるVX-745/neflamapimodに相当することが示されました(表6)。
5つのバイオマーカー関連タンパク質を用いてBRD-K91900765/VX-745の探索的ドッキングを行った結果、Vinaスコアの最高値はCXCL10で-7.5 kcal/mol、JUNで-7.6 kcal/mol、IFIH1で-7.5 kcal/mol、MX1で-8.7 kcal/mol、TLR7で-8.1 kcal/molであった(表7~11;図11A~E)。これらの結果は予測上の構造的適合性を示すのみであり、これら5つのタンパク質が直接的な薬理学的ターゲットであることを立証するものではない。予備的な吸収、分布、代謝、排泄、および毒性(ADMET)予測では、計算されたcLogPが比較的高いためさらなる評価が必要であるものの、本化合物がいくつかの薬物様特性を有することが示唆された(表12)。既知のVX-745ターゲットであるMAPK14/p38α(PDB ID: 1OUK)に対するドッキングを、ポジティブコントロールの参照解析として含めた。MAPK14の最大の空孔であるC1では、Vinaスコア-7.9 kcal/mol、空孔体積3560 Å3、ドッキングボックスの中心座標(2, 22, 34)、およびサイズ(22, 31, 31)が得られた(表13;図11F)。
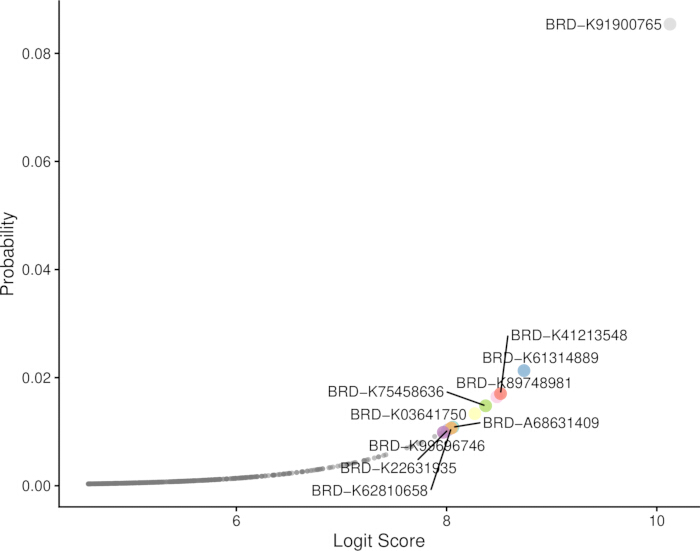
図 10: Connectivity Map 候補化合物のランキング。 Connectivity Map スクリーニングによって同定された候補化合物のランキング。BRD-K91900765 が最も高いランキングの化合物であり、Logit スコアは 10.13、予測確率は 0.085 であった。こちらのリンクをクリックして、この図の拡大版を表示してください。
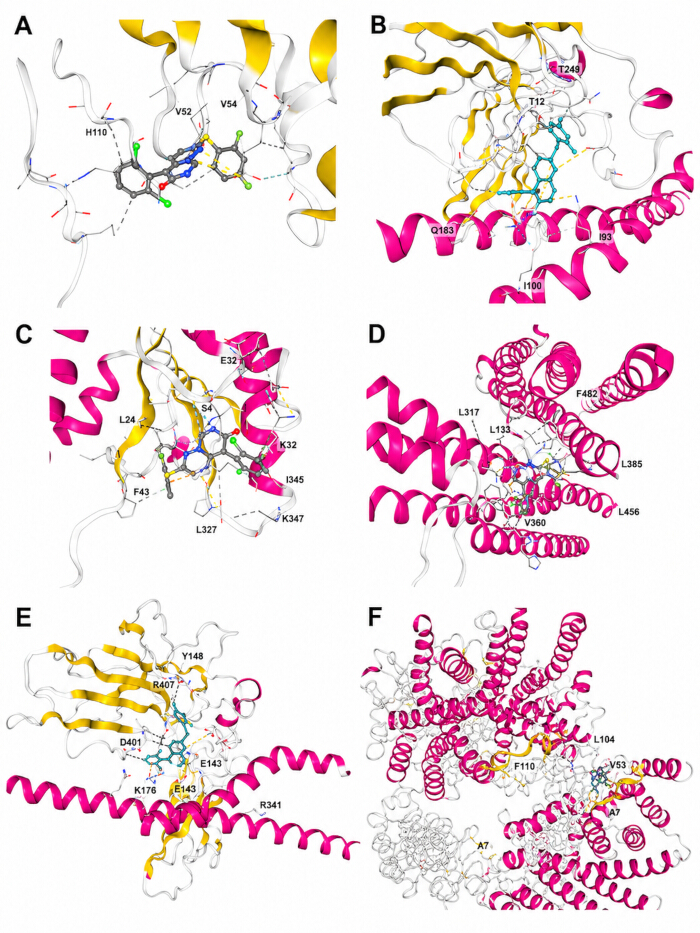
図 11: BRD-K91900765/VX-745の三次元分子ドッキング図。 (A) CXCL10を用いた探索的ドッキング。 (B) JUNを用いた探索的ドッキング。 (C) IFIH1を用いた探索的ドッキング。 (D) MX1を用いた探索的ドッキング。 (E) TLR7を用いた探索的ドッキング。 (F) 既知の薬理学的標的であるMAPK14/p38α (PDB ID: 1OUK) を用いたポジティブコントロールとしてのドッキング。 パネル A–E は予測される構造的な適合性を示すものであり、直接的な薬理学的標的であることを立証するものではない。 こちらのリンクをクリックして、この図の拡大版を表示してください。
| 項目 | 概要 |
| CMap/Broad ID | BRD-K91900765(共通バッチ形式:BRD-K91900765-001-xx-x) |
| 一般名/別名 | VX-745; neflamapimod; VRT-031745; VD-31745 |
| 化学名 | 5-(2,6-ジクロロフェニル)-2-(2,4-ジフルオロフェニルスルファニル)ピリミド[1,6-b]ピリダジン-6-オン |
| PubChem CID | 3038525 |
| CAS番号 | 209410-46-8 |
| 分子式 / 相対分子質量 | C19H9Cl2F2N3OS; 436.27 g/mol |
| 標準SMILES | C1=CC(=C(C(=C1)Cl)C2=C3C=CC(=NN3C=NC2=O)SC4=C(C=C(C=C4)F)F)Cl |
| InChIKey | VEPKQEUBKLEPRA-UHFFFAOYSA-N |
| 確立された主要な薬理学的標的 | MAPK14/p38αおよびp38βの阻害についても報告されているが、p38βに対する選択性はp38αよりも低い。 |
表6:BRD-K91900765/VX-745の化学的および薬理学的情報。本表は、BRD-K91900765/VX-745の化合物識別子、別名、化学名、分子式、分子量、構造記述子、および確立された薬理学的標的をまとめたものである。
| CurPocket ID | Vinaスコア (kcal/mol) | 空洞体積 (ų) | 中心 (x, y, z) | ドッキングサイズ (x, y, z) |
| C1 | -7.5 | 7568 | 49, 15, 4 | 34, 33, 35 |
| C4 | -7 | 160 | 46, 0, 4 | 22, 22, 22 |
| C3 | -6 | 208 | 34, 15, 9 | 22, 22, 22 |
| C2 | -5.8 | 465 | 45, -6, 19 | 22, 22, 22 |
| C5 | -5.1 | 150 | 63, 0, 20 | 22, 22, 22 |
表7:CXCL10(PDB ID: 1LV9)に対するBRD-K91900765/VX-745の予測ドッキングポケット。 この表は、CB-Dock2によって生成された、順位付けされたキャビティ識別子、Vinaスコア、キャビティ体積、ドッキングボックスの中心、およびドッキングボックスの寸法を示している。
| CurPocket ID | Vinaスコア (kcal/mol) | 空孔体積 (ų) | 中心 (x, y, z) | ドッキングサイズ (x, y, z) |
| C3 | -7.6 | 1593 | 26, 35, 70 | 22, 22, 22 |
| C2 | -7.5 | 1927 | 25, 21, 60 | 35, 22, 22 |
| C1 | -7.4 | 5420 | 32, 37, 48 | 35, 22, 31 |
| C5 | -6 | 464 | 26, 5, 48 | 22, 22, 22 |
| C4 | -5.3 | 683 | 59, 32, 39 | 22, 22, 22 |
表8:JUN (PDB ID: 1JUN) に対する BRD-K91900765/VX-745 の予測ドッキングポケット。 この表は、CB-Dock2によって生成された、順位付けされたキャビティ識別子、Vinaスコア、キャビティ体積、ドッキングボックスの中心、およびドッキングボックスの寸法を示している。
| CurPocket ID | Vinaスコア (kcal/mol) | 空隙体積 (ų) | 中心 (x, y, z) | ドッキングサイズ (x, y, z) |
| C1 | -7.5 | 583 | 15, 4, 17 | 22, 22, 22 |
| C3 | -7.2 | 146 | 19, 21, 24 | 22, 22, 22 |
| C4 | -6.6 | 141 | 31, 19, 15 | 22, 22, 22 |
| C2 | -6.2 | 273 | 38, 9, 24 | 22, 22, 22 |
| C5 | -6.2 | 125 | 27, -7, 10 | 22, 22, 22 |
表 9: IFIH1 (PDB ID: 3B6E) に対する BRD-K91900765/VX-745 の予測ドッキングポケット。 この表は、CB-Dock2 によって生成された、順位付けされたキャビティ識別子、Vina スコア、キャビティ体積、ドッキングボックスの中心、およびドッキングボックスの寸法を示している。
| CurPocket ID | Vinaスコア (kcal/mol) | キャビティ体積 (ų) | 中心 (x, y, z) | ドッキングサイズ (x, y, z) |
| C1 | -8.7 | 523 | -18, -14, -5 | 22, 22, 22 |
| C4 | -7.3 | 262 | -13, -6, -9 | 22, 22, 22 |
| C3 | -7 | 306 | 12, 12, -7 | 22, 22, 22 |
| C2 | -6.9 | 408 | -3, 1, -12 | 22, 22, 22 |
| C5 | -6.2 | 179 | 24, 25, 13 | 22, 22, 22 |
表10:MX1(PDB ID: 5GTM)に対するBRD-K91900765/VX-745の予測ドッキングポケット。本表は、CB-Dock2によって生成されたキャビティ識別子の順位、Vinaスコア、キャビティ体積、ドッキングボックスの中心座標、およびドッキングボックスの寸法を示している。
| CurPocket ID | Vinaスコア (kcal/mol) | キャビティ体積 (ų) | 中心 (x, y, z) | ドッキングサイズ (x, y, z) |
| C2 | -8.1 | 7347 | 112, 137, 148 | 33, 28, 35 |
| C3 | -8.1 | 2604 | 124, 124, 176 | 30, 22, 22 |
| C1 | -8 | 7676 | 137, 112, 148 | 34, 29, 35 |
| C5 | -6.9 | 1976 | 117, 157, 88 | 22, 22, 22 |
| C4 | -6.6 | 2040 | 132, 92, 91 | 22, 22, 22 |
表11:TLR7(PDB ID: 7CYN)に対するBRD-K91900765/VX-745の予測ドッキングポケット。 本表は、CB-Dock2によって生成された、順位付けされたキャビティ識別子、Vinaスコア、キャビティ体積、ドッキングボックスの中心、およびドッキングボックスの寸法を示している。
| カテゴリー | パラメーター | 結果 | 解釈 |
| 物理化学的性質 | 分子量 | 436.27 g/mol | 500 Da未満であり、リピンスキーの分子量閾値を満たしている |
| 物理化学的特性 | 計算脂溶性係数(cLogP) | 約5.49 | 5をわずかに上回っており、高い親油性を示唆しているため、溶解度および非特異的結合を考慮する必要がある |
| 物理化学的特性 | 極性表面積 | 約47.26 Ų | 低い極性表面積であり、膜透過性が良好である可能性と一致している |
| ドラッグライクネス | HBA/HBD | 5月00日 | 水素結合受容体および供与体に関するリピンスキーの閾値を満たしている |
| ドラッグライクネス | 回転可能結合 | 3 | 低いコンフォメーション柔軟性は、安定した結合コンフォメーションにとって有利である |
| 構造アラート | PAINS/Brenkアラート | 検出されず | 共通の汎アッセイ干渉物質または反応性構造アラートは検出されませんでした |
| 毒性予測 | エームス変異原性試験 | 予測非Ames毒性 | 予測される変異原性リスクは低いことが示唆されますが、依然として実験的な検証が必要です。 |
| 毒性予測 | 発がん性 | 非発がん性と予測される | 予測される長期的な発がんリスクは比較的低いことが示唆されますが、依然として実験的な検証が必要です。 |
| 薬物動態学的注記 | 経口バイオアベイラビリティ/脳移行性 | 文献およびデータベースにより、経口投与が可能で脳移行性を有する低分子化合物が存在することが示されている。 | p38α阻害剤としての開発背景と整合しているが、肺高血圧症(PH)適応については依然として再評価が必要である。 |
表 12:BRD-K91900765/VX-745の予備的な物理化学的特性、ドラッグライクネス、ADMETおよび毒性予測。 この表は、予測された物理化学的特性、ドラッグライクネス指標、構造的アラート、毒性エンドポイントおよび薬物動態特性をまとめたものである。これらの計算による予測は予備的なものであり、実験的な薬物動態学的または毒性学的な検証に代わるものではない。
| CurPocket ID | Vinaスコア (kcal/mol) | キャビティ体積 (ų) | 中心 (x, y, z) | ドッキングサイズ (x, y, z) |
| C1 | -7.9 | 3560 | 2, 22, 34 | 22, 31, 31 |
| C5 | -7.5 | 254 | -9, 28, 60 | 22, 22, 22 |
| C3 | -7.4 | 351 | 12, 7, 37 | 22, 22, 22 |
| C2 | -6.3 | 827 | 18, 5, 28 | 22, 22, 22 |
| C4 | -6.3 | 334 | -16, 17, 38 | 22, 22, 22 |
表13:ポジティブ参照解析として含まれた、既知の薬理学的標的であるMAPK14/p38α(PDB ID: 1OUK)に対するBRD-K91900765/VX-745の予測ドッキングポケット。本表は、5つのバイオマーカー関連タンパク質に適用したものと同じドッキングワークフローを用いて算出された、ランク付けされたキャビティ識別子、Vinaスコア、キャビティ体積、ドッキングボックスの中心、およびドッキングボックスの寸法を報告している。
総括すると、探索的解析およびqRT-PCRの結果から、CXCL10、JUN、IFIH1、MX1、およびTLR7が、免疫炎症性の調節不全および肺血管リモデリングに関連するPH/PAHのバイオマーカー候補であることが支持されましたが、独立したGSE117261での再現性はJUNで最も強く、他の遺伝子ではばらつきが見られました。BRD-K91900765/VX-745は、MAPK14/p38α阻害という妥当なメカニズムを持つ、計算科学的に優先順位付けされたドラッグリポジショニング候補であり、治療的解釈の前には、ターゲット結合、細胞レベル、薬物動態、毒性、および動物モデルでの検証が必要です。
データの利用可能性:
本研究で使用したすべての公開トランスクリプトームデータセットは、Gene Expression Omnibusデータベースのアクセッション番号GSE22356、GSE33463、GSE48149、GSE117261、およびGSE210248から入手可能です。すべてのコーディングファイル、処理済みデータセット、匿名化されたqRT-PCRの生データおよび解析データ、モデル出力、ならびに分子ドッキングの入力・出力ファイルは、構造化されたZenodoリポジトリに集約されています。このリポジトリには、各ファイル、ソフトウェアおよびパッケージのバージョン、スクリプトの実行順序、および完全な再現手順を記載したREADMEが含まれています - https://zenodo.org/records/21682282
ディスカッション
公開トランスクリプトーム、加重遺伝子共発現ネットワーク解析、機能エンリッチメント、タンパク質間相互作用ネットワーク解析、3つの機械学習アルゴリズム、外部検証、シングルセル・トランスクリプトーム解釈、定量逆転写PCRによる確認、Connectivity Mapスクリーニング、および分子ドッキングを組み合わせることで、PH/PAHに関連する分子バイオマーカーおよび治療候補化合物を同定するための、統合的で再現可能なワークフローを開発しました。CXCL10、JUN、IFIH1、MX1、およびTLR7がコア特徴遺伝子として一貫して優先され、これらは総じて免疫炎症およびインターフェロン関連の分子軸にマッピングされました。これらの知見は、PH/PAHが単なる血行動態の異常ではなく、免疫活性化、炎症性シグナル伝達、先天的な核酸センシング、ならびに構造的および細胞的な表現型変化を伴う複雑な血管リモデリング疾患であるという概念を支持しています2,5,6。
これら5つの遺伝子の診断能は、マルチアルゴリズムによる特徴量選択および発見コホートのROC解析によって裏付けられました。GSE117261を用いた独立した検証結果は、一様ではなく不均一なものでした。JUNは事前に規定されたFDRおよびAUCの基準を満たし、CXCL10はトランスクリプトーム全体のFDR有意性は認められなかったものの方向性の一致した名目上の増加を示し、IFIH1およびMX1は限定的な再現性にとどまり、TLR7は不一致な方向性を示しました。これらの結果は、5つの遺伝子すべてが独立して検証されたという主張を支持するものではなく、コホートの構成、組織の不均一性、プラットフォームの違い、および疾患の重症度の影響がある可能性を示唆しています。対照的に、20例のPAH患者および20例の対照群の肺組織サンプルを用いたqRT-PCRでは、5つの遺伝子すべてで有意な発現上昇が確認され、良好な単一遺伝子のROC性能が示されました。
5遺伝子qRT-PCRロジスティックモデルは、1.000(95% CI, 1.000–1.000)の見かけ上のAUCを達成し、100回の反復層化5分割交差検証分析においても、プールされたout-of-fold AUCは1.000を維持しました。しかしながら、このモデルはわずか40の生物学的サンプルで構築されており、小規模なレトロスペクティブコホートにおける完全分離は、楽観的で不安定な性能推定値を導き出す可能性があります。したがって、本パネルは臨床的に検証された診断ツールではなく、探索的な分子シグネチャーとして検討されるべきです。臨床応用に向けては、より大規模な多施設共同コホート、事前に規定された固定モデル係数、タンパク質レベルでの検証、免疫組織化学染色、およびプロスペクティブ試験が必要となります。
5つのコア遺伝子のうち、CXCL10は肺血管微小環境における免疫細胞のリクルートメントおよび局所的な炎症増幅を促進している可能性があります。IFIH1およびTLR7は先天的な核酸センシングに関与しており、抗ウイルス様炎症経路の活性化を反映していると考えられます。MX1は典型的なインターフェロン刺激遺伝子であり、I型インターフェロン経路活性化の下流マーカーである可能性があります。JUNは、炎症刺激を細胞増殖、アポトーシス、および組織リモデリングへと結びつけるストレス応答性転写因子です。総合すると、これらの遺伝子は、先天性免疫の活性化とインターフェロン関連シグナルが、PH/PAHにおける血管リモデリングプロセスと相互作用するという、生物学的に整合性のあるモデルを示唆しています。この解釈は、炎症、免疫、およびインターフェロン関連経路がPAHの病態生理に寄与するという previous evidence2,5,6と一致しています。
シングルセル検証により、バルク解析から得られた知見にメカニズム的な背景が提供された。GSE210248は、PAHの肺動脈リモデリングが、免疫細胞と血管構造細胞(平滑筋細胞、線維芽細胞、内皮細胞、および単球/マクロファージを含む)との間のコミュニケーションの変化を伴うことを示唆していた。収縮型、合成型、酸素感受性/ペリサイト様、および線維芽細胞様を含む、複数の平滑筋細胞表現型状態の存在は、免疫活性化と細胞の構造的リモデリングが同時に起こる疾患モデルを支持している。バルクのトランスクリプトーム信号は、細胞比率の変化、免疫細胞の浸潤、または常在血管細胞における転写変化に起因する可能性があるため、この細胞レベルの証拠は重要である。したがって、シングルセル解析により、CXCL10、JUN、IFIH1、MX1、およびTLR7は、単一の細胞型のプロセスではなく、多細胞的な肺血管リモデリングエコシステムの中に位置付けられることになる18,19,20,21.
ドラッグリポジショニング解析により、VX-745/neflamapimodに相当するBRD-K91900765が、計算上の最有力候補として特定された。VX-745は選択的p38α/MAPK14阻害剤であり、炎症性ストレス経路との関連性から、PH/PAHに関連する炎症の文脈においてメカニズム的に妥当であると考えられる30。そのため、メカニズム的に関連するポジティブリファレンス解析として、MAPK14/p38αに対するドッキング解析を組み込んだ。対照的に、CXCL10、JUN、IFIH1、MX1、およびTLR7に対するドッキング解析は探索的なものであり、予測される構造的な適合性を示したに過ぎない。これらのバイオマーカー関連タンパク質がVX-745の直接的な標的であることや、直接的な結合、標的阻害、あるいは治療有効性を実証したものではない。より生物学的に妥当な仮説は、VX-745がMAPK14を阻害することにより、特定された免疫炎症およびインターフェロン関連の転写シグネチャーを間接的に調節する可能性があるということである。Connectivity Mapによる予測、ドッキングスコア、およびADMET推定値は、依然として計算上の根拠に留まっている。今後の研究には、生化学的な標的結合アッセイ、肺動脈内皮細胞および平滑筋細胞を用いた実験、炎症刺激モデル、薬物動態学的および毒性学的評価、ならびに動物モデルによる検証を含めるべきである。
低酸素性肺高血圧症に関する最近の実験的研究では、好中球と肺血管細胞間の相互作用の重要性も強調されている。好中球と肺動脈平滑筋細胞との間のHCK介在性相互作用、および好中球と内皮細胞との間のSERPINB3介在性相互作用が、肺血管リモデリングに寄与することが報告されている31˒32。トランスクリプトーム解析において、インターフェロン関連、STAT1、およびJAK–STATシグナルが同定されたため、SERPINB3–STAT1/3軸は本知見において特に重要である。以上の観察結果を総合すると、免疫細胞の活性化および血管構造細胞との相互作用が、PH/PAHの進行に寄与している可能性が支持される。
本研究にはいくつかの強みがある。データセット特有のバイアスを軽減するため、複数の公開データセットの使用とバッチ効果の補正が行われた。特徴量の堅牢性を高めるために、差分的発現解析、加重遺伝子共発現ネットワーク解析、タンパク質間相互作用解析、および3つの機械学習アルゴリズムが組み合わされた。独立したバルク検証、qRT-PCRによる確認、およびシングルセルによるエビデンスにより、相補的でありながら重複しない多層的な根拠が提示された。一方で、GSE117261における不均一な結果やqRT-PCRコホートの少なさは、外部での再現性の不十分さ、組織やプラットフォーム特有の潜在的な影響、および過学習のリスクなどの重要な限界も浮き彫りにしている。バイオマーカーの探索は候補化合物のスクリーニングまで拡張されたが、ドッキング解析は依然として仮説生成の段階に留まっている。今後の研究では、空間的トランスクリプトミクス、プロテオミクス、免疫組織化学、およびオルガノイドや血管オンチップモデルを用いて、より大規模な独立コホートでこれら5つの遺伝子を検証すべきである。総じて、CXCL10、JUN、IFIH1、MX1、およびTLR7は、免疫炎症およびインターフェロン関連の血管リモデリングに関連するPH/PAHの候補バイオマーカーであり、BRD-K91900765/VX-745は、治療上の妥当性について実験的な検証を必要とする計算科学的なドラッグリポジショニング候補である。
開示事項
著者らは、競合する利益がないことを宣言します。
謝辞
本研究は、Hunan Innovative Province Construction Project(No. 2022JJ30465)の支援を受けて実施されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 2× SYBR Green PCR Mastermix | Beijing Solarbio Science & Technology Co., Ltd. | Catalog no. SR1110 | 色素ベースの定量的リアルタイムPCR増幅および蛍光検出 |
| AI21.msvmRFE.R および e1071 | CRAN e1071パッケージを用いたカスタムRスクリプト | AI21.msvmRFE.R; e1071 v1.7-17 | サポートベクターマシン-再帰的特徴消去 |
| アガロース | Beijing Solarbio Science & Technology Co., Ltd. | Catalog no. A8201; CAS 9012-36-6 | アガロースゲル電気泳動による全RNA完全性の評価 |
| アガロースゲル電気泳動装置 | Beijing Liuyi Biotechnology Co., Ltd. | Model DYCZ-24DN | RNA完全性の電気泳動評価 |
| AutoDock Vina スコアリングエンジン | Center for Computational Structural Biology, Scripps Research | v1.2.0; RRID: SCR_011958 | CB-Dock2ワークフロー内でのタンパク質-リガンドポーズのスコアリング |
| CB-Dock2 | Cao Laboratory, CB-Dock2 web server | v2.0; 2026年7月アクセス | 選択したタンパク質構造に対するVX-745のブラインドキャビティ検出および分子ドッキング |
| CellChat | CellChat R package | v2.1.2 | 単一細胞発現マトリックスからの細胞間コミュニケーションの推論および可視化 |
| CellChatDB.human | CellChat R packageに付属 | CellChatDB.human; Secreted Signalingサブセット; 最小細胞閾値 = 10 | CellChat用ヒトリガンド-受容体相互作用データベース |
| clusterProfiler | Bioconductor R package | v4.20.0; Bioconductor release 3.23 | Gene OntologyおよびKyoto Encyclopedia of Genes and Genomesの濃縮分析 |
| Connectivity Map (CMap/CLUE) | Broad Institute | L1000/CLUEリソース; RRID: SCR_016204; 2026年7月アクセス | 計算によるドラッグリポジショニング分析 |
| カスタムオリゴヌクレオチドプライマー | Beijing Solarbio Science & Technology Co., Ltd. | カスタム合成; プライマー配列は表2に記載 | ACTB, CXCL10, JUN, IFIH1, MX1, および TLR7の増幅 |
| cytoHubba | Cytoscape App Store | v0.1 | タンパク質-タンパク質相互作用ネットワークにおける次数ベースのハブ遺伝子ランキング |
| Cytoscape | Cytoscape Consortium | v3.10.4; RRID: SCR_003032 | タンパク質-タンパク質相互作用ネットワークの可視化および分析 |
| DrugBank | DrugBank Knowledgebase | v6.0; RRID: SCR_002700 | 化合物の同定および薬理学的情報のキュレーション |
| ゲルドキュメンテーションシステム | Beijing Liuyi Biotechnology Co., Ltd. | Model WO-9413B | アガロースゲルのRNA完全性結果の可視化および記録 |
| Gene Expression Omnibus (GEO) | National Center for Biotechnology Information | GSE22356, GSE33463, GSE48149, GSE117261, および GSE210248; RRID: SCR_005012 | バルクおよび単一細胞トランスクリプトームデータセットの取得 |
| GEOquery | Bioconductor R package | v2.80.0; Bioconductor release 3.23 | GEO発現データおよび表現型データのプログラムによるダウンロードおよびインポート |
| glmnet | CRAN R package | v5.0 | Least Absolute Shrinkage and Selection Operator (LASSO) ロジスティック回帰および正則化ロジスティックモデリング |
| limma | Bioconductor R package | v3.68.0; Bioconductor release 3.23; RRID: SCR_010943 | 差分的発現分析および経験的ベイズ統計 |
| NanoDrop分光光度計 | Thermo Fisher Scientific | NanoDrop ND-1000; software v3.8 | RNA濃度ならびにA260/280およびA260/230純度比の測定 |
| NCBI Primer-BLAST | National Center for Biotechnology Information | Web tool; RRID: SCR_003095; 2026年7月アクセス | プライマー特異性の検証 |
| pROC | CRAN R package | v1.19.0.1; RRID: SCR_024286 | 受信者動作特性(ROC)分析、DeLong信頼区間、およびYouden指数カットオフ |
| Protein Data Bank (PDB) | RCSB Protein Data Bank | CXCL10: 1LV9; JUN: 1JUN; IFIH1: 3B6E; MX1: 5GTM; TLR7: 7CYN; MAPK14/p38α: 1OUK; RRID: SCR_012820 | 分子ドッキングのための実験的に決定されたタンパク質構造の取得 |
| PubChem | National Center for Biotechnology Information | PubChem CID 3038525; RRID: SCR_004284 | BRD-K91900765/VX-745の三次元構造および化学識別子の取得 |
| R | R Foundation for Statistical Computing | v4.6.1; RRID: SCR_001905 | 統計計算、データ処理、機械学習、および可視化 |
| randomForest | CRAN R package | v4.7-1.2 | ランダムフォレストによる特徴選択および変数重要度ランキング |
| リアルタイムPCRシステム | Stratagene, 現在のAgilent Technologies | Mx3000P Real-Time PCR System | qRT-PCR増幅、蛍光取得、融解曲線分析、およびCt出力 |
| Seurat | CRAN R package; Satija Laboratory | v5.5.1; RRID: SCR_016341 | 単一細胞RNAシーケンシングの品質管理、正規化、次元削減、クラスタリング、およびアノテーション |
| STRING | STRING Consortium | v12.0; RRID: SCR_005223 | タンパク質-タンパク質相互作用ネットワークの構築 |
| sva (ComBat) | Bioconductor R package | v3.60.0; Bioconductor release 3.23 | データセット間のバッチ効果の補正 |
| SwissADME | Swiss Institute of Bioinformatics | Web server; 2026年7月アクセス | 薬物らしさ、物理化学的特性、およびADMEの事前スクリーニング |
| 全RNA抽出キット | Beijing Solarbio Science & Technology Co., Ltd. | Catalog no. R1200 | 肺組織サンプルからの全RNAの抽出および精製 |
| ユニバーサルRT-PCRキット (AMV) | Beijing Solarbio Science & Technology Co., Ltd. | Catalog no. RP1200 | 全RNAから相補的DNAへの逆転写 |
| WGCNA | CRAN R package | v1.74 | 加重遺伝子共発現ネットワーク構築およびモジュール-形質分析 |
参考文献
- Simonneau G, et al. Haemodynamic definitions and updated clinical classification of pulmonary hypertension. Eur Respir J. 2019;53(1):1801913. doi: 10.1183/13993003.01913-2018.
- Rabinovitch M, Guignabert C, Humbert M, Nicolls MR. Inflammation and immunity in the pathogenesis of pulmonary arterial hypertension. Circ Res. 2014;115(1):165–175.
- Humbert M, et al. 2022 ESC/ERS Guidelines for the diagnosis and treatment of pulmonary hypertension. Eur Heart J. 2022;43(38):3618–3731.
- Galiè N, et al. 2015 ESC/ERS Guidelines for the diagnosis and treatment of pulmonary hypertension. Eur Respir J. 2015;46(4):903–975.
- Soon E, et al. Elevated levels of inflammatory cytokines predict survival in idiopathic and familial pulmonary arterial hypertension. Circulation. 2010;122(9):920–927.
- George PM, et al. Evidence for the involvement of type I interferon in pulmonary arterial hypertension. Circ Res. 2014;114(4):677–688.
- Subramanian A, et al. A next-generation Connectivity Map: L1000 platform and the first 1,000,000 profiles. Cell. 2017;171(6):1437–1452.e17.
- Leek JT, et al. The sva package for removing batch effects and other unwanted variation in high-throughput experiments. Bioinformatics. 2012;28(6):882–883.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47. doi: 10.1093/nar/gkv007.
- Langfelder P, Horvath S. WGCNA: an R package for weighted correlation network analysis. BMC Bioinformatics. 2008;9:559. doi: 10.1186/1471-2105-9-559.
- Yu G, Wang LG, Han Y, He QY. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 2012;16(5):284–287.
- Kanehisa M, Goto S. KEGG: Kyoto Encyclopedia of Genes and Genomes. Nucleic Acids Res. 2000;28(1):27–30.
- Szklarczyk D, et al. The STRING database in protein–protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 2023;51(D1):D638–D646.
- Friedman J, Hastie T, Tibshirani R. Regularization paths for generalized linear models via coordinate descent. J Stat Softw. 2010;33(1):1–22.
- Guyon I, Weston J, Barnhill S, Vapnik V. Gene selection for cancer classification using support vector machines. Mach Learn. 2002;46:389–422.
- Breiman L. Random forests. Mach Learn. 2001;45(1):5–32.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77. doi: 10.1186/s12859-011-0077-8.
- Stearman RS, et al. Systems analysis of the human pulmonary arterial hypertension lung transcriptome. Am J Respir Cell Mol Biol. 2019;60(6):637–649.
- Crnkovic S, et al. Single-cell transcriptomics reveals skewed cellular communication and phenotypic shift in pulmonary artery remodeling. JCI Insight. 2022;7(20):e153471. doi: 10.1172/jci.insight.153471.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184(13):3573–3587.e29.
- Jin S, et al. Inference and analysis of cell–cell communication using CellChat. Nat Commun. 2021;12(1):1088. doi: 10.1038/s41467-021-21246-9.
- Bustin SA, et al. MIQE 2.0: revision of the Minimum Information for Publication of Quantitative Real-Time PCR Experiments guidelines. Clin Chem. 2025;71(6):634–651.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCt method. Methods. 2001;25(4):402–408.
- Kim S, et al. PubChem 2023 update. Nucleic Acids Res. 2023;51(D1):D1373–D1380.
- Knox C, et al. DrugBank 6.0: the DrugBank Knowledgebase for 2024. Nucleic Acids Res. 2024;52(D1):D1265–D1275.
- Daina A, Michielin O, Zoete V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness, and medicinal chemistry friendliness of small molecules. Sci Rep. 2017;7:42717. doi: 10.1038/srep42717.
- Burley SK, et al. RCSB Protein Data Bank: powerful new tools for exploring 3D structures of biological macromolecules for basic and applied research and education. Nucleic Acids Res. 2021;49(D1):D437–D451. doi: 10.1093/nar/gkaa1038.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891–3898. doi: 10.1021/acs.jcim.1c00203.
- Liu Y, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking, and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164. doi: 10.1093/nar/gkac394.
- Duffy JP, et al. The discovery of VX-745: a novel and selective p38α kinase inhibitor. ACS Med Chem Lett. 2011;2(10):758–763.
- Sheng Y, et al. Crocin inhibits neutrophil migration and activation to treat hypoxic pulmonary hypertension through targeting HCK. Phytomedicine. 2025;148:157334. doi: 10.1016/j.phymed.2025.157334.
- Cui H, et al. Leonurine ameliorates hypoxic pulmonary hypertension by inhibiting cross-talk between neutrophils and endothelial cells via SERPINB3 targeting. Int Immunopharmacol. 2026;176:116467. doi: 10.1016/j.intimp.2026.116467.