本研究では、2型糖尿病患者における血清miR-3619-5pの発現レベルを検討し、この分子が膵β細胞機能に及ぼす調節的な役割を調査しました。miR-3619-5pはT2DMにおいて発現低下しており、MTA3を標的とすることで膵β細胞機能の調節に関与している可能性があります。
この記事について
サマリー
要約
2型糖尿病(T2DM)の核心となる病理学的特徴は膵β細胞の不全であり、したがって、膵β細胞の恒常性を調節する有効な血中バイオマーカーおよび分子標的を特定することは、実用上の極めて重要な意義を持ちます。遺伝子発現の主要な調節分子として、miRNAは膵β細胞の増殖、アポトーシス、およびインスリン分泌において重要な役割を果たしています。本研究の目的は、T2DM患者の血清におけるmiR-3619-5pの発現パターンと臨床的価値を調査し、膵β細胞の増殖におけるその調節的役割を明らかにすることです。miR-3619-5pおよびMTA3の発現検出にはRT-qPCRを用い、診断能の評価にはROC曲線を用いました。標的リガンド関係の検証には、バイオインフォマティクス解析およびデュアルルシフェラーゼアッセイを用いました。細胞増殖はCCK-8アッセイで測定し、アポトーシスはフローサイトメトリーにより検討しました。また、インスリン分泌量はELISAを用いて測定しました。その結果、T2DM患者および膵β細胞において、miR-3619-5pとMTA3の発現が低下していることが示されました。miR-3619-5pはT2DM診断のバイオマーカーとなる可能性があり、その過剰発現は細胞増殖を促進し、アポトーシスを抑制し、インスリン分泌を増強させます。miR-3619-5pはMTA3を標的として調節しており、両者は有意に正の相関を示しました。miR-3619-5p mimicは、si-MTA3によって引き起こされた膵β細胞機能へのダメージを回復させることができます。要約すると、miR-3619-5pはT2DMにおいて発現が低下しており、診断的価値を有しています。miR-3619-5pは、MTA3を標的とすることで膵β細胞機能の調節に関与している可能性があります。
概要
慢性代謝疾患である2型糖尿病(T2DM)は、主にインスリン抵抗性とそれに伴うインスリン分泌能の進行性喪失として現れ、全糖尿病症例の80%以上を占めています1。その病態は複雑であり、遺伝的要因と環境的要因の組み合わせに加え、細胞および分子調節の異常が関与しています2,3。膵β細胞はインスリン分泌を担う主要な細胞であるため、その増殖能の異常な低下はT2DMにおけるインスリン分泌不全の主要な原因となります4。現在、T2DMの臨床診断は主に血糖値や糖化ヘモグロビン(HbA1c)などの従来の指標に依存していますが、早期スクリーニングや疾患進行の予測におけるこれらの感度は限定的です5。T2DMの精密な診断と治療のための新しい戦略を提供するために、感度が高く特異的なバイオマーカーおよび主要な調節標的を特定することが急務となっています。
長期的な高血糖によって誘発される糖毒性の影響下では、膵β細胞の増殖が制限されアポトーシスが増加し、その結果、グルコース依存性インスリン分泌が徐々に喪失します。このプロセスは、疾患の継続的な進行を促進する重要な要因となります6,7。マイクロRNA(miRNA)は細胞内の多様な生理的プロセスに関与しており8、膵島細胞の増殖、アポトーシス、およびインスリン分泌を含む生理的プロセスに対して重要な調節効果を及ぼします9,10。多くの研究により、さまざまなmiRNAが2型糖尿病(T2DM)において異常に発現しており、疾患の病態生理に密接に関与していることが示されています11,12,13。miR-3619-5pは細胞増殖やアポトーシスを含む生物学的プロセスに関与しており、これまでの研究は主に腫瘍学の分野に焦点が当てられてきました14,15。miR-3619-5pの異常発現は、皮膚扁平上皮癌、肺癌、大腸癌、胃癌などの悪性腫瘍で観察されており、標的遺伝子を調節することで腫瘍細胞の増殖、転移、およびアポトーシスに影響を与えます16,17,18,19。しかし、T2DMにおけるmiR-3619-5pの臨床的な発現特性、臨床的関連性、および膵機能の調節メカニズムに関する研究には、依然として明確な空白が存在します。
MTAファミリーの主要なメンバーであるMTA3は、タンパク質間相互作用および遺伝子の転写調節を媒介し、細胞増殖、アポトーシス、代謝を含む重要な生理学的プロセスに広く関与しています20。MTA3に関する現在の研究は主に腫瘍学に焦点が当てられており21,22,23、代謝性疾患、特に2型糖尿病(T2DM)における役割を調査した研究は限られています。いくつかの研究では、糖尿病関連遺伝子であるMTA3が、高血糖誘発性肝線維化の調節に関与していることが分かっています24。このことは、MTA3がT2DMの進行に関与している可能性を示唆していますが、T2DMにおいてmiR-3619-5pによって調節されているかどうかはまだ確認されていません。
要約すると、miR-3619-5pに関する既存の研究は主に腫瘍および炎症モデルに限定されており、T2DMにおける臨床的な発現プロファイルや、膵β細胞のホメオスタシスおよび糖代謝異常における役割についてはまだ解明されていません。したがって、本研究ではT2DM患者の血清におけるmiR-3619-5pの発現と臨床的意義を評価することで、miR-3619-5pとMTA3の標的関係を検証し、さらに膵β細胞の増殖における調節的な役割を調査することを目的としています。これにより、T2DMの病態生理に関する研究、および臨床診断と治療のための新たな理論的根拠を提供します。
プロトコル
本研究は、TongzhouBay People's Hospital医学倫理委員会により承認されました(承認番号:2024122001)。本研究で用いられた手順は、ヘルシンキ宣言の原則に準拠しています。本研究に含まれるすべての個々の参加者からインフォームドコンセントを得ました。また、本研究に含まれる個人のデータについて、出版への同意を得ました。
研究対象
本研究では、2022年1月から2023年6月の間に当院で診断されたT2DM患者102名を後方視的に選出した。適格参加者の基準は、空腹時血糖値 ≥7.0 mmol/Lおよび食後2時間血糖値 ≥11.1 mmol/Lを含むT2DMの診断基準を満たしていること、過去3か月以内にインスリンまたは新世代の糖尿病治療薬による治療を受けていないこと、心臓、肝臓、腎臓、またはその他の臓器に重篤な合併症がなく、悪性腫瘍、自己免疫疾患、または感染症の既往がないこと、および臨床記録が完全であることとした。1型糖尿病またはその他の特定の種類の糖尿病患者、重篤な感染症、外傷、手術、またはその他の原因によるストレス状態にある者、過去3か月以内にグルココルチコイド、免疫抑制剤、または同様の薬剤を使用した者、および妊娠中または授乳中の女性は除外した。また、同期間に当院で定期健康診断を受けた80名で構成される対照群も含めた。
検体採取
すべての研究参加者は、少なくとも8~12時間的に絶食した。早朝に静脈血を5 mL採取し、RNaseフリーのEPチューブに分注し、遠心分離(3000 × g, 10 min)して血清を分離した後、後日の使用のために-80 °Cで保存した。
細胞培養および処理
ラット膵島β細胞株INS-1を、10% FBSおよび1% ペニシリン-ストレプトマイシンを含むRPMI 1640培地で培養した。高グルコース(HG)誘発細胞損傷モデルを構築するため、INS-1細胞を25 mM glucoseを含む培地で培養した25。未処理群では、INS-1細胞をRPMI 1640培地(11.1 mM glucose含有)で培養した。
miR-3619-5p mimic、miRNAブランクコントロール(miR-NC)、si-MTA3、およびブランクコントロール(si-NC)を含むトランスフェクションキットを用いてトランスフェクションを行った。miR-3619-5p mimic、miR-3619-5p inhibitor、siRNA、および対応するネガティブコントロールはすべてRiboBio社から購入した。miRNA mimicの濃度は50 nM、miRNA inhibitorの濃度は100 nM、siRNAの濃度は50 nMとした。その後の実験は、トランスフェクションの48時間後に実施した。関連する配列を以下に示す。 付録表1.
定量逆転写ポリメラーゼ連鎖反応 (RT-qPCR)
血清からの全RNA抽出にはTRIzol試薬を、細胞からの全RNA抽出にはmiRNeasy Mini Kitを使用した。miR-3619-5pの検出には、逆転写キットを用いて逆転写を行い、cDNA合成後、miRNA定量キットを用いて定量した。なお、内部コントロールにはU6を用いた。MTA3の検出には、mRNA逆転写キットを用いてcDNAへの逆転写を行い、mRNA定量キットを用いてRT-qPCRを実施した。内部コントロールにはGAPDHを用いた。miR-3619-5pおよびMTA3の発現変化は、2-ΔΔCt法を用いて解析した。プライマー配列はSupplementary Table 1に示している。
デュアルルシフェラーゼレポーター (DLR) アッセイ
miR-3619-5p結合部位を含むMTA3の野生型 (WT) および変異型 (MUT) 3'-UTRをpmirGLOベクターにクローニングした。トランスフェクション試薬を用いて、このベクターをmiR-3619-5pミミックおよびmiR-3619-5pインヒビターと共に293T細胞に共導入した。トランスフェクションのコントロール群として、空のレポータープラスミド群 (Control) およびmiRNAネガティブコントロール導入群 (miR-NC) を設けた。48時間後、Renillaルシフェラーゼ活性を内部標準として、デュアルルシフェラーゼレポーターシステムを用いて相対的なルシフェラーゼ活性を測定した。各群は3つの独立した生物学的反復検体で構成し、各生物学的反復検体につき3つのテクニカルレプリケートを用いた。
細胞増殖アッセイ
トランスフェクションした細胞を96ウェルプレートに播種する。それぞれ0 h、24 h、48 h、72 h培養した後、各ウェルに10 μLのCCK-8試薬を添加し、37 °Cで2 hインキュベートし、マイクロプレートリーダーを用いて450 nmでの吸光度を測定する。
アポトーシスアッセイ
細胞をPBSで3回洗浄し、10 μLのAnnexin V-FITCと5 μLのPIを含む200 μLの結合バッファーに再懸濁する。室温・暗所で15分間インキュベートする。結合バッファー300 μLを加え、直ちにフローサイトメーターを用いて細胞を解析し、アポトーシス率を算出する。
酵素結合免疫吸着測定法(ELISA)
トランスフェクションした細胞を96ウェルプレートに播種し、37 °Cで一晩飢餓状態にした。培地を25 mM glucoseを含む溶液に交換し、1時間培養した後、処理したINS-1細胞からの培養液を回収してインスリン分泌量を測定した。INS-1細胞を酸性メタノールで再懸濁し、超音波処理を行い、上清を回収して総インスリン含量を決定した。Rat Insulin ELISA Kitを用い、製造元の指示に従ってアッセイを実施した。本アッセイでは、キットに付属の標準物質を用いて検量線を作成し、サンプルの吸光度に基づいてインスリンの絶対濃度を算出する。なお、絶対濃度の単位はμIU/mLとする。最終的に、培養液中で測定されたインスリンレベルを細胞内総インスリン含量で標準化し、インスリン分泌能を評価した。統計グラフのデータは、対照群に対する比(fold change)として提示している。
ウェスタンブロッティング
各群の導入細胞を回収し、RIPA溶解バッファーを添加した。BCA法を用いて全タンパク質濃度を決定した。50 μgの全タンパク質を5×ローディングバッファーと混合し、10分間沸騰させた。10% SDS-ポリアクリルアミドゲル電気泳動後、タンパク質をポリフッ化ビニリデン(PVDF)膜に転写した。5% 脱脂乳で1時間ブロッキングし、一次抗体としてMTA3 (1:1000)およびGAPDH (1:1000)を添加して4 °Cで一晩インキュベートした。膜をTBSTで洗浄した後、HRP標識ヤギ抗ウサギIgG二次抗体 (1:1000)を添加し、室温で1時間インキュベートした。その後、ECL化学発光法を用いて可視化した。
統計解析
定量的データは平均値として表記する。 ± 標準偏差。統計解析を行う前に、データの正規性を確認するためにShapiro–Wilk検定を、分散の均一性を評価するためにLevene検定を用い、パラメトリック検定の適格性を判断した。これらの検定の結果、本研究におけるすべての定量的データは正規分布に従い、分散の均一性の仮定を満たしていたため、統計解析にはパラメトリック検定を採用した。2群間のデータ解析には独立標本t検定を用い、多群間の比較にはTukeyのポストホック検定を併用した一元配置分散分析(ANOVA)を用いた。変数間の線形関係の評価には散布図を用いた。正規性と線形性の仮定が満たされた場合には、ピアソン相関分析を適用した。ピアソン相関分析には全102名の参加者を対象とし、外れ値の除外は行わなかった。散布図で見られる点の密集は、サンプル観測値の重複によるものである。すべての実験において3つの反復サンプルを含め、各実験を3回繰り返した。p値は <p < 0.05 を統計的に有意であると見なした。
結果
被験者における人口統計学的特性および臨床代謝パラメータの比較
比較の結果、T2DM患者ではFBGおよびHbA1cレベルが著しく上昇していましたが(P < 0.001)、その他のパラメータに有意な差は見られませんでした(P > 0.05)(表1)。
miR-3619-5pの発現と臨床的意義
RT-qPCR分析により、T2DM患者の血清におけるmiR-3619-5pの発現が有意に低下していることが明らかになった(P < 0.001; 図 1A)。ROC曲線分析の結果、T2DM診断におけるmiR-3619-5pのAUCは0.871(95% CI: 0.820–0.922)であった(図 1B)。さらに、T2DM患者102名を対象としたピアソン相関分析の結果、miR-3619-5pの発現はFBG(図 1C)およびHbA1c(図 1D)と著しい負の相関があることが示された。
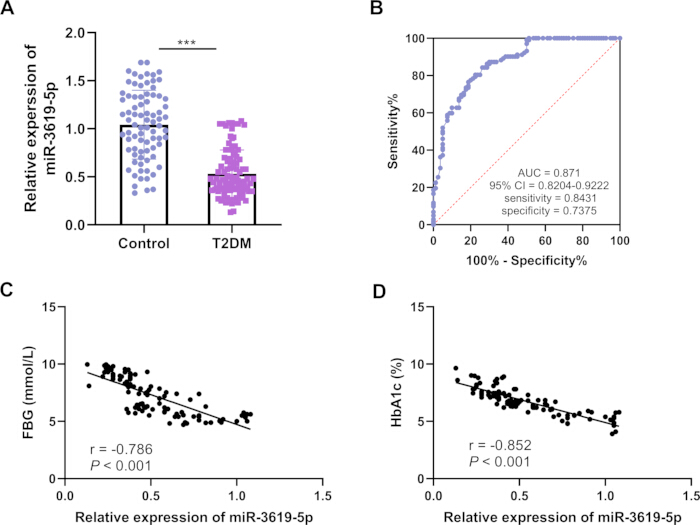
図1: miR-3619-5pの発現と臨床的意義。 (A) T2DM患者の血清におけるmiR-3619-5p発現のRT-qPCR分析。 (B) miR-3619-5pを用いたT2DM診断のROC曲線。 (C) miR-3619-5pの相対発現量と空腹時血糖値(FBG)とのピアソン相関分析。 (D) miR-3619-5pの相対発現量とHbA1cとのピアソン相関分析。エラーバーは標準偏差(SD)を示す;コントロール n = 80;T2DM n = 102. ***P < 0.001 こちらのリンクから、この図の拡大版をご覧いただけます。
miR-3619-5pが膵β細胞機能に及ぼす影響
T2DMの進行を模倣するため、HGで処理したINS-1膵β細胞を用いて細胞機能アッセイを実施した。その結果、HG処理後にmiR-3619-5pの発現が有意に低下し(P < 0.001)、一方でmiR-3619-5pミミックをトランスフェクションするとその発現が著しく上昇した(P < 0.01; Figure 2A)。細胞増殖およびアポトーシスに関しては、HG処理により細胞増殖が著しく抑制され、アポトーシスが促進されたが(P < 0.001)、miR-3619-5pミミックはHG処理後の増殖を促進し、アポトーシスを抑制した(P < 0.01; Figure 2B,C)。ELISAの結果から、HG処理後にインスリン分泌が有意に減少したが(P < 0.001)、miR-3619-5pミミックはHG処理後のインスリン分泌を増加させた(P < 0.01; Figure 2D)。
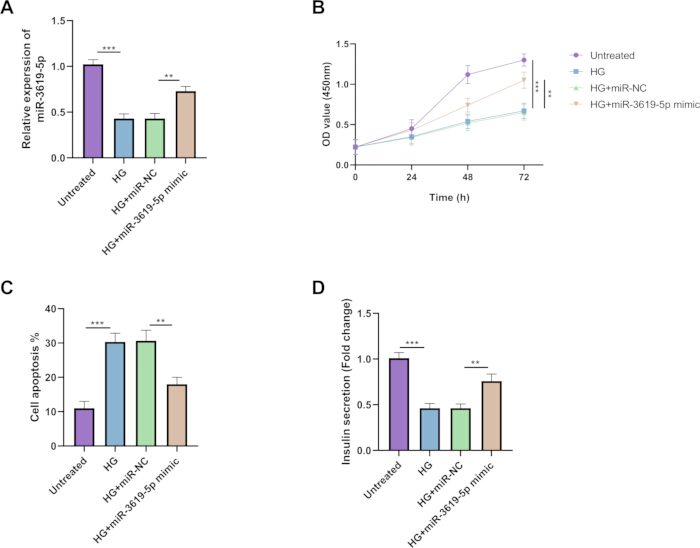
図 2: 膵β細胞機能に対するmiR-3619-5pの影響。 T2DMの進行を模倣するため、INS-1膵β細胞をHGで処理した。(A) RT-qPCRを用いて細胞内のmiR-3619-5pの発現を検出した。(B) CCK-8アッセイを用いて細胞増殖能を評価した。(C) フローサイトメトリーを用いて細胞アポトーシスを評価した。(D) ELISAを用いてインスリン分泌レベル(総細胞内インスリン量で標準化)を測定した。エラーバーは標準偏差(SD)を示し、n = 3とする。***P < 0.001; **P < 0.01 こちらのリンクをクリックして、この図の拡大版を表示してください。
miR-3619-5pターゲットの検証
バイオインフォマティクスによる予測の結果、4つのデータベース全体で合計174個のターゲット遺伝子が明らかになり(図 3A)、MTA3結合部位は高度な保存性を示しました(Context++スコア:-0.31、Context++スコアパーセンタイル:98)。miR-3619-5pとMTA3の3'-UTR領域との間の相補的結合部位が同定されました(図 3B)。DLRの結果、miR-3619-5p mimic群においてMTA3 WTの相対的なルシフェラーゼ活性が有意に上昇しており、miR-3619-5pがMTA3に結合できることが示されました(図 3C)。
T2DM患者の血清中では、MTA3の発現が著しく低下していた(図3D);また、高グルコース(HG)処理したINS-1細胞においてその発現は有意に低下したが、miR-3619-5pミミックはMTA3の発現を上昇させた(図3E)。ウェスタンブロットの結果、miR-3619-5p mimicはMTA3のタンパク質レベルを上昇させ、一方でmiR-3619-5p inhibitorはその発現を有意に低下させた(補足図1)。ピアソン相関分析の結果、T2DM患者102名の血清において、miR-3619-5pとMTA3レベルの間に有意な正の相関があることが明らかになった(図3F)。これらの結果は、MTA3に対するmiR-3619-5pの正の調節的役割をさらに検証するものである。
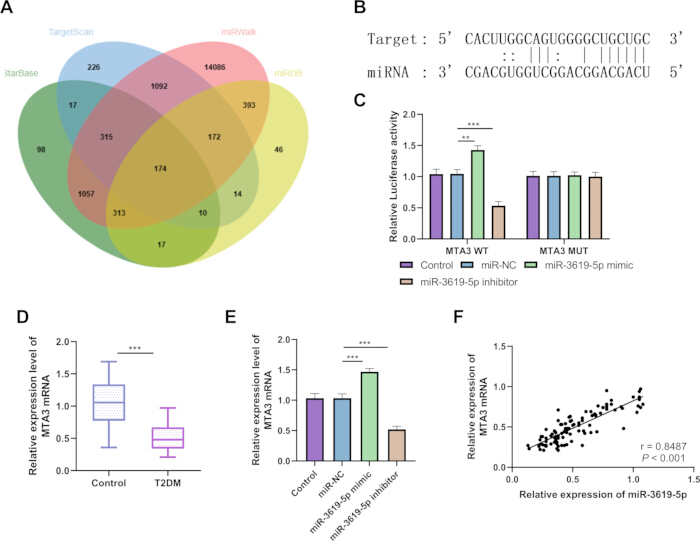
図 3: miR-3619-5p ターゲットの検証. (A) TargetScan、miRWalk、StarBase、miRDB の 4 つのデータベースで同定された miR-3619-5p の共通ターゲット遺伝子。 (B) MTA3 の 3’-UTR への miR-3619-5p 結合部位。 (C) DLR アッセイ (n = 3)。 (D) T2DM 患者の血清における MTA3 発現の RT-qPCR 解析 (Control, n = 80; T2DM, n = 102)。 (E) 細胞における MTA3 発現の RT-qPCR 解析 (n = 3)。 (F) T2DM 患者の血清における miR-3619-5p と MTA3 発現のピアソン相関解析 (Control, n = 80; T2DM, n = 102)。エラーバーは標準偏差 (SD) を示す。 ***P < 0.001; **P < 0.01 ここをクリックして、この図の拡大版を表示してください。
MTA3が膵β細胞機能に及ぼす影響
結果から、si-MTA3はHG処理後のMTA3発現をさらに減少させた一方で、miR-3619-5p mimicとの共導入はこの効果を逆転させたことが示された(図 4A)。si-MTA3は、HG処理した細胞の増殖をさらに抑制し、アポトーシスを促進させ、インスリン分泌能の低下を悪化させた。一方、miR-3619-5p mimicとの共導入は、si-MTA3によって媒介された上述の細胞表現型を逆転させ、細胞増殖を回復させ、アポトーシスを減少させ、インスリン分泌の抑制を緩和した(図 4B–D)。
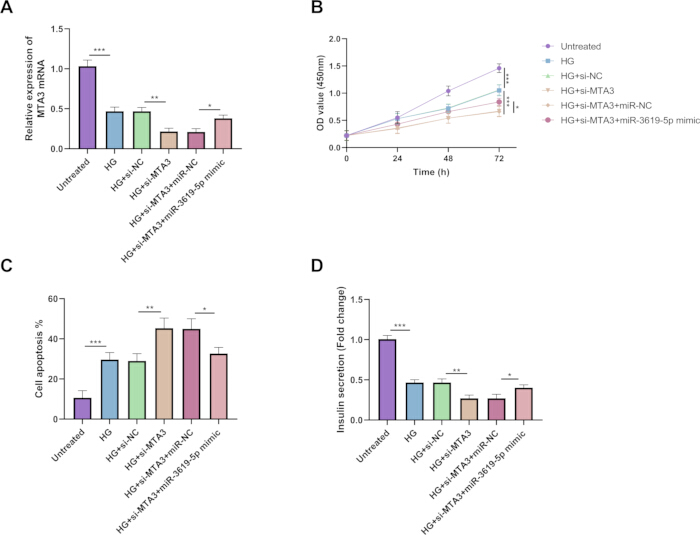
図4: 膵β細胞機能に対するMTA3の影響。 膵β細胞機能に対するMTA3の影響をさらに調査するため、si-MTA3およびmiR-3619-5p mimicを細胞にトランスフェクションした。(A) 細胞におけるMTA3発現のRT-qPCR解析。(B) CCK-8アッセイを用いて細胞増殖能を評価した。(C) フローサイトメトリーによりアポトーシス率を測定した。(D) ELISAを用いてインスリン分泌量を測定した(細胞内総インスリン量で標準化した)。エラーバーは標準偏差(SD)を示し、n = 3である。***P < 0.001; **P < 0.01; *P < 0.05 こちらのリンクをクリックして、この図の拡大版を表示してください。
要約すると、臨床サンプルの結果から、T2DM患者において血清miR-3619-5pの発現が有意に低下しており、miR-3619-5pがFBGおよびHbA1cと有意に相関していることが示されました。また、細胞ベースの実験により、miR-3619-5pがMTA3を特異的に調節し、それによってINS-1ラット膵β細胞の生存能およびインスリン分泌機能に影響を与えることが確認されました。以上の結果を総合すると、miR-3619-5pは膵β細胞機能の調節に関与していることが示唆され、これにより、2型糖尿病におけるmiR-3619-5pの役割とその潜在的な調節メカニズムを調査するという本研究の目的を予備的に達成しました。
データの可用性:
本研究の結論を裏付けるすべての未処理および処理済みデータセットは、Supplementary File 1としてアップロードされています。
| 指標 | 対照群 (n = 80) | T2DM群(n = 102) | P値 |
| 年齢(歳) | 51.41 ± 9.70 | 52.29 ± 7.03 | 0.478 |
| 性別(男性/女性) | 43/37 | 54/48 | 0.914 |
| BMI (kg/m²2) | 24.04 ± 3.10 | 24.81 ± 3.04 | 0.093 |
| 総コレステロール (mmol/L) | 4.60 ± 0.64 | 4.78 ± 0.65 | 0.068 |
| TG (mmol/L) | 1.61 ± 0.18 | 1.67 ± 0.26 | 0.093 |
| HDL-C (mmol/L) | 1.43 ± 0.13 | 1.38 ± 0.18 | 0.085 |
| LDL-C (mmol/L) | 2.55 ± 0.29 | 2.63 ± 0.31 | 0.067 |
| 空腹時血糖値 (mmol/L) | 4.96 ± 0.97 | 7.16 ± 1.64 | <0.001 |
| HbA1c (%) | 4.42 ± 0.49 | 6.77 ± 1.16 | <0.001 |
表1:被験者間の臨床パラメータの比較。T2DM:2型糖尿病、BMI:体格指数、TC:総コレステロール、TG:トリグリセリド、HDL:高密度リポタンパク質、LDL:低密度リポタンパク質、FBG:空腹時血糖、HbA1c:糖化ヘモグロビン。
補足表1:本研究で使用したプライマーおよび試薬の配列。こちらのリンクからファイルをダウンロードしてください。
補足図1:MTA3のタンパク質発現Western blot解析によるMTA3タンパク質レベルの評価。 (A) MTA3のタンパク質レベル。 (B) MTA3のWestern blot生データ画像。 (C) GAPDHのWestern blot生データ画像。エラーバーは標準偏差(SD)を示し、n = 3である。 ***P < 0.001; **P < 0.01こちらのリンクからファイルをダウンロードしてください。
補足ファイル 1:生データ。こちらのリンクからファイルをダウンロードしてください。
ディスカッション
2型糖尿病(T2DM)の主要な病理学的特徴は、インスリン抵抗性と膵β細胞機能不全であり、膵β細胞の増殖能力の低下および細胞数の減少が、インスリン分泌異常の主要な要因となり、疾患進行の主因となります26。膵β細胞の増殖を調節し、その機能を改善できる重要な分子を特定することは、T2DMの精密な診断および治療において極めて重要です。
遺伝子発現の重要な調節分子であるmiRNAは、膵β細胞の増殖、アポトーシス、およびインスリン分泌において決定的な機能を果たします。多くのmiRNAが2型糖尿病(T2DM)の病態生理に密接に関連しています27,28,29。Songらは、miR-3619-5pのノックダウンが大腸癌における細胞遊走を抑制することを見出しました30。また、腹膜透析を受けている糖尿病患者においてmiR-3619-5pがダウンレギュレートされていることが他の研究で報告されています31。しかし、T2DMにおけるmiR-3619-5pの役割とメカニズムについては、まだ報告されていません。本研究では、T2DM患者の血清miR-3619-5p発現が健康対照群よりも有意に低く、これはCostaらの知見と一致しており31、miR-3619-5pの発現低下がT2DMの発症および進展に密接に関連している可能性が示されました。相関分析の結果、miR-3619-5pの発現はFBGおよびHbA1cと負の相関を示し、miR-3619-5pの発現が低いほど、患者の血糖コントロールが不良であることが示唆されました。これは、miR-3619-5pがT2DMの代謝調節不全プロセスに関与している可能性があり、その発現レベルが疾患の重症度を反映している可能性があることをさらに裏付けるものであり、発現変動RNAが脂質代謝、インスリン分泌、および血糖調節に関与しているとしたChenらの報告と一致しています32。ROC曲線分析の結果から、miR-3619-5pがT2DM診断のバイオマーカーとなり得ることが示唆され、従来の血糖指標における早期診断の感度不足を補完できる可能性があります。
膵β細胞の増殖能の異常な低下は、2型糖尿病(T2DM)における膵島不全の中心的な要素であり、膵β細胞の増殖を促進して細胞数を増加させることは、インスリン分泌機能を改善するための鍵となります33,34。本研究では、細胞実験を通じて、miR-3619-5pがINS-1細胞の増殖を著しく促進し、アポトーシスを抑制することで、インスリン分泌を増加させることを明らかにしました。このことは、miR-3619-5pが膵β細胞の増殖を促進し、アポトーシスを抑制することでインスリン分泌機能を改善し、それによってT2DMの病態形成に関与している可能性を示唆しています。これは、標的遺伝子の発現を調節することで膵β細胞の増殖と分化を促進するmiR-26a-5pやmiR-765など、先行研究で報告されている膵β細胞増殖におけるmiRNAの調節機構と一致しています35,36。
本研究では、バイオインフォマティクスによる予測とDLRアッセイを用いて、MTA3がmiR-3619-5pの標的遺伝子であることを確認した。転移関連タンパク質であるMTA3は、細胞増殖、アポトーシス、代謝などの主要な生理学的プロセスに広く関与している20。また、MTA3が高グルコース誘導性肝線維化の調節に関与することが報告されている24。T2DMによるMTA3の抑制は、精巣における酸化ストレスの増加に関連している37。本研究において、HG処理した細胞ではMTA3がダウンレギュレートされていた。細胞増殖アッセイの結果と合わせて考えると、si-MTA3は膵β細胞の増殖を抑制することでT2DMの病態形成に寄与する一方で、miR-3619-5pはMTA3の発現を調節することでこの抑制を緩和し、それによって膵β細胞機能を改善させる可能性があると推測される。このメカニズムの解明は、膵β細胞増殖におけるmiRNA調節の分子ネットワークをさらに精緻化し、T2DMの病態形成に関する研究に新たな視点を提供するものである。
本研究の結果は、臨床およびトランスレーショナルな価値を持つ可能性があります。血清miR-3619-5pは末梢静脈血で検出可能であり、今後の大規模コホート研究で検証されれば、臨床医が膵β細胞機能不全のリスクがある個人を特定し、より早期のリスク層別化を可能にする補助的なバイオマーカーとなることが期待されます。miR-3619-5pは、MTA3パスウェイを標的として制御することで、膵β細胞の生存とインスリン分泌を維持し、高血糖による膵β細胞の損傷を軽減できます。このことは、miR-3619-5p/MTA3軸が糖尿病における膵島保護の新たな標的となる可能性を示唆しており、膵島機能を保護するための核酸医薬や低分子化合物の開発に向けた基礎的な実験的知見を提供します。
本研究にはいくつかの限界がある。第一に、本研究は単一施設で実施されたため、選択バイアスが存在する可能性があり、参加者間の個体間変動が比較的限定的である。今後の研究では、サンプルサイズを拡大し、多施設共同研究を行うことで、miR‑3619‑5pの発現プロファイルおよび臨床的価値を検証する必要がある。第二に、本研究では膵β細胞の増殖におけるmiR-3619-5pの調節機能を細胞レベルでしか検証しておらず、動物実験によるさらなる検証を行っていない。今後の研究では、T2DM動物モデルを構築し、そのin vivoでの作用機序をさらに探究すべきである。第三に、miRNAは一般的に多機能的な特性を示し、miR-3619-5pもまた、多様な関連遺伝子を調節している可能性がある。同時に、miRNA mimicまたはinhibitorを用いたin vitro transfectionシステムは、潜在的なオフターゲット効果の影響を受ける。高用量での人為的な介入は、複数のシグナル伝達経路を非特異的に活性化または抑制する可能性があり、生理的条件下で観察される作用様式を完全に再現することが困難である。今後の研究では、特異的な標的調節とオフターゲット効果に起因する非特異的な生物学的影響を区別するために、より包括的な全トランスクリプトーム標的スクリーニングが必要である。第四に、本研究のin vitro高グルコースモデルでは25 mMのグルコース介入を用いたが、マンニトール浸透圧コントロール群を設定しなかった。その結果、グルコース特異的な代謝効果と浸透圧ストレスによる影響を完全に区別することができなかった。今後の実験では、高グルコースレベルがINS-1細胞に影響を及ぼすメカニズムをさらに解明するために、浸透圧コントロールを導入すべきである。最後に、臨床検体とin vitro細胞モデルとの間に種の不一致がある。INS-1細胞は膵β細胞の機能的成熟を研究するための古典的なin vitroモデルであるが、ラット細胞で観察された調節機序をヒトの実際の生物学的プロセスと直接的に同一視することはできない。したがって、本研究のin vitro細胞レベルで同定されたmiR-3619-5p/MTA3の調節関係を臨床応用に解釈する際には、注意が必要である。今後の研究では、ヒト膵β細胞モデルまたはヒト一次膵島を用い、このパスウェイの種間保存性をさらに検証する必要がある。
T2DM患者の血清および膵β細胞において、miR-3619-5pは発現低下しています。miR-3619-5pはMTA3を標的とすることで、高血糖誘発性の膵β細胞機能不全を軽減し、膵β細胞の増殖を促進し、アポトーシスを抑制し、インスリン分泌を改善させることができます。本研究は、miR-3619-5pが糖尿病リスクの層別化の補助に有用である可能性があり、miR-3619-5p/MTA3軸が膵島保護の潜在的な標的であることを示唆しています。今後は、より大規模なコホート研究を行い、その臨床的価値を検証し、糖尿病動物モデルを用いてin vivoでの機能検証を行う予定です。同時に、膵島機能の変化を媒介するMTA3下流のシグナル伝達経路を詳細に分析し、膵島保護療法の標的としてのトランスレーショナルな可能性をさらに評価します。
開示事項
著者らに開示すべき関連する金銭的または非金銭的な利益相反はありません。
謝辞
本研究は、糖尿病および尿路感染症患者のための予防戦略(No. MSZ2025119)の支援を受けて実施されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Annexin V-FITC/PI アポトーシス検出キット | Roche(スイス) | 11684795910 | Annexin V-FITC(10 µL)およびPI(5 µL)染色;暗所で15分間インキュベーション |
| 細胞計数キット-8 (CCK-8) | 同仁化学研究所、日本 | CK04 | 細胞生存率の比色分析法 10 µL 1ウェルあたり、2時間のインキュベーション、OD450測定 |
| D-グルコース | Sigma-Aldrich | G7021 | 高グルコース(HG)誘発細胞傷害モデルを構築するため、培養基に25 mM添加した |
| デュアルルシフェラーゼレポーターアッセイシステム | Promega, USA | E1910 | ホタルルシフェラーゼおよびRenillaルシフェラーゼ活性の連続測定 |
| ウシ胎児血清 (FBS) | Gibco, USA | 10437028 | 最終濃度10%になるように添加する |
| フローサイトメーター | Beckman Coulter, USA | CytoFLEX | アポトーシス率算出のためのフローサイトメトリー解析 |
| GAPDH抗体 | Abcam、英国 | ab181602 | ウェスタンブロッティング |
| GAPDHプライマー | Sangon Biotech、中国 | カスタム合成 | mRNA標準化のためのハウスキーピング遺伝子 |
| ヤギ抗ウサギIgG H&L (HRP) | Abcam、英国 | ab6721 | ウェスタンブロット |
| HEK293T細胞株 | ATCC, USA | CRL-3216 | ヒト胚性腎細胞;ルシフェラーゼアッセイにおける高いトランスフェクション効率 |
| INS-1細胞株 | Sunncell、中国 | SNL-332 | ラットインスリノーマ細胞株;10% FBSおよび1% ペニシリン-ストレプトマイシン含有RPMI 1640で培養 |
| LightCycler 480 II リアルタイムPCRシステム | Roche、スイス | 5015278001 | リアルタイムPCR増幅;96ウェルまたは384ウェルプレート形式 |
| Lipofectamine 3000 | Invitrogen, USA | L3000001 | 脂質ベースのトランスフェクション試薬 |
| マイクロプレートリーダー | BioTek, Agilent | シナジー H1 | 吸光度測定;標準曲線から補間された試料濃度 |
| miR-3619-5p阻害剤 | RiboBio、中国 | miR20017999-1-5 | miR-3619-5pの機能を抑制するための化学合成一本鎖RNA |
| miR-3619-5p ミミック | RiboBio、中国 | miR10017999-1-5 | miR-3619-5p過剰発現用化学合成二本鎖RNA |
| miR-3619-5p プライマー | Sangon Biotech、中国 | カスタム合成 | miR-3619-5p検出用特異的プライマー |
| miR-NC(miRNAネガティブコントロール) | RiboBio、中国 | miR2N0000001-1-5 | miRNAミミック/インヒビター実験用非標的ネガティブコントロール |
| miRNeasy Mini Kit | Qiagen, ドイツ | 217004 | 細胞試料からの全RNA抽出 |
| miScript II RT Kit | Qiagen, ドイツ | 218160 | miRNAの逆転写;ポリ(A)テイル付加およびオリゴdTプライミングによる手法 |
| miScript SYBR Green PCR Kit | Qiagen、ドイツ | 218073 | miRNA検出のためのSYBR Greenを用いたqPCR |
| MTA3抗体 | Invitrogen, USA | PA5-100022 | ウェスタンブロット |
| MTA3プライマー | Sangon Biotech、中国 | カスタム合成 | MTA3 mRNA検出用の特異的プライマー |
| NanoDrop 2000 分光光度計 | Thermo Fisher Scientific, USA | ND-2000 | RNA濃度および純度の評価 |
| ペニシリン-ストレプトマイシン | Gibco, USA | 15140122 | 細菌汚染を防ぐための1%抗生物質溶液 |
| pmirGLO デュアルルシフェラーゼmiRNAターゲット発現ベクター | Promega, USA | E1330 | miRNAターゲット検証用デュアルルシフェラーゼレポーターベクター;ホタルルシフェラーゼおよびRenillaルシフェラーゼ遺伝子を含む |
| gDNA Eraser配合PrimeScript RT Reagent Kit | TaKaRa、日本 | RR047A | ゲノムDNA除去ステップを含む逆転写 |
| ラットインスリンELISAキット | Invitrogen, USA | ERINS | INS-1細胞から培地中に分泌されたインスリンの定量検出 |
| RPMI 1640培地 | Gibco, USA | 11875093 | 基礎培地;10% FBSおよび1% ペニシリン-ストレプトマイシンを添加 |
| si-MTA3 | RiboBio, 中国 | siB170209084646-1-5 | 遺伝子ノックダウンのためのMTA3標的小干渉RNA |
| si-NC(siRNA用ブランクコントロール) | RiboBio、中国 | siB06525141922-1-5 | 非標的siRNAコントロール |
| SYBR Green Master PCR Mix | TaKaRa、日本 | RR820A | SYBR Greenを用いたqPCR増幅 |
| TRIzol試薬 | Invitrogen, USA | 15596026 | 血清サンプルからの全RNA抽出 |
| U6プライマー | Sangon Biotech、中国 | カスタム合成 | miRNA標準化のための内因性リファレンス |
参考文献
- Wang L, et al. Associated factors and principal pathophysiological mechanisms of type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2025;16:1499565.
- Wan Z, et al. The role of systemic inflammation in the association between serum 25-hydroxyvitamin D and type 2 diabetes mellitus. Clin Nutr. 2021;40(6):3661–7.
- Okamoto A, et al. Efficacy and safety of semaglutide in glycemic control, body weight management, lipid profiles and other biomarkers among obese type 2 diabetes patients initiated or switched to semaglutide from other GLP-1 receptor agonists. J Diabetes Metab Disord. 2021;20(2):2121–8.
- Aguayo-Mazzucato C, et al. β Cell Aging Markers Have Heterogeneous Distribution and Are Induced by Insulin Resistance. Cell Metab. 2017;25(4):898–910.e5.
- Goshrani A, Lin R, O'Neal D, Ekinci EI. Time in range-A new gold standard in type 2 diabetes research Diabetes Obes Metab. 2025;27(5):2342–62.
- Niu F, et al. β-cell neogenesis: A rising star to rescue diabetes mellitus. J Adv Res. 2024;62:71–89.
- Zhang Y, et al. THADA inhibition in mice protects against type 2 diabetes mellitus by improving pancreatic β-cell function and preserving β-cell mass. Nat Commun. 2023;14(1):1020.
- Ho PTB, Clark IM, Le LTT. MicroRNA-Based Diagnosis and Therapy. Int J Mol Sci. 2022;23(13).
- Poy MN, et al. A pancreatic islet-specific microRNA regulates insulin secretion. Nature. 2004;432(7014):226–30.
- Karagiannopoulos A, Cowan E, Eliasson L. miRNAs in the Beta Cell-Friends or Foes Endocrinology. 2023;164(5).
- Hu H, et al. Plasma miR-193b-3p Is Elevated in Type 2 Diabetes and Could Impair Glucose Metabolism. Front Endocrinol (Lausanne). 2022;13:814347.
- Benko J, et al. MiR-126 and miR-146a as markers of type 2 diabetes mellitus: a pilot study. Bratisl Lek Listy. 2023;124(7):527–33.
- Liu C, Gao Y, Wu J, Zou J. Exosomal miR-23a and miR-192, Potential Diagnostic Biomarkers for Type 2 Diabetes. Clin Lab. 2021;67(2).
- Liu Y, Li J, Wang S, Song H, Yu T. STAT4-mediated down-regulation of miR-3619-5p facilitates stomach adenocarcinoma by modulating TBC1D10B. Cancer Biol Ther. 2020;21(7):656–64.
- Ma J, et al. M2 macrophage facilitated angiogenesis in cutaneous squamous cell carcinoma via circ_TNFRSF21/miR-3619-5p/ROCK axis. Kaohsiung J Med Sci. 2022;38(8):761–71.
- Zhang M, Luo H, Hui L. MiR-3619-5p hampers proliferation and cisplatin resistance in cutaneous squamous-cell carcinoma via KPNA4. Biochem Biophys Res Commun. 2019;513(2):419–25.
- Ge L, Tan W, Li G, Gong N, Zhou L. Circ_0026134 promotes NSCLC progression by the miR-3619-5p/CHAF1B axis. Thorac Cancer. 2022;13(4):582–92.
- Sun Z, Li X, Shi Y, Yao Y. LncRNA PVT1 facilitates the growth and metastasis of colorectal cancer by sponging with miR-3619-5p to regulate TRIM29 expression. Cancer Rep (Hoboken). 2024;7(6):e2085.
- Wu C, et al. Long Noncoding RNA Plasmacytoma Variant Translocation 1 Regulates Cisplatin Resistance via miR-3619-5p/TBL1XR1 Axis in Gastric Cancer. Cancer Biother Radiopharm. 2020;35(10):741–52.
- Tang Y, et al. Mechanisms of MTA3 in cancer and related diseases and its clinical applications. Front Oncol. 2025;15:1731799.
- Lau P, et al. Sphingosine kinase 1 promotes tumor immune evasion by regulating the MTA3-PD-L1 axis. Cell Mol Immunol. 2022;19(10):1153–67.
- Du L, et al. MTA3 Represses Cancer Stemness by Targeting the SOX2OT/SOX2 Axis. iScience. 2019;22:353–68.
- Liu Y, et al. Discovery of Jaspamycin from marine-derived natural product based on MTA3 to inhibit hepatocellular carcinoma progression. Sci Rep. 2024;14(1):25294.
- Li Q, et al. High glucose promotes hepatic fibrosis via miR‑32/MTA3‑mediated epithelial‑to‑mesenchymal transition. Mol Med Rep. 2019;19(4):3190–200.
- Pu M, Kong L, Li J, Su L, Chen Y. LncRNA NBR2 affects pancreatic β-cell function in type 2 diabetes mellitus by targeting miR-646. Diabetol Metab Syndr. 2025;17(1):454.
- Galicia-Garcia U, et al. Pathophysiology of Type 2 Diabetes Mellitus. Int J Mol Sci. 2020;21(17).
- Wang J, et al. Extracellular vesicles mediate the communication of adipose tissue with brain and promote cognitive impairment associated with insulin resistance. Cell Metab. 2022;34(9):1264–79.e8.
- Rosado JA, Diez-Bello R, Salido GM, Jardin I. Fine-tuning of microRNAs in Type 2 Diabetes Mellitus. Curr Med Chem. 2019;26(22):4102–18.
- Taheri M, Eghtedarian R, Ghafouri-Fard S, Omrani MD. Non-coding RNAs and type 2 diabetes mellitus. Arch Physiol Biochem. 2023;129(2):526–35.
- Song B, et al. LINC00882 Plays a Tumor-promoter Role in Colorectal Cancer by Targeting miR-3619-5p to Up-regulate CTNNB1. Arch Med Res. 2022;53(1):29–36.
- Costa NA, et al. Peritoneal dialysis influences microRNA expression and pro-inflammatory response: results from a cross-sectional study. J Bras Nefrol. 2026;48(1):e20240218.
- Chen J, et al. Identification of the LncRNA PRNCR1/miR-642a-5p/SSTR3 CeRNA network and its diagnostic value in type 2 diabetes mellitus. Diabetol Metab Syndr. 2025;18(1):39.
- Elizabeth MM, et al. Pancreatic β-Cells and Type 2 Diabetes Development. Curr Diabetes Rev. 2017;13(2):108–21.
- Kerper N, Ashe S, Hebrok M. Pancreatic β-Cell Development and Regeneration. Cold Spring Harb Perspect Biol. 2022;14(5).
- Yang F, Zhao S, Zhang X, Ding S, Xu Y. RNF6 Targeted by miR-26a-5p Protects Pancreatic β-Cell Function Against Type 2 Diabetes. Diabetes Metab Syndr Obes. 2022;15:93–102.
- Zheng L, et al. miR-765 targeting PDX1 impairs pancreatic β-cell function to induce type 2 diabetes. Arch Physiol Biochem. 2023;129(6):1279–88.
- Liu F, et al. T2DM-elicited oxidative stress represses MTA3 expression in mouse Leydig cells. Reproduction. 2022;163(5):267–80.