本研究では、対になったヒト組織、2つの肺扁平上皮癌細胞株、RNAおよびタンパク質の安定性アッセイ、遺伝的レスキュー実験、およびFOXD1ノックダウン異種移植モデルを組み合わせ、METTL3に関連したFOXD1の制御について検討し、転写後のがん発生機序を調査するための再現可能な枠組みを提供します。
研究記事
METTL3に関連するFOXD1調節による肺扁平上皮癌の進行促進:マルチモデル実験的アプローチ
* These authors contributed equally
この記事について
サマリー
要約
肺扁平上皮癌(LUSC)の治療法は限られているため、腫瘍細胞の増殖を促進する分子経路の解明が急務となっている。遺伝子発現プロファイリング解析ツール(GEPIA)、定量逆転写ポリメラーゼ連鎖反応(qRT-PCR)、ウェスタンブロッティング、および免疫組織化学染色を用いて、ペア組織および細胞株におけるForkhead box D1(FOXD1)の発現を評価した。LUSC細胞においてFOXD1またはメチルトランスフェラーゼ様3(METTL3)を枯渇させ、細胞生存率、アポトーシス、遊走能、全般的なN6-メチルアデノシン(m6A)、転写物の安定性、およびタンパク質の安定性を評価した。FOXD1ノックダウン異種移植モデルを用いてFOXD1のin vivoでの役割を検証したが、動物においてMETTL3の操作は行わなかった。
LUSC組織および細胞において、FOXD1の発現は対応する対照群よりも高くなっていました。FOXD1のノックダウンにより、生存率と遊走能が低下し、アポトーシスが増加し、異種移植片の増殖が抑制されました。ペアのLUSC組織において、METTL3の発現はFOXD1と相関していました。培養細胞において、METTL3のノックダウンは全般的なm6AおよびFOXD1の量を低下させましたが、FOXD1の再発現によって関連する表現型が部分的に回復しました。アクチノマイシンD、シクロヘキシミド、およびMG132を用いたアッセイの結果は、METTL3に関連したFOXD1のRNAおよびタンパク質の安定性の変化と一致していました。
これらのデータは、LUSC細胞におけるMETTL3とFOXD1の機能的な関連性を支持しています。In vivoにおいて、FOXD1のノックダウンはゼノグラフトの成長を抑制し、Ki-67染色を減少させたことから、FOXD1がゼノグラフト成長の促進因子であることが確立されました。METTL3とFOXD1の直接的な結合、部位特異的なm6A修飾、リーダー依存性、およびMETTL3–FOXD1経路全体のin vivoでの検証については、今後の課題として残っています。
概要
肺がんは世界的にがんによる死亡の主要な原因であり続けています1,2。非小細胞肺がん(NSCLC)の主要な組織学的亜型である肺扁平上皮癌(LUSC)は、根治的な局所治療が困難になった後に発見されることが多くあります3,4。全身的治療は向上していますが、依然として多くの患者において予後が不良です5。したがって、LUSCの増殖を維持する分子プログラムを定義することで、検証可能なバイオマーカーや治療仮説が明らかになる可能性があります。
Forkhead box D1 (FOXD1)は、大腸癌、頭頸部癌、胃癌、口腔扁平上皮癌、および乳癌に関与する転写因子である6,7,8,9,10。非小細胞肺癌(NSCLC)において、FOXD1の発現は予後不良ならびに実験的な細胞増殖および転移と関連している11,12。また、MicroRNA-30a-5pはFOXD1を標的とすることで、肺扁平上皮癌(LUSC)細胞の増殖と遊走を抑制する13。これらの知見は、FOXD1がLUSCの妥当な調節因子であることを示唆しているが、この疾患においてその発現がどのように維持されているかは解明されていない。
N6-メチルアデノシン (m6A) は、ライター、イレイサー、リーダーと呼ばれるタンパク質によって導入、除去、および解読される可逆的なRNA修飾である。この調節システムはRNAのプロセシング、翻訳、および分解に影響を及ぼす可能性があり、その破綻は悪性表現型や治療反応との関連が示されている14,15,16,17。Methyltransferase-like 3 (METTL3) はm6Aライター複合体の触媒成分であるが、METTL3とFOXD1の相関関係だけでは、直接的なメチル化やリーダーを介した調節を証明することはできない。
我々は、METTL3がm6A関連の転写後調節を通じてFOXD1の発現を維持することにより、LUSCの進行を促進するという仮説を立てた。ペアの臨床検体、2つの腫瘍細胞株、機能喪失およびレスキューアッセイ、転写物およびタンパク質の安定性解析、ならびにFOXD1ノックダウン異種移植モデルを統合することで、本研究は、単なる関連性と直接的な部位特異的メチル化を区別しつつ、METTL3–FOXD1関係を調査するための機能的な枠組みを提供する。
プロトコル
ヒト組織の採取はヘルシンキ宣言に準拠して行われ、吉林大学第一病院の施設審査委員会(承認番号:2022-339、2022年7月22日)による承認を得るとともに、すべての参加者から書面によるインフォームドコンセントを得た。動物実験プロトコルは吉林大学第一病院の動物管理委員会(承認番号:2022-0015、2022年1月25日)によって承認され、動物の飼育および使用に関する施設ガイドラインに従って実施された。
被験者
アーカイブ標本は、2019年1月〜2020年12月の間に手術を受けた患者から採取された、12組の原発性LUSCおよび隣接する非腫瘍組織で構成された。適格患者は、病理学的に原発性LUSCと診断され、転移の記録がなく、過去6か月間にLUSCに対する治療を受けていない者とした。症例は乱数表を用いて選定し、30〜65歳の男性7名および女性5名が含まれた。すべての参加者から書面によるインフォームドコンセントを得た。
細胞株
ヒト気管支上皮BEAS-2B細胞(RRID: CVCL_0168)、LUSC SK-MES-1(RRID: CVCL_0630)、およびNCI-H226細胞(RRID: CVCL_1544)を中国科学院細胞バンクより入手した。細胞は、10%胎牛血清および1%ペニシリン-ストレプトマイシンを含むDulbecco's modified Eagle mediumを用い、37 °C、5% CO2条件下で維持した。市販の識別子は、付随する材料表にまとめられている。
小分子干渉RNAスクリーニングおよびレスキュー
FOXD1またはMETTL3を標的とする3種類の個別の小干渉RNAを、SK-MES-1細胞およびNCI-H226細胞でスクリーニングした。ノックダウンの評価は、トランスフェクションの48時間後に定量逆転写PCR(qRT-PCR)およびウェスタンブロッティングにより行った。FOXD1 siRNA-1は、両方の細胞株において最大の減少を示したため、以降のFOXD1機能解析に使用した。METTL3の後続実験には、スクリーニングで選択したsi-METTL3試薬を使用した。アーカイブ記録には、確信を持って割り当て可能なSmartPoolの特定、または配列やベンダー識別子の保存はなされていない。レスキュー実験では、細胞に選択したsi-METTL3試薬、FOXD1過剰発現コンストラクト、またはその両方を導入し、トランスフェクションの48時間後に発現および細胞表現型を評価した。
RNA抽出およびqRT-PCR
フェノール・グアニジニウム試薬を用いて組織または細胞から全RNAを抽出し、市販の逆転写キットを用いて逆転写を行った。qRT-PCRは、リアルタイムPCRシステム(RRID: SCR_018051)を用い、TB Greenマスターミックスにて実施した。プライマー配列は表1に記載している。相対的な発現量は、glyceraldehyde 3-phosphate dehydrogenase (GAPDH)で標準化した。反応液の調製およびサーマルサイクリングは、使用したマスターミックスのメーカーによるプロトコルに従った。
ウェスタンブロッティング
組織または細胞を、プロテアーゼ阻害剤を含む放射免疫沈降アッセイ(RIPA)バッファーで溶解した。等量のタンパク質をドデシル硫酸ナトリウム–ポリアクリルアミドゲル電気泳動(SDS-PAGE)で分離し、ポリフッ化ビニリデン(PVDF)膜に転写した。膜を、FOXD1(1:1,000)、METTL3(1:1,000; RRID: AB_2142033)、またはGAPDH(1:2,000; RRID: AB_10622025)に対する抗体を用いて4 °Cで一晩インキュベートし、続いて西洋ワサビペルオキシダーゼ標識抗ウサギ免疫グロブリンGで室温にて1時間インキュベートした。信号は、GAPDHをローディングコントロールとして、化学発光法により検出した。材料表には、市販の一次抗体が記載されており、二次試薬として抗ウサギ免疫グロブリンG検出抗体が記録されている。
細胞生存率とアポトーシス
生存率の測定のため、コントロール群および形質導入したLUSC細胞を、1ウェルあたり2,000個の密度で96ウェルプレートに播種した。12時間おきに、1ウェルあたり10 µLのCell Counting Kit-8試薬を添加し、プレートを37 °Cで1時間インキュベートした後、450 nmで吸光度を記録した。アポトーシス解析では、1ウェルあたり1 × 10⁵個の細胞を6ウェルプレートに播種し、形質導入の48時間後に解析した。回収した細胞をAnnexin V–fluorescein isothiocyanate (FITC)/ propidium iodide (PI) キットの指示に従って処理し、100 µLの結合バッファーに再懸濁させ、各試薬5 µLを用いて室温・暗所で30分間染色し、4時間以内にフローサイトメトリーで解析した。
トランスウェル細胞遊走能試験
トランスフェクションしたLUSC細胞をトランスウェル上部チャンバーの無血清培地に播種し、下部チャンバーには10%胎児牛血清を添加した培地500 µLを注入した。24時間後、遊走した細胞を4%パラホルムアルデヒドで固定し、クリスタルバイオレットで10分間染色した。上部メンブレン表面に留まった非遊走細胞を綿棒で除去した。遊走細胞を同一の撮影設定にて顕微鏡で撮影し、ImageJ (RRID: SCR_003070)を用いて定量化した。
m6Aメチル化修飾
全般的なm6A含有量は、比色法RNAメチル化アッセイを用いて測定した。RNAの抽出および品質評価後、各アッセイウェルに200 ngのRNAを添加した。キャプチャー抗体(50 µL)を加え、室温で60分間静置した。ウェルを3回洗浄し、50 µLの検出抗体を加えて30分間インキュベートした後、4回洗浄し、さらにシグナル増強溶液で30分間インキュベートした。吸光度を450 nmで測定した。すべての手順は、キットに記載された指示に従った。
mRNA安定性の検出
LUSC細胞を6ウェルプレートに播種し、ネガティブコントロールsmall interfering RNA (si-NC)またはMETTL3標的small interfering RNA (si-METTL3)を導入した。48時間後、転写を停止させるためにアクチノマイシンDを5 µg/mL添加した。0時間、2時間、4時間、および6時間後に細胞を回収して全RNAを抽出し、qRT-PCRによりFOXD1転写産物の量を測定した。
シクロヘキシミド(CHX)およびMG132アッセイ
各阻害剤エンドポイントアッセイでは、未処理のベクターコントロール細胞、阻害剤処理したベクターコントロール細胞、および阻害剤処理したMETTL3過剰発現細胞を比較した。MG132は10 µM、CHXは20 µMで使用し、12時間後にウェスタンブロッティング用のライセートを回収した。CHXタイムコースでは、si-NCまたはsi-METTL3を導入した細胞を20 µMのCHXで処理し、0 h、3 h、6 h、および9 hに回収した。FOXD1タンパク質の存在量はウェスタンブロッティングにより測定した。
in vivo 実験
5週齢の胸腺欠損BALB/cヌードマウスを、陰性対照群およびFOXD1ノックダウンSK-MES-1群に割り当てた(各群n = 8匹)。各マウスに約8×10^6個の細胞を皮下注射した。 × 106 細胞。腫瘍のモニタリングは移植の1週間後から開始し、20日間連続して4日ごとに腫瘍サイズを記録した。接種後27日目の最終測定直後に、承認済みの施設内プロトコルに従ってマウスを安楽死させ、腫瘍を摘出・計量し、写真を撮影した。移植には、安定的にFOXD1をノックダウンしたSK-MES-1細胞群と、それに対応するネガティブコントロールのSK-MES-1細胞群を用いた。
免疫化学
摘出した腫瘍をパラフィン包埋し、4–5 µmの厚さで切片を作成した。切片を脱パラフィン化して親水化させ、一次抗体とともに4 °Cで一晩インキュベートし、その後、適切な二次抗体で30分間インキュベートした。抗原陽性細胞はジアミノベンジジン基質を用いて可視化した。キセノグラフトにおいてFOXD1およびKi-67を評価し、ペアとなる切片を同一の染色バッチで処理し、同一の取得設定で撮像した。
統計解析
解析にはGraphPad Prism version 8 (RRID: SCR_002798)およびR (RRID: SCR_001905)を用いた。2群間の比較にはStudent's t-testを用い、3群以上の比較には分散分析を用いた。ヒト組織のペア解析には12組の患者ペアを用い、in vitroの要約データは3回の独立した生物学的実験の結果を示している。ゼノグラフト解析には1群あたり8匹のマウスを用いた。テクニカルレプリケートは独立した観察値として扱わなかった。データは平均値 ± 標準偏差で提示している。両側 P < 0.05 を統計的に有意とみなした。
結果
ヒトLUSC組織においてFOXD1の発現が亢進している
GEPIA(gene expression profiling interactive analysis)によるクエリの結果、正常肺サンプルと比較してLUSCでFOXD1転写産物の量が多いことが示されましたが、肺腺癌の比較では有意差には至りませんでした(図1A)。12組のLUSCおよび隣接非腫瘍組織の解析では、qRT-PCRおよびウェスタンブロッティングにより同様の変化方向が認められました(図1B、C)。免疫組織化学染色においても、対照となる隣接組織よりも腫瘍切片でより強いFOXD1シグナルが示されました(図1D)。
FOXD1のノックダウンは、LUSC細胞の生存率と遊走能を低下させ、アポトーシスを増加させる
FOXD1転写産物の量は、BEAS-2B細胞よりもSK-MES-1細胞およびNCI-H226細胞で多かった(図2A)。3種類のFOXD1標的siRNAをスクリーニングした結果、qRT-PCRおよびウェスタンブロッティングで最大の減少が認められたsiRNA-1を、以降のアッセイに採用した(図2B、C)。陰性対照と比較して、FOXD1のノックダウンは、両方のLUSC細胞株において、Cell Counting Kit-8シグナルの減少(図2D)、Annexin V陽性細胞の増加(図2E)、およびTranswell遊走の減少(図2F)を引き起こした。単一の選択した試薬のみを継続して使用したため、機能的結果はオフターゲット効果の配列非依存的な排除を構成するものではない。
LUSCサンプルにおいてMETTL3の発現はFOXD1と相関している
m6Aメチル化は、真核生物に広く存在する動的かつ可逆的な化学修飾であり、メチルトランスフェラーゼおよび脱メチル化酵素によって調節され、m6A結合タンパク質によって認識および処理されます18。全般的なm6Aシグナルは、対照となる隣接組織よりも12例のLUSC組織において高く、またBEAS-2B細胞よりも2つのLUSC細胞株の両方において高い値を示しました(図3A)。METTL3、METTL14、WTAP、およびRBM15をコードする転写産物は、対となる腫瘍サンプルにおいて増加していました(図3B)。GEPIAデータおよび12例の腫瘍セット全体において、FOXD1はMETTL3と最も明確な正の相関を示し、RBM15との相関はより弱いものでした(図3C、D)。ウェスタンブロッティングにより、腫瘍組織においてMETTL3の存在量が高いことがさらに示されました(図3E)。これらの解析は共変動を立証するものであり、直接的な調節を証明するものではありません。
METTL3のノックダウンによりFOXD1の存在量およびLUSC細胞の表現型が変化する
qRT-PCRおよびウェスタンブロッティングにより、SK-MES-1細胞およびNCI-H226細胞において3種類のMETTL3標的小型干渉RNAのスクリーニングを行った(図4A,B)。METTL3のノックダウンにより、グローバルなm6Aシグナルが低下した(図4C)。FOXD1の過剰発現により、METTL3を増加させることなくFOXD1が増加し(図4D)、4群を用いたレスキュー実験により、METTL3ノックダウン後にFOXD1の存在量が低下すること、およびFOXD1構築物によってそれが回復することが確認された(図4E,F)。METTL3のノックダウンは生存能と遊走能を低下させ、アポトーシスを増加させたが、FOXD1の再発現はこれらの変化を部分的に抑制した(図4G–I)。したがって、レスキューデータは、培養細胞においてFOXD1がMETTL3の下流で機能していることと一致している。
METTL3の摂動はFOXD1のRNAおよびタンパク質の安定性と関連している
m6A mRNA修飾が、pre-mRNAのスプライシング、翻訳、核細胞質輸送、分解、およびスプライシングを含むmRNAサイクルのさまざまな側面を調節することが、多くの証拠によって示唆されています19,20。SRAMPはFOXD1 RNAにおけるm6Aモチーフ候補を特定し、m6A2TargetはH1299細胞におけるFOXD1関連の予測ライターとしてMETTL3をリストアップしました(図 5A、B)。これらのデータベース出力は仮説を生成するためのものであり、LUSC細胞における結合や部位特異的なメチル化を証明するものではありません。アクチノマイシンDによる転写阻害の後、METTL3ノックダウン後のFOXD1 RNAは、コントロール細胞よりも急速に減少しました(図 5C)。MG132処理したMETTL3過剰発現細胞では、MG132処理したベクターコントロールよりもFOXD1の存在量が高かった一方、このパターンはCHX処理後には観察されませんでした(図 5D、E)。CHXの時間経過では、METTL3ノックダウン後にFOXD1タンパク質がより速く消失することが示されました(図 5F)。総合的に、これらのアッセイはMETTL3に関連したFOXD1 RNAおよびタンパク質の安定性の変化と一致していますが、修飾されたアデノシンの特定、直接的な結合の証明、またはm6Aリーダーの定義を行うものではありません。
FOXD1のノックダウンによりLUSC異種移植片の増殖が抑制される
FOXD1の機能をin vivoで検証するため、コントロール群およびFOXD1ノックダウンSK-MES-1細胞をヌードマウス(各群n = 8)の皮下に移植した。移植から1週間後より、腫瘍の大きさを4日ごとに20日間測定し、接種後27日目に腫瘍を回収した。摘出した腫瘍は、FOXD1ノックダウン群でより小さく(図6A)、成長曲線の上昇はより緩やかであり(Figure 6B)、最終重量も低かった(Figure 6C)。また、ノックダウン腫瘍ではFOXD1およびKi-67の染色は減少していた(Figure 6D)。これらの実験はFOXD1のノックダウンのみを評価したものであり、METTL3阻害をin vivoで検証したものではない。
以上の結果をまとめると、FOXD1は肺扁平上皮細胞癌の組織および細胞において過剰発現しており、増殖、遊走、およびゼノグラフトの成長を促進していました。METTL3のノックダウンにより、全体的なm6Aレベルが低下し、FOXD1の発現が減少し、悪性細胞表現型が抑制されましたが、FOXD1を再発現させることでこれらの影響が部分的に回復しました。安定性試験の結果は、METTL3によるFOXD1の転写後調節を支持していますが、部位特異的な直接的なメチル化や、完全な経路のin vivoでのレスキューを立証するまでには至っていません。研究デザインの概要は図7に示されています。
データの可用性:
本研究で分析したすべてのデータは、本文および図表に含まれている。報告された要約の根拠となる匿名化済みの数値データは、機関のガバナンスおよび参加者保護の要件に従い、合理的な要求があれば責任著者から入手可能である。シミュレーションファイルやカスタム分析コードは使用していない。
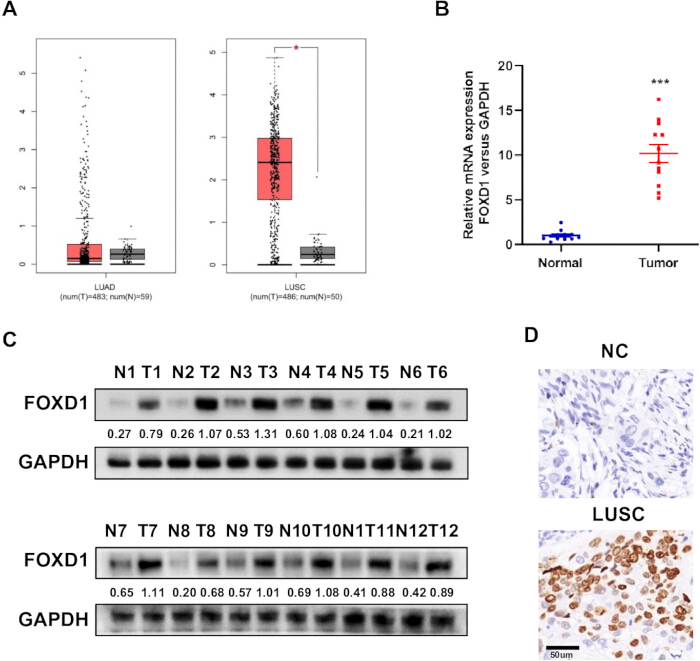
図1: ヒト肺癌検体におけるFOXD1の発現。 (A) 肺腺癌(LUAD)および肺扁平上皮癌(LUSC)と正常肺検体との間におけるFOXD1転写産物量のGEPIA比較。 (B) 12組のペアとなったLUSCおよび隣接非腫瘍組織におけるFOXD1転写産物量。 (C) 同ペア組織におけるFOXD1タンパク質量。 (D) FOXD1免疫組織化学染色の代表像。ヒト組織 n = 12ペア;in vitro形式の技術的反復は、患者レベルのn値に影響しない。パネルDのスケールバー = 50 µm。***P < 0.001。 こちらのリンクをクリックして、この図の拡大版を表示してください。
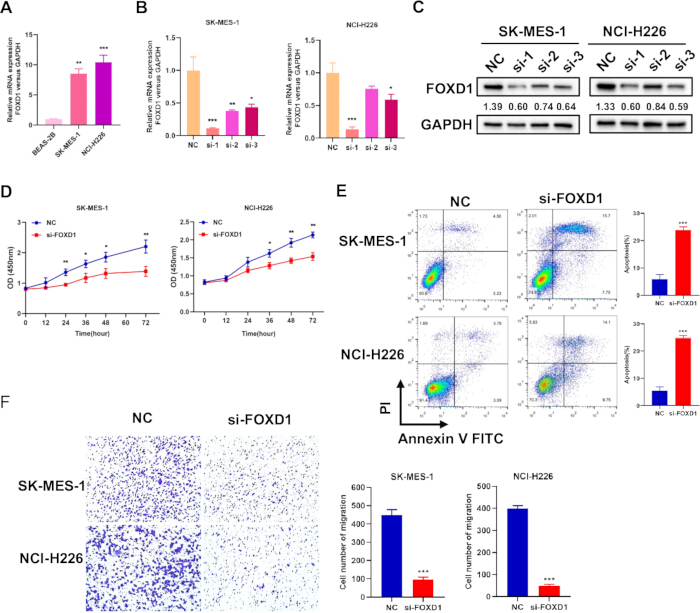
図2SK-MES-1細胞およびNCI-H226細胞におけるFOXD1ノックダウンの影響. (A) BEAS-2B、SK-MES-1、およびNCI-H226細胞におけるFOXD1転写産物量。(B) トランスフェクション48時間後における、3種類のFOXD1標的スモールインターフェアリングRNAのqRT-PCRスクリーニング。 (C) 同じ3種類のFOXD1標的小分子干渉RNAを用いたウェスタンブロット・スクリーニング。(DFOXD1ノックダウン後のCell Counting Kit-8アッセイ。E) 48時間後のAnnexin V-フルオレセインイソチオシアネート/プロピジウムヨードによるアポトーシス解析。 (F) Transwell移行能は、 transfection 後の細胞を播種して24時間後に測定した。アーカイブされた視野画像は、キャリブレーションのメタデータが得られなかったため、遡及的なスケールバーなしで提示している。3回の独立した生物学的実験を実施した。*P < 0.05; **P < 0.01; ***P < 0.001. こちらの図の拡大版を表示するには、ここをクリックしてください。
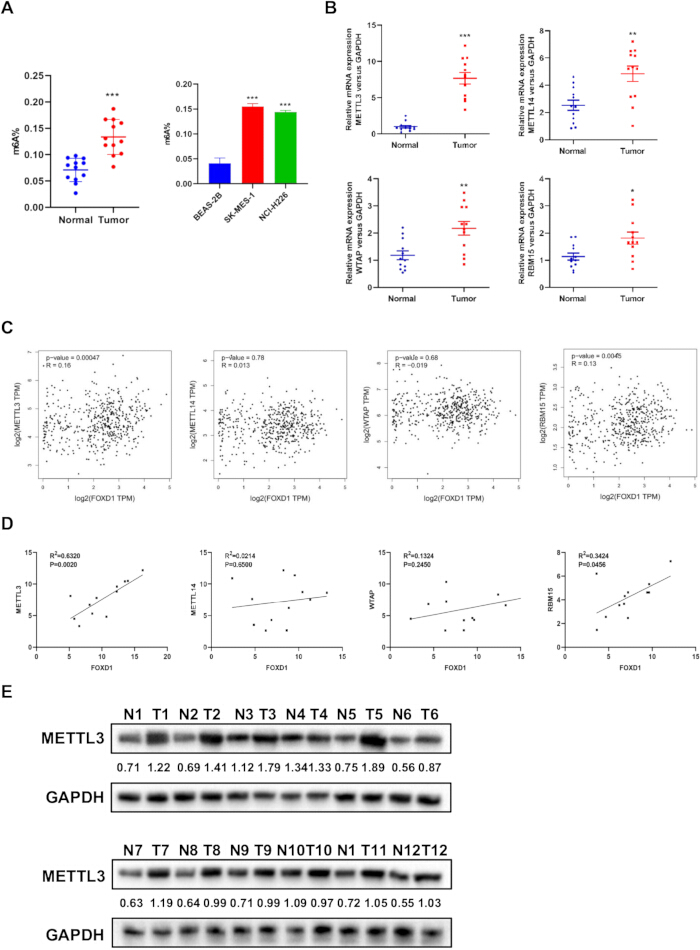
図3: 全体的なN6-メチルアデノシンおよびMETTL3とFOXD1の関連. (A) ペア組織ならびにBEAS-2B、SK-MES-1、NCI-H226細胞における全体的なm6Aシグナル. (B) 12組のLUSCおよび隣接組織におけるMETTL3、METTL14、WTAP、RBM15の転写産物. (C) GEPIAによるFOXD1と各ライターの相関. (D) 12例のLUSC腫瘍におけるFOXD1とライター転写産物の相関. (E) ペアのLUSCおよび隣接組織におけるMETTL3タンパク質. ヒト組織 n = 12ペア;細胞アッセイは3回の独立した生物学的実験の結果を示す。*P < 0.05; **P < 0.01; ***P < 0.001. この図の拡大版を表示するには、ここをクリックしてください。
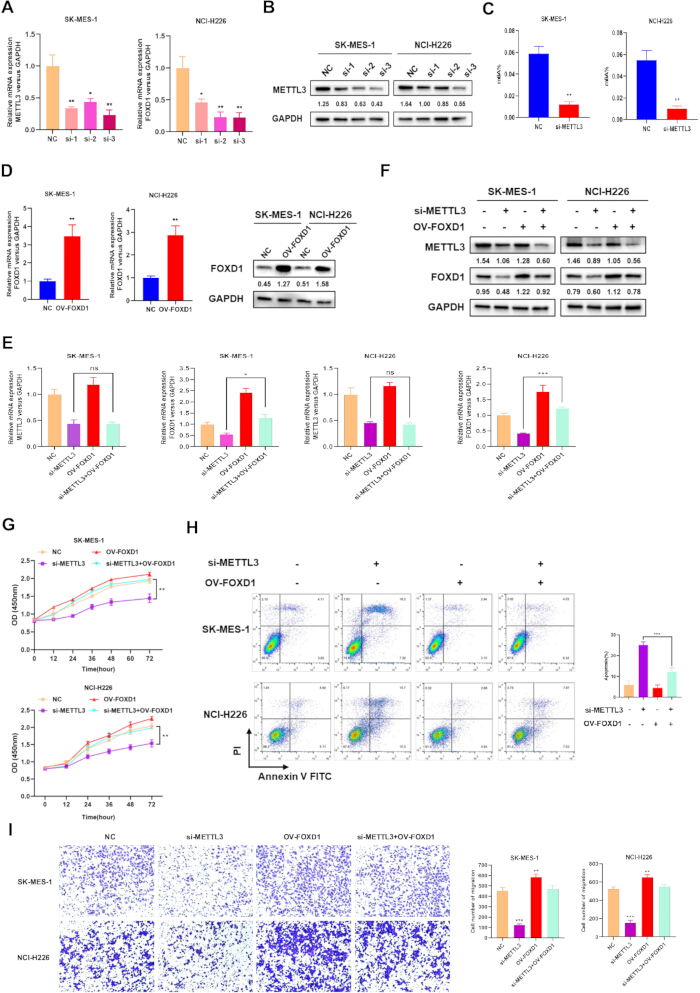
図4: METTL3ノックダウン、FOXD1レスキュー、およびLUSC細胞の表現型. (A) トランスフェクション48時間後における3種類のMETTL3標的small interfering RNAのqRT-PCRスクリーニング. (B) 同一の3種類のMETTL3標的small interfering RNAのウェスタンブロットスクリーニング. (C) METTL3ノックダウン後の全般的m6Aシグナル. (D) FOXD1過剰発現後のFOXD1転写産物およびタンパク質量. (E) コントロール、si-METTL3、ov-FOXD1、およびsi-METTL3 + ov-FOXD1併用条件下で測定したMETTL3およびFOXD1の転写産物量(qRT-PCRによる). (F) 同一のレスキュー群においてウェスタンブロッティングで測定したMETTL3およびFOXD1のタンパク質量. (G) Cell Counting Kit-8アッセイ. (H) フローサイトメトリーによるアポトーシス解析. (I) Transwell細胞遊走試験. 3回の独立した生物学的実験を実施した。ウェスタンブロットバンドの下の数値は、正規化した標的タンパク質/GAPDH比を示す。ns: 有意差なし; *P < 0.05; **P < 0.01; ***P < 0.001. ここをクリックして、この図の拡大版を表示してください。
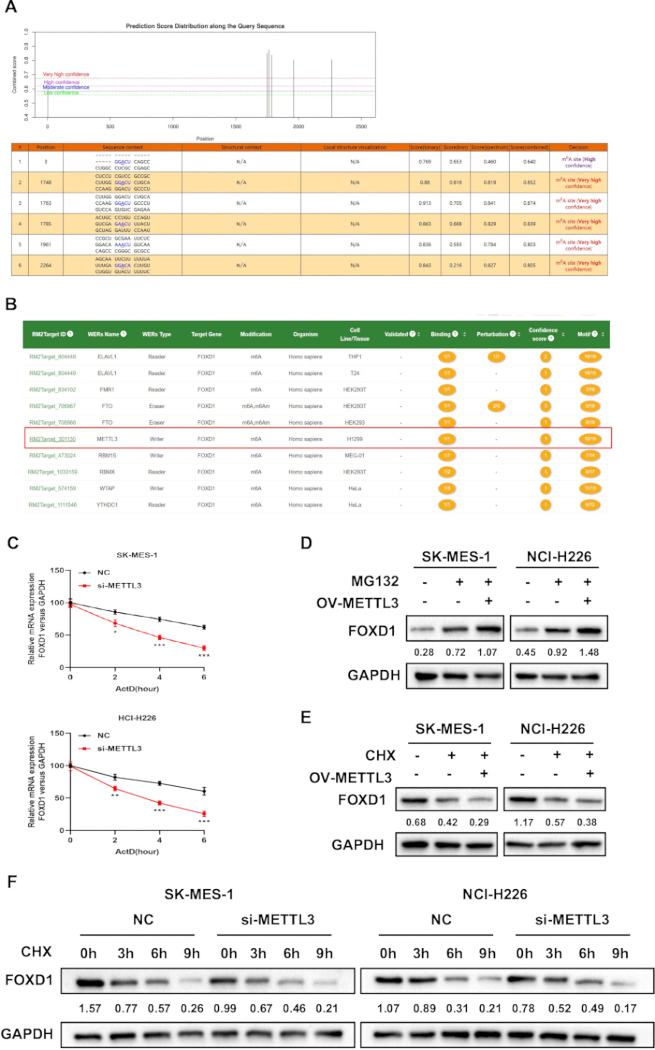
図5METTL3はFOXD1の転写産物およびタンパク質の調節に関与している. (ASRAMPによって予測されたFOXD1転写産物内のN6-メチルアデノシン部位。B) m6Aターゲット予測により、FOXD1に関連する候補ライターとしてMETTL3を特定した。 (C)アクチノマイシンD処理後のFOXD1 mRNAの相対的量 5 µg/mL 陰性対照群およびMETTL3ノックダウン細胞において、0時間、2時間、4時間、および6時間で。D未処理のベクターコントロール細胞、MG132処理したベクターコントロール細胞、およびMG132処理したMETTL3過剰発現細胞におけるFOXD1タンパク質の存在量(10 µM MG132). (E未処理のベクターコントロール細胞、CHX処理したベクターコントロール細胞、およびCHX処理したMETTL3過剰発現細胞におけるFOXD1タンパク質の存在量(20 µM CHX). (FCHX処理後のFOXD1タンパク質発現量 20 µM 陰性対照細胞およびMETTL3ノックダウン細胞において、0時間、3時間、6時間、および9時間で解析した。GAPDHをローディングコントロールとして用いた。細胞実験は3回の独立した生物学的反復で行った。提示したブロットは代表的なものであり、バンド下の数値は標準化したFOXD1/GAPDH比を示す。*P < 0.05; **P < 0.01; ***P < 0.001. こちらの図の拡大版を表示するには、ここをクリックしてください。
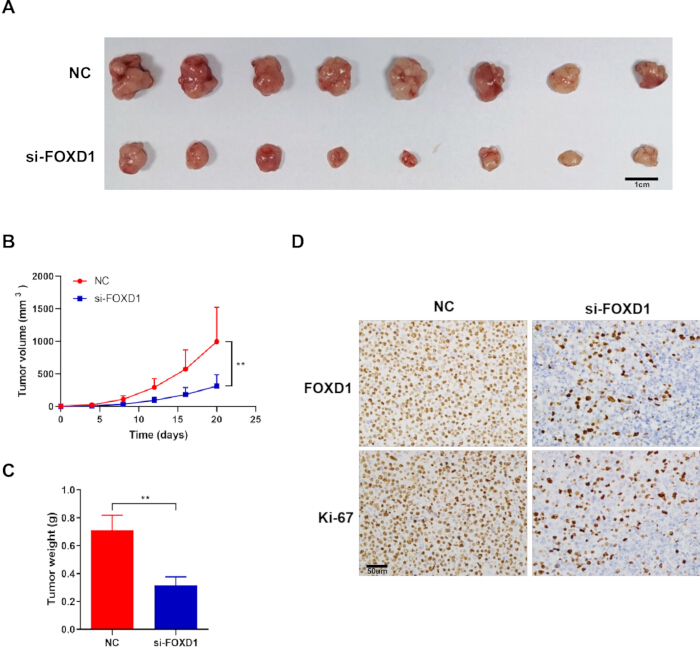
図 6: FOXD1のノックダウンによるSK-MES-1異種移植片の成長抑制. (A) 陰性対照群およびFOXD1ノックダウン群から摘出した腫瘍。スケールバー = 1 cm. (B) 植え込みから1週間後を開始点とし、20日間にわたって4日ごとに測定した腫瘍成長。回収は接種後27日目に実施した. (C) 回収時の腫瘍重量. (D) 異種移植組織におけるFOXD1およびKi-67の代表的な免疫組織化学染色像。スケールバー = 50 µm. 各群 n = 8匹; **P < 0.01. こちらのリンクをクリックして、この図の拡大版を表示してください。
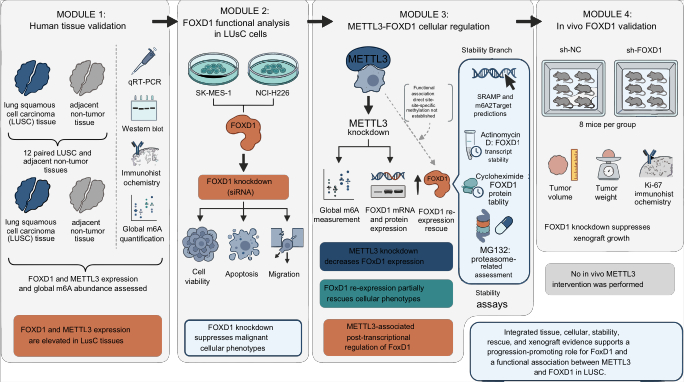
図7全体的な研究デザインおよびエビデンスの境界ペアのLUSC組織(n = 12ペア)および細胞株を用いて、FOXD1、METTL3、およびグローバルm6Aのプロファイリングを行った。遺伝的摂動およびレスキューの後、生存能、アポトーシス、遊走、および安定性アッセイを実施した。FOXD1ノックダウン異種移植モデル(1群あたりn = 8匹のマウス)を20日間観察した。図では、細胞ベースのMETTL3のエビデンスとFOXD1特異的なエビデンスを区別している。 in vivo 根拠を提示し、直接的な結合、部位特異的なm6A、リーダーの正体、および in vivo METTL3活性は未検証。 この図の拡大表示をご覧になるには、こちらをクリックしてください。
| 遺伝子 | 方向 | 配列 (5′–3′) |
| FOXD1 | フォワード | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | リバース | CGGAATCGGACGCAAGTCTT |
| GAPDH | フォワード | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | リバース | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | フォワード | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | リバース | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | フォワード | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | リバース | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | フォワード | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | リバース | CACTTAAAACACCGGCATTGG |
| WTAP | フォワード | GCAACAACAGCAGGAGTCTGCA |
| WTAP | リバース | CTGCTGGACTTGCTTGAGGTAC |
表1:定量逆転写ポリメラーゼ連鎖反応(qRT-PCR)プライマー配列。配列は5′–3′方向に記載している。
ディスカッション
本ワークフローは、ペア組織、2つの細胞株、および異種移植モデルを用いて、LUSCにおけるFOXD1の役割を裏付けるものである。FOXD1は腫瘍検体およびLUSC細胞で高発現しており、その枯渇は生存能と遊走能を低下させ、アポトーシスを増加させた。これらの知見は、いくつかの癌においてFOXD1が増殖、浸潤、治療耐性、および不良な転帰に関連しているという報告と一致している10,11,12,13,21,22,23,24,25,26,27,28。また、細胞ベースの表現型をFOXD1ノックダウン異種移植実験と結びつけることで、これまでのLUSCにおける観察結果を拡張するものである。
ペア組織および細胞解析により、FOXD1の存在量とMETTL3および全般的なm6Aとの関連性がさらに明らかになった。12組の腫瘍ペアにおいて4つのライター遺伝子が上昇していたが、METTL3がFOXD1と最も強い正の相関を示した。培養細胞において、METTL3の枯渇は全般的なm6AおよびFOXD1の存在量を減少させ、FOXD1の再発現は、それに伴う生存能、アポトーシス、および遊走の表現型を部分的に回復させた。これらのデータは、テストした細胞におけるMETTL3-FOXD1の機能的関係を支持しており、これは悪性表現型に対するm6A調節の広範な影響と一致している29,30,31,32,33,34,35,36。
再現性のために、いくつかのプロトコル上の留意点が重要である。機能アッセイの前に、各細胞株でノックダウン効率を確認する必要があり、レスキュー条件下では、構築物をMETTL3の過剰発現として解釈することなく、FOXD1の回復を検証しなければならない。アクチノマイシン D、CHX、およびMG132による処理は、プロトコルに記載された濃度およびサンプリング時間を遵守すること。Transwellアッセイでは、細胞密度、血清濃度勾配、および一貫したイメージング視野を制御する必要がある。研究者がワークフローを適応させる場合、長期間のin vivo実験には安定的なショートヘアピンRNAまたはゲノム編集が好ましい可能性があるが、これらの代替手法には独立した検証が必要である。
本研究にはいくつかの限界がある。ヒトコホートは12組のペアサンプルで構成されており、アウトカムモデリングを目的とした設計になっていない。機能解析に導入された小型干渉RNAは選択された1種類のみであるため、配列に依存しないオフターゲット検証は達成されていない。ウェスタンブロットの解釈は、図に示された標準化された値に限定されており、事後推論検定は行われていない。SRAMPおよびm6A2Targetによる予測、グローバルなm6A測定、および安定性解析は、RNA免疫沈降法、メチル化RNA免疫沈降法、部位特異的変異導入、またはリーダー特異的なレスキューに代わるものではない。METTL3への摂動は行わなかった。 in vivoしたがって、ゼノグラフトのデータでは〜を支持できない in vivo METTL3の主張
今後の研究では、薬理学的なMETTL3阻害の検証、FOXD1に関連するm6A部位および直接結合のマッピング、関連するリーダータンパク質の同定、およびin vivoでのレスキュー戦略の再現を行う必要があります。また、臨床転帰を評価するためには、独立してアノテーションされたより大規模なコホートが必要となります。本研究の現在の範囲内において、本研究はFOXD1が機能的なLUSC調節因子であることを支持し、METTL3がFOXD1の量に影響を与えるという細胞ベースの根拠を提供するものであり、完全なMETTL3-m6A-リーダー-FOXD1経路を確定させるものではありません。
開示事項
著者らは、利益相反がないことを宣言します。
著者 貢献:
D.A.およびQ.D.は、データ収集および臨床情報の取得に貢献した。K.W.およびS.F.は、分子生物学実験およびデータ解析を行った。L.G.は、研究デザインおよびデータの解釈に参加した。H.Z.は、統計解析を行い、データの検証を補助した。Y.S.は、動物実験および免疫組織化学的解析を実施した。Q.P.は、遊走アッセイおよび実験リソースに貢献した。G.L.は、研究を構想・監督し、原稿を起草した。すべての著者が原稿を確認、修正し、承認した。
謝辞
著者は、定量PCRおよびウェスタンブロッティングの技術支援をそれぞれ行ったZhe Tang氏とYan Zhang氏、ならびに細胞生存率およびアポトーシスアッセイの支援を行ったYang Li氏に感謝いたします。本研究は、西蔵自治区自然科学基金(No. XZ202001ZR0040G)の助成を受けて実施されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 7500 Fast リアルタイムPCRシステム | Applied Biosystems | 7500 Fast | qRT-PCR (RRID: SCR_018051) |
| アクチノマイシンD | Sigma-Aldrich | SBR00013 | RNA安定性アッセイ 5 µg/mL |
| Annexin V-FITC/PI アポトーシス検出キット | BD Biosciences | 556547 | フローサイトメトリーによるアポトーシス解析 |
| 胸腺欠損BALB/cヌードマウス | 該当なし | 該当なし | 皮下異種移植 |
| BEAS-2B | 中国科学院細胞バンク | 細胞株名: HeLa 由来: 人類 組織: 子宮頸部 疾患: 子宮頸がん 種: Homo sapiens (ヒト) 細胞種: 上皮細胞 サブタイプ: 腺がん 特性: - 腫瘍形成能: はい - 不死化: はい - 形態: 上皮様 培養条件: - 推奨培地: MEM (Minimum Essential Medium) - 添加剤: 10% FBS (胎児牛血清) - 培養条件: 37°C, 5% CO2 記述: HeLa細胞は、1951年にヘンリエッタ・ラックスという女性の子宮頸がん組織から分離された、世界で最も広く使用されている不死化細胞株の一つである。 キーワード: 子宮頸がん, 不死化細胞, 上皮細胞, HeLa細胞, ヒト由来細胞株 | 非腫瘍性気管支上皮リファレンス; RRID: CVCL_0168 |
| 細胞数測定キット-8 | Beyotime | C0037 | 細胞生存率 |
| クリスタルバイオレット | 該当なし | 該当なし | Transwell染色、10分 |
| シクロヘキシミド | MedChemExpress | HY-12320 | タンパク質安定性アッセイ、 20 µM |
| DAB基質キット | 該当事項なし | 該当なし | 免疫組織化学的可視化 |
| ダルベッコ修正イーグル培地 | Gibco | 11995065 | 細胞培養 |
| 化学発光増幅試薬 | Thermo Fisher Scientific | A38556 | ウェスタンブロット検出 |
| ウシ胎児血清 | Gibco | 10091148 | 細胞培養, 10% |
| フローサイトメーター | 該当なし | 該当なし | アポトーシス測定 |
| FOXD1抗体 | Thermo Fisher Scientific | PA5-27142 | ウェスタンブロット、1:1,000、免疫組織化学染色 |
| FOXD1過剰発現コンストラクト | 該当なし | 該当なし | FOXD1レスキュー |
| GAPDH抗体 | Cell Signaling Technology | 5174 | ウェスタンブロット用ローディングコントロール、1:2,000 (RRID: AB_10622025) |
| GEPIA | 北京大学 | http://gepia.cancer-pku.cn/ | 発現および相関クエリ; RRID: SCR_018294 |
| GraphPad Prism | GraphPadソフトウェア | バージョン8 | 統計解析; RRID: SCR_002798 |
| 西洋わさびペルオキシダーゼ標識抗ウサギ免疫グロブリンG | 該当なし | 該当事項なし | ウェスタンブロッティング、室温で1時間 |
| ImageJ | 米国国立衛生研究所 | https://imagej.nih.gov/ij/ | 遊走画像の定量化; RRID: SCR_003070 |
| Ki-67抗体 | 該当なし | 該当なし | 異種移植免疫組織化学染色 |
| m6A2ターゲット | ウェブリソース | http://m6a2target.canceromics.org/ | 予測されたm6A調節因子-標的の関連性 |
| メチル基転移酵素様3抗体 | Proteintech | 15073-1-AP | ウェスタンブロット、1:1,000; RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | プロテアソーム阻害アッセイ 10 µM |
| N6-メチルアデノシン比色アッセイ | Epigentek | P-9005-96 | 全般的なm6A測定 |
| NCI-H226 | 中国科学院細胞バンク | 細胞株: HeLa (S3) 細胞株 ID: CVCL_1544 概要: ヒト子宮頸がん由来の細胞株。1952年に S3 への継代を通じて確立された。 特性: - 組織: 子宮頸部 - 疾患: 子宮頸がん - 種: Homo sapiens (ヒト) - 形態: 上皮様 特性詳細: - 形態: 上皮様 - 増殖特性: 付着性 - 継代番号: S3 由来: - 組織: 子宮頸部 - 疾患: 子宮頸がん - ドナー: HeLa 認証: - STR 解析: 認証済み 培養条件: - 推奨培地: DMEM (Dulbecco's Modified Eagle Medium) - 添加剤: 10% FBS (ウシ胎児血清) キーワード: ヒト, 子宮頸がん, 上皮細胞, 腫瘍細胞, HeLa, S3 | LUSC細胞モデル; RRID: CVCL_1544 |
| Olympus顕微鏡 | Olympus | モデルは記録されていません | Transwellイメージング |
| ペニシリン-ストレプトマイシン | Gibco | 10378016 | 細胞培養, 1% |
| ポリフッ化ビニリデン膜 | Merck | IPVH00010 | ウェスタンブロット転写 |
| PrimeScript 逆転写試薬キット | Takara | RR037A | 相補的DNA合成 |
| 統計コンピューティングのためのRプロジェクト | R Foundation | Rプロジェクト | 統計解析; RRID: SCR_001905 |
| 放射免疫沈降法用溶解バッファー | Beyotime | P0013B | タンパク質抽出 |
| RNAiso Plus | タカラバイオ | 9108 | RNA抽出 |
| siRNA試薬 | 該当事項なし | 該当なし | FOXD1およびMETTL3のノックダウン;siRNA-1を選択 |
| SK-MES-1 | 中国科学院細胞バンク | 細胞株:HEK293 別名:HEK 293, HEK-293, HEK293-A, HEK293-B, HEK293-C, HEK293-D, HEK293-E, HEK293-F, HEK293-G, HEK293-H, HEK293-T, Human Embryonic Kidney 293 由来:ヒト胚性腎臓 種:Homo sapiens(ヒト) 組織:腎臓 細胞種:上皮細胞 特性:不死化 培養条件: DMEM(10% FBS添加) 形態:上皮様 倍数性:異数性(推定) 認証:STRプロファイルにより確認済み 記述: HEK293(ヒト胚性腎臓293細胞)は、1970年代にヒト胚性腎臓細胞にアデノウイルス5型(Ad5)のDNAを導入して樹立された細胞株である。この細胞株は、高い転写活性と容易な形質導入能を持つため、タンパク質の発現、ウイルスベクターの作製、および細胞生物学の研究において世界的に広く利用されている。 キーワード:ヒト胚性腎臓, 上皮細胞, 不死化細胞, タンパク質発現, 転写活性 | LUSC細胞および異種移植モデル; RRID: CVCL_0630 |
| SRAMP | ウェブリソース | http://www.cuilab.cn/sramp | 候補となるFOXD1 m6A部位の予測 |
| TB Green PCRマスターミックス | Takara | RR820A | 定量リアルタイムPCR |
| トランスフェクション試薬 | 該当なし | 該当なし | siRNAおよびプラスミドの導入 |
| トランスウェルインサート | 該当なし | 該当なし | 遊走能アッセイ |
参考文献
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.